

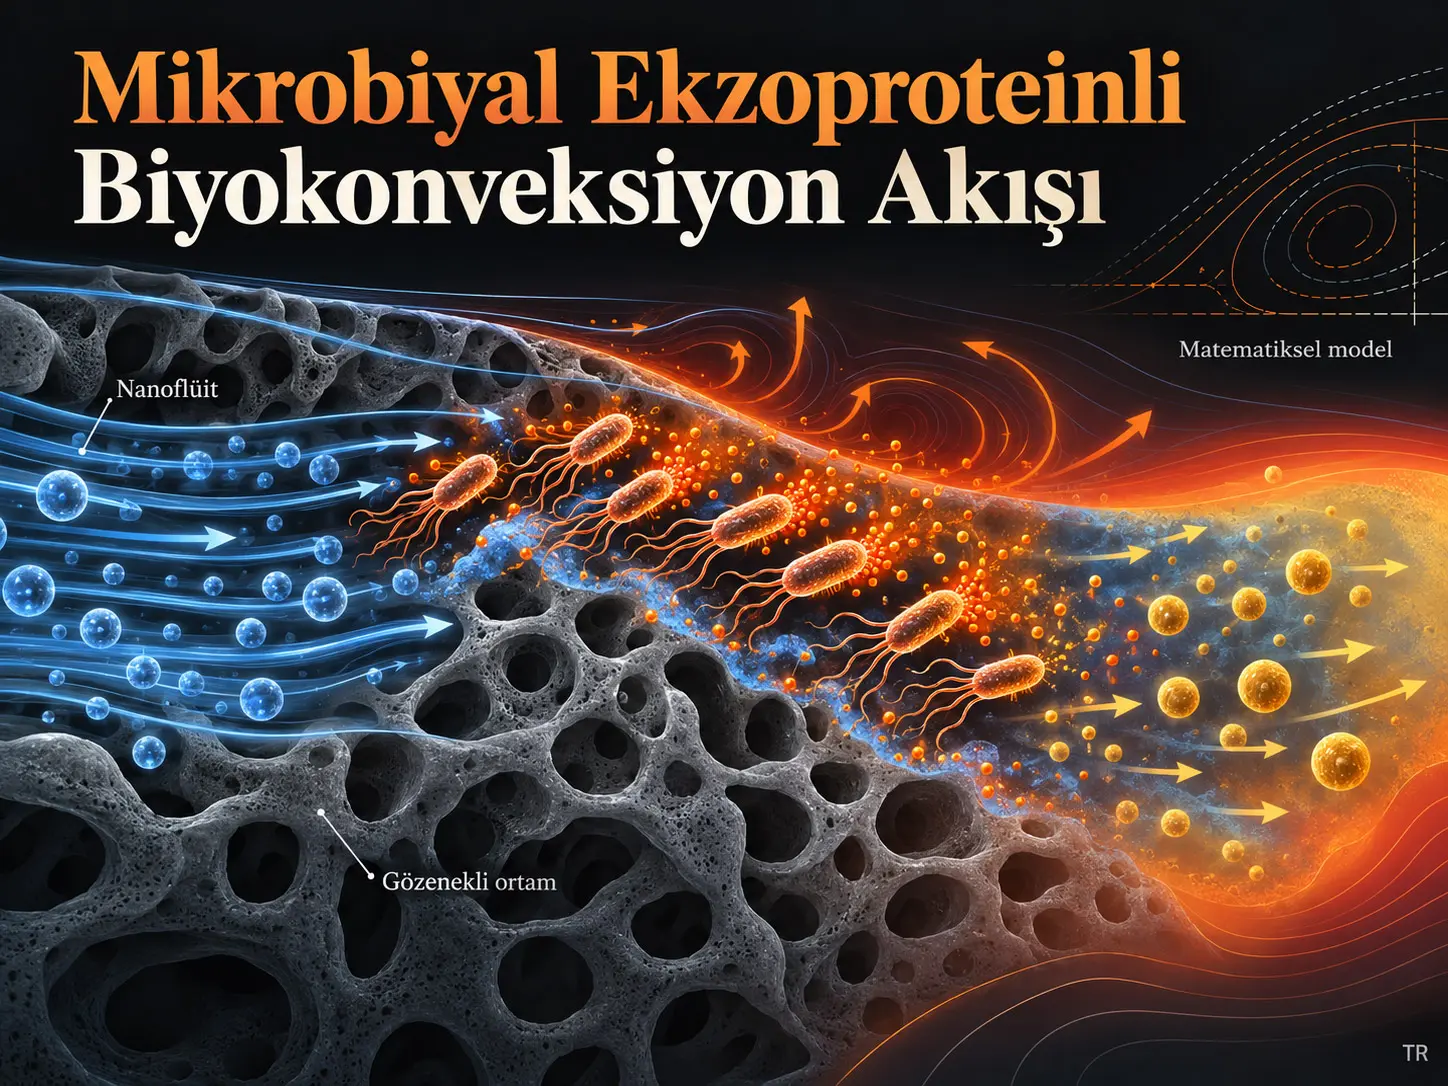
Mikrobiyal ekzoproteinli Darcy–Forchheimer biyokonveksiyon modeli, gözenekli bir ortamdan geçen iki boyutlu sıkıştırılamaz bir nanofluid içinde momentum, ısı, nanoparçacık, hareketli mikroorganizma, mikroorganizmaların salgıladığı ekzoprotein ve ekzoproteinden oluşan ürünün birlikte taşınmasını tanımlayan bir matematiksel sınır tabakası modelidir. Çalışma, mikroorganizmaların yalnız akışkan içinde taşındığını varsaymak yerine lojistik büyümelerini ve ekzoprotein üretim/bozunma dinamiklerini de diferansiyel denklem sistemine eklemektedir. Kısmi diferansiyel denklemler benzerlik dönüşümüyle adi diferansiyel denklemlere indirgenmiş ve spektral kuazilineerleştirme yöntemiyle sayısal olarak çözülmüştür.
Model sonuçları, manyetik alanın akış hızını azaltabildiğini; mikrobiyal büyüme oranı ve taşıma kapasitesi arttığında mikroorganizma, ekzoprotein ve nihai ürün profillerinin yükseldiğini; ekzoprotein üretim katsayısının artmasının ürün oluşumunu güçlendirdiğini ve doğal ekzoprotein bozunmasının ürün konsantrasyonunu azalttığını göstermektedir. Mikrobiyal Brownian hareket parametresinin artması ise mikroorganizma, ekzoprotein ve ürün profillerini düşürürken sıcaklık ve akış hızını yükseltmiştir.
Çalışma laboratuvar veya saha deneyi değildir. Sonuçlar belirli bir boyutsuz matematiksel model, seçilmiş veya varsayılmış parametreler ve sayısal çözüm altında elde edilmiştir. Düşük residual değerleri sayısal çözümün kendi denklem sistemini yüksek hassasiyetle sağladığını gösterir; gerçek biyolojik veya endüstriyel sistemin aynı niceliklerle davranacağını deneysel olarak kanıtlamaz.
Biyokonveksiyon nedir?
Biyokonveksiyon, hareket edebilen mikroorganizmaların yönlü ve toplu yüzme davranışının akışkan içinde makroskopik yoğunluk farklılıkları ve konvektif hareket oluşturduğu bir akış olgusudur. Bu çalışmada biyokonveksiyon, nanoparçacık içeren bir akışkanın gözenekli ortam içindeki sınır tabakası akışıyla birlikte modellenmektedir.
Nanofluid, temel akışkanın içine nanoskopik parçacıkların eklendiği bir akışkandır. Model bu parçacıkların Brownian hareketini, termoforezi, manyetik alan etkisini, ısıl taşınımı ve gözenekli ortam sürüklenmesini aynı sistem içinde ele almaktadır.
Mikroorganizmalar ve Ekzoproteinler Bu Modelde Nasıl Birbirine Bağlanıyor?
Modelde mikroorganizmalar lojistik büyüme yasasıyla çoğalır, büyüyen mikroorganizma popülasyonu ekzoprotein üretir, ekzoprotein doğal bozunmaya uğrar ve ekzoprotein konsantrasyonu ayrıca kimyasal ürünün oluşumunu besler; böylece mikroorganizma → ekzoprotein → ürün bağlantısı ayrı taşınım denklemleriyle modellenir.
Çalışmanın literatür boşluğu
Kaynak, önceki biyokonveksiyon modellerinin çoğunda mikroorganizmaların duvardan sabit biçimde sisteme girdiğinin varsayıldığını ve kültür içindeki gerçek büyümenin ihmal edildiğini belirtmektedir. Buna ek olarak mikroorganizmaların çevreye salgıladığı protein/enzimlerin akış, ısı ve kütle transferiyle birlikte dinamik biçimde modellenmediği ifade edilmektedir.
Bu çalışma bu iki eksikliği aynı model içinde ele almaktadır: mikroorganizmalara lojistik büyüme terimi eklenmiş ve ekzoprotein için üretim, difüzyon ve doğal bozunma denklemi oluşturulmuştur.
Modelin fiziksel yapısı
Model iki boyutlu ve sıkıştırılamaz bir nanofluid akışını ele alır. Akışkan gözenekli bir ortamdan geçmektedir. \(u\), yüzeye paralel \(x\) doğrultusundaki; \(v\) ise yüzeye normal \(y\) doğrultusundaki hız bileşenidir.
Momentum denkleminde viskoz difüzyona ek olarak manyetik alan, Darcy gözenek direnci, doğrusal olmayan Forchheimer direnci, sıcaklık kaynaklı kaldırma, nanoparçacık konsantrasyonu kaynaklı kaldırma ve mikroorganizma yoğunluğu kaynaklı biyokonvektif kaldırma birlikte bulunmaktadır.
Enerji denklemi ısıl iletim, termal radyasyon, viskoz yayınım, manyetik/Joule etkileri, gözenek ortam kayıpları, Brownian taşınımı, mikroorganizma taşınımı ve termoforez terimlerini içerir.
Temel alan değişkenleri
| Değişken | Anlamı |
|---|---|
| \(u,v\) | Akışkanın iki hız bileşeni |
| \(T\) | Sıcaklık |
| \(C\) | Nanoparçacık konsantrasyonu |
| \(n\) | Mikroorganizma konsantrasyonu |
| \(m\) | Ekzoprotein konsantrasyonu |
| \(S\) | Ekzoproteinin oluşturduğu ürün/çözünen madde konsantrasyonu |
| \(p\) | Basınç |
Kaynakta basılan süreklilik denklemi
Kaynak Denklem 1'i şu biçimde vermektedir:
\[ \frac{\partial u}{\partial x}+\frac{\partial u}{\partial y}=0. \]
Kaynak daha sonra \(u\)'yu \(x\) doğrultusundaki, \(v\)'yi ise \(y\) doğrultusundaki hız bileşeni olarak tanımladığı için ikinci terimde tekrar \(u\) kullanılması kaynak içi bir notasyon uyumsuzluğu oluşturmaktadır. Verianla bu denklemi sessizce değiştirmemiştir.
Momentum denklemi
Kaynak Denklem 2'de momentum dengesini şu yapıda kurmaktadır:
\[ u\frac{\partial u}{\partial x} +v\frac{\partial u}{\partial y} = -\frac{1}{\rho}\frac{\partial p}{\partial x} +\nu\frac{\partial^2u}{\partial y^2} -\frac{\sigma B_0^2}{\rho}u -\frac{\nu}{K}u -\frac{C_b}{x\sqrt K}u^2 \]
\[ +(1-C_\infty)g\beta_T(T-T_\infty) -\frac{\rho_c-\rho}{\rho}g\beta_c(C-C_\infty) -\frac{\rho_n-\rho}{\rho}g\beta_n(n-n_\infty). \]
Burada \(-\nu u/K\) Darcy tipi gözenek direncini, \(-C_bu^2/(x\sqrt K)\) ise doğrusal olmayan Forchheimer sürüklenmesini temsil eder. Manyetik alan terimi de akışı yavaşlatan ek bir direnç bileşeni olarak modele girer.
Mikroorganizma büyümesi
Mikroorganizma denklemindeki biyolojik büyüme terimi kaynağın lojistik modeliyle şöyledir:
\[ r(n-n_\infty) \left( 1-\frac{n-n_\infty}{\Delta n K_n} \right). \]
\(r\) mikrobiyal büyüme oranını, \(K_n\) ise taşıma kapasitesini temsil eder. Mikroorganizma yoğunluğu düşükken büyüme pozitif olur; popülasyon taşıma kapasitesine yaklaştıkça büyüme teriminin etkisi azalır.
Ekzoprotein denklemi
Ekzoprotein taşınımı kaynak Denklem 6'da şu şekilde modellenmektedir:
\[ u\frac{\partial m}{\partial x} +v\frac{\partial m}{\partial y} = D_m\frac{\partial^2m}{\partial y^2} +\lambda(n-n_\infty) -\mu(m-m_\infty). \]
\(D_m\) ekzoproteinin Brownian difüzyon katsayısıdır. \(\lambda(n-n_\infty)\) mikroorganizmalara bağlı ekzoprotein üretimini, \(\mu(m-m_\infty)\) ise doğal ekzoprotein bozunmasını temsil etmektedir.
Bu denklem çalışmanın özgün bilimsel yapısının merkezidir: mikroorganizma sayısı arttığında üretim terimi yükselir; doğal bozunma arttığında ekzoprotein azalır.
Ürün denklemi
Ekzoproteinin oluşturduğu ürünün konsantrasyonu \(S\), Denklem 7 ile modellenmektedir:
\[ u\frac{\partial S}{\partial x} +v\frac{\partial S}{\partial y} = D_s\frac{\partial^2S}{\partial y^2} +\frac{D_T}{T_\infty}\frac{\partial^2T}{\partial y^2} +\lambda_s(m-m_\infty). \]
Buradaki \(\lambda_s(m-m_\infty)\) terimi ekzoprotein konsantrasyonunun ürün oluşumunu doğrudan beslediği matematiksel bağlantıdır.
Sınır koşulları
Kaynak duvarda \(u=cx\) şeklinde doğrusal gerilme hızını kullanmaktadır. Isı transferi konvektif sınır koşuluyla; nanoparçacık akısı Brownian ve termoforetik bileşenlerin toplamıyla; mikroorganizma transferi ise \(h_n\) katsayısıyla tanımlanmaktadır. Ekzoprotein ve ürün duvar konsantrasyonları sırasıyla \(m_w\) ve \(S_w\)'dir.
Yüzeyden sonsuza gidildiğinde hız, sıcaklık, nanoparçacık, mikroorganizma, ekzoprotein ve ürün alanları kendi ortam değerlerine yaklaşmaktadır.
Benzerlik dönüşümü
PDE sistemini daha kolay çözülebilen ODE sistemine indirgemek için kaynak şu benzerlik değişkenlerini kullanmaktadır:
\[ \psi=\sqrt{c\nu}\,x f(\eta), \qquad \eta=y\sqrt{\frac{c}{\nu}}, \qquad \theta(\eta)=\frac{T-T_\infty}{T_w-T_\infty}, \]
\[ \phi(\eta)=\frac{C-C_\infty}{C_w-C_\infty}, \qquad \chi(\eta)=\frac{n-n_\infty}{n_w-n_\infty}, \qquad \xi(\eta)=\frac{m-m_\infty}{m_w-m_\infty}, \]
\[ \varphi(\eta)=\frac{S-S_\infty}{S_w-S_\infty}, \qquad u=cxf'(\eta), \qquad v=-\sqrt{c\nu}\,f(\eta). \]
Bu dönüşüm sıcaklık, nanoparçacık, mikroorganizma, ekzoprotein ve ürün alanlarını boyutsuz profil fonksiyonlarına dönüştürür ve iki bağımsız koordinatlı PDE sistemini tek benzerlik değişkeni \(\eta\) üzerinden ODE sistemine indirger.
Dönüştürülmüş momentum denklemi
Denklem 10:
\[ f'''+ff''-Mf'-K_pf'-F_r(f')^2+ \frac{G_r}{Re^2} \left[ \theta-N_r\phi-R_b\chi \right]=0. \]
Bu denklemde \(M\) manyetik alanı, \(K_p\) Darcy geçirgenlik etkisini, \(F_r\) Forchheimer direncini, \(G_r\) termal kaldırmayı ve \(R_b\) biyokonvektif kaldırmayı temsil eden boyutsuz parametrelerdir.
Dönüştürülmüş nanoparçacık denklemi
Denklem 12:
\[ \phi''+S_cf\phi' +\frac{N_t}{N_b}\theta''=0. \]
\(N_b\) nanoparçacık Brownian hareket parametresi, \(N_t\) ise termoforez parametresidir. Termoforez, sıcaklık gradyanının mikroskobik parçacıkların hareketi üzerindeki etkisini temsil eder.
Dönüştürülmüş ekzoprotein denklemi
Denklem 14:
\[ \xi''+ S_d \left[ f\xi'-A_2\xi+A_1\chi \right] =0. \]
\(A_1\), mikroorganizmaların ekzoprotein üretim hızını boyutsuz biçimde temsil eder; \(A_2\) doğal ekzoprotein bozunmasıdır. Bu nedenle modelin biyolojik çekirdeği açık biçimde \(+A_1\chi\) üretim ve \(-A_2\xi\) kayıp terimleri üzerinden kurulmaktadır.
Dönüştürülmüş ürün denklemi
Denklem 15:
\[ \varphi'' + S_s \left[ f\varphi' +\tilde{\lambda}_s\xi \right] + \frac{N_t}{N_s}\theta'' =0. \]
\(\tilde{\lambda}_s\), ekzoproteinden ürün oluşumunu temsil eden boyutsuz üretim katsayısıdır.
Başlıca boyutsuz parametreler
| Parametre | Anlamı |
|---|---|
| \(Re\) | Reynolds sayısı; atalet / viskoz etki ilişkisi |
| \(M\) | Manyetik alan parametresi |
| \(K_p\) | Gözenekli ortam geçirgenlik parametresi |
| \(F_r\) | Forchheimer sayısı; doğrusal olmayan gözenek direnci |
| \(G_r\) | Grashof sayısı; kaldırma / viskoz etki ilişkisi |
| \(Pr\) | Prandtl sayısı |
| \(N_b\) | Nanoparçacık Brownian hareket parametresi |
| \(N_n\) | Mikrobiyal Brownian hareket parametresi |
| \(N_t\) | Termoforez parametresi |
| \(R_b\) | Biyokonveksiyon Rayleigh sayısı |
| \(P_b\) | Biyokonveksiyon Péclet sayısı |
| \(r\) | Mikrobiyal büyüme oranı |
| \(K_n\) | Mikrobiyal taşıma kapasitesi |
| \(A_1\) | Ekzoprotein üretim katsayısı |
| \(A_2\) | Doğal ekzoprotein bozunma katsayısı |
| \(\tilde{\lambda}_s\) | Ekzoproteinden ürün üretim katsayısı |
Schmidt sayısı sembolündeki kaynak uyumsuzluğu
Kaynak Denklem 17 ve açıklama metninde mikroorganizmalar için biyokonveksiyon Schmidt sayısını \(S_b=\nu/D_n\), ekzoprotein için Schmidt sayısını \(S_d=\nu/D_m\) biçiminde tanımlamaktadır. Buna karşılık Tablo 1 “Bioconvection Schmidt number” satırında \(S_d\) sembolünü kullanmakta ve daha sonra protein/ekzoprotein Schmidt sayısında da tekrar \(S_d\) göstermektedir. Bu nedenle biyokonveksiyon Schmidt sayısı için Tablo 1'deki sembol Verianla tarafından düzeltilmemiş, kaynak içi notasyon sorunu olarak işaretlenmiştir.
Çalışmanın Yöntemi ve Bulguları
Momentum, ısı ve kütle transfer göstergeleri
Model sınırdaki akış ve taşınım davranışını skin-friction, Nusselt, Sherwood ve mikroorganizma/ekzoprotein/ürün yoğunluk sayıları üzerinden değerlendirmektedir.
Kaynakta yerel skin-friction katsayısı:
\[ C_f=-2Re^{-1/2}f''(0) \]
olarak verilmiştir.
Yerel Nusselt sayısı:
\[ Nu_x = -\left(1+\frac{4}{3}R_d\right) Re^{1/2}\theta'(0) \]
ve yerel Sherwood sayısı:
\[ Sh_x=-Re^{1/2}\phi'(0) \]
şeklindedir.
Mikroorganizma, ekzoprotein ve ürün için karşılık gelen yoğunluk sayıları da sırasıyla:
\[ Nn_x=-Re^{1/2}\chi'(0), \qquad Nm_x=-Re^{1/2}\xi'(0), \qquad Ns_x=-Re^{1/2}\varphi'(0) \]
olarak tanımlanmıştır.
Bu nedenle Tablo 3'te yalnız \(\theta'(0)\), \(\phi'(0)\), \(\chi'(0)\), \(\xi'(0)\) ve \(\varphi'(0)\) olarak verilen değerler ilgili fiziksel boyutsuz sayının tamamı değildir; Denklem 19-23'teki Reynolds ve işaret/katsayı dönüşümleri de gereklidir.
Spektral Kuazilineerleştirme Yöntemi Bu Sistemi Nasıl Çözüyor?
Spektral kuazilineerleştirme yöntemi, doğrusal olmayan ODE sistemini ardışık doğrusal problemlere dönüştürür; Chebyshev–Gauss–Lobatto kollokasyon noktaları ve spektral türev matrisi kullanılarak her iterasyonda hız, sıcaklık, nanoparçacık, mikroorganizma, ekzoprotein ve ürün profilleri birlikte güncellenir.
Gauss–Lobatto kollokasyon noktaları
Fiziksel hesaplama alanı \(\eta\in[0,L_x]\), önce \(z_i\in[-1,1]\) aralığına taşınmaktadır:
\[ z_i= \cos\left(\frac{\pi i}{N}\right), \qquad i=0,1,\ldots,N. \]
Fiziksel kollokasyon noktaları daha sonra:
\[ \eta_i= \frac{L_x(1+z_i)}{2} \]
biçiminde oluşturulur.
Spektral türev matrisi
Bir fonksiyonun türevi kollokasyon noktalarında \(D\) türev matrisiyle yaklaşık olarak hesaplanır:
\[ f' = Df. \]
Kaynak Lagrange interpolasyon polinomlarını da kullanarak fonksiyonları:
\[ u(\eta)= \sum_{i=0}^{N} u(\eta_i)L_i(\eta) \]
biçiminde temsil eder.
Kuazilineer iterasyon
Doğrusal olmayan altı denklem, mevcut iterasyon \(r\) etrafında kuazilineerleştirilerek bir sonraki \(r+1\) iterasyonundaki bilinmeyenler için blok matris sistemine dönüştürülür:
\[ \mathbf{A}_r \begin{bmatrix} f_{r+1}\\ \theta_{r+1}\\ \phi_{r+1}\\ \chi_{r+1}\\ \xi_{r+1}\\ \varphi_{r+1} \end{bmatrix} = \begin{bmatrix} R_f\\ R_\Theta\\ R_\Phi\\ R_X\\ R_\Upsilon\\ R_\Psi \end{bmatrix}. \]
Kaynak Denklem 32-54 arasında bu blok sistemdeki residual fonksiyonları, lineerleştirme katsayılarını ve matris bileşenlerini ayrıntılı biçimde açmaktadır.
Başlangıç tahminleri
Spektral iterasyonun başlangıç profilleri kaynak Denklem 46'da üstel azalan fonksiyonlar olarak seçilmiştir. Örneğin hız için:
\[ f_0(\eta)=1-e^{-\eta} \]
kullanılmıştır. Sıcaklık, mikroorganizma, ekzoprotein ve ürün için de sınır koşullarını karşılayan benzer \(e^{-\eta}\) tabanlı başlangıç profilleri tanımlanmıştır.
Simülasyonda kullanılan temel parametreler
| Parametre | Sembol | Değer / aralık | Kaynak durumu |
|---|---|---|---|
| Manyetik alan | \(M\) | 0-6 | Literatür |
| Geçirgenlik | \(K_p\) | 0,2 | Literatür |
| Forchheimer sayısı | \(F_r\) | 0,5 | Literatür |
| Grashof sayısı | \(G_r\) | 0,1-1 | Literatür |
| Reynolds sayısı | \(Re\) | 1 | Literatür |
| Prandtl sayısı | \(Pr\) | 0,72 | Literatür |
| Brownian hareket | \(N_b\) | 0,1-5 | Literatür |
| Termoforez | \(N_t\) | 0,1-0,5 | Literatür |
| Mikrobiyal Brownian hareket | \(N_n\) | 0,5 | Literatür |
| Biyokonveksiyon Péclet sayısı | \(P_b\) | 0,1-1,0 | Literatür |
| Mikrobiyal büyüme oranı | \(r\) | 0,1 | Literatür |
| Taşıma kapasitesi | \(K_n\) | 10 | Varsayılmış |
| Ekzoprotein Schmidt sayısı | \(S_d\) | 3,4 | Varsayılmış |
| Ürün Schmidt sayısı | \(S_s\) | 3,4 | Varsayılmış |
| Ekzoprotein üretimi | \(A_1\) | 0,2 | Literatür |
| Ekzoprotein bozunması | \(A_2\) | 0,1 | Varsayılmış |
| Ürün üretim oranı | \(\tilde{\lambda}_s\) | 0,9 | Varsayılmış |
| Termal Biot sayısı | \(Bi\) | 0,1-50 | Literatür |
| Mikrobiyal Biot sayısı | \(B_n\) | 0,1-50 | Varsayılmış |
Sayısal çözümün residual doğrulaması
Kaynak, altı çözüm değişkeni için on iterasyonda residual hata analizi yapmıştır. Sıcaklık, nanoparçacık, mikroorganizma, ekzoprotein ve ürün residual değerlerinin büyük bölümü \(10^{-11}\) ile \(10^{-12}\) mertebesindedir.
Hız fonksiyonu \(f(\eta)\) için ise kaynak Tablo 2'de \(4,53\times10^{-9}\), \(3,70\times10^{-9}\) ve \(4,22\times10^{-9}\) gibi değerler bulunmaktadır. Buna rağmen sonuç metni genel hata aralığını \(10^{-12}\) ile \(10^{-10}\) olarak tanımlamaktadır. Bu nedenle kaynak anlatısı en büyük \(f(\eta)\) residual değerlerini tam olarak kapsamamaktadır.
Bu residual testi sayısal denklemlerin ne kadar iyi sağlandığını ölçer. Deneysel sistem ile model arasındaki fiziksel doğruluk hatasını ölçmez.
Manyetik alanın etkisi
Şekil 2'ye göre manyetik alan parametresi arttıkça akışkan hızı azalır. Kaynak bunu manyetik alanın oluşturduğu sürükleme etkisine bağlamaktadır.
Aynı anda sıcaklık, nanoparçacık, mikroorganizma, ekzoprotein ve ürün profillerinin sınır tabakasında arttığı görülmektedir. Yazarların açıklamasına göre azalan konvektif taşınım diğer türlerin sınır tabakası içinde birikmesine katkı sağlamaktadır.
Mikrobiyal Brownian hareketin etkisi
Şekil 3'te mikrobiyal Brownian hareket parametresi arttığında mikroorganizma konsantrasyonu azalır. Buna bağlı olarak ekzoprotein ve ürün konsantrasyonları da düşmektedir.
Buna karşılık sıcaklık ve akışkan hızı artmaktadır. Bu bulgu nanoparçacıklara ait \(N_b\) Brownian parametresiyle karıştırılmamalıdır; kaynak \(N_b\) ve \(N_n\)'yi ayrı model değişkenleri olarak tanımlamaktadır.
Mikrobiyal büyüme oranının etkisi
Şekil 4, mikrobiyal büyüme oranı \(r\) yükseldiğinde mikroorganizma yoğunluğunun arttığını; bunun ekzoprotein ve ürün profillerini de yukarı taşıdığını göstermektedir.
Kaynak ayrıca sıcaklığın yükseldiğini, duvara yakın nanoparçacık konsantrasyonunun ise düştüğünü belirtmektedir. Yazarlar nanoparçacık azalmasını meydana getiren mekanizmanın bu aşamada açık olmadığını özellikle ifade etmektedir.
Taşıma kapasitesinin etkisi
Şekil 5'te \(K_n=2,10,50,100\) değerleri için mikroorganizma, ekzoprotein ve ürün profilleri gösterilmektedir. Taşıma kapasitesi büyüdükçe mikrobiyal popülasyonun izin verilen lojistik üst sınırı yükselmekte; bunun sonucunda ekzoprotein ve ürün profilleri de artmaktadır.
Ekzoprotein üretim ve bozunma hızları
Şekil 6'nın ilk iki panelinde \(A_1\) arttıkça ekzoprotein ve ürün profilleri yükselmektedir. Son iki panelde ise \(A_2\) arttıkça ekzoprotein ve ürün profilleri düşmektedir.
| Parametre | Değer | \(\xi'(0)\) | \(\varphi'(0)\) | Veri statüsü |
|---|---|---|---|---|
| \(A_1\) | 0,10 | -0,79012017 | 1,48245432 | Tablo 3 |
| \(A_1\) | 0,15 | -0,59051948 | 2,01243891 | Tablo 3 |
| \(A_1\) | 0,20 | -0,39091858 | 2,54242381 | Tablo 3 |
| \(A_1\) | 0,25 | -0,19131768 | 3,07240871 | Tablo 3 |
| \(A_2\) | 0,10 | -0,39091813 | 2,54242449 | Tablo 3 |
| \(A_2\) | 0,15 | -0,54240660 | 2,23927221 | Tablo 3 |
| \(A_2\) | 0,20 | -0,67328678 | 1,99496115 | Tablo 3 |
| \(A_2\) | 0,25 | -0,78890232 | 1,79342183 | Tablo 3 |
Tablodaki değerler doğrudan fiziksel ekzoprotein veya ürün yoğunluğu değildir; sınırdaki boyutsuz profil türevleridir. Gerçek \(Nm_x\) ve \(Ns_x\) değerleri Denklem 22 ve 23'te tanımlanan Reynolds ölçeklemesi ve işaret dönüşümüyle elde edilir.
Termoforez parametresi
Tablo 3'te \(N_t\) 0,2'den 0,5'e yükselirken kaynak \(\theta'(0)\) değerinin 0,08472'den 0,09986'ya çıktığını, ürün sınır türevinin ise 1,9530'dan 3,6460'a yükseldiğini raporlamaktadır.
Abstract, termoforez parametresindeki artışın ekzoprotein konsantrasyonunu ve Nusselt sayısını artırdığını ifade etmektedir. Ancak Tablo 3'ün verdiği \(\theta'(0)\) ve \(\xi'(0)\) değerleri doğrudan nihai fiziksel Nusselt ve ekzoprotein yoğunluk sayıları olmadığından işaret ve ölçekleme Denklem 19 ve 22 ile birlikte değerlendirilmelidir.
Mikrobiyal büyüme parametresinin sınır sonuçları
Tablo 3'te \(r\) 0,05'ten 0,30'a çıkarıldığında \(\theta'(0)\) 0,07884'ten 0,13658'e, ekzoprotein türevi \(\xi'(0)\) -1,01332'den 1,98578'e ve ürün türevi \(\varphi'(0)\) 1,01443'ten 8,05433'e değişmektedir.
Bu sonuçlar modelin mikrobiyal büyüme parametresine güçlü duyarlılık gösterebildiğini ortaya koymaktadır. Ancak bunlar belirli parametre setindeki sayısal model çıktılarıdır; gerçek bir bakteriyel kültürde ölçülen üretim oranları değildir.
Çalışmanın desteklediği sonuçlar
Model, mikrobiyal büyüme ve ekzoprotein üretim/bozunmasını biyokonveksiyon nanofluid denklemlerine birlikte dahil edebilmektedir.
Spektral kuazilineerleştirme yöntemi seçilen model için düşük residual değerleri üretmiştir.
Model içinde manyetik alan, mikrobiyal Brownian hareket, termoforez, mikrobiyal büyüme, taşıma kapasitesi ve ekzoprotein üretim/bozunma katsayıları akış, sıcaklık ve tür profillerini değiştirmektedir.
Ekzoprotein üretim parametresi yükseldiğinde ürün artmakta; doğal bozunma parametresi yükseldiğinde ürün azalmaktadır.
Çalışmanın desteklemediği sonuçlar
Çalışma belirli bir gerçek bakterinin laboratuvar ortamında bu modelle aynı büyüme veya ekzoprotein profilini göstereceğini kanıtlamaz.
Nanofluidin endüstride enerji verimliliğini belirli bir yüzde artırdığına ilişkin deneysel ölçüm yapılmamıştır.
Çalışma bira, ilaç, peynir, mineral çıkarma veya kanser tedavisinde modelin operasyonel performansını test etmemiştir.
Residual hataların küçük olması gerçek sistem ile model arasındaki deneysel doğruluğun aynı büyüklükte olduğu anlamına gelmez.
Varsayılmış \(K_n\), \(S_d\), \(S_s\), \(A_2\), \(\tilde{\lambda}_s\) ve \(B_n\) değerlerinin belirli bir gerçek mikroorganizma–nanofluid sistemine ait olduğu gösterilmemiştir.
Kaynak içindeki önemli teknik tutarsızlıklar
Denklem 1: Kaynak iki boyutlu hız bileşenlerini \(u\) ve \(v\) olarak tanımladığı halde süreklilik denkleminde \(\partial u/\partial x+\partial u/\partial y=0\) yazmaktadır.
Schmidt sembolü: Metin \(S_b\)'yi biyokonveksiyon Schmidt sayısı ve \(S_d\)'yi ekzoprotein Schmidt sayısı olarak tanımlarken Tablo 1 biyokonveksiyon Schmidt sayısını da \(S_d\) ile göstermektedir.
Residual hata mertebesi: Sonuç metni \(10^{-12}\)-\(10^{-10}\) aralığı verirken Tablo 2 hız residualında \(10^{-9}\) mertebesinde değerler içermektedir.
Tablo 3 etiketleri: Tablo sınır türevlerini Nusselt, Sherwood ve yoğunluk “number”ları gibi adlandırırken Denklem 18-23 ilgili boyutsuz sayıların ek katsayı ve işaretler içerdiğini göstermektedir.
Brownian terminolojisi: Abstract genel Brownian parametrelerinin ekzoproteini artırdığını söylerken sonuç bölümü açıkça mikrobiyal Brownian parametresi \(N_n\)'nin mikroorganizma, ekzoprotein ve ürün konsantrasyonlarını azalttığını belirtmektedir.
Veri erişimi: Makale kapağında data availability “Not applicable” işaretlenmişken makale sonunda bütün oluşturulan/analiz edilen verilerin yayın içinde bulunduğu belirtilmektedir.
Temel yöntemsel sınırlılıklar
Kaynak ayrı bir “Limitations” bölümü sunmamaktadır. Bununla birlikte çalışmanın kapsamı doğrudan model yapısından belirlenebilir.
Model iki boyutlu, sıkıştırılamaz ve benzerlik dönüşümü uygulanabilir bir sınır tabakası sistemidir. Gerçek üç boyutlu ve zamana bağlı biyoreaktör akışlarını doğrudan temsil ettiği gösterilmemiştir.
Mikroorganizma büyümesi lojistik büyüme yasasıyla, ekzoprotein üretimi mikroorganizma yoğunluğuyla doğrusal ve bozunma birinci dereceden kayıp terimiyle temsil edilmektedir. Daha karmaşık gen düzenleme, besin sınırlaması veya çoklu metabolik yolaklar modele dahil değildir.
Parametrelerin bir bölümü literatürden, bir bölümü doğrudan “Assumed” olarak seçilmiştir.
Modelin doğrulanması residual hata analiziyle sınırlıdır; deneysel profil, laboratuvar ölçümü veya bağımsız CFD/deney kıyaslaması raporlanmamıştır.
Belirsizlik yayılımı veya varsayılmış parametrelerin güven aralıkları hesaplanmamıştır.
Kaynak ve Yöntem Notu
Özgün başlık: A two-dimensional Darcy–Forchheimer mathematical model for bioconvection flow with microbial exoprotein activity
Yazarlar: Mqhelewenkoso A. Mpofu; Mlamuli Dhlamini; Adolf Ndlovu; Nqobile A. Chirwa.
Corresponding author: Mlamuli Dhlamini.
Mqhelewenkoso A. Mpofu kurumu: Department of Mathematics and Statistics, Gwanda State University, Filabusi, Zimbabwe.
Mlamuli Dhlamini, Adolf Ndlovu ve Nqobile A. Chirwa kurumu: Department of Applied Mathematics, Faculty of Applied Science, National University of Science and Technology, Bulawayo, Zimbabwe.
Dergi: South African Journal of Science.
Yayıncı: Academy of Science of South Africa (ASSAf).
Cilt / sayı: 122(1/2).
Makale numarası: 18964.
Gönderim tarihi: 25 Eylül 2024.
Revizyon tarihleri: 9 Haziran 2025 ve 30 Eylül 2025.
Kabul tarihi: 13 Kasım 2025.
Yayın tarihi: 29 Ocak 2026.
DOI: 10.17159/sajs.2026/18964.
Resmî yayın türü: Review Article. İçerik, yeni matematiksel model ve sayısal simülasyon geliştirmektedir; Verianla resmî yayın türünü değiştirmemiştir.
Hakemlik: Kaynak PDF “Peer review” seçeneğini işaretlemektedir; SAJS politikası Review Article'ların hakem değerlendirmesine tabi olduğunu belirtmektedir.
Lisans: Creative Commons Attribution; SAJS güncel yayın politikası CC BY 4.0 International kullanmaktadır.
Çalışma türü: Teorik matematiksel modelleme ve sayısal simülasyon.
Temel model: İki boyutlu Darcy–Forchheimer gözenekli ortam biyokonveksiyon nanofluid modeli.
Yeni model katmanları: Lojistik mikrobiyal büyüme, ekzoprotein üretimi, ekzoprotein doğal bozunması ve ekzoproteine bağlı ürün oluşumu.
Çözüm yöntemi: Spectral quasilinearisation method; Gauss–Lobatto spektral kollokasyon ve kuazilineer iterasyon.
Sayısal doğrulama: Residual error analizi.
Finansman: None.
Veri erişilebilirliği: Makalenin sonundaki beyan, oluşturulan veya analiz edilen bütün verilerin yayımlanmış makalede bulunduğunu belirtmektedir. Kapak metadata alanında ise “Not applicable” işaretlidir.
Çıkar çatışması: Yazarlar competing interest olmadığını bildirmiştir.
AI/LLM kullanımı: Yazarlar AI veya LLM kullanımı olmadığını beyan etmiştir.
Tez kökeni: Makale M.A. Mpofu'nun National University of Science and Technology, Zimbabwe'deki Applied Mathematics Modelling yüksek lisans tezinden uyarlanmıştır; danışmanı Mlamuli Dhlamini'dir.
Yazar katkıları: M.A. Mpofu — metodoloji, araştırma, biçimsel analiz, doğrulama, sayısal analiz, ilk taslak ve gözden geçirme/düzenleme. M. Dhlamini — kavramsallaştırma, metodoloji, araştırma, biçimsel analiz, doğrulama, sayısal analiz, danışmanlık/gözetim, ilk taslak ve gözden geçirme/düzenleme. A. Ndlovu ve N.A. Chirwa — metodoloji, araştırma, biçimsel analiz, doğrulama, sayısal analiz, ilk taslak ve gözden geçirme/düzenleme. Bütün yazarlar nihai metni onaylamıştır.
Temel yorum sınırı
Bu çalışma gerçek bir biyolojik veya endüstriyel akışın deneysel ölçümü değildir. Kaynak, belirli matematiksel varsayımlar ve boyutsuz parametreler altında mikrobiyal büyüme, ekzoprotein dinamiği ve ısı/kütle transferi arasındaki teorik ilişkileri göstermektedir. Düşük sayısal residual değerleri model çözümünün iç tutarlılığına ilişkin güçlü kanıt sağlar; gerçek dünyadaki geçerliliğin ayrıca deneysel olarak doğrulanması gerekir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir