

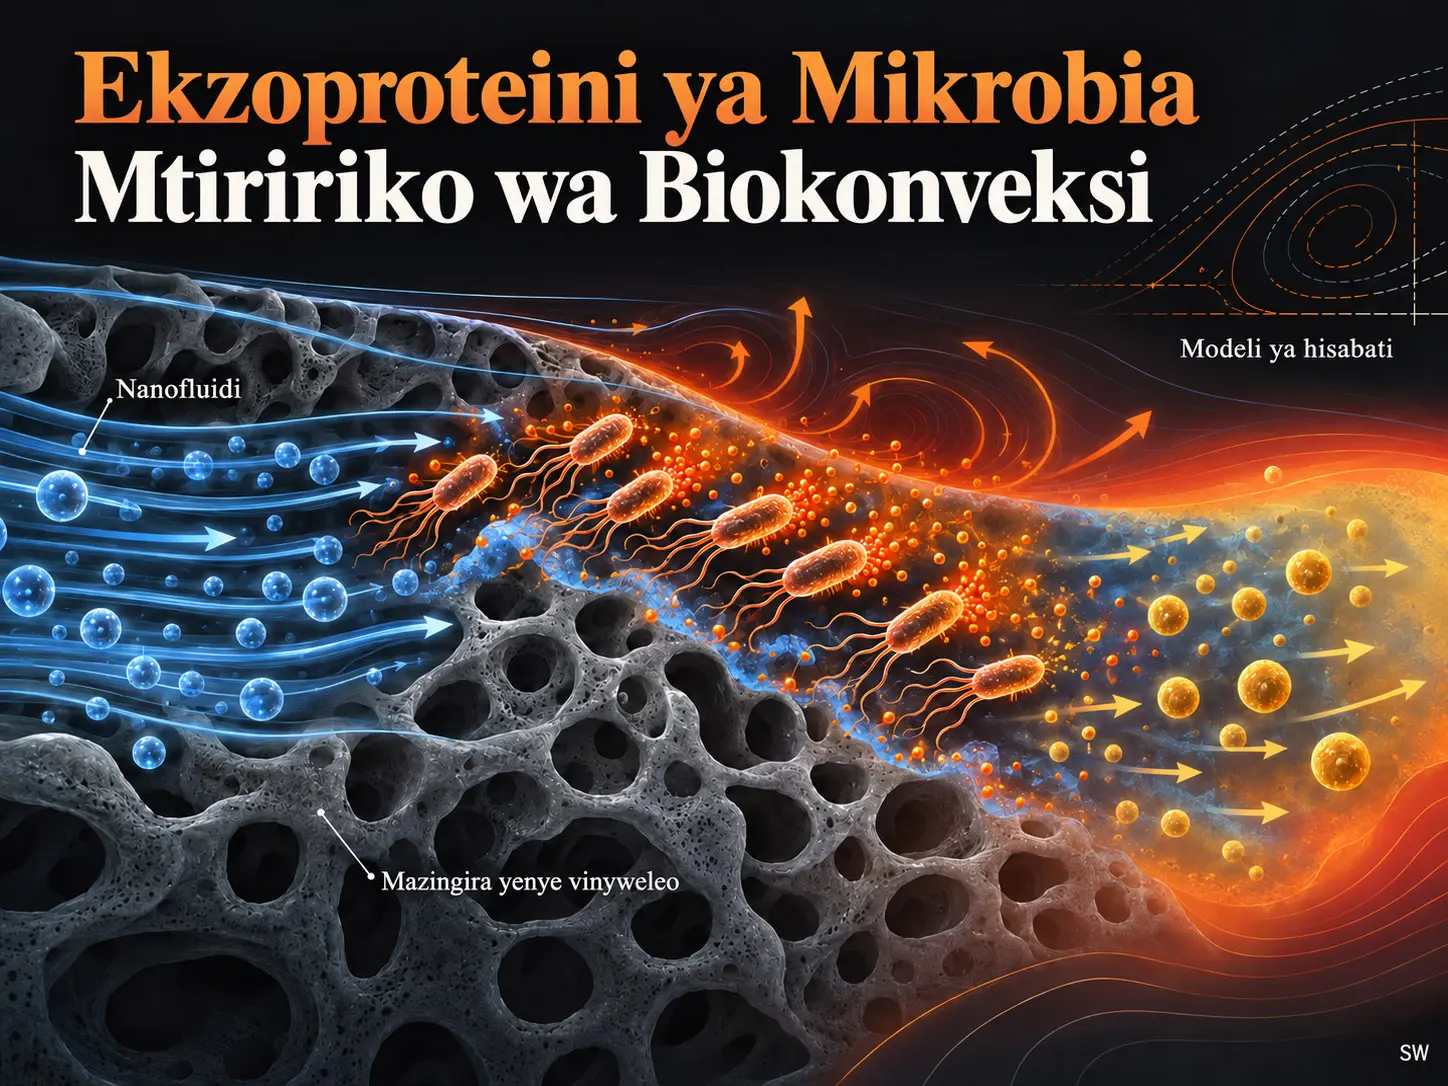
Modeli ya biokonveksi ya Darcy–Forchheimer yenye ekzoproteini ya mikrobia ni modeli ya kihisabati ya tabaka la mpaka inayoeleza usafirishaji wa pamoja wa momentum, joto, nanochembe, vijiumbe vinavyosogea, ekzoproteini inayotolewa na vijiumbe na bidhaa inayotokana na ekzoproteini ndani ya nanofluidi ya pande mbili isiyobanika inayopita katika mazingira yenye vinyweleo. Badala ya kudhani kwamba vijiumbe husafirishwa tu ndani ya kiowevu, utafiti huu unaongeza pia ukuaji wao wa kilojistiki pamoja na mienendo ya uzalishaji/uharibifu wa ekzoproteini katika mfumo wa milinganyo ya diferensheli. Milinganyo ya diferensheli sehemu imepunguzwa kuwa milinganyo ya diferensheli ya kawaida kwa mabadiliko ya mfanano na kutatuliwa kwa namba kwa mbinu ya spectral quasilinearisation.
Matokeo ya modeli yanaonyesha kwamba uga wa sumaku unaweza kupunguza kasi ya mtiririko; viwango vya ukuaji wa mikrobia na uwezo wa kubeba vinapoongezeka, wasifu wa vijiumbe, ekzoproteini na bidhaa ya mwisho huongezeka; ongezeko la kigezo cha uzalishaji wa ekzoproteini huimarisha uundaji wa bidhaa, huku uharibifu wa asili wa ekzoproteini ukipunguza mkusanyiko wa bidhaa. Kuongezeka kwa parameta ya mwendo wa Brownian wa mikrobia kulipunguza wasifu wa vijiumbe, ekzoproteini na bidhaa huku kukiongeza joto na kasi ya mtiririko.
Utafiti huu si jaribio la maabara wala la shambani. Matokeo yalipatikana chini ya modeli maalum ya kihisabati isiyo na vipimo, parameta zilizochaguliwa au kudhaniwa na suluhisho la namba. Thamani ndogo za residual zinaonyesha kwamba suluhisho la namba linatimiza mfumo wake wa milinganyo kwa usahihi wa juu; hazithibitishi kwa majaribio kwamba mfumo halisi wa kibiolojia au viwandani utatenda kwa viwango hivyo hivyo.
Biokonveksi ni nini?
Biokonveksi ni hali ya mtiririko ambapo tabia ya kuogelea kwa mwelekeo na kwa pamoja ya vijiumbe vinavyoweza kusogea huunda tofauti za msongamano wa kiwango kikubwa na mwendo wa konveksi ndani ya kiowevu. Katika utafiti huu, biokonveksi inamodeliwa pamoja na mtiririko wa tabaka la mpaka wa kiowevu chenye nanochembe ndani ya mazingira yenye vinyweleo.
Nanofluidi ni kiowevu ambacho chembe za kiwango cha nano zimeongezwa kwenye kiowevu msingi. Modeli inazingatia mwendo wa Brownian wa chembe hizi, thermophoresis, athari ya uga wa sumaku, usafirishaji wa joto na drag ya mazingira yenye vinyweleo ndani ya mfumo mmoja.
Vijiumbe na Ekzoproteini Vinaunganishwaje Katika Modeli Hii?
Katika modeli, vijiumbe huongezeka kwa kufuata sheria ya ukuaji wa kilojistiki, idadi inayokua ya vijiumbe huzalisha ekzoproteini, ekzoproteini hupitia uharibifu wa asili, na mkusanyiko wa ekzoproteini pia huchochea uundaji wa bidhaa ya kemikali; hivyo uhusiano wa kijiumbe → ekzoproteini → bidhaa unamodeliwa kwa milinganyo tofauti ya usafirishaji.
Pengo la fasihi la utafiti
Chanzo kinaeleza kwamba katika modeli nyingi za awali za biokonveksi ilidhaniwa kuwa vijiumbe huingia kwenye mfumo kwa kiwango kisichobadilika kutoka ukutani na ukuaji halisi ndani ya utamaduni wa vijiumbe ukapuuzwa. Zaidi ya hayo, kinaeleza kwamba protini/enzyme zinazotolewa na vijiumbe katika mazingira hazikuwa zimemodeliwa kwa namna ya mienendo pamoja na mtiririko, joto na uhamishaji wa massa.
Utafiti huu unashughulikia mapengo haya mawili ndani ya modeli moja: neno la ukuaji wa kilojistiki limeongezwa kwa vijiumbe na mlinganyo wa uzalishaji, diffusion na uharibifu wa asili umeundwa kwa ajili ya ekzoproteini.
Muundo wa kimwili wa modeli
Modeli inazingatia mtiririko wa nanofluidi wa pande mbili na usiobanika. Kiowevu hupita katika mazingira yenye vinyweleo. \(u\) ni sehemu ya kasi katika mwelekeo wa \(x\) sambamba na uso; \(v\) ni sehemu ya kasi katika mwelekeo wa \(y\) ulio kawaida kwa uso.
Katika mlinganyo wa momentum, pamoja na diffusion ya mnato, uga wa sumaku, upinzani wa vinyweleo wa Darcy, upinzani usio mstari wa Forchheimer, buoyancy inayotokana na joto, buoyancy inayotokana na mkusanyiko wa nanochembe na buoyancy ya biokonveksi inayotokana na msongamano wa vijiumbe vyote vipo pamoja.
Mlinganyo wa nishati unajumuisha conduction ya joto, mionzi ya joto, viscous dissipation, athari za sumaku/Joule, hasara za mazingira yenye vinyweleo, usafirishaji wa Brownian, usafirishaji wa vijiumbe na neno la thermophoresis.
Vigeu vikuu vya uga
| Kigeu | Maana |
|---|---|
| \(u,v\) | Sehemu mbili za kasi ya kiowevu |
| \(T\) | Joto |
| \(C\) | Mkusanyiko wa nanochembe |
| \(n\) | Mkusanyiko wa vijiumbe |
| \(m\) | Mkusanyiko wa ekzoproteini |
| \(S\) | Mkusanyiko wa bidhaa/kimumunyisho kinachotokana na ekzoproteini |
| \(p\) | Shinikizo |
Mlinganyo wa continuity uliochapishwa katika chanzo
Chanzo kinatoa Mlinganyo 1 katika umbo lifuatalo:
\[ \frac{\partial u}{\partial x}+\frac{\partial u}{\partial y}=0. \]
Kwa kuwa chanzo baadaye kinafafanua \(u\) kama sehemu ya kasi katika mwelekeo wa \(x\) na \(v\) kama sehemu ya kasi katika mwelekeo wa \(y\), kutumia tena \(u\) katika neno la pili kunaleta kutolingana kwa notation ndani ya chanzo. Verianla haijabadilisha mlinganyo huu kimya kimya.
Mlinganyo wa momentum
Chanzo kinaunda usawa wa momentum katika Mlinganyo 2 kwa muundo ufuatao:
\[ u\frac{\partial u}{\partial x} +v\frac{\partial u}{\partial y} = -\frac{1}{\rho}\frac{\partial p}{\partial x} +\nu\frac{\partial^2u}{\partial y^2} -\frac{\sigma B_0^2}{\rho}u -\frac{\nu}{K}u -\frac{C_b}{x\sqrt K}u^2 \]
\[ +(1-C_\infty)g\beta_T(T-T_\infty) -\frac{\rho_c-\rho}{\rho}g\beta_c(C-C_\infty) -\frac{\rho_n-\rho}{\rho}g\beta_n(n-n_\infty). \]
Hapa \(-\nu u/K\) inawakilisha upinzani wa vinyweleo wa aina ya Darcy, huku \(-C_bu^2/(x\sqrt K)\) ikiwakilisha drag isiyo mstari ya Forchheimer. Neno la uga wa sumaku pia linaingia kwenye modeli kama sehemu ya ziada ya upinzani inayopunguza kasi ya mtiririko.
Ukuaji wa vijiumbe
Neno la ukuaji wa kibiolojia katika mlinganyo wa vijiumbe katika modeli ya kilojistiki ya chanzo ni kama ifuatavyo:
\[ r(n-n_\infty) \left( 1-\frac{n-n_\infty}{\Delta n K_n} \right). \]
\(r\) inawakilisha kiwango cha ukuaji wa mikrobia, huku \(K_n\) ikiwakilisha uwezo wa kubeba. Msongamano wa vijiumbe ukiwa mdogo ukuaji huwa chanya; idadi inapokaribia uwezo wa kubeba, athari ya neno la ukuaji hupungua.
Mlinganyo wa ekzoproteini
Usafirishaji wa ekzoproteini unamodeliwa katika Mlinganyo 6 wa chanzo kama ifuatavyo:
\[ u\frac{\partial m}{\partial x} +v\frac{\partial m}{\partial y} = D_m\frac{\partial^2m}{\partial y^2} +\lambda(n-n_\infty) -\mu(m-m_\infty). \]
\(D_m\) ni kigezo cha diffusion ya Brownian ya ekzoproteini. \(\lambda(n-n_\infty)\) inawakilisha uzalishaji wa ekzoproteini unaotegemea vijiumbe, huku \(\mu(m-m_\infty)\) ikiwakilisha uharibifu wa asili wa ekzoproteini.
Mlinganyo huu uko katikati ya muundo wa kisayansi wa kipekee wa utafiti: idadi ya vijiumbe inapoongezeka, neno la uzalishaji huongezeka; uharibifu wa asili unapoongezeka, ekzoproteini hupungua.
Mlinganyo wa bidhaa
Mkusanyiko \(S\) wa bidhaa inayozalishwa na ekzoproteini unamodeliwa kwa Mlinganyo 7:
\[ u\frac{\partial S}{\partial x} +v\frac{\partial S}{\partial y} = D_s\frac{\partial^2S}{\partial y^2} +\frac{D_T}{T_\infty}\frac{\partial^2T}{\partial y^2} +\lambda_s(m-m_\infty). \]
Neno \(\lambda_s(m-m_\infty)\) hapa ni uhusiano wa kihisabati unaoonyesha kwamba mkusanyiko wa ekzoproteini huchochea moja kwa moja uundaji wa bidhaa.
Masharti ya mpaka
Chanzo kinatumia kasi ya kunyoosha iliyo mstari \(u=cx\) ukutani. Uhamishaji wa joto unafafanuliwa kwa sharti la mpaka la konveksi; flux ya nanochembe kwa jumla ya vipengele vya Brownian na thermophoretic; na uhamishaji wa vijiumbe kwa kigezo \(h_n\). Mikusanyiko ya ukutani ya ekzoproteini na bidhaa ni \(m_w\) na \(S_w\), mtawalia.
Unapoenda kutoka kwenye uso kuelekea infinity, uga wa kasi, joto, nanochembe, vijiumbe, ekzoproteini na bidhaa hukaribia thamani zao za mazingira.
Mabadiliko ya mfanano
Ili kupunguza mfumo wa PDE kuwa mfumo wa ODE unaoweza kutatuliwa kwa urahisi zaidi, chanzo kinatumia vigeu vifuatavyo vya mfanano:
\[ \psi=\sqrt{c\nu}\,x f(\eta), \qquad \eta=y\sqrt{\frac{c}{\nu}}, \qquad \theta(\eta)=\frac{T-T_\infty}{T_w-T_\infty}, \]
\[ \phi(\eta)=\frac{C-C_\infty}{C_w-C_\infty}, \qquad \chi(\eta)=\frac{n-n_\infty}{n_w-n_\infty}, \qquad \xi(\eta)=\frac{m-m_\infty}{m_w-m_\infty}, \]
\[ \varphi(\eta)=\frac{S-S_\infty}{S_w-S_\infty}, \qquad u=cxf'(\eta), \qquad v=-\sqrt{c\nu}\,f(\eta). \]
Mabadiliko haya hubadilisha uga wa joto, nanochembe, vijiumbe, ekzoproteini na bidhaa kuwa functions za wasifu zisizo na vipimo na hupunguza mfumo wa PDE wenye coordinates mbili huru kuwa mfumo wa ODE kwa kutumia kigeu kimoja cha mfanano \(\eta\).
Mlinganyo wa momentum uliobadilishwa
Mlinganyo 10:
\[ f'''+ff''-Mf'-K_pf'-F_r(f')^2+ \frac{G_r}{Re^2} \left[ \theta-N_r\phi-R_b\chi \right]=0. \]
Katika mlinganyo huu \(M\) inawakilisha uga wa sumaku, \(K_p\) athari ya permeability ya Darcy, \(F_r\) upinzani wa Forchheimer, \(G_r\) buoyancy ya joto na \(R_b\) buoyancy ya biokonveksi; zote ni parameta zisizo na vipimo.
Mlinganyo wa nanochembe uliobadilishwa
Mlinganyo 12:
\[ \phi''+S_cf\phi' +\frac{N_t}{N_b}\theta''=0. \]
\(N_b\) ni parameta ya mwendo wa Brownian wa nanochembe, na \(N_t\) ni parameta ya thermophoresis. Thermophoresis inawakilisha athari ya gradient ya joto kwenye mwendo wa chembe ndogo sana.
Mlinganyo wa ekzoproteini uliobadilishwa
Mlinganyo 14:
\[ \xi''+ S_d \left[ f\xi'-A_2\xi+A_1\chi \right] =0. \]
\(A_1\) inawakilisha kwa umbo lisilo na vipimo kiwango cha uzalishaji wa ekzoproteini na vijiumbe; \(A_2\) ni uharibifu wa asili wa ekzoproteini. Kwa hiyo, kiini cha kibiolojia cha modeli kimejengwa wazi kupitia neno la uzalishaji \(+A_1\chi\) na neno la upotevu \(-A_2\xi\).
Mlinganyo wa bidhaa uliobadilishwa
Mlinganyo 15:
\[ \varphi'' + S_s \left[ f\varphi' +\tilde{\lambda}_s\xi \right] + \frac{N_t}{N_s}\theta'' =0. \]
\(\tilde{\lambda}_s\) ni kigezo kisicho na vipimo cha uzalishaji kinachowakilisha uundaji wa bidhaa kutoka kwa ekzoproteini.
Parameta kuu zisizo na vipimo
| Parameta | Maana |
|---|---|
| \(Re\) | Namba ya Reynolds; uhusiano wa inertia / athari ya mnato |
| \(M\) | Parameta ya uga wa sumaku |
| \(K_p\) | Parameta ya permeability ya mazingira yenye vinyweleo |
| \(F_r\) | Namba ya Forchheimer; upinzani usio mstari wa vinyweleo |
| \(G_r\) | Namba ya Grashof; uhusiano wa buoyancy / athari ya mnato |
| \(Pr\) | Namba ya Prandtl |
| \(N_b\) | Parameta ya mwendo wa Brownian wa nanochembe |
| \(N_n\) | Parameta ya mwendo wa Brownian wa mikrobia |
| \(N_t\) | Parameta ya thermophoresis |
| \(R_b\) | Namba ya Rayleigh ya biokonveksi |
| \(P_b\) | Namba ya Péclet ya biokonveksi |
| \(r\) | Kiwango cha ukuaji wa mikrobia |
| \(K_n\) | Uwezo wa kubeba wa mikrobia |
| \(A_1\) | Kigezo cha uzalishaji wa ekzoproteini |
| \(A_2\) | Kigezo cha uharibifu wa asili wa ekzoproteini |
| \(\tilde{\lambda}_s\) | Kigezo cha uzalishaji wa bidhaa kutoka ekzoproteini |
Kutolingana kwa chanzo katika alama ya namba ya Schmidt
Katika Mlinganyo 17 na maandishi ya maelezo, chanzo kinafafanua namba ya Schmidt ya biokonveksi kwa vijiumbe kama \(S_b=\nu/D_n\), na namba ya Schmidt ya ekzoproteini kama \(S_d=\nu/D_m\). Kwa upande mwingine, Table 1 hutumia alama \(S_d\) katika mstari wa “Bioconvection Schmidt number” na baadaye huonyesha tena \(S_d\) kwa namba ya Schmidt ya protini/ekzoproteini. Kwa hiyo alama ya Table 1 kwa namba ya Schmidt ya biokonveksi haijasahihishwa na Verianla, bali imeainishwa kama tatizo la notation ndani ya chanzo.
Mbinu na Matokeo ya Utafiti
Viashiria vya momentum, joto na uhamishaji wa massa
Modeli hutathmini tabia ya mtiririko na usafirishaji mpakani kupitia skin-friction, Nusselt, Sherwood na namba za density za vijiumbe/ekzoproteini/bidhaa.
Katika chanzo, kigezo cha mahali cha skin-friction:
\[ C_f=-2Re^{-1/2}f''(0) \]
kimetolewa.
Namba ya mahali ya Nusselt:
\[ Nu_x = -\left(1+\frac{4}{3}R_d\right) Re^{1/2}\theta'(0) \]
na namba ya mahali ya Sherwood:
\[ Sh_x=-Re^{1/2}\phi'(0) \]
zimetolewa.
Namba zinazolingana za density kwa vijiumbe, ekzoproteini na bidhaa zimefafanuliwa mtawalia kama:
\[ Nn_x=-Re^{1/2}\chi'(0), \qquad Nm_x=-Re^{1/2}\xi'(0), \qquad Ns_x=-Re^{1/2}\varphi'(0) \]
.
Kwa hiyo, thamani zinazotolewa katika Table 3 kama \(\theta'(0)\), \(\phi'(0)\), \(\chi'(0)\), \(\xi'(0)\) na \(\varphi'(0)\) pekee si namba kamili ya kimwili isiyo na vipimo inayohusika; pia zinahitaji scaling ya Reynolds na mabadiliko ya ishara/kigezo katika Milinganyo 19-23.
Mbinu ya Spectral Quasilinearisation Inatatua Mfumo Huu Vipi?
Mbinu ya spectral quasilinearisation hubadilisha mfumo usio mstari wa ODE kuwa mfululizo wa matatizo ya mstari; kwa kutumia pointi za collocation za Chebyshev–Gauss–Lobatto na matrix ya derivative ya spectral, wasifu wa kasi, joto, nanochembe, vijiumbe, ekzoproteini na bidhaa husasishwa pamoja katika kila iteration.
Pointi za collocation za Gauss–Lobatto
Eneo la hesabu la kimwili \(\eta\in[0,L_x]\) kwanza huhamishwa hadi kwenye fungu \(z_i\in[-1,1]\):
\[ z_i= \cos\left(\frac{\pi i}{N}\right), \qquad i=0,1,\ldots,N. \]
Pointi za collocation za kimwili kisha huundwa kama:
\[ \eta_i= \frac{L_x(1+z_i)}{2} \]
.
Matrix ya derivative ya spectral
Derivative ya function hukadiriwa kwenye pointi za collocation kwa matrix ya derivative \(D\):
\[ f' = Df. \]
Chanzo pia hutumia polynomial za interpolation za Lagrange na kuwakilisha functions kama:
\[ u(\eta)= \sum_{i=0}^{N} u(\eta_i)L_i(\eta) \]
.
Iteration ya quasilinear
Milinganyo sita isiyo mstari huquasilinearishwa kuzunguka iteration ya sasa \(r\) na kubadilishwa kuwa mfumo wa block matrix kwa unknowns katika iteration inayofuata \(r+1\):
\[ \mathbf{A}_r \begin{bmatrix} f_{r+1}\\ \theta_{r+1}\\ \phi_{r+1}\\ \chi_{r+1}\\ \xi_{r+1}\\ \varphi_{r+1} \end{bmatrix} = \begin{bmatrix} R_f\\ R_\Theta\\ R_\Phi\\ R_X\\ R_\Upsilon\\ R_\Psi \end{bmatrix}. \]
Katika Milinganyo 32-54, chanzo kinafafanua kwa kina functions za residual, coefficients za linearisation na vipengele vya matrix katika mfumo huu wa block.
Makadirio ya awali
Wasifu wa mwanzo wa iteration ya spectral umechaguliwa katika Mlinganyo 46 wa chanzo kama functions zinazopungua kwa exponential. Kwa mfano, kwa kasi:
\[ f_0(\eta)=1-e^{-\eta} \]
imetumika. Kwa joto, vijiumbe, ekzoproteini na bidhaa pia wasifu wa mwanzo unaofanana unaotegemea \(e^{-\eta}\) na kutimiza masharti ya mpaka umefafanuliwa.
Parameta kuu zilizotumiwa katika simulesheni
| Parameta | Alama | Thamani / masafa | Hali ya chanzo |
|---|---|---|---|
| Uga wa sumaku | \(M\) | 0-6 | Fasihi |
| Permeability | \(K_p\) | 0,2 | Fasihi |
| Namba ya Forchheimer | \(F_r\) | 0,5 | Fasihi |
| Namba ya Grashof | \(G_r\) | 0,1-1 | Fasihi |
| Namba ya Reynolds | \(Re\) | 1 | Fasihi |
| Namba ya Prandtl | \(Pr\) | 0,72 | Fasihi |
| Mwendo wa Brownian | \(N_b\) | 0,1-5 | Fasihi |
| Thermophoresis | \(N_t\) | 0,1-0,5 | Fasihi |
| Mwendo wa Brownian wa mikrobia | \(N_n\) | 0,5 | Fasihi |
| Namba ya Péclet ya biokonveksi | \(P_b\) | 0,1-1,0 | Fasihi |
| Kiwango cha ukuaji wa mikrobia | \(r\) | 0,1 | Fasihi |
| Uwezo wa kubeba | \(K_n\) | 10 | Imedhaniwa |
| Namba ya Schmidt ya ekzoproteini | \(S_d\) | 3,4 | Imedhaniwa |
| Namba ya Schmidt ya bidhaa | \(S_s\) | 3,4 | Imedhaniwa |
| Uzalishaji wa ekzoproteini | \(A_1\) | 0,2 | Fasihi |
| Uharibifu wa ekzoproteini | \(A_2\) | 0,1 | Imedhaniwa |
| Kiwango cha uzalishaji wa bidhaa | \(\tilde{\lambda}_s\) | 0,9 | Imedhaniwa |
| Namba ya Biot ya joto | \(Bi\) | 0,1-50 | Fasihi |
| Namba ya Biot ya mikrobia | \(B_n\) | 0,1-50 | Imedhaniwa |
Uthibitishaji wa residual wa suluhisho la namba
Chanzo kilifanya uchanganuzi wa residual error katika iterations kumi kwa vigeu sita vya suluhisho. Sehemu kubwa ya thamani za residual za joto, nanochembe, vijiumbe, ekzoproteini na bidhaa ziko katika kiwango cha \(10^{-11}\) hadi \(10^{-12}\).
Hata hivyo, kwa function ya kasi \(f(\eta)\), Table 2 ya chanzo ina thamani kama \(4,53\times10^{-9}\), \(3,70\times10^{-9}\) na \(4,22\times10^{-9}\). Pamoja na hilo, maandishi ya matokeo yanaeleza masafa ya jumla ya kosa kuwa \(10^{-12}\) hadi \(10^{-10}\). Kwa hiyo, maelezo ya chanzo hayajumuishi kikamilifu thamani kubwa zaidi za residual za \(f(\eta)\).
Jaribio hili la residual hupima kiwango ambacho milinganyo ya namba inatimizwa. Halipimi kosa la usahihi wa kimwili kati ya mfumo wa majaribio na modeli.
Athari ya uga wa sumaku
Kulingana na Kielelezo 2, kasi ya kiowevu hupungua parameta ya uga wa sumaku inapoongezeka. Chanzo kinahusisha hili na athari ya drag inayozalishwa na uga wa sumaku.
Wakati huo huo, wasifu wa joto, nanochembe, vijiumbe, ekzoproteini na bidhaa huonekana kuongezeka katika tabaka la mpaka. Kwa maelezo ya waandishi, kupungua kwa usafirishaji wa konveksi kunachangia kujikusanya kwa spishi nyingine ndani ya tabaka la mpaka.
Athari ya mwendo wa Brownian wa mikrobia
Katika Kielelezo 3, mkusanyiko wa vijiumbe hupungua parameta ya mwendo wa Brownian wa mikrobia inapoongezeka. Kwa hiyo, mikusanyiko ya ekzoproteini na bidhaa pia hupungua.
Kinyume chake, joto na kasi ya kiowevu huongezeka. Matokeo haya hayapaswi kuchanganywa na parameta ya Brownian \(N_b\) ya nanochembe; chanzo kinafafanua \(N_b\) na \(N_n\) kama vigeu tofauti vya modeli.
Athari ya kiwango cha ukuaji wa mikrobia
Kielelezo 4 kinaonyesha kwamba kiwango cha ukuaji wa mikrobia \(r\) kinapoongezeka, msongamano wa vijiumbe huongezeka; hii pia huinua wasifu wa ekzoproteini na bidhaa.
Chanzo pia kinaeleza kwamba joto huongezeka huku mkusanyiko wa nanochembe karibu na ukuta ukipungua. Waandishi wanasema kwa uwazi kwamba mekanizimu inayosababisha kupungua kwa nanochembe haiko wazi katika hatua hii.
Athari ya uwezo wa kubeba
Kielelezo 5 kinaonyesha wasifu wa vijiumbe, ekzoproteini na bidhaa kwa thamani za \(K_n=2,10,50,100\). Uwezo wa kubeba unapoongezeka, kikomo cha juu cha kilojistiki kinachoruhusiwa kwa idadi ya mikrobia huongezeka; matokeo yake, wasifu wa ekzoproteini na bidhaa pia huongezeka.
Viwango vya uzalishaji na uharibifu wa ekzoproteini
Katika paneli mbili za kwanza za Kielelezo 6, wasifu wa ekzoproteini na bidhaa huongezeka kadiri \(A_1\) inavyoongezeka. Katika paneli mbili za mwisho, wasifu wa ekzoproteini na bidhaa hupungua kadiri \(A_2\) inavyoongezeka.
| Parameta | Thamani | \(\xi'(0)\) | \(\varphi'(0)\) | Hali ya data |
|---|---|---|---|---|
| \(A_1\) | 0,10 | -0,79012017 | 1,48245432 | Table 3 |
| \(A_1\) | 0,15 | -0,59051948 | 2,01243891 | Table 3 |
| \(A_1\) | 0,20 | -0,39091858 | 2,54242381 | Table 3 |
| \(A_1\) | 0,25 | -0,19131768 | 3,07240871 | Table 3 |
| \(A_2\) | 0,10 | -0,39091813 | 2,54242449 | Table 3 |
| \(A_2\) | 0,15 | -0,54240660 | 2,23927221 | Table 3 |
| \(A_2\) | 0,20 | -0,67328678 | 1,99496115 | Table 3 |
| \(A_2\) | 0,25 | -0,78890232 | 1,79342183 | Table 3 |
Thamani katika jedwali si density ya kimwili ya ekzoproteini au bidhaa moja kwa moja; ni derivatives za wasifu usio na vipimo mpakani. Thamani halisi za \(Nm_x\) na \(Ns_x\) hupatikana kwa scaling ya Reynolds na mabadiliko ya ishara yaliyofafanuliwa katika Milinganyo 22 na 23.
Parameta ya thermophoresis
Katika Table 3, \(N_t\) inapoongezeka kutoka 0,2 hadi 0,5, chanzo kinaripoti kwamba \(\theta'(0)\) imeongezeka kutoka 0,08472 hadi 0,09986, na derivative ya mpaka ya bidhaa kutoka 1,9530 hadi 3,6460.
Abstract inaeleza kwamba ongezeko la parameta ya thermophoresis huongeza mkusanyiko wa ekzoproteini na namba ya Nusselt. Hata hivyo, kwa kuwa thamani za \(\theta'(0)\) na \(\xi'(0)\) katika Table 3 si moja kwa moja namba za mwisho za kimwili za Nusselt na density ya ekzoproteini, ishara na scaling zinapaswa kutathminiwa pamoja na Milinganyo 19 na 22.
Matokeo ya mpaka ya parameta ya ukuaji wa mikrobia
Katika Table 3, \(r\) inapoongezwa kutoka 0,05 hadi 0,30, \(\theta'(0)\) hubadilika kutoka 0,07884 hadi 0,13658, derivative ya ekzoproteini \(\xi'(0)\) kutoka -1,01332 hadi 1,98578 na derivative ya bidhaa \(\varphi'(0)\) kutoka 1,01443 hadi 8,05433.
Matokeo haya yanaonyesha kwamba modeli inaweza kuwa na unyeti mkubwa kwa parameta ya ukuaji wa mikrobia. Hata hivyo, haya ni matokeo ya namba ya modeli katika seti maalum ya parameta; si viwango vya uzalishaji vilivyopimwa katika utamaduni halisi wa bakteria.
Matokeo yanayoungwa mkono na utafiti
Modeli inaweza kujumuisha pamoja ukuaji wa mikrobia na uzalishaji/uharibifu wa ekzoproteini katika milinganyo ya nanofluidi ya biokonveksi.
Mbinu ya spectral quasilinearisation ilitoa thamani ndogo za residual kwa modeli iliyochaguliwa.
Ndani ya modeli, uga wa sumaku, mwendo wa Brownian wa mikrobia, thermophoresis, ukuaji wa mikrobia, uwezo wa kubeba na coefficients za uzalishaji/uharibifu wa ekzoproteini hubadilisha wasifu wa mtiririko, joto na spishi.
Parameta ya uzalishaji wa ekzoproteini inapoongezeka, bidhaa huongezeka; parameta ya uharibifu wa asili inapoongezeka, bidhaa hupungua.
Matokeo ambayo utafiti hauungi mkono
Utafiti hauthibitishi kwamba bakteria fulani halisi itaonyesha ukuaji au wasifu wa ekzoproteini unaofanana na modeli hii katika mazingira ya maabara.
Hakuna kipimo cha majaribio kilichofanywa kuonyesha kwamba nanofluidi huongeza ufanisi wa nishati viwandani kwa asilimia fulani.
Utafiti haukujaribu utendaji wa kiutendaji wa modeli katika bia, dawa, jibini, uchimbaji wa madini au matibabu ya saratani.
Udogo wa makosa ya residual haumaanishi kwamba usahihi wa majaribio kati ya mfumo halisi na modeli una ukubwa huo huo.
Haijaonyeshwa kwamba thamani zilizodhaniwa za \(K_n\), \(S_d\), \(S_s\), \(A_2\), \(\tilde{\lambda}_s\) na \(B_n\) zinahusu mfumo fulani halisi wa kijiumbe–nanofluidi.
Kutolingana muhimu kwa kiufundi ndani ya chanzo
Mlinganyo 1: Ingawa chanzo kinafafanua sehemu mbili za kasi kuwa \(u\) na \(v\), katika mlinganyo wa continuity kinaandika \(\partial u/\partial x+\partial u/\partial y=0\).
Alama ya Schmidt: Maandishi yanafafanua \(S_b\) kama namba ya Schmidt ya biokonveksi na \(S_d\) kama namba ya Schmidt ya ekzoproteini, lakini Table 1 pia huonyesha namba ya Schmidt ya biokonveksi kwa \(S_d\).
Kiwango cha kosa la residual: Maandishi ya matokeo yanatoa masafa ya \(10^{-12}\)-\(10^{-10}\), huku Table 2 ikiwa na thamani za residual ya kasi katika kiwango cha \(10^{-9}\).
Lebo za Table 3: Ingawa jedwali linaita derivatives za mpaka kuwa Nusselt, Sherwood na “number” za density, Milinganyo 18-23 inaonyesha kwamba namba husika zisizo na vipimo zina coefficients na ishara za ziada.
Istilahi ya Brownian: Abstract inasema parameta za jumla za Brownian huongeza ekzoproteini, lakini sehemu ya matokeo inaeleza wazi kwamba parameta ya Brownian ya mikrobia \(N_n\) hupunguza mikusanyiko ya vijiumbe, ekzoproteini na bidhaa.
Upatikanaji wa data: Jalada la makala linaonyesha data availability kuwa “Not applicable”, huku mwisho wa makala ukisema data zote zilizozalishwa/kuchanganuliwa zimo ndani ya chapisho.
Vikwazo vikuu vya kimbinu
Chanzo hakitoi sehemu tofauti ya “Limitations”. Hata hivyo, upeo wa utafiti unaweza kutambuliwa moja kwa moja kutoka kwenye muundo wa modeli.
Modeli ni mfumo wa tabaka la mpaka wa pande mbili, usiobanika na unaoweza kutumia mabadiliko ya mfanano. Haijaonyeshwa kwamba unawakilisha moja kwa moja mitiririko halisi ya bioreactor ya pande tatu na inayobadilika kwa muda.
Ukuaji wa vijiumbe unawakilishwa kwa sheria ya ukuaji wa kilojistiki, uzalishaji wa ekzoproteini kwa uhusiano wa mstari na msongamano wa vijiumbe, na uharibifu kwa neno la upotevu wa daraja la kwanza. Udhibiti changamano zaidi wa jeni, upungufu wa virutubisho au njia nyingi za kimetaboliki hazijajumuishwa katika modeli.
Baadhi ya parameta zimechukuliwa kutoka fasihi, na nyingine zimechaguliwa moja kwa moja kama “Assumed”.
Uthibitishaji wa modeli umewekewa kikomo kwenye uchanganuzi wa residual error; hakuna wasifu wa majaribio, kipimo cha maabara au ulinganisho huru wa CFD/majaribio ulioripotiwa.
Usambazaji wa kutokuwa na uhakika au confidence intervals za parameta zilizodhaniwa hazikuhesabiwa.
Maelezo ya Chanzo na Mbinu
Kichwa asilia: A two-dimensional Darcy–Forchheimer mathematical model for bioconvection flow with microbial exoprotein activity
Waandishi: Mqhelewenkoso A. Mpofu; Mlamuli Dhlamini; Adolf Ndlovu; Nqobile A. Chirwa.
Corresponding author: Mlamuli Dhlamini.
Taasisi ya Mqhelewenkoso A. Mpofu: Department of Mathematics and Statistics, Gwanda State University, Filabusi, Zimbabwe.
Taasisi ya Mlamuli Dhlamini, Adolf Ndlovu na Nqobile A. Chirwa: Department of Applied Mathematics, Faculty of Applied Science, National University of Science and Technology, Bulawayo, Zimbabwe.
Jarida: South African Journal of Science.
Mchapishaji: Academy of Science of South Africa (ASSAf).
Juzuu / toleo: 122(1/2).
Nambari ya makala: 18964.
Tarehe ya kuwasilishwa: 25 Septemba 2024.
Tarehe za marekebisho: 9 Juni 2025 na 30 Septemba 2025.
Tarehe ya kukubaliwa: 13 Novemba 2025.
Tarehe ya kuchapishwa: 29 Januari 2026.
DOI: 10.17159/sajs.2026/18964.
Aina rasmi ya chapisho: Review Article. Maudhui yanaendeleza modeli mpya ya kihisabati na simulesheni ya namba; Verianla haijabadilisha aina rasmi ya chapisho.
Mapitio ya rika: PDF ya chanzo imeweka alama kwenye chaguo la “Peer review”; sera ya SAJS inaeleza kwamba Review Article hupitia mapitio ya rika.
Leseni: Creative Commons Attribution; sera ya sasa ya uchapishaji ya SAJS hutumia CC BY 4.0 International.
Aina ya utafiti: Uundaji wa modeli ya kihisabati ya kinadharia na simulesheni ya namba.
Modeli kuu: Modeli ya nanofluidi ya biokonveksi ya Darcy–Forchheimer ya pande mbili katika mazingira yenye vinyweleo.
Tabaka mpya za modeli: Ukuaji wa kilojistiki wa mikrobia, uzalishaji wa ekzoproteini, uharibifu wa asili wa ekzoproteini na uundaji wa bidhaa unaotegemea ekzoproteini.
Mbinu ya suluhisho: Spectral quasilinearisation method; Gauss–Lobatto spectral collocation na iteration ya quasilinear.
Uthibitishaji wa namba: Uchambuzi wa Residual error.
Ufadhili: None.
Upatikanaji wa data: Taarifa ya mwisho wa makala inaeleza kwamba data zote zilizozalishwa au kuchanganuliwa zimo katika makala iliyochapishwa. Hata hivyo, katika sehemu ya metadata ya jalada, “Not applicable” imewekewa alama.
Mgongano wa maslahi: Waandishi waliripoti kuwa hakuna competing interest.
Matumizi ya AI/LLM: Waandishi walitangaza kuwa AI au LLM haikutumika.
Asili ya tasnifu: Makala imetoholewa kutoka tasnifu ya uzamili ya Applied Mathematics Modelling ya M.A. Mpofu katika National University of Science and Technology, Zimbabwe; msimamizi wake ni Mlamuli Dhlamini.
Michango ya waandishi: M.A. Mpofu — metodolojia, utafiti, uchanganuzi rasmi, uthibitishaji, uchanganuzi wa namba, rasimu ya kwanza na mapitio/uhariri. M. Dhlamini — uundaji wa dhana, metodolojia, utafiti, uchanganuzi rasmi, uthibitishaji, uchanganuzi wa namba, ushauri/usimamizi, rasimu ya kwanza na mapitio/uhariri. A. Ndlovu na N.A. Chirwa — metodolojia, utafiti, uchanganuzi rasmi, uthibitishaji, uchanganuzi wa namba, rasimu ya kwanza na mapitio/uhariri. Waandishi wote waliidhinisha maandishi ya mwisho.
Mpaka mkuu wa tafsiri
Utafiti huu si kipimo cha majaribio cha mtiririko halisi wa kibiolojia au viwandani. Chanzo kinaonyesha mahusiano ya kinadharia kati ya ukuaji wa mikrobia, mienendo ya ekzoproteini na uhamishaji wa joto/massa chini ya dhana maalum za kihisabati na parameta zisizo na vipimo. Thamani ndogo za residual za namba hutoa ushahidi mkubwa wa uthabiti wa ndani wa suluhisho la modeli; uhalali wake katika ulimwengu halisi unahitaji kuthibitishwa kando kwa majaribio.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *