


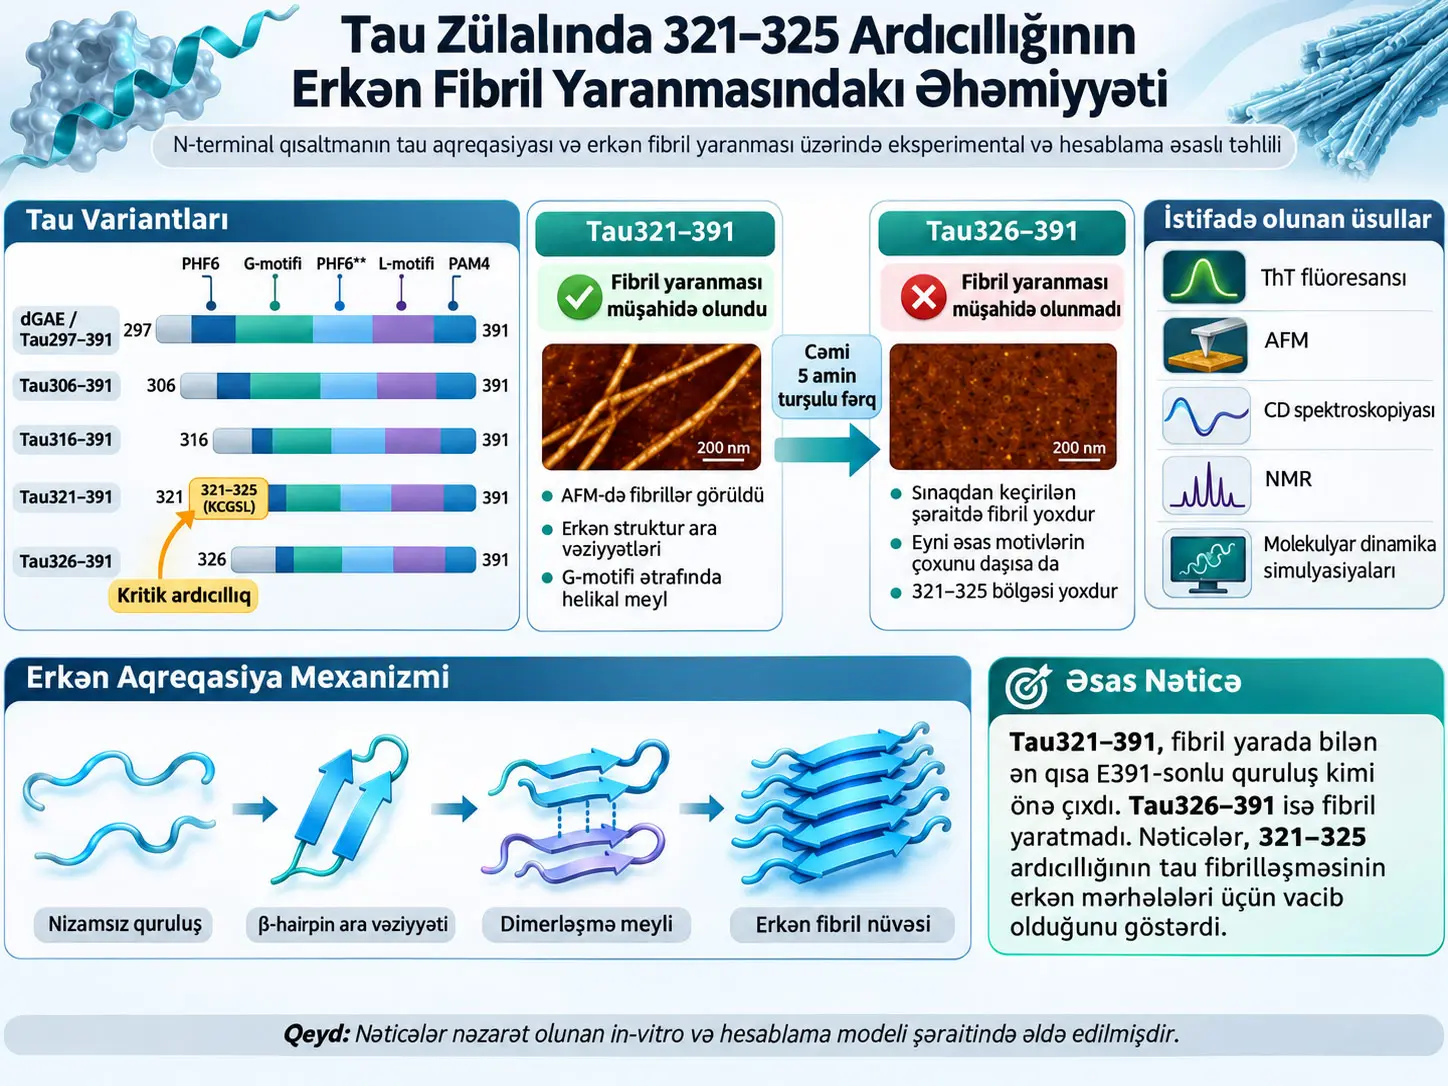
Tau zülalı normal şəraitdə əsasən müəyyən və sabit vahid üçölçülü quruluşa malik olmayan, buna görə də “intrinsically disordered protein”, yəni daxili olaraq nizamsız zülallar sinfinə aid mikrotubulla əlaqəli zülaldır. Bu tədqiqat tau zülalının dGAE adlandırılan Tau297–391 fraqmentinin N-terminal ucundan mərhələli şəkildə qısaldılmasının amiloid fibril əmələ gəlməsini necə dəyişdirdiyini araşdırmışdır. dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 və Tau326–391 olmaqla beş qısaldılmış tau variantı Thioflavin T (ThT) flüoresansı, atom qüvvə mikroskopiyası (AFM), kapilyar elektroforez, dairəvi dixroizm (CD), NMR spektroskopiyası və molekulyar dinamika (MD) simulyasiyaları ilə müqayisə edilmişdir.
Tədqiqatın mərkəzi nəticəsi Tau321–391 ilə Tau326–391 arasındakı cəmi beş amin turşusu fərqinin aqreqasiya davranışı ilə güclü şəkildə əlaqəli olmasıdır. Tau321–391-in N-terminalında yerləşən 321KCGSL325 ardıcıllığı Tau326–391-də yoxdur. Bunun əksinə olaraq G-motivi, PHF6**, L-motivi və PAM4 kimi tədqiq edilən əsas amiloidogen bölgələrin mühüm hissəsi hər iki variantda mövcuddur. Buna baxmayaraq Tau321–391 fibril yarada bildiyi halda Tau326–391 heparin və DTT daxil olmaqla sınaqdan keçirilən aqreqasiyanı asanlaşdıran şəraitlərdə belə fibril əmələ gətirməmişdir.
Bütün atomları əhatə edən molekulyar dinamika simulyasiyalarında Tau321–343, Tau326–343 ilə müqayisədə daha yüksək dimerləşmə meyli göstərmişdir. Nəticələr mətnində beş 2 μs trayektoriyanın birləşdirilmiş analizində Tau321–343 üçün dimer populyasiyası %29,4 ± 4,4, Tau326–343 üçün isə %14,7 ± 2,1 olaraq bildirilmiş və fərq üçün P = 0,014 göstərilmişdir. Tau321–343 həmçinin G-motivi ilə PHF6** ətrafında antiparalel β-hairpin strukturları yaratmağa daha meylli olmuşdur. Bu strukturlar müəlliflər tərəfindən erkən aqreqasiya nüvəsi yarada biləcək konformasiyalarla əlaqələndirilmişdir.
Coarse-grained molekulyar dinamika simulyasiyaları fərqli, lakin tamamlayıcı struktur xüsusiyyəti göstərmişdir: Tau321–391-in N-terminal bölgəsində, xüsusilə G-motivi ətrafında nəzərəçarpan α-helikal meyl yaranmışdır. Tau326–391-də bu meyl xeyli daha məhduddur. NMR və CD nəticələri də Tau321–391-in aqreqasiya prosesində keçici helikal və β-strukturlu ara konformasiyaları nümunələyə bildiyini dəstəkləyir.
Tədqiqatın mühüm eksperimental nəticələrindən biri də ThT flüoresansı ilə real fibril mövcudluğunun həmişə bir-birinə tam uyğun gəlməməsidir. Tau321–391 saf PBS və yalnız DTT şəraitində ThT ilə nəzərəçarpan fibrilləşmə göstərməsə də, AFM görüntülərində seyrək fibrillər əmələ gətirmişdir. Xüsusilə qeyd edilmişdir ki, ThT siqnalı fibril kütləsinin birbaşa və təkbaşına kəmiyyət ölçüsü deyil; fibril morfologiyası, polimorf quruluş, boya bağlanma sahələrinin əlçatanlığı və səth yükü kimi xüsusiyyətlərdən də təsirlənir.
Bu tədqiqat insanlarda və ya heyvanlarda xəstəliyin irəliləməsini sınaqdan keçirməmişdir. Rekombinant qısaldılmış tau fraqmentləri ilə nəzarət olunan in-vitro sistemlərdə və kompüter simulyasiyalarında işlənmişdir. Heparindən istifadə edilən aqreqasiya şəraiti tədqiqata təkrarlana bilən model versə də, müəlliflər heparinlə yaradılan fibrillərin Alzheimer xəstəliyi beynindəki real tau fibrillərini tam təqlid etmədiyini açıq şəkildə bildirirlər. Nəticələr tau fibrilləşməsinin erkən molekulyar mərhələlərini anlamağa yönəlib; klinik müalicə effektivliyinin və ya xəstəlik səbəbinin birbaşa sübutu deyil.
Tau zülalı və tauopatiya nədir?
Tau mərkəzi sinir sistemindəki ən uzun 2N4R izoformunda 441 amin turşusundan ibarət mikrotubulla əlaqəli zülaldır. Mənbə tau zülalını intrinsically disordered protein (IDP) kimi müəyyənləşdirir. Bu, zülalın fizioloji şəraitdə tək və sərt üçölçülü quruluşa kilidlənmək əvəzinə çoxsaylı konformasiyaları nümunələyə bilməsi deməkdir.
Tau zülallarının yüksək dərəcədə nizamlı filamentlər şəklində toplanması tau patologiyası olan müxtəlif neyrodegenerativ xəstəliklərin neyropatoloji xüsusiyyətlərindən biridir. Bu xəstəlik qrupları ümumilikdə tauopatiyalar adlandırılır.
Amiloid fibrillərin ortaq struktur xüsusiyyətlərindən biri cross-β arxitekturasıdır. Bu quruluşda β-təbəqələr fibrilin uzun oxu ilə əlaqəli nizamlı təşkilatlanma yaradır. Lakin müxtəlif tauopatiyalarda tau filamentlərinin detallı atom səviyyəli qatlanmaları bir-birindən fərqlənə bilər; buna görə “tau fibrili” vahid universal quruluş demək deyil.
Kəsilmə, yəni truncation niyə araşdırılır?
Tau zəncirinin N-terminal və ya C-terminal bölgələrinin proteolitik şəkildə kəsilməsi zülalın normalda müəyyən amiloidogen bölgələri örtən və ya struktur baxımından məhdudlaşdıran hissələrini aradan qaldıra bilər. Mənbə ədəbiyyat kontekstində bu kəsilmələrin aqreqasiyaya meylli bölgələri daha əlçatan edə biləcəyini müzakirə edir.
Bu tədqiqatda tədqiqatçılar tau dGAE kimi istifadə olunan Tau297–391 fraqmentini N-terminal ucundan mərhələli şəkildə qısaldaraq aşağıdakı beş variantı müqayisə etmişlər:
- dGAE = Tau297–391
- Tau306–391
- Tau316–391
- Tau321–391
- Tau326–391
Bu dizaynın elmi üstünlüyü C-terminal sonu 391-də sabit saxlanarkən N-terminal başlanğıc nöqtəsinin dəyişdirilməsidir. Beləliklə, müəyyən N-terminal bölgələr itdikcə aqreqasiya davranışının necə dəyişdiyi müqayisə oluna bilir.
Amiloidogen motiv nə deməkdir?
Amiloidogen motiv zülal ardıcıllığında β-struktur və öz-özünə birləşmə meylinin ətrafdakı amin turşularına nisbətən daha yüksək ola bildiyi qısa bölgədir. Belə motivlər təkbaşına bütün fibrilləşmə mexanizmini müəyyən etmir; lakin fibril nüvəsinin yaranmasını və ya müəyyən ara konformasiyaların sabitləşməsini asanlaşdıra bilər.
| Motiv | Qalıqlar / ardıcıllıq | Tədqiqatdakı kontekst |
|---|---|---|
| PHF6* | 275VQIINK280 | R2 bölgəsində məlum tau amiloid motivi; dGAE 297-də başladığı üçün tədqiq edilən dGAE variantlarının xaricində qalır. |
| PHF6 | 306VQIVYK311 | R3 bölgəsində güclü amiloid-nukleasiya motivi. dGAE və Tau306–391-də mövcuddur; Tau316–391, Tau321–391 və Tau326–391-də yoxdur. |
| G-motivi | 326GNIHHK331 | Tau321–391 və Tau326–391 daxil olmaqla qısa variantlarda mövcuddur; kritik 321–325 flank bölgəsindən dərhal sonra gəlir. |
| PHF6** | 337VEVKSE342 | β-struktur yaranması ilə əlaqəli seqment; G-motivindən sonra gəlir. |
| L-motivi | 344LDFKDR349 | Maşın öyrənməsi ilə müəyyən edilmiş aqreqasiya ilə əlaqəli bölgə. |
| PAM4 | 350VQSKIGSLDNITH362 | R4 bölgəsində amiloid yaranması ilə əlaqəli motiv. |
| LTFRENA bölgəsi | 376LTFRENA382 | PASTA, WALTZ və TANGO proqnozlarında əlavə aqreqasiya qaynar nöqtəsi kimi müəyyən edilmişdir; struktur analizlərində qonşu Lys383 ilə birlikdə 376LTFRENAK383 formasında da nəzərdən keçirilmişdir. |
Tau321–391 ilə Tau326–391 arasındakı beş amin turşusu niyə vacibdir?
Tau321–391 ilə Tau326–391 eyni C-terminal sonunu və eyni G-motivi, PHF6**, L-motivi, PAM4 və C-terminal aqreqasiyaya meylli bölgələrin çoxunu paylaşmasına baxmayaraq, Tau321–391-də olan 321KCGSL325 ardıcıllığı aqreqasiyaya əlverişli konformasiyaların yaranması və erkən monomer–monomer qarşılıqlı təsirləri ilə əlaqələndirilmişdir; Tau326–391 isə sınaqdan keçirilən şəraitlərdə fibril yarada bilməmişdir.
321–325 bölgəsinin vacib olmasının səbəbi sadəcə “beş amin turşusu daha uzun olmaq” deyil. Simulyasiya nəticələri bu bölgənin qonşu G-motivinin necə qurulduğunu və digər tau molekulları ilə necə təmas qurduğunu dəyişə bildiyini göstərir.
Mənbə bəzi bölmələrdə təmas analizi üçün “321–326 bölgəsi” ifadəsini istifadə edir. Bununla belə, iki variant arasındakı unikal ardıcıllıq fərqi 321–325 arasındakı KCGSL-dir; 326 nömrəli G amin turşusu Tau326–391-in ilk qalığıdır və buna görə hər iki variantda mövcuddur.
PGGG motivləri və β-hairpin məntiqi
Mənbə bəzi amiloidogen motivlərin qarşısında PGGG ardıcıllıqlarının olduğunu və bu bölgələrin iki antiparalel β-zənciri bir-birinə bağlayan qısa dönüşlər yarada bilmə meylinə malik olduğunu izah edir. Belə quruluş molekulun öz daxilində “saç sancağı”na bənzər β-hairpin yarada bilər.
β-hairpin quruluşu iki β-zəncirinin dönüş bölgəsi ilə bir-birinə bağlandığı konformasiyadır. Erkən aqreqasiya zamanı belə quruluş digər tau molekullarının oxşar bölgələrinin müəyyən həndəsə ilə təmas qurmasını asanlaşdıra bilər.
Bu tədqiqat Tau321–343 bütün-atom simulyasiyalarında G-motivi ilə PHF6** ətrafında β-hairpin tipli konformasiyaları Tau326–343 ilə müqayisədə daha tez-tez müşahidə etmişdir. Lakin simulyasiyalarda müşahidə edilən hairpin quruluşları insan beynindəki bütün tau fibrillərinin mütləq eyni yol ilə əmələ gəldiyi demək deyil.
Heparin və DTT təcrübələrdə nə edir?
Heparin müsbət yüklü tau bölgələri ilə qarşılıqlı təsir göstərə bilən polianion molekuldur. Mənbə heparinin hüceyrədaxili RNA kimi polianion komponentlərin bəzi fiziki-kimyəvi təsirlərini modelləşdirə bildiyini və taunu fibrilləşməyə meylli konformasiyalara yönəltmək üçün geniş istifadə edildiyini izah edir.
Lakin heparinlə yaradılan fibrillər insan beynindəki təbii tau fibrillərinin tam surəti deyil. Müəlliflər heparinin aqreqasiya yolunu və yaranan fibrillərin struktur xüsusiyyətlərini dəyişə biləcəyini açıq şəkildə bildirirlər.
DTT (dithiothreitol) isə reduksiyaedici agentdir. Tədqiqatdakı Tau321–391 daxil olmaqla bəzi variantlarda Cys322 mövcuddur. DTT disulfid rabitələrini reduksiya edir və cysteine-in redoks vəziyyətini dəyişir. Mənbə bunun tau aqreqasiya yoluna və fibril morfologiyasına təsir göstərə bildiyini göstərir.
DTT təkbaşına dGAE və Tau306–391-də ThT ilə aşkar edilə bilən fibrilləşməyə səbəb olmuşdur. dGAE üçün lag fazası təxminən 3 gün, Tau306–391 üçün 4,6 gün olaraq bildirilmişdir. Daha qısa variantlar yalnız DTT şəraitində ThT-müsbət fibrilləşmə göstərməmişdir.
ThT Flüoresansı ilə AFM Niyə Eyni Nəticəni Verməyə Bilər?
ThT flüoresansı fibril miqdarını birbaşa çəkən üsul deyil; boyanın bağlanma gücü fibrilin cross-β düzülüşündən, morfologiyasından, polimorf quruluşundan, bağlanma yivlərinin əlçatanlığından və səth yükündən asılı olduğuna görə AFM-də fiziki fibrillər görünə bildiyi halda ümumi ThT siqnalı aşağı qala bilər.
Thioflavin T nəyi ölçür?
Thioflavin T amiloid strukturlarındakı təkrarlanan cross-β bölgələrinə bağlandıqda flüoresansı artan boyadır. Buna görə fibril yaranma kinetikasını izləmək üçün geniş istifadə olunur.
Lakin ThT əyrisinin yüksək olması avtomatik olaraq “bu nümunədə ən çox fibril kütləsi var” demək deyil. Eyni miqdardakı iki fərqli fibril arxitekturası ThT-yə fərqli sayda əlçatan bağlanma sahəsi təqdim edə və ya bağlanmış ThT-nin kvant məhsuldarlığı dəyişə bilər.
Bu tədqiqatda Tau321–391 bunun açıq nümunəsidir. ThT kinetikasında saf PBS və yalnız DTT şəraitində nəzərəçarpan siqnal görünməsə də, AFM eyni şəraitdə seyrək fibrillərin olduğunu aşkar etmişdir.
AFM nəyi birbaşa göstərir?
Atom qüvvə mikroskopiyası nümunə səthindəki fiziki topoqrafiyanı nanometr miqyasında təsvir edir. Buna görə AFM fibriləbənzər strukturların real morfologiyasını, uzunluğunu, hündürlüyünü və səthdə paylanmasını birbaşa araşdırmağa imkan verir.
Mənbə AFM görüntülərinin fibril bolluğunu kəmiyyət baxımından təmsil etmək məqsədilə seçilmədiyini də vurğulayır. Göstərilən AFM sahələri struktur müxtəlifliyini və morfologiyanı göstərmək üçün təmsilçi sahələrdir.
AFM-də variantlar necə görünürdü?
dGAE: Heparin və heparin+DTT şəraitində sıx və bol fibrillər yaratmışdır. Fibril hündürlükləri təxminən 40 nm-ə qədər geniş paylanma göstərmişdir. Heparin+DTT şəraitində uzun, bir-birinə dolaşan və bəzi hallarda burulmuş fibrillər müşahidə edilmişdir.
Tau306–391: dGAE ilə müqayisədə daha az sıx, lakin daha uzun fibrillər yaratmışdır. Hündürlük paylanması təxminən 20 nm-ə qədər uzanmış və dGAE ilə müqayisədə daha homogen olmuşdur.
Tau316–391: Xüsusilə heparin və heparin+DTT şəraitində fibrillər yaratmışdır. Heparin+DTT şəraitində daha uzun və struktur baxımından daha mürəkkəb fibrillər görülmüş, bəzi fibrillər burulmuş morfologiya göstərmişdir.
Tau321–391: AFM baxımından tədqiqatdakı ən davamlı fibril yaratma davranışlarından birini göstərmişdir. PBS, heparin, DTT və heparin+DTT şəraitində fibril strukturları görülmüşdür. PBS və yalnız-DTT nümunələrində fibrillər olduqca seyrək paylandığı üçün bulk ThT siqnalına töhfələri aşağı qalmışdır. Fibrillər əsasən uzun və budaqlanmamış, hündürlükləri təxminən 10 nm-ə qədər olan strukturlardır. Heparin+DTT şəraitində burulmuş fibrillər yaranmışdır.
Tau326–391: Sınaqdan keçirilən şəraitlərin heç birində fibriləbənzər quruluş yaratmamışdır. AFM hündürlüyü adətən 5 nm-dən aşağı qalmışdır. Kapilyar elektroforez bəzi oliqomerləşmə əlamətləri göstərmişdir; lakin müəlliflər yaranan oliqomerlərin kütləsini kəmiyyətcə müəyyən edə bilməmişlər.
| Variant | PBS | Heparin | DTT | Heparin + DTT |
|---|---|---|---|---|
| dGAE / Tau297–391 | ThT aşağı; AFM-də fibril üstün deyil | Güclü fibrilləşmə | Fibrilləşmə; təxminən 3 gün lag | Güclü, uzun və daha mürəkkəb fibrillər |
| Tau306–391 | ThT aşağı | Fibrilləşmə; lag < 30 dəqiqə | Fibrilləşmə; təxminən 4,6 gün lag | Nəzərəçarpan fibrilləşmə |
| Tau316–391 | ThT aşağı | Fibrilləşmə; lag təxminən 1 günə qədər | ThT ilə aşkar edilən fibrilləşmə yoxdur | Nəzərəçarpan fibrilləşmə; bəzi burulmuş fibrillər |
| Tau321–391 | ThT aşağı; AFM-də seyrək fibrillər | Fibrilləşmə; lag təxminən 1 günə qədər | ThT aşağı; AFM-də seyrək fibrillər | Nəzərəçarpan fibrilləşmə; burulmuş fibrillər |
| Tau326–391 | Fibril yoxdur | Fibril yoxdur | Fibril yoxdur | Fibril yoxdur |
Bu cədvəl ölçmə üsullarının fərqli mənalarını qorumaq məqsədilə keyfiyyət xarakterli hazırlanmışdır. Mənbə qrafiklərindən yeni ThT pik hündürlüyü, fibril kütləsi və ya aralıq zaman dəyəri yaradılmamışdır.
Burulmuş Tau321–391 fibrilləri nəyə bənzəyirdi?
Heparin+DTT şəraitində yaranan burulmuş Tau321–391 filamentləri Trace_y proqramı ilə ayrıca analiz edilmişdir. Tək, ayrılmış, ən az üç təkrar vahidi ehtiva edən və görünən qırığı olmayan fibrillər seçilmiş; fibril səthi və kəsik üzrə təmas-nöqtəsi sıxlıq xəritələri yaradılmışdır.
Mənbə bu kəsiklərin heparinlə yaradılan full-length tau “jagged filament” quruluşundan daha çox dGAE paired helical filament (PHF) quruluşuna bənzədiyini bildirir. Buradakı ifadə “bənzər görünür” səviyyəsindədir; tədqiqat bu fibrillərin atom quruluşunu cryo-EM ilə həll etməmişdir.
Molekulyar Dinamika Simulyasiyaları 321–325 Bölgəsi Haqqında Nə Göstərdi?
Bütün-atom simulyasiyaları 321KCGSL325 ardıcıllığını ehtiva edən Tau321–343-ün Tau326–343 ilə müqayisədə daha çox monomer–monomer təması qurduğunu və β-hairpin ehtiva edən aqreqasiyaya əlverişli ara konformasiyaları daha tez-tez nümunələdiyini; coarse-grained simulyasiyalar isə eyni N-terminal bölgənin Tau321–391-də nəzərəçarpan α-helikal meyl yaratdığını göstərmişdir.
Bütün-atom simulyasiyası nə deməkdir?
Bütün-atom molekulyar dinamika simulyasiyasında zülalın və həlledicinin atomları qüvvə sahəsindəki fiziki qarşılıqlı təsir terminləri əsasında zaman ərzində hərəkət etdirilir. Bu yanaşma yüksək struktur detallılığı verir, lakin böyük sistemlərdə hesablama xərci yüksəkdir.
Tədqiqatda iki qısa N-terminal fraqment müqayisə edilmişdir:
- Tau321–343: 321KCGSLGNIHHKPGGGQVEVKSEK343
- Tau326–343: 326GNIHHKPGGGQVEVKSEK343
İki fraqment eyni G-motivi və PHF6** bölgələrini paylaşır; Tau321–343-ün fərqi başlanğıcdakı KCGSL ardıcıllığıdır.
Bütün-atom monomer simulyasiya şəraiti
- Qüvvə sahəsi: CHARMM36m
- Su modeli: CHARMM-modified TIP3P
- Başlanğıc: Chimera-da hazırlanmış tam uzadılmış konformasiya
- Monomer simulyasiyası: hər variant üçün üç 500 ns replika
- Klasterləşdirmə: Gromos alqoritmi
- Backbone RMSD klasterləşdirmə həddi: 3 Å
- Ölçüazaltma / hərəkət analizi: principal component analysis (PCA)
- Sərbəst enerji landşaftı: PC1 və PC2 histoqramının Boltzmann inversion prosesi vasitəsilə yaradılması
RMSD burada nə deməkdir? Molekulyar dinamika kontekstində RMSD strukturlar arasındakı atom koordinat fərqlərinin kvadratlarının orta qiymətinin kvadrat kökünə əsaslanan həndəsi məsafə ölçüsüdür. Mənbə açıq RMSD tənliyini yazmadığı üçün Verianla yeni tənlik əlavə etmir.
PCA nə edir? Principal component analysis simulyasiya boyunca zülal koordinatlarının dəyişmələrindən ən böyük kollektiv hərəkətləri təmsil edən istiqamətləri çıxarır. PC1 və PC2 zülal hərəkətlərinin ən vacib iki komponentini təmsil edən riyazi oxlardır.
Free energy landscape nəyi göstərir? Simulyasiyada daha tez-tez ziyarət edilən konformasiya bölgələrinin nisbi olaraq daha aşağı sərbəst enerji bölgələrinə uyğun gəlməsinə əsaslanan konformasiya xəritəsidir. Mənbə sərbəst enerji fərqlərini Boltzmann inversion ilə hesabladığını bildirir, lakin açıq riyazi tənlik vermir; buna görə burada mənbədən kənar tənlik əlavə edilməmişdir.
Dimerləşmə simulyasiyalarında nə tapıldı?
Ən yüksək populyasiyalı ilk 10 monomer klasterinin mərkəzi strukturları ikili qruplar halında cütləşdirilmişdir: cl1+cl2, cl3+cl4, cl5+cl6, cl7+cl8 və cl9+cl10. İki monomer simulyasiya qutusunda həndəsi mərkəzləri arasında 30 Å olacaq şəkildə yerləşdirilmişdir.
Mənbədə burada mühüm təkrar sayı uyğunsuzluğu var. Metod bölməsi hər cüt üçün üç 2 μs replika yaradıldığını deyir. Buna qarşılıq nəticələr bölməsi “beş 2 μs trayektori” ifadəsini işlədir və mənbə Şəkil 4 açıqlaması da beş 2 μs replika göstərir. Verianla bu fərqi səssiz şəkildə düzəltmir.
Nəticələr bölməsində verilən beş trayektori əsasında statistik xülasə belədir:
| Variant | Dimer populyasiyası | Statistik müqayisə |
|---|---|---|
| Tau321–343 | %29,4 ± 4,4 | İkiquyruqlu t-testi, P = 0,014 |
| Tau326–343 | %14,7 ± 2,1 |
Bu fərq Tau321–343-ün simulyasiya boyunca Tau326–343 ilə müqayisədə təxminən iki dəfə daha çox dimer təmas populyasiyası göstərməsi deməkdir. “İki dəfə” burada ölçülən faiz populyasiyalarının təxmini nisbətini ifadə edir; klinik və ya bioloji effekt ölçüsü deyil.
Mənbə Şəkil 4 açıqlamasında molekullararası təmas ehtiva edən seçilmiş kadrların ümumi nisbəti ayrıca Tau321–343 üçün %29,98 və Tau326–343 üçün %14,98 olaraq göstərilir. Bu fiqur faizləri ilə yuxarıdakı orta ± sapma statistikası eyni təqdimat forması deyil və bir-birinin yerinə istifadə edilməməlidir.
Tau321–343 necə fərqli dimer quruluşu yaratdı?
Tau321–343 klasterlərində daha yüksək β-struktur tərkibi müşahidə edilmişdir. G-motivi ilə PHF6** arasındakı 332PGGG335 bölgəsinin bağladığı molekuldaxili antiparalel β-hairpin strukturları müxtəlif klasterlərdə ortaya çıxmışdır.
Bu hairpin strukturlarının səthləri monomerlərin bir-birinə yaxınlaşmasında təmas səthi yarada bilmiş və paralel və ya antiparalel molekullararası β-strukturlar əmələ gəlmişdir.
Tau326–343 isə daha çox “fuzzy”, yəni vahid sıx və nizamlı həndəsəyə oturmayan təmaslar göstərmişdir. Bəzi klasterlərdə qısa paralel β-sheet interfeysləri görülsə də, N-terminal uclar bağlanma interfeysindən uzağa yönəlmişdir.
Təmas xəritələrində Tau321–343 dimerləri həm C-terminal PHF6**, həm də N-terminal G-motivi ətrafındakı qarşılıqlı təsirlərlə stabilləşərkən, Tau326–343 dimerlərində təmaslar əsasən PHF6** ətrafında cəmlənmişdir.
Coarse-grained simulyasiya niyə istifadə edildi?
Tau321–391 və Tau326–391 kimi təxminən 70 qalıqdan ibarət uzun və yüksək dərəcədə elastik zülal fraqmentlərinin tam atomlu, açıq həlledicili simulyasiyası çox böyük hesablama qutuları tələb edir. Mənbə təxminən 1,7 milyon hissəcik tələb edə biləcək bu xərci azaltmaq üçün coarse-grained SIRAH yanaşmasından istifadə etmişdir.
Coarse-grained model birdən çox atomu fiziki-kimyəvi xüsusiyyətləri təmsil edən daha böyük “bead” vahidlərində birləşdirir. Beləliklə eyni fiziki zaman intervalı daha aşağı hesablama xərci ilə nümunələnə bilər; əvəzində atom səviyyəli detal azalır.
Coarse-grained simulyasiya şəraiti
- Qüvvə sahəsi: SIRAH 2.0
- IDP davranışını daha yaxşı təmsil etmək üçün istifadə edilən yenidən parametrləşdirmə: zülal–su bead qarşılıqlı təsirlərinin %30-a qədər artırıldığı Martins və həmkarlarının yanaşması
- Başlanğıc strukturları: AlphaFold2 / ColabFold v1.5.5
- MSA yaradılması: MMseqs2
- Struktur template istifadə edilmədən proqnoz
- Ən yüksək sıralanmış beş AlphaFold2 strukturu relaksasiya edilərək beş CG replika üçün istifadə edildi
- Mənbə Şəkil 5 açıqlamasına görə hər variant üçün beş 5 μs replika
- Simulyasiya proqramı: GROMACS 2023.2
- Trayektori istehsalı: Devana HPC sistemi
AlphaFold2 başlanğıc strukturlarının istifadə edilməsi vacibdir. Mənbə bunun bioloji “doğru tau quruluşunu” müəyyən etmək üçün deyil, başlanğıc konformasiyanı qismən kompakt hala gətirərək simulyasiya qutusunun ölçüsünü və hesablama xərcini azaltmaq üçün edildiyini izah edir.
Coarse-grained simulyasiyanın ən nəzərəçarpan fərqi nə idi?
Hər iki variant IDP-lərə xas yüksək struktur elastikliyi göstərmişdir. Lakin Tau321–391-in beş replikasından ikisində G-motivi qalıqlarını əhatə edən nəzərəçarpan N-terminal α-helix yaranmışdır.
Mənbə bu N-terminal helikal meyli aqreqasiya-kompetent Tau321–391 ilə aqreqasiya-kompetent olmayan Tau326–391 arasındakı ən nəzərəçarpan struktur fərqlərindən biri kimi qiymətləndirir.
Antiparalel β-sheet ara strukturları nə qədər görüldü?
Coarse-grained konformasiya toplularında antiparalel β-sheet ara strukturları Tau321–391 strukturlarının %7,49-da, Tau326–391 strukturlarının isə %2,52-də görülmüşdür.
Hər iki variantda molekuldaxili β-sheet əlaqələri C-terminal 376LTFRENAK383 bölgəsi ilə N-terminal G-motivi ətrafında yaranmışdır. PAM4 bölgəsi isə güclü helikal meyl göstərmişdir.
NMR simulyasiya nəticələrini necə yoxladı?
Tau321–391 üçün eksperimental NMR chemical shift məlumatları istifadə edilmişdir. İzotopla işarələnmiş Tau321–391, M9 minimal mühitdə 2 g/L 13C glucose və 1 g/L 15N ammonium chloride istifadə edilməklə istehsal edilmişdir. Kultur Marley protokoluna uyğun olaraq induksiyadan əvvəl minimal mühitdə dörd dəfə qatılaşdırılmışdır.
NMR ölçümü 950 MHz Bruker AVANCE NEO spektrometrində, 0,5 mM Tau321–391, PBS, 5 mM DTT və %10 D2O şəraitində aparılmışdır. Tədqiqatın NMR chemical shift məlumatları BMRB verilənlər bazasında 53400 giriş kodu ilə göstərilmişdir.
İkincili struktur meyli ölçülmüş Cα və Cβ chemical shift dəyərlərinin random-coil istinadlarından sapmasına görə hesablanmışdır. Müsbət SSP dəyərləri helikal, mənfi SSP dəyərləri isə β-sheet meylini göstərəcək şəkildə şərh edilmişdir.
Mənbə simulyasiyalardan əldə edilən G-motivi və PAM4 ətrafındakı helikal/β-sheet meyllərinin NMR nəticələri ilə uyğun olduğunu bildirir.
CD spektroskopiyası niyə aparıldı?
Circular dichroism (CD) zülalların ikincili struktur tərkibinin zaman ərzində necə dəyişdiyini izləmək üçün istifadə edilmişdir. Xüsusilə Tau321–391 və Tau326–391-in aqreqasiya zamanı helix, antiparallel β-sheet, parallel β-sheet, turn və nizamsız struktur faizləri müqayisə edilmişdir.
50 μM Tau321–391 və Tau326–391 yalnız assay buffer daxilində və 50 μM heparin mövcudluğunda 0, 23, 28, 30,5, 42, 51 və 72 saat zaman nöqtələrində tədqiq edilmişdir.
- Optik yol: 1 mm
- Spektral diapazon: 190–270 nm
- Skan sürəti: 50 nm/dəq
- Akkumulyasiya: 3
- Cihaz: Jasco J-815 spectropolarimeter
- Hamarlama: Origin Pro8.5, Savitzky–Golay
- Deconvolution: BeStSel
CD Cədvəl 1: Heparinsiz Tau321–391
| Struktur | 0 dəq | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0,6 | 5 | 0 | 0 | 0 | 0 |
| Antiparallel sheet | 23,6 | 20,2 | 21,9 | 24,2 | 24,7 | 25,4 | 20,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 15,3 | 17,7 | 15,8 | 14,9 | 19 | 16,9 | 19,4 |
| Others | 61 | 61,5 | 57,2 | 60,9 | 56,3 | 57,7 | 60,5 |
| RMSD | 0,3054 | 0,2827 | 0,4187 | 0,4064 | 0,336 | 0,2146 | 0,2237 |
Zaman vahidi qeydi: Mənbə Cədvəl 1-də zaman nöqtələrini 23 h, 28 h, 30.5 h, 42 h, 51 h və 72 h olaraq verir. Yuxarıdakı başlıqlardakı “s” ifadəsi saat mənasındadır.
CD Cədvəl 1: Heparinsiz Tau326–391
| Struktur | 0 dəq | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0,1 | 0 | 0 |
| Antiparallel sheet | 27,1 | 26,7 | 30 | 23,1 | 31,3 | 27,9 | 34,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 18 | 18,9 | 18,5 | 19 | 19,1 | 18,7 | 17,9 |
| Others | 54,9 | 54,4 | 51,5 | 58 | 49,5 | 53,5 | 48 |
| RMSD | 0,2364 | 0,2054 | 0,1707 | 0,2381 | 0,3873 | 0,2226 | 0,25 |
CD Cədvəl 1: Tau321–391 + heparin
| Struktur | 0 dəq | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 1,1 | 0 | 0 | 4,3 | 6,7 |
| Antiparallel sheet | 25,7 | 19,9 | 20,8 | 22,4 | 32,2 | 31,3 | 31,4 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 5,5 | 9,4 |
| Turn | 20,5 | 19,3 | 14,4 | 16,3 | 15,9 | 11,9 | 9,9 |
| Others | 53,8 | 60,8 | 63,7 | 61,3 | 51,9 | 47 | 42,5 |
| RMSD | 0,1923 | 0,3197 | 0,2837 | 0,4176 | 0,199 | 0,0833 | 0,1783 |
CD Cədvəl 1: Tau326–391 + heparin
| Struktur | 0 dəq | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0 | 0 | 0,6 |
| Antiparallel sheet | 26 | 25,7 | 27,3 | 25,5 | 26,4 | 27,6 | 27,7 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 19,8 | 17,1 | 18 | 17,1 | 16,1 | 17,4 | 19,4 |
| Others | 54,2 | 57,2 | 54,7 | 57,4 | 57,6 | 55,1 | 52,3 |
| RMSD | 0,3491 | 0,374 | 0,138 | 0,2308 | 0,2882 | 0,17 | 0,3789 |
RMSD terminologiyası burada fərqlidir: Mənbə Cədvəl 1-in qeydində RMSD, BeStSel proqramında ölçülmüş CD spektri ilə uyğunlaşdırılmış spektr arasındakı spectral deviation kimi müəyyən edilir. Bu, molekulyar dinamika bölməsində zülal koordinatlarını müqayisə etmək üçün istifadə edilən struktur RMSD ilə eyni metrik deyil.
CD məlumatlarının əsas mesajı
Heparinsiz şəraitdə həm Tau321–391, həm də Tau326–391 əsasən nizamsız qalmışdır. Tau321–391-in helikal tərkibi 23 saatda %0,6 və 28 saatda %5-ə müvəqqəti yüksəldiyi halda, Tau326–391-də ən yüksək nəzərəçarpan helix dəyəri 42 saatda yalnız %0,1-dir.
Heparin mövcudluğunda Tau321–391 daha nəzərəçarpan yenidən təşkilatlanma göstərmişdir. 51 və 72 saatda parallel β-sheet müvafiq olaraq %5,5 və %9,4-ə yüksəlmiş; helix tərkibi %4,3 və %6,7-yə çatmışdır. Eyni vaxtlarda “others” və turn komponentləri azalmışdır.
Tau326–391 + heparin şəraitində parallel β-sheet bütün zaman nöqtələrində %0 olaraq qalmış və helix yalnız 72 saatda %0,6 olaraq bildirilmişdir.
Mənbə bu nəticələri Tau321–391-in lag fazasında keçici helikal və turn-zəngin ara strukturlardan daha nizamlı β-sheet fibrillərə irəliləyə bilməsi ilə əlaqələndirir.
Tədqiqatın Metodu və Nəticələri
Rekombinant tau variantlarının hazırlanması
dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 və Tau326–391 variantları E. coli BL21(DE3) hüceyrələrində pET-17 ekspressiya vektoru istifadə edilməklə istehsal edilmişdir.
Zülallar bakteriya lizatından ion mübadilə xromatoqrafiyası və ölçüyə görə ayırma xromatoqrafiyası ardıcıllığı ilə, əvvəl dərc edilmiş protokola uyğun olaraq təmizlənmişdir. Təmizlənmiş zülallar PBS pH 7,4 daxilində, disulfid yaranmasını azaltmaq məqsədilə arqon atmosferi altında −80 °C-də saxlanılmışdır.
Zülal konsentrasiyaları 205 nm absorbansdan DU 640 spektrofotometri ilə müəyyən edilmişdir. Təmizlik və identiklik SDS-PAGE və mass spectrometry ilə yoxlanılmışdır.
Mass spectrometry təsdiqinin təfərrüatları
- DTT son konsentrasiyası: 10 mM
- Iodoacetamide son konsentrasiyası: 15 mM
- Trypsin digestion: 37 °C-də gecə boyunca
- UPLC: Acquity UPLC M-Class
- Sütun: Acquity UPLC HSS T3, 1 × 100 mm, 1,8 μm
- Gradient: %5–40 acetonitrile, %0,1 formic acid, 30 dəqiqə
- Axın: 75 μL/dəq
- MS cihazı: ZenoTOF 7600 time-of-flight
- Məlumat toplama: data-dependent acquisition (DDA)
- Məlumat emalı: Peaks 13
Mənbə əsas mətndə MS nəticə görüntüsünü yalnız Tau321–391 üçün Supplementary Fig. S1-də göstərir.
ThT aqreqasiya təcrübəsinin tam şəraiti
| Parametr | Mənbə dəyəri |
|---|---|
| Tau konsentrasiyası | 50 μM |
| ThT konsentrasiyası | 12,5 μM |
| Nümunə həcmi | 50 μL |
| Temperatur | 37 °C |
| Orbital shaking | 700 rpm |
| Maksimum inkubasiya | 6 gün |
| Təkrar | Üç replika |
| Plaka | 96-well half-volume Corning 3881 |
| Oxuyucu | ClarioStar, BMG Labtech |
Dörd təcrübə şəraiti aşağıdakılardır:
- 1× PBS, pH 7,4
- 1× PBS + 50 μM heparin
- 1× PBS + 10 mM DTT
- 1× PBS + 50 μM heparin + 10 mM DTT
Buffer və əlavələrin öz ThT flüoresansı zülal ehtiva edən nümunələrin siqnalından çıxılmışdır.
Heparin şəraitində kinetik nəticələr
50 μM heparin dGAE, Tau306–391, Tau316–391 və Tau321–391-də ThT ilə müşahidə edilə bilən fibrilləşməni induksiya etmişdir. Tau326–391 isə heparinə baxmayaraq fibril yaratmamışdır.
dGAE və Tau306–391 üçün lag fazası 30 dəqiqədən qısadır. Tau316–391 və Tau321–391 üçün fibril yaranmasının lag fazası təxminən bir günə qədər uzanmışdır.
dGAE heparin şəraitində ən yüksək steady-state ThT flüoresansı göstərən variant olmuşdur.
DTT şəraitində kinetik nəticələr
Yalnız DTT şəraitində ThT ilə nəzərəçarpan fibril yaranması dGAE və Tau306–391 üçün müşahidə edilmişdir. dGAE-nin lag fazası təxminən 3 gün, Tau306–391-in lag fazası təxminən 4,6 gündür.
Tau316–391, Tau321–391 və Tau326–391 yalnız DTT ilə ThT-detectable fibrilləşmə göstərməmişdir. Bununla belə Tau321–391-in AFM-də seyrək fibrillər göstərə bildiyi unudulmamalıdır.
Heparin + DTT birlikdə istifadə edildikdə nə oldu?
Heparin və DTT birlikdə istifadə edildikdə Tau326–391 istisna olmaqla bütün variantlarda nəzərəçarpan fibrilləşmə müşahidə edilmişdir.
Tau306–391, Tau316–391 və Tau321–391 bu şəraitdə ən yüksək end-state ThT siqnallarından bəzilərini göstərmişdir. dGAE-də heparin+DTT və yalnız heparin şəraitləri arasındakı son ThT siqnalları eksperimental xəta daxilində müqayisə edilə bilən səviyyədə olmuşdur.
Tau316–391 üçün heparin+DTT kombinasiyası yalnız heparinlə müqayisədə daha sürətli kinetika təmin etmişdir. dGAE və Tau306–391-də isə heparin+DTT kinetikası yalnız heparinlə müqayisədə bir qədər daha yavaş olmuşdur.
Kapilyar elektroforez şəraiti
- Cihaz: Agilent 7100 CE analyzer
- Detektor: UV
- Kapilyar: 56 cm × 75 μm ID bare fused silica
- İnyeksiya: 50 mbar, 10 s
- Polarite: müsbət
- Gərginlik: başlanğıcda 20 s ərzində 0 kV → +20 kV
- Background electrolyte: 1 M acetic acid, pH 2,38
- Deteksiya dalğa uzunluğu: 210 nm
Kapilyar elektroforez Tau326–391 nümunələrində bəzi oliqomerləşmə əlamətləri göstərmişdir; lakin mənbə bu oliqomerlərin kütləsinin kəmiyyətcə ölçülə bilmədiyini açıq şəkildə bildirir.
Tədqiqatın dəstəklədiyi nəticələr
- dGAE/Tau297–391 tədqiq edilən variantlar arasında ən güclü ümumi aqreqasiya cavabını göstərmişdir.
- N-terminal qısaltma ümumilikdə aqreqasiya kinetikasını yavaşlatmışdır.
- Tau326–391 heç bir sınaq şəraitində fibril yaratmamışdır.
- Tau321–391 tədqiq edilən E391-truncated variantlar arasında fibril yarada bilən ən qısa konstruksiyadır.
- Tau321–391 saf PBS-də AFM ilə görünə bilən fibrillər yarada bilmişdir; bu fibrillər ThT-müsbət deyil.
- 321KCGSL325 ardıcıllığı Tau321–391 ilə Tau326–391 arasındakı əsas ardıcıllıq fərqidir.
- Tau321–343 bütün-atom dimerləşmə simulyasiyasında Tau326–343 ilə müqayisədə daha yüksək dimer populyasiyası göstərmişdir.
- Dimer populyasiyası fərqi mənbənin nəticələr bölməsində %29,4 ± 4,4 və %14,7 ± 2,1; P = 0,014 kimi bildirilmişdir.
- Tau321–343-də β-hairpin tipli aqreqasiyaya meylli ara konformasiyalar daha nəzərəçarpan olmuşdur.
- Tau321–391 coarse-grained simulyasiyalarında N-terminal G-motivi ətrafında nəzərəçarpan α-helikal meyl müşahidə edilmişdir.
- NMR və CD nəticələri Tau321–391-də lokal helikal və β-struktur meyllərinin simulyasiya nəticələri ilə uyğun olduğunu dəstəkləmişdir.
- Heparin+DTT bəzi variantlarda yalnız düz fibrillərdən fərqli, burulmuş fibril morfologiyalarının yaranmasını dəstəkləmişdir.
- ThT və AFM bir-birini tamamlayan, lakin həmişə birbaşa korrelyasiya etməyən məlumat vermişdir.
Tədqiqatın dəstəkləmədiyi nəticələr
- 321–325 bölgəsinin Alzheimer xəstəliyinin yeganə səbəbi olduğu göstərilməmişdir.
- 321–325 bölgəsini hədəfləməyin insanlarda müalicə təmin edəcəyi göstərilməmişdir.
- İnsan və ya heyvan üzərində müalicə təcrübəsi aparılmamışdır.
- Heparinlə yaradılan fibrillərin insan beynindəki Alzheimer tau fibrilləri ilə eyni olduğu göstərilməmişdir.
- ThT flüoresansı birbaşa fibril kütləsi kimi şərh edilə bilməz.
- AFM-dəki təmsilçi sahələr bütün nümunədəki ümumi fibril miqdarının birbaşa kəmiyyət ölçüsü deyil.
- MD simulyasiyasında görülən hairpin və ya α-helix strukturlarının insan beynində mütləq eyni şəkildə yarandığı göstərilməmişdir.
- Simulyasiyalar bütün tau oliqomerləşmə yolunu və ya yetkin fibrilə qədər bütün molekulyar mərhələləri modelləşdirməmişdir.
- Tədqiqat 321–325 bölgəsindən kənarda qalan flank ardıcıllıqlarının təsirini tam istisna etmir.
- DTT-nin təsiri yalnız bir disulfid mexanizminə endirilə bilməz; mənbə redoks vəziyyətinin alternativ aqreqasiya yollarına təsir göstərə biləcəyini müzakirə edir.
Tədqiqatın əsas metodoloji məhdudiyyətləri
Birinci məhdudiyyət istifadə edilən tau fraqmentlərinin tam uzunluqlu insan tau zülalının yalnız qısaldılmış modelləri olmasıdır. Hüceyrə daxilində real tau fosforilləşmə və digər post-translational modifikasiyalar, proteoliz, hüceyrə ionları, RNA, lipidlər, digər zülallar və molekulyar crowding kimi çoxsaylı amillərin təsirinə məruz qalır.
İkinci məhdudiyyət heparinin nəzarət olunan fibrilləşmə yaratmaq üçün faydalı olmasına baxmayaraq Alzheimer xəstəliyindəki in-vivo aqreqasiya mühitini tam təqlid etməməsidir.
Üçüncü məhdudiyyət ThT-nin fibril yükü üçün mütləq kəmiyyət ölçüsü olmamasıdır. AFM də kiçik və təmsilçi səth sahələrini görüntüləyir; bütün nümunədəki fibril kütləsini təkbaşına ölçmür.
Dördüncü məhdudiyyət bütün-atom dimerləşmə simulyasiyasındakı replika sayının mənbədə ardıcıl verilməməsidir: Metod üç × 2 μs, nəticələr və Şəkil 4 isə beş × 2 μs göstərir.
Beşinci məhdudiyyət simulyasiyaların erkən monomer/dimer hadisələrinə güclü struktur detal versə də, daha yüksək oliqomerləri və bütün fibril böyümə prosesini birbaşa modelləşdirməməsidir. Müəlliflər daha ileri oliqomerləşmə simulyasiyalarının faydalı olacağını bildirirlər.
Bu tədqiqat niyə elmi baxımdan vacibdir?
Tədqiqat yalnız məlum PHF6 kimi amiloid nüvə motivinə fokuslanmır. Nəticələr amiloidogen motivlərin ətrafındakı qısa flank bölgələrin də eyni motivin hansı konformasiyaları nümunələdiyini və ilk molekullararası təmasların necə baş verdiyini ciddi şəkildə dəyişə biləcəyini göstərir.
Tau321–391 ilə Tau326–391 arasındakı beş qalıq fərqi bunun güclü eksperimental modelidir. İki variant bir çox amiloid bölgəsini paylaşsa da, biri fibrilləşə bildiyi halda digəri fibrilləşmir. Bu, zülal aqreqasiyasında “aqreqasiya motivi varmı?” sualının təkbaşına yetərli olmadığını; motivin kontekstinin və qonşu ardıcıllıqların da vacib olduğunu göstərir.
Müəlliflər belə flank bölgələrin və pre-aggregation konformasiyalarının gələcəkdə terapevtik hədəf kimi qiymətləndirilə biləcəyini təklif edirlər. Bu ifadə tədqiqat istiqaməti təklifidir; bu tədqiqat heç bir dərman, anticisim və ya insan müalicəsinin effektivliyini sınaqdan keçirməmişdir.
Mənbə və Metod Qeydi
Orijinal başlıq: Gradual N-terminal truncation of tau dGAE (297–391) reveals the importance of 321–325 sequence for early steps of fibril formation
Müəlliflər: Stefana Njemoga; Petra Majerova; Juraj Piestansky; Zuzana Gazova; Pavel Kaderavek; Exequiel E. Barrera; Zuzana Bednarikova; Ondrej Cehlar.
Corresponding authors: Exequiel E. Barrera, Zuzana Bednarikova və Ondrej Cehlar.
Bərabər töhfə: Mənbədə bərabər birinci müəlliflik və ya bərabər töhfə bildirimi görünmür.
Qurumlar: Institute of Neuroimmunology, Slovak Academy of Sciences, Bratislava, Slovakia; Department of Galenic Pharmacy, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia; Institute of Experimental Physics, Slovak Academy of Sciences, Kosice, Slovakia; Central European Institute of Technology (CEITEC), Masaryk University, Brno, Czech Republic; National Centre for Biomolecular Research, Faculty of Science, Masaryk University, Brno, Czech Republic; Instituto de Histología y Embriología (IHEM), CONICET–Universidad Nacional de Cuyo, Mendoza, Argentina; Department of Pharmaceutical Chemistry, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia.
Jurnal: International Journal of Biological Macromolecules.
Nəşriyyat: Elsevier B.V.
Cild / məqalə nömrəsi: 362 / 152066.
DOI: 10.1016/j.ijbiomac.2026.152066.
Alınma tarixi: 19 yanvar 2026.
Revizə edilmiş versiyanın tarixi: 10 aprel 2026.
Qəbul tarixi: 15 aprel 2026.
Onlayn nəşr tarixi: 17 aprel 2026.
Biblioqrafik cild qeydi: Volume 362, may 2026.
Mənbə növü: Rekombinant zülal in-vitro aqreqasiya təcrübələrini və molekulyar dinamika simulyasiyalarını birləşdirən eksperimental–hesablama tədqiqat məqaləsi.
Rəyçilik statusu: International Journal of Biological Macromolecules jurnalında dərc edilmiş resenziyalı məqalə.
Lisenziya: Creative Commons Attribution 4.0 International (CC BY 4.0).
Açar sözlər: Tau protein; Amyloidogenic motifs; Amyloid aggregation; MD simulation.
Tədqiq edilən variantlar: dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 və Tau326–391.
Əsas eksperimental metodlar: ThT fluorescence assay, atomic force microscopy, circular dichroism spectroscopy, capillary electrophoresis, NMR və mass spectrometry təsdiqi.
Əsas hesablama metodları: CHARMM36m all-atom MD, SIRAH 2.0 coarse-grained MD, Gromos RMSD clustering, PCA/free-energy landscape, AlphaFold2/ColabFold başlanğıc modelləri və amin turşusu təmas xəritələri.
Əsas nəticə: Tau321–391 tədqiq edilən E391-truncated konstruksiyalar içində fibril yarada bilən ən qısa variantdır; Tau326–391 sınaqdan keçirilən şəraitdə fibril yarada bilməmişdir. Aradakı unikal N-terminal fərq 321KCGSL325 ardıcıllığıdır.
Bütün-atom əsas kəmiyyət nəticəsi: Mənbənin nəticələr bölməsində Tau321–343 dimer populyasiyası %29,4 ± 4,4, Tau326–343 populyasiyası %14,7 ± 2,1 və P = 0,014 olaraq verilmişdir.
Simulyasiya təkrar sayı üzrə mənbədaxili qeyd: Metod bölməsi dimerləşmə üçün üç × 2 μs replika yazdığı halda nəticələr mətni və Şəkil 4 açıqlaması beş × 2 μs trayektori/replika göstərir. Bu fərq mənbə tərəfindən izah edilməmişdir.
321–325 / 321–326 terminologiya qeydi: Tau321–391 ilə Tau326–391 arasındakı real əlavə ardıcıllıq 321KCGSL325-dir. Bəzi təmas analizi izahlarında 321–326 bölgəsi deyilir; 326 nömrəli G hər iki variantın G-motivində olan ortaq qalıqdır.
CD RMSD qeydi: Mənbə Cədvəl 1-də RMSD, BeStSel-də ölçülən və uyğunlaşdırılan CD spektrləri arasındakı spectral deviation-dır. MD analizindəki koordinat-əsaslı RMSD ilə eyni ölçü deyil.
Heparin məhdudiyyəti: Mənbə heparin-induced fibrilləşmənin Alzheimer xəstəliyi beynindəki fibril yaranmasını tam təmsil etmədiyini və heparinin aqreqasiya yolunu/fibril quruluşunu dəyişə biləcəyini açıq şəkildə bildirir.
ThT məhdudiyyəti: ThT fluorescence fibril kütləsinin birbaşa ölçüsü deyil; morfologiya, polimorf quruluş, binding-site accessibility və surface charge siqnala təsir göstərə bilər.
AFM məhdudiyyəti: AFM görüntüləri morfoloji müxtəlifliyi göstərmək üçün təmsilçidir və bütün nümunədəki ümumi fibril bolluğunun birbaşa kəmiyyət ölçüsü kimi istifadə edilməmişdir.
Məlumat əlçatanlığı: Tədqiqatın hesablama məlumatları Zenodo-da iki ayrı məlumat qeydi ilə təqdim edilmişdir: DOI 10.5281/zenodo.17830302 və DOI 10.5281/zenodo.18157196.
NMR məlumat qeydi: Tau321–391 üçün istifadə edilən NMR məlumatları BMRB giriş kodu 53400 altında göstərilmişdir.
Maraqların toqquşması: Müəlliflər “We have nothing to declare” bəyanını vermişlər.
Maliyyələşdirmə: Tədqiqat VEGA 02/0141/25, 2/0125/23 və 1/0825/25; APVV-18-0284 və APVV-22-0598; Slovakiya Recovery and Resilience Plan 09I03-03-V04-00623, 09I03-V04-00622 və 09I02-03-V01-00021; Horizon Europe 101087124 ADDIT-CE; Horizon 2020 Marie Skłodowska-Curie 873127 InterTAU; National competence centre for high-performance computing 311070AKF2 və əlaqəli Avropa/Regional infrastruktur dəstəkləri ilə maliyyələşdirilmişdir. Josef Dadok National NMR Centre ölçmələri CIISB/Instruct-CZ infrastrukturu və əlaqəli MEYS/ERDF dəstəyindən yararlanmış; COST CA21160 ML4NGP və MVTS COST ML4NGP dəstəyi də göstərilmişdir.
CRediT – Stefana Njemoga: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation.
CRediT – Petra Majerova: Investigation.
CRediT – Juraj Piestansky: Investigation.
CRediT – Zuzana Gazova: Writing – review & editing, Project administration, Funding acquisition.
CRediT – Pavel Kaderavek: Data curation, Investigation, Writing – review & editing.
CRediT – Exequiel E. Barrera: Writing – review & editing, Visualization, Supervision, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Zuzana Bednarikova: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Ondrej Cehlar: Writing – review & editing, Visualization, Supervision, Project administration, Methodology, Investigation, Funding acquisition, Formal analysis, Conceptualization.
Əsas şərh sərhədi: Tədqiqat tau aqreqasiyasının erkən molekulyar müəyyənedicilərini nəzarət olunan in-vitro və hesablama modellərində araşdırır. İnsan beynindəki bütün tauopatiya mexanizmini, klinik xəstəlik gedişini və ya hər hansı terapiyanın effektivliyini sübut etmir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib