


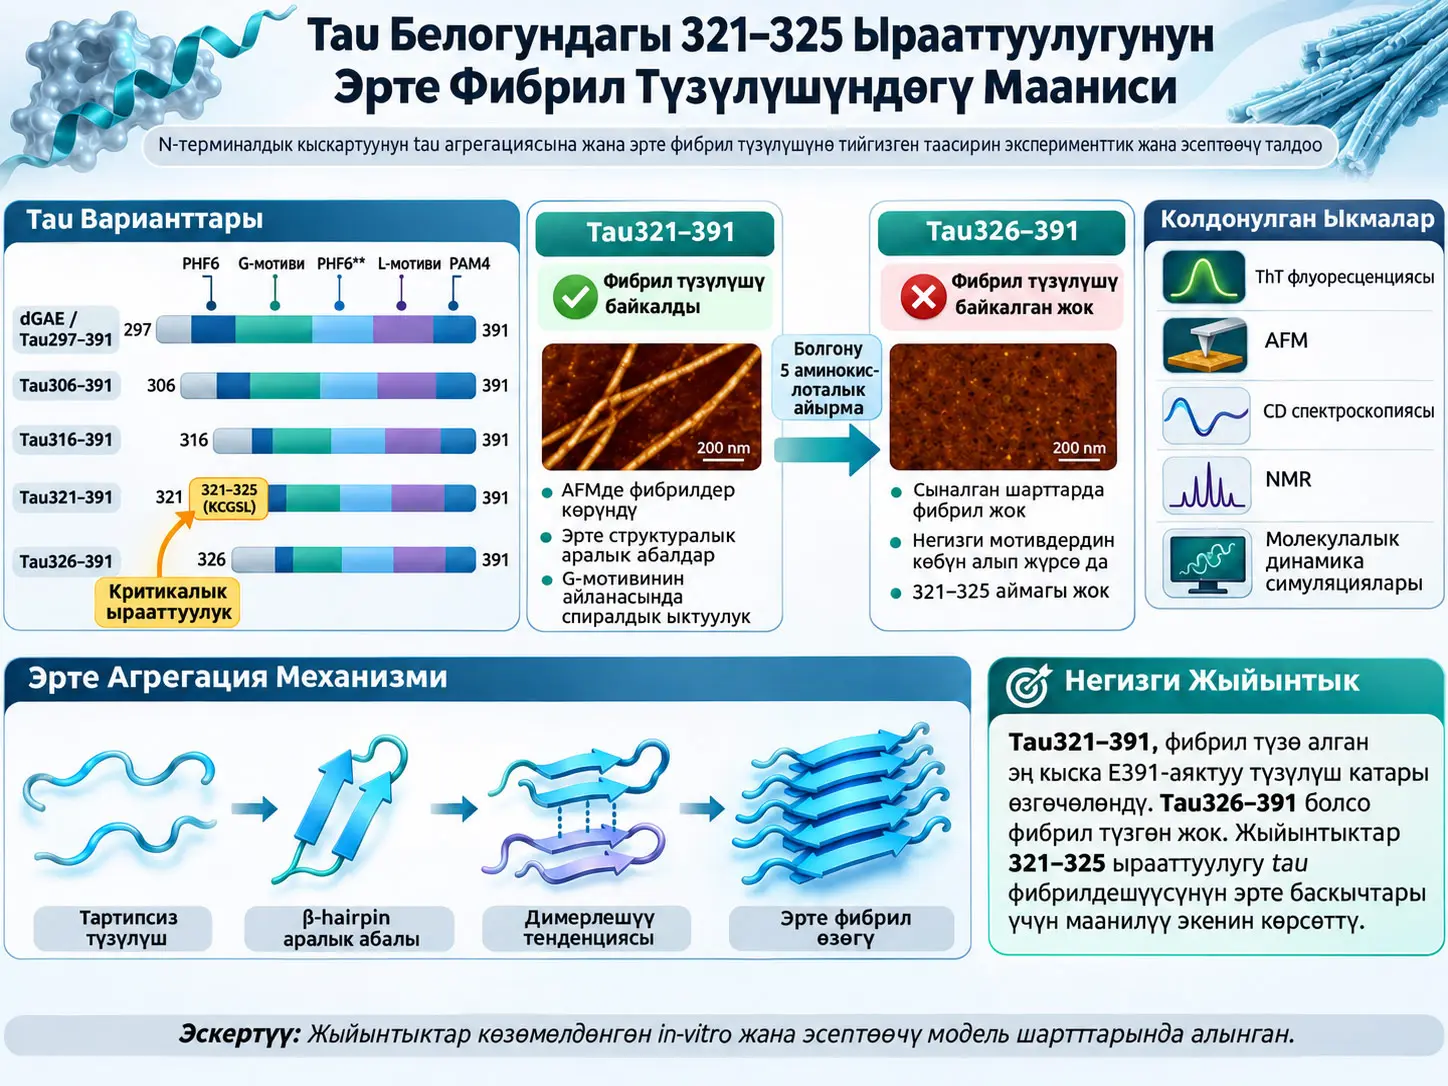
Tau белогу кадимки шартта көбүнчө анык жана туруктуу бир гана үч өлчөмдүү түзүлүшкө ээ болбогон, ошондуктан “intrinsically disordered protein”, башкача айтканда ички жактан тартипсиз белоктор классына кирген микротүтүкчөлөр менен байланышкан белок болуп саналат. Бул изилдөө tau белогунун dGAE деп аталган Tau297–391 фрагментин N-терминал уч жагынан этап-этабы менен кыскартуу амилоид фибрилдеринин түзүлүшүн кандай өзгөртөрүн изилдеген. dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 жана Tau326–391 деген беш кыскартылган tau варианты Thioflavin T (ThT) флуоресценциясы, атомдук күч микроскопиясы (AFM), капиллярдык электрофорез, тегерек дихроизм (CD), NMR спектроскопиясы жана молекулалык динамика (MD) симуляциялары аркылуу салыштырылган.
Изилдөөнүн негизги жыйынтыгы Tau321–391 менен Tau326–391 ортосундагы болгону беш аминокислоталык айырма агрегация жүрүм-туруму менен күчтүү байланышта экендиги болду. Tau321–391дин N-терминалында жайгашкан 321KCGSL325 ырааттуулугу Tau326–391де жок. Ал эми G-мотиви, PHF6**, L-мотиви жана PAM4 сыяктуу изилденген негизги амилоидогендик аймактардын олуттуу бөлүгү эки вариантта тең бар. Ошого карабастан Tau321–391 фибрил түзө алса, Tau326–391 heparin жана DTT кошулган, агрегацияны жеңилдетүүчү сыналган шарттарда да фибрил түзгөн эмес.
Бардык атомдор камтылган молекулалык динамика симуляцияларында Tau321–343 Tau326–343кө салыштырмалуу жогору димерлешүү ыкын көрсөткөн. Жыйынтыктар бөлүгүндө беш 2 μs траекториянын бириктирилген анализинде Tau321–343 үчүн димердик популяция %29,4 ± 4,4, Tau326–343 үчүн %14,7 ± 2,1 деп берилген жана айырма үчүн P = 0,014 көрсөтүлгөн. Tau321–343 ошондой эле G-мотиви менен PHF6** айланасында антипараллелдүү β-hairpin түзүлүштөрүн түзүүгө көбүрөөк ыктаган. Бул түзүлүштөр авторлор тарабынан эрте агрегация өзөгүн түзө ала турган конформациялар менен байланыштырылган.
Coarse-grained молекулалык динамика симуляциялары башкача, бирок толуктоочу түзүмдүк өзгөчөлүктү көрсөткөн: Tau321–391дин N-терминал аймагында, өзгөчө G-мотивинин айланасында байкаларлык α-спиралдык ык пайда болгон. Tau326–391де бул ык кыйла чектелүү болгон. NMR жана CD жыйынтыктары да Tau321–391 агрегация процессинде убактылуу спиралдык жана β-түзүлүштүү аралык конформацияларды кабыл ала аларын колдойт.
Изилдөөнүн маанилүү эксперименттик жыйынтыктарынын бири ThT флуоресценциясы менен чыныгы фибрилдин бар экендиги дайыма бири-бирине так дал келе бербегендиги болду. Tau321–391 таза PBS жана DTT гана болгон шарттарда ThT менен байкаларлык фибрилдешүүнү көрсөтпөсө да, AFM сүрөттөрүндө сейрек фибрилдерди түзгөн. ThT сигналы фибрил массасынын түз жана жалгыз сандык өлчөмү эмес экени; ага фибрил морфологиясы, полиморфтук түзүлүш, боёк байланышуучу жерлердин жеткиликтүүлүгү жана беттик заряд сыяктуу касиеттер да таасир этери өзгөчө белгиленген.
Бул изилдөө адамдарда же жаныбарларда оорунун өнүгүшүн сынаган эмес. Рекомбинанттык кыскартылган tau фрагменттери менен көзөмөлдөнгөн in-vitro системаларда жана компьютердик симуляцияларда иш жүргүзүлгөн. Heparin колдонулган агрегация шарттары изилдөөгө кайталанма модель бергени менен, авторлор heparin аркылуу алынган фибрилдер Alzheimer оорусундагы мээдеги чыныгы tau фибрилдерин толук туурабай турганын ачык белгилешет. Жыйынтыктар tau фибрилдешүүсүнүн эрте молекулалык этаптарын түшүнүүгө багытталган; бул клиникалык дарылоонун натыйжалуулугунун же оорунун себебинин түз далили эмес.
Tau белогу жана tauopatiya деген эмне?
Tau борбордук нерв системасындагы эң узун 2N4R изоформасында 441 аминокислотадан турган микротүтүкчөлөр менен байланышкан белок. Булак taunu intrinsically disordered protein (IDP) деп аныктайт. Бул белок физиологиялык шарттарда бир катуу үч өлчөмдүү түзүлүшкө бекитилип калбастан, көптөгөн конформацияларды кабыл ала аларын билдирет.
Tau белокторунун жогорку деңгээлде иреттелген филаменттер түрүндө топтолушу tau патологиясы бар ар кандай нейродегенеративдүү оорулардын нейропатологиялык белгилеринин бири. Бул оорулардын топтору жалпысынан tauopatiyalar деп аталат.
Амилоид фибрилдердин жалпы түзүмдүк белгилеринин бири cross-β архитектурасы. Бул түзүлүштө β-катмарлар фибрилдин узун огу менен байланышкан иреттүү уюшулууну түзөт. Бирок ар башка tauopatiyalarda tau филаменттеринин майда атомдук бүктөлүштөрү бири-биринен айырмаланышы мүмкүн; демек “tau фибрили” бир гана универсалдуу түзүлүштү билдирбейт.
Кесилүү, башкача айтканда truncation эмне үчүн изилденет?
Tau чынжырынын N-терминал же C-терминал аймактарынын протеолитикалык кесилиши белоктун адатта белгилүү амилоидогендик аймактарды жаап турган же түзүмдүк жактан чектеген бөлүктөрүн алып салышы мүмкүн. Булак адабият контекстинде мындай кесилүүлөр агрегацияга ыктаган аймактарды жеткиликтүүрөөк кыла аларын талкуулайт.
Бул изилдөөдө изилдөөчүлөр tau dGAE катары колдонулган Tau297–391 фрагментин N-терминал учунан этап-этабы менен кыскартып, төмөнкү беш вариантты салыштырган:
- dGAE = Tau297–391
- Tau306–391
- Tau316–391
- Tau321–391
- Tau326–391
Бул дизайндын илимий артыкчылыгы C-терминал аягы 391де туруктуу сакталганда N-терминал башталыш чекити өзгөртүлүшүндө. Ошентип белгилүү N-терминал аймактар жоголгон сайын агрегация жүрүм-турумунун кандай өзгөрөрүн салыштырууга болот.
Амилоидогендик мотив деген эмне?
Амилоидогендик мотив — белок ырааттуулугунда β-түзүлүшкө жана өзүн-өзү бириктирүүгө болгон ык айланасындагы аминокислоталарга караганда жогору болушу мүмкүн болгон кыска аймак. Мындай мотивдер жалгыз өзү бүт фибрилдешүү механизмин аныктабайт; бирок фибрил өзөгүнүн пайда болушун же айрым аралык конформациялардын туруктуулугун жеңилдетиши мүмкүн.
| Мотив | Калдыктар / ырааттуулук | Изилдөөдөгү контекст |
|---|---|---|
| PHF6* | 275VQIINK280 | R2 аймагындагы белгилүү tau амилоид мотиви; dGAE 297ден башталгандыктан изилденген dGAE варианттарынын сыртында калат. |
| PHF6 | 306VQIVYK311 | R3 аймагындагы күчтүү амилоид-нуклеация мотиви. dGAE жана Tau306–391де бар; Tau316–391, Tau321–391 жана Tau326–391де жок. |
| G-мотиви | 326GNIHHK331 | Tau321–391 жана Tau326–391 кошулган кыска варианттарда бар; критикалык 321–325 flank аймагынан дароо кийин келет. |
| PHF6** | 337VEVKSE342 | β-түзүлүштүн пайда болушу менен байланышкан сегмент; G-мотивинен кийин келет. |
| L-мотиви | 344LDFKDR349 | Машиналык үйрөнүү аркылуу аныкталган агрегация менен байланышкан аймак. |
| PAM4 | 350VQSKIGSLDNITH362 | R4 аймагында амилоид пайда болушу менен байланышкан мотив. |
| LTFRENA аймагы | 376LTFRENA382 | PASTA, WALTZ жана TANGO божомолдорунда кошумча агрегациянын “ысык чекити” катары аныкталган; түзүмдүк анализдерде кошуна Lys383 менен 376LTFRENAK383 түрүндө да каралган. |
Tau321–391 менен Tau326–391 Ортосундагы Беш Аминокислота Эмне Үчүн Маанилүү?
Tau321–391 менен Tau326–391 бирдей C-терминал аякты жана бирдей G-мотивин, PHF6**, L-мотивин, PAM4тү жана C-терминалдагы агрегацияга ыктаган аймактардын көбүн бөлүшкөнүнө карабастан, Tau321–391де бар 321KCGSL325 ырааттуулугу агрегацияга ылайыктуу конформациялардын пайда болушу жана эрте monomer–monomer өз ара аракеттенүүлөрү менен байланыштырылган; Tau326–391 болсо сыналган шарттарда фибрил түзө алган эмес.
321–325 аймагынын мааниси жөн гана “беш аминокислотага узунураак болуу” эмес. Симуляция жыйынтыктары бул аймак кошуна G-мотивинин кандай түзүлөрүн жана башка tau молекулалары менен кандай байланыш түзөрүн өзгөртө аларын көрсөтөт.
Булак айрым бөлүмдөрдө контакт анализи үчүн “321–326 аймагы” деген сөз айкашын колдонот. Ошол эле учурда эки варианттын ортосундагы өзгөчө ырааттуулук айырмасы 321–325 ортосундагы KCGSL болуп саналат; 326 номериндеги G аминокислотасы Tau326–391дин биринчи калдыгы жана ошондуктан эки вариантта тең бар.
PGGG мотивдери жана β-hairpin логикасы
Булак айрым амилоидогендик мотивдердин алдында PGGG ырааттуулуктары бар экенин жана бул аймактар эки антипараллелдүү β-тилкени бири-бирине бириктирген кыска бурулуштарды түзүүгө ыктаарын түшүндүрөт. Мындай түзүлүш молекуланын ичинде “чач кыскычына” окшош β-hairpin түзө алат.
β-hairpin түзүлүшү — эки β-тилке бурулуш аймагы аркылуу бири-бирине туташкан конформация. Эрте агрегация маалында мындай түзүлүш башка tau молекулаларынын окшош аймактарынын белгилүү геометрия менен байланыш түзүшүн жеңилдетиши мүмкүн.
Бул изилдөө Tau321–343 all-atom симуляцияларында G-мотиви менен PHF6** айланасында β-hairpin сымал конформацияларды Tau326–343кө салыштырмалуу көбүрөөк байкаган. Бирок симуляцияларда байкалган hairpin түзүлүштөрү адам мээсиндеги бардык tau фибрилдер сөзсүз ушул эле жол менен түзүлөт дегенди билдирбейт.
Heparin жана DTT эксперименттерде эмне кылат?
Heparin оң заряддалган tau аймактары менен өз ара аракеттене алган полианиондук молекула. Булак heparin клетка ичиндеги RNA сыяктуу полианиондук компоненттердин айрым физика-химиялык таасирлерин моделдей аларын жана taunu фибрилдешүүгө ыктаган конформацияларга багыттоо үчүн кеңири колдонуларын түшүндүрөт.
Бирок heparin менен алынган фибрилдер адам мээсиндеги табигый tau фибрилдеринин так көчүрмөсү эмес. Авторлор heparin агрегация жолун жана пайда болгон фибрилдердин түзүмдүк касиеттерин өзгөртө аларын ачык белгилешет.
DTT (dithiothreitol) болсо калыбына келтирүүчү агент. Изилдөөдөгү Tau321–391 сыяктуу айрым варианттарда Cys322 бар. DTT дисульфид байланыштарын калыбына келтирип, cysteineдин redoks абалын өзгөртөт. Булак мунун tau агрегация жолуна жана фибрил морфологиясына таасир бере аларын көрсөтөт.
DTT өзү гана dGAE жана Tau306–391де ThT менен аныктала турган фибрилдешүүгө алып келген. dGAE үчүн lag фазасы болжол менен 3 күн, Tau306–391 үчүн 4,6 күн деп билдирилген. Кыскараак варианттар DTT гана болгон шартта ThT-оң фибрилдешүүнү көрсөткөн эмес.
Эмне Үчүн ThT Флуоресценциясы менен AFM Бирдей Жыйынтык Бербеши Мүмкүн?
ThT флуоресценциясы фибрилдин көлөмүн түз өлчөгөн ыкма эмес; боёктун байланышынын күчү фибрилдин cross-β тартибине, морфологиясына, полиморфтук түзүлүшүнө, байланыш оюктарынын жеткиликтүүлүгүнө жана беттик зарядга көз каранды болгондуктан, AFMде физикалык фибрилдер көрүнсө да жалпы ThT сигналы төмөн бойдон калышы мүмкүн.
Thioflavin T эмнени өлчөйт?
Thioflavin T амилоид түзүлүштөрүндөгү кайталануучу cross-β аймактарына байланышканда флуоресценциясы көбөйгөн боёк. Ошондуктан ал фибрил пайда болуу кинетикасын көзөмөлдөө үчүн кеңири колдонулат.
Бирок ThT ийри сызыгынын жогору болушу автоматтык түрдө “бул үлгүдө фибрил массасы эң көп” дегенди билдирбейт. Бирдей өлчөмдөгү эки башка фибрил архитектурасы ThT үчүн жеткиликтүү байланыш жерлеринин санын ар башка сунушташы же байланышкан ThTнин кванттык чыгышы өзгөрүшү мүмкүн.
Бул изилдөөдө Tau321–391 мунун ачык мисалы. ThT кинетикасында таза PBS жана DTT гана болгон шарттарда байкаларлык сигнал көрүнбөсө да, AFM ошол эле шарттарда сейрек фибрилдер бар экенин көрсөткөн.
AFM эмнени түз көрсөтөт?
Атомдук күч микроскопиясы үлгүнүн бетиндеги физикалык топографияны нанометр масштабында сүрөттөйт. Ошондуктан AFM фибрил сымал түзүлүштөрдүн чыныгы морфологиясын, узундугун, бийиктигин жана бет боюнча таралышын түз кароого мүмкүндүк берет.
Булак AFM сүрөттөрү фибрил көптүгүн сандык жактан көрсөтүү максатында тандалбаганын да баса белгилейт. Көрсөтүлгөн AFM талаалары түзүлүштөрдүн ар түрдүүлүгүн жана морфологиясын көрсөтүү үчүн өкүлчүлүктүү талаалар.
AFMде варианттар кандай көрүнгөн?
dGAE: Heparin жана heparin+DTT шарттарында тыгыз жана көп фибрилдерди түзгөн. Фибрил бийиктиктери болжол менен 40 nmге чейин кеңири таралуу көрсөткөн. Heparin+DTT шартында узун, бири-бирине чырмалышкан жана айрым учурларда буралган фибрилдер байкалган.
Tau306–391: dGAEге салыштырмалуу азыраак тыгыз, бирок узунураак фибрилдерди түзгөн. Бийиктик таралышы болжол менен 20 nmге чейин жетип, dGAEге караганда бир тектүүрөөк болгон.
Tau316–391: Өзгөчө heparin жана heparin+DTT шарттарында фибрилдерди түзгөн. Heparin+DTT шартында узунураак жана түзүмдүк жактан татаалыраак фибрилдер көрүнүп, айрым фибрилдер буралган морфология көрсөткөн.
Tau321–391: AFM жагынан изилдөөдөгү эң туруктуу фибрил түзүү жүрүм-турумдарынын бирин көрсөткөн. PBS, heparin, DTT жана heparin+DTT шарттарында фибрил түзүлүштөрү көрүнгөн. PBS жана DTT-only үлгүлөрүндө фибрилдер абдан сейрек таралгандыктан bulk ThT сигналына кошкон салымы төмөн болгон. Фибрилдер негизинен узун жана бутактанбаган, бийиктиги болжол менен 10 nmге чейинки түзүлүштөр. Heparin+DTT шартында буралган фибрилдер пайда болгон.
Tau326–391: Сыналган шарттардын эч биринде фибрил сымал түзүлүш түзгөн эмес. AFM бийиктиги адатта 5 nmден төмөн калган. Капиллярдык электрофорез айрым олигомерлешүү белгилерин көрсөткөн; бирок авторлор пайда болгон олигомерлердин массасын сандык жактан аныктай алышкан эмес.
| Вариант | PBS | Heparin | DTT | Heparin + DTT |
|---|---|---|---|---|
| dGAE / Tau297–391 | ThT төмөн; AFMде фибрил үстөм эмес | Күчтүү фибрилдешүү | Фибрилдешүү; болжол менен 3 күн lag | Күчтүү, узун жана татаалыраак фибрилдер |
| Tau306–391 | ThT төмөн | Фибрилдешүү; lag < 30 мүнөт | Фибрилдешүү; болжол менен 4,6 күн lag | Байкаларлык фибрилдешүү |
| Tau316–391 | ThT төмөн | Фибрилдешүү; lag болжол менен 1 күнгө чейин | ThT-detectable фибрилдешүү жок | Байкаларлык фибрилдешүү; айрым буралган фибрилдер |
| Tau321–391 | ThT төмөн; AFMде сейрек фибрилдер | Фибрилдешүү; lag болжол менен 1 күнгө чейин | ThT төмөн; AFMде сейрек фибрилдер | Байкаларлык фибрилдешүү; буралган фибрилдер |
| Tau326–391 | Фибрил жок | Фибрил жок | Фибрил жок | Фибрил жок |
Бул таблица өлчөө ыкмаларынын ар башка маанилерин сактоо үчүн сапаттык түрдө даярдалган. Булактагы графиктерден жаңы ThT пик бийиктиги, фибрил массасы же аралык убакыт мааниси чыгарылган эмес.
Буралган Tau321–391 фибрилдери эмнеге окшогон?
Heparin+DTT шарттарында пайда болгон буралган Tau321–391 филаменттери Trace_y программасы менен өзүнчө анализденген. Жалгыз, бөлүнгөн, кеминде үч кайталанма бирдикти камтыган жана көрүнгөн сыныгы жок фибрилдер тандалып; фибрил бетинин жана кесилиштик контакт-чекит тыгыздыгынын карталары түзүлгөн.
Булак бул кесилиштер heparin менен түзүлгөн full-length tau “jagged filament” түзүлүшүнө караганда dGAE paired helical filament (PHF) түзүлүшүнө көбүрөөк окшош экенин билдирет. Бул жердеги билдирүү “окшош көрүнөт” деңгээлинде; изилдөө бул фибрилдердин атомдук түзүлүшүн cryo-EM менен чечкен эмес.
Молекулалык Динамика Симуляциялары 321–325 Аймагы Жөнүндө Эмнени Көрсөттү?
All-atom симуляциялар 321KCGSL325 ырааттуулугун камтыган Tau321–343 Tau326–343кө салыштырмалуу көбүрөөк monomer–monomer контакт түзөрүн жана β-hairpin камтыган агрегацияга ылайыктуу аралык конформацияларды көбүрөөк кабыл аларын; coarse-grained симуляциялар болсо ошол эле N-терминал аймак Tau321–391де байкаларлык α-спиралдык ык жаратарын көрсөткөн.
All-atom симуляция деген эмне?
All-atom молекулалык динамика симуляциясында белоктун жана эриткичтин атомдору күч талаасындагы физикалык өз ара аракеттенүү мүчөлөрү аркылуу убакыт ичинде кыймылдатылат. Бул ыкма жогорку түзүмдүк деталдуулукту берет, бирок чоң системаларда эсептөө чыгымы жогору.
Изилдөөдө эки кыска N-терминал фрагмент салыштырылган:
- Tau321–343: 321KCGSLGNIHHKPGGGQVEVKSEK343
- Tau326–343: 326GNIHHKPGGGQVEVKSEK343
Эки фрагмент бирдей G-мотиви жана PHF6** аймактарын бөлүшөт; Tau321–343түн айырмасы башындагы KCGSL ырааттуулугу.
All-atom monomer симуляциясынын шарттары
- Күч талаасы: CHARMM36m
- Суу модели: CHARMM-modified TIP3P
- Башталышы: Chimeraда даярдалган толук созулган конформация
- Monomer симуляциясы: ар бир вариант үчүн үч 500 ns реплика
- Кластерлөө: Gromos алгоритми
- Backbone RMSD кластерлөө босогосу: 3 Å
- Өлчөмдү кыскартуу / кыймыл анализи: principal component analysis (PCA)
- Эркин энергия ландшафты: PC1 жана PC2 гистограммасын Boltzmann inversion процесси аркылуу түзүү
RMSD бул жерде эмнени билдирет? Молекулалык динамика контекстинде RMSD түзүлүштөр ортосундагы атомдук координата айырмаларынын квадраттарынын орточо маанисинин квадраттык тамырына негизделген геометриялык аралык өлчөмү. Булак ачык RMSD теңдемесин жазбагандыктан Verianla жаңы теңдеме кошпойт.
PCA эмне кылат? Principal component analysis симуляция учурунда белок координаттарынын өзгөрүштөрүнөн эң чоң коллективдүү кыймылдарды чагылдырган багыттарды чыгарат. PC1 жана PC2 белок кыймылдарынын эң маанилүү эки компонентин чагылдырган математикалык октор.
Free energy landscape эмнени көрсөтөт? Симуляцияда көбүрөөк кездешкен конформациялык аймактар салыштырмалуу төмөн эркин энергия аймактарына туура келерине негизделген конформация картасы. Булак эркин энергия айырмаларын Boltzmann inversion менен эсептегенин айтат, бирок ачык математикалык теңдеме бербейт; ошондуктан бул жерде булактан тышкаркы теңдеме кошулган эмес.
Димерлешүү симуляцияларында эмне табылды?
Эң жогорку популяциялуу алгачкы 10 monomer кластеринин борбордук түзүлүштөрү жуп топторго бириктирилген: cl1+cl2, cl3+cl4, cl5+cl6, cl7+cl8 жана cl9+cl10. Эки monomer симуляция кутусунда геометриялык борборлорунун аралыгы 30 Å болгондой жайгаштырылган.
Булакта бул жерде кайталануу саны боюнча маанилүү дал келбестик бар. Ыкмалар бөлүмү ар бир жуп үчүн үч 2 μs реплика түзүлгөнүн айтат. Ал эми жыйынтыктар бөлүмү “беш 2 μs траектория” деген сөздү колдонот жана булактын 4-сүрөт түшүндүрмөсү да беш 2 μs реплика деп көрсөтөт. Verianla бул айырманы унчукпай түзөтпөйт.
Жыйынтыктар бөлүмүндө берилген беш траекторияга негизделген статистикалык жыйынтык төмөнкүдөй:
| Вариант | Димердик популяция | Статистикалык салыштыруу |
|---|---|---|
| Tau321–343 | %29,4 ± 4,4 | Эки куйруктуу t-тест, P = 0,014 |
| Tau326–343 | %14,7 ± 2,1 |
Бул айырма Tau321–343 симуляция бою Tau326–343кө салыштырмалуу болжол менен эки эсе көп димердик контакт популяциясын көрсөткөнүн билдирет. “Эки эсе” бул жерде өлчөнгөн пайыздык популяциялардын болжолдуу катышын билдирет; клиникалык же биологиялык эффекттин өлчөмү эмес.
Булактын 4-сүрөт түшүндүрмөсүндө молекулалар аралык контакт камтылган алынган кадрлардын жалпы үлүшү өзүнчө Tau321–343 үчүн %29,98 жана Tau326–343 үчүн %14,98 деп берилет. Бул сүрөттөгү пайыздар менен жогорудагы орточо ± четтөө статистикасы бирдей берүү форматы эмес жана бири-биринин ордуна колдонулбашы керек.
Tau321–343 кандайча башка димер түзүлүшүн түздү?
Tau321–343 кластерлеринде жогору β-түзүлүш мазмуну байкалган. G-мотиви менен PHF6** ортосундагы 332PGGG335 аймагы байланыштырган молекула ичиндеги антипараллелдүү β-hairpin түзүлүштөрү ар кандай кластерлерде пайда болгон.
Бул hairpin түзүлүштөрүнүн беттери monomerлер бири-бирине жакындаганда контакт бетин түзө алган жана параллелдүү же антипараллелдүү молекулалар аралык β-түзүлүштөр пайда болгон.
Tau326–343 болсо көбүрөөк “fuzzy”, башкача айтканда бир гана тыгыз жана иреттүү геометрияга отурбаган контакттарды көрсөткөн. Айрым кластерлерде кыска параллелдүү β-sheet интерфейстери байкалганы менен N-терминал учтары байланышуу интерфейсинен алыстап багытталган.
Контакт карталарында Tau321–343 димерлери C-терминал PHF6** жана N-терминал G-мотиви айланасындагы өз ара аракеттенүүлөр менен турукташкан, ал эми Tau326–343 димерлеринде контакттар негизинен PHF6** айланасында топтолгон.
Coarse-grained симуляция эмне үчүн колдонулган?
Tau321–391 жана Tau326–391 сыяктуу болжол менен 70 калдыктан турган узун жана өтө ийкемдүү белок фрагменттеринин толук атомдуу, ачык эриткичтүү симуляциясы өтө чоң эсептөө кутуларын талап кылат. Булак болжол менен 1,7 миллион бөлүкчө талап кылынышы мүмкүн болгон бул чыгымды азайтуу үчүн coarse-grained SIRAH ыкмасын колдонгон.
Coarse-grained модель бир нече атомду физика-химиялык касиеттерди чагылдырган чоңураак “bead” бирдиктерине бириктирет. Ошентип ошол эле физикалык убакыт аралыгы төмөнүрөөк эсептөө чыгымы менен үлгүлөнөт; анын ордуна атомдук деталдуулук азаят.
Coarse-grained симуляция шарттары
- Күч талаасы: SIRAH 2.0
- IDP жүрүм-турумун жакшыраак чагылдыруу үчүн колдонулган кайра параметрлөө: белок–суу bead өз ара аракеттенүүлөрүн %30га чейин көбөйткөн Martins жана кесиптештеринин ыкмасы
- Баштапкы түзүлүштөр: AlphaFold2 / ColabFold v1.5.5
- MSA түзүү: MMseqs2
- Түзүмдүк template колдонбостон божомолдоо
- Эң жогорку рейтингдеги беш AlphaFold2 түзүлүшү релаксацияланып, беш CG реплика үчүн колдонулган
- Булактагы 5-сүрөт түшүндүрмөсүнө ылайык ар бир вариант үчүн беш 5 μs реплика
- Симуляция программасы: GROMACS 2023.2
- Траектория түзүү: Devana HPC системасы
AlphaFold2 баштапкы түзүлүштөрүнүн колдонулушу маанилүү. Булак мунун биологиялык “туура tau түзүлүшүн” аныктоо үчүн эмес, баштапкы конформацияны бир аз компакт кылып, симуляция кутусунун өлчөмүн жана эсептөө чыгымын азайтуу үчүн жасалганын түшүндүрөт.
Coarse-grained симуляциянын эң байкаларлык айырмасы эмне болгон?
Эки вариант тең IDPлерге мүнөздүү жогорку түзүмдүк ийкемдүүлүктү көрсөткөн. Бирок Tau321–391дин беш репликасынын экөөсүндө G-мотив калдыктарын камтыган байкаларлык N-терминал α-helix пайда болгон.
Булак бул N-терминал спиралдык ыкты агрегация-компетенттүү Tau321–391 менен агрегация-компетенттүү эмес Tau326–391 ортосундагы эң байкаларлык түзүмдүк айырмалардын бири деп баалайт.
Антипараллелдүү β-sheet аралык түзүлүштөрү канчалык көп байкалган?
Coarse-grained конформация топтомдорунда антипараллелдүү β-sheet аралык түзүлүштөрү Tau321–391 түзүлүштөрүнүн %7,49унда, Tau326–391 түзүлүштөрүнүн болсо %2,52синде байкалган.
Эки вариантта тең молекула ичиндеги β-sheet байланыштары C-терминал 376LTFRENAK383 аймагы менен N-терминал G-мотивинин айланасында пайда болгон. PAM4 аймагы болсо күчтүү спиралдык ык көрсөткөн.
NMR симуляция жыйынтыктарын кантип текшерген?
Tau321–391 үчүн эксперименттик NMR chemical shift маалыматтары колдонулган. Изотоп менен белгиленген Tau321–391 M9 минималдуу чөйрөсүндө 2 g/L 13C glucose жана 1 g/L 15N ammonium chloride колдонуу менен өндүрүлгөн. Культура Marley протоколуна ылайык индукцияга чейин минималдуу чөйрөдө төрт эсе концентрацияланган.
NMR өлчөөсү 950 MHz Bruker AVANCE NEO спектрометринде, 0,5 mM Tau321–391, PBS, 5 mM DTT жана %10 D2O шарттарында жүргүзүлгөн. Изилдөөнүн NMR chemical shift маалыматтары BMRB маалымат базасында 53400 кирүү коду менен көрсөтүлгөн.
Экинчилик түзүлүш ыкы өлчөнгөн Cα жана Cβ chemical shift маанилеринин random-coil шилтемелеринен четтөөсүнө жараша эсептелген. Оң SSP маанилери спиралдык, терс SSP маанилери β-sheet ыкын билдирет деп чечмеленген.
Булак симуляциялардан алынган G-мотиви жана PAM4 айланасындагы спиралдык/β-sheet ык NMR жыйынтыктарына шайкеш келерин белгилейт.
CD спектроскопиясы эмне үчүн жүргүзүлгөн?
Circular dichroism (CD) белоктордун экинчилик түзүлүш курамы убакыт өтүшү менен кандай өзгөрөрүн көзөмөлдөө үчүн колдонулган. Өзгөчө Tau321–391 жана Tau326–391дин агрегация учурунда helix, antiparallel β-sheet, parallel β-sheet, turn жана тартипсиз түзүлүш пайыздары салыштырылган.
50 μM Tau321–391 жана Tau326–391 assay buffer гана болгон шартта жана 50 μM heparin бар кезде 0, 23, 28, 30,5, 42, 51 жана 72 саат убакыт чекиттеринде изилденген.
- Оптикалык жол: 1 mm
- Спектралдык диапазон: 190–270 nm
- Сканерлөө ылдамдыгы: 50 nm/мүн
- Аккумуляция: 3
- Аспап: Jasco J-815 spectropolarimeter
- Тегиздөө: Origin Pro8.5, Savitzky–Golay
- Deconvolution: BeStSel
CD Таблица 1: Heparinsiz Tau321–391
| Түзүлүш | 0 мүн | 23 с | 28 с | 30,5 с | 42 с | 51 с | 72 с |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0,6 | 5 | 0 | 0 | 0 | 0 |
| Antiparallel sheet | 23,6 | 20,2 | 21,9 | 24,2 | 24,7 | 25,4 | 20,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 15,3 | 17,7 | 15,8 | 14,9 | 19 | 16,9 | 19,4 |
| Others | 61 | 61,5 | 57,2 | 60,9 | 56,3 | 57,7 | 60,5 |
| RMSD | 0,3054 | 0,2827 | 0,4187 | 0,4064 | 0,336 | 0,2146 | 0,2237 |
Убакыт бирдиги боюнча эскертүү: Булак Таблица 1деги убакыт чекиттерин 23 h, 28 h, 30.5 h, 42 h, 51 h жана 72 h деп берет. Жогорудагы аталыштардагы “с” сөзү саат дегенди билдирет.
CD Таблица 1: Heparinsiz Tau326–391
| Түзүлүш | 0 мүн | 23 с | 28 с | 30,5 с | 42 с | 51 с | 72 с |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0,1 | 0 | 0 |
| Antiparallel sheet | 27,1 | 26,7 | 30 | 23,1 | 31,3 | 27,9 | 34,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 18 | 18,9 | 18,5 | 19 | 19,1 | 18,7 | 17,9 |
| Others | 54,9 | 54,4 | 51,5 | 58 | 49,5 | 53,5 | 48 |
| RMSD | 0,2364 | 0,2054 | 0,1707 | 0,2381 | 0,3873 | 0,2226 | 0,25 |
CD Таблица 1: Tau321–391 + heparin
| Түзүлүш | 0 мүн | 23 с | 28 с | 30,5 с | 42 с | 51 с | 72 с |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 1,1 | 0 | 0 | 4,3 | 6,7 |
| Antiparallel sheet | 25,7 | 19,9 | 20,8 | 22,4 | 32,2 | 31,3 | 31,4 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 5,5 | 9,4 |
| Turn | 20,5 | 19,3 | 14,4 | 16,3 | 15,9 | 11,9 | 9,9 |
| Others | 53,8 | 60,8 | 63,7 | 61,3 | 51,9 | 47 | 42,5 |
| RMSD | 0,1923 | 0,3197 | 0,2837 | 0,4176 | 0,199 | 0,0833 | 0,1783 |
CD Таблица 1: Tau326–391 + heparin
| Түзүлүш | 0 мүн | 23 с | 28 с | 30,5 с | 42 с | 51 с | 72 с |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0 | 0 | 0,6 |
| Antiparallel sheet | 26 | 25,7 | 27,3 | 25,5 | 26,4 | 27,6 | 27,7 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 19,8 | 17,1 | 18 | 17,1 | 16,1 | 17,4 | 19,4 |
| Others | 54,2 | 57,2 | 54,7 | 57,4 | 57,6 | 55,1 | 52,3 |
| RMSD | 0,3491 | 0,374 | 0,138 | 0,2308 | 0,2882 | 0,17 | 0,3789 |
RMSD терминологиясы бул жерде башка: Булактагы Таблица 1дин эскертүүсүндө RMSD BeStSel программасында өлчөнгөн CD спектри менен дал келтирилген спектрдин ортосундагы spectral deviation катары аныкталат. Бул молекулалык динамика бөлүмүндө белок координаттарын салыштыруу үчүн колдонулган түзүмдүк RMSD менен бирдей метрика эмес.
CD маалыматтарынын негизги мааниси
Heparinsiz шарттарда Tau321–391 да, Tau326–391 да көбүнчө тартипсиз бойдон калган. Tau321–391дин спиралдык курамы 23 саатта %0,6 жана 28 саатта %5ке убактылуу көтөрүлсө, Tau326–391де эң жогорку байкаларлык helix мааниси 42 саатта болгону %0,1 болгон.
Heparin бар кезде Tau321–391 кыйла байкаларлык кайра уюшулууну көрсөткөн. 51 жана 72 саатта parallel β-sheet тиешелүүлүгүнө жараша %5,5 жана %9,4кө жогорулаган; helix курамы %4,3 жана %6,7ге жеткен. Ошол эле убакта “others” жана turn компоненттери азайган.
Tau326–391 + heparin шартында parallel β-sheet бардык убакыт чекиттеринде %0 бойдон калган жана helix 72 саатта гана %0,6 деп билдирилген.
Булак бул жыйынтыктарды Tau321–391дин lag фазасында убактылуу спиралдык жана turnга бай аралык түзүлүштөрдөн көбүрөөк иреттелген β-sheet фибрилдерге өтө алышы менен байланыштырат.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Рекомбинанттык tau варианттарын даярдоо
dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 жана Tau326–391 варианттары E. coli BL21(DE3) клеткаларында pET-17 экспрессия вектору колдонулуп өндүрүлгөн.
Белоктор бактериялык лизаттан ион алмашуу хроматографиясы жана өлчөм боюнча бөлүү хроматографиясы аркылуу мурда жарыяланган протоколго ылайык тазаланган. Тазаланган белоктор PBS pH 7,4 ичинде, дисульфид түзүлүшүн азайтуу үчүн аргон атмосферасында −80 °Cде сакталган.
Белок концентрациялары 205 nm абсорбциядан DU 640 спектрофотометри менен аныкталган. Тазалык жана идентификация SDS-PAGE жана mass spectrometry аркылуу текшерилген.
Mass spectrometry ырастоосунун деталдары
- DTT акыркы концентрациясы: 10 mM
- Iodoacetamide акыркы концентрациясы: 15 mM
- Trypsin digestion: 37 °Cде түн бою
- UPLC: Acquity UPLC M-Class
- Колонка: Acquity UPLC HSS T3, 1 × 100 mm, 1,8 μm
- Gradient: %5–40 acetonitrile, %0,1 formic acid, 30 мүнөт
- Агым: 75 μL/мүн
- MS аспабы: ZenoTOF 7600 time-of-flight
- Маалымат чогултуу: data-dependent acquisition (DDA)
- Маалымат иштетүү: Peaks 13
Булак негизги текстте MS жыйынтык сүрөтүн Tau321–391 үчүн гана Supplementary Fig. S1де көрсөтөт.
ThT агрегация экспериментинин толук шарттары
| Параметр | Булактагы маани |
|---|---|
| Tau концентрациясы | 50 μM |
| ThT концентрациясы | 12,5 μM |
| Үлгү көлөмү | 50 μL |
| Температура | 37 °C |
| Orbital shaking | 700 rpm |
| Максималдуу инкубация | 6 күн |
| Кайталоо | Үч реплика |
| Пластина | 96-well half-volume Corning 3881 |
| Окугуч | ClarioStar, BMG Labtech |
Төрт эксперименттик шарт төмөнкүдөй:
- 1× PBS, pH 7,4
- 1× PBS + 50 μM heparin
- 1× PBS + 10 mM DTT
- 1× PBS + 50 μM heparin + 10 mM DTT
Buffer жана кошумча заттардын өз ThT флуоресценциясы белок камтыган үлгүлөрдүн сигналынан алынып салынган.
Heparin шарттарындагы кинетикалык жыйынтыктар
50 μM heparin dGAE, Tau306–391, Tau316–391 жана Tau321–391де ThT менен байкала турган фибрилдешүүнү индукциялаган. Tau326–391 болсо heparinге карабай фибрил түзгөн эмес.
dGAE жана Tau306–391 үчүн lag фазасы 30 мүнөттөн кыска. Tau316–391 жана Tau321–391 үчүн фибрил пайда болушунун lag фазасы болжол менен бир күнгө чейин узарган.
dGAE heparin шартында эң жогорку steady-state ThT флуоресценциясын көрсөткөн вариант болгон.
DTT шарттарындагы кинетикалык жыйынтыктар
DTT гана болгон шартта ThT менен байкаларлык фибрил пайда болушу dGAE жана Tau306–391 үчүн байкалган. dGAEнин lag фазасы болжол менен 3 күн, Tau306–391дин lag фазасы болжол менен 4,6 күн.
Tau316–391, Tau321–391 жана Tau326–391 DTT гана менен ThT-detectable фибрилдешүүнү көрсөткөн эмес. Ошентсе да Tau321–391 AFMде сейрек фибрилдерди көрсөтө аларын эске алуу керек.
Heparin + DTT чогуу колдонулганда эмне болду?
Heparin жана DTT чогуу колдонулганда Tau326–391ден башка бардык варианттарда байкаларлык фибрилдешүү болгон.
Tau306–391, Tau316–391 жана Tau321–391 бул шартта эң жогорку end-state ThT сигналдарынын айрымдарын көрсөткөн. dGAEде heparin+DTT жана heparin гана шарттарынын ортосундагы акыркы ThT сигналдары эксперименттик ката чегинде салыштырууга боло турган деңгээлде болгон.
Tau316–391 үчүн heparin+DTT комбинациясы heparin ганага салыштырмалуу тезирээк кинетика берген. dGAE жана Tau306–391де болсо heparin+DTT кинетикасы heparin ганага караганда бир аз жайыраак болгон.
Капиллярдык электрофорез шарттары
- Аспап: Agilent 7100 CE analyzer
- Детектор: UV
- Капилляр: 56 cm × 75 μm ID bare fused silica
- Инъекция: 50 mbar, 10 s
- Полярдуулук: оң
- Чыңалуу: башында 20 s ичинде 0 kV → +20 kV
- Background electrolyte: 1 M acetic acid, pH 2,38
- Детекция толкун узундугу: 210 nm
Капиллярдык электрофорез Tau326–391 үлгүлөрүндө айрым олигомерлешүү белгилерин көрсөткөн; бирок булак бул олигомерлердин массасын сандык жактан өлчөөгө мүмкүн болбогонун ачык айтат.
Изилдөө колдогон жыйынтыктар
- dGAE/Tau297–391 изилденген варианттардын арасында эң күчтүү жалпы агрегация жоопту көрсөткөн.
- N-терминал кыскаруу жалпысынан агрегация кинетикасын жайлаткан.
- Tau326–391 эч бир сыналган шартта фибрил түзгөн эмес.
- Tau321–391 изилденген E391-truncated варианттардын ичинен фибрил түзө ала турган эң кыска конструкция.
- Tau321–391 таза PBSте AFM менен көрүнгөн фибрилдерди түзө алган; бул фибрилдер ThT-оң эмес.
- 321KCGSL325 ырааттуулугу Tau321–391 менен Tau326–391 ортосундагы негизги ырааттуулук айырмасы.
- Tau321–343 all-atom димерлешүү симуляциясында Tau326–343кө салыштырмалуу жогору димердик популяция көрсөткөн.
- Димердик популяция айырмасы булактын жыйынтыктар бөлүмүндө %29,4 ± 4,4 жана %14,7 ± 2,1; P = 0,014 деп билдирилген.
- Tau321–343дө β-hairpin сымал агрегацияга ыктаган аралык конформациялар айкыныраак болгон.
- Tau321–391 coarse-grained симуляцияларында N-терминал G-мотиви айланасында байкаларлык α-спиралдык ык байкалган.
- NMR жана CD жыйынтыктары Tau321–391деги локалдык спиралдык жана β-түзүлүш ык симуляция табылгаларына шайкеш экенин колдогон.
- Heparin+DTT айрым варианттарда түз фибрилдерден айырмаланган, буралган фибрил морфологияларынын пайда болушун колдогон.
- ThT жана AFM бири-бирин толуктаган, бирок дайыма түз корреляцияланбаган маалымат берген.
Изилдөө колдобогон жыйынтыктар
- 321–325 аймагы Alzheimer оорусунун жалгыз себеби экени көрсөтүлгөн эмес.
- 321–325 аймагын бутага алуу адамдарда дарылоону камсыз кылары көрсөтүлгөн эмес.
- Адамдарда же жаныбарларда дарылоо эксперименти жүргүзүлгөн эмес.
- Heparin менен алынган фибрилдер адам мээсиндеги Alzheimer tau фибрилдерине дал келет деп көрсөтүлгөн эмес.
- ThT флуоресценциясын түздөн-түз фибрил массасы катары чечмелөөгө болбойт.
- AFMдеги өкүлчүлүктүү талаалар бүт үлгүдөгү жалпы фибрил көлөмүнүн түз сандык өлчөмү эмес.
- MD симуляциясында көрүлгөн hairpin же α-helix түзүлүштөр адам мээсинде сөзсүз ошол эле түрдө пайда болору көрсөтүлгөн эмес.
- Симуляциялар tau олигомерлешүүсүнүн бүт жолун же жетилген фибрилге чейинки бардык молекулалык этаптарды моделдеген эмес.
- Изилдөө 321–325 аймагынан тышкары flank ырааттуулуктардын таасирин толук жокко чыгарбайт.
- DTTнин таасирин бир гана дисульфид механизми менен түшүндүрүүгө болбойт; булак redoks абалы альтернативдүү агрегация жолдоруна таасир бере аларын талкуулайт.
Изилдөөнүн негизги методологиялык чектөөлөрү
Биринчи чектөө — колдонулган tau фрагменттери толук узундуктагы адам tau белогунун кыскартылган моделдери гана. Клетка ичинде чыныгы tau фосфорлануу жана башка post-translational модификациялар, протеолиз, клеткалык иондор, RNA, липиддер, башка белоктор жана молекулалык crowding сыяктуу көптөгөн факторлорго дуушар болот.
Экинчи чектөө — heparin көзөмөлдөнгөн фибрилдешүүнү камсыз кылуу үчүн пайдалуу болгону менен Alzheimer оорусундагы in-vivo агрегация чөйрөсүн толук туурабайт.
Үчүнчү чектөө — ThT фибрил жүгү үчүн абсолюттук сандык өлчөм эмес. AFM да кичинекей жана өкүлчүлүктүү беттик аймактарды сүрөттөйт; бүт үлгүдөгү фибрил массасын жалгыз өзү өлчөбөйт.
Төртүнчү чектөө — all-atom димерлешүү симуляциясындагы реплика саны булактын ичинде бирдей берилген эмес: Ыкмалар бөлүмү үч × 2 μs, жыйынтыктар жана 4-сүрөт болсо беш × 2 μs деп көрсөтөт.
Бешинчи чектөө — симуляциялар эрте monomer/dimer окуялары жөнүндө күчтүү түзүмдүк детал бергени менен, жогорку олигомерлерди жана бүт фибрил өсүү процессин түз моделдеген эмес. Авторлор мындан ары өнүккөн олигомерлешүү симуляциялары пайдалуу болорун белгилешет.
Бул изилдөө эмне үчүн илимий жактан маанилүү?
Изилдөө белгилүү PHF6 сыяктуу амилоид өзөк мотивине гана көңүл бурбайт. Жыйынтыктар амилоидогендик мотивдердин айланасындагы кыска flank аймактар да ошол эле мотив кайсы конформацияларды кабыл аларын жана алгачкы молекулалар аралык контакттар кандай пайда болорун олуттуу өзгөртө аларын көрсөтөт.
Tau321–391 менен Tau326–391 ортосундагы беш калдык айырмасы мунун күчтүү эксперименттик модели. Эки вариант көптөгөн амилоид аймактарды бөлүшкөнү менен, бири фибрилдеше алат, экинчиси фибрилдешпейт. Бул белок агрегациясында “агрегация мотиви барбы?” деген суроо жалгыз өзү жетишсиз экенин; мотивдин контексти жана кошуна ырааттуулуктар да маанилүү экенин көрсөтөт.
Авторлор мындай flank аймактар жана pre-aggregation конформациялар келечекте терапевтикалык бута катары бааланары мүмкүн деп сунушташат. Бул сөз изилдөө багытын сунуштоо болуп саналат; бул изилдөө эч бир дарынын, антителонун же адам дарылоосунун натыйжалуулугун сынаган эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска аталыш: Gradual N-terminal truncation of tau dGAE (297–391) reveals the importance of 321–325 sequence for early steps of fibril formation
Авторлор: Stefana Njemoga; Petra Majerova; Juraj Piestansky; Zuzana Gazova; Pavel Kaderavek; Exequiel E. Barrera; Zuzana Bednarikova; Ondrej Cehlar.
Corresponding authors: Exequiel E. Barrera, Zuzana Bednarikova жана Ondrej Cehlar.
Тең салым: Булакта тең биринчи авторлук же тең салым билдирүүсү көрүнбөйт.
Мекемелер: Institute of Neuroimmunology, Slovak Academy of Sciences, Bratislava, Slovakia; Department of Galenic Pharmacy, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia; Institute of Experimental Physics, Slovak Academy of Sciences, Kosice, Slovakia; Central European Institute of Technology (CEITEC), Masaryk University, Brno, Czech Republic; National Centre for Biomolecular Research, Faculty of Science, Masaryk University, Brno, Czech Republic; Instituto de Histología y Embriología (IHEM), CONICET–Universidad Nacional de Cuyo, Mendoza, Argentina; Department of Pharmaceutical Chemistry, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia.
Журнал: International Journal of Biological Macromolecules.
Басма: Elsevier B.V.
Том / макала номери: 362 / 152066.
DOI: 10.1016/j.ijbiomac.2026.152066.
Келип түшкөн күнү: 19 январь 2026.
Кайра каралган версия күнү: 10 апрель 2026.
Кабыл алынган күнү: 15 апрель 2026.
Онлайн жарыяланган күнү: 17 апрель 2026.
Библиографиялык том маалыматы: Volume 362, май 2026.
Булак түрү: Рекомбинанттык белок in-vitro агрегация эксперименттерин жана молекулалык динамика симуляцияларын бириктирген эксперименттик–эсептөөчү изилдөө макаласы.
Рецензия абалы: International Journal of Biological Macromolecules журналында жарыяланган рецензияланган макала.
Лицензия: Creative Commons Attribution 4.0 International (CC BY 4.0).
Ачкыч сөздөр: Tau protein; Amyloidogenic motifs; Amyloid aggregation; MD simulation.
Изилденген варианттар: dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 жана Tau326–391.
Негизги эксперименттик ыкмалар: ThT fluorescence assay, atomic force microscopy, circular dichroism spectroscopy, capillary electrophoresis, NMR жана mass spectrometry ырастоосу.
Негизги эсептөө ыкмалары: CHARMM36m all-atom MD, SIRAH 2.0 coarse-grained MD, Gromos RMSD clustering, PCA/free-energy landscape, AlphaFold2/ColabFold баштапкы моделдери жана аминокислота контакт карталары.
Негизги жыйынтык: Tau321–391 изилденген E391-truncated конструкциялардын ичинен фибрил түзө ала турган эң кыска вариант; Tau326–391 сыналган шарттарда фибрил түзө алган эмес. Ортодогу өзгөчө N-терминал айырма 321KCGSL325 ырааттуулугу.
All-atom негизги сандык жыйынтык: Булактын жыйынтыктар бөлүмүндө Tau321–343 димердик популяциясы %29,4 ± 4,4, Tau326–343 популяциясы %14,7 ± 2,1 жана P = 0,014 деп берилген.
Симуляция кайталануу саны боюнча булак ичиндеги эскертүү: Ыкмалар бөлүмү димерлешүү үчүн үч × 2 μs реплика деп жазса, жыйынтыктар тексти жана 4-сүрөт түшүндүрмөсү беш × 2 μs траектория/реплика деп көрсөтөт. Бул айырма булак тарабынан түшүндүрүлгөн эмес.
321–325 / 321–326 терминология эскертүүсү: Tau321–391 менен Tau326–391 ортосундагы чыныгы кошумча ырааттуулук 321KCGSL325. Айрым контакт анализи түшүндүрмөлөрүндө 321–326 аймагы деп айтылат; 326 номериндеги G эки варианттын тең G-мотивиндеги жалпы калдык.
CD RMSD эскертүүсү: Булактагы Таблица 1де RMSD BeStSelде өлчөнгөн жана дал келтирилген CD спектрлеринин ортосундагы spectral deviation. MD анализиндеги координата-негиздүү RMSD менен бирдей өлчөм эмес.
Heparin чеги: Булак heparin-induced фибрилдешүү Alzheimer оорусу мээсиндеги фибрил түзүлүшүн толук чагылдырбасын жана heparin агрегация жолун/фибрил түзүлүшүн өзгөртө аларын ачык белгилейт.
ThT чеги: ThT fluorescence фибрил массасынын түз өлчөмү эмес; морфология, полиморфтук түзүлүш, binding-site accessibility жана surface charge сигналга таасир бере алат.
AFM чеги: AFM сүрөттөрү морфологиялык ар түрдүүлүктү көрсөтүү үчүн өкүлчүлүктүү жана бүт үлгүдөгү жалпы фибрил көптүгүнүн түз сандык өлчөмү катары колдонулган эмес.
Маалымат жеткиликтүүлүгү: Изилдөөнүн эсептөө маалыматтары Zenodoдо эки өзүнчө маалымат жазуусу менен берилген: DOI 10.5281/zenodo.17830302 жана DOI 10.5281/zenodo.18157196.
NMR маалымат жазуусу: Tau321–391 үчүн колдонулган NMR маалыматтары BMRB кирүү коду 53400 астында көрсөтүлгөн.
Кызыкчылыктардын кагылышы: Авторлор “We have nothing to declare” билдирүүсүн берген.
Каржылоо: Изилдөө VEGA 02/0141/25, 2/0125/23 жана 1/0825/25; APVV-18-0284 жана APVV-22-0598; Словакия Recovery and Resilience Plan 09I03-03-V04-00623, 09I03-V04-00622 жана 09I02-03-V01-00021; Horizon Europe 101087124 ADDIT-CE; Horizon 2020 Marie Skłodowska-Curie 873127 InterTAU; National competence centre for high-performance computing 311070AKF2 жана тиешелүү Европа/Регионалдык инфраструктура колдоолору менен каржыланган. Josef Dadok National NMR Centre өлчөөлөрү CIISB/Instruct-CZ инфраструктурасынан жана тиешелүү MEYS/ERDF колдоосунан пайдаланган; COST CA21160 ML4NGP жана MVTS COST ML4NGP колдоосу да көрсөтүлгөн.
CRediT – Stefana Njemoga: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation.
CRediT – Petra Majerova: Investigation.
CRediT – Juraj Piestansky: Investigation.
CRediT – Zuzana Gazova: Writing – review & editing, Project administration, Funding acquisition.
CRediT – Pavel Kaderavek: Data curation, Investigation, Writing – review & editing.
CRediT – Exequiel E. Barrera: Writing – review & editing, Visualization, Supervision, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Zuzana Bednarikova: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Ondrej Cehlar: Writing – review & editing, Visualization, Supervision, Project administration, Methodology, Investigation, Funding acquisition, Formal analysis, Conceptualization.
Негизги чечмелөө чеги: Изилдөө tau агрегациясынын эрте молекулалык аныктоочуларын көзөмөлдөнгөн in-vitro жана эсептөө моделдеринде изилдейт. Ал адам мээсиндеги tauopatiya механизмдеринин баарын, клиникалык оорунун өнүгүшүн же кандайдыр бир терапиянын натыйжалуулугун далилдебейт.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген