


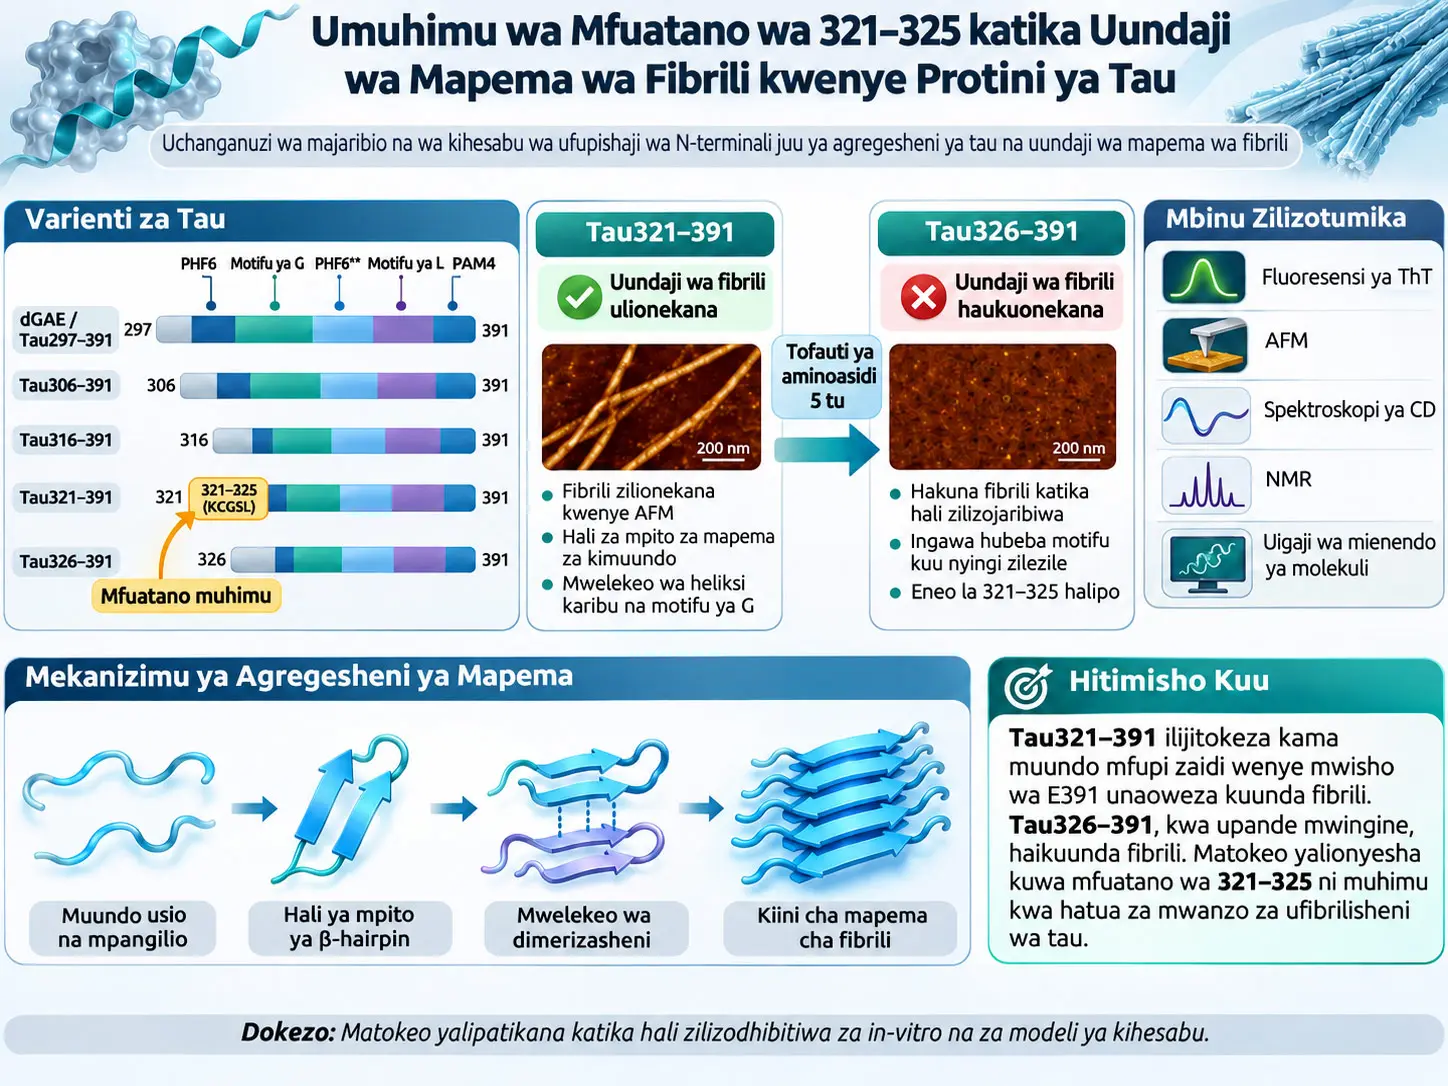
Protini ya tau, katika hali ya kawaida, kwa kiasi kikubwa haina muundo mmoja maalumu na thabiti wa pande tatu; kwa hiyo ni protini inayohusishwa na mikrotubuli na iko katika kundi la “intrinsically disordered protein”, yaani protini zisizo na mpangilio wa ndani uliowekwa. Utafiti huu ulichunguza jinsi kufupishwa hatua kwa hatua kwa kipande cha Tau297–391 cha protini ya tau, kinachoitwa dGAE, kuanzia ncha ya N-terminal kunavyobadilisha uundaji wa fibrili za amiloidi. Aina tano za tau zilizokatwa — dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 na Tau326–391 — zililinganishwa kwa kutumia fluoresensi ya Thioflavin T (ThT), hadubini ya nguvu ya atomiki (AFM), electrophoresis ya kapilari, circular dichroism (CD), spectroscopy ya NMR na uigaji wa mienendo ya molekuli (MD).
Matokeo makuu ya utafiti ni kwamba tofauti ya amino asidi tano pekee kati ya Tau321–391 na Tau326–391 inahusiana kwa nguvu na tabia ya aggregation. Mfuatano wa 321KCGSL325 uliopo katika N-terminal ya Tau321–391 haupo katika Tau326–391. Kinyume chake, sehemu kubwa ya maeneo makuu ya amyloidogenic yaliyotathminiwa, kama G-motif, PHF6**, L-motif na PAM4, ipo katika aina zote mbili. Hata hivyo, wakati Tau321–391 iliweza kuunda fibrili, Tau326–391 haikuunda fibrili hata katika hali zilizojaribiwa zinazorahisisha aggregation, ikiwemo heparin na DTT.
Katika uigaji wa mienendo ya molekuli wa all-atom, Tau321–343 ilionyesha mwelekeo mkubwa zaidi wa dimerization kuliko Tau326–343. Katika maandishi ya matokeo, uchanganuzi uliounganishwa wa trajectory tano za 2 μs uliripoti idadi ya dimeric ya %29,4 ± 4,4 kwa Tau321–343 na %14,7 ± 2,1 kwa Tau326–343, huku P = 0,014 ikitolewa kwa tofauti hiyo. Tau321–343 pia ilionekana kuwa na uwezekano mkubwa zaidi wa kuunda miundo ya antiparallel β-hairpin karibu na G-motif na PHF6**. Waandishi walihusisha miundo hii na conformations zinazoweza kuunda kiini cha mapema cha aggregation.
Uigaji wa coarse-grained wa mienendo ya molekuli ulionyesha sifa tofauti lakini inayokamilishana ya kimuundo: katika eneo la N-terminal la Tau321–391, hasa karibu na G-motif, kulionekana mwelekeo dhahiri wa α-helical. Katika Tau326–391, mwelekeo huu ulikuwa mdogo zaidi. Matokeo ya NMR na CD pia yanaunga mkono kwamba Tau321–391 inaweza kuchukua kwa muda conformations za kati zenye helix na β-structure wakati wa mchakato wa aggregation.
Matokeo mengine muhimu ya majaribio ni kwamba fluoresensi ya ThT na uwepo halisi wa fibrili havilingani kila mara moja kwa moja. Ingawa Tau321–391 haikuonyesha fibrillization dhahiri kwa ThT katika PBS safi na katika hali ya DTT pekee, picha za AFM zilionyesha fibrili chache. Ilisisitizwa hasa kwamba ishara ya ThT si kipimo cha moja kwa moja na cha pekee cha kiasi cha fibril mass; pia huathiriwa na sifa kama morfolojia ya fibrili, muundo wa polymorphic, upatikanaji wa maeneo ya kufungamana kwa rangi na chaji ya uso.
Utafiti huu haukujaribu maendeleo ya ugonjwa kwa binadamu au wanyama. Ulifanywa kwa vipande vya recombinant tau vilivyokatwa katika mifumo ya in-vitro iliyodhibitiwa na katika uigaji wa kompyuta. Ingawa hali za aggregation zinazotumia heparin hutoa mfano unaoweza kurudiwa kwa utafiti, waandishi wanaeleza wazi kwamba fibrili zinazoundwa kwa heparin haziigi kikamilifu fibrili halisi za tau katika ubongo wenye ugonjwa wa Alzheimer. Matokeo yanalenga kuelewa hatua za mapema za molekuli za fibrillization ya tau; si ushahidi wa moja kwa moja wa ufanisi wa matibabu ya kliniki au wa sababu ya ugonjwa.
Protini ya tau na tauopathy ni nini?
Tau ni protini inayohusishwa na mikrotubuli yenye amino asidi 441 katika isoform yake ndefu zaidi ya 2N4R katika mfumo mkuu wa neva. Chanzo kinafafanua tau kama intrinsically disordered protein (IDP). Hii ina maana kwamba katika hali za kifizyolojia protini haifungwi katika muundo mmoja mgumu wa pande tatu, bali inaweza kuchukua conformations nyingi.
Mkusanyiko wa protini za tau katika filamenti zenye mpangilio wa hali ya juu ni mojawapo ya sifa za neuropathology za magonjwa mbalimbali ya neurodegenerative yenye tau pathology. Makundi haya ya magonjwa kwa ujumla huitwa tauopathies.
Mojawapo ya sifa za pamoja za kimuundo za fibrili za amiloidi ni usanifu wa cross-β. Katika muundo huu, β-sheets huunda mpangilio ulioratibiwa unaohusiana na mhimili mrefu wa fibrili. Hata hivyo, mikunjo ya kina ya atomiki ya filamenti za tau inaweza kutofautiana kati ya tauopathies tofauti; kwa hiyo “tau fibril” haimaanishi muundo mmoja wa ulimwengu wote.
Kwa nini truncation, yaani kukatwa, inachunguzwa?
Kukatwa kwa proteolytic kwa maeneo ya N-terminal au C-terminal ya mnyororo wa tau kunaweza kuondoa sehemu ambazo kwa kawaida hufunika baadhi ya maeneo ya amyloidogenic au kuyazuia kimuundo. Katika muktadha wa fasihi, chanzo kinajadili kwamba kukatwa huku kunaweza kufanya maeneo yenye mwelekeo wa aggregation yapatikane kwa urahisi zaidi.
Katika utafiti huu, watafiti walifupisha hatua kwa hatua kipande cha Tau297–391 kinachotumiwa kama tau dGAE kuanzia ncha ya N-terminal na kulinganisha aina tano zifuatazo:
- dGAE = Tau297–391
- Tau306–391
- Tau316–391
- Tau321–391
- Tau326–391
Faida ya kisayansi ya mpangilio huu ni kwamba mwisho wa C-terminal unabaki thabiti katika 391 huku sehemu ya kuanzia ya N-terminal ikibadilishwa. Hivyo inawezekana kulinganisha jinsi tabia ya aggregation inavyobadilika kadiri maeneo maalumu ya N-terminal yanavyopotea.
Amyloidogenic motif ina maana gani?
Amyloidogenic motif ni eneo fupi katika mfuatano wa protini ambalo mwelekeo wake wa kuunda β-structure na kujikusanya lenyewe unaweza kuwa mkubwa kuliko wa amino asidi zinazolizunguka. Motifs kama hizi haziamui peke yake utaratibu mzima wa fibrillization; lakini zinaweza kurahisisha uundaji wa kiini cha fibrili au kuimarisha conformations fulani za kati.
| Motif | Residues / mfuatano | Muktadha katika utafiti |
|---|---|---|
| PHF6* | 275VQIINK280 | Motif inayojulikana ya amiloidi ya tau katika eneo la R2; kwa kuwa dGAE huanza katika 297, iko nje ya aina za dGAE zilizochunguzwa. |
| PHF6 | 306VQIVYK311 | Motif yenye nguvu ya nucleation ya amiloidi katika eneo la R3. Ipo katika dGAE na Tau306–391; haipo katika Tau316–391, Tau321–391 na Tau326–391. |
| G-motif | 326GNIHHK331 | Ipo katika aina fupi, ikiwemo Tau321–391 na Tau326–391; inakuja mara moja baada ya eneo muhimu la flank la 321–325. |
| PHF6** | 337VEVKSE342 | Segment inayohusishwa na uundaji wa β-structure; inakuja baada ya G-motif. |
| L-motif | 344LDFKDR349 | Eneo linalohusishwa na aggregation lililotambuliwa kwa machine learning. |
| PAM4 | 350VQSKIGSLDNITH362 | Motif inayohusishwa na uundaji wa amiloidi katika eneo la R4. |
| Eneo la LTFRENA | 376LTFRENA382 | Lilitambuliwa kama hotspot ya ziada ya aggregation katika utabiri wa PASTA, WALTZ na TANGO; katika uchanganuzi wa muundo pia lilizingatiwa pamoja na Lys383 iliyo jirani katika umbo la 376LTFRENAK383. |
Kwa Nini Amino Asidi Tano Kati ya Tau321–391 na Tau326–391 Ni Muhimu?
Ingawa Tau321–391 na Tau326–391 zina mwisho mmoja wa C-terminal na zinashiriki G-motif, PHF6**, L-motif, PAM4 na maeneo mengi ya C-terminal yenye mwelekeo wa aggregation, mfuatano wa 321KCGSL325 uliopo katika Tau321–391 umehusishwa na uundaji wa conformations zinazofaa kwa aggregation na mwingiliano wa mapema wa monomer–monomer; Tau326–391, kwa upande mwingine, haikuweza kuunda fibrili katika hali zilizojaribiwa.
Umuhimu wa eneo la 321–325 si tu kwamba ni “amino asidi tano refu zaidi”. Matokeo ya uigaji yanaonyesha kwamba eneo hili linaweza kubadilisha jinsi G-motif iliyo jirani inavyojipanga na jinsi inavyofanya mawasiliano na molekuli nyingine za tau.
Katika baadhi ya sehemu chanzo hutumia usemi “eneo la 321–326” kwa uchanganuzi wa mawasiliano. Hata hivyo, tofauti ya kipekee ya mfuatano kati ya aina hizo mbili ni KCGSL kati ya 321–325; amino asidi G yenye namba 326 ndiyo residue ya kwanza ya Tau326–391 na kwa hiyo ipo katika aina zote mbili.
Motifs za PGGG na mantiki ya β-hairpin
Chanzo kinaeleza kwamba baadhi ya amyloidogenic motifs hutanguliwa na mfuatano wa PGGG na kwamba maeneo haya yana mwelekeo wa kuunda mikunjo mifupi inayounganisha β-strands mbili za antiparallel. Muundo huo unaweza kuunda β-hairpin ndani ya molekuli yenyewe, inayofanana na “kibanio cha nywele”.
Muundo wa β-hairpin ni conformation ambapo β-strands mbili zimeunganishwa kwa eneo la mkunjo. Wakati wa aggregation ya mapema, muundo kama huu unaweza kurahisisha maeneo yanayofanana ya molekuli nyingine za tau kugusana kwa jiometri fulani.
Katika uigaji wa all-atom wa Tau321–343, utafiti huu uliona conformations zinazofanana na β-hairpin karibu na G-motif na PHF6** mara nyingi zaidi kuliko katika Tau326–343. Hata hivyo, hairpins zilizoonekana katika uigaji hazimaanishi kwamba fibrili zote za tau katika ubongo wa binadamu lazima ziundwe kupitia njia hiyo hiyo.
Heparin na DTT hufanya nini katika majaribio?
Heparin ni molekuli ya polyanionic inayoweza kuingiliana na maeneo ya tau yenye chaji chanya. Chanzo kinaeleza kwamba heparin inaweza kuiga baadhi ya athari za fizikia-kemia za vipengele vya polyanionic ndani ya seli, kama RNA, na hutumiwa sana kuelekeza tau katika conformations zinazopendelea fibrillization.
Hata hivyo, fibrili zinazoundwa kwa heparin si nakala kamili za fibrili za asili za tau katika ubongo wa binadamu. Waandishi wanaeleza wazi kwamba heparin inaweza kubadilisha njia ya aggregation na sifa za kimuundo za fibrili zinazoundwa.
DTT (dithiothreitol) ni reducing agent. Baadhi ya aina katika utafiti, ikiwemo Tau321–391, zina Cys322. DTT hupunguza vifungo vya disulfide na kubadilisha hali ya redox ya cysteine. Chanzo kinaonyesha kwamba hali hii inaweza kuathiri njia ya aggregation ya tau na morfolojia ya fibrili.
DTT pekee ilisababisha fibrillization inayoweza kugunduliwa kwa ThT katika dGAE na Tau306–391. Lag phase iliripotiwa kuwa takriban 3 siku kwa dGAE na 4,6 siku kwa Tau306–391. Aina fupi zaidi hazikuonyesha fibrillization ya ThT-positive katika hali ya DTT pekee.
Kwa Nini Fluoresensi ya ThT na AFM Zinaweza Kutoa Matokeo Tofauti?
Fluoresensi ya ThT si mbinu inayopima moja kwa moja kiasi cha fibrili; nguvu ya kufungamana kwa rangi hutegemea mpangilio wa cross-β, morfolojia, muundo wa polymorphic, upatikanaji wa mifereji ya kufungamana na chaji ya uso wa fibrili, hivyo fibrili halisi zinaweza kuonekana kwa AFM huku ishara ya jumla ya ThT ikiwa bado ndogo.
Thioflavin T hupima nini?
Thioflavin T ni rangi ambayo fluoresensi yake huongezeka inapofungamana na maeneo yanayojirudia ya cross-β katika miundo ya amiloidi. Kwa hiyo hutumiwa sana kufuatilia kinetiki za uundaji wa fibrili.
Hata hivyo, curve ya ThT kuwa juu haimaanishi moja kwa moja kwamba “sampuli hii ina fibril mass nyingi zaidi”. Miundo miwili tofauti ya fibrili yenye kiasi sawa inaweza kutoa idadi tofauti ya maeneo ya kufungamana yanayopatikana kwa ThT au quantum yield ya ThT iliyofungamana inaweza kubadilika.
Katika utafiti huu Tau321–391 ni mfano wazi. Ingawa hakuna ishara dhahiri iliyoonekana katika kinetiki za ThT katika PBS safi na DTT pekee, AFM ilionyesha kuwa fibrili chache zilikuwepo katika hali hizo hizo.
AFM huonyesha nini moja kwa moja?
Hadubini ya nguvu ya atomiki huonyesha topografia ya kimwili ya uso wa sampuli katika kiwango cha nanomita. Kwa hiyo AFM huruhusu kuchunguza moja kwa moja morfolojia halisi, urefu, kimo na usambazaji wa miundo inayofanana na fibrili kwenye uso.
Chanzo pia kinasisitiza kwamba picha za AFM hazikuchaguliwa ili kuwakilisha kwa kiasi wingi wa fibrili. Maeneo ya AFM yaliyoonyeshwa ni maeneo wakilishi yaliyochaguliwa kuonyesha utofauti wa miundo na morfolojia.
Aina zilionekanaje katika AFM?
dGAE: Iliunda fibrili nyingi na zenye msongamano katika hali za heparin na heparin+DTT. Kimo cha fibrili kilionyesha usambazaji mpana hadi takriban 40 nm. Katika hali ya heparin+DTT, fibrili ndefu, zilizojifunga pamoja na katika baadhi ya hali zilizopinda zilionekana.
Tau306–391: Iliunda fibrili zisizo na msongamano mkubwa kama dGAE lakini zilikuwa ndefu zaidi. Usambazaji wa kimo ulifikia takriban 20 nm na ulikuwa homogeneous zaidi kuliko dGAE.
Tau316–391: Iliunda fibrili hasa katika hali za heparin na heparin+DTT. Katika hali ya heparin+DTT, fibrili ndefu zaidi na zenye muundo changamano zaidi zilionekana, na baadhi zilionyesha morfolojia iliyopinda.
Tau321–391: Kwa mtazamo wa AFM, ilionyesha mojawapo ya tabia thabiti zaidi za kuunda fibrili katika utafiti. Miundo ya fibrili ilionekana katika PBS, heparin, DTT na heparin+DTT. Katika sampuli za PBS na DTT-only, fibrili zilisambaa kwa uchache sana, hivyo mchango wake katika bulk ThT signal ulibaki mdogo. Fibrili zilikuwa kwa kiasi kikubwa ndefu na zisizo na matawi, zikiwa na kimo hadi takriban 10 nm. Katika heparin+DTT, fibrili zilizopinda ziliundwa.
Tau326–391: Haikuunda muundo unaofanana na fibrili katika hali yoyote iliyojaribiwa. Kimo cha AFM kwa kawaida kilibaki chini ya 5 nm. Electrophoresis ya kapilari ilionyesha baadhi ya ishara za oligomerization; hata hivyo, waandishi hawakuweza kupima kwa kiasi massa ya oligomers zilizoundwa.
| Aina | PBS | Heparin | DTT | Heparin + DTT |
|---|---|---|---|---|
| dGAE / Tau297–391 | ThT ndogo; fibrili si dominant katika AFM | Fibrillization yenye nguvu | Fibrillization; lag takriban 3 siku | Fibrili zenye nguvu, ndefu na changamano zaidi |
| Tau306–391 | ThT ndogo | Fibrillization; lag < 30 dakika | Fibrillization; lag takriban 4,6 siku | Fibrillization dhahiri |
| Tau316–391 | ThT ndogo | Fibrillization; lag hadi takriban 1 siku | Hakuna fibrillization ya ThT-detectable | Fibrillization dhahiri; baadhi ya fibrili zilizopinda |
| Tau321–391 | ThT ndogo; fibrili chache katika AFM | Fibrillization; lag hadi takriban 1 siku | ThT ndogo; fibrili chache katika AFM | Fibrillization dhahiri; fibrili zilizopinda |
| Tau326–391 | Hakuna fibrili | Hakuna fibrili | Hakuna fibrili | Hakuna fibrili |
Jedwali hili limeandaliwa kwa maelezo ya qualitative ili kuhifadhi maana tofauti za mbinu za upimaji. Hakuna kilele kipya cha ThT, fibril mass au thamani ya wakati wa kati iliyotengenezwa kutoka kwenye grafu za chanzo.
Fibrili zilizopinda za Tau321–391 zilifananaje?
Filamenti zilizopinda za Tau321–391 zilizoundwa katika heparin+DTT zilichambuliwa kando kwa programu ya Trace_y. Fibrili moja moja, zilizotenganishwa, zenye angalau vitengo vitatu vya kurudia na zisizo na fracture inayoonekana zilichaguliwa; ramani za density ya pointi za mawasiliano za uso na sehemu-katiza ya fibrili ziliundwa.
Chanzo kinaeleza kwamba sehemu-katiza hizi zinaonekana kufanana zaidi na muundo wa dGAE paired helical filament (PHF) kuliko muundo wa full-length tau “jagged filament” unaoundwa kwa heparin. Hapa kauli iko katika kiwango cha “inaonekana kufanana”; utafiti haukutatua muundo wa atomiki wa fibrili hizi kwa cryo-EM.
Uigaji wa Mienendo ya Molekuli Ulionyesha Nini Kuhusu Eneo la 321–325?
Uigaji wa all-atom ulionyesha kwamba Tau321–343 yenye mfuatano wa 321KCGSL325 ilifanya mawasiliano zaidi ya monomer–monomer kuliko Tau326–343 na ilichukua mara nyingi zaidi conformations za kati zinazofaa kwa aggregation na zenye β-hairpin; uigaji wa coarse-grained ulionyesha kwamba eneo hilo hilo la N-terminal lilisababisha mwelekeo dhahiri wa α-helical katika Tau321–391.
Uigaji wa all-atom ni nini?
Katika uigaji wa mienendo ya molekuli wa all-atom, atomu za protini na solvent huhamishwa kadiri muda unavyopita kupitia terms za mwingiliano wa kimwili katika force field. Mbinu hii hutoa maelezo ya juu ya kimuundo, lakini gharama ya computational ni kubwa kwa mifumo mikubwa.
Vipande viwili vifupi vya N-terminal vililinganishwa katika utafiti:
- Tau321–343: 321KCGSLGNIHHKPGGGQVEVKSEK343
- Tau326–343: 326GNIHHKPGGGQVEVKSEK343
Vipande vyote viwili vinashiriki G-motif na maeneo ya PHF6**; tofauti ya Tau321–343 ni mfuatano wa KCGSL ulioko mwanzoni.
Hali za uigaji wa monomer wa all-atom
- Force field: CHARMM36m
- Modeli ya maji: CHARMM-modified TIP3P
- Mwanzo: conformation iliyonyoshwa kikamilifu iliyotayarishwa katika Chimera
- Uigaji wa monomer: replica tatu za 500 ns kwa kila aina
- Clustering: algorithm ya Gromos
- Kizingiti cha clustering cha Backbone RMSD: 3 Å
- Dimension reduction / uchanganuzi wa mwendo: principal component analysis (PCA)
- Free energy landscape: kuundwa kupitia Boltzmann inversion ya histogram ya PC1 na PC2
RMSD ina maana gani hapa? Katika muktadha wa mienendo ya molekuli, RMSD ni kipimo cha umbali wa kijiometri kinachotegemea square root ya wastani wa squares za tofauti za atomic coordinates kati ya miundo. Kwa kuwa chanzo hakikuandika equation ya wazi ya RMSD, Verianla haiongezi equation mpya.
PCA hufanya nini? Principal component analysis hutoa directions zinazowakilisha movements kubwa zaidi za pamoja kutoka kwenye mabadiliko ya coordinates za protini wakati wa uigaji. PC1 na PC2 ni axes za kihisabati zinazowakilisha components mbili muhimu zaidi za movement ya protini.
Free energy landscape huonyesha nini? Ni ramani ya conformation inayotegemea ukweli kwamba maeneo ya conformation yanayotembelewa mara nyingi zaidi katika uigaji yanalingana kwa kiasi na maeneo ya free energy ya chini. Chanzo kinasema tofauti za free energy zilikokotolewa kwa Boltzmann inversion lakini hakitoi equation ya wazi ya kihisabati; kwa hiyo hakuna equation ya nje ya chanzo iliyoongezwa hapa.
Nini kilipatikana katika uigaji wa dimerization?
Miundo ya katikati ya clusters 10 za kwanza za monomer zenye population kubwa zaidi ziliunganishwa katika jozi: cl1+cl2, cl3+cl4, cl5+cl6, cl7+cl8 na cl9+cl10. Monomer mbili ziliwekwa katika simulation box kwa umbali wa 30 Å kati ya geometric centers zake.
Kuna kutokulingana muhimu katika idadi ya marudio ndani ya chanzo. Sehemu ya methods inasema kwamba replica tatu za 2 μs zilitengenezwa kwa kila jozi. Kwa upande mwingine, sehemu ya results inatumia usemi “trajectory tano za 2 μs”, na maelezo ya Kielelezo 4 cha chanzo pia yanaonyesha replica tano za 2 μs. Verianla haisahihishi tofauti hii kimya kimya.
Muhtasari wa takwimu unaotegemea trajectory tano uliotolewa katika sehemu ya results ni kama ifuatavyo:
| Aina | Population ya dimeric | Ulinganisho wa takwimu |
|---|---|---|
| Tau321–343 | %29,4 ± 4,4 | Two-tailed t-test, P = 0,014 |
| Tau326–343 | %14,7 ± 2,1 |
Tofauti hii ina maana kwamba Tau321–343 ilionyesha takriban mara mbili ya population ya mawasiliano ya dimeric ikilinganishwa na Tau326–343 wakati wa uigaji. “Mara mbili” hapa inaelezea uwiano wa takriban wa population za asilimia zilizopimwa; si ukubwa wa athari ya kliniki au kibaolojia.
Katika maelezo ya Kielelezo 4 cha chanzo, jumla ya uwiano wa frames zilizotolewa zenye intermolecular contacts pia umetolewa kando kama %29,98 kwa Tau321–343 na %14,98 kwa Tau326–343. Asilimia hizi za figure na takwimu ya wastani ± deviation hapo juu si presentation format moja na hazipaswi kutumika badala ya nyingine.
Tau321–343 iliundaje muundo tofauti wa dimer?
Clusters za Tau321–343 zilionyesha kiwango cha juu zaidi cha β-structure. Miundo ya intramolecular antiparallel β-hairpin iliyounganishwa na eneo la 332PGGG335 kati ya G-motif na PHF6** ilionekana katika clusters mbalimbali.
Nyuso za hairpin hizi ziliweza kuunda contact surface wakati monomers zilipokaribiana, na parallel au antiparallel intermolecular β-structures ziliundwa.
Tau326–343 ilionyesha zaidi mawasiliano ya “fuzzy”, yaani mawasiliano yasiyokaa katika jiometri moja iliyobana na yenye mpangilio. Ingawa short parallel β-sheet interfaces zilionekana katika baadhi ya clusters, ncha za N-terminal zilielekezwa mbali na binding interface.
Katika contact maps, dimers za Tau321–343 ziliimarishwa na mwingiliano karibu na C-terminal PHF6** na N-terminal G-motif, wakati katika dimers za Tau326–343 mawasiliano yalijikita hasa karibu na PHF6**.
Kwa nini uigaji wa coarse-grained ulitumika?
Uigaji wa full-atom na explicit solvent wa vipande virefu na vinavyonyumbulika sana vya protini kama Tau321–391 na Tau326–391, vyenye takriban residues 70, unahitaji simulation boxes kubwa sana. Chanzo kilitumia mbinu ya coarse-grained SIRAH kupunguza gharama hii, ambayo ingeweza kuhitaji takriban chembe milioni 1,7.
Modeli ya coarse-grained huunganisha atomu kadhaa katika vitengo vikubwa vya “bead” vinavyowakilisha sifa za fizikia-kemia. Hivyo kipindi kilekile cha muda wa kimwili kinaweza kusampuliwa kwa gharama ndogo ya computational; kwa upande mwingine, maelezo ya atomiki hupungua.
Hali za uigaji wa coarse-grained
- Force field: SIRAH 2.0
- Reparameterization iliyotumika kuwakilisha vizuri zaidi tabia ya IDP: mbinu ya Martins na wenzake iliyoongeza mwingiliano wa protein–water bead hadi %30
- Miundo ya kuanzia: AlphaFold2 / ColabFold v1.5.5
- Uundaji wa MSA: MMseqs2
- Utabiri bila kutumia structural template
- Miundo mitano ya AlphaFold2 iliyoorodheshwa juu zaidi ilirelaxiwa na kutumiwa kwa replica tano za CG
- Kulingana na maelezo ya Kielelezo 5 cha chanzo, replica tano za 5 μs kwa kila aina
- Programu ya uigaji: GROMACS 2023.2
- Uzalishaji wa trajectory: mfumo wa Devana HPC
Matumizi ya miundo ya kuanzia ya AlphaFold2 ni muhimu. Chanzo kinaeleza kwamba hii haikufanywa ili kubaini “muundo sahihi wa kibaolojia wa tau”, bali ili kufanya conformation ya kuanzia iwe compact kiasi na hivyo kupunguza ukubwa wa simulation box na gharama ya computational.
Tofauti iliyoonekana zaidi katika uigaji wa coarse-grained ilikuwa ipi?
Aina zote mbili zilionyesha unyumbufu mkubwa wa kimuundo unaotarajiwa kwa IDPs. Hata hivyo, katika replica mbili kati ya tano za Tau321–391, α-helix dhahiri ya N-terminal iliundwa ikihusisha residues za G-motif.
Chanzo kinatathmini mwelekeo huu wa N-terminal helical kama mojawapo ya tofauti dhahiri zaidi za kimuundo kati ya Tau321–391 iliyo aggregation-competent na Tau326–391 isiyo aggregation-competent.
Miundo ya kati ya antiparallel β-sheet ilionekana kwa kiasi gani?
Katika ensembles za conformation za coarse-grained, miundo ya kati ya antiparallel β-sheet ilionekana katika %7,49 ya miundo ya Tau321–391 na %2,52 ya miundo ya Tau326–391.
Katika aina zote mbili, intramolecular β-sheet connections zilionekana kati ya eneo la C-terminal 376LTFRENAK383 na karibu na N-terminal G-motif. Eneo la PAM4, kwa upande mwingine, lilionyesha mwelekeo mkubwa wa helical.
NMR ilikaguaje matokeo ya uigaji?
Data za majaribio za NMR chemical shift zilitumika kwa Tau321–391. Tau321–391 iliyowekewa isotope ilizalishwa katika M9 minimal medium kwa kutumia 2 g/L 13C glucose na 1 g/L 15N ammonium chloride. Culture ilikolezwa mara nne katika minimal medium kabla ya induction kulingana na protocol ya Marley.
Upimaji wa NMR ulifanywa kwa 950 MHz Bruker AVANCE NEO spectrometer katika hali za 0,5 mM Tau321–391, PBS, 5 mM DTT na %10 D2O. Data za NMR chemical shift za utafiti zimeorodheshwa katika database ya BMRB chini ya entry code 53400.
Mwelekeo wa secondary structure ulikokotolewa kulingana na deviations za Cα na Cβ chemical shift zilizopimwa kutoka kwenye random-coil references. Maadili chanya ya SSP yalitafsiriwa kama mwelekeo wa helical na maadili hasi ya SSP kama mwelekeo wa β-sheet.
Chanzo kinaeleza kwamba mwelekeo wa helical/β-sheet karibu na G-motif na PAM4 uliopatikana katika uigaji unaendana na matokeo ya NMR.
Kwa nini spectroscopy ya CD ilifanywa?
Circular dichroism (CD) ilitumika kufuatilia jinsi muundo wa secondary structure wa protini unavyobadilika kwa muda. Hasa, asilimia za helix, antiparallel β-sheet, parallel β-sheet, turn na muundo usio na mpangilio katika Tau321–391 na Tau326–391 wakati wa aggregation zililinganishwa.
50 μM Tau321–391 na Tau326–391 zilichunguzwa katika assay buffer pekee na katika uwepo wa 50 μM heparin katika time points za 0, 23, 28, 30,5, 42, 51 na 72 saa.
- Njia ya macho: 1 mm
- Wigo wa spectral: 190–270 nm
- Kasi ya scan: 50 nm/dk
- Accumulation: 3
- Kifaa: Jasco J-815 spectropolarimeter
- Smoothing: Origin Pro8.5, Savitzky–Golay
- Deconvolution: BeStSel
CD Jedwali 1: Tau321–391 bila heparin
| Muundo | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0,6 | 5 | 0 | 0 | 0 | 0 |
| Antiparallel sheet | 23,6 | 20,2 | 21,9 | 24,2 | 24,7 | 25,4 | 20,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 15,3 | 17,7 | 15,8 | 14,9 | 19 | 16,9 | 19,4 |
| Others | 61 | 61,5 | 57,2 | 60,9 | 56,3 | 57,7 | 60,5 |
| RMSD | 0,3054 | 0,2827 | 0,4187 | 0,4064 | 0,336 | 0,2146 | 0,2237 |
Dokezo la kitengo cha muda: Chanzo kinatoa time points za Jedwali 1 kama 23 h, 28 h, 30.5 h, 42 h, 51 h na 72 h. Herufi “s” katika vichwa vya juu ina maana ya saa.
CD Jedwali 1: Tau326–391 bila heparin
| Muundo | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0,1 | 0 | 0 |
| Antiparallel sheet | 27,1 | 26,7 | 30 | 23,1 | 31,3 | 27,9 | 34,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 18 | 18,9 | 18,5 | 19 | 19,1 | 18,7 | 17,9 |
| Others | 54,9 | 54,4 | 51,5 | 58 | 49,5 | 53,5 | 48 |
| RMSD | 0,2364 | 0,2054 | 0,1707 | 0,2381 | 0,3873 | 0,2226 | 0,25 |
CD Jedwali 1: Tau321–391 + heparin
| Muundo | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 1,1 | 0 | 0 | 4,3 | 6,7 |
| Antiparallel sheet | 25,7 | 19,9 | 20,8 | 22,4 | 32,2 | 31,3 | 31,4 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 5,5 | 9,4 |
| Turn | 20,5 | 19,3 | 14,4 | 16,3 | 15,9 | 11,9 | 9,9 |
| Others | 53,8 | 60,8 | 63,7 | 61,3 | 51,9 | 47 | 42,5 |
| RMSD | 0,1923 | 0,3197 | 0,2837 | 0,4176 | 0,199 | 0,0833 | 0,1783 |
CD Jedwali 1: Tau326–391 + heparin
| Muundo | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0 | 0 | 0,6 |
| Antiparallel sheet | 26 | 25,7 | 27,3 | 25,5 | 26,4 | 27,6 | 27,7 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 19,8 | 17,1 | 18 | 17,1 | 16,1 | 17,4 | 19,4 |
| Others | 54,2 | 57,2 | 54,7 | 57,4 | 57,6 | 55,1 | 52,3 |
| RMSD | 0,3491 | 0,374 | 0,138 | 0,2308 | 0,2882 | 0,17 | 0,3789 |
Terminolojia ya RMSD ni tofauti hapa: Katika footnote ya Jedwali 1 la chanzo, RMSD inafafanuliwa kama spectral deviation kati ya CD spectrum iliyopimwa na fitted spectrum katika BeStSel. Hii si metric sawa na structural RMSD inayotumika kulinganisha coordinates za protini katika sehemu ya mienendo ya molekuli.
Ujumbe mkuu wa data za CD
Katika hali bila heparin, Tau321–391 na Tau326–391 zote zilibaki kwa kiasi kikubwa zisizo na mpangilio. Helical content ya Tau321–391 iliongezeka kwa muda hadi %0,6 katika saa 23 na %5 katika saa 28, huku thamani ya juu zaidi ya helix iliyoonekana katika Tau326–391 ikiwa %0,1 pekee katika saa 42.
Katika uwepo wa heparin, Tau321–391 ilionyesha rearrangement iliyo wazi zaidi. Katika saa 51 na 72, parallel β-sheet ilifikia %5,5 na %9,4 mtawalia; helix content iliongezeka hadi %4,3 na %6,7. Wakati huohuo, components za “others” na turn zilipungua.
Katika hali ya Tau326–391 + heparin, parallel β-sheet ilibaki %0 katika time points zote na helix iliripotiwa kuwa %0,6 tu katika saa 72.
Chanzo kinahusisha matokeo haya na uwezo wa Tau321–391 kusonga katika lag phase kutoka miundo ya kati ya muda yenye helical na turn nyingi kuelekea fibrili za β-sheet zilizo na mpangilio zaidi.
Mbinu na Matokeo ya Utafiti
Maandalizi ya recombinant tau variants
Aina za dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 na Tau326–391 zilizalishwa katika seli za E. coli BL21(DE3) kwa kutumia pET-17 expression vector.
Protini zilisafishwa kutoka bacterial lysate kwa mfululizo wa ion-exchange chromatography na size-exclusion chromatography kulingana na protocol iliyochapishwa awali. Protini zilizosafishwa zilihifadhiwa katika PBS pH 7,4 chini ya atmosphere ya argon katika −80 °C ili kupunguza uundaji wa disulfide.
Protein concentrations ziliamuliwa kutoka absorbance ya 205 nm kwa DU 640 spectrophotometer. Usafi na utambulisho vilikaguliwa kwa SDS-PAGE na mass spectrometry.
Maelezo ya uthibitishaji wa mass spectrometry
- DTT final concentration: 10 mM
- Iodoacetamide final concentration: 15 mM
- Trypsin digestion: usiku kucha katika 37 °C
- UPLC: Acquity UPLC M-Class
- Column: Acquity UPLC HSS T3, 1 × 100 mm, 1,8 μm
- Gradient: %5–40 acetonitrile, %0,1 formic acid, 30 dakika
- Flow: 75 μL/dk
- Kifaa cha MS: ZenoTOF 7600 time-of-flight
- Ukusanyaji wa data: data-dependent acquisition (DDA)
- Usindikaji wa data: Peaks 13
Chanzo kinaonyesha picha ya matokeo ya MS katika main text kwa Tau321–391 pekee kwenye Supplementary Fig. S1.
Hali kamili za jaribio la ThT aggregation
| Parameter | Thamani ya chanzo |
|---|---|
| Tau concentration | 50 μM |
| ThT concentration | 12,5 μM |
| Sample volume | 50 μL |
| Temperature | 37 °C |
| Orbital shaking | 700 rpm |
| Maximum incubation | 6 siku |
| Marudio | Replica tatu |
| Plate | 96-well half-volume Corning 3881 |
| Reader | ClarioStar, BMG Labtech |
Hali nne za majaribio ni hizi:
- 1× PBS, pH 7,4
- 1× PBS + 50 μM heparin
- 1× PBS + 10 mM DTT
- 1× PBS + 50 μM heparin + 10 mM DTT
Fluoresensi ya ThT ya buffer na additives yenyewe ilitolewa kutoka kwenye signal ya samples zenye protini.
Matokeo ya kinetiki katika hali za heparin
50 μM heparin ilisababisha fibrillization inayoweza kuonekana kwa ThT katika dGAE, Tau306–391, Tau316–391 na Tau321–391. Tau326–391 haikuunda fibrili licha ya heparin.
Lag phase kwa dGAE na Tau306–391 ilikuwa chini ya dakika 30. Kwa Tau316–391 na Tau321–391, lag phase ya uundaji wa fibrili iliongezeka hadi takriban siku moja.
dGAE ilikuwa aina iliyoonyesha steady-state ThT fluorescence ya juu zaidi katika hali ya heparin.
Matokeo ya kinetiki katika hali za DTT
Katika hali ya DTT pekee, uundaji dhahiri wa fibrili kwa ThT ulionekana kwa dGAE na Tau306–391. Lag phase ya dGAE ilikuwa takriban 3 siku, na lag phase ya Tau306–391 takriban 4,6 siku.
Tau316–391, Tau321–391 na Tau326–391 hazikuonyesha ThT-detectable fibrillization kwa DTT pekee. Hata hivyo, inapaswa kukumbukwa kwamba Tau321–391 inaweza kuonyesha fibrili chache katika AFM.
Nini kilitokea heparin + DTT zilipotumiwa pamoja?
Heparin na DTT zilipotumiwa pamoja, fibrillization dhahiri ilionekana katika aina zote isipokuwa Tau326–391.
Tau306–391, Tau316–391 na Tau321–391 zilionyesha baadhi ya end-state ThT signals za juu zaidi katika hali hii. Katika dGAE, signals za mwisho za ThT kati ya heparin+DTT na heparin pekee zilikuwa katika kiwango kinachoweza kulinganishwa ndani ya experimental error.
Kwa Tau316–391, mchanganyiko wa heparin+DTT ulitoa kinetiki ya haraka zaidi kuliko heparin pekee. Katika dGAE na Tau306–391, kinetiki za heparin+DTT zilikuwa polepole kidogo kuliko heparin pekee.
Hali za capillary electrophoresis
- Kifaa: Agilent 7100 CE analyzer
- Detector: UV
- Capillary: 56 cm × 75 μm ID bare fused silica
- Injection: 50 mbar, 10 s
- Polarity: positive
- Voltage: mwanzoni ndani ya 20 s, 0 kV → +20 kV
- Background electrolyte: 1 M acetic acid, pH 2,38
- Detection wavelength: 210 nm
Capillary electrophoresis ilionyesha baadhi ya ishara za oligomerization katika samples za Tau326–391; hata hivyo, chanzo kinaeleza wazi kwamba massa ya oligomers zilizoundwa haikuweza kupimwa kwa kiasi.
Hitimisho zinazoungwa mkono na utafiti
- dGAE/Tau297–391 ilionyesha response ya jumla ya aggregation yenye nguvu zaidi kati ya aina zilizochunguzwa.
- Ufupishaji wa N-terminal kwa ujumla ulipunguza kasi ya kinetiki za aggregation.
- Tau326–391 haikuunda fibrili katika hali yoyote iliyojaribiwa.
- Tau321–391 ndiyo construct fupi zaidi inayoweza kuunda fibrili kati ya E391-truncated variants zilizochunguzwa.
- Tau321–391 iliweza kuunda fibrili zinazoonekana kwa AFM katika PBS safi; fibrili hizi si ThT-positive.
- Mfuatano wa 321KCGSL325 ndiyo tofauti kuu ya mfuatano kati ya Tau321–391 na Tau326–391.
- Tau321–343 ilionyesha dimeric population kubwa zaidi kuliko Tau326–343 katika all-atom dimerization simulation.
- Tofauti ya dimeric population iliripotiwa katika sehemu ya results ya chanzo kama %29,4 ± 4,4 na %14,7 ± 2,1; P = 0,014.
- Conformations za kati zinazofanana na β-hairpin na zenye mwelekeo wa aggregation zilionekana wazi zaidi katika Tau321–343.
- Katika coarse-grained simulations za Tau321–391, mwelekeo dhahiri wa α-helical ulionekana karibu na N-terminal G-motif.
- Matokeo ya NMR na CD yaliunga mkono kwamba mwelekeo wa lokal wa helical na β-structure katika Tau321–391 unaendana na findings za simulation.
- Heparin+DTT iliunga mkono uundaji wa fibril morphologies zilizopinda katika baadhi ya aina, tofauti na fibrili za moja kwa moja pekee.
- ThT na AFM zilitoa taarifa zinazokamilishana lakini zisizo na direct correlation kila wakati.
Hitimisho zisizoungwa mkono na utafiti
- Haikuonyeshwa kwamba eneo la 321–325 ndilo sababu pekee ya ugonjwa wa Alzheimer.
- Haikuonyeshwa kwamba kulenga eneo la 321–325 kutatoa matibabu kwa binadamu.
- Hakuna jaribio la matibabu lililofanywa kwa binadamu au wanyama.
- Haikuonyeshwa kwamba fibrili zinazoundwa kwa heparin ni sawa kabisa na Alzheimer tau fibrils katika ubongo wa binadamu.
- ThT fluorescence haiwezi kutafsiriwa moja kwa moja kama fibril mass.
- Maeneo wakilishi katika AFM si kipimo cha moja kwa moja cha kiasi cha jumla cha fibrili katika sampuli yote.
- Haikuonyeshwa kwamba hairpin au α-helix structures zilizoonekana katika MD simulation lazima ziundwe kwa namna hiyo hiyo katika ubongo wa binadamu.
- Simulations hazikuiga njia nzima ya tau oligomerization wala hatua zote za molekuli hadi fibrili iliyokomaa.
- Utafiti hauondoi kabisa athari ya flank sequences nje ya eneo la 321–325.
- Athari ya DTT haiwezi kupunguzwa hadi mechanism moja ya disulfide; chanzo kinajadili kwamba redox state inaweza kuathiri njia mbadala za aggregation.
Mapungufu makuu ya kimetodolojia ya utafiti
Kizuizi cha kwanza ni kwamba vipande vya tau vilivyotumika ni mifano iliyokatwa tu ya full-length human tau protein. Ndani ya seli, tau halisi huathiriwa na mambo mengi kama phosphorylation na post-translational modifications nyingine, proteolysis, cellular ions, RNA, lipids, protini nyingine na molecular crowding.
Kizuizi cha pili ni kwamba ingawa heparin ni muhimu kwa kutoa fibrillization iliyodhibitiwa, haiigi kikamilifu mazingira ya in-vivo aggregation katika ugonjwa wa Alzheimer.
Kizuizi cha tatu ni kwamba ThT si kipimo absolute quantitative cha fibril load. AFM pia huonyesha maeneo madogo na wakilishi ya uso; haipimi peke yake fibril mass ya sampuli yote.
Kizuizi cha nne ni kutokulingana kwa idadi ya replica katika all-atom dimerization simulation ndani ya chanzo: sehemu ya Methods inataja tatu × 2 μs, wakati results na Kielelezo 4 vinataja tano × 2 μs.
Kizuizi cha tano ni kwamba ingawa simulations hutoa maelezo yenye nguvu ya kimuundo kuhusu matukio ya mapema ya monomer/dimer, haziigi moja kwa moja oligomers za juu zaidi wala mchakato wote wa ukuaji wa fibrili. Waandishi wanaeleza kwamba simulations zaidi za oligomerization zingekuwa muhimu.
Kwa nini utafiti huu ni muhimu kisayansi?
Utafiti haujazingatia tu amyloid core motif inayojulikana kama PHF6. Matokeo yanaonyesha kwamba maeneo mafupi ya flank yanayozunguka amyloidogenic motifs yanaweza pia kubadilisha kwa kiasi kikubwa conformations ambazo motif hiyo hiyo huchukua na jinsi mawasiliano ya kwanza ya intermolecular yanavyotokea.
Tofauti ya residues tano kati ya Tau321–391 na Tau326–391 ni mfano wenye nguvu wa majaribio wa hili. Ingawa aina zote mbili zinashiriki maeneo mengi ya amiloidi, moja inaweza kufibrillize wakati nyingine haiwezi. Hii inaonyesha kwamba katika protein aggregation swali “je, kuna aggregation motif?” pekee halitoshi; context ya motif na sequences jirani pia ni muhimu.
Waandishi wanapendekeza kwamba maeneo haya ya flank na pre-aggregation conformations yanaweza kutathminiwa kama therapeutic targets siku zijazo. Kauli hii ni pendekezo la mwelekeo wa utafiti; utafiti huu haukujaribu ufanisi wa dawa yoyote, antibody au matibabu ya binadamu.
Maelezo ya Chanzo na Mbinu
Kichwa asili: Gradual N-terminal truncation of tau dGAE (297–391) reveals the importance of 321–325 sequence for early steps of fibril formation
Waandishi: Stefana Njemoga; Petra Majerova; Juraj Piestansky; Zuzana Gazova; Pavel Kaderavek; Exequiel E. Barrera; Zuzana Bednarikova; Ondrej Cehlar.
Corresponding authors: Exequiel E. Barrera, Zuzana Bednarikova na Ondrej Cehlar.
Mchango sawa: Hakuna taarifa ya waandishi wa kwanza wa pamoja au mchango sawa inayoonekana katika chanzo.
Taasisi: Institute of Neuroimmunology, Slovak Academy of Sciences, Bratislava, Slovakia; Department of Galenic Pharmacy, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia; Institute of Experimental Physics, Slovak Academy of Sciences, Kosice, Slovakia; Central European Institute of Technology (CEITEC), Masaryk University, Brno, Czech Republic; National Centre for Biomolecular Research, Faculty of Science, Masaryk University, Brno, Czech Republic; Instituto de Histología y Embriología (IHEM), CONICET–Universidad Nacional de Cuyo, Mendoza, Argentina; Department of Pharmaceutical Chemistry, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia.
Jarida: International Journal of Biological Macromolecules.
Mchapishaji: Elsevier B.V.
Juzuu / namba ya makala: 362 / 152066.
DOI: 10.1016/j.ijbiomac.2026.152066.
Tarehe ya kupokelewa: 19 Januari 2026.
Tarehe ya toleo lililorekebishwa: 10 Aprili 2026.
Tarehe ya kukubaliwa: 15 Aprili 2026.
Tarehe ya kuchapishwa mtandaoni: 17 Aprili 2026.
Rekodi ya bibliografia ya juzuu: Volume 362, Mei 2026.
Aina ya chanzo: Makala ya utafiti wa majaribio–computational inayounganisha majaribio ya in-vitro aggregation ya recombinant protein na simulations za molecular dynamics.
Hali ya peer review: Makala iliyopitiwa na wataalamu na kuchapishwa katika International Journal of Biological Macromolecules.
Leseni: Creative Commons Attribution 4.0 International (CC BY 4.0).
Maneno muhimu: Tau protein; Amyloidogenic motifs; Amyloid aggregation; MD simulation.
Aina zilizochunguzwa: dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 na Tau326–391.
Mbinu kuu za majaribio: ThT fluorescence assay, atomic force microscopy, circular dichroism spectroscopy, capillary electrophoresis, NMR na uthibitishaji wa mass spectrometry.
Mbinu kuu za computational: CHARMM36m all-atom MD, SIRAH 2.0 coarse-grained MD, Gromos RMSD clustering, PCA/free-energy landscape, AlphaFold2/ColabFold starting models na amino acid contact maps.
Matokeo makuu: Tau321–391 ndiyo aina fupi zaidi kati ya E391-truncated constructs zilizochunguzwa inayoweza kuunda fibrili; Tau326–391 haikuweza kuunda fibrili katika hali zilizojaribiwa. Tofauti ya kipekee ya N-terminal kati yao ni mfuatano wa 321KCGSL325.
Matokeo makuu ya quantitative ya all-atom: Katika sehemu ya results ya chanzo, dimeric population ya Tau321–343 imetolewa kama %29,4 ± 4,4, population ya Tau326–343 kama %14,7 ± 2,1 na P = 0,014.
Dokezo la ndani ya chanzo kuhusu idadi ya marudio ya simulation: Sehemu ya Methods inaandika replica tatu × 2 μs kwa dimerization, huku results text na maelezo ya Kielelezo 4 vikisema trajectory/replica tano × 2 μs. Tofauti hii haijafafanuliwa na chanzo.
Dokezo la terminolojia la 321–325 / 321–326: Mfuatano halisi wa ziada kati ya Tau321–391 na Tau326–391 ni 321KCGSL325. Katika baadhi ya maelezo ya contact analysis, eneo la 321–326 linatajwa; G yenye namba 326 ni residue ya pamoja iliyo katika G-motif ya aina zote mbili.
Dokezo la CD RMSD: Katika Jedwali 1 la chanzo, RMSD ni spectral deviation kati ya measured na fitted CD spectra katika BeStSel. Si kipimo sawa na coordinate-based RMSD katika uchanganuzi wa MD.
Kikomo cha heparin: Chanzo kinaeleza wazi kwamba heparin-induced fibrillization haiwakilishi kikamilifu uundaji wa fibrili katika ubongo wenye ugonjwa wa Alzheimer na kwamba heparin inaweza kubadilisha aggregation pathway/fibril structure.
Kikomo cha ThT: ThT fluorescence si kipimo cha moja kwa moja cha fibril mass; morfolojia, polymorphic structure, binding-site accessibility na surface charge vinaweza kuathiri signal.
Kikomo cha AFM: Picha za AFM ni wakilishi kwa ajili ya kuonyesha utofauti wa morfolojia na hazikutumiwa kama kipimo cha moja kwa moja cha quantitative cha jumla ya fibril abundance katika sampuli nzima.
Upatikanaji wa data: Data za computational za utafiti zimetolewa katika Zenodo katika rekodi mbili tofauti za data: DOI 10.5281/zenodo.17830302 na DOI 10.5281/zenodo.18157196.
Rekodi ya data ya NMR: Data za NMR zilizotumika kwa Tau321–391 zimeorodheshwa chini ya BMRB entry code 53400.
Mgongano wa maslahi: Waandishi walitoa tamko “We have nothing to declare”.
Ufadhili: Utafiti uliungwa mkono na VEGA 02/0141/25, 2/0125/23 na 1/0825/25; APVV-18-0284 na APVV-22-0598; Slovakia Recovery and Resilience Plan 09I03-03-V04-00623, 09I03-V04-00622 na 09I02-03-V01-00021; Horizon Europe 101087124 ADDIT-CE; Horizon 2020 Marie Skłodowska-Curie 873127 InterTAU; National competence centre for high-performance computing 311070AKF2 na ufadhili husika wa miundombinu ya Ulaya/Kikanda. Vipimo vya Josef Dadok National NMR Centre vilinufaika na miundombinu ya CIISB/Instruct-CZ na ufadhili husika wa MEYS/ERDF; msaada wa COST CA21160 ML4NGP na MVTS COST ML4NGP pia ulitajwa.
CRediT – Stefana Njemoga: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation.
CRediT – Petra Majerova: Investigation.
CRediT – Juraj Piestansky: Investigation.
CRediT – Zuzana Gazova: Writing – review & editing, Project administration, Funding acquisition.
CRediT – Pavel Kaderavek: Data curation, Investigation, Writing – review & editing.
CRediT – Exequiel E. Barrera: Writing – review & editing, Visualization, Supervision, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Zuzana Bednarikova: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Ondrej Cehlar: Writing – review & editing, Visualization, Supervision, Project administration, Methodology, Investigation, Funding acquisition, Formal analysis, Conceptualization.
Kikomo kikuu cha tafsiri ya matokeo: Utafiti unachunguza vigezo vya mapema vya molekuli vya tau aggregation katika mifumo ya in-vitro iliyodhibitiwa na modeli za computational. Hauthibitishi mechanism yote ya tauopathy katika ubongo wa binadamu, maendeleo ya kliniki ya ugonjwa au ufanisi wa tiba yoyote.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *