


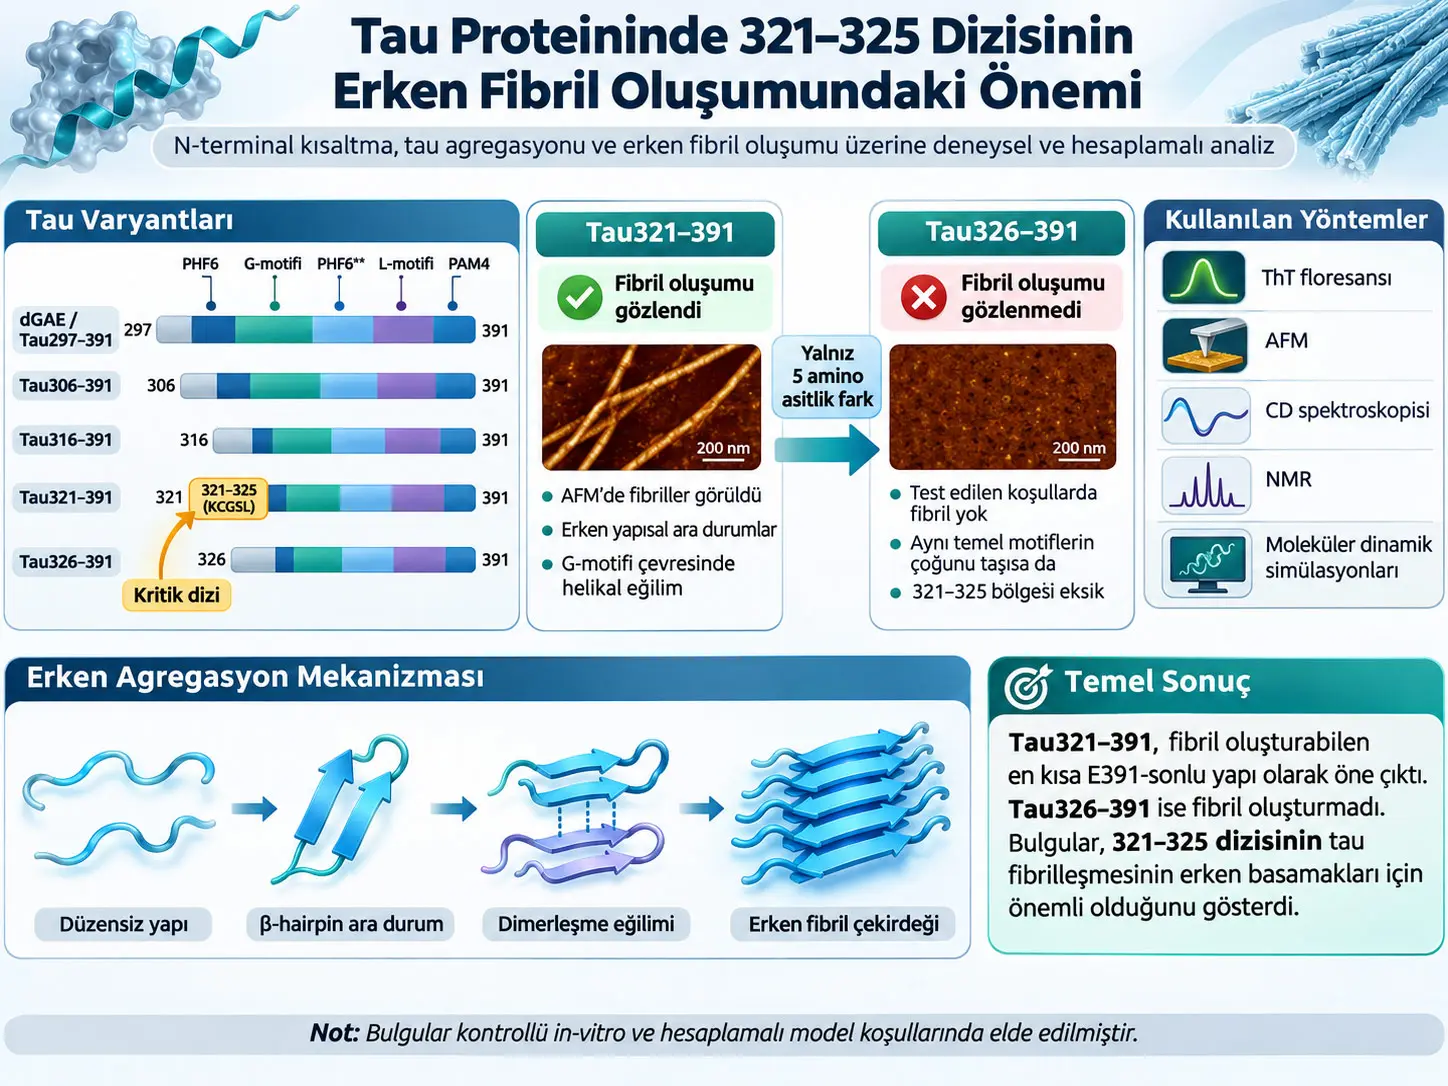
Tau proteini, normal durumda büyük ölçüde belirli ve kalıcı tek bir üç boyutlu yapıya sahip olmayan, bu nedenle “intrinsically disordered protein” yani içsel olarak düzensiz protein sınıfında bulunan mikrotübül ilişkili bir proteindir. Bu çalışma, tau proteininin dGAE olarak adlandırılan Tau297–391 parçasının N-terminal ucundan kademeli biçimde kısaltılmasının amiloid fibril oluşumunu nasıl değiştirdiğini araştırmıştır. dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 ve Tau326–391 olmak üzere beş kesilmiş tau varyantı; Thioflavin T (ThT) floresansı, atomik kuvvet mikroskopisi (AFM), kapiler elektroforez, dairesel dikroizm (CD), NMR spektroskopisi ve moleküler dinamik (MD) simülasyonlarıyla karşılaştırılmıştır.
Çalışmanın merkezi sonucu, Tau321–391 ile Tau326–391 arasındaki yalnız beş amino asitlik farkın agregasyon davranışıyla güçlü biçimde ilişkili olmasıdır. Tau321–391'in N-terminalinde bulunan 321KCGSL325 dizisi Tau326–391'de yoktur. Buna karşılık G-motifi, PHF6**, L-motifi ve PAM4 gibi incelenen başlıca amiloidojenik bölgelerin önemli bir bölümü iki varyantta da bulunmaktadır. Buna rağmen Tau321–391 fibril oluşturabilirken Tau326–391, heparin ve DTT dahil test edilen agregasyonu kolaylaştırıcı koşullarda dahi fibriller oluşturmamıştır.
All-atom moleküler dinamik simülasyonlarında Tau321–343, Tau326–343'e göre daha yüksek dimerleşme eğilimi göstermiştir. Sonuç metninde beş adet 2 μs trajektorinin birleştirilmiş analizinde Tau321–343 için dimerik popülasyon %29,4 ± 4,4, Tau326–343 için %14,7 ± 2,1 olarak bildirilmiş ve fark için P = 0,014 verilmiştir. Tau321–343 ayrıca G-motifi ile PHF6** çevresinde antiparalel β-hairpin yapıları oluşturmaya daha yatkın bulunmuştur. Bu yapılar yazarlar tarafından erken agregasyon çekirdeği oluşturabilecek konformasyonlarla ilişkilendirilmiştir.
Coarse-grained moleküler dinamik simülasyonları farklı fakat tamamlayıcı bir yapısal özellik göstermiştir: Tau321–391'in N-terminal bölgesinde, özellikle G-motifi çevresinde belirgin α-helikal eğilim ortaya çıkmıştır. Tau326–391'de bu eğilim çok daha sınırlıdır. NMR ve CD sonuçları da Tau321–391'in agregasyon sürecinde geçici helikal ve β-yapılı ara konformasyonlar örnekleyebildiğini desteklemektedir.
Çalışmanın önemli bir deneysel sonucu da ThT floresansı ile gerçek fibril varlığının her zaman bire bir eşleşmemesidir. Tau321–391, saf PBS ve yalnız DTT koşullarında ThT ile belirgin fibrilleşme göstermemesine rağmen AFM görüntülerinde seyrek fibriller oluşturmuştur. ThT sinyalinin fibril kütlesinin doğrudan ve tek başına nicel ölçümü olmadığı; fibril morfolojisi, polimorfik yapı, boya bağlanma bölgelerinin erişilebilirliği ve yüzey yükü gibi özelliklerden de etkilendiği özellikle belirtilmiştir.
Bu çalışma insanlarda veya hayvanlarda hastalık ilerlemesini test etmemiştir. Rekombinant kesilmiş tau parçalarıyla kontrollü in-vitro sistemlerde ve bilgisayar simülasyonlarında çalışılmıştır. Heparin kullanılan agregasyon koşulları araştırmaya tekrarlanabilir bir model sağlasa da yazarlar heparinle oluşturulan fibrillerin Alzheimer hastalığı beynindeki gerçek tau fibrillerini tam olarak taklit etmediğini açıkça belirtmektedir. Sonuçlar tau fibrilleşmesinin erken moleküler aşamalarını anlamaya yöneliktir; klinik tedavi etkinliği veya hastalık nedeninin doğrudan kanıtı değildir.
Tau proteini ve tauopati nedir?
Tau, merkezi sinir sistemindeki en uzun izoformu 2N4R için 441 amino asitten oluşan mikrotübül ilişkili bir proteindir. Kaynak tauyu intrinsically disordered protein (IDP) olarak tanımlar. Bu, proteinin fizyolojik koşullarda tek ve sert bir üç boyutlu yapıya kilitlenmek yerine çok sayıda konformasyonu örnekleyebildiği anlamına gelir.
Tau proteinlerinin yüksek derecede düzenli filamentler halinde birikmesi, tau patolojisi bulunan çeşitli nörodejeneratif hastalıkların nöropatolojik özelliklerinden biridir. Bu hastalık grupları genel olarak tauopatiler olarak adlandırılır.
Amiloid fibrillerin ortak yapısal özelliklerinden biri cross-β mimarisidir. Bu yapıda β-tabakaları fibrilin uzun ekseniyle ilişkili düzenli bir organizasyon oluşturur. Ancak farklı tauopatilerde tau filamentlerinin ayrıntılı atomik katlanmaları birbirinden farklı olabilir; dolayısıyla “tau fibrili” tek bir evrensel yapı anlamına gelmez.
Kesilme, yani truncation neden araştırılıyor?
Tau zincirinin N-terminal veya C-terminal bölgelerinin proteolitik olarak kesilmesi, proteinin normalde belirli amiloidojenik bölgeleri örten veya yapısal olarak sınırlandıran kısımlarını kaldırabilir. Kaynak literatür bağlamında bu kesilmelerin agregasyona yatkın bölgeleri daha erişilebilir hale getirebileceğini tartışmaktadır.
Bu çalışmada araştırmacılar tau dGAE olarak kullanılan Tau297–391 parçasını N-terminal ucundan kademeli biçimde kısaltarak şu beş varyantı karşılaştırmıştır:
- dGAE = Tau297–391
- Tau306–391
- Tau316–391
- Tau321–391
- Tau326–391
Bu tasarımın bilimsel avantajı, C-terminal sonu 391'de sabit tutulurken N-terminal başlangıç noktasının değiştirilmesidir. Böylece belirli N-terminal bölgeler kayboldukça agregasyon davranışının nasıl değiştiği karşılaştırılabilmektedir.
Amiloidojenik motif ne demektir?
Amiloidojenik motif, protein dizisi içinde β-yapı ve kendi kendine birleşme eğilimi çevresindeki amino asitlere göre daha yüksek olabilen kısa bir bölgedir. Bu tür motifler tek başlarına bütün fibrilleşme mekanizmasını belirlemez; fakat fibril çekirdeğinin oluşmasını veya belirli ara konformasyonların kararlı hale gelmesini kolaylaştırabilir.
| Motif | Kalıntılar / dizi | Çalışmadaki bağlam |
|---|---|---|
| PHF6* | 275VQIINK280 | R2 bölgesindeki bilinen tau amiloid motifi; dGAE 297'de başladığı için incelenen dGAE varyantlarının dışında kalır. |
| PHF6 | 306VQIVYK311 | R3 bölgesindeki güçlü amiloid-nükleasyon motifi. dGAE ve Tau306–391'de bulunur; Tau316–391, Tau321–391 ve Tau326–391'de bulunmaz. |
| G-motifi | 326GNIHHK331 | Tau321–391 ve Tau326–391 dahil kısa varyantlarda bulunur; kritik 321–325 flank bölgesinin hemen ardından gelir. |
| PHF6** | 337VEVKSE342 | β-yapı oluşumuyla ilişkili segment; G-motifinden sonra gelir. |
| L-motifi | 344LDFKDR349 | Makine öğrenmesiyle tanımlanan agregasyonla ilişkili bölge. |
| PAM4 | 350VQSKIGSLDNITH362 | R4 bölgesinde amiloid oluşumuyla ilişkili motif. |
| LTFRENA bölgesi | 376LTFRENA382 | PASTA, WALTZ ve TANGO tahminlerinde ek agregasyon sıcak noktası olarak belirlenmiştir; yapısal analizlerde komşu Lys383 ile 376LTFRENAK383 biçiminde de ele alınmıştır. |
Tau321–391 ile Tau326–391 Arasındaki Beş Amino Asit Neden Önemli?
Tau321–391 ile Tau326–391 aynı C-terminal sonu ve aynı G-motifi, PHF6**, L-motifi, PAM4 ve C-terminal agregasyona yatkın bölgelerin çoğunu paylaşmasına rağmen, Tau321–391'de bulunan 321KCGSL325 dizisi agregasyona elverişli konformasyonların oluşumu ve erken monomer–monomer etkileşimleriyle ilişkilendirilmiştir; Tau326–391 ise test edilen koşullarda fibril oluşturamamıştır.
321–325 bölgesinin önemli olmasının nedeni yalnız “beş amino asit daha uzun olmak” değildir. Simülasyon sonuçları bu bölgenin komşu G-motifinin nasıl yapılandığını ve başka tau molekülleriyle nasıl temas kurduğunu değiştirebildiğini göstermektedir.
Kaynak bazı bölümlerde temas analizi için “321–326 bölgesi” ifadesini kullanmaktadır. Bununla birlikte iki varyant arasındaki benzersiz dizisel fark 321–325 arasındaki KCGSL'dir; 326 numaralı G amino asidi Tau326–391'in ilk kalıntısıdır ve dolayısıyla iki varyantta da bulunur.
PGGG motifleri ve β-hairpin mantığı
Kaynak, bazı amiloidojenik motiflerin önünde PGGG dizilerinin bulunduğunu ve bu bölgelerin iki antiparalel β-strandı birbirine bağlayan kısa dönüşler oluşturabilme eğilimine sahip olduğunu açıklamaktadır. Böyle bir yapı, molekülün kendi içinde bir “saç tokası” benzeri β-hairpin meydana getirebilir.
β-hairpin yapısı iki β-strandının bir dönüş bölgesiyle birbirine bağlandığı konformasyondur. Erken agregasyon sırasında böyle bir yapı, başka tau moleküllerinin benzer bölgelerinin belirli bir geometriyle temas etmesini kolaylaştırabilir.
Bu çalışma Tau321–343 all-atom simülasyonlarında G-motifi ile PHF6** çevresinde β-hairpin benzeri konformasyonları Tau326–343'e göre daha sık görmüştür. Ancak simülasyonlarda gözlenen hairpin yapıları, insan beynindeki bütün tau fibrillerinin zorunlu olarak aynı yol üzerinden oluştuğu anlamına gelmez.
Heparin ve DTT deneylerde ne yapıyor?
Heparin, pozitif yüklü tau bölgeleriyle etkileşebilen polianyonik bir moleküldür. Kaynak heparinin hücre içindeki RNA gibi polianyonik bileşenlerin bazı fizikokimyasal etkilerini modelleyebildiğini ve tauyu fibrilleşmeye yatkın konformasyonlara yönlendirmek için yaygın kullanıldığını açıklamaktadır.
Ancak heparinle oluşturulan fibriller insan beynindeki doğal tau fibrillerinin bire bir kopyası değildir. Yazarlar heparinin agregasyon yolunu ve oluşan fibrillerin yapısal özelliklerini değiştirebileceğini açıkça belirtmektedir.
DTT (dithiothreitol) ise indirgeme ajanıdır. Çalışmadaki Tau321–391 dahil bazı varyantlarda Cys322 bulunur. DTT disülfid bağlarını indirger ve cysteine'in redoks durumunu değiştirir. Kaynak, bunun tau agregasyon yolunu ve fibril morfolojisini etkileyebildiğini göstermektedir.
DTT tek başına dGAE ve Tau306–391'de ThT ile belirlenebilir fibrilleşmeye yol açmıştır. dGAE için lag fazı yaklaşık 3 gün, Tau306–391 için 4,6 gün olarak raporlanmıştır. Daha kısa varyantlar yalnız DTT koşulunda ThT-pozitif fibrilleşme göstermemiştir.
ThT Floresansı ile AFM Neden Aynı Sonucu Vermeyebilir?
ThT floresansı fibril miktarını doğrudan tartan bir yöntem değildir; boya bağlanmasının gücü fibrilin cross-β düzenine, morfolojisine, polimorfik yapısına, bağlanma oluklarının erişilebilirliğine ve yüzey yüküne bağlı olduğundan, AFM'de fiziksel fibriller görülebilirken toplam ThT sinyali düşük kalabilir.
Thioflavin T ne ölçüyor?
Thioflavin T, amiloid yapılarındaki tekrarlayan cross-β bölgelerine bağlandığında floresansı artan bir boyadır. Bu nedenle fibril oluşum kinetiklerini izlemek için yaygın olarak kullanılır.
Ancak bir ThT eğrisinin yüksek olması otomatik olarak “bu örnekte en fazla fibril kütlesi vardır” anlamına gelmez. Aynı miktardaki iki farklı fibril mimarisi, ThT'ye farklı sayıda erişilebilir bağlanma bölgesi sunabilir veya bağlanan ThT'nin kuantum verimi değişebilir.
Bu çalışmada Tau321–391 bunun açık örneğidir. ThT kinetiklerinde saf PBS ve yalnız DTT koşullarında belirgin sinyal görülmemesine rağmen AFM, aynı koşullarda seyrek fibriller bulunduğunu ortaya koymuştur.
AFM neyi doğrudan gösteriyor?
Atomik kuvvet mikroskopisi, numune yüzeyindeki fiziksel topografiyi nanometre ölçeğinde görüntüler. Bu nedenle AFM fibril benzeri yapıların gerçek morfolojisini, uzunluğunu, yüksekliğini ve yüzey üzerindeki dağılımını doğrudan incelemeye olanak verir.
Kaynak AFM görüntülerinin fibril bolluğunu nicel olarak temsil etmek amacıyla seçilmediğini de vurgulamaktadır. Gösterilen AFM alanları, yapı çeşitliliğini ve morfolojiyi göstermek için temsilî alanlardır.
AFM'de varyantlar nasıl görünüyordu?
dGAE: Heparin ve heparin+DTT koşullarında yoğun ve bol fibriller oluşturmuştur. Fibril yükseklikleri yaklaşık 40 nm'ye kadar geniş bir dağılım göstermiştir. Heparin+DTT koşulunda uzun, birbirine dolaşan ve bazı durumlarda bükülmüş fibriller görülmüştür.
Tau306–391: dGAE'ye göre daha az yoğun ancak daha uzun fibriller oluşturmuştur. Yükseklik dağılımı yaklaşık 20 nm'ye kadar uzanmış ve dGAE'ye göre daha homojen bulunmuştur.
Tau316–391: Özellikle heparin ve heparin+DTT koşullarında fibriller oluşturmuştur. Heparin+DTT koşulunda daha uzun ve yapısal olarak daha karmaşık fibriller görülmüş, bazı fibriller bükülmüş morfoloji göstermiştir.
Tau321–391: AFM açısından çalışmadaki en dayanıklı fibril oluşturma davranışlarından birini göstermiştir. PBS, heparin, DTT ve heparin+DTT koşullarında fibril yapıları görülmüştür. PBS ve DTT-only örneklerinde fibriller oldukça seyrek dağıldığından bulk ThT sinyaline katkıları düşük kalmıştır. Fibriller çoğunlukla uzun ve dallanmamış, yükseklikleri yaklaşık 10 nm'ye kadar olan yapılardır. Heparin+DTT koşulunda bükülmüş fibriller oluşmuştur.
Tau326–391: Test edilen koşulların hiçbirinde fibril benzeri yapı oluşturmamıştır. AFM yüksekliği genellikle 5 nm'nin altında kalmıştır. Kapiler elektroforez bazı oligomerleşme işaretleri göstermiştir; ancak yazarlar oluşan oligomerlerin kütlesini nicel olarak belirleyememiştir.
| Varyant | PBS | Heparin | DTT | Heparin + DTT |
|---|---|---|---|---|
| dGAE / Tau297–391 | ThT düşük; AFM'de fibril baskın değil | Güçlü fibrilleşme | Fibrilleşme; yaklaşık 3 gün lag | Güçlü, uzun ve daha karmaşık fibriller |
| Tau306–391 | ThT düşük | Fibrilleşme; lag < 30 dakika | Fibrilleşme; yaklaşık 4,6 gün lag | Belirgin fibrilleşme |
| Tau316–391 | ThT düşük | Fibrilleşme; lag yaklaşık 1 güne kadar | ThT-detectable fibrilleşme yok | Belirgin fibrilleşme; bazı bükülmüş fibriller |
| Tau321–391 | ThT düşük; AFM'de seyrek fibriller | Fibrilleşme; lag yaklaşık 1 güne kadar | ThT düşük; AFM'de seyrek fibriller | Belirgin fibrilleşme; bükülmüş fibriller |
| Tau326–391 | Fibril yok | Fibril yok | Fibril yok | Fibril yok |
Bu tablo ölçüm yöntemlerinin farklı anlamlarını korumak amacıyla nitel hazırlanmıştır. Kaynak grafiklerinden yeni ThT pik yüksekliği, fibril kütlesi veya ara zaman değeri üretilmemiştir.
Twisted Tau321–391 fibrilleri neye benziyordu?
Heparin+DTT koşullarında oluşan bükülmüş Tau321–391 filamentleri Trace_y yazılımıyla ayrıca analiz edilmiştir. Tek, ayrılmış, en az üç tekrar birimi içeren ve görünür kırığı olmayan fibriller seçilmiş; fibril yüzeyi ve kesitsel temas-noktası yoğunluk haritaları oluşturulmuştur.
Kaynak bu kesitlerin, heparinle oluşturulan full-length tau “jagged filament” yapısından ziyade dGAE paired helical filament (PHF) yapısına daha fazla benzediğini ifade etmektedir. Buradaki ifade “benzer görünmektedir” düzeyindedir; çalışma bu fibrillerin atomik yapısını cryo-EM ile çözmemiştir.
Moleküler Dinamik Simülasyonları 321–325 Bölgesi Hakkında Ne Gösterdi?
All-atom simülasyonları 321KCGSL325 dizisini içeren Tau321–343'ün Tau326–343'e göre daha fazla monomer–monomer temas kurduğunu ve β-hairpin içeren agregasyona elverişli ara konformasyonları daha sık örneklediğini; coarse-grained simülasyonlar ise aynı N-terminal bölgenin Tau321–391'de belirgin α-helikal eğilim oluşturduğunu göstermiştir.
All-atom simülasyon ne demektir?
All-atom moleküler dinamik simülasyonunda proteinin ve çözücünün atomları kuvvet alanındaki fiziksel etkileşim terimleri üzerinden zaman içinde hareket ettirilir. Bu yaklaşım yüksek yapısal ayrıntı sağlar, ancak büyük sistemlerde hesaplama maliyeti yüksektir.
Çalışmada iki kısa N-terminal parça karşılaştırılmıştır:
- Tau321–343: 321KCGSLGNIHHKPGGGQVEVKSEK343
- Tau326–343: 326GNIHHKPGGGQVEVKSEK343
İki parça aynı G-motifi ve PHF6** bölgelerini paylaşır; Tau321–343'ün farkı başındaki KCGSL dizisidir.
All-atom monomer simülasyon koşulları
- Kuvvet alanı: CHARMM36m
- Su modeli: CHARMM-modified TIP3P
- Başlangıç: Chimera'da hazırlanmış tamamen uzatılmış konformasyon
- Monomer simülasyonu: her varyant için üç adet 500 ns replika
- Kümeleme: Gromos algoritması
- Backbone RMSD kümeleme eşiği: 3 Å
- Boyut indirgeme / hareket analizi: principal component analysis (PCA)
- Serbest enerji manzarası: PC1 ve PC2 histogramının Boltzmann inversion işlemi üzerinden oluşturulması
RMSD burada ne demektir? Moleküler dinamik bağlamında RMSD, yapılar arasındaki atomik koordinat farkının kareler ortalamasının karekökü temelli bir geometrik uzaklık ölçüsüdür. Kaynak açık RMSD denklemini yazmadığı için Verianla yeni denklem eklememektedir.
PCA ne yapıyor? Principal component analysis, simülasyon boyunca proteinin koordinat değişimlerinden en büyük kolektif hareketleri temsil eden yönleri çıkarır. PC1 ve PC2, protein hareketlerinin en önemli iki bileşenini temsil eden matematiksel eksenlerdir.
Free energy landscape neyi gösteriyor? Simülasyonda daha sık ziyaret edilen konformasyon bölgelerinin göreli olarak daha düşük serbest enerji bölgelerine karşılık gelmesine dayalı bir konformasyon haritasıdır. Kaynak serbest enerji farklarını Boltzmann inversion ile hesapladığını belirtir ancak açık matematiksel denklemi vermez; bu nedenle burada kaynak dışı denklem eklenmemiştir.
Dimerizasyon simülasyonlarında ne bulundu?
En yüksek popülasyonlu ilk 10 monomer kümesinin merkez yapıları ikili gruplar halinde eşleştirilmiştir: cl1+cl2, cl3+cl4, cl5+cl6, cl7+cl8 ve cl9+cl10. İki monomer simülasyon kutusunda geometrik merkezleri arasında 30 Å olacak şekilde yerleştirilmiştir.
Kaynakta burada önemli bir tekrar sayısı tutarsızlığı bulunmaktadır. Yöntem bölümü her çift için üç adet 2 μs replika üretildiğini söyler. Buna karşılık sonuç bölümü “beş 2 μs trajektori” ifadesini kullanır ve kaynak Şekil 4 açıklaması da beş 2 μs replika belirtir. Verianla bu farkı sessizce düzeltmemektedir.
Sonuç bölümünde verilen beş trajektori temelli istatistiksel özet şöyledir:
| Varyant | Dimerik popülasyon | İstatistiksel karşılaştırma |
|---|---|---|
| Tau321–343 | %29,4 ± 4,4 | İki kuyruklu t-testi, P = 0,014 |
| Tau326–343 | %14,7 ± 2,1 |
Bu fark, Tau321–343'ün simülasyon boyunca Tau326–343'e göre yaklaşık iki kat daha fazla dimerik temas popülasyonu göstermesi anlamına gelir. “İki kat” burada ölçülen yüzde popülasyonların yaklaşık oranını anlatır; klinik veya biyolojik etki büyüklüğü değildir.
Kaynak Şekil 4 açıklamasında intermoleküler temas içeren çıkarılmış karelerin toplam oranı ayrıca Tau321–343 için %29,98 ve Tau326–343 için %14,98 olarak belirtilmektedir. Bu figür yüzdeleri ile yukarıdaki ortalama ± sapma istatistiği aynı sunum biçimi değildir ve birbirinin yerine kullanılmamalıdır.
Tau321–343 nasıl farklı bir dimer yapısı oluşturdu?
Tau321–343 kümelerinde daha yüksek β-yapı içeriği görülmüştür. G-motifi ile PHF6** arasındaki 332PGGG335 bölgesinin bağladığı intramoleküler antiparalel β-hairpin yapıları çeşitli kümelerde ortaya çıkmıştır.
Bu hairpin yapıların yüzeyleri monomerlerin birbirine yaklaşmasında temas yüzeyi oluşturabilmiş ve paralel veya antiparalel intermoleküler β-yapılar meydana gelmiştir.
Tau326–343 ise daha çok “fuzzy”, yani tek bir sıkı ve düzenli geometriye oturmayan temaslar göstermiştir. Bazı kümelerde kısa paralel β-sheet arayüzleri görülse de N-terminal uçlar bağlanma arayüzünden uzağa yönelmiştir.
Temas haritalarında Tau321–343 dimerleri hem C-terminal PHF6** hem de N-terminal G-motifi çevresindeki etkileşimlerle stabilize olurken Tau326–343 dimerlerinde temaslar esas olarak PHF6** çevresinde yoğunlaşmıştır.
Coarse-grained simülasyon neden kullanıldı?
Tau321–391 ve Tau326–391 gibi yaklaşık 70 kalıntılı uzun ve yüksek derecede esnek protein parçalarının tam atomlu, açık çözücülü simülasyonu çok büyük hesaplama kutuları gerektirir. Kaynak, yaklaşık 1,7 milyon parçacık gerektirebilecek bu maliyeti azaltmak için coarse-grained SIRAH yaklaşımını kullanmıştır.
Coarse-grained model, birden fazla atomu fizikokimyasal özellikleri temsil eden daha büyük “bead” birimlerinde toplar. Böylece aynı fiziksel zaman aralığı daha düşük hesaplama maliyetiyle örneklenebilir; karşılığında atomik ayrıntı azalır.
Coarse-grained simülasyon koşulları
- Kuvvet alanı: SIRAH 2.0
- IDP davranışını daha iyi temsil etmek için kullanılan yeniden parametrizasyon: protein–su bead etkileşimlerinin %30'a kadar artırıldığı Martins ve arkadaşları yaklaşımı
- Başlangıç yapıları: AlphaFold2 / ColabFold v1.5.5
- MSA oluşturma: MMseqs2
- Yapısal template kullanılmadan tahmin
- En yüksek sıralı beş AlphaFold2 yapısı gevşetilerek beş CG replika için kullanıldı
- Kaynak Şekil 5 açıklamasına göre her varyant için beş adet 5 μs replika
- Simülasyon yazılımı: GROMACS 2023.2
- Trajektori üretimi: Devana HPC sistemi
AlphaFold2 başlangıç yapıları kullanılmış olması önemlidir. Kaynak bunun biyolojik “doğru tau yapısını” belirlemek için değil, başlangıç konformasyonunu kısmen kompakt hale getirerek simülasyon kutusunun boyutunu ve hesaplama maliyetini azaltmak için yapıldığını açıklamaktadır.
Coarse-grained simülasyonun en belirgin farkı neydi?
Her iki varyant da IDP'lere özgü yüksek yapısal esneklik göstermiştir. Ancak Tau321–391'in beş replikasından ikisinde, G-motifi kalıntılarını kapsayan belirgin bir N-terminal α-helix oluşmuştur.
Kaynak bu N-terminal helikal eğilimi agregasyon-kompetent Tau321–391 ile agregasyon-kompetent olmayan Tau326–391 arasındaki en belirgin yapısal farklılıklardan biri olarak değerlendirmektedir.
Antiparalel β-sheet ara yapıları ne kadar görüldü?
Coarse-grained konformasyon topluluklarında antiparalel β-sheet ara yapıları Tau321–391 yapılarının %7,49'unda, Tau326–391 yapılarının ise %2,52'sinde görülmüştür.
Her iki varyantta da intramoleküler β-sheet bağlantıları C-terminal 376LTFRENAK383 bölgesi ile N-terminal G-motifi çevresinde ortaya çıkmıştır. PAM4 bölgesi ise güçlü helikal eğilim göstermiştir.
NMR simülasyon sonuçlarını nasıl kontrol etti?
Tau321–391 için deneysel NMR chemical shift verileri kullanılmıştır. İzotop işaretli Tau321–391, M9 minimal ortamda 2 g/L 13C glucose ve 1 g/L 15N ammonium chloride kullanılarak üretilmiştir. Kültür Marley protokolüne göre indüksiyon öncesinde minimal ortamda dört kat yoğunlaştırılmıştır.
NMR ölçümü 950 MHz Bruker AVANCE NEO spektrometresinde, 0,5 mM Tau321–391, PBS, 5 mM DTT ve %10 D2O koşullarında gerçekleştirilmiştir. Çalışmanın NMR chemical shift verileri BMRB veri tabanında 53400 giriş koduyla belirtilmiştir.
İkincil yapı eğilimi, ölçülen Cα ve Cβ chemical shift değerlerinin random-coil referanslarından sapmalarına göre hesaplanmıştır. Pozitif SSP değerleri helikal, negatif SSP değerleri β-sheet eğilimini gösterecek biçimde yorumlanmıştır.
Kaynak, simülasyonlardan elde edilen G-motifi ve PAM4 çevresindeki helikal/β-sheet eğilimlerinin NMR sonuçlarıyla uyumlu olduğunu belirtmektedir.
CD spektroskopisi neden yapıldı?
Circular dichroism (CD), proteinlerin ikincil yapı bileşiminin zaman içinde nasıl değiştiğini izlemek için kullanılmıştır. Özellikle Tau321–391 ve Tau326–391'in agregasyon sırasında helix, antiparallel β-sheet, parallel β-sheet, turn ve düzensiz yapı yüzdeleri karşılaştırılmıştır.
50 μM Tau321–391 ve Tau326–391, yalnız assay buffer içinde ve 50 μM heparin varlığında 0, 23, 28, 30,5, 42, 51 ve 72 saat zaman noktalarında incelenmiştir.
- Optik yol: 1 mm
- Spektral aralık: 190–270 nm
- Tarama hızı: 50 nm/dk
- Akümülasyon: 3
- Cihaz: Jasco J-815 spectropolarimeter
- Yumuşatma: Origin Pro8.5, Savitzky–Golay
- Deconvolution: BeStSel
CD Tablo 1: Heparinsiz Tau321–391
| Yapı | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0,6 | 5 | 0 | 0 | 0 | 0 |
| Antiparallel sheet | 23,6 | 20,2 | 21,9 | 24,2 | 24,7 | 25,4 | 20,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 15,3 | 17,7 | 15,8 | 14,9 | 19 | 16,9 | 19,4 |
| Others | 61 | 61,5 | 57,2 | 60,9 | 56,3 | 57,7 | 60,5 |
| RMSD | 0,3054 | 0,2827 | 0,4187 | 0,4064 | 0,336 | 0,2146 | 0,2237 |
Zaman birimi notu: Kaynak Tablo 1 zaman noktalarını 23 h, 28 h, 30.5 h, 42 h, 51 h ve 72 h olarak verir. Yukarıdaki başlıklardaki “s” ifadesi saat anlamındadır.
CD Tablo 1: Heparinsiz Tau326–391
| Yapı | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0,1 | 0 | 0 |
| Antiparallel sheet | 27,1 | 26,7 | 30 | 23,1 | 31,3 | 27,9 | 34,1 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 18 | 18,9 | 18,5 | 19 | 19,1 | 18,7 | 17,9 |
| Others | 54,9 | 54,4 | 51,5 | 58 | 49,5 | 53,5 | 48 |
| RMSD | 0,2364 | 0,2054 | 0,1707 | 0,2381 | 0,3873 | 0,2226 | 0,25 |
CD Tablo 1: Tau321–391 + heparin
| Yapı | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 1,1 | 0 | 0 | 4,3 | 6,7 |
| Antiparallel sheet | 25,7 | 19,9 | 20,8 | 22,4 | 32,2 | 31,3 | 31,4 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 5,5 | 9,4 |
| Turn | 20,5 | 19,3 | 14,4 | 16,3 | 15,9 | 11,9 | 9,9 |
| Others | 53,8 | 60,8 | 63,7 | 61,3 | 51,9 | 47 | 42,5 |
| RMSD | 0,1923 | 0,3197 | 0,2837 | 0,4176 | 0,199 | 0,0833 | 0,1783 |
CD Tablo 1: Tau326–391 + heparin
| Yapı | 0 dk | 23 s | 28 s | 30,5 s | 42 s | 51 s | 72 s |
|---|---|---|---|---|---|---|---|
| Helix | 0 | 0 | 0 | 0 | 0 | 0 | 0,6 |
| Antiparallel sheet | 26 | 25,7 | 27,3 | 25,5 | 26,4 | 27,6 | 27,7 |
| Parallel sheet | 0 | 0 | 0 | 0 | 0 | 0 | 0 |
| Turn | 19,8 | 17,1 | 18 | 17,1 | 16,1 | 17,4 | 19,4 |
| Others | 54,2 | 57,2 | 54,7 | 57,4 | 57,6 | 55,1 | 52,3 |
| RMSD | 0,3491 | 0,374 | 0,138 | 0,2308 | 0,2882 | 0,17 | 0,3789 |
RMSD terminolojisi burada farklıdır: Kaynak Tablo 1'in dipnotunda RMSD, BeStSel yazılımındaki ölçülmüş CD spektrumu ile fit edilmiş spektrum arasındaki spectral deviation olarak tanımlanmaktadır. Bu, moleküler dinamik bölümünde protein koordinatlarını karşılaştırmak için kullanılan yapısal RMSD ile aynı metrik değildir.
CD verilerinin ana mesajı
Heparinsiz koşullarda hem Tau321–391 hem Tau326–391 büyük ölçüde düzensiz kalmıştır. Tau321–391'in helical içeriği 23 saatte %0,6 ve 28 saatte %5'e geçici olarak yükselirken Tau326–391'de en yüksek belirgin helix değeri 42 saatte yalnız %0,1'dir.
Heparin varlığında Tau321–391 daha belirgin yeniden düzenlenme göstermiştir. 51 ve 72 saatte parallel β-sheet sırasıyla %5,5 ve %9,4'e çıkmış; helix içeriği %4,3 ve %6,7'ye yükselmiştir. Aynı zamanlarda “others” ve turn bileşenleri azalmıştır.
Tau326–391 + heparin koşulunda parallel β-sheet bütün zaman noktalarında %0 olarak kalmış ve helix yalnız 72 saatte %0,6 olarak raporlanmıştır.
Kaynak bu sonuçları Tau321–391'in lag fazında geçici helikal ve turn-zengin ara yapılardan daha düzenli β-sheet fibrillere ilerleyebilmesiyle ilişkilendirmektedir.
Çalışmanın Yöntemi ve Bulguları
Rekombinant tau varyantlarının hazırlanması
dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 ve Tau326–391 varyantları E. coli BL21(DE3) hücrelerinde pET-17 ekspresyon vektörü kullanılarak üretilmiştir.
Proteinler bakteri lizatı içinden iyon değişim kromatografisi ve boyut dışlama kromatografisi dizileriyle, daha önce yayımlanmış protokole göre saflaştırılmıştır. Saflaştırılan proteinler PBS pH 7,4 içinde, disülfid oluşumunu azaltmak amacıyla argon atmosferi altında −80 °C'de saklanmıştır.
Protein konsantrasyonları 205 nm absorbansından DU 640 spektrofotometre ile belirlenmiştir. Saflık ve kimlik SDS-PAGE ve mass spectrometry ile kontrol edilmiştir.
Mass spectrometry doğrulamasının ayrıntıları
- DTT son konsantrasyonu: 10 mM
- Iodoacetamide son konsantrasyonu: 15 mM
- Trypsin digestion: 37 °C'de gece boyunca
- UPLC: Acquity UPLC M-Class
- Kolon: Acquity UPLC HSS T3, 1 × 100 mm, 1,8 μm
- Gradient: %5–40 acetonitrile, %0,1 formic acid, 30 dakika
- Akış: 75 μL/dk
- MS cihazı: ZenoTOF 7600 time-of-flight
- Veri toplama: data-dependent acquisition (DDA)
- Veri işleme: Peaks 13
Kaynak ana metinde MS sonuç görselini yalnız Tau321–391 için Supplementary Fig. S1'de göstermektedir.
ThT agregasyon deneyinin tam koşulları
| Parametre | Kaynak değeri |
|---|---|
| Tau konsantrasyonu | 50 μM |
| ThT konsantrasyonu | 12,5 μM |
| Numune hacmi | 50 μL |
| Sıcaklık | 37 °C |
| Orbital shaking | 700 rpm |
| Maksimum inkübasyon | 6 gün |
| Tekrar | Üç replika |
| Plaka | 96-well half-volume Corning 3881 |
| Okuyucu | ClarioStar, BMG Labtech |
Dört deney koşulu şunlardır:
- 1× PBS, pH 7,4
- 1× PBS + 50 μM heparin
- 1× PBS + 10 mM DTT
- 1× PBS + 50 μM heparin + 10 mM DTT
Buffer ve katkı maddelerinin kendi ThT floresansı protein içeren örneklerin sinyalinden çıkarılmıştır.
Heparin koşullarındaki kinetik sonuçlar
50 μM heparin dGAE, Tau306–391, Tau316–391 ve Tau321–391'de ThT ile gözlenebilir fibrilleşmeyi indüklemiştir. Tau326–391 ise heparine rağmen fibril oluşturmamıştır.
dGAE ve Tau306–391 için lag fazı 30 dakikadan kısadır. Tau316–391 ve Tau321–391 için fibril oluşumunun lag fazı yaklaşık bir güne kadar uzamıştır.
dGAE, heparin koşulunda en yüksek steady-state ThT floresansı gösteren varyant olmuştur.
DTT koşullarındaki kinetik sonuçlar
Yalnız DTT koşulunda ThT ile belirgin fibril oluşumu dGAE ve Tau306–391 için görülmüştür. dGAE'nin lag fazı yaklaşık 3 gün, Tau306–391'in lag fazı yaklaşık 4,6 gündür.
Tau316–391, Tau321–391 ve Tau326–391 yalnız DTT ile ThT-detectable fibrilleşme göstermemiştir. Bununla birlikte Tau321–391'in AFM'de seyrek fibriller gösterebildiği unutulmamalıdır.
Heparin + DTT birlikte kullanıldığında ne oldu?
Heparin ve DTT birlikte kullanıldığında Tau326–391 hariç bütün varyantlarda belirgin fibrilleşme görülmüştür.
Tau306–391, Tau316–391 ve Tau321–391 bu koşulda en yüksek end-state ThT sinyallerinden bazılarını göstermiştir. dGAE'de heparin+DTT ve yalnız heparin koşulları arasındaki son ThT sinyalleri deneysel hata içinde karşılaştırılabilir düzeyde olmuştur.
Tau316–391 için heparin+DTT kombinasyonu yalnız heparine göre daha hızlı kinetik sağlamıştır. dGAE ve Tau306–391'de ise heparin+DTT kinetikleri yalnız heparine göre biraz daha yavaş olmuştur.
Kapiler elektroforez koşulları
- Cihaz: Agilent 7100 CE analyzer
- Dedektör: UV
- Kapiler: 56 cm × 75 μm ID bare fused silica
- Enjeksiyon: 50 mbar, 10 s
- Polarite: pozitif
- Voltaj: başlangıçta 20 s içinde 0 kV → +20 kV
- Background electrolyte: 1 M acetic acid, pH 2,38
- Dedeksiyon dalga boyu: 210 nm
Kapiler elektroforez Tau326–391 örneklerinde bazı oligomerleşme işaretleri göstermiştir; ancak kaynak bu oligomerlerin kütlesinin nicel olarak ölçülemediğini açıkça belirtmektedir.
Çalışmanın desteklediği sonuçlar
- dGAE/Tau297–391 incelenen varyantlar arasında en güçlü genel agregasyon yanıtını göstermiştir.
- N-terminal kısaltma genel olarak agregasyon kinetiklerini yavaşlatmıştır.
- Tau326–391 hiçbir test koşulunda fibril oluşturmamıştır.
- Tau321–391, incelenen E391-truncated varyantlar arasında fibril oluşturabilen en kısa konstrüksiyondur.
- Tau321–391 saf PBS'de AFM ile görülebilen fibriller oluşturabilmiştir; bu fibriller ThT-pozitif değildir.
- 321KCGSL325 dizisi, Tau321–391 ile Tau326–391 arasındaki ana dizisel farktır.
- Tau321–343 all-atom dimerizasyon simülasyonunda Tau326–343'e göre daha yüksek dimerik popülasyon göstermiştir.
- Dimerik popülasyon farkı kaynak sonuç bölümünde %29,4 ± 4,4 ve %14,7 ± 2,1; P = 0,014 olarak raporlanmıştır.
- Tau321–343'te β-hairpin benzeri agregasyona yatkın ara konformasyonlar daha belirgin görülmüştür.
- Tau321–391 coarse-grained simülasyonlarında N-terminal G-motifi çevresinde belirgin α-helikal eğilim görülmüştür.
- NMR ve CD sonuçları, Tau321–391'deki lokal helikal ve β-yapı eğilimlerinin simülasyon bulgularıyla uyumlu olduğunu desteklemiştir.
- Heparin+DTT bazı varyantlarda yalnız düz fibrillerden farklı, bükülmüş fibril morfolojilerinin oluşumunu desteklemiştir.
- ThT ve AFM birbirini tamamlayan fakat her zaman doğrudan korele olmayan bilgi sağlamıştır.
Çalışmanın desteklemediği sonuçlar
- 321–325 bölgesinin Alzheimer hastalığının tek nedeni olduğu gösterilmemiştir.
- 321–325 bölgesini hedeflemenin insanlarda tedavi sağlayacağı gösterilmemiştir.
- İnsan veya hayvan üzerinde tedavi deneyi yapılmamıştır.
- Heparinle oluşturulan fibrillerin insan beynindeki Alzheimer tau fibrilleriyle özdeş olduğu gösterilmemiştir.
- ThT floresansı doğrudan fibril kütlesi olarak yorumlanamaz.
- AFM'deki temsilî alanlar bütün örnekteki toplam fibril miktarının doğrudan nicel ölçümü değildir.
- MD simülasyonunda görülen hairpin veya α-helix yapıların insan beyninde zorunlu olarak aynı biçimde oluştuğu gösterilmemiştir.
- Simülasyonlar bütün tau oligomerleşme yolunu veya olgun fibrile kadar bütün moleküler basamakları modellememiştir.
- Çalışma, 321–325 bölgesi dışında kalan flank dizilerin etkisini tamamen dışlamamaktadır.
- DTT'nin etkisi yalnız tek bir disülfid mekanizmasına indirgenemez; kaynak redoks durumunun alternatif agregasyon yollarını etkileyebileceğini tartışmaktadır.
Çalışmanın ana yöntemsel sınırlılıkları
Birinci sınırlılık, kullanılan tau parçalarının tam uzunluklu insan tau proteininin yalnız kesilmiş modelleri olmasıdır. Hücre içinde gerçek tau; fosforilasyon ve diğer post-translasyonel modifikasyonlar, proteoliz, hücresel iyonlar, RNA, lipidler, başka proteinler ve moleküler crowding gibi çok sayıda etkene maruz kalır.
İkinci sınırlılık, heparinin kontrollü fibrilleşme sağlamak için yararlı olmakla birlikte Alzheimer hastalığındaki in-vivo agregasyon ortamını tam olarak taklit etmemesidir.
Üçüncü sınırlılık, ThT'nin fibril yükü için mutlak nicel ölçüm olmamasıdır. AFM de küçük ve temsilî yüzey alanlarını görüntüler; bütün örnekteki fibril kütlesini tek başına ölçmez.
Dördüncü sınırlılık, all-atom dimerizasyon simülasyonundaki replika sayısının kaynak içinde tutarlı verilmemesidir: Yöntem üç × 2 μs, sonuç ve Şekil 4 ise beş × 2 μs belirtmektedir.
Beşinci sınırlılık, simülasyonların erken monomer/dimer olaylarına güçlü yapısal ayrıntı sağlamasına rağmen daha yüksek oligomerler ve bütün fibril büyüme sürecini doğrudan modellememesidir. Yazarlar daha ileri oligomerizasyon simülasyonlarının yararlı olacağını belirtmektedir.
Bu çalışma neden bilimsel olarak önemli?
Çalışma yalnız bilinen PHF6 gibi bir amiloid çekirdek motifine odaklanmamaktadır. Sonuçlar, amiloidojenik motiflerin çevresindeki kısa flank bölgelerin de aynı motifin hangi konformasyonları örneklediğini ve ilk intermoleküler temasların nasıl gerçekleştiğini ciddi biçimde değiştirebileceğini göstermektedir.
Tau321–391 ile Tau326–391 arasındaki beş kalıntılık fark bunun güçlü bir deneysel modelidir. İki varyant birçok amiloid bölgesini paylaşmasına rağmen biri fibrilleşebilirken diğeri fibrilleşmemektedir. Bu, protein agregasyonunda “bir agregasyon motifi var mı?” sorusunun tek başına yeterli olmadığını; motifin bağlamının ve komşu dizilerin de önemli olduğunu göstermektedir.
Yazarlar bu tür flank bölgelerin ve pre-aggregation konformasyonlarının gelecekte terapötik hedef olarak değerlendirilebileceğini önermektedir. Bu ifade bir araştırma yönü önerisidir; bu çalışma herhangi bir ilaç, antikor veya insan tedavisinin etkinliğini test etmemiştir.
Kaynak ve Yöntem Notu
Özgün başlık: Gradual N-terminal truncation of tau dGAE (297–391) reveals the importance of 321–325 sequence for early steps of fibril formation
Yazarlar: Stefana Njemoga; Petra Majerova; Juraj Piestansky; Zuzana Gazova; Pavel Kaderavek; Exequiel E. Barrera; Zuzana Bednarikova; Ondrej Cehlar.
Corresponding authors: Exequiel E. Barrera, Zuzana Bednarikova ve Ondrej Cehlar.
Eş katkı: Kaynakta eş birinci yazarlık veya eş katkı bildirimi görülmemektedir.
Kurumlar: Institute of Neuroimmunology, Slovak Academy of Sciences, Bratislava, Slovakia; Department of Galenic Pharmacy, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia; Institute of Experimental Physics, Slovak Academy of Sciences, Kosice, Slovakia; Central European Institute of Technology (CEITEC), Masaryk University, Brno, Czech Republic; National Centre for Biomolecular Research, Faculty of Science, Masaryk University, Brno, Czech Republic; Instituto de Histología y Embriología (IHEM), CONICET–Universidad Nacional de Cuyo, Mendoza, Argentina; Department of Pharmaceutical Chemistry, Faculty of Pharmacy, Comenius University, Bratislava, Slovakia.
Dergi: International Journal of Biological Macromolecules.
Yayınevi: Elsevier B.V.
Cilt / makale numarası: 362 / 152066.
DOI: 10.1016/j.ijbiomac.2026.152066.
Alınma tarihi: 19 Ocak 2026.
Revize sürüm tarihi: 10 Nisan 2026.
Kabul tarihi: 15 Nisan 2026.
Çevrimiçi yayın tarihi: 17 Nisan 2026.
Bibliyografik cilt kaydı: Volume 362, Mayıs 2026.
Kaynak türü: Rekombinant protein in-vitro agregasyon deneylerini ve moleküler dinamik simülasyonlarını birleştiren deneysel–hesaplamalı araştırma makalesi.
Hakemlik durumu: International Journal of Biological Macromolecules'ta yayımlanmış hakemli makale.
Lisans: Creative Commons Attribution 4.0 International (CC BY 4.0).
Anahtar kelimeler: Tau protein; Amyloidogenic motifs; Amyloid aggregation; MD simulation.
İncelenen varyantlar: dGAE/Tau297–391, Tau306–391, Tau316–391, Tau321–391 ve Tau326–391.
Ana deneysel yöntemler: ThT fluorescence assay, atomic force microscopy, circular dichroism spectroscopy, capillary electrophoresis, NMR ve mass spectrometry doğrulaması.
Ana hesaplamalı yöntemler: CHARMM36m all-atom MD, SIRAH 2.0 coarse-grained MD, Gromos RMSD clustering, PCA/free-energy landscape, AlphaFold2/ColabFold başlangıç modelleri ve amino asit temas haritaları.
Ana sonuç: Tau321–391, incelenen E391-truncated konstrüksiyonlar içinde fibril oluşturabilen en kısa varyanttır; Tau326–391 test edilen koşullarda fibril oluşturamamıştır. Aradaki benzersiz N-terminal fark 321KCGSL325 dizisidir.
All-atom ana nicel sonuç: Kaynak sonuç bölümünde Tau321–343 dimerik popülasyonu %29,4 ± 4,4, Tau326–343 popülasyonu %14,7 ± 2,1 ve P = 0,014 olarak verilmiştir.
Simülasyon tekrar sayısı kaynak-içi notu: Yöntem bölümü dimerizasyon için üç × 2 μs replika yazarken sonuç metni ve Şekil 4 açıklaması beş × 2 μs trajektori/replika belirtmektedir. Bu fark kaynak tarafından açıklanmamıştır.
321–325 / 321–326 terminoloji notu: Tau321–391 ile Tau326–391 arasındaki gerçek ek dizi 321KCGSL325'tir. Bazı temas analizi açıklamalarında 321–326 bölgesi denmektedir; 326 numaralı G iki varyantın da G-motifinde bulunan ortak kalıntıdır.
CD RMSD notu: Kaynak Tablo 1'de RMSD, BeStSel'de ölçülen ve fit edilen CD spektrumları arasındaki spectral deviation'dır. MD analizindeki koordinat-temelli RMSD ile aynı ölçü değildir.
Heparin sınırı: Kaynak, heparin-induced fibrilleşmenin Alzheimer hastalığı beynindeki fibril oluşumunu tam olarak temsil etmediğini ve heparinin agregasyon yolunu/fibril yapısını değiştirebileceğini açıkça belirtmektedir.
ThT sınırı: ThT fluorescence fibril kütlesinin doğrudan ölçümü değildir; morfoloji, polimorfik yapı, binding-site accessibility ve surface charge sinyali etkileyebilir.
AFM sınırı: AFM görüntüleri morfolojik çeşitliliği göstermek için temsilîdir ve bütün numunedeki toplam fibril bolluğunun doğrudan nicel ölçümü olarak kullanılmamıştır.
Veri erişilebilirliği: Çalışmanın hesaplamalı verileri Zenodo üzerinde iki ayrı veri kaydıyla sağlanmıştır: DOI 10.5281/zenodo.17830302 ve DOI 10.5281/zenodo.18157196.
NMR veri kaydı: Tau321–391 için kullanılan NMR verileri BMRB giriş kodu 53400 altında belirtilmiştir.
Çıkar çatışması: Yazarlar “We have nothing to declare” bildirimini vermiştir.
Finansman: Çalışma VEGA 02/0141/25, 2/0125/23 ve 1/0825/25; APVV-18-0284 ve APVV-22-0598; Slovakya Recovery and Resilience Plan 09I03-03-V04-00623, 09I03-V04-00622 ve 09I02-03-V01-00021; Horizon Europe 101087124 ADDIT-CE; Horizon 2020 Marie Skłodowska-Curie 873127 InterTAU; National competence centre for high-performance computing 311070AKF2 ve ilgili Avrupa/Bölgesel altyapı destekleriyle desteklenmiştir. Josef Dadok National NMR Centre ölçümleri CIISB/Instruct-CZ altyapısı ve ilgili MEYS/ERDF desteğinden yararlanmıştır; COST CA21160 ML4NGP ve MVTS COST ML4NGP desteği de belirtilmiştir.
CRediT – Stefana Njemoga: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation.
CRediT – Petra Majerova: Investigation.
CRediT – Juraj Piestansky: Investigation.
CRediT – Zuzana Gazova: Writing – review & editing, Project administration, Funding acquisition.
CRediT – Pavel Kaderavek: Data curation, Investigation, Writing – review & editing.
CRediT – Exequiel E. Barrera: Writing – review & editing, Visualization, Supervision, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Zuzana Bednarikova: Writing – review & editing, Writing – original draft, Visualization, Methodology, Investigation, Formal analysis, Data curation, Conceptualization.
CRediT – Ondrej Cehlar: Writing – review & editing, Visualization, Supervision, Project administration, Methodology, Investigation, Funding acquisition, Formal analysis, Conceptualization.
Temel yorum sınırı: Çalışma tau agregasyonunun erken moleküler belirleyicilerini kontrollü in-vitro ve hesaplamalı modellerde araştırmaktadır. İnsan beynindeki bütün tauopati mekanizmasını, klinik hastalık ilerlemesini veya herhangi bir terapinin etkinliğini kanıtlamamaktadır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir