

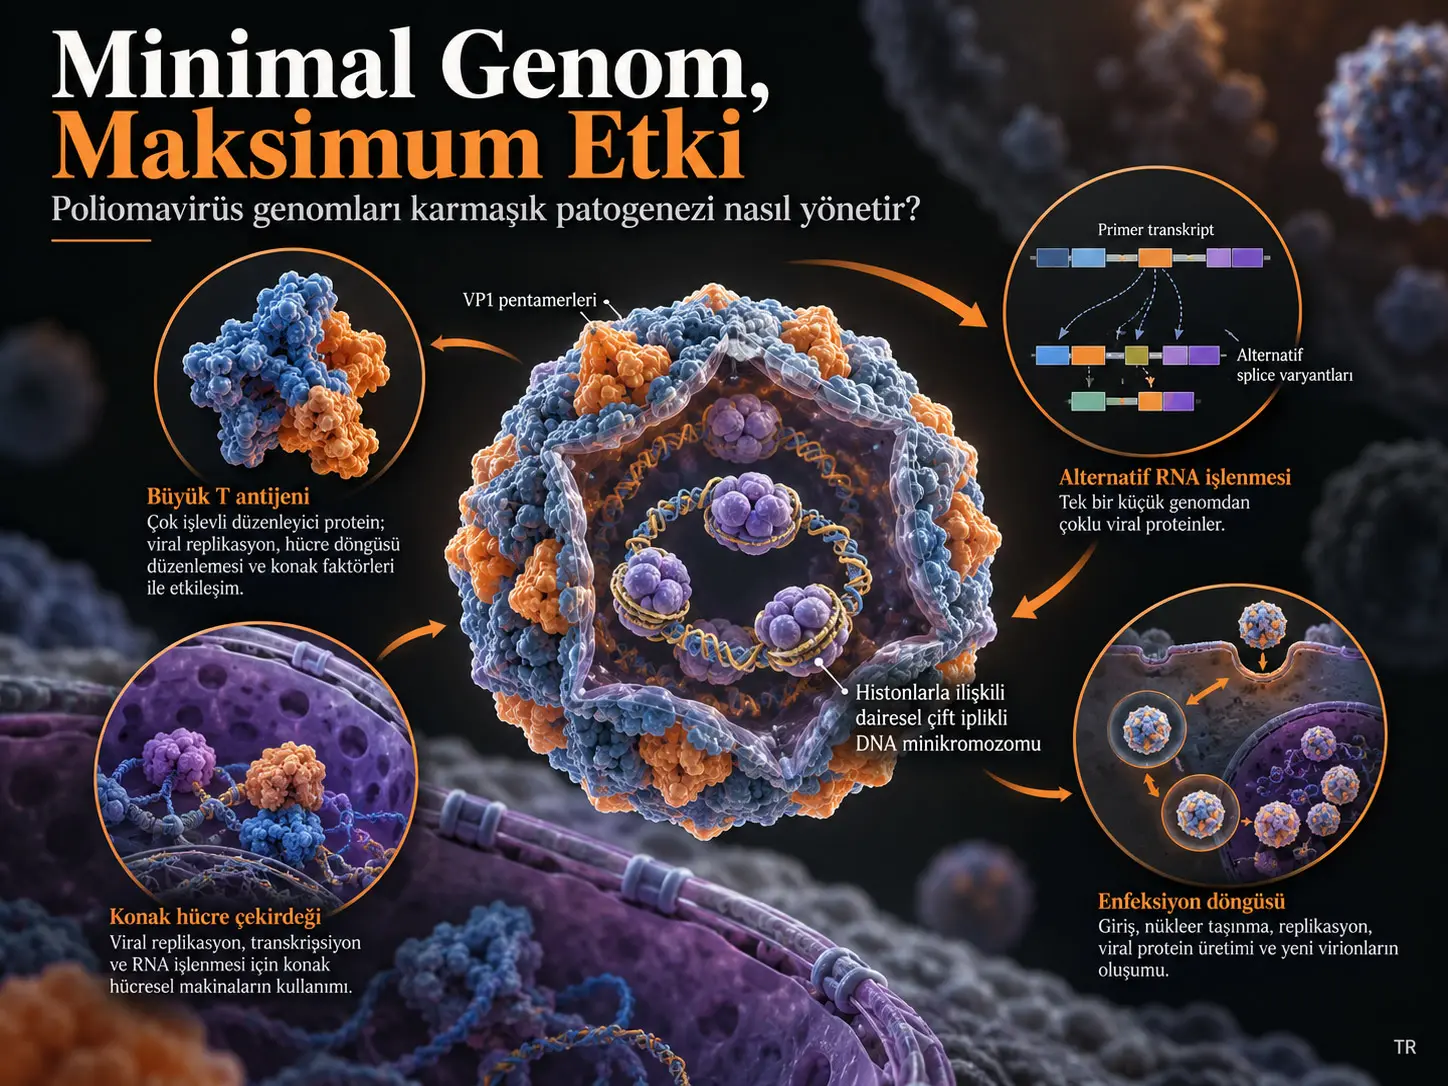
Bu bilimsel derleme, yaklaşık 5 kilobaz (kb) uzunluğunda kompakt bir DNA genomuna sahip poliomavirüslerin nasıl karmaşık hücresel etkileşimler kurabildiğini ve başarılı enfeksiyon döngüleri gerçekleştirebildiğini incelemektedir. Viral minimalizm (viral minimalism), bir virüsün sınırlı genetik bilgiyle birden fazla biyolojik işlevi gerçekleştirmek için genetik dizileri, proteinleri ve konak hücresinin mevcut moleküler altyapısını verimli biçimde kullanmasına dayanan işlevsel örgütlenme yaklaşımıdır. Michaela Lano ve Barry Milavetz, Simian virus 40 (SV40) örneğinden hareketle küçük genomun yalnız bir kısıtlama olmadığını; çok işlevli proteinler, alternatif RNA kesilip birleştirilmesi, örtüşen düzenleyici diziler ve konak hücreye ait enzimlerin kullanılması sayesinde karmaşık biyolojik süreçleri destekleyebildiğini açıklamaktadır. Derleme, yeni laboratuvar deneyleri veya klinik sonuçlar raporlamamakta; daha önce yayımlanmış moleküler viroloji araştırmalarının mekanizmalarını bir araya getirmektedir.
SV40'ın yaklaşık 5 kb uzunluğundaki çift iplikli dairesel DNA genomu, erken ve geç gen ifadesi için düzenleyici bölgeler içerir. Erken evrede büyük T antijeni (Large T antigen) ve küçük t antijeni (small t antigen) gibi proteinler üretilirken geç evrede VP1, VP2 ve VP3 başta olmak üzere virüs parçacığının oluşumunda görev alan yapısal proteinler sentezlenir. Büyük T antijeni, viral DNA replikasyonunun başlamasında, viral gen ifadesinin düzenlenmesinde ve konak hücre döngüsünün değiştirilmesinde merkezî rol üstlenir. Viral DNA'nın konak histonlarıyla minikromozom halinde paketlenmesi, kromatin üzerinden epigenetik düzenlemeye olanak verir. VP1 pentamerlerinin kendi kendine organize olabilmesi ise karmaşık ve virüse özgü bir genom paketleme makinesine duyulan gereksinimi azaltır. Bununla birlikte genomun küçük olması, poliomavirüslerin konak hücre mekanizmalarına yüksek düzeyde bağımlı olması anlamına gelir. Derlemenin temel sonucu, genom ekonomisinin biyolojik işlevleri yoğunlaştırırken aynı zamanda konak uyumluluğu ve mutasyon duyarlılığı açısından ödünleşmeler oluşturmasıdır.
Az sayıda genle karmaşık biyolojik işlevler gerçekleştirmek
Virüslerin genom büyüklükleri ve kodladıkları protein sayıları birbirinden önemli ölçüde farklıdır. Bazı virüsler yüzlerce gen içerirken bazıları çok daha sınırlı bir genetik repertuvarla başarılı biçimde çoğalabilir.
Poliomavirüsler, bu ikinci grubun dikkat çekici örneklerindendir. Polyomaviridae ailesinin üyeleri, çoğunlukla yaklaşık 5 kb uzunluğunda çift iplikli DNA genomuna sahip, zarfsız virüslerdir.
Kaynak çalışmanın merkezindeki SV40, doğal olarak insan dışı primatları enfekte eden bir poliomavirüstür. SV40'ın yaklaşık 5 kb'lık genomu, konak hücre içinde çok aşamalı bir enfeksiyon döngüsünü yönetebilecek genetik ve düzenleyici bilgiyi barındırmaktadır.
Burada bilimsel olarak önemli olan, viral genomun hücresel bir organizmanın genomu gibi bütün gerekli proteinleri tek başına kodlamamasıdır. Virüs, birçok işlev için hücrede zaten bulunan moleküler mekanizmalara bağımlıdır.
Dolayısıyla poliomavirüslerin genetik ekonomisi iki tamamlayıcı yaklaşıma dayanır: virüsün kendi proteinlerinin birden fazla görev üstlenmesi ve viral genomda kodlanmayan birçok işlevin konak hücrenin moleküler altyapısıyla gerçekleştirilmesi.
Poliomavirüsler küçük genomlarla nasıl karmaşık enfeksiyon süreçleri yürütür?
Poliomavirüsler, yaklaşık 5 kb uzunluğundaki çift iplikli DNA genomlarının kapasitesini çok işlevli viral proteinler, alternatif RNA işlenmesi, örtüşen cis-düzenleyici diziler ve konak hücreye ait replikasyon, transkripsiyon ve kromatin mekanizmaları sayesinde genişletir. SV40 örneğinde büyük T antijeni birçok düzenleyici ve replikatif işlevi bir arada üstlenirken VP1, VP2 ve VP3 gibi sınırlı sayıdaki kapsid proteinleri yeni virüs parçacıklarının oluşmasını destekler. Bu mekanizmalar küçük bir genomun karmaşık bir enfeksiyon döngüsünü yönetebilmesini açıklamaktadır; ancak genomun küçük olması, virüsün konak hücreden bağımsız çalıştığı anlamına gelmez.
Genom ekonomisi ile işlevsel karmaşıklık arasındaki ilişki
Genom ekonomisi, belirli bir biyolojik işlevin gerçekleştirilmesi için gerekli genetik kodlama kapasitesinin verimli kullanılmasını ifade eder.
SV40'ta aynı protein birden fazla moleküler süreçte görev alabilir. Aynı DNA bölgesi birden fazla düzenleyici işleve katkıda bulunabilir. Ayrıca konak hücrenin RNA polimerazları, DNA polimerazları ve RNA işleme sistemleri viral enfeksiyonun farklı aşamalarında kullanılabilir.
Bu durum, genetik kodlama kapasitesinin her moleküler işlev için ayrı bir viral gen bulundurulmadan kullanılabilmesini sağlar.
Ancak genetik ekonominin avantajları ve sınırlılıkları birbirinden ayrılmalıdır. Çok işlevli bir protein üzerinde gerçekleşen mutasyon, yalnız tek bir görev yerine aynı proteinin desteklediği birden fazla biyolojik süreci etkileyebilir.
Poliomavirüslerin evrimsel geçmişi
Derleme, poliomavirüslerin konaklarıyla uzun süreli evrimsel ilişkiler kurduğuna ilişkin önceki filogenetik araştırmaları değerlendirmektedir.
Kaynakta aktarılan evrimsel çalışmalar, poliomavirüslerin yaklaşık 500 milyon yıllık bir evrimsel geçmişe sahip olabileceğine işaret etmektedir.
Bu değer, Lano ve Milavetz'in yeni tarihleme analizi sonucu değildir. Daha önce yayımlanmış filogenetik araştırmaların bulgularına dayanmaktadır.
Uzun evrimsel geçmiş, poliomavirüslerin farklı konak türleriyle uyumlu enfeksiyon stratejileri geliştirebildiğini göstermektedir. Bununla birlikte her poliomavirüs türünün aynı konak aralığına veya aynı patojeniteye sahip olduğu sonucunu desteklemez.
İnsan poliomavirüslerinde seropozitiflik
Seropozitiflik, bir kişinin kanında belirli bir patojene karşı antikorların saptanması durumudur. Seropozitiflik geçmiş maruziyet veya bağışıklık yanıtı hakkında bilgi verebilir; her zaman aktif enfeksiyon anlamına gelmez.
Derlemede aktarılan önceki araştırmalarda, insanların yaklaşık %50–80'inin JC veya BK poliomavirüslerine karşı seropozitif olabileceği belirtilmektedir.
Bu oran, bütün ülkeler, yaş grupları ve örneklem toplulukları için tek bir evrensel seroprevalans değeri değildir. Kaynakta başvurulan epidemiyolojik çalışmaların kapsamı içinde değerlendirilmelidir.
SV40 için ise rhesus makakları ve babunlar dahil belirli tutsak insan dışı primat popülasyonlarında yüksek seropozitiflik oranları aktarılmaktadır.
SV40 ile insan poliomavirüsleri arasındaki ayrım
SV40'ın doğal konakları insan dışı primatlardır. Bu nedenle SV40, doğal insan poliomavirüsü olarak sınıflandırılmaz.
İnsan poliomavirüsleri arasında BK virüsü, JC virüsü ve Merkel hücre poliomavirüsü bulunmaktadır.
Bazı insan poliomavirüsleri, özellikle bağışıklık sistemi baskılanmış bireylerde ciddi hastalıklarla ilişkilidir. BK virüsü böbrek ve idrar yolu dokularıyla, JC virüsü ise belirli nörolojik hastalıklarla ilişkili klinik bağlamlarda önem kazanabilir.
Merkel hücre poliomavirüsü, Merkel hücreli karsinomla ilişkili bir insan poliomavirüsüdür.
SV40 ise insanlarda özellikle geçmişte kontamine poliomiyelit aşılarına bağlı maruziyet nedeniyle araştırılmıştır. Derleme bu tarihsel olaya değinmektedir; ancak insanlarda belirli kanserlerin SV40 nedeniyle oluştuğunu ortaya koyan yeni bir klinik çalışma sunmamaktadır.
Kalıcılık ve latent enfeksiyon
Bazı poliomavirüsler konak dokularında uzun süre bulunabilir ve uygun koşullarda yeniden aktifleşebilir.
Latent enfeksiyon, viral genomun konakta bulunmasına karşın tam üretken enfeksiyon döngüsünün sürekli gerçekleşmediği durumlardan biridir. Persistan enfeksiyon ise viral materyalin veya enfeksiyonun uzun süre devam edebilmesini ifade eder.
Derleme özellikle BK ve JC virüsleri için kalıcılık ve yeniden aktivasyon olasılığına dikkat çekmektedir.
Bu biyolojik özellikler, poliomavirüslerin yayılımı ve enfeksiyonun sürekliliği bakımından önemlidir. Ancak bütün poliomavirüslerin aynı latent enfeksiyon programını kullandığı varsayılmamalıdır.
SV40 virionunun fiziksel yapısı
Virion, hücre dışındaki tamamlanmış virüs parçacığıdır.
SV40 virionu, lipid zarf taşımayan bir protein kapsidi ve bu kapsidin içerisinde bulunan çift iplikli dairesel DNA genomundan oluşur.
Genom, konak hücre kaynaklı histonlarla ilişkili olduğu için çıplak DNA halinde değil, kromatin benzeri bir yapı içinde bulunmaktadır.
Kapsidin temel yapısal proteini VP1'dir. VP1 proteinleri beşli birlikler, yani pentamerler oluşturur.
VP2 ve VP3 ise kapsidin iç bölgelerinde yer alan ve kapsid bütünlüğüne, genomun korunmasına ve enfeksiyonun farklı aşamalarına katkıda bulunan yardımcı yapısal proteinlerdir.
SV40'ın zarfsız olması, virüsün çevresel koşullara dayanıklılığı üzerinde etkili olabilir. Derlemede zarfsız kapsid yapısı özellikle ısı gibi çevresel bozulma etkenlerine karşı belirli bir dirençle ilişkilendirilmektedir.
Bu özellik mutlak çevresel dayanıklılık olarak yorumlanmamalıdır; viral enfeksiyözlük çevresel koşullara bağlı olarak azalabilir.
SV40'ın hücreye girişinde GM1 reseptörünün rolü
SV40'ın hücreye girişinde viral kapsid proteini VP1 ile konak hücre yüzeyindeki GM1 gangliozidi arasındaki etkileşim önemlidir.
Gangliozidler, hücre zarında bulunan ve bazı hücresel tanıma ile sinyal süreçlerine katkıda bulunan glikolipitlerdir.
SV40, GM1 ile etkileşim kurarak kaveola aracılı endositozla hücre içine alınabilir.
Endositoz, hücrenin dış ortamındaki belirli maddeleri hücre zarı üzerinden içeri almasını sağlayan taşıma sürecidir.
Kaynak Şekil 1, virüsün hücre yüzeyinden endozomal bölmelere, oradan endoplazmik retikuluma ve ardından çekirdeğe uzanan hücre içi taşınma yolunu açıklamaktadır.
Endoplazmik retikulumda kapsidin kısmen açılması
Endoplazmik retikulum (ER), hücre içinde proteinlerin işlenmesi ve çeşitli moleküler süreçlerin yürütüldüğü zarlı bir organeldir.
SV40, hücreye alındıktan sonra endozomal bölmeler aracılığıyla ER'ye taşınır. Bu aşamada kapsidin kısmi çözülmesi gerçekleşir.
Viral parçacığın kontrollü biçimde açılması, genomun sonraki hücre içi taşıma ve replikasyon aşamalarına ulaşabilmesi için önemlidir.
Derleme, bu süreçte hücrenin ER ile ilişkili protein kalite kontrol ve taşınma mekanizmalarının kullanıldığını belirtmektedir.
Virüsün hücreye girişinde kendi kodladığı geniş bir taşıma proteinleri setine ihtiyaç duymaması, genom ekonomisinin hücre içi taşınma düzeyindeki örneğidir.
SV40 büyük T antijeni neden çok işlevli bir viral proteindir?
SV40 büyük T antijeni (Large T antigen), viral DNA replikasyon başlangıç bölgesini tanıma, çift iplikli DNA'nın açılmasını sağlama, konak replikasyon proteinlerini toplama, erken gen ifadesini baskılama ve konak hücre döngüsünü değiştirme işlevlerini bir arada gerçekleştiren çok işlevli bir viral düzenleyici proteindir. Bu protein, SV40'ın sınırlı genomunda çok sayıda ayrı düzenleyici ve replikatif protein kodlama gereksinimini azaltır; ancak etkileri konak hücrenin moleküler mekanizmalarına bağlıdır.
Erken transkripsiyonun başlaması
SV40 genomu hücre çekirdeğine ulaştığında erken genlerin transkripsiyonu başlar.
Transkripsiyon, DNA dizisindeki genetik bilginin RNA'ya aktarılması sürecidir.
SV40, erken transkripsiyon için konak hücreye ait RNA polimeraz II (RNAPII) sistemini kullanır.
Erken promotör bölgesi, viral genomun kodlama yapmayan düzenleyici alanı içinde yer alır.
Kaynakta bu bölgede GC bakımından zengin diziler, art arda tekrarlanan 72 baz çifti (bp) uzunluğundaki düzenleyici diziler ve Sp1 ile AP-1 gibi transkripsiyon faktörlerine bağlanma bölgeleri bulunduğu belirtilmektedir.
Bu düzenleyici öğeler, sınırlı bir DNA alanının erken gen ifadesini etkin biçimde denetlemesini sağlar.
Büyük T ve küçük t antijenlerinin üretilmesi
Erken promotörden sentezlenen öncül RNA, alternatif kesilip birleştirilme süreçleriyle farklı olgun mRNA türlerine dönüştürülebilir.
Bu mRNA türlerinden büyük T antijeni ve küçük t antijeni gibi erken viral proteinler üretilir.
İki protein de erken gen bölgesiyle ilişkili olmasına rağmen aynı biyolojik görevi yerine getiren özdeş ürünler değildir.
Büyük T antijeni özellikle viral DNA replikasyonunun başlatılması ve hücresel düzenleyici süreçlerin değiştirilmesi açısından öne çıkar.
Derlemenin ana mekanik açıklaması büyük T antijeni üzerinde yoğunlaşmaktadır. Küçük t antijeninin bütün moleküler etkileşimleri aynı ayrıntıda çözümlenmemiştir.
Büyük T antijeni ve DNA replikasyon başlangıcı
SV40'ın DNA replikasyonu, viral genomdaki tanımlanmış replikasyon başlangıç bölgesinde başlatılır.
Büyük T antijeni bu bölgeye bağlanarak DNA çift sarmalının yerel olarak açılmasını sağlar.
Büyük T antijeninin helikaz işlevi, çift iplikli DNA'nın replikasyon için ayrılmasına katkıda bulunur.
Bu süreçte konak hücreden DNA polimeraz alfa–primaz kompleksi, replikasyon proteini A ve topoizomerazlar gibi faktörler kullanılır.
DNA polimeraz, yeni DNA zincirinin sentezlenmesinde görev alırken primaz başlangıç için gerekli kısa nükleik asit parçalarını oluşturur. Replikasyon proteini A açılmış DNA bölgelerinin yönetilmesinde, topoizomerazlar ise replikasyon sırasında DNA'nın topolojik gerilimlerinin kontrolünde görev alır.
Replikasyon başlangıç bölgesinden iki yönlü replikasyon çatalları oluşturulur ve viral DNA'nın kopyalanması gerçekleşir.
SV40'ın kendi genomunda bütün bu işlevler için ayrı replikasyon enzimleri kodlamaması, çok işlevli viral düzenleme ile konak enzimlerinin birlikte kullanılmasına dayanır.
Konak hücre döngüsünün değiştirilmesi
Büyük T antijeni yalnız viral DNA üzerinde görev almaz. Konak hücrenin çoğalma ve DNA sentezi süreçlerini düzenleyen proteinlerle de etkileşir.
Derleme, büyük T antijeninin p53 ve retinoblastom protein ailesi (pRb) üyeleri gibi hücre döngüsü düzenleyicilerini etkileyebildiğini aktarmaktadır.
Bu etkileşimler, konak hücrenin DNA sentezi için elverişli S fazına girmesini destekleyebilir.
S fazı, hücre döngüsünde DNA'nın kopyalandığı aşamadır.
Viral açıdan bu değişiklik, konak hücrenin replikasyon altyapısının SV40 genomunun çoğaltılması için kullanılmasını kolaylaştırır.
Ancak hücre döngüsünün değiştirilmesi ile klinik olarak kanser oluşumu aynı biyolojik sonuç değildir. Derleme büyük T antijeninin moleküler etkilerini ele almaktadır; insanlarda SV40 kaynaklı kanser sıklığını belirleyen yeni bir epidemiyolojik çalışma değildir.
Erken gen ifadesinin baskılanması
SV40 genom replikasyonu başladıktan sonra erken gen ifadesinin sürekli aynı yoğunlukta devam etmesi gerekmez.
Büyük T antijeni viral replikasyon başlangıç ve erken promotör bölgesindeki düzenleyici dizilere bağlanarak erken transkripsiyonun baskılanmasına katkıda bulunur.
Bu düzenleyici geri besleme, enfeksiyonun erken aşamasından geç aşamasına geçişin koordinasyonunu sağlar.
Dolayısıyla büyük T antijeni, aynı enfeksiyon döngüsünde önce çoğalmaya uygun koşulları hazırlayan ve ardından erken gen ifadesini sınırlayan bir düzenleyici olarak görev alabilir.
Alternatif RNA kesilip birleştirilmesi SV40 genomunun kapasitesini nasıl artırır?
Alternatif RNA kesilip birleştirilmesi (alternative splicing), tek bir öncül RNA'daki farklı RNA bölgelerinin seçilerek birleştirilmesiyle birden fazla olgun mRNA ürününün oluşturulmasını sağlar. SV40'ta erken ve geç transkripsiyon bölgelerinden elde edilen RNA'lar farklı biçimlerde işlenerek sınırlı genom uzunluğundan farklı işlevlere sahip proteinlerin üretimi desteklenir. Geç evrede VP2, VP3 ve VP4 için belirtilen alternatif translasyon başlangıçları ise alternatif RNA kesilip birleştirilmesinden ayrı fakat genom ekonomisini tamamlayan bir mekanizmadır.
Alternatif kesilip birleştirme mekanizması
Ökaryotik hücrelerde bazı RNA transkriptleri olgun mRNA haline gelmeden önce işlenir.
Alternatif kesilip birleştirme sırasında RNA'nın farklı bölümlerinin korunması veya çıkarılması, tek bir genetik bölgeden farklı mRNA türlerinin oluşmasını sağlayabilir.
SV40, RNA'nın işlenmesi için konak hücrenin spliceosome adı verilen kesilip birleştirme kompleksini kullanır.
Böylece virüs, farklı RNA ürünlerini oluşturabilmek için her protein adına tamamen bağımsız genetik bölgeler bulundurmak zorunda kalmaz.
Geç transkripsiyon ve kapsid proteinleri
SV40 viral DNA'sının replikasyonu başladıktan sonra geç gen ifadesi etkinleşir.
Geç promotör üzerinden gerçekleştirilen transkripsiyon da konak RNA polimeraz II sistemiyle yürütülmektedir.
Bu evrede VP1, VP2 ve VP3 gibi kapsid proteinlerinin üretimi belirgin hale gelir.
Derlemede geç promotörden farklı transkripsiyon başlangıç noktaları kullanılabildiği, oluşan RNA'ların alternatif kesilip birleştirme ve poliadenilasyon süreçlerinden geçtiği açıklanmaktadır.
Poliadenilasyon, birçok ökaryotik mRNA'nın 3' ucunda poli(A) kuyruğunun oluşturulmasıyla ilişkili RNA işleme sürecidir.
Bu mekanizmalar, viral genomun sınırlı uzunluğu içinde farklı protein ürünlerinin oluşmasına yardımcı olur.
Alternatif translasyon başlangıcı ile alternatif RNA işlenmesi arasındaki fark
Alternatif RNA kesilip birleştirilmesi, öncül RNA'nın farklı biçimlerde olgunlaştırılmasıyla ilişkilidir.
Alternatif translasyon başlangıcı ise protein sentezinin aynı RNA üzerinde farklı başlangıç bölgelerinden başlatılmasıdır.
Derleme, SV40'ın VP2, VP3 ve VP4 proteinlerinin aynı RNA transkriptinden farklı translasyon başlangıç noktaları kullanılarak üretilebildiğini belirtmektedir.
Buna karşılık VP1'in ayrı biçimde kesilip birleştirilmiş bir mRNA üzerinden üretildiği açıklanmaktadır.
Bu ayrım önemlidir; çünkü bütün viral protein çeşitliliğini yalnız alternatif RNA kesilip birleştirilmesine bağlamak, kaynakta tanımlanan genetik düzenleme mekanizmalarının bir bölümünü ortadan kaldırır.
Cis-düzenleyici DNA öğeleri
Cis-düzenleyici öğeler (cis-regulatory elements), belirli genetik bölgelerin ifadesini ve DNA üzerindeki işlemleri etkileyen, aynı DNA molekülünde yer alan düzenleyici dizilerdir.
SV40 genomunun kodlama yapmayan düzenleyici bölgesinde replikasyon başlangıç noktası, erken ve geç promotörler ve çeşitli transkripsiyon faktörü bağlanma bölgeleri yoğun biçimde bir arada bulunmaktadır.
Bir DNA dizisinin farklı moleküler bağlamlarda birden fazla düzenleyici göreve katılabilmesi, genom uzunluğunun daha verimli kullanılmasını sağlar.
Büyük T antijeninin aynı düzenleyici bölgedeki farklı bağlanma noktalarıyla etkileşebilmesi, viral DNA replikasyonunun başlatılması ile erken gen ifadesinin baskılanması arasındaki bağlantıyı kurar.
Derlemenin üçüncü ana bölümü, bu yoğun cis-düzenleyici mimariyi poliomavirüs minimalizminin temel stratejilerinden biri olarak ele almaktadır.
Viral minikromozomun yapısı
Minikromozom (minichromosome), küçük ve dairesel viral DNA genomunun histon proteinleriyle ilişkili biçimde kromatin yapısı oluşturduğu nükleoprotein düzenidir.
SV40'ın çift iplikli DNA'sı, konak hücre kaynaklı histonlar üzerinde düzenlenir.
Bu özellik viral genomun yalnız paketlenmesini değil, hangi DNA bölgelerine RNA polimerazların ve replikasyon faktörlerinin erişebileceğini de etkiler.
Dolayısıyla minikromozom, viral DNA'nın pasif bir taşıma biçimi değil, gen ifadesinin ve replikasyonun düzenlendiği dinamik yapıdır.
Epigenetik düzenleme
Epigenetik düzenleme, DNA nükleotit dizisi değiştirilmeden kromatin yapısı veya kromatinle ilişkili kimyasal işaretler üzerinden gen ifadesinin değişebilmesini sağlayan süreçleri kapsar.
Derlemede SV40 kromatini üzerinde histon modifikasyonları ve nükleozom yerleşiminin erken ve geç gen ifadesinin düzenlenmesiyle ilişkili olduğu açıklanmaktadır.
Özellikle H3 ve H4 histonlarının asetilasyonu, etkin transkripsiyon bölgeleriyle ilişkilendirilmiştir.
Kaynakta aktarılan önceki çalışmalar, asetillenmiş H3'ün RNA polimeraz II'nin sonraki yerleşimini öngörmeye yardımcı olabileceğini; H3 ve H4 asetilasyonunun aktif gen ifadesiyle ilişkili bulunduğunu göstermektedir.
H3K9me1 ve H3K9me3 işaretleri ise RNA polimeraz II bağlanmasının baskılanmasıyla ilişkilendirilmektedir.
Bu işaretler kendi başlarına bütün transkripsiyon düzenini açıklayan bağımsız nedenler olarak değerlendirilmemelidir. Derleme, histon işaretleri ve kromatin durumları ile gen ifadesi arasındaki moleküler ilişkileri sentezlemektedir.
Nükleozom yerleşimi ve DNA'ya erişim
Nükleozom, DNA'nın histon proteinleri çevresinde düzenlendiği temel kromatin birimidir.
SV40 minikromozomunda nükleozomlar rastgele bir dağılımla ele alınmaz. Düzenleyici bölgenin yakınındaki konumları, DNA üzerinde hangi dizilerin erişilebilir olduğunu etkileyebilir.
Kaynak, viral replikasyon başlangıç noktası ve iki yönlü promotörleri kapsayan bölgede nükleozomsuz alanın korunduğunu, komşu nükleozomların ise düzenleyici bölgeyi çevrelediğini açıklamaktadır.
Enfeksiyonun farklı aşamalarında bu nükleozomların konumları değişebilir.
Konak hücreye ait kromatin yeniden düzenleme mekanizmaları ve büyük T antijeni, bu dönüşümlerde rol oynar.
Bu nedenle SV40, kendi kromatin düzenleyici enzimlerini geniş bir repertuvar halinde kodlamadan konak hücrenin epigenetik sistemini kullanabilmektedir.
Kapsid oluşumunda VP1 pentamerleri
Viral DNA kopyalandıktan ve yapısal proteinler üretildikten sonra yeni SV40 parçacıklarının oluşturulması gerekir.
Bu işlem kapsid oluşturma ve genomun kapsid içine alınması (encapsidation) sürecidir.
SV40'ın ana kapsid proteini VP1, kendi kendine pentamerler oluşturabilir.
Bu pentamerlerin yeni sentezlenmiş viral minikromozom çevresinde bir araya gelmesiyle kapsid düzeni oluşur.
VP2 ve VP3 gibi yardımcı kapsid proteinleri, kapsidin iç organizasyonuna ve virüs parçacığının enfeksiyonla ilişkili özelliklerine katkıda bulunur.
Kaynağın açıklamasına göre SV40 kapsid oluşumu, önceden tamamen oluşturulmuş boş bir kapsidin içine DNA'nın güçlü bir motorla itilmesi biçiminde ele alınmamaktadır.
Bunun yerine VP1 pentamerlerinin viral nükleoprotein kompleksi çevresinde giderek bir araya gelmesi önem taşır.
Bu düzen, özel ATP kullanan genom paketleme motorlarına duyulan gereksinimi azaltır.
Konak histonlarının viral DNA üzerinde bulunmaya devam etmesi de ilave viral DNA yoğunlaştırma faktörlerinin kodlanma gereksinimini sınırlar.
Yeni virüs parçacıklarının hücreden salınması
SV40 enfeksiyon döngüsünün son aşamalarından biri, yeni oluşturulmuş virionların hücreden ayrılmasıdır.
Derleme, SV40'ın hücreden çıkışı için birbiriyle ilişkili birkaç mekanizma açıklamaktadır.
Bu mekanizmalar arasında hücre içinde büyük vakuollerin oluşması, enfeksiyon kaynaklı hücresel stres ve bazı araştırmalarda VP4 proteiniyle ilişkilendirilen zar geçirgenliği değişimleri bulunmaktadır.
Hücreden çıkış mekanizmalarının hepsi aynı düzeyde doğrulanmış değildir. Özellikle VP4'ün özgül viroporin işlevi bilimsel tartışma konusudur.
Vakuolizasyon ve hücre zarı bütünlüğü
Vakuolizasyon, hücre içinde sıvı içeren zarla çevrili boşlukların, yani vakuollerin oluşması veya büyümesidir.
SV40 enfeksiyonunda hücre içi taşıma ve zar dinamiklerindeki değişiklikler büyük vakuollerin ortaya çıkmasına katkıda bulunabilir.
Kaynak, VP1'in GM1 ile etkileşimini takiben Ras, Rac1, MKK4 ve JNK içeren hücresel sinyal yollarının etkinleşebildiğini aktarmaktadır.
Bu süreç, artmış endositoz ve endozomal bölmelerin birikmesiyle ilişkili olabilir.
Endozomların tekrar tekrar birleşmesi daha büyük vakuollerin oluşmasına yol açabilir.
Vakuollerin hücreyi doldurması, membran bütünlüğünün bozulması ve hücrenin parçalanmasıyla ilişkilendirilmektedir.
Virüsün SV40 adındaki "vacuolating" ifadesi, bu karakteristik hücresel değişimle ilişkilidir.
Hücresel stres ve ölüm yolları
SV40'ın hücre içinde çoğalması viral protein sentezini, DNA replikasyonunu ve hücresel metabolik süreçleri etkiler.
Bu etkinlikler konak hücre üzerinde çeşitli stresler oluşturabilir.
Derleme, mitokondri işlev bozukluğu, protein üretimi yükü ve DNA replikasyonu ile bağlantılı stresin hücre ölümü sinyallerini etkileyebileceğini belirtmektedir.
Apoptoz ve diğer hücre ölümü mekanizmaları, enfeksiyonun son aşamalarında viral salınmayla ilişkili olabilir.
Bu strateji yalnız SV40'a özgü değildir. Kaynak, BK, JC ve fare poliomavirüsleri için de konak hücre bileşenlerinin hasarıyla bağlantılı hücre ölümü süreçlerini tartışmaktadır.
VP4 proteini ve viroporin hipotezi
Viroporin, bazı virüsler tarafından kodlanan ve hücresel membran geçirgenliğini değiştirebilen küçük viral membran proteinleri için kullanılan bir terimdir.
SV40 VP4 proteininin hidrofobik yapısı nedeniyle hücresel zarlarla etkileşebileceği ve zar geçirgenliğini artıran gözenek benzeri yapılar oluşturabileceği önerilmiştir.
Bu öneriye göre VP4, endoplazmik retikulum, çekirdek zarı ve plazma membranı gibi hücresel zarların bütünlüğünü etkileyerek yeni virionların salınmasını kolaylaştırabilir.
Ancak kaynak, VP4'ün viroporin olarak görev yaptığı açıklamasının evrensel kabul görmediğini açıkça belirtmektedir.
Dolayısıyla VP4'ün varlığı veya işlevi hakkındaki tartışmalı noktalar, kesinleşmiş ve bütün poliomavirüslere genellenebilen mekanizmalar olarak sunulmamalıdır.
Derleme ayrıca diğer poliomavirüslerde SV40 VP4'e doğrudan benzer proteinlerin bulunmadığını belirtmektedir.
İmmün gözetimden kaçış
Konak bağışıklık sistemi viral enfeksiyonları çeşitli viral moleküller, hücresel stres işaretleri ve bağışıklık sinyal yolları üzerinden tanıyabilir.
Derleme, poliomavirüslerin sınırlı viral protein repertuvarını bağışıklık gözetiminden kaçış bakımından bir avantaj olarak tartışmaktadır.
Yazarların yorumuna göre daha az sayıda viral protein üretilmesi, bağışıklık sisteminin tanıyabileceği yabancı protein sayısının da sınırlı olmasına katkıda bulunabilir.
Ayrıca SV40'ın kaveola aracılı endositozdan yararlanması ve endoplazmik retikuluma taşınması, viral DNA'nın bazı hücresel algılama sistemleriyle karşılaşmasını azaltabilir.
Endoplazmik retikulumla ilişkili bozunma (ER-associated degradation, ERAD) benzeri konak mekanizmalarının kullanılması da hücre içi taşınma ve kapsid çözülmesi bakımından önemlidir.
Derleme bu süreçleri, güçlü inflamatuvar tepki oluşturmadan hücreye giriş ve erken replikasyon evrelerinin gerçekleştirilmesi açısından değerlendirmektedir.
Ancak az sayıda viral proteinin bulunması bütün konaklarda daha zayıf bağışıklık yanıtının kesin olarak oluştuğunu göstermez. Yazarların sunduğu açıklama, önceki mekanistik araştırmaların kavramsal sentezidir.
SV40'ın MHC sınıf I düzeylerini düşürmek için özelleşmiş geniş bir protein repertuvarına sahip olmadığı da kaynakta belirtilmektedir.
Bu nokta, poliomavirüslerin bağışıklıktan kaçmak için her zaman çok sayıda ayrı immünmodülatör protein kodlamak zorunda olmadıkları görüşünü desteklemektedir.
Çalışmanın Yöntemi ve Bulguları
Araştırma yöntemi ve kanıt türü
Lano ve Milavetz'in çalışması deneysel araştırma değil, mekanizma odaklı bilimsel derlemedir.
Yazarlar SV40 ve diğer poliomavirüslerin genom düzeni, virion yapısı, konak hücreye giriş, erken ve geç transkripsiyon, DNA replikasyonu, kapsid oluşumu, bağışıklık gözetiminden kaçış ve hücreden çıkış mekanizmalarına ilişkin yayımlanmış araştırmaları değerlendirmiştir.
Derlemenin kanıt temeli, moleküler viroloji, hücre biyolojisi, genom organizasyonu, epigenetik düzenleme ve viral protein işlevleri üzerine daha önce yayımlanan çalışmalardır.
Yeni hayvan örneklemi, insan kohortu, hücre kültürü deney serisi, virüs genomu dizileme kampanyası veya klinik performans ölçümü bu makalede raporlanmamıştır.
Çalışma sistematik derleme metodolojisiyle gerçekleştirilmiş bir nicel meta-analiz değildir. Kaynakta yeni etki büyüklüğü, güven aralığı, istatistiksel anlamlılık hesabı veya ortak deneysel veri seti sunulmamaktadır.
Kaynak Şekil 1'in bilimsel işlevi: Enfeksiyon döngüsü
Kaynak Şekil 1, SV40 enfeksiyon döngüsünü 11 aşamalı biyolojik süreç olarak göstermektedir.
| Aşama | Temel olay | Görev alan viral veya hücresel bileşen |
|---|---|---|
| 1 | Konak hücre yüzeyine bağlanma | VP1 ve GM1 gangliozid reseptörü |
| 2 | Endositoz | Kaveola aracılı hücre içi alım |
| 3 | Endoplazmik retikuluma taşınma ve kapsidin kısmen açılması | Hücresel taşıma ve ER işleme sistemleri |
| 4 | Viral genomun çekirdeğe ulaşması | Hücresel nükleer taşıma mekanizmaları |
| 5 | Erken transkripsiyon | RNA polimeraz II; büyük T ve küçük t antijeni mRNA'ları |
| 6 | Erken proteinlerin translasyonu | Konak hücrenin protein sentez mekanizmaları |
| 7 | Viral DNA replikasyonu | Büyük T antijeni ve konak DNA replikasyon proteinleri |
| 8 | Geç transkripsiyon | Geç promotör, RNA polimeraz II ve yapısal protein mRNA'ları |
| 9 | Yapısal proteinlerin translasyonu | VP1, VP2 ve VP3 sentezi |
| 10 | Kapsid oluşturma ve genom paketleme | VP1 pentamerleri, VP2/VP3 ve viral minikromozom |
| 11 | Yeni virionların salınması | Hücre bütünlüğünün bozulması ve ilişkili hücresel süreçler |
Şekil, enfeksiyonun biyolojik sırasını göstermektedir. Ancak farklı aşamaların ne kadar sürdüğüne ilişkin nicel zaman serisi içermemektedir. Şemadaki aşama numaraları deneysel süre, replikasyon hızı veya virüs sayısı olarak yorumlanmamalıdır.
Kaynak Şekil 2'nin bilimsel işlevi: Virion ve genom organizasyonu
Kaynak Şekil 2 iki farklı yapısal ölçeği bir araya getirmektedir.
Şekil 2a, tamamlanmış SV40 virionunun dış protein kapsidini, VP1 pentamerlerinin düzenini, VP2 ve VP3 proteinlerini ve kapsid içindeki histonlarla ilişkili viral DNA'yı göstermektedir.
Şekil 2b ise dairesel viral genom üzerindeki düzenleyici bölgeyi, erken ve geç transkripsiyon bölgelerini ve protein kodlama alanlarını göstermektedir.
Şekil 2b açıklamasında büyük T antijeni, küçük t antijeni, VP1, VP2, VP3, VP4 ve LP1 (agnoprotein) adları geçmektedir.
Bu iki ölçeğin birlikte gösterilmesinin bilimsel önemi, küçük bir genomun sınırlı sayıdaki yapısal proteini ve düzenleyici öğeyi kullanarak tamamlanmış virion oluşturabilmesidir.
Kaynak içi adlandırma notu: Makalenin girişindeki “altı protein” ifadesiyle Şekil 2b'de listelenen protein adlarının sayısı tam olarak örtüşmemektedir. Kaynak proteinlerin hangi sayım ölçütüyle sınıflandırıldığını bu farkı giderecek biçimde açıklamamaktadır. Dolayısıyla görsel açıklamada belirtilen adlar korunmuş, sayısal uyuşmazlık sessizce değiştirilmemiştir.
SV40 proteinlerinin başlıca işlevleri
| Protein | Temel işlev veya kaynakta belirtilen ilişki | Bilimsel yorum sınırı |
|---|---|---|
| Büyük T antijeni | DNA replikasyonu, helikaz etkinliği, transkripsiyon düzenlenmesi ve hücre döngüsü kontrolü | İşlevlerin önemli bölümü konak hücre proteinleriyle etkileşime bağlıdır. |
| Küçük t antijeni | Erken viral protein; hücresel düzenleyici süreçlerle ilişkili | Derleme bütün moleküler etkileşimlerini aynı ayrıntıda değerlendirmemektedir. |
| VP1 | Kapsid pentamerlerinin oluşumu ve GM1 reseptörüne bağlanma | Yapısal kapsid işlevi ile konak hücreye girişteki rolü ayrılmalıdır. |
| VP2 | Yardımcı kapsid proteini, genom ve kapsid etkileşimleri, hücre içi süreçler | Birden fazla yapısal ve hücresel işlevle ilişkilidir. |
| VP3 | Yardımcı kapsid proteini, kapsid bütünlüğü ve hücre içi etkileşimler | VP2 ile bazı görevler örtüşebilir; proteinler özdeş değildir. |
| VP4 | Önerilen viroporin ve hücresel membran geçirgenliğiyle ilişkili işlev | Viroporin mekanizması bilimsel tartışma konusudur. |
| LP1 / agnoprotein | Kaynak Şekil 2b'de geç gen bölgesiyle ilişkili ürün olarak adlandırılır. | Makale LP1'in moleküler işlevini diğer proteinler kadar ayrıntılı incelememektedir. |
Bu tablo SV40'ın bütün proteinlerinin deneysel olarak aynı çalışma içinde ölçüldüğünü göstermemektedir. Kaynak derlemede açıklanan protein görevleri ve şekillerdeki adlandırmalar üzerinden bağımsız olarak düzenlenmiştir.
Viral minimalizm stratejilerinin işlevsel karşılaştırması
| Strateji | Kullanılan moleküler mekanizma | Genom ekonomisine katkı | Bağımlılık veya sınırlılık |
|---|---|---|---|
| Çok işlevli protein | Büyük T antijeninin farklı görevleri | Birden fazla düzenleyici ve replikatif işlev tek protein içinde bütünleşir. | Protein üzerindeki değişiklikler birden fazla biyolojik süreci etkileyebilir. |
| Alternatif RNA işlenmesi | Farklı kesilip birleştirme ürünleri | Sınırlı kodlama alanından farklı mRNA ürünleri elde edilir. | Konak hücrenin RNA işleme sistemi gereklidir. |
| Alternatif translasyon başlangıcı | VP2, VP3 ve VP4 ile ilişkili başlangıç noktaları | Aynı RNA üzerinden farklı protein ürünlerinin oluşturulmasına katkı sağlar. | Protein sentezi ve düzenlenmesi konak sistemine bağlıdır. |
| Cis-düzenleyici yoğunluk | Replikasyon başlangıcı, promotörler ve bağlanma bölgeleri | Bir DNA alanı farklı düzenleyici görevler üstlenir. | Düzenleyici bölgelerdeki değişiklikler birden fazla süreci etkileyebilir. |
| Kromatin kullanımı | Histon modifikasyonu ve nükleozom yerleşimi | Ayrı viral kromatin düzenleyici enzimlere duyulan gereksinim azalır. | Konak epigenetik mekanizmalarına bağımlılık oluşur. |
| Konak replikasyon sisteminin kullanılması | DNA polimerazlar, primaz, topoizomerazlar ve yardımcı faktörler | Virüse özgü geniş bir DNA sentez enzim repertuvarı gerekmez. | Uygun hücre döngüsü ve konak faktörleri gereklidir. |
| Kapsid özdüzenlenmesi | VP1 pentamerleri ve yardımcı kapsid proteinleri | Özel paketleme mekanizmasına duyulan gereksinim azalır. | Doğru protein etkileşimleri ve nükleer organizasyon gereklidir. |
Genom ekonomisinin biyolojik avantajları
Derleme, sınırlı genomun viral replikasyon ve parçacık oluşturma açısından çeşitli avantajlarını tartışmaktadır.
Birincisi, kopyalanması gereken genetik materyal miktarının sınırlı olması DNA replikasyonunun gerektirdiği moleküler kaynakları azaltabilir.
İkincisi, çok işlevli proteinler ayrı ayrı üretilmesi gereken viral proteinlerin sayısını azaltabilir.
Üçüncüsü, virüsün kendi replikasyon ve kromatin düzenleme proteinlerini geniş bir çeşitlilikte kodlamaması, genetik alanın başka zorunlu işlevler için kullanılmasına olanak verebilir.
Dördüncüsü, VP1 gibi kapsid proteinlerinin kendiliğinden düzenlenmesi virion oluşumunun daha sınırlı bir protein repertuvarıyla tamamlanmasını sağlayabilir.
Beşincisi, konak hücreye ait düzenleme sistemlerinin kullanılması, viral enfeksiyonun farklı aşamalarının mevcut hücresel mekanizmalarla bütünleştirilmesine yardımcı olabilir.
Bu avantajlar, derlemede mekanistik ve evrimsel çerçevede açıklanmaktadır. Kaynak tüm avantajları ortak bir deneyde sayısal olarak karşılaştırmamıştır.
Genom ekonomisinin biyolojik sınırlılıkları
Minimal genomun sağladığı verimlilik önemli biyolojik bağımlılıklar oluşturur.
SV40'ın replikasyonu konak hücrenin DNA polimerazlarına, transkripsiyonu RNA polimeraz II'ye, RNA işlenmesi ise konak spliceosome mekanizmasına bağlıdır.
Virüsün bu altyapıyı kullanabilmesi için uygun hücresel koşulların bulunması gerekir.
Bu durum, hangi konak türlerinin ve hangi doku tiplerinin enfeksiyon için elverişli olduğunu etkileyebilir.
İkinci sınırlılık, çok işlevli proteinler üzerindeki mutasyonların geniş etkiler oluşturabilmesidir. Büyük T antijeninin işlevindeki değişiklik, replikasyon başlangıcı, gen ifadesinin düzenlenmesi ve hücre döngüsü etkileşimlerinin birden fazlasını etkileyebilir.
Üçüncü sınırlılık, konak mekanizmalarına bağımlılığın aynı zamanda konak savunma sistemleriyle karşılaşma olasılığı yaratmasıdır.
Dolayısıyla minimalizm, tüm biyolojik koşullarda üstünlük sağlayan tek yönlü bir avantaj değildir. Genom ekonomisi ile işlevsel esneklik arasında evrimsel ödünleşmeler bulunmaktadır.
Kaynakta aktarılan seçilmiş sayısal ve yapısal bilgiler
| Parametre | Kaynak değeri | Birim veya bağlam | Bilimsel statü |
|---|---|---|---|
| SV40 genom uzunluğu | Yaklaşık 5 | kb | Bilinen genom özelliği |
| Viral DNA yapısı | Çift iplikli, dairesel | DNA genomu | Yapısal özellik |
| Girişte bildirilen protein sayısı | 6 | Kaynak girişindeki ifade | Şekil 2b'deki adlandırmayla sayım uyumsuzluğu bulunmaktadır. |
| Poliomavirüslerin evrimsel geçmişi | Yaklaşık 500 milyon | Yıl | Önceki filogenetik araştırmalardan aktarılan tahmin |
| BK veya JC seropozitifliği | Yaklaşık %50–80 | İncelenen insan popülasyonları | Önceki epidemiyolojik çalışmalardan aktarılan aralık |
| SV40 erken promotöründeki tekrar dizisi | 72 | bp | Kaynakta belirtilen genomik düzenleyici öğe |
| VP1 temel kapsid birimi | 5 | Alt birimli pentamer | Yapısal protein düzeni |
| Kaynak Şekil 1'deki süreç | 11 | Şematik aşama | Enfeksiyon döngüsünün öğretici gösterimi; zaman veya hız ölçümü değildir. |
Kaynakta bu değerleri birleştiren yeni bir istatistiksel model, bağımsız deneysel performans veri seti veya karşılaştırmalı genom optimizasyon analizi raporlanmamıştır.
Küçük genom, poliomavirüslerin bağışıklık sisteminden tamamen kaçtığını kanıtlar mı?
Hayır. Poliomavirüslerin küçük genomları ve sınırlı protein repertuvarı, belirli konaklarda bağışıklık gözetimini etkileyebilen moleküler özelliklerle ilişkilidir; ancak genomun küçük olması bütün poliomavirüslerin bağışıklık sisteminden tamamen kaçtığını kanıtlamaz. Derleme, az sayıda viral antijenin bulunması, konak hücre taşıma yollarının kullanılması ve erken enfeksiyon aşamalarında güçlü hücresel bozulmanın sınırlanması gibi mekanizmaları açıklamakta; bunların bağışıklık tepkisini hangi oranda azalttığına ilişkin yeni bir karşılaştırmalı deney sunmamaktadır.
Çalışmanın desteklediği sonuçlar
- SV40 ve diğer poliomavirüslerin sınırlı genom uzunluğuna rağmen karmaşık enfeksiyon döngüleri gerçekleştirebildiği bilimsel literatürle desteklenmektedir.
- Büyük T antijeni viral DNA replikasyonunun başlamasında ve konak hücre düzenleyici mekanizmalarının değiştirilmesinde merkezî rol üstlenmektedir.
- Alternatif RNA kesilip birleştirilmesi ve alternatif translasyon başlangıcı, sınırlı kodlama kapasitesinden farklı protein ürünlerinin oluşmasını desteklemektedir.
- SV40 genomunun cis-düzenleyici öğeleri aynı DNA bölgesinde birden fazla genetik kontrol işlevini bir araya getirmektedir.
- Viral DNA'nın konak histonlarıyla minikromozom oluşturması, gen ifadesinin epigenetik düzeyde düzenlenmesine katkıda bulunmaktadır.
- VP1 pentamerlerinin özdüzenlenmesi, sınırlı protein repertuvarıyla kapsid oluşumunu desteklemektedir.
- Viral enfeksiyonun farklı aşamalarında konak hücrenin replikasyon, transkripsiyon ve RNA işleme mekanizmaları kullanılmaktadır.
- Genom ekonomisi, moleküler verimlilik sağlarken konak uyumluluğu ve mutasyon etkileri açısından sınırlılıklar da oluşturmaktadır.
Çalışmanın desteklemediği sonuçlar
- Bütün poliomavirüslerin aynı konaklarda aynı patojeniteye sahip olduğunu göstermez.
- SV40'ın doğal bir insan poliomavirüsü olduğunu göstermez.
- SV40'ın insanlarda belirli bir kanserin nedeni olduğunu yeni klinik verilerle kanıtlamaz.
- Yaklaşık %50–80 seropozitiflik aralığının bütün insan popülasyonlarına uygulanabileceğini göstermez.
- Poliomavirüslerin bütün bağışıklık mekanizmalarından kaçabildiğini kanıtlamaz.
- VP4'ün viroporin işlevinin bütün araştırmacılar tarafından kabul edildiğini göstermez.
- Genomun küçülmesinin her durumda daha yüksek çoğalma hızı veya bulaşıcılık oluşturacağını kanıtlamaz.
- Büyük T antijeninin bütün görevlerini konak proteinleri olmadan gerçekleştirdiğini göstermez.
- Yeni bir antiviral tedavi, aşı, tanı testi veya klinik müdahale geliştirme başarısı raporlamaz.
- Kaynağın girişindeki altı protein ifadesiyle Şekil 2b'deki protein adlandırmalarına ilişkin sayım farkını çözmez.
Derlemenin temel yöntemsel sınırlılıkları
Çalışma literatür derlemesi olduğundan açıklanan bütün mekanizmalar aynı deneysel sistemde ve aynı koşullar altında karşılaştırılmamıştır.
SV40'a ilişkin moleküler bulguların tamamı BK, JC veya Merkel hücre poliomavirüsü gibi başka aile üyelerine doğrudan genellenemez.
Özellikle konak hücre tropizmi, bağışıklık sistemiyle etkileşim ve hücreden çıkış yolları virüs türüne göre değişebilir.
Derleme, genom ekonomisinin enfeksiyon başarısını ne ölçüde artırdığını sayısal bir neden-sonuç modeliyle ölçmemektedir.
Viral minimalizmin bağışıklıktan kaçışa katkısı kavramsal ve mekanistik çerçevede değerlendirilmiştir. Yeni bir konak bağışıklığı deneyi sunulmamıştır.
VP4 viroporin mekanizması ise kaynakta açıkça bilimsel tartışma konusu olarak tanımlanmıştır. Mekanizmanın kesinleşmiş olarak sunulması, derlemenin kendi ihtiyatlı bilimsel sınırını aşacaktır.
Protein sayısı konusundaki giriş ve şekil açıklaması farklılığı, kaynağın protein repertuvarını yorumlarken dikkate alınmalıdır.
Bu sınırlılıklar, derlemenin temel bilimsel katkısını ortadan kaldırmaz. Ancak makalenin neyi açıkladığını ve hangi sorular için bağımsız deneysel doğrulama gerektiğini belirler.
Kaynak ve Yöntem Notu
Özgün çalışma: Minimal Genome, Maximal Effect: How Polyomavirus Genomes Are Capable of Complex Pathogenesis.
Yazarlar: Michaela Lano; Barry Milavetz.
Sorumlu yazar: Barry Milavetz.
Kurum: Department of Biomedical Sciences, University of North Dakota School of Medicine and Health Sciences, Grand Forks, ND 58203, USA.
Dergi: Viruses.
Yayınevi: MDPI.
Bibliyografik kayıt: Viruses 2026, 18(5), 533.
DOI: 10.3390/v18050533.
Resmî yayın bağlantısı: https://www.mdpi.com/1999-4915/18/5/533
Özel sayı: Polyomavirus.
Yayın tarihi: 1 Mayıs 2026. Makale 7 Nisan 2026'da alınmış, 28 Nisan 2026'da revize edilmiş ve 29 Nisan 2026'da kabul edilmiştir.
Kaynak türü: Hakemli bilimsel derleme (Review). Moleküler viroloji, viral genom organizasyonu, kromatin biyolojisi ve virüs–konak etkileşimlerinin mekanistik incelemesi.
Temel bilimsel yaklaşım: SV40 ve diğer poliomavirüslerin kompakt genom mimarilerinin enfeksiyon döngüsündeki işlevsel sonuçlarını, önceki moleküler araştırmalar üzerinden değerlendiren literatür sentezi.
Başlıca incelenen mekanizmalar: Konak reseptörlerine bağlanma, kaveola aracılı endositoz, endoplazmik retikulum üzerinden hücre içi taşınma, erken ve geç transkripsiyon, çift yönlü DNA replikasyonu, alternatif RNA kesilip birleştirilmesi, alternatif translasyon başlangıçları, cis-düzenleyici öğeler, viral minikromozom, histon modifikasyonları, nükleozom yerleşimi, büyük T antijeni işlevleri, kapsid oluşumu, vakuolizasyon ve bağışıklık gözetiminden kaçış.
Başlıca viral proteinler: Büyük T antijeni, küçük t antijeni, VP1, VP2, VP3 ve tartışmalı viroporin işleviyle değerlendirilen VP4. Kaynak Şekil 2b'de LP1 (agnoprotein) de adlandırılmaktadır.
Yeni deneysel veri: Çalışma yeni deneysel veri üretmemiştir.
İstatistiksel analiz: Yeni bir istatistiksel test, p değeri, etki büyüklüğü veya güven aralığı raporlanmamıştır.
Kaynak Şekil 1: SV40 enfeksiyon döngüsü. GM1'e bağlanma, hücre içi taşınma, erken transkripsiyon, viral DNA replikasyonu, geç transkripsiyon, kapsid oluşumu ve salınma aşamalarının şematik açıklaması.
Kaynak Şekil 2: SV40 virionunun kapsid ve minikromozom yapısı ile viral genomun erken, geç ve düzenleyici bölgelerinin gösterimi.
Şekil hazırlama bildirimi: Yazarlar kaynak şekillerini oluşturmak için BioRender kullandıklarını, içerikleri gözden geçirip düzenlediklerini ve yayımlanan içerikten sorumlu olduklarını bildirmiştir. Görsellerin BioRender kaynaklı olması, şekillerin yeniden kullanımında ilgili lisans şartlarının ayrıca dikkate alınmasını gerektirir.
Lisans: Creative Commons Attribution (CC BY) açık erişim lisansı. Kaynak şekillerindeki ayrı üçüncü taraf kullanım koşulları ayrıca değerlendirilmelidir.
Finansman: Çalışma, Amerika Birleşik Devletleri National Institutes of Health (NIH) bünyesindeki National Institute of General Medical Sciences tarafından 5P30GM154634-03, 1P20GM155890 ve 5P20GM139759-05 numaralı destekler kapsamında finanse edilmiştir.
Finansman bildirimi sınırı: Yayının içeriğinden yalnız yazarlar sorumludur; bildirilen görüşlerin NIH'nin resmî görüşlerini zorunlu olarak temsil etmediği belirtilmiştir.
Yazar katkıları: Kavramsallaştırma M.L. ve B.M.; yöntem M.L. ve B.M.; yazılım M.L. ve B.M.; doğrulama M.L. ve B.M.; biçimsel analiz M.L. ve B.M.; araştırma M.L. ve B.M.; kaynaklar M.L. ve B.M.; veri kürasyonu M.L. ve B.M.; özgün taslak M.L.; gözden geçirme ve düzenleme M.L. ve B.M.; görselleştirme M.L. ve B.M.; danışmanlık B.M.; proje yönetimi B.M.; finansman edinimi B.M. olarak bildirilmiştir.
Etik kurul: Uygulanabilir değil olarak bildirilmiştir.
Bilgilendirilmiş onam: Uygulanabilir değil olarak bildirilmiştir.
Veri erişilebilirliği: Yeni veri üretilmemiştir.
Çıkar çatışması: Yazarlar çıkar çatışması olmadığını beyan etmiştir.
Temel yöntemsel sınırlılık: Makale yeni deney yürütmeyen bir bilimsel derlemedir. Farklı yayınlardan aktarılan genomik, moleküler ve hücresel mekanizmalar aynı ortak deneysel düzen içinde doğrulanmamıştır.
Kaynak içi dikkat 1: Makalenin girişinde SV40 için altı protein ifadesi kullanılırken Şekil 2b açıklamasında büyük T, küçük t, VP1, VP2, VP3, VP4 ve LP1 adları bulunmaktadır. Bu sayım farklılığı kaynak dışı yorumla düzeltilmemiştir.
Kaynak içi dikkat 2: VP4'ün viroporin aracılığıyla hücreden salınmaya katkıda bulunması kaynakta önerilen ve evrensel kabul görmeyen bir mekanizmadır.
Kaynak içi dikkat 3: Bağışıklık gözetiminden kaçışa ilişkin açıklamalar derlemenin mekanistik yorumlarıdır; bu çalışmada gerçekleştirilen yeni bir bağışıklık yanıtı ölçümünün sonuçları değildir.
Bilimsel kullanım sınırı: Bu Verianla makalesi özgün derlemenin viral genom ekonomisi, çok işlevli proteinler, kromatin düzenlenmesi ve konak bağımlılığına ilişkin bilimsel mekanizmalarını bağımsız öğretici bir yapıda açıklamaktadır. Ayrıntılı deney protokolleri, özgün moleküler kanıtlar, tarihsel kaynaklar ve akademik atıf için DOI üzerinden özgün derleme ve atıf verdiği birincil araştırmalar incelenmelidir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir