

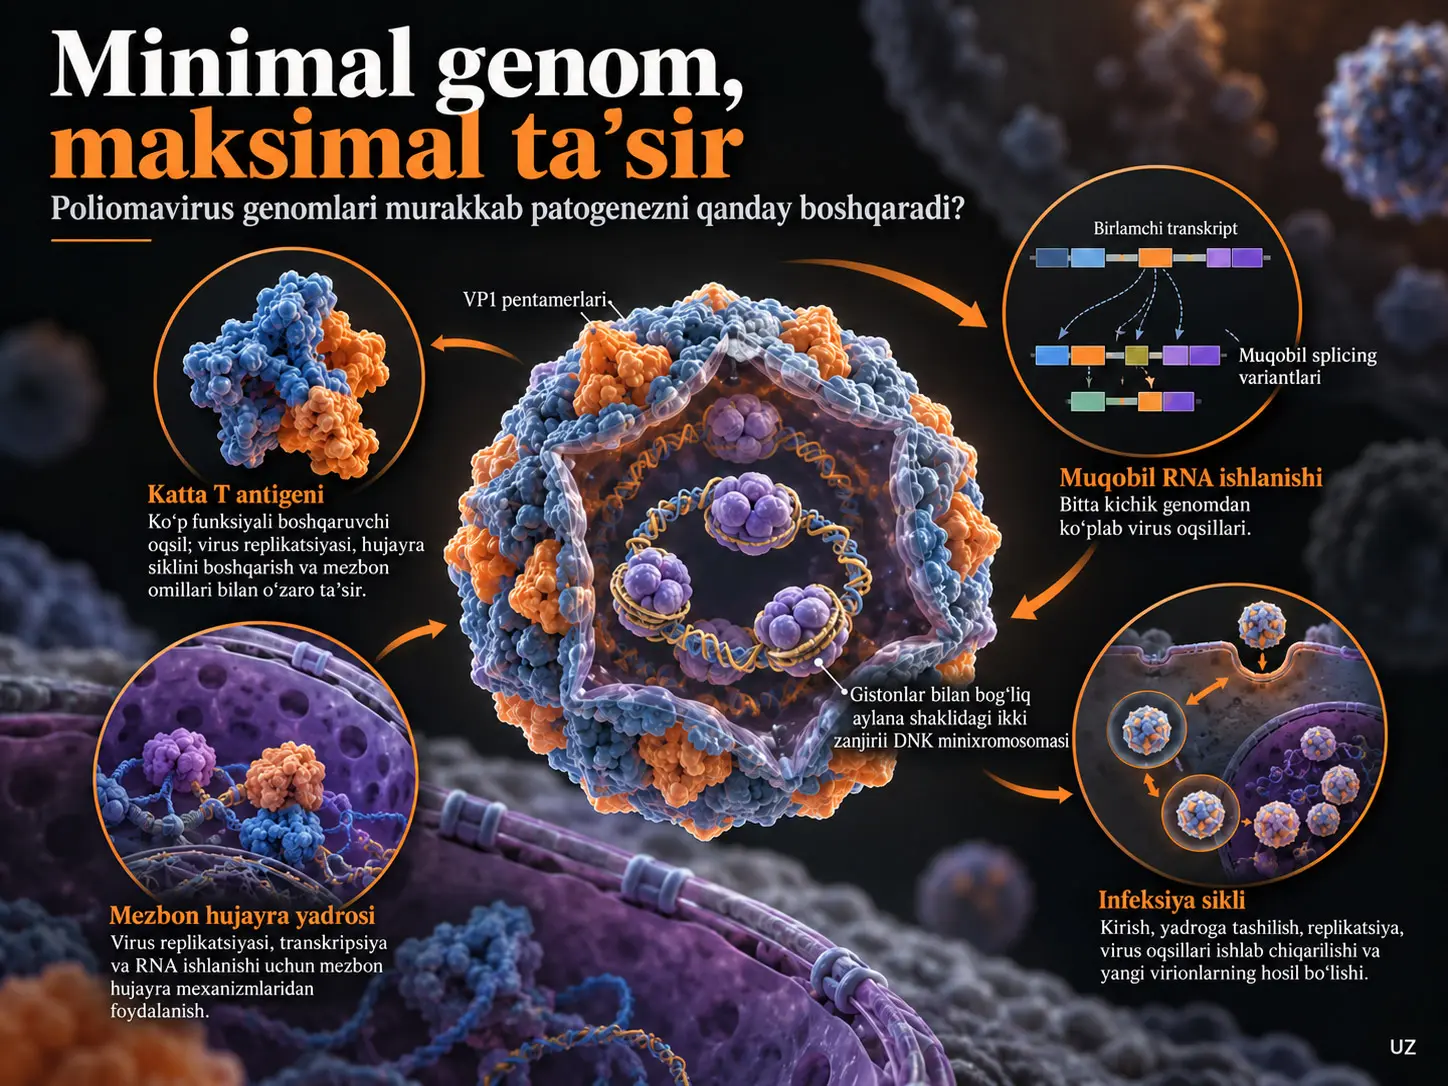
Ushbu ilmiy sharh taxminan 5 kilobaza (kb) uzunlikdagi ixcham DNK genomiga ega poliomaviruslar qanday qilib murakkab hujayraviy o‘zaro ta’sirlarni yo‘lga qo‘ya olishi va muvaffaqiyatli infeksiya sikllarini amalga oshira olishini o‘rganadi. Virus minimalizmi (viral minimalism), virusning cheklangan genetik axborot bilan bir nechta biologik funksiyani bajarish uchun genetik ketma-ketliklar, oqsillar va xo‘jayin hujayraning mavjud molekulyar infratuzilmasidan samarali foydalanishiga asoslangan funksional tashkil topish yondashuvidir. Michaela Lano va Barry Milavetz Simian virus 40 (SV40) misoliga tayangan holda kichik genom shunchaki cheklov emasligini; ko‘p funksiyali oqsillar, muqobil RNK splaysingi, ustma-ust tushuvchi regulyator ketma-ketliklar va xo‘jayin hujayra fermentlaridan foydalanish orqali murakkab biologik jarayonlarni qo‘llab-quvvatlay olishini tushuntiradi. Sharh yangi laboratoriya tajribalari yoki klinik natijalarni xabar qilmaydi; avval chop etilgan molekulyar virusologiya tadqiqotlarining mexanizmlarini birlashtiradi.
SV40 ning taxminan 5 kb uzunlikdagi ikki zanjirli halqasimon DNK genomi erta va kech gen ifodalanishi uchun regulyator hududlarni o‘z ichiga oladi. Erta bosqichda katta T antigeni (Large T antigen) va kichik t antigeni (small t antigen) kabi oqsillar ishlab chiqarilsa, kech bosqichda VP1, VP2 va VP3 jumladan virus zarrachasi hosil bo‘lishida qatnashuvchi strukturaviy oqsillar sintezlanadi. Katta T antigeni virus DNK replikatsiyasining boshlanishi, virus genlari ifodalanishining boshqarilishi va xo‘jayin hujayra siklining o‘zgartirilishida markaziy rol o‘ynaydi. Virus DNKsining xo‘jayin gistonlari bilan minixromosoma tarzida qadoqlanishi xromatin orqali epigenetik boshqaruvga imkon beradi. VP1 pentamerlarining o‘z-o‘zidan tashkil topa olishi esa murakkab va virusga xos genom qadoqlash mexanizmiga ehtiyojni kamaytiradi. Shu bilan birga, genomning kichikligi poliomaviruslarning xo‘jayin hujayra mexanizmlariga yuqori darajada bog‘liqligini anglatadi. Sharhning asosiy xulosasi shuki, genom iqtisodiyligi biologik funksiyalarni zichlashtirar ekan, ayni paytda xo‘jayin bilan moslik va mutatsiyaga sezgirlik nuqtai nazaridan murosalarni yuzaga keltiradi.
Kam sonli genlar bilan murakkab biologik funksiyalarni bajarish
Viruslarning genom o‘lchami va ular kodlaydigan oqsillar soni bir-biridan sezilarli darajada farq qiladi. Ayrim viruslarda yuzlab genlar bo‘lsa, boshqalari ancha cheklangan genetik repertuar bilan ham muvaffaqiyatli ko‘payishi mumkin.
Poliomaviruslar ana shu ikkinchi guruhning e’tiborga molik misollaridandir. Polyomaviridae oilasi vakillari, odatda, taxminan 5 kb uzunlikdagi ikki zanjirli DNK genomiga ega, qobiqsiz viruslardir.
Manba tadqiqot markazidagi SV40 tabiiy ravishda odam bo‘lmagan primatlarni zararlaydigan poliomavirusdir. SV40 ning taxminan 5 kb lik genomi xo‘jayin hujayra ichidagi ko‘p bosqichli infeksiya siklini boshqarish uchun yetarli genetik va regulyator axborotni o‘zida saqlaydi.
Bu yerda ilmiy jihatdan muhim narsa shuki, virus genomi hujayrali organizm genomidek barcha zarur oqsillarni mustaqil ravishda kodlamaydi. Virus ko‘plab funksiyalar uchun hujayrada allaqachon mavjud bo‘lgan molekulyar mexanizmlarga bog‘liq.
Shu sababli poliomaviruslarning genetik iqtisodiyligi bir-birini to‘ldiruvchi ikki yondashuvga tayanadi: virusning o‘z oqsillari bir nechta vazifani bajarishi va virus genomida kodlanmagan ko‘plab funksiyalar xo‘jayin hujayraning molekulyar infratuzilmasi orqali amalga oshirilishi.
Poliomaviruslar kichik genomlar bilan murakkab infeksiya jarayonlarini qanday amalga oshiradi?
Poliomaviruslar taxminan 5 kb uzunlikdagi ikki zanjirli DNK genomlarining imkoniyatini ko‘p funksiyali virus oqsillari, muqobil RNK ishlanishi, ustma-ust tushuvchi cis-regulyator ketma-ketliklar hamda xo‘jayin hujayraga tegishli replikatsiya, transkripsiya va xromatin mexanizmlari yordamida kengaytiradi. SV40 misolida katta T antigeni ko‘plab regulyator va replikativ vazifalarni birgalikda bajarsa, VP1, VP2 va VP3 kabi cheklangan sondagi kapsid oqsillari yangi virus zarrachalarining hosil bo‘lishini qo‘llab-quvvatlaydi. Bu mexanizmlar kichik genomning murakkab infeksiya siklini boshqara olishini tushuntiradi; ammo genomning kichikligi virus xo‘jayin hujayradan mustaqil ishlaydi degani emas.
Genom iqtisodiyligi bilan funksional murakkablik o‘rtasidagi bog‘liqlik
Genom iqtisodiyligi muayyan biologik funksiyani bajarish uchun zarur genetik kodlash imkoniyatidan samarali foydalanishni anglatadi.
SV40 da bir oqsil bir nechta molekulyar jarayonda qatnashishi mumkin. Bir DNK hududi bir nechta regulyator funksiyaga hissa qo‘shishi mumkin. Bundan tashqari, xo‘jayin hujayraning RNK polimerazalari, DNK polimerazalari va RNKni qayta ishlash tizimlari virus infeksiyasining turli bosqichlarida ishlatilishi mumkin.
Bu holat har bir molekulyar funksiya uchun alohida virus geni bo‘lmasdan turib genetik kodlash imkoniyatidan foydalanishga imkon beradi.
Biroq genetik iqtisodiylikning afzalliklari va cheklovlari bir-biridan ajratilishi kerak. Ko‘p funksiyali oqsilda yuz bergan mutatsiya faqat bitta vazifani emas, balki o‘sha oqsil qo‘llab-quvvatlaydigan bir nechta biologik jarayonni ta’sirlantirishi mumkin.
Poliomaviruslarning evolyutsion tarixi
Sharh poliomaviruslarning xo‘jayinlari bilan uzoq muddatli evolyutsion munosabatlar o‘rnatganiga oid avvalgi filogenetik tadqiqotlarni baholaydi.
Manbada keltirilgan evolyutsion tadqiqotlar poliomaviruslar taxminan 500 million yillik evolyutsion tarixga ega bo‘lishi mumkinligini ko‘rsatadi.
Bu qiymat Lano va Milavetzning yangi sanalash tahlili natijasi emas. U avval chop etilgan filogenetik tadqiqotlarning natijalariga asoslanadi.
Uzoq evolyutsion tarix poliomaviruslar turli xo‘jayin turlari bilan mos infeksiya strategiyalarini rivojlantira olganini ko‘rsatadi. Biroq bu har bir poliomavirus turi bir xil xo‘jayin doirasiga yoki bir xil patogenlikka ega degan xulosani qo‘llab-quvvatlamaydi.
Odam poliomaviruslarida seropozitivlik
Seropozitivlik — odam qonida muayyan patogenga qarshi antitanalar aniqlanishi holatidir. Seropozitivlik oldingi ta’sirlanish yoki immun javob haqida ma’lumot berishi mumkin; u har doim faol infeksiyani anglatmaydi.
Sharhda keltirilgan avvalgi tadqiqotlarda odamlarning taxminan %50–80 i JC yoki BK poliomaviruslariga qarshi seropozitiv bo‘lishi mumkinligi bildiriladi.
Bu ko‘rsatkich barcha mamlakatlar, yosh guruhlari va namunaviy populyatsiyalar uchun yagona universal seroprevalensiya qiymati emas. U manbada murojaat qilingan epidemiologik tadqiqotlar doirasida baholanishi kerak.
SV40 uchun esa rezus makakalari va babuinlar ham kiradigan ayrim tutqun odam bo‘lmagan primat populyatsiyalarida yuqori seropozitivlik ko‘rsatkichlari keltiriladi.
SV40 bilan odam poliomaviruslari o‘rtasidagi farq
SV40 ning tabiiy xo‘jayinlari odam bo‘lmagan primatlardir. Shu sababli SV40 tabiiy odam poliomavirusi sifatida tasniflanmaydi.
Odam poliomaviruslari qatoriga BK virusi, JC virusi va Merkel hujayra poliomavirusi kiradi.
Ayrim odam poliomaviruslari, ayniqsa immun tizimi bostirilgan shaxslarda, jiddiy kasalliklar bilan bog‘liq. BK virusi buyrak va siydik yo‘llari to‘qimalari bilan, JC virusi esa ayrim nevrologik kasalliklar bilan bog‘liq klinik kontekstlarda ahamiyat kasb etishi mumkin.
Merkel hujayra poliomavirusi Merkel hujayrali karsinoma bilan bog‘liq odam poliomavirusidir.
SV40 esa odamlarda, ayniqsa, tarixda kontaminatsiyalangan poliomiyelit vaksinalari orqali ta’sirlanish sababli o‘rganilgan. Sharh ushbu tarixiy hodisaga to‘xtaladi; biroq odamlarda ayrim saratonlar SV40 sababli yuzaga kelishini ko‘rsatuvchi yangi klinik tadqiqotni taqdim etmaydi.
Persistensiya va latent infeksiya
Ayrim poliomaviruslar xo‘jayin to‘qimalarida uzoq vaqt saqlanib qolishi va mos sharoitlarda qayta faollashishi mumkin.
Latent infeksiya virus genomi xo‘jayinda mavjud bo‘lsa-da, to‘liq produktiv infeksiya sikli uzluksiz davom etmaydigan holatlardan biridir. Persistensiyalanuvchi infeksiya esa virus materiali yoki infeksiyaning uzoq muddat davom etishini anglatadi.
Sharh ayniqsa BK va JC viruslari uchun persistensiya va qayta faollashish ehtimoliga e’tibor qaratadi.
Bu biologik xususiyatlar poliomaviruslarning tarqalishi va infeksiyaning davomiyligi uchun muhim. Biroq barcha poliomaviruslar bir xil latent infeksiya dasturidan foydalanadi, deb taxmin qilinmasligi kerak.
SV40 virionining fizik tuzilishi
Virion — hujayra tashqarisidagi to‘liq shakllangan virus zarrachasi.
SV40 virioni lipid qobig‘iga ega bo‘lmagan oqsil kapsidi va uning ichidagi ikki zanjirli halqasimon DNK genomidan tashkil topgan.
Genom xo‘jayin hujayra kelib chiqishidagi gistonlar bilan bog‘liq bo‘lgani sababli yalang‘och DNK holida emas, balki xromatinga o‘xshash tuzilma ichida joylashadi.
Kapsidning asosiy strukturaviy oqsili VP1 dir. VP1 oqsillari beshlik birliklar, ya’ni pentamerlarni hosil qiladi.
VP2 va VP3 esa kapsidning ichki qismlarida joylashgan, kapsid yaxlitligi, genom himoyasi va infeksiyaning turli bosqichlariga hissa qo‘shuvchi yordamchi strukturaviy oqsillardir.
SV40 ning qobiqsiz bo‘lishi virusning atrof-muhit sharoitlariga chidamliligiga ta’sir qilishi mumkin. Sharhda qobiqsiz kapsid tuzilishi ayniqsa issiqlik kabi atrof-muhit degradatsiya omillariga nisbatan ma’lum chidamlilik bilan bog‘lanadi.
Bu xususiyat mutlaq ekologik chidamlilik sifatida talqin qilinmasligi kerak; virus infeksionligi atrof-muhit sharoitlariga bog‘liq holda kamayishi mumkin.
SV40 ning hujayraga kirishida GM1 retseptorining roli
SV40 ning hujayraga kirishida virus kapsid oqsili VP1 bilan xo‘jayin hujayra yuzasidagi GM1 gangliozidi o‘rtasidagi o‘zaro ta’sir muhimdir.
Gangliozidlar hujayra membranasida joylashgan va ayrim hujayraviy tanish hamda signal jarayonlariga hissa qo‘shuvchi glikolipidlardir.
SV40 GM1 bilan o‘zaro ta’sirga kirishib, kaveola vositasidagi endotsitoz orqali hujayra ichiga olinishi mumkin.
Endotsitoz hujayraning tashqi muhitidagi ayrim moddalarni hujayra membrani orqali ichkariga olishini ta’minlovchi tashish jarayonidir.
Manba 1-rasm virusning hujayra yuzasidan endosomal bo‘limlarga, u yerdan endoplazmatik retikulumga va keyin yadroga olib boradigan hujayra ichki tashish yo‘lini tushuntiradi.
Endoplazmatik retikulumda kapsidning qisman ochilishi
Endoplazmatik retikulum (ER) hujayra ichida oqsillarni qayta ishlash va turli molekulyar jarayonlar amalga oshiriladigan membranali organoiddir.
SV40 hujayraga kirgach, endosomal bo‘limlar orqali ER ga tashiladi. Bu bosqichda kapsidning qisman yechilishi yuz beradi.
Virus zarrachasining nazoratli tarzda ochilishi genom keyingi hujayra ichki tashish va replikatsiya bosqichlariga yetib borishi uchun muhim.
Sharh bu jarayonda hujayraning ER bilan bog‘liq oqsil sifat nazorati va tashish mexanizmlaridan foydalanilishini bildiradi.
Virus hujayraga kirishda o‘zi kodlaydigan keng ko‘lamli tashuvchi oqsillar to‘plamiga ehtiyoj sezmasligi genom iqtisodiyligining hujayra ichki tashish darajasidagi misolidir.
Nima uchun SV40 katta T antigeni ko‘p funksiyali virus oqsilidir?
SV40 katta T antigeni (Large T antigen) virus DNK replikatsiyasining boshlanish hududini tanish, ikki zanjirli DNKni ochish, xo‘jayin replikatsiya oqsillarini jalb qilish, erta gen ifodalanishini bostirish va xo‘jayin hujayra siklini o‘zgartirish funksiyalarini birgalikda bajaruvchi ko‘p funksiyali virus regulyator oqsilidir. Ushbu oqsil SV40 ning cheklangan genomida ko‘plab alohida regulyator va replikativ oqsillarni kodlash zaruratini kamaytiradi; ammo uning ta’siri xo‘jayin hujayraning molekulyar mexanizmlariga bog‘liq.
Erta transkripsiyaning boshlanishi
SV40 genomi hujayra yadrosiga yetib kelganda erta genlarning transkripsiyasi boshlanadi.
Transkripsiya — DNK ketma-ketligidagi genetik axborotni RNK ga ko‘chirish jarayoni.
SV40 erta transkripsiya uchun xo‘jayin hujayraning RNK polimeraza II (RNAPII) tizimidan foydalanadi.
Erta promotor hududi virus genomining kodlamaydigan regulyator qismida joylashgan.
Manbada ushbu hududda GC ga boy ketma-ketliklar, ketma-ket takrorlangan 72 baz jufti (bp) uzunligidagi regulyator ketma-ketliklar va Sp1 hamda AP-1 kabi transkripsiya omillarining bog‘lanish joylari borligi aytiladi.
Bu regulyator elementlar cheklangan DNK hududining erta gen ifodalanishini samarali boshqarishiga imkon beradi.
Katta T va kichik t antigenlarining ishlab chiqarilishi
Erta promotordan sintezlangan prekursor RNK muqobil splaysing jarayonlari orqali turli yetuk mRNK turlariga aylanishi mumkin.
Ushbu mRNK turlaridan katta T antigeni va kichik t antigeni kabi erta virus oqsillari ishlab chiqariladi.
Har ikki oqsil erta gen hududi bilan bog‘liq bo‘lsa-da, bir xil biologik vazifani bajaradigan aynan bir xil mahsulotlar emas.
Katta T antigeni ayniqsa virus DNK replikatsiyasini boshlash va hujayraviy regulyator jarayonlarni o‘zgartirish nuqtai nazaridan ajralib turadi.
Sharhning asosiy mexanistik tushuntirishi katta T antigeniga qaratilgan. Kichik t antigenining barcha molekulyar o‘zaro ta’sirlari bir xil tafsilotda tahlil qilinmagan.
Katta T antigeni va DNK replikatsiyasining boshlanishi
SV40 ning DNK replikatsiyasi virus genomidagi aniqlangan replikatsiya boshlanish hududida boshlanadi.
Katta T antigeni shu hududga bog‘lanib, DNK ikki spiralining mahalliy ravishda ochilishini ta’minlaydi.
Katta T antigenining helikaza funksiyasi ikki zanjirli DNKning replikatsiya uchun ajralishiga hissa qo‘shadi.
Bu jarayonda xo‘jayin hujayradan DNK polimeraza alfa–primaza kompleksi, replikatsiya oqsili A va topoizomerazalar kabi omillar ishlatiladi.
DNK polimeraza yangi DNK zanjiri sintezida qatnashsa, primaza boshlanish uchun zarur qisqa nuklein kislota bo‘laklarini hosil qiladi. Replikatsiya oqsili A ochilgan DNK hududlarini boshqarishda, topoizomerazalar esa replikatsiya paytida DNKning topologik zo‘riqishini nazorat qilishda ishtirok etadi.
Replikatsiya boshlanish hududidan ikki yo‘nalishli replikatsiya vilkalari hosil bo‘ladi va virus DNKsi nusxalanadi.
SV40 o‘z genomida ushbu funksiyalarning barchasi uchun alohida replikatsiya fermentlarini kodlamasligi ko‘p funksiyali virus boshqaruvi bilan xo‘jayin fermentlarining birgalikda ishlatilishiga tayanadi.
Xo‘jayin hujayra siklining o‘zgartirilishi
Katta T antigeni faqat virus DNKsi ustida ishlamaydi. U xo‘jayin hujayraning ko‘payishi va DNK sintezini boshqaruvchi oqsillar bilan ham o‘zaro ta’sirlashadi.
Sharh katta T antigeni p53 va retinoblastoma oqsillari oilasi (pRb) a’zolari kabi hujayra sikli regulyatorlariga ta’sir ko‘rsata olishini qayd etadi.
Bu o‘zaro ta’sirlar xo‘jayin hujayraning DNK sintezi uchun qulay S fazaga kirishini qo‘llab-quvvatlashi mumkin.
S faza — hujayra siklida DNK nusxalanadigan bosqich.
Virus nuqtai nazaridan bu o‘zgarish xo‘jayin hujayraning replikatsiya infratuzilmasidan SV40 genomini ko‘paytirish uchun foydalanishni osonlashtiradi.
Biroq hujayra siklining o‘zgartirilishi bilan klinik jihatdan saraton paydo bo‘lishi bir xil biologik natija emas. Sharh katta T antigenining molekulyar ta’sirlarini ko‘rib chiqadi; u odamlarda SV40 bilan bog‘liq saraton tezligini aniqlaydigan yangi epidemiologik tadqiqot emas.
Erta gen ifodalanishining bostirilishi
SV40 genom replikatsiyasi boshlanganidan keyin erta gen ifodalanishi doim bir xil kuchda davom etishi shart emas.
Katta T antigeni virus replikatsiyasi boshlanishi va erta promotor hududidagi regulyator ketma-ketliklarga bog‘lanib, erta transkripsiyani bostirishga hissa qo‘shadi.
Bu regulyator teskari aloqa infeksiyaning erta bosqichidan kech bosqichiga o‘tishni muvofiqlashtiradi.
Shunday qilib, katta T antigeni bir infeksiya siklida dastlab ko‘payish uchun qulay sharoit yaratadigan, keyin esa erta gen ifodalanishini cheklaydigan regulyator sifatida ishlashi mumkin.
Muqobil RNK splaysingi SV40 genomining imkoniyatini qanday oshiradi?
Muqobil RNK splaysingi (alternative splicing) bitta prekursor RNKdagi turli RNK qismlarini tanlab birlashtirish orqali bir nechta yetuk mRNK mahsulotlari hosil bo‘lishiga imkon beradi. SV40 da erta va kech transkripsiya hududlaridan olingan RNKlar turlicha qayta ishlanib, cheklangan genom uzunligidan turli funksiyalarga ega oqsillar ishlab chiqarilishi qo‘llab-quvvatlanadi. Kech bosqichda VP2, VP3 va VP4 uchun ko‘rsatilgan muqobil translatsiya boshlanishlari esa muqobil RNK splaysingidan alohida, biroq genom iqtisodiyligini to‘ldiruvchi mexanizmdir.
Muqobil splaysing mexanizmi
Eukariot hujayralarda ayrim RNK transkriptlari yetuk mRNKga aylanishidan oldin qayta ishlanadi.
Muqobil splaysing vaqtida RNKning turli qismlarini saqlash yoki olib tashlash bitta genetik hududdan turli mRNK turlari hosil bo‘lishiga imkon berishi mumkin.
SV40 RNKni qayta ishlash uchun xo‘jayin hujayraning spliceosome deb ataluvchi splaysing kompleksidan foydalanadi.
Shu tariqa virus turli RNK mahsulotlarini hosil qilish uchun har bir oqsilga alohida va butunlay mustaqil genetik hudud saqlashi shart bo‘lmaydi.
Kech transkripsiya va kapsid oqsillari
SV40 virus DNKsi replikatsiyasi boshlanganidan keyin kech gen ifodalanishi faollashadi.
Kech promotor orqali amalga oshiriladigan transkripsiya ham xo‘jayin RNK polimeraza II tizimi bilan bajariladi.
Bu bosqichda VP1, VP2 va VP3 kabi kapsid oqsillari ishlab chiqarilishi yaqqol namoyon bo‘ladi.
Sharhda kech promotordan turli transkripsiya boshlanish nuqtalari ishlatilishi mumkinligi va hosil bo‘lgan RNKlar muqobil splaysing hamda poliadenillanish jarayonlaridan o‘tishi tushuntiriladi.
Poliadenillanish, ko‘plab eukariot mRNKlarning 3' uchida poli(A) dumi hosil bo‘lishi bilan bog‘liq RNKni qayta ishlash jarayonidir.
Ushbu mexanizmlar virus genomining cheklangan uzunligi doirasida turli oqsil mahsulotlari hosil bo‘lishiga yordam beradi.
Muqobil translatsiya boshlanishi bilan muqobil RNK ishlanishi o‘rtasidagi farq
Muqobil RNK splaysingi prekursor RNKning turli usullarda yetiltirilishi bilan bog‘liq.
Muqobil translatsiya boshlanishi esa oqsil sintezining bir xil RNKda turli boshlanish joylaridan boshlanishidir.
Sharh SV40 ning VP2, VP3 va VP4 oqsillari bir xil RNK transkriptidan turli translatsiya boshlanish nuqtalaridan foydalanib ishlab chiqarilishi mumkinligini bildiradi.
Bunga qarshi ravishda, VP1 alohida tarzda splaysing qilingan mRNK orqali ishlab chiqarilishi tushuntiriladi.
Bu farq muhim; chunki virus oqsillarining barcha xilma-xilligini faqat muqobil RNK splaysingiga bog‘lash manbada tavsiflangan genetik boshqaruv mexanizmlarining bir qismini yo‘qqa chiqaradi.
Cis-regulyator DNK elementlari
Cis-regulyator elementlar (cis-regulatory elements), muayyan genetik hududlar ifodalanishi va DNK ustidagi jarayonlarga ta’sir qiluvchi, o‘sha DNK molekulasining o‘zida joylashgan regulyator ketma-ketliklardir.
SV40 genomining kodlamaydigan regulyator hududida replikatsiya boshlanish nuqtasi, erta va kech promotorlar hamda turli transkripsiya omili bog‘lanish joylari zich tarzda birga joylashgan.
Bitta DNK ketma-ketligining turli molekulyar kontekstlarda bir nechta regulyator vazifada qatnasha olishi genom uzunligidan samaraliroq foydalanishga imkon beradi.
Katta T antigenining bir xil regulyator hududdagi turli bog‘lanish nuqtalari bilan o‘zaro ta’sirlasha olishi virus DNK replikatsiyasining boshlanishi bilan erta gen ifodalanishining bostirilishi o‘rtasida bog‘lanish hosil qiladi.
Sharhning uchinchi asosiy bo‘limi ushbu zich cis-regulyator arxitekturani poliomavirus minimalizmining asosiy strategiyalaridan biri sifatida ko‘rib chiqadi.
Virus minixromosomasining tuzilishi
Minixromosoma (minichromosome), kichik va halqasimon virus DNK genomining giston oqsillari bilan bog‘langan holda xromatin tuzilmasini hosil qiladigan nukleoprotein tashkilotidir.
SV40 ning ikki zanjirli DNKsi xo‘jayin hujayradan kelib chiqqan gistonlar ustida tashkil topadi.
Bu xususiyat nafaqat virus genomining qadoqlanishiga, balki RNK polimerazalar va replikatsiya omillari qaysi DNK hududlariga kira olishiga ham ta’sir qiladi.
Demak, minixromosoma virus DNKsining passiv tashilish shakli emas, balki gen ifodalanishi va replikatsiya boshqariladigan dinamik tuzilmadir.
Epigenetik boshqaruv
Epigenetik boshqaruv DNK nukleotid ketma-ketligi o‘zgarmagan holda xromatin tuzilmasi yoki xromatin bilan bog‘liq kimyoviy belgilar orqali gen ifodalanishini o‘zgartirishga imkon beruvchi jarayonlarni qamrab oladi.
Sharhda SV40 xromatinidagi giston modifikatsiyalari va nukleosoma joylashuvi erta va kech gen ifodalanishining boshqarilishi bilan bog‘liq ekani tushuntiriladi.
Ayniqsa H3 va H4 gistonlarining atsetillanishi faol transkripsiya hududlari bilan bog‘langan.
Manbada keltirilgan avvalgi tadqiqotlar atsetillangan H3 RNK polimeraza II ning keyingi joylashuvini bashorat qilishga yordam berishi mumkinligini; H3 va H4 atsetillanishi faol gen ifodalanishi bilan bog‘liq ekanini ko‘rsatadi.
H3K9me1 va H3K9me3 belgilari esa RNK polimeraza II bog‘lanishining bostirilishi bilan bog‘lanadi.
Bu belgilar o‘z-o‘zicha butun transkripsion boshqaruvni tushuntiradigan mustaqil sabablar sifatida qaralmasligi kerak. Sharh giston belgilari va xromatin holatlari bilan gen ifodalanishi o‘rtasidagi molekulyar munosabatlarni sintez qiladi.
Nukleosoma joylashuvi va DNKga kirish
Nukleosoma, DNK giston oqsillari atrofida tashkil topadigan asosiy xromatin birligidir.
SV40 minixromosomasida nukleosomalar tasodifiy taqsimlangan deb qaralmaydi. Ularning regulyator hudud yaqinidagi joylashuvi DNKdagi qaysi ketma-ketliklar ochiq bo‘lishiga ta’sir qilishi mumkin.
Manba virus replikatsiyasi boshlanish nuqtasi va ikki yo‘nalishli promotorlarni qamrab olgan hududda nukleosomasiz maydon saqlanishi, qo‘shni nukleosomalar esa regulyator hududni o‘rab turishini tushuntiradi.
Infeksiyaning turli bosqichlarida bu nukleosomalarning joylashuvi o‘zgarishi mumkin.
Xo‘jayin hujayraning xromatinni qayta tashkil qilish mexanizmlari va katta T antigeni bu o‘zgarishlarda rol o‘ynaydi.
Shu sababli SV40 o‘zining xromatin regulyator fermentlarini keng repertuar sifatida kodlamasdan turib xo‘jayin hujayraning epigenetik tizimidan foydalanishi mumkin.
Kapsid hosil bo‘lishida VP1 pentamerlari
Virus DNKsi nusxalangach va strukturaviy oqsillar ishlab chiqarilgach, yangi SV40 zarrachalari hosil qilinishi kerak.
Bu jarayon kapsid hosil bo‘lishi va genomning kapsid ichiga olinishi (encapsidation) jarayonidir.
SV40 ning asosiy kapsid oqsili VP1 o‘z-o‘zidan pentamerlar hosil qila oladi.
Ushbu pentamerlar yangi sintezlangan virus minixromosomasi atrofida birlashishi natijasida kapsid tuzilishi hosil bo‘ladi.
VP2 va VP3 kabi yordamchi kapsid oqsillari kapsidning ichki tashkiliga va virus zarrachasining infeksiya bilan bog‘liq xususiyatlariga hissa qo‘shadi.
Manba izohiga ko‘ra, SV40 kapsid hosil bo‘lishi oldindan butunlay shakllangan bo‘sh kapsid ichiga DNKni kuchli motor bilan itarish tarzida qaralmaydi.
Buning o‘rniga VP1 pentamerlarining virus nukleoprotein kompleksi atrofida bosqichma-bosqich yig‘ilishi muhim.
Bu tuzilish maxsus ATP ishlatadigan genom qadoqlash motorlariga ehtiyojni kamaytiradi.
Xo‘jayin gistonlarining virus DNKsi ustida saqlanib qolishi qo‘shimcha virus DNKsini zichlashtiruvchi omillarni kodlash zaruratini ham cheklaydi.
Yangi virus zarrachalarining hujayradan chiqarilishi
SV40 infeksiya siklining so‘nggi bosqichlaridan biri yangi hosil bo‘lgan virionlarning hujayradan ajralib chiqishidir.
Sharh SV40 ning hujayradan chiqishi uchun o‘zaro bog‘liq bir nechta mexanizmni tushuntiradi.
Bu mexanizmlarga hujayra ichida katta vakuolalar hosil bo‘lishi, infeksiya sababli hujayraviy stress va ayrim tadqiqotlarda VP4 oqsili bilan bog‘langan membrana o‘tkazuvchanligi o‘zgarishlari kiradi.
Hujayradan chiqish mexanizmlarining barchasi bir xil darajada tasdiqlanmagan. Ayniqsa VP4 ning maxsus viroporin funksiyasi ilmiy munozara mavzusidir.
Vakuolizatsiya va hujayra membranasi yaxlitligi
Vakuolizatsiya, hujayra ichida suyuqlik saqlovchi membrana bilan o‘ralgan bo‘shliqlar, ya’ni vakuolalarning hosil bo‘lishi yoki kattalashishidir.
SV40 infeksiyasida hujayra ichki tashish va membrana dinamikasidagi o‘zgarishlar katta vakuolalarning paydo bo‘lishiga hissa qo‘shishi mumkin.
Manba VP1 ning GM1 bilan o‘zaro ta’siridan so‘ng Ras, Rac1, MKK4 va JNK ni o‘z ichiga olgan hujayraviy signal yo‘llari faollashishi mumkinligini qayd etadi.
Bu jarayon endotsitozning kuchayishi va endosomal bo‘limlarning to‘planishi bilan bog‘liq bo‘lishi mumkin.
Endosomalarning qayta-qayta birlashishi kattaroq vakuolalar hosil bo‘lishiga olib kelishi mumkin.
Vakuolalarning hujayrani to‘ldirishi membrana yaxlitligining buzilishi va hujayraning parchalanishi bilan bog‘lanadi.
Virusning SV40 nomidagi "vacuolating" iborasi ushbu xarakterli hujayraviy o‘zgarish bilan bog‘liq.
Hujayraviy stress va o‘lim yo‘llari
SV40 ning hujayra ichida ko‘payishi virus oqsili sintezi, DNK replikatsiyasi va hujayraviy metabolik jarayonlarga ta’sir qiladi.
Bu faoliyatlar xo‘jayin hujayrada turli stresslarni yuzaga keltirishi mumkin.
Sharh mitoxondriya disfunksiyasi, oqsil ishlab chiqarish yuklamasi va DNK replikatsiyasi bilan bog‘liq stress hujayra o‘limi signallariga ta’sir ko‘rsatishi mumkinligini bildiradi.
Apoptoz va boshqa hujayra o‘limi mexanizmlari infeksiyaning so‘nggi bosqichlarida virusning chiqarilishi bilan bog‘liq bo‘lishi mumkin.
Bu strategiya faqat SV40 ga xos emas. Manba BK, JC va sichqon poliomaviruslari uchun ham xo‘jayin hujayra qismlarining zararlanishi bilan bog‘liq hujayra o‘limi jarayonlarini muhokama qiladi.
VP4 oqsili va viroporin gipotezasi
Viroporin, ayrim viruslar tomonidan kodlanadigan va hujayra membranasi o‘tkazuvchanligini o‘zgartira oladigan kichik virus membrana oqsillariga nisbatan ishlatiladigan atamadir.
SV40 VP4 oqsili gidrofob tuzilishga ega bo‘lgani sababli hujayra membranalari bilan o‘zaro ta’sirlashishi va membrana o‘tkazuvchanligini oshiruvchi teshiksimon tuzilmalar hosil qilishi mumkinligi taklif qilingan.
Ushbu taklifga ko‘ra, VP4 endoplazmatik retikulum, yadro qobig‘i va plazma membranasi kabi hujayra membranalarining yaxlitligiga ta’sir qilib, yangi virionlarning chiqarilishini osonlashtirishi mumkin.
Biroq manba VP4 viroporin sifatida ishlashi haqidagi tushuntirish universal qabul qilinmaganini aniq qayd etadi.
Shu sababli VP4 ning mavjudligi yoki funksiyasiga oid bahsli nuqtalar qat’iy tasdiqlangan va barcha poliomaviruslarga umumlashtiriladigan mexanizmlar sifatida taqdim etilmasligi kerak.
Sharh, shuningdek, boshqa poliomaviruslarda SV40 VP4 ga to‘g‘ridan-to‘g‘ri o‘xshash oqsillar topilmaganini bildiradi.
Immun kuzatuvdan qochish
Xo‘jayin immun tizimi virus infeksiyalarini turli virus molekulalari, hujayraviy stress belgilari va immun signal yo‘llari orqali tanishi mumkin.
Sharh poliomaviruslarning cheklangan virus oqsili repertuarini immun kuzatuvdan qochish nuqtai nazaridan afzallik sifatida muhokama qiladi.
Mualliflarning talqiniga ko‘ra, kamroq virus oqsili ishlab chiqarilishi immun tizimi taniy oladigan begona oqsillar sonining ham cheklanishiga hissa qo‘shishi mumkin.
Bundan tashqari, SV40 ning kaveola vositasidagi endotsitozdan foydalanishi va endoplazmatik retikulumga tashilishi virus DNKsining ayrim hujayraviy sezish tizimlari bilan uchrashish ehtimolini kamaytirishi mumkin.
Endoplazmatik retikulum bilan bog‘liq degradatsiya (ER-associated degradation, ERAD)ga o‘xshash xo‘jayin mexanizmlaridan foydalanish ham hujayra ichki tashish va kapsidning yechilishi uchun muhimdir.
Sharh ushbu jarayonlarni kuchli yallig‘lanish javobini yuzaga keltirmasdan hujayraga kirish va erta replikatsiya bosqichlarini amalga oshirish nuqtai nazaridan baholaydi.
Biroq virus oqsillari sonining kamligi barcha xo‘jayinlarda albatta kuchsizroq immun javob yuzaga kelishini ko‘rsatmaydi. Mualliflar taklif qilgan tushuntirish avvalgi mexanistik tadqiqotlarning konseptual sintezidir.
Manbada SV40 MHC sinf I darajalarini pasaytirish uchun maxsus keng oqsil repertuariga ega emasligi ham qayd etiladi.
Bu nuqta poliomaviruslar immunitetdan qochish uchun har doim ko‘plab alohida immunomodulyator oqsillarni kodlashi shart emas degan qarashni qo‘llab-quvvatlaydi.
Tadqiqot Usuli va Natijalari
Tadqiqot usuli va dalil turi
Lano va Milavetz ishi eksperimental tadqiqot emas, balki mexanizmga yo‘naltirilgan ilmiy sharhdir.
Mualliflar SV40 va boshqa poliomaviruslarning genom tashkiloti, virion tuzilishi, xo‘jayin hujayraga kirishi, erta va kech transkripsiyasi, DNK replikatsiyasi, kapsid hosil bo‘lishi, immun kuzatuvdan qochishi va hujayradan chiqish mexanizmlariga oid chop etilgan tadqiqotlarni baholagan.
Sharhning dalil bazasi molekulyar virusologiya, hujayra biologiyasi, genom tashkiloti, epigenetik boshqaruv va virus oqsillari funksiyalari bo‘yicha avval chop etilgan tadqiqotlardir.
Ushbu maqolada yangi hayvon namunasi, odam kohorti, hujayra kulturasi tajriba seriyasi, virus genomini sekvenslash kampaniyasi yoki klinik samaradorlik o‘lchovi xabar qilinmagan.
Tadqiqot sistematik sharh metodologiyasi asosida bajarilgan miqdoriy meta-tahlil emas. Manbada yangi ta’sir kattaligi, ishonch oralig‘i, statistik ahamiyat hisobi yoki umumiy eksperimental ma’lumotlar to‘plami berilmagan.
Manba 1-rasmning ilmiy vazifasi: Infeksiya sikli
Manba 1-rasm SV40 infeksiya siklini 11 bosqichli biologik jarayon sifatida ko‘rsatadi.
| Bosqich | Asosiy hodisa | Qatnashuvchi virus yoki hujayraviy komponent |
|---|---|---|
| 1 | Xo‘jayin hujayra yuzasiga bog‘lanish | VP1 va GM1 gangliozid retseptori |
| 2 | Endotsitoz | Kaveola vositasidagi hujayra ichiga kirish |
| 3 | Endoplazmatik retikulumga tashilish va kapsidning qisman ochilishi | Hujayraviy tashish va ER qayta ishlash tizimlari |
| 4 | Virus genomining yadroga yetib borishi | Hujayraviy yadro tashish mexanizmlari |
| 5 | Erta transkripsiya | RNK polimeraza II; katta T va kichik t antigeni mRNKlari |
| 6 | Erta oqsillarning translatsiyasi | Xo‘jayin hujayraning oqsil sintezi mexanizmlari |
| 7 | Virus DNK replikatsiyasi | Katta T antigeni va xo‘jayin DNK replikatsiya oqsillari |
| 8 | Kech transkripsiya | Kech promotor, RNK polimeraza II va strukturaviy oqsil mRNKlari |
| 9 | Strukturaviy oqsillarning translatsiyasi | VP1, VP2 va VP3 sintezi |
| 10 | Kapsid hosil bo‘lishi va genom qadoqlanishi | VP1 pentamerlari, VP2/VP3 va virus minixromosomasi |
| 11 | Yangi virionlarning chiqarilishi | Hujayra yaxlitligining buzilishi va bog‘liq hujayraviy jarayonlar |
Rasm infeksiyaning biologik ketma-ketligini ko‘rsatadi. Biroq turli bosqichlar qancha davom etishiga oid miqdoriy vaqt qatorini o‘z ichiga olmaydi. Sxemadagi bosqich raqamlari tajriba davomiyligi, replikatsiya tezligi yoki virus soni sifatida talqin qilinmasligi kerak.
Manba 2-rasmning ilmiy vazifasi: Virion va genom tashkiloti
Manba 2-rasm ikki xil strukturaviy miqyosni birlashtiradi.
2a-rasm to‘liq shakllangan SV40 virionining tashqi oqsil kapsidini, VP1 pentamerlari tuzilishini, VP2 va VP3 oqsillarini hamda kapsid ichidagi gistonlar bilan bog‘langan virus DNKsini ko‘rsatadi.
2b-rasm esa halqasimon virus genomidagi regulyator hududni, erta va kech transkripsiya hududlarini hamda oqsil kodlovchi qismlarni ko‘rsatadi.
2b-rasm izohida katta T antigeni, kichik t antigeni, VP1, VP2, VP3, VP4 va LP1 (agnoprotein) nomlari keltiriladi.
Ushbu ikki miqyosni birga ko‘rsatishning ilmiy ahamiyati shundaki, kichik genom cheklangan sondagi strukturaviy oqsillar va regulyator elementlardan foydalanib to‘liq virion hosil qila oladi.
Manba ichidagi nomlash eslatmasi: Maqola kirish qismidagi “olti oqsil” iborasi bilan 2b-rasmda sanab o‘tilgan oqsil nomlarining soni to‘liq mos kelmaydi. Manba bu farqni bartaraf etadigan tarzda oqsillar qaysi sanash mezoni bo‘yicha tasniflanganini tushuntirmaydi. Shu sababli rasm izohida ko‘rsatilgan nomlar saqlanib, son jihatidagi nomuvofiqlik yashirincha o‘zgartirilmagan.
SV40 oqsillarining asosiy funksiyalari
| Oqsil | Asosiy funksiya yoki manbada ko‘rsatilgan bog‘liqlik | Ilmiy talqin chegarasi |
|---|---|---|
| Katta T antigeni | DNK replikatsiyasi, helikaza faolligi, transkripsiyani boshqarish va hujayra siklini nazorat qilish | Funksiyalarning muhim qismi xo‘jayin hujayra oqsillari bilan o‘zaro ta’sirga bog‘liq. |
| Kichik t antigeni | Erta virus oqsili; hujayraviy regulyator jarayonlar bilan bog‘liq | Sharh uning barcha molekulyar o‘zaro ta’sirlarini bir xil tafsilotda baholamaydi. |
| VP1 | Kapsid pentamerlari hosil bo‘lishi va GM1 retseptoriga bog‘lanish | Strukturaviy kapsid funksiyasi bilan xo‘jayin hujayraga kirishdagi roli bir-biridan ajratilishi kerak. |
| VP2 | Yordamchi kapsid oqsili, genom va kapsid o‘zaro ta’sirlari, hujayra ichki jarayonlari | Bir nechta strukturaviy va hujayraviy funksiyalar bilan bog‘liq. |
| VP3 | Yordamchi kapsid oqsili, kapsid yaxlitligi va hujayra ichki o‘zaro ta’sirlari | VP2 bilan ayrim vazifalari ustma-ust tushishi mumkin; oqsillar aynan bir xil emas. |
| VP4 | Taklif qilingan viroporin va hujayra membranasi o‘tkazuvchanligi bilan bog‘liq funksiya | Viroporin mexanizmi ilmiy munozara mavzusidir. |
| LP1 / agnoprotein | Manba 2b-rasmda kech gen hududi bilan bog‘liq mahsulot sifatida nomlanadi. | Maqola LP1 ning molekulyar funksiyasini boshqa oqsillar kabi batafsil ko‘rib chiqmaydi. |
Ushbu jadval SV40 ning barcha oqsillari eksperimental ravishda bitta tadqiqot doirasida o‘lchanganini ko‘rsatmaydi. U manba sharhda tushuntirilgan oqsil vazifalari va rasmlardagi nomlashlar asosida mustaqil ravishda tuzilgan.
Virus minimalizmi strategiyalarining funksional taqqoslanishi
| Strategiya | Qo‘llanilgan molekulyar mexanizm | Genom iqtisodiyligiga hissasi | Bog‘liqlik yoki cheklov |
|---|---|---|---|
| Ko‘p funksiyali oqsil | Katta T antigenining turli vazifalari | Bir nechta regulyator va replikativ funksiya bitta oqsil ichida birlashadi. | Oqsildagi o‘zgarishlar bir nechta biologik jarayonga ta’sir qilishi mumkin. |
| Muqobil RNK ishlanishi | Turli splaysing mahsulotlari | Cheklangan kodlovchi hududdan turli mRNK mahsulotlari olinadi. | Xo‘jayin hujayraning RNKni qayta ishlash tizimi zarur. |
| Muqobil translatsiya boshlanishi | VP2, VP3 va VP4 bilan bog‘liq boshlanish nuqtalari | Bir xil RNKdan turli oqsil mahsulotlari hosil bo‘lishiga hissa qo‘shadi. | Oqsil sintezi va boshqarilishi xo‘jayin tizimiga bog‘liq. |
| Cis-regulyator zichlik | Replikatsiya boshlanishi, promotorlar va bog‘lanish joylari | Bir DNK hududi turli regulyator vazifalarni bajaradi. | Regulyator hududlardagi o‘zgarishlar bir nechta jarayonga ta’sir qilishi mumkin. |
| Xromatindan foydalanish | Giston modifikatsiyasi va nukleosoma joylashuvi | Alohida virus xromatin-regulyator fermentlariga ehtiyoj kamayadi. | Xo‘jayin epigenetik mexanizmlariga bog‘liqlik yuzaga keladi. |
| Xo‘jayin replikatsiya tizimidan foydalanish | DNK polimerazalar, primaza, topoizomerazalar va yordamchi omillar | Virusga xos keng DNK sintez fermentlari repertuari talab qilinmaydi. | Mos hujayra sikli va xo‘jayin omillari zarur. |
| Kapsidning o‘z-o‘zidan tashkil topishi | VP1 pentamerlari va yordamchi kapsid oqsillari | Maxsus qadoqlash mexanizmiga ehtiyoj kamayadi. | To‘g‘ri oqsil o‘zaro ta’sirlari va yadro tashkiloti zarur. |
Genom iqtisodiyligining biologik afzalliklari
Sharh cheklangan genomning virus replikatsiyasi va zarracha hosil bo‘lishi nuqtai nazaridan turli afzalliklarini muhokama qiladi.
Birinchidan, nusxalanishi kerak bo‘lgan genetik material miqdorining cheklanganligi DNK replikatsiyasi talab qiladigan molekulyar resurslarni kamaytirishi mumkin.
Ikkinchidan, ko‘p funksiyali oqsillar alohida-alohida ishlab chiqarilishi kerak bo‘lgan virus oqsillari sonini kamaytirishi mumkin.
Uchinchidan, virus o‘zining replikatsiya va xromatin boshqaruvchi oqsillarini keng xilma-xillikda kodlamasligi genetik maydonni boshqa zarur funksiyalar uchun ishlatishga imkon berishi mumkin.
To‘rtinchidan, VP1 kabi kapsid oqsillarining o‘z-o‘zidan tashkil topishi virion hosil bo‘lishini cheklanganroq oqsil repertuari bilan yakunlashga imkon berishi mumkin.
Beshinchidan, xo‘jayin hujayraning boshqaruv tizimlaridan foydalanish virus infeksiyasining turli bosqichlarini mavjud hujayraviy mexanizmlar bilan integratsiyalashga yordam berishi mumkin.
Bu afzalliklar sharhda mexanistik va evolyutsion doirada tushuntiriladi. Manba barcha afzalliklarni bitta tajribada miqdoriy jihatdan taqqoslamagan.
Genom iqtisodiyligining biologik cheklovlari
Minimal genom ta’minlaydigan samaradorlik muhim biologik bog‘liqliklarni yuzaga keltiradi.
SV40 ning replikatsiyasi xo‘jayin hujayraning DNK polimerazalariga, transkripsiyasi RNK polimeraza II ga, RNK ishlanishi esa xo‘jayin spliceosome mexanizmiga bog‘liq.
Virus ushbu infratuzilmadan foydalana olishi uchun mos hujayraviy sharoitlar mavjud bo‘lishi kerak.
Bu holat qaysi xo‘jayin turlari va qaysi to‘qima turlari infeksiya uchun qulay bo‘lishiga ta’sir qilishi mumkin.
Ikkinchi cheklov — ko‘p funksiyali oqsillardagi mutatsiyalar keng ko‘lamli ta’sirlarni yuzaga keltirishi mumkinligi. Katta T antigeni funksiyasidagi o‘zgarish replikatsiya boshlanishi, gen ifodalanishining boshqarilishi va hujayra sikli bilan o‘zaro ta’sirlarning bir nechtasiga ta’sir qilishi mumkin.
Uchinchi cheklov — xo‘jayin mexanizmlariga bog‘liqlik bir vaqtning o‘zida xo‘jayin himoya tizimlari bilan to‘qnashish ehtimolini ham yaratadi.
Shunday qilib, minimalizm barcha biologik sharoitlarda ustunlik beradigan bir yoqlama afzallik emas. Genom iqtisodiyligi bilan funksional moslashuvchanlik o‘rtasida evolyutsion murosalar mavjud.
Manbada keltirilgan tanlangan miqdoriy va strukturaviy ma’lumotlar
| Parametr | Manba qiymati | Birlik yoki kontekst | Ilmiy holat |
|---|---|---|---|
| SV40 genom uzunligi | Taxminan 5 | kb | Ma’lum genom xususiyati |
| Virus DNK tuzilishi | Ikki zanjirli, halqasimon | DNK genomi | Strukturaviy xususiyat |
| Kirishda bildirilgan oqsil soni | 6 | Manba kirish qismidagi ibora | 2b-rasmdagi nomlash bilan sanash nomuvofiqligi mavjud. |
| Poliomaviruslarning evolyutsion tarixi | Taxminan 500 million | Yil | Avvalgi filogenetik tadqiqotlardan keltirilgan baho |
| BK yoki JC seropozitivligi | Taxminan %50–80 | O‘rganilgan odam populyatsiyalari | Avvalgi epidemiologik tadqiqotlardan keltirilgan oraliq |
| SV40 erta promotoridagi takror ketma-ketlik | 72 | bp | Manbada ko‘rsatilgan genomik regulyator element |
| VP1 asosiy kapsid birligi | 5 | Subbirlikli pentamer | Strukturaviy oqsil tashkiloti |
| Manba 1-rasmdagi jarayon | 11 | Sxematik bosqich | Infeksiya siklining o‘quv maqsadidagi tasviri; vaqt yoki tezlik o‘lchovi emas. |
Manbada ushbu qiymatlarni birlashtiruvchi yangi statistik model, mustaqil eksperimental samaradorlik ma’lumotlar to‘plami yoki qiyosiy genom optimallashtirish tahlili xabar qilinmagan.
Kichik genom poliomaviruslarning immun tizimidan butunlay qochishini isbotlaydimi?
Yo‘q. Poliomaviruslarning kichik genomlari va cheklangan oqsil repertuari ayrim xo‘jayinlarda immun kuzatuvga ta’sir qilishi mumkin bo‘lgan molekulyar xususiyatlar bilan bog‘liq; biroq genomning kichikligi barcha poliomaviruslar immun tizimidan butunlay qochishini isbotlamaydi. Sharh kam sonli virus antigenlarining mavjudligi, xo‘jayin hujayra tashish yo‘llaridan foydalanish va infeksiyaning erta bosqichlarida kuchli hujayraviy buzilishning cheklanishi kabi mexanizmlarni tushuntiradi; ammo ular immun javobni qay darajada kamaytirishiga oid yangi qiyosiy tajriba taqdim etmaydi.
Tadqiqot qo‘llab-quvvatlaydigan xulosalar
- SV40 va boshqa poliomaviruslar cheklangan genom uzunligiga qaramay murakkab infeksiya sikllarini amalga oshira olishi ilmiy adabiyot bilan qo‘llab-quvvatlanadi.
- Katta T antigeni virus DNK replikatsiyasining boshlanishi va xo‘jayin hujayra regulyator mexanizmlarining o‘zgartirilishida markaziy rol o‘ynaydi.
- Muqobil RNK splaysingi va muqobil translatsiya boshlanishi cheklangan kodlash imkoniyatidan turli oqsil mahsulotlari hosil bo‘lishini qo‘llab-quvvatlaydi.
- SV40 genomining cis-regulyator elementlari bir xil DNK hududida bir nechta genetik nazorat funksiyasini birlashtiradi.
- Virus DNKsining xo‘jayin gistonlari bilan minixromosoma hosil qilishi gen ifodalanishining epigenetik darajada boshqarilishiga hissa qo‘shadi.
- VP1 pentamerlarining o‘z-o‘zidan tashkil topishi cheklangan oqsil repertuari bilan kapsid hosil bo‘lishini qo‘llab-quvvatlaydi.
- Virus infeksiyasining turli bosqichlarida xo‘jayin hujayraning replikatsiya, transkripsiya va RNKni qayta ishlash mexanizmlaridan foydalaniladi.
- Genom iqtisodiyligi molekulyar samaradorlikni ta’minlar ekan, xo‘jayin bilan moslik va mutatsiya ta’sirlari nuqtai nazaridan cheklovlarni ham yuzaga keltiradi.
Tadqiqot qo‘llab-quvvatlamaydigan xulosalar
- Barcha poliomaviruslar bir xil xo‘jayinlarda bir xil patogenlikka ega ekanini ko‘rsatmaydi.
- SV40 tabiiy odam poliomavirusi ekanini ko‘rsatmaydi.
- SV40 odamlarda muayyan saratonning sababi ekanini yangi klinik ma’lumotlar bilan isbotlamaydi.
- Taxminan %50–80 seropozitivlik oralig‘i barcha odam populyatsiyalariga tatbiq etilishi mumkinligini ko‘rsatmaydi.
- Poliomaviruslar barcha immun mexanizmlaridan qochishi mumkinligini isbotlamaydi.
- VP4 ning viroporin funksiyasi barcha tadqiqotchilar tomonidan qabul qilinganini ko‘rsatmaydi.
- Genomning kichrayishi har qanday sharoitda yuqoriroq ko‘payish tezligi yoki yuquvchanlikni keltirib chiqarishini isbotlamaydi.
- Katta T antigeni barcha vazifalarini xo‘jayin oqsillarisiz bajarishini ko‘rsatmaydi.
- Yangi antiviral davolash, vaksina, diagnostika testi yoki klinik aralashuv ishlab chiqish muvaffaqiyatini xabar qilmaydi.
- Manbaning kirish qismidagi olti oqsil iborasi bilan 2b-rasmdagi oqsil nomlari o‘rtasidagi sanash farqini hal qilmaydi.
Sharhning asosiy metodologik cheklovlari
Tadqiqot adabiyot sharhi bo‘lgani sababli tushuntirilgan barcha mexanizmlar bitta eksperimental tizim va bir xil sharoitlarda taqqoslanmagan.
SV40 ga oid molekulyar topilmalarning barchasini BK, JC yoki Merkel hujayra poliomavirusi kabi boshqa oila vakillariga bevosita umumlashtirib bo‘lmaydi.
Ayniqsa xo‘jayin hujayra tropizmi, immun tizim bilan o‘zaro ta’sir va hujayradan chiqish yo‘llari virus turiga qarab farq qilishi mumkin.
Sharh genom iqtisodiyligi infeksiya muvaffaqiyatini qay darajada oshirishini miqdoriy sabab-oqibat modeli bilan o‘lchamaydi.
Virus minimalizmining immunitetdan qochishga hissasi konseptual va mexanistik doirada baholangan. Yangi xo‘jayin immuniteti tajribasi taqdim etilmagan.
VP4 viroporin mexanizmi esa manbada aniq ravishda ilmiy munozara mavzusi sifatida ta’riflangan. Mexanizmni qat’iy tasdiqlangan deb taqdim etish sharhning o‘z ehtiyotkor ilmiy chegarasidan chiqib ketadi.
Oqsil soni bo‘yicha kirish va rasm izohidagi farq manbadagi oqsil repertuarini talqin qilishda hisobga olinishi kerak.
Bu cheklovlar sharhning asosiy ilmiy hissasini yo‘qqa chiqarmaydi. Biroq ular maqola nimani tushuntirishini va qaysi savollar uchun mustaqil eksperimental tasdiq zarurligini belgilaydi.
Manba va Usul Haqida Izoh
Asl tadqiqot: Minimal Genome, Maximal Effect: How Polyomavirus Genomes Are Capable of Complex Pathogenesis.
Mualliflar: Michaela Lano; Barry Milavetz.
Mas’ul muallif: Barry Milavetz.
Tashkilot: Department of Biomedical Sciences, University of North Dakota School of Medicine and Health Sciences, Grand Forks, ND 58203, USA.
Jurnal: Viruses.
Nashriyot: MDPI.
Bibliografik yozuv: Viruses 2026, 18(5), 533.
DOI: 10.3390/v18050533.
Rasmiy nashr havolasi: https://www.mdpi.com/1999-4915/18/5/533
Maxsus son: Polyomavirus.
Nashr sanasi: 1 May 2026. Maqola 7 Aprel 2026 da qabul qilingan, 28 Aprel 2026 da qayta ko‘rib chiqilgan va 29 Aprel 2026 da qabul qilingan.
Manba turi: Taqrizdan o‘tgan ilmiy sharh (Review). Molekulyar virusologiya, virus genomining tashkiloti, xromatin biologiyasi va virus–xo‘jayin o‘zaro ta’sirlarining mexanistik tahlili.
Asosiy ilmiy yondashuv: SV40 va boshqa poliomaviruslarning ixcham genom arxitekturalari infeksiya siklida qanday funksional oqibatlar berishini avvalgi molekulyar tadqiqotlar asosida baholovchi adabiyot sintezi.
Asosiy o‘rganilgan mexanizmlar: Xo‘jayin retseptorlariga bog‘lanish, kaveola vositasidagi endotsitoz, endoplazmatik retikulum orqali hujayra ichki tashish, erta va kech transkripsiya, ikki yo‘nalishli DNK replikatsiyasi, muqobil RNK splaysingi, muqobil translatsiya boshlanishlari, cis-regulyator elementlar, virus minixromosomasi, giston modifikatsiyalari, nukleosoma joylashuvi, katta T antigeni funksiyalari, kapsid hosil bo‘lishi, vakuolizatsiya va immun kuzatuvdan qochish.
Asosiy virus oqsillari: Katta T antigeni, kichik t antigeni, VP1, VP2, VP3 va bahsli viroporin funksiyasi bilan baholangan VP4. Manba 2b-rasmda LP1 (agnoprotein) ham nomlangan.
Yangi eksperimental ma’lumot: Tadqiqot yangi eksperimental ma’lumot hosil qilmagan.
Statistik tahlil: Yangi statistik test, p qiymati, ta’sir kattaligi yoki ishonch oralig‘i xabar qilinmagan.
Manba 1-rasm: SV40 infeksiya sikli. GM1 ga bog‘lanish, hujayra ichki tashish, erta transkripsiya, virus DNK replikatsiyasi, kech transkripsiya, kapsid hosil bo‘lishi va chiqarilish bosqichlarining sxematik tushuntirishi.
Manba 2-rasm: SV40 virionining kapsid va minixromosoma tuzilishi hamda virus genomining erta, kech va regulyator hududlari tasviri.
Rasm tayyorlash bayonoti: Mualliflar manba rasmlarini yaratishda BioRender dan foydalanganliklarini, mazmunni ko‘rib chiqib tahrir qilganliklarini va chop etilgan mazmun uchun javobgar ekanliklarini bildirgan. Rasmlar BioRender manbali bo‘lgani sababli ularni qayta ishlatishda tegishli litsenziya shartlari alohida hisobga olinishi kerak.
Litsenziya: Creative Commons Attribution (CC BY) ochiq kirish litsenziyasi. Manba rasmlaridagi alohida uchinchi tomon foydalanish shartlari ham qo‘shimcha baholanishi kerak.
Moliyalashtirish: Tadqiqot Amerika Qo‘shma Shtatlaridagi National Institutes of Health (NIH) tarkibidagi National Institute of General Medical Sciences tomonidan 5P30GM154634-03, 1P20GM155890 va 5P20GM139759-05 raqamli qo‘llab-quvvatlashlar doirasida moliyalashtirilgan.
Moliyalashtirish bayonoti chegarasi: Nashr mazmuni uchun faqat mualliflar javobgar; bildirilgan fikrlar NIH ning rasmiy qarashlarini majburiy ravishda ifodalamaydi, deb ko‘rsatilgan.
Muallif hissalari: Konseptuallashtirish M.L. va B.M.; usul M.L. va B.M.; dasturiy ta’minot M.L. va B.M.; validatsiya M.L. va B.M.; formal tahlil M.L. va B.M.; tadqiqot M.L. va B.M.; resurslar M.L. va B.M.; ma’lumotlar kuratsiyasi M.L. va B.M.; dastlabki qoralama M.L.; ko‘rib chiqish va tahrirlash M.L. va B.M.; vizuallashtirish M.L. va B.M.; maslahat B.M.; loyiha boshqaruvi B.M.; moliyalashtirishni olish B.M. deb bildirilgan.
Etika qo‘mitasi: Tatbiq etilmaydi deb bildirilgan.
Xabardor rozilik: Tatbiq etilmaydi deb bildirilgan.
Ma’lumotlarning mavjudligi: Yangi ma’lumot hosil qilinmagan.
Manfaatlar to‘qnashuvi: Mualliflar manfaatlar to‘qnashuvi yo‘qligini bildirgan.
Asosiy metodologik cheklov: Maqola yangi tajriba o‘tkazmaydigan ilmiy sharhdir. Turli nashrlardan keltirilgan genomik, molekulyar va hujayraviy mexanizmlar bitta umumiy eksperimental tuzilma ichida tasdiqlanmagan.
Manba ichidagi diqqat 1: Maqola kirishida SV40 uchun olti oqsil iborasi ishlatilgan bo‘lsa, 2b-rasm izohida katta T, kichik t, VP1, VP2, VP3, VP4 va LP1 nomlari mavjud. Bu sanash farqi manbadan tashqari talqin bilan tuzatilmagan.
Manba ichidagi diqqat 2: VP4 ning viroporin orqali hujayradan chiqarilishga hissa qo‘shishi manbada taklif qilingan va universal qabul qilinmagan mexanizmdir.
Manba ichidagi diqqat 3: Immun kuzatuvdan qochishga oid tushuntirishlar sharhning mexanistik talqinlaridir; ular ushbu tadqiqotda bajarilgan yangi immun javob o‘lchovining natijalari emas.
Ilmiy foydalanish chegarasi: Ushbu Verianla maqolasi asl sharhning virus genom iqtisodiyligi, ko‘p funksiyali oqsillar, xromatin boshqaruvi va xo‘jayinga bog‘liqlik haqidagi ilmiy mexanizmlarini mustaqil o‘quv tuzilmasida tushuntiradi. Batafsil tajriba protokollari, asl molekulyar dalillar, tarixiy manbalar va akademik iqtibos uchun DOI orqali asl sharh hamda u iqtibos qilgan birlamchi tadqiqotlar ko‘rib chiqilishi kerak.
Izoh qoldiring
E-pochta manzilingiz chop etilmaydi. Majburiy maydonlar * bilan belgilangan