

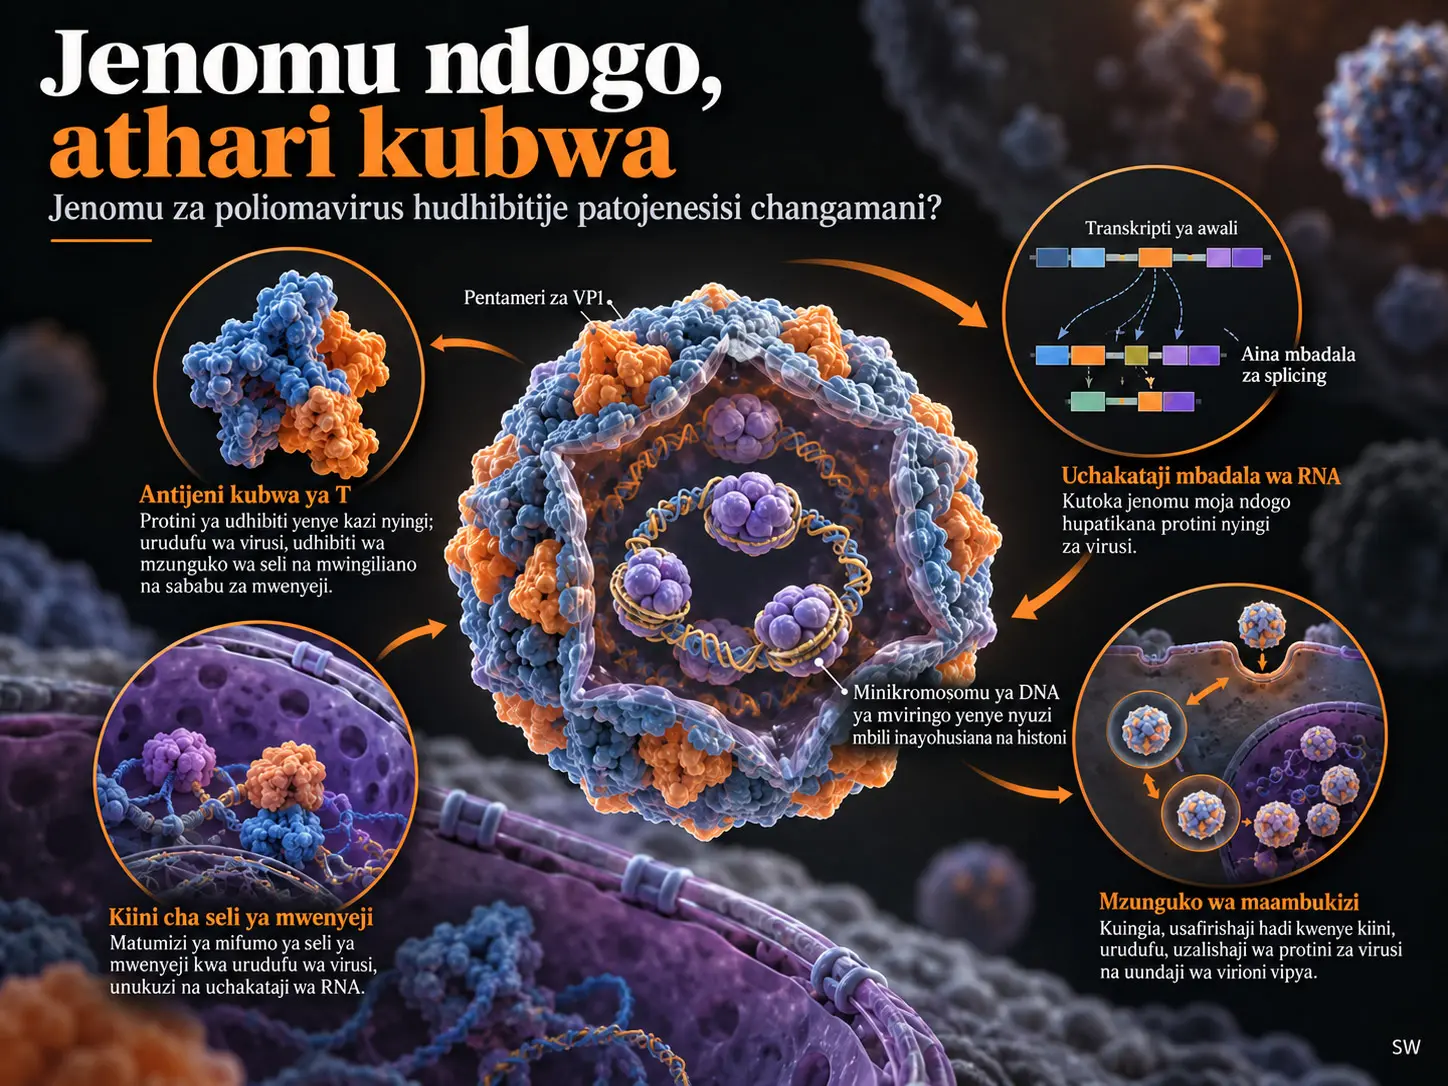
Mapitio haya ya kisayansi yanachunguza jinsi poliomavirusi zenye jenomu kompakt ya DNA yenye urefu wa takribani kilobazi 5 (kb) zinavyoweza kuanzisha mwingiliano changamano wa seli na kutekeleza mizunguko ya maambukizi kwa mafanikio. Uminimali wa virusi (viral minimalism), ni mkabala wa upangaji wa kiutendaji unaotegemea matumizi bora ya mfuatano wa kijeni, protini na miundombinu ya molekuli iliyopo ya seli mwenyeji ili virusi viweze kutekeleza kazi nyingi za kibayolojia kwa taarifa chache za kijeni. Michaela Lano na Barry Milavetz, wakitumia mfano wa Simian virus 40 (SV40), wanaeleza kuwa jenomu ndogo si kizuizi tu; kupitia protini zenye kazi nyingi, splicing mbadala ya RNA, mfuatano wa udhibiti unaopishana na matumizi ya vimeng’enya vya seli mwenyeji, inaweza kuunga mkono michakato changamano ya kibayolojia. Mapitio hayaripoti majaribio mapya ya maabara au matokeo ya kliniki; yanaunganisha taratibu kutoka tafiti za awali za virolojia ya molekuli.
Jenomu ya DNA ya SV40 yenye nyuzi mbili na umbo la duara, yenye urefu wa takribani 5 kb, ina maeneo ya udhibiti kwa usemi wa jeni za mapema na za baadaye. Katika hatua ya mapema huzalishwa protini kama antijeni kubwa T (Large T antigen) na antijeni ndogo t (small t antigen), huku katika hatua ya baadaye zikisanishwa protini za kimuundo zinazohusika katika kuunda chembe ya virusi, hasa VP1, VP2 na VP3. Antijeni kubwa T ina jukumu kuu katika kuanzisha urudufishaji wa DNA ya virusi, kudhibiti usemi wa jeni za virusi na kubadilisha mzunguko wa seli mwenyeji. Ufungashaji wa DNA ya virusi pamoja na histoni za mwenyeji katika umbo la kromosomu ndogo huwezesha udhibiti wa kiepijenetiki kupitia kromatini. Uwezo wa pentama za VP1 kujipanga zenyewe hupunguza hitaji la mashine changamano na maalumu ya virusi ya kufungasha jenomu. Hata hivyo, kuwa na jenomu ndogo kunamaanisha poliomavirusi hutegemea kwa kiwango kikubwa taratibu za seli mwenyeji. Hitimisho kuu la mapitio ni kwamba uchumi wa jenomu hukusanya kazi nyingi za kibayolojia katika nafasi ndogo huku pia ukileta maafikiano kuhusu ulinganifu na mwenyeji na unyeti kwa mabadiliko ya kijeni.
Kutekeleza kazi changamano za kibayolojia kwa idadi ndogo ya jeni
Ukubwa wa jenomu za virusi na idadi ya protini wanazokodisha hutofautiana sana. Baadhi ya virusi vina mamia ya jeni, ilhali vingine vinaweza kuongezeka kwa mafanikio kwa repertua ndogo sana ya kijeni.
Poliomavirusi ni miongoni mwa mifano mashuhuri ya kundi hili la pili. Wanachama wa familia ya Polyomaviridae kwa kawaida ni virusi visivyo na bahasha, vyenye jenomu ya DNA yenye nyuzi mbili yenye urefu wa takribani 5 kb.
SV40, iliyo katikati ya utafiti chanzo, ni poliomavirusi inayowaambukiza kiasili nyani wasio binadamu. Jenomu ya SV40 ya takribani 5 kb ina taarifa za kijeni na udhibiti zinazoweza kusimamia mzunguko wa maambukizi wa hatua nyingi ndani ya seli mwenyeji.
Jambo muhimu kisayansi hapa ni kwamba jenomu ya virusi haikodishi peke yake protini zote zinazohitajika kama jenomu ya kiumbe chenye seli. Virusi hutegemea taratibu nyingi za molekuli ambazo tayari zipo ndani ya seli.
Kwa hiyo, uchumi wa kijeni wa poliomavirusi unategemea mikabala miwili inayokamilishana: protini za virusi zenyewe hutekeleza kazi nyingi, na kazi nyingi zisizokodishwa katika jenomu ya virusi hutekelezwa kupitia miundombinu ya molekuli ya seli mwenyeji.
Poliomavirusi huendeshaje michakato changamano ya maambukizi kwa jenomu ndogo?
Poliomavirusi hupanua uwezo wa jenomu zao za DNA zenye nyuzi mbili zenye urefu wa takribani 5 kb kwa kutumia protini za virusi zenye kazi nyingi, uchakataji mbadala wa RNA, mfuatano wa cis unaodhibiti unaopishana na taratibu za urudufishaji, unakili na kromatini za seli mwenyeji. Katika mfano wa SV40, antijeni kubwa T hutekeleza kwa pamoja kazi nyingi za udhibiti na urudufishaji, huku idadi ndogo ya protini za kapsidi kama VP1, VP2 na VP3 ikiunga mkono uundaji wa chembe mpya za virusi. Taratibu hizi zinaeleza jinsi jenomu ndogo inavyoweza kusimamia mzunguko changamano wa maambukizi; hata hivyo, jenomu kuwa ndogo hakumaanishi kwamba virusi hufanya kazi bila kutegemea seli mwenyeji.
Uhusiano kati ya uchumi wa jenomu na uchangamano wa kiutendaji
Uchumi wa jenomu unamaanisha matumizi bora ya uwezo wa ukodishaji wa kijeni unaohitajika kutekeleza kazi mahususi ya kibayolojia.
Katika SV40, protini moja inaweza kushiriki katika michakato kadhaa ya molekuli. Eneo moja la DNA linaweza kuchangia kazi kadhaa za udhibiti. Aidha, RNA polymerase, DNA polymerase na mifumo ya uchakataji wa RNA ya seli mwenyeji inaweza kutumiwa katika hatua tofauti za maambukizi ya virusi.
Hali hii huruhusu uwezo wa ukodishaji wa kijeni kutumika bila kuwa na jeni tofauti la virusi kwa kila kazi ya molekuli.
Hata hivyo, faida na mipaka ya uchumi wa kijeni zinapaswa kutenganishwa. Mabadiliko katika protini yenye kazi nyingi yanaweza kuathiri si kazi moja tu bali michakato kadhaa ya kibayolojia inayotegemea protini hiyo.
Historia ya mageuzi ya poliomavirusi
Mapitio yanatathmini tafiti za awali za filojeni kuhusu uhusiano wa muda mrefu wa mageuzi kati ya poliomavirusi na wenyeji wao.
Tafiti za mageuzi zilizonukuliwa katika chanzo zinaonyesha kuwa poliomavirusi zinaweza kuwa na historia ya mageuzi ya takribani miaka milioni 500.
Thamani hii si matokeo ya uchanganuzi mpya wa tarehe uliofanywa na Lano na Milavetz. Inategemea matokeo ya tafiti za filojeni zilizochapishwa awali.
Historia ndefu ya mageuzi inaonyesha kuwa poliomavirusi zimeweza kukuza mikakati ya maambukizi inayolingana na aina tofauti za wenyeji. Hata hivyo, haiungi mkono hitimisho kwamba kila aina ya poliomavirusi ina wigo sawa wa wenyeji au kiwango sawa cha pathogenicity.
Seropositivity katika poliomavirusi za binadamu
Seropositivity ni hali ya kugunduliwa kwa kingamwili dhidi ya pathojeni fulani katika damu ya mtu. Seropositivity inaweza kutoa taarifa kuhusu kukumbana kwa awali au mwitikio wa kinga; haimaanishi kila mara maambukizi yanayoendelea.
Katika tafiti za awali zilizonukuliwa katika mapitio, imeelezwa kuwa takribani %50–80 ya watu wanaweza kuwa na seropositivity dhidi ya poliomavirusi za JC au BK.
Kiwango hiki si thamani moja ya seroprevalence ya ulimwengu kwa nchi zote, makundi yote ya umri na jamii zote za sampuli. Kinapaswa kutathminiwa ndani ya wigo wa tafiti za epidemiolojia zilizorejelewa katika chanzo.
Kwa SV40, viwango vya juu vya seropositivity vimeripotiwa katika baadhi ya jamii za nyani wasio binadamu waliofungwa, wakiwemo macaque wa rhesus na baboon.
Tofauti kati ya SV40 na poliomavirusi za binadamu
Wenyeji asilia wa SV40 ni nyani wasio binadamu. Kwa hiyo SV40 haiainishwi kama poliomavirusi ya asili ya binadamu.
Poliomavirusi za binadamu ni pamoja na virusi vya BK, virusi vya JC na poliomavirusi ya seli ya Merkel.
Baadhi ya poliomavirusi za binadamu huhusishwa na magonjwa makubwa, hasa kwa watu wenye kinga iliyodhoofishwa. Virusi vya BK vinaweza kuwa muhimu katika mazingira ya kliniki yanayohusiana na tishu za figo na njia ya mkojo, huku virusi vya JC vikihusishwa na baadhi ya magonjwa ya neva.
Poliomavirusi ya seli ya Merkel ni poliomavirusi ya binadamu inayohusishwa na saratani ya seli ya Merkel.
SV40 imechunguzwa kwa binadamu hasa kwa sababu ya kukumbana kihistoria kupitia chanjo za polio zilizokuwa zimechafuliwa. Mapitio yanagusia tukio hili la kihistoria; lakini hayatoi utafiti mpya wa kliniki unaoonyesha kwamba saratani fulani kwa binadamu husababishwa na SV40.
Udumifu na maambukizi fiche
Baadhi ya poliomavirusi zinaweza kubaki kwa muda mrefu katika tishu za mwenyeji na kuamilishwa tena katika hali zinazofaa.
Maambukizi fiche ni hali ambapo jenomu ya virusi ipo katika mwenyeji lakini mzunguko kamili wa maambukizi yenye uzalishaji hauendelei bila kukoma. Maambukizi sugu yanamaanisha kwamba nyenzo za virusi au maambukizi yenyewe yanaweza kuendelea kwa muda mrefu.
Mapitio yanaangazia hasa uwezekano wa udumifu na uanzishaji upya wa virusi vya BK na JC.
Sifa hizi za kibayolojia ni muhimu kwa kuenea kwa poliomavirusi na kuendelea kwa maambukizi. Hata hivyo, haipaswi kudhaniwa kwamba poliomavirusi zote hutumia programu moja ya maambukizi fiche.
Muundo wa kimwili wa virioni ya SV40
Virioni ni chembe kamili ya virusi iliyo nje ya seli.
Virioni ya SV40 ina kapsidi ya protini isiyo na bahasha ya lipidi na jenomu ya DNA yenye nyuzi mbili yenye umbo la duara iliyo ndani ya kapsidi hiyo.
Kwa sababu jenomu inahusishwa na histoni zinazotokana na seli mwenyeji, haipo kama DNA tupu bali ndani ya muundo unaofanana na kromatini.
Protini kuu ya kimuundo ya kapsidi ni VP1. Protini za VP1 huunda vitengo vya tano, yaani pentama.
VP2 na VP3 ni protini saidizi za kimuundo zilizopo katika sehemu za ndani za kapsidi na huchangia uadilifu wa kapsidi, ulinzi wa jenomu na hatua mbalimbali za maambukizi.
Kutokuwa na bahasha kwa SV40 kunaweza kuathiri ustahimilivu wa virusi kwa hali za mazingira. Katika mapitio, muundo wa kapsidi usio na bahasha unahusishwa hasa na kiwango fulani cha ustahimilivu dhidi ya sababu za uharibifu wa kimazingira kama joto.
Sifa hii haipaswi kutafsiriwa kama ustahimilivu kamili wa mazingira; uwezo wa virusi kuambukiza unaweza kupungua kutegemea hali za mazingira.
Jukumu la kipokezi cha GM1 katika kuingia kwa SV40 kwenye seli
Katika kuingia kwa SV40 kwenye seli, mwingiliano kati ya protini ya kapsidi ya virusi VP1 na ganglioside GM1 kwenye uso wa seli mwenyeji ni muhimu.
Ganglioside ni glycolipid zinazopatikana kwenye utando wa seli na zinazochangia baadhi ya michakato ya utambuzi wa seli na utoaji wa ishara.
SV40 inaweza kuingia ndani ya seli kupitia endocytosis inayotegemea caveola baada ya kuingiliana na GM1.
Endocytosis ni mchakato wa usafirishaji unaowezesha seli kuingiza baadhi ya vitu kutoka mazingira ya nje kupitia utando wa seli.
Kielelezo 1 cha chanzo kinaeleza njia ya usafirishaji ndani ya seli ya virusi kutoka uso wa seli hadi sehemu za endosome, kisha hadi retikulamu ya endoplasma na hatimaye hadi kiini.
Kufunguka kwa sehemu kwa kapsidi katika retikulamu ya endoplasma
Retikulamu ya endoplasma (ER) ni oganeli yenye utando ndani ya seli ambako protini huchakatwa na michakato mbalimbali ya molekuli hufanyika.
Baada ya kuingia kwenye seli, SV40 husafirishwa kupitia sehemu za endosome hadi ER. Katika hatua hii kapsidi hufunguka kwa sehemu.
Kufunguka kwa udhibiti kwa chembe ya virusi ni muhimu ili jenomu iweze kufikia hatua zinazofuata za usafirishaji ndani ya seli na urudufishaji.
Mapitio yanaeleza kuwa katika mchakato huu hutumika taratibu za seli za udhibiti wa ubora wa protini na usafirishaji zinazohusiana na ER.
Kutohitaji seti pana ya protini za usafirishaji zinazokodishwa na virusi vyenyewe wakati wa kuingia kwenye seli ni mfano wa uchumi wa jenomu katika kiwango cha usafirishaji ndani ya seli.
Kwa nini antijeni kubwa T ya SV40 ni protini ya virusi yenye kazi nyingi?
Antijeni kubwa T ya SV40 (Large T antigen) ni protini ya udhibiti ya virusi yenye kazi nyingi ambayo kwa pamoja hutambua eneo la kuanzia urudufishaji wa DNA ya virusi, hufungua DNA yenye nyuzi mbili, hukusanya protini za urudufishaji za mwenyeji, hukandamiza usemi wa jeni za mapema na hubadilisha mzunguko wa seli mwenyeji. Protini hii hupunguza hitaji la SV40 kukodisha protini nyingi tofauti za udhibiti na urudufishaji katika jenomu yake ndogo; lakini athari zake hutegemea taratibu za molekuli za seli mwenyeji.
Kuanza kwa unakili wa mapema
Jenomu ya SV40 inapofika kwenye kiini cha seli, unakili wa jeni za mapema huanza.
Unakili ni mchakato wa kuhamisha taarifa za kijeni kutoka mfuatano wa DNA kwenda RNA.
SV40 hutumia mfumo wa RNA polymerase II (RNAPII) wa seli mwenyeji kwa unakili wa mapema.
Eneo la promota ya mapema lipo ndani ya sehemu ya udhibiti isiyokodisha ya jenomu ya virusi.
Chanzo kinaeleza kuwa eneo hili lina mfuatano wenye GC nyingi, mfuatano wa udhibiti wenye urefu wa jozi 72 za besi (bp) unaojirudia mfululizo, na maeneo ya kufungamana kwa vipengele vya unakili kama Sp1 na AP-1.
Vipengele hivi vya udhibiti huwezesha eneo dogo la DNA kudhibiti kwa ufanisi usemi wa jeni za mapema.
Uzalishaji wa antijeni kubwa T na antijeni ndogo t
RNA tangulizi iliyosanisi kutoka promota ya mapema inaweza kubadilishwa kuwa aina tofauti za mRNA iliyokomaa kupitia michakato ya splicing mbadala.
Kutokana na aina hizi za mRNA huzalishwa protini za mapema za virusi kama antijeni kubwa T na antijeni ndogo t.
Ingawa protini hizi mbili zinahusishwa na eneo la jeni za mapema, si bidhaa zinazofanana zinazotekeleza kazi ileile ya kibayolojia.
Antijeni kubwa T ni muhimu hasa katika kuanzisha urudufishaji wa DNA ya virusi na kubadilisha michakato ya udhibiti wa seli.
Maelezo makuu ya kimekanisti ya mapitio yanazingatia antijeni kubwa T. Mwingiliano wote wa molekuli wa antijeni ndogo t haujafafanuliwa kwa kiwango sawa cha kina.
Antijeni kubwa T na mwanzo wa urudufishaji wa DNA
Urudufishaji wa DNA ya SV40 huanza katika eneo maalumu la kuanzia urudufishaji katika jenomu ya virusi.
Antijeni kubwa T hufungamana na eneo hili na kuwezesha kufunguka kwa eneo maalumu la heliksi mbili ya DNA.
Kazi ya helicase ya antijeni kubwa T huchangia kutenganisha DNA yenye nyuzi mbili kwa ajili ya urudufishaji.
Katika mchakato huu, vipengele kutoka seli mwenyeji kama kompleks ya DNA polymerase alpha–primase, replication protein A na topoisomerase hutumika.
DNA polymerase hushiriki katika usanisi wa mnyororo mpya wa DNA, huku primase ikitengeneza vipande vifupi vya asidi nukleiki vinavyohitajika kuanzisha. Replication protein A husaidia kusimamia maeneo ya DNA yaliyofunguliwa, na topoisomerase hudhibiti mvutano wa kitopolojia wa DNA wakati wa urudufishaji.
Kutoka eneo la kuanzia urudufishaji huundwa uma mbili za urudufishaji zinazokwenda pande mbili na DNA ya virusi hunakiliwa.
Kutokodisha kwa SV40 vimeng’enya tofauti vya urudufishaji kwa kazi hizi zote katika jenomu yake kunategemea matumizi ya pamoja ya udhibiti wa virusi wenye kazi nyingi na vimeng’enya vya mwenyeji.
Kubadilisha mzunguko wa seli mwenyeji
Antijeni kubwa T haifanyi kazi kwenye DNA ya virusi pekee. Pia huingiliana na protini zinazodhibiti kuongezeka kwa seli na usanisi wa DNA katika seli mwenyeji.
Mapitio yanaeleza kuwa antijeni kubwa T inaweza kuathiri wadhibiti wa mzunguko wa seli kama p53 na wanachama wa familia ya protini ya retinoblastoma (pRb).
Mwingiliano huu unaweza kusaidia seli mwenyeji kuingia katika awamu S inayofaa kwa usanisi wa DNA.
Awamu S ni hatua ya mzunguko wa seli ambako DNA hunakiliwa.
Kwa mtazamo wa virusi, mabadiliko haya hurahisisha matumizi ya miundombinu ya urudufishaji ya seli mwenyeji ili kuongeza jenomu ya SV40.
Hata hivyo, kubadilika kwa mzunguko wa seli na kutokea kwa saratani kliniki si matokeo yale yale ya kibayolojia. Mapitio yanajadili athari za molekuli za antijeni kubwa T; si utafiti mpya wa epidemiolojia unaopima marudio ya saratani inayohusishwa na SV40 kwa binadamu.
Ukandamizaji wa usemi wa jeni za mapema
Baada ya urudufishaji wa jenomu ya SV40 kuanza, usemi wa jeni za mapema hauhitaji kuendelea kwa nguvu ileile wakati wote.
Antijeni kubwa T hufungamana na mfuatano wa udhibiti katika eneo la kuanzia urudufishaji wa virusi na promota ya mapema, na hivyo kuchangia ukandamizaji wa unakili wa mapema.
Mrejesho huu wa udhibiti husaidia kuratibu mpito kutoka hatua ya mapema ya maambukizi kwenda hatua ya baadaye.
Kwa hiyo, antijeni kubwa T inaweza kufanya kazi katika mzunguko uleule wa maambukizi kwanza kwa kuandaa hali zinazofaa kwa kuongezeka na kisha kama mdhibiti anayepunguza usemi wa jeni za mapema.
Splicing mbadala ya RNA huongezaje uwezo wa jenomu ya SV40?
Splicing mbadala ya RNA (alternative splicing) huwezesha kuundwa kwa bidhaa nyingi za mRNA iliyokomaa kwa kuchagua na kuunganisha maeneo tofauti ya RNA ndani ya RNA tangulizi moja. Katika SV40, RNA zinazotokana na maeneo ya unakili wa mapema na wa baadaye huchakatwa kwa njia tofauti, hivyo kusaidia uzalishaji wa protini zenye kazi tofauti kutoka kwenye jenomu yenye urefu mdogo. Mianzo mbadala ya tafsiri iliyotajwa kwa VP2, VP3 na VP4 katika hatua ya baadaye ni utaratibu tofauti na splicing mbadala ya RNA, lakini unaokamilisha uchumi wa jenomu.
Utaratibu wa splicing mbadala
Katika seli za yukarioti, baadhi ya nakala za RNA huchakatwa kabla ya kuwa mRNA iliyokomaa.
Wakati wa splicing mbadala, kuhifadhi au kuondoa sehemu tofauti za RNA kunaweza kuwezesha aina tofauti za mRNA kuundwa kutoka eneo moja la kijeni.
SV40 hutumia kompleks ya splicing ya seli mwenyeji iitwayo spliceosome kwa uchakataji wa RNA.
Kwa njia hii, virusi havihitaji kuwa na maeneo ya kijeni yaliyo huru kabisa kwa kila protini ili kuunda bidhaa tofauti za RNA.
Unakili wa baadaye na protini za kapsidi
Baada ya urudufishaji wa DNA ya virusi ya SV40 kuanza, usemi wa jeni za baadaye huamilishwa.
Unakili kupitia promota ya baadaye pia hufanywa na mfumo wa RNA polymerase II wa mwenyeji.
Katika hatua hii, uzalishaji wa protini za kapsidi kama VP1, VP2 na VP3 huwa dhahiri.
Mapitio yanaeleza kuwa sehemu tofauti za kuanzia unakili zinaweza kutumiwa kutoka promota ya baadaye, na RNA zinazotokana nazo hupitia splicing mbadala na polyadenylation.
Polyadenylation, ni mchakato wa uchakataji wa RNA unaohusishwa na uundaji wa mkia wa poly(A) katika mwisho wa 3' wa mRNA nyingi za yukarioti.
Taratibu hizi husaidia kuunda bidhaa tofauti za protini ndani ya urefu mdogo wa jenomu ya virusi.
Tofauti kati ya mwanzo mbadala wa tafsiri na uchakataji mbadala wa RNA
Splicing mbadala ya RNA inahusiana na kukomazwa kwa RNA tangulizi kwa njia tofauti.
Mwanzo mbadala wa tafsiri, kwa upande mwingine, ni kuanzishwa kwa usanisi wa protini kutoka sehemu tofauti za kuanzia kwenye RNA ileile.
Mapitio yanaeleza kuwa protini za VP2, VP3 na VP4 za SV40 zinaweza kuzalishwa kutoka nakala ileile ya RNA kwa kutumia sehemu tofauti za kuanzia tafsiri.
Kwa upande mwingine, VP1 huelezwa kuzalishwa kupitia mRNA iliyofanyiwa splicing tofauti.
Tofauti hii ni muhimu; kwa sababu kuhusisha utofauti wote wa protini za virusi na splicing mbadala ya RNA pekee kungeondoa sehemu ya taratibu za udhibiti wa kijeni zilizoelezwa katika chanzo.
Vipengele vya DNA vya cis-regulatory
Vipengele vya cis-regulatory (cis-regulatory elements), ni mfuatano wa udhibiti uliopo kwenye molekuli ileile ya DNA unaoathiri usemi wa maeneo fulani ya kijeni na michakato inayotokea kwenye DNA.
Katika eneo la udhibiti lisilokodisha la jenomu ya SV40, sehemu ya kuanzia urudufishaji, promota za mapema na za baadaye, na maeneo mbalimbali ya kufungamana kwa vipengele vya unakili yamejikusanya kwa karibu.
Uwezo wa mfuatano mmoja wa DNA kushiriki katika kazi nyingi za udhibiti katika muktadha tofauti wa molekuli huwezesha urefu wa jenomu kutumiwa kwa ufanisi zaidi.
Uwezo wa antijeni kubwa T kuingiliana na maeneo tofauti ya kufungamana ndani ya eneo lilelile la udhibiti huunganisha kuanzishwa kwa urudufishaji wa DNA ya virusi na ukandamizaji wa usemi wa jeni za mapema.
Sehemu kuu ya tatu ya mapitio inachukulia usanifu huu mnene wa cis-regulatory kama mojawapo ya mikakati msingi ya uminimali wa poliomavirusi.
Muundo wa minikromosomu ya virusi
Minikromosomu (minichromosome), ni mpangilio wa nukleoproteini ambapo jenomu ndogo na ya duara ya DNA ya virusi huunda muundo wa kromatini kwa kuhusishwa na protini za histoni.
DNA yenye nyuzi mbili ya SV40 hupangwa juu ya histoni zinazotokana na seli mwenyeji.
Sifa hii haiathiri tu ufungashaji wa jenomu ya virusi, bali pia ni maeneo gani ya DNA yanayoweza kufikiwa na RNA polymerase na vipengele vya urudufishaji.
Kwa hiyo, minikromosomu si namna ya kubeba DNA ya virusi kwa hali tulivu, bali ni muundo hai ambamo usemi wa jeni na urudufishaji hudhibitiwa.
Udhibiti wa kiepijenetiki
Udhibiti wa kiepijenetiki unajumuisha michakato inayowezesha usemi wa jeni kubadilika kupitia muundo wa kromatini au alama za kikemia zinazohusiana na kromatini bila kubadilisha mfuatano wa nyukleotidi za DNA.
Mapitio yanaeleza kuwa mabadiliko ya histoni na uwekaji wa nukleosomu katika kromatini ya SV40 yanahusishwa na udhibiti wa usemi wa jeni za mapema na za baadaye.
Hasa, acetylation ya histoni H3 na H4 imehusishwa na maeneo yenye unakili hai.
Tafiti za awali zilizonukuliwa katika chanzo zinaonyesha kuwa H3 iliyofanyiwa acetylation inaweza kusaidia kutabiri uwekaji wa baadaye wa RNA polymerase II; acetylation ya H3 na H4 pia imeonekana kuhusishwa na usemi hai wa jeni.
Alama za H3K9me1 na H3K9me3, kwa upande mwingine, zinahusishwa na ukandamizaji wa kufungamana kwa RNA polymerase II.
Alama hizi hazipaswi kuchukuliwa peke yake kama sababu huru zinazoeleza udhibiti wote wa unakili. Mapitio yanaunganisha uhusiano wa molekuli kati ya alama za histoni, hali za kromatini na usemi wa jeni.
Uwekaji wa nukleosomu na ufikivu wa DNA
Nukleosomu, ni kitengo msingi cha kromatini ambamo DNA hupangwa kuzunguka protini za histoni.
Katika minikromosomu ya SV40, nukleosomu hazichukuliwi kuwa zimesambazwa kwa nasibu. Nafasi zao karibu na eneo la udhibiti zinaweza kuathiri ni mfuatano gani wa DNA unaoweza kufikiwa.
Chanzo kinaeleza kuwa eneo lisilo na nukleosomu huhifadhiwa katika sehemu inayojumuisha mwanzo wa urudufishaji wa virusi na promota za pande mbili, huku nukleosomu jirani zikizunguka eneo la udhibiti.
Katika hatua tofauti za maambukizi, nafasi za nukleosomu hizi zinaweza kubadilika.
Taratibu za kupanga upya kromatini za seli mwenyeji na antijeni kubwa T hushiriki katika mabadiliko haya.
Kwa hiyo, SV40 inaweza kutumia mfumo wa kiepijenetiki wa seli mwenyeji bila kukodisha repertua pana ya vimeng’enya vyake vya kudhibiti kromatini.
Pentama za VP1 katika uundaji wa kapsidi
Baada ya DNA ya virusi kunakiliwa na protini za kimuundo kuzalishwa, chembe mpya za SV40 zinahitaji kuundwa.
Mchakato huu ni uundaji wa kapsidi na kuingizwa kwa jenomu ndani ya kapsidi (encapsidation) .
Protini kuu ya kapsidi ya SV40, VP1, inaweza kujikusanya yenyewe na kuunda pentama.
Mpangilio wa kapsidi huundwa pentama hizi zinapokusanyika kuzunguka minikromosomu mpya ya virusi.
Protini saidizi za kapsidi kama VP2 na VP3 huchangia mpangilio wa ndani wa kapsidi na sifa za chembe ya virusi zinazohusiana na maambukizi.
Kwa mujibu wa maelezo ya chanzo, uundaji wa kapsidi ya SV40 hauchukuliwi kuwa mchakato wa kusukuma DNA kwa motor yenye nguvu ndani ya kapsidi tupu iliyokamilika mapema.
Badala yake, kukusanyika hatua kwa hatua kwa pentama za VP1 kuzunguka kompleks ya nukleoproteini ya virusi ni muhimu.
Mpangilio huu hupunguza hitaji la motor maalumu za kufungasha jenomu zinazotumia ATP.
Kuendelea kuwepo kwa histoni za mwenyeji juu ya DNA ya virusi pia hupunguza hitaji la kukodisha vipengele vya ziada vya kukandamiza DNA ya virusi.
Kutolewa kwa chembe mpya za virusi kutoka selini
Mojawapo ya hatua za mwisho za mzunguko wa maambukizi ya SV40 ni kuondoka kwa virioni mpya kutoka kwenye seli.
Mapitio yanaeleza taratibu kadhaa zinazohusiana ambazo zinaweza kuchangia SV40 kutoka kwenye seli.
Taratibu hizi ni pamoja na kuundwa kwa vakuoli kubwa ndani ya seli, msongo wa seli unaosababishwa na maambukizi, na mabadiliko ya upenyezaji wa utando yaliyohusishwa katika baadhi ya tafiti na protini VP4.
Si taratibu zote za kutoka kwenye seli zimethibitishwa kwa kiwango kilekile. Hasa, kazi maalumu ya VP4 kama viroporin bado ni suala la mjadala wa kisayansi.
Vakuolizasheni na uadilifu wa utando wa seli
Vakuolizasheni, ni kuundwa au kukua kwa nafasi zilizojaa maji na kuzungukwa na utando ndani ya seli, yaani vakuoli.
Katika maambukizi ya SV40, mabadiliko katika usafirishaji wa ndani ya seli na mienendo ya utando yanaweza kuchangia kuonekana kwa vakuoli kubwa.
Chanzo kinaeleza kuwa baada ya mwingiliano wa VP1 na GM1, njia za utoaji ishara za seli zinazojumuisha Ras, Rac1, MKK4 na JNK zinaweza kuamilishwa.
Mchakato huu unaweza kuhusishwa na kuongezeka kwa endocytosis na kujikusanya kwa sehemu za endosome.
Kuungana mara kwa mara kwa endosome kunaweza kusababisha kuundwa kwa vakuoli kubwa zaidi.
Kujazwa kwa seli na vakuoli kunahusishwa na kuvurugika kwa uadilifu wa utando na kuvunjika kwa seli.
Neno "vacuolating" katika jina SV40 linahusishwa na mabadiliko haya mahsusi ya seli.
Msongo wa seli na njia za kifo
Kuongezeka kwa SV40 ndani ya seli huathiri usanisi wa protini za virusi, urudufishaji wa DNA na michakato ya kimetaboliki ya seli.
Shughuli hizi zinaweza kuleta aina mbalimbali za msongo katika seli mwenyeji.
Mapitio yanaeleza kuwa hitilafu ya kazi ya mitochondria, mzigo wa uzalishaji wa protini na msongo unaohusiana na urudufishaji wa DNA vinaweza kuathiri ishara za kifo cha seli.
Apoptosis na taratibu nyingine za kifo cha seli zinaweza kuhusishwa na kutolewa kwa virusi katika hatua za mwisho za maambukizi.
Mkakati huu si wa SV40 pekee. Chanzo pia kinajadili michakato ya kifo cha seli inayohusiana na uharibifu wa vipengele vya seli mwenyeji katika virusi vya BK, JC na poliomavirusi ya panya.
Protini VP4 na nadharia ya viroporin
Viroporin, ni neno linalotumika kwa protini ndogo za utando za virusi zinazokodishwa na baadhi ya virusi na zinazoweza kubadilisha upenyezaji wa utando wa seli.
Imependekezwa kuwa kutokana na muundo wake wa hidrofobu, protini VP4 ya SV40 inaweza kuingiliana na utando wa seli na kuunda miundo kama vinyweleo vinavyoongeza upenyezaji wa utando.
Kwa mujibu wa pendekezo hili, VP4 inaweza kurahisisha kutolewa kwa virioni mpya kwa kuathiri uadilifu wa utando wa seli kama retikulamu ya endoplasma, bahasha ya kiini na utando wa plasma.
Hata hivyo, chanzo kinaeleza wazi kuwa maelezo ya VP4 kufanya kazi kama viroporin hayajakubaliwa kwa ujumla.
Kwa hiyo, hoja zenye mjadala kuhusu uwepo au kazi ya VP4 hazipaswi kuwasilishwa kama taratibu zilizothibitishwa kabisa na zinazoweza kutumika kwa poliomavirusi zote.
Mapitio pia yanaeleza kuwa hakuna protini zinazofanana moja kwa moja na SV40 VP4 zilizopatikana katika poliomavirusi nyingine.
Kukwepa ufuatiliaji wa kinga
Mfumo wa kinga wa mwenyeji unaweza kutambua maambukizi ya virusi kupitia molekuli mbalimbali za virusi, alama za msongo wa seli na njia za utoaji ishara za kinga.
Mapitio yanajadili repertua ndogo ya protini za virusi za poliomavirusi kama faida inayoweza kusaidia kukwepa ufuatiliaji wa kinga.
Kwa mujibu wa tafsiri ya waandishi, kuzalishwa kwa protini chache za virusi kunaweza kuchangia pia kupunguza idadi ya protini ngeni zinazoweza kutambuliwa na mfumo wa kinga.
Aidha, matumizi ya endocytosis inayotegemea caveola na usafirishaji wa SV40 hadi retikulamu ya endoplasma yanaweza kupunguza kukutana kwa DNA ya virusi na baadhi ya mifumo ya hisia ya seli.
Matumizi ya taratibu za mwenyeji zinazofanana na uharibifu unaohusiana na retikulamu ya endoplasma (ER-associated degradation, ERAD) pia ni muhimu kwa usafirishaji wa ndani ya seli na kufunguka kwa kapsidi.
Mapitio yanatathmini michakato hii kwa mtazamo wa kutekeleza kuingia kwenye seli na hatua za mapema za urudufishaji bila kusababisha mwitikio mkali wa uchochezi.
Hata hivyo, kuwa na idadi ndogo ya protini za virusi hakumaanishi kwa hakika kwamba mwitikio wa kinga utakuwa dhaifu zaidi kwa wenyeji wote. Maelezo ya waandishi ni usanisi wa dhana kutoka tafiti za awali za kimekanisti.
Chanzo pia kinaeleza kuwa SV40 haina repertua pana ya protini maalumu kwa ajili ya kupunguza viwango vya MHC daraja I.
Hoja hii inaunga mkono mtazamo kwamba poliomavirusi si lazima kila mara zikodishe protini nyingi tofauti za immunomodulation ili kukwepa kinga.
Mbinu na Matokeo ya Utafiti
Mbinu ya utafiti na aina ya ushahidi
Kazi ya Lano na Milavetz si utafiti wa majaribio, bali ni mapitio ya kisayansi yanayolenga taratibu.
Waandishi walitathmini tafiti zilizochapishwa kuhusu mpangilio wa jenomu, muundo wa virioni, kuingia katika seli mwenyeji, unakili wa mapema na wa baadaye, urudufishaji wa DNA, uundaji wa kapsidi, kukwepa ufuatiliaji wa kinga na taratibu za kutoka kwenye seli za SV40 na poliomavirusi nyingine.
Msingi wa ushahidi wa mapitio unatokana na tafiti zilizochapishwa awali kuhusu virolojia ya molekuli, biolojia ya seli, mpangilio wa jenomu, udhibiti wa kiepijenetiki na kazi za protini za virusi.
Hakuna sampuli mpya ya wanyama, kundi la watu, mfululizo wa majaribio ya utamaduni wa seli, kampeni ya upangaji mfuatano wa jenomu ya virusi au kipimo cha utendaji wa kliniki kilichoripotiwa katika makala hii.
Utafiti huu si meta-uchanganuzi wa kiasi uliotekelezwa kwa mbinu ya mapitio ya kimfumo. Chanzo hakitoi ukubwa mpya wa athari, kipindi cha kujiamini, hesabu ya umuhimu wa kitakwimu au seti ya pamoja ya data ya majaribio.
Kazi ya kisayansi ya Kielelezo 1 cha chanzo: Mzunguko wa maambukizi
Kielelezo 1 cha chanzo kinaonyesha mzunguko wa maambukizi ya SV40 kama mchakato wa kibayolojia wenye hatua 11.
| Hatua | Tukio kuu | Kipengele cha virusi au seli kinachohusika |
|---|---|---|
| 1 | Kufungamana na uso wa seli mwenyeji | VP1 na kipokezi cha ganglioside GM1 |
| 2 | Endocytosis | Uingizaji ndani ya seli kupitia caveola |
| 3 | Usafirishaji hadi retikulamu ya endoplasma na kufunguka kwa sehemu kwa kapsidi | Mifumo ya usafirishaji wa seli na uchakataji wa ER |
| 4 | Kufika kwa jenomu ya virusi kwenye kiini | Taratibu za usafirishaji wa nyuklia za seli |
| 5 | Unakili wa mapema | RNA polymerase II; mRNA za antijeni kubwa T na antijeni ndogo t |
| 6 | Tafsiri ya protini za mapema | Taratibu za usanisi wa protini za seli mwenyeji |
| 7 | Urudufishaji wa DNA ya virusi | Antijeni kubwa T na protini za urudufishaji wa DNA za mwenyeji |
| 8 | Unakili wa baadaye | Promota ya baadaye, RNA polymerase II na mRNA za protini za kimuundo |
| 9 | Tafsiri ya protini za kimuundo | Usanisi wa VP1, VP2 na VP3 |
| 10 | Uundaji wa kapsidi na ufungashaji wa jenomu | Pentama za VP1, VP2/VP3 na minikromosomu ya virusi |
| 11 | Kutolewa kwa virioni mpya | Kuvurugika kwa uadilifu wa seli na michakato ya seli inayohusiana |
Kielelezo kinaonyesha mpangilio wa kibayolojia wa maambukizi. Hata hivyo, hakina mfululizo wa muda wa kiasi unaoonyesha kila hatua hudumu kwa muda gani. Nambari za hatua kwenye mchoro hazipaswi kutafsiriwa kama muda wa majaribio, kasi ya urudufishaji au idadi ya virusi.
Kazi ya kisayansi ya Kielelezo 2 cha chanzo: Mpangilio wa virioni na jenomu
Kielelezo 2 cha chanzo kinaunganisha viwango viwili tofauti vya kimuundo.
Kielelezo 2a kinaonyesha kapsidi ya nje ya protini ya virioni kamili ya SV40, mpangilio wa pentama za VP1, protini VP2 na VP3, na DNA ya virusi inayohusishwa na histoni ndani ya kapsidi.
Kielelezo 2b kinaonyesha eneo la udhibiti kwenye jenomu ya virusi yenye umbo la duara, maeneo ya unakili wa mapema na wa baadaye, na sehemu zinazokodisha protini.
Katika maelezo ya Kielelezo 2b yanatajwa majina ya antijeni kubwa T, antijeni ndogo t, VP1, VP2, VP3, VP4 na LP1 (agnoprotein).
Umuhimu wa kisayansi wa kuonyesha viwango hivi viwili pamoja ni kwamba jenomu ndogo inaweza kutumia idadi ndogo ya protini za kimuundo na vipengele vya udhibiti kuunda virioni kamili.
Dokezo la majina ndani ya chanzo: Kauli ya “protini sita” katika utangulizi wa makala hailingani kabisa na idadi ya majina ya protini yaliyoorodheshwa katika Kielelezo 2b. Chanzo hakielezi kwa namna inayosuluhisha tofauti hii ni kigezo gani cha kuhesabu kilichotumiwa kuainisha protini. Kwa hiyo majina yaliyotajwa katika maelezo ya kielelezo yamehifadhiwa, na kutolingana kwa idadi hakujarekebishwa kimya kimya.
Kazi kuu za protini za SV40
| Protini | Kazi kuu au uhusiano uliotajwa katika chanzo | Mpaka wa tafsiri ya kisayansi |
|---|---|---|
| Antijeni kubwa T | Urudufishaji wa DNA, shughuli ya helicase, udhibiti wa unakili na udhibiti wa mzunguko wa seli | Sehemu muhimu ya kazi hizi hutegemea mwingiliano na protini za seli mwenyeji. |
| Antijeni ndogo t | Protini ya mapema ya virusi; inahusishwa na michakato ya udhibiti wa seli | Mapitio hayatathmini mwingiliano wake wote wa molekuli kwa kina sawa. |
| VP1 | Uundaji wa pentama za kapsidi na kufungamana na kipokezi cha GM1 | Kazi yake ya kimuundo katika kapsidi inapaswa kutofautishwa na jukumu lake katika kuingia kwenye seli mwenyeji. |
| VP2 | Protini saidizi ya kapsidi, mwingiliano wa jenomu na kapsidi, michakato ya ndani ya seli | Inahusishwa na kazi kadhaa za kimuundo na za seli. |
| VP3 | Protini saidizi ya kapsidi, uadilifu wa kapsidi na mwingiliano wa ndani ya seli | Baadhi ya kazi zinaweza kupishana na VP2; protini hizi si sawa. |
| VP4 | Kazi inayopendekezwa ya viroporin na inayohusishwa na upenyezaji wa utando wa seli | Utaratibu wa viroporin ni suala la mjadala wa kisayansi. |
| LP1 / agnoprotein | Katika Kielelezo 2b cha chanzo, imetajwa kama bidhaa inayohusishwa na eneo la jeni za baadaye. | Makala haichunguzi kazi ya molekuli ya LP1 kwa kina sawa na protini nyingine. |
Jedwali hili halionyeshi kwamba protini zote za SV40 zilipimwa kwa majaribio katika utafiti uleule. Limepangwa kwa kujitegemea kwa kutegemea kazi za protini zilizoelezwa katika mapitio chanzo na majina yaliyo kwenye vielelezo.
Ulinganisho wa kiutendaji wa mikakati ya uminimali wa virusi
| Mkakati | Utaratibu wa molekuli unaotumika | Mchango kwa uchumi wa jenomu | Utegemezi au kizuizi |
|---|---|---|---|
| Protini yenye kazi nyingi | Kazi tofauti za antijeni kubwa T | Kazi nyingi za udhibiti na urudufishaji huunganishwa ndani ya protini moja. | Mabadiliko katika protini yanaweza kuathiri michakato mingi ya kibayolojia. |
| Uchakataji mbadala wa RNA | Bidhaa tofauti za splicing | Bidhaa tofauti za mRNA hupatikana kutoka eneo dogo la ukodishaji. | Mfumo wa uchakataji wa RNA wa seli mwenyeji unahitajika. |
| Mwanzo mbadala wa tafsiri | Sehemu za kuanzia zinazohusishwa na VP2, VP3 na VP4 | Huchangia kuundwa kwa bidhaa tofauti za protini kutoka RNA ileile. | Usanisi na udhibiti wa protini hutegemea mfumo wa mwenyeji. |
| Msongamano wa cis-regulatory | Mwanzo wa urudufishaji, promota na maeneo ya kufungamana | Eneo moja la DNA hutekeleza kazi tofauti za udhibiti. | Mabadiliko katika maeneo ya udhibiti yanaweza kuathiri michakato mingi. |
| Matumizi ya kromatini | Marekebisho ya histoni na uwekaji wa nukleosomu | Hitaji la vimeng’enya tofauti vya virusi vya kudhibiti kromatini hupungua. | Utegemezi kwa taratibu za kiepijenetiki za mwenyeji hujitokeza. |
| Matumizi ya mfumo wa urudufishaji wa mwenyeji | DNA polymerase, primase, topoisomerase na vipengele saidizi | Hakuhitajiki repertua pana ya vimeng’enya vya usanisi wa DNA maalumu kwa virusi. | Mzunguko unaofaa wa seli na vipengele vya mwenyeji vinahitajika. |
| Kujipanga kwa kapsidi | Pentama za VP1 na protini saidizi za kapsidi | Hitaji la utaratibu maalumu wa kufungasha hupungua. | Mwingiliano sahihi wa protini na mpangilio wa kiini vinahitajika. |
Faida za kibayolojia za uchumi wa jenomu
Mapitio yanajadili faida mbalimbali za jenomu ndogo katika urudufishaji wa virusi na uundaji wa chembe.
Kwanza, kuwa na kiasi kidogo cha nyenzo za kijeni kinachohitaji kunakiliwa kunaweza kupunguza rasilimali za molekuli zinazohitajika kwa urudufishaji wa DNA.
Pili, protini zenye kazi nyingi zinaweza kupunguza idadi ya protini za virusi zinazohitaji kuzalishwa kila moja kivyake.
Tatu, kutokodisha kwa virusi repertua pana ya protini zake za urudufishaji na udhibiti wa kromatini kunaweza kuruhusu nafasi ya kijeni kutumika kwa kazi nyingine za lazima.
Nne, kujipanga kwa protini za kapsidi kama VP1 kunaweza kuwezesha uundaji wa virioni kukamilika kwa repertua ndogo zaidi ya protini.
Tano, matumizi ya mifumo ya udhibiti ya seli mwenyeji yanaweza kusaidia kuunganisha hatua mbalimbali za maambukizi ya virusi na taratibu zilizopo za seli.
Faida hizi zinaelezwa katika mapitio kwa muktadha wa kimekanisti na mageuzi. Chanzo hakijazilinganisha faida zote kwa kiasi katika jaribio moja la pamoja.
Mipaka ya kibayolojia ya uchumi wa jenomu
Ufanisi unaotolewa na jenomu ndogo huleta utegemezi muhimu wa kibayolojia.
Urudufishaji wa SV40 hutegemea DNA polymerase za seli mwenyeji, unakili hutegemea RNA polymerase II, na uchakataji wa RNA hutegemea utaratibu wa spliceosome wa mwenyeji.
Ili virusi viweze kutumia miundombinu hii, lazima kuwe na hali zinazofaa za seli.
Hali hii inaweza kuathiri ni aina gani za wenyeji na ni aina gani za tishu zinazofaa kwa maambukizi.
Kizuizi cha pili ni kwamba mabadiliko katika protini zenye kazi nyingi yanaweza kuwa na athari pana. Mabadiliko katika kazi ya antijeni kubwa T yanaweza kuathiri zaidi ya mchakato mmoja kati ya mwanzo wa urudufishaji, udhibiti wa usemi wa jeni na mwingiliano wa mzunguko wa seli.
Kizuizi cha tatu ni kwamba utegemezi kwa taratibu za mwenyeji pia huleta uwezekano wa kukutana na mifumo ya ulinzi ya mwenyeji.
Kwa hiyo, uminimali si faida ya upande mmoja inayotoa ubora katika hali zote za kibayolojia. Kuna maafikiano ya mageuzi kati ya uchumi wa jenomu na unyumbufu wa kiutendaji.
Taarifa teule za kiasi na kimuundo zilizonukuliwa katika chanzo
| Kigezo | Thamani ya chanzo | Kipimo au muktadha | Hali ya kisayansi |
|---|---|---|---|
| Urefu wa jenomu ya SV40 | Takribani 5 | kb | Sifa inayojulikana ya jenomu |
| Muundo wa DNA ya virusi | Nyuzi mbili, duara | Jenomu ya DNA | Sifa ya kimuundo |
| Idadi ya protini iliyoripotiwa katika utangulizi | 6 | Kauli katika utangulizi wa chanzo | Kuna kutolingana kwa kuhesabu ikilinganishwa na majina katika Kielelezo 2b. |
| Historia ya mageuzi ya poliomavirusi | Takribani milioni 500 | Miaka | Makadirio yaliyonukuliwa kutoka tafiti za awali za filojeni |
| Seropositivity ya BK au JC | Takribani %50–80 | Jamii za watu zilizochunguzwa | Masafa yaliyonukuliwa kutoka tafiti za awali za epidemiolojia |
| Mfuatano unaojirudia katika promota ya mapema ya SV40 | 72 | bp | Kipengele cha udhibiti wa jenomu kilichotajwa katika chanzo |
| Kitengo msingi cha kapsidi cha VP1 | 5 | Pentama yenye vitengo vidogo | Mpangilio wa protini ya kimuundo |
| Mchakato katika Kielelezo 1 cha chanzo | 11 | Hatua ya kimchoro | Uwasilishaji wa kielimu wa mzunguko wa maambukizi; si kipimo cha muda au kasi. |
Chanzo hakiripoti modeli mpya ya takwimu, seti huru ya data ya utendaji wa majaribio au uchanganuzi linganishi wa uboreshaji wa jenomu unaounganisha thamani hizi.
Je, jenomu ndogo inathibitisha kwamba poliomavirusi hukwepa kabisa mfumo wa kinga?
Hapana. Jenomu ndogo na repertua ndogo ya protini za poliomavirusi zinahusishwa na sifa za molekuli zinazoweza kuathiri ufuatiliaji wa kinga katika baadhi ya wenyeji; hata hivyo, jenomu kuwa ndogo hakuthibitishi kwamba poliomavirusi zote hukwepa kabisa mfumo wa kinga. Mapitio yanaeleza taratibu kama kuwepo kwa antijeni chache za virusi, matumizi ya njia za usafirishaji za seli mwenyeji na kupunguzwa kwa uharibifu mkubwa wa seli katika hatua za mapema za maambukizi; lakini hayatoi jaribio jipya la kulinganisha linalopima kwa kiwango gani taratibu hizi hupunguza mwitikio wa kinga.
Matokeo yanayoungwa mkono na utafiti
- Fasihi ya kisayansi inaunga mkono kwamba SV40 na poliomavirusi nyingine zinaweza kutekeleza mizunguko changamano ya maambukizi licha ya kuwa na jenomu ndogo.
- Antijeni kubwa T ina jukumu kuu katika kuanzisha urudufishaji wa DNA ya virusi na kubadilisha taratibu za udhibiti za seli mwenyeji.
- Splicing mbadala ya RNA na mwanzo mbadala wa tafsiri huunga mkono uundaji wa bidhaa tofauti za protini kutoka uwezo mdogo wa ukodishaji.
- Vipengele vya cis-regulatory katika jenomu ya SV40 huunganisha kazi nyingi za udhibiti wa kijeni ndani ya eneo moja la DNA.
- Kuundwa kwa minikromosomu na DNA ya virusi pamoja na histoni za mwenyeji huchangia udhibiti wa usemi wa jeni katika kiwango cha kiepijenetiki.
- Kujipanga kwa pentama za VP1 huunga mkono uundaji wa kapsidi kwa repertua ndogo ya protini.
- Katika hatua mbalimbali za maambukizi ya virusi hutumiwa taratibu za urudufishaji, unakili na uchakataji wa RNA za seli mwenyeji.
- Uchumi wa jenomu hutoa ufanisi wa molekuli huku pia ukileta mipaka kuhusu ulinganifu na mwenyeji na athari za mabadiliko ya kijeni.
Matokeo yasiyoungwa mkono na utafiti
- Hauonyeshi kwamba poliomavirusi zote zina kiwango sawa cha pathogenicity katika wenyeji wale wale.
- Hauonyeshi kwamba SV40 ni poliomavirusi ya asili ya binadamu.
- Haithibitishi kwa data mpya za kliniki kwamba SV40 husababisha saratani fulani kwa binadamu.
- Hauonyeshi kwamba masafa ya seropositivity ya takribani %50–80 yanaweza kutumika kwa jamii zote za binadamu.
- Haithibitishi kwamba poliomavirusi zinaweza kukwepa mifumo yote ya kinga.
- Hauonyeshi kwamba kazi ya viroporin ya VP4 imekubaliwa na watafiti wote.
- Haithibitishi kwamba kupungua kwa ukubwa wa jenomu daima husababisha kasi ya juu ya kuongezeka au uambukizaji mkubwa.
- Hauonyeshi kwamba antijeni kubwa T hutekeleza kazi zake zote bila protini za mwenyeji.
- Hauripoti mafanikio ya kutengeneza tiba mpya ya kuzuia virusi, chanjo, kipimo cha uchunguzi au uingiliaji wa kliniki.
- Hausuluhishi tofauti ya kuhesabu kati ya kauli ya protini sita katika utangulizi wa chanzo na majina ya protini katika Kielelezo 2b.
Mipaka mikuu ya kimetodolojia ya mapitio
Kwa kuwa utafiti ni mapitio ya fasihi, taratibu zote zilizoelezwa hazikulinganishwa katika mfumo mmoja wa majaribio na chini ya hali zilezile.
Matokeo yote ya molekuli kuhusu SV40 hayawezi kuhamishwa moja kwa moja kwa wanachama wengine wa familia kama BK, JC au poliomavirusi ya seli ya Merkel.
Hasa, tropism ya seli mwenyeji, mwingiliano na mfumo wa kinga na njia za kutoka kwenye seli zinaweza kutofautiana kulingana na aina ya virusi.
Mapitio hayapimi kwa modeli ya kiasi ya sababu-na-athari ni kwa kiwango gani uchumi wa jenomu huongeza mafanikio ya maambukizi.
Mchango wa uminimali wa virusi katika kukwepa kinga umetathminiwa kwa mfumo wa dhana na kimekanisti. Hakuna jaribio jipya la kinga ya mwenyeji lililotolewa.
Utaratibu wa viroporin wa VP4 umetajwa wazi katika chanzo kama suala la mjadala wa kisayansi. Kuuonyesha kama utaratibu uliothibitishwa kikamilifu kungevuka mpaka wa kisayansi wa tahadhari wa mapitio yenyewe.
Tofauti kati ya utangulizi na maelezo ya kielelezo kuhusu idadi ya protini inapaswa kuzingatiwa wakati wa kutafsiri repertua ya protini katika chanzo.
Mipaka hii haiondoi mchango mkuu wa kisayansi wa mapitio. Hata hivyo, inaweka wazi makala inaeleza nini na ni maswali gani yanahitaji uthibitishaji huru wa majaribio.
Maelezo ya Chanzo na Mbinu
Utafiti asili: Minimal Genome, Maximal Effect: How Polyomavirus Genomes Are Capable of Complex Pathogenesis.
Waandishi: Michaela Lano; Barry Milavetz.
Mwandishi wa mawasiliano: Barry Milavetz.
Taasisi: Department of Biomedical Sciences, University of North Dakota School of Medicine and Health Sciences, Grand Forks, ND 58203, USA.
Jarida: Viruses.
Mchapishaji: MDPI.
Rekodi ya bibliografia: Viruses 2026, 18(5), 533.
DOI: 10.3390/v18050533.
Kiungo rasmi cha chapisho: https://www.mdpi.com/1999-4915/18/5/533
Toleo maalumu: Polyomavirus.
Tarehe ya kuchapishwa: 1 Mei 2026. Makala ilipokelewa 7 Aprili 2026, ikarekebishwa 28 Aprili 2026 na kukubaliwa 29 Aprili 2026.
Aina ya chanzo: Mapitio ya kisayansi yaliyopitiwa na wataalamu (Review). Uchunguzi wa kimekanisti wa virolojia ya molekuli, mpangilio wa jenomu ya virusi, biolojia ya kromatini na mwingiliano wa virusi–mwenyeji.
Mkabala mkuu wa kisayansi: Usanisi wa fasihi unaotathmini athari za kiutendaji za usanifu kompakt wa jenomu za SV40 na poliomavirusi nyingine katika mzunguko wa maambukizi kwa kutegemea tafiti za awali za molekuli.
Taratibu kuu zilizochunguzwa: Kufungamana na vipokezi vya mwenyeji, endocytosis inayotegemea caveola, usafirishaji ndani ya seli kupitia retikulamu ya endoplasma, unakili wa mapema na wa baadaye, urudufishaji wa DNA wa pande mbili, splicing mbadala ya RNA, mianzo mbadala ya tafsiri, vipengele vya cis-regulatory, minikromosomu ya virusi, marekebisho ya histoni, uwekaji wa nukleosomu, kazi za antijeni kubwa T, uundaji wa kapsidi, vakuolizasheni na kukwepa ufuatiliaji wa kinga.
Protini kuu za virusi: Antijeni kubwa T, antijeni ndogo t, VP1, VP2, VP3 na VP4 inayotathminiwa kwa kazi yake yenye mjadala ya viroporin. LP1 (agnoprotein) pia imetajwa katika Kielelezo 2b cha chanzo.
Data mpya za majaribio: Utafiti haukuzalisha data mpya za majaribio.
Uchanganuzi wa takwimu: Hakuna kipimo kipya cha takwimu, thamani ya p, ukubwa wa athari au kipindi cha kujiamini kilichoripotiwa.
Kielelezo 1 cha chanzo: Mzunguko wa maambukizi ya SV40. Maelezo ya kimchoro ya kufungamana na GM1, usafirishaji ndani ya seli, unakili wa mapema, urudufishaji wa DNA ya virusi, unakili wa baadaye, uundaji wa kapsidi na kutolewa.
Kielelezo 2 cha chanzo: Uonyeshaji wa muundo wa kapsidi na minikromosomu ya virioni ya SV40 pamoja na maeneo ya mapema, ya baadaye na ya udhibiti ya jenomu ya virusi.
Taarifa ya utayarishaji wa vielelezo: Waandishi waliripoti kuwa walitumia BioRender kutengeneza vielelezo vya chanzo, wakapitia na kuhariri yaliyomo, na wanawajibika kwa maudhui yaliyochapishwa. Kwa kuwa vielelezo vinatokana na BioRender, masharti husika ya leseni yanapaswa kuzingatiwa kando wakati wa matumizi tena.
Leseni: Leseni ya ufikiaji wazi ya Creative Commons Attribution (CC BY). Masharti tofauti ya matumizi ya wahusika wengine katika vielelezo vya chanzo yanapaswa kutathminiwa pia.
Ufadhili: Utafiti ulifadhiliwa na National Institute of General Medical Sciences chini ya National Institutes of Health (NIH) ya Marekani kupitia msaada namba 5P30GM154634-03, 1P20GM155890 na 5P20GM139759-05.
Mpaka wa taarifa ya ufadhili: Waandishi pekee wanawajibika kwa maudhui ya chapisho; imeelezwa kwamba maoni yaliyotolewa hayawakilishi lazima maoni rasmi ya NIH.
Michango ya waandishi: Uundaji wa dhana M.L. na B.M.; mbinu M.L. na B.M.; programu M.L. na B.M.; uthibitishaji M.L. na B.M.; uchanganuzi rasmi M.L. na B.M.; utafiti M.L. na B.M.; rasilimali M.L. na B.M.; uratibu wa data M.L. na B.M.; rasimu ya awali M.L.; mapitio na uhariri M.L. na B.M.; uonyeshaji M.L. na B.M.; ushauri B.M.; usimamizi wa mradi B.M.; upatikanaji wa ufadhili B.M. uliripotiwa.
Kamati ya maadili: Iliripotiwa kuwa haitumiki.
Ridhaa iliyoarifiwa: Iliripotiwa kuwa haitumiki.
Upatikanaji wa data: Hakuna data mpya iliyozalishwa.
Mgongano wa maslahi: Waandishi wametangaza kuwa hakuna mgongano wa maslahi.
Kikomo kikuu cha kimetodolojia: Makala ni mapitio ya kisayansi ambayo hayafanyi majaribio mapya. Taratibu za kijenomu, molekuli na seli zilizonukuliwa kutoka machapisho tofauti hazijathibitishwa ndani ya mpangilio mmoja wa pamoja wa majaribio.
Tahadhari ya ndani ya chanzo 1: Katika utangulizi wa makala hutumiwa kauli ya protini sita kwa SV40, ilhali maelezo ya Kielelezo 2b yana majina ya T kubwa, t ndogo, VP1, VP2, VP3, VP4 na LP1. Tofauti hii ya kuhesabu haijasahihishwa kwa tafsiri ya nje ya chanzo.
Tahadhari ya ndani ya chanzo 2: Mchango wa VP4 katika kutoka kwenye seli kupitia viroporin ni utaratibu unaopendekezwa katika chanzo na haujakubaliwa kwa ujumla.
Tahadhari ya ndani ya chanzo 3: Maelezo kuhusu kukwepa ufuatiliaji wa kinga ni tafsiri za kimekanisti za mapitio; si matokeo ya kipimo kipya cha mwitikio wa kinga kilichofanywa katika utafiti huu.
Mpaka wa matumizi ya kisayansi: Makala hii ya Verianla inaeleza kwa muundo huru wa kielimu taratibu za kisayansi kutoka mapitio asili kuhusu uchumi wa jenomu ya virusi, protini zenye kazi nyingi, udhibiti wa kromatini na utegemezi kwa mwenyeji. Kwa itifaki za kina za majaribio, ushahidi asili wa molekuli, vyanzo vya kihistoria na marejeo ya kitaaluma, mapitio asili kupitia DOI na tafiti za msingi zinazorejelewa humo zinapaswa kuchunguzwa.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *