

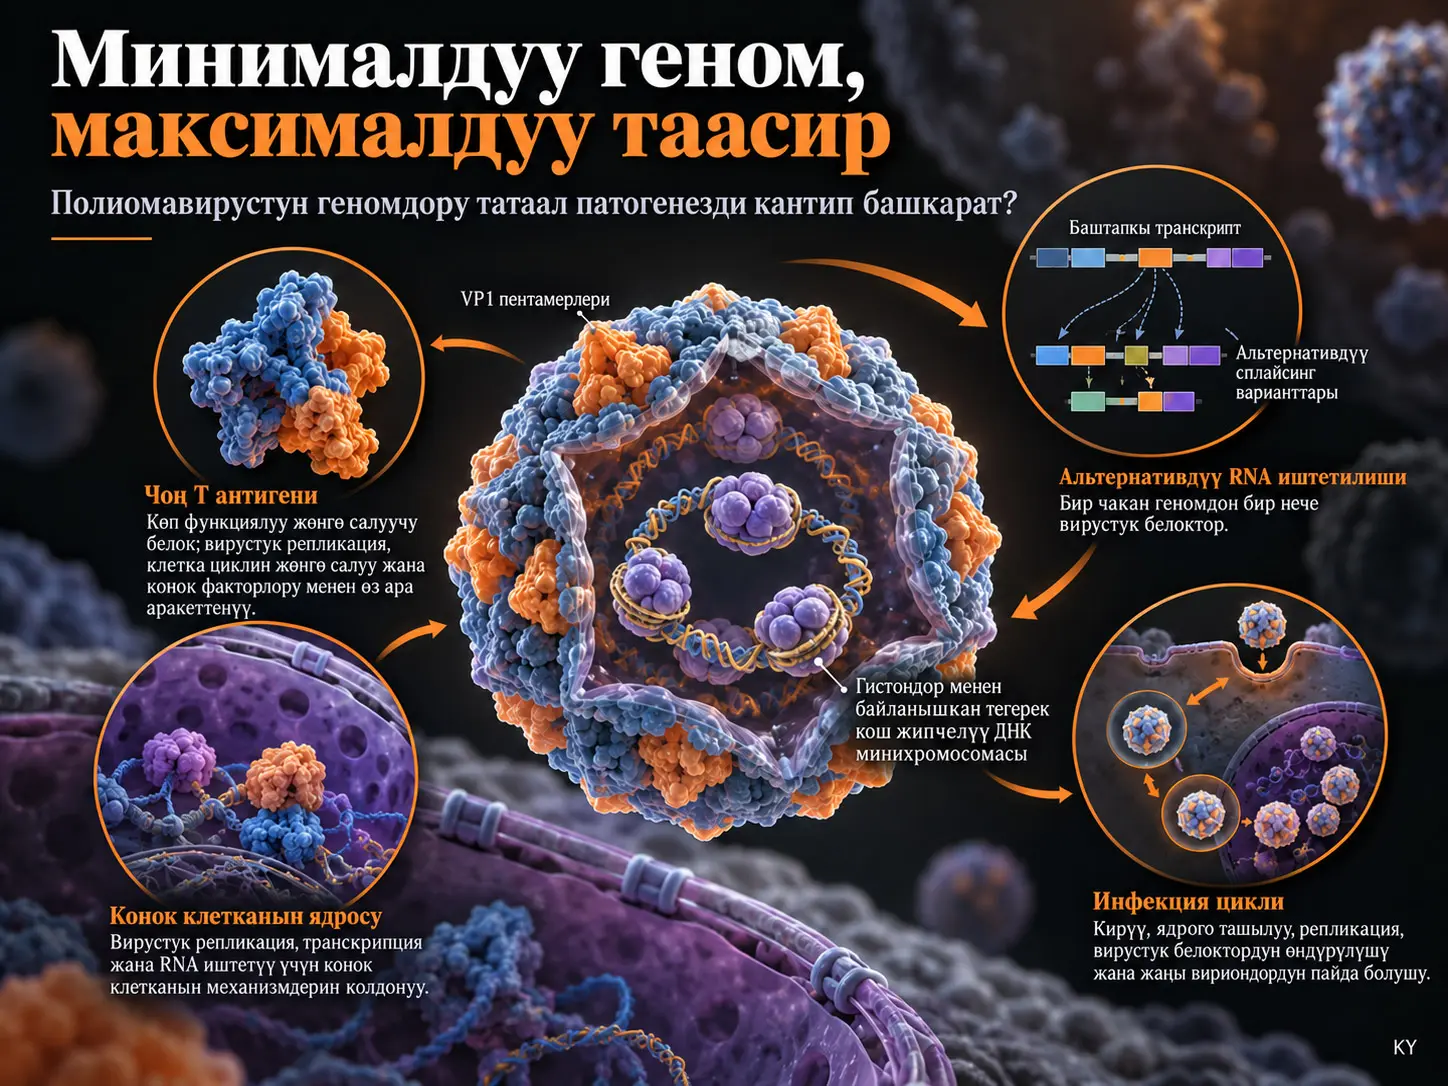
Бул илимий сереп болжол менен 5 килобаза (kb) узундуктагы компакттуу ДНК геномуна ээ полиомавирустар кандайча татаал клеткалык өз ара аракеттенүүлөрдү түзө аларын жана ийгиликтүү инфекциялык циклдерди ишке ашыра аларын карайт. Вирустук минимализм (viral minimalism), вирус чектелүү генетикалык маалымат менен бир нече биологиялык функцияны аткаруу үчүн генетикалык ырааттуулуктарды, белокторду жана кабыл алуучу клетканын бар болгон молекулалык инфраструктурасын натыйжалуу пайдаланган функционалдык уюшуу ыкмасы. Michaela Lano жана Barry Milavetz Simian virus 40 (SV40) мисалында кичине геном жөн гана чектөө эместигин; көп функциялуу белоктор, альтернативдүү РНК сплайсинги, бири-бирин каптаган жөнгө салуучу ырааттуулуктар жана кабыл алуучу клетканын ферменттерин пайдалануу аркылуу татаал биологиялык процесстерди колдой аларын түшүндүрүшөт. Сереп жаңы лабораториялык тажрыйбаларды же клиникалык жыйынтыктарды билдирбейт; мурда жарыяланган молекулалык вирусология изилдөөлөрүнүн механизмдерин бириктирет.
SV40тын болжол менен 5 kb узундуктагы кош чынжырлуу тегерек ДНК геному эрте жана кеч ген экспрессиясы үчүн жөнгө салуучу аймактарды камтыйт. Эрте баскычта чоң T антигени (Large T antigen) жана кичине t антигени (small t antigen) сыяктуу белоктор өндүрүлсө, кеч баскычта VP1, VP2 жана VP3 баш болгон вирус бөлүкчөсүнүн түзүлүшүнө катышкан структуралык белоктор синтезделет. Чоң T антигени вирустук ДНК репликациясынын башталышында, вирустук ген экспрессиясынын жөнгө салынышында жана кабыл алуучу клетканын циклинин өзгөртүлүшүндө борбордук роль ойнойт. Вирустук ДНКнын кабыл алуучу гистондор менен минихромосома түрүндө таңгакталышы хроматин аркылуу эпигенетикалык жөнгө салууга мүмкүндүк берет. VP1 пентамерлеринин өзүнөн-өзү уюшулушу болсо татаал жана вируска мүнөздүү геном таңгактоочу машинага болгон муктаждыкты азайтат. Ошол эле учурда геномдун кичине болушу полиомавирустардын кабыл алуучу клетканын механизмдерине жогорку деңгээлде көз каранды экенин билдирет. Серептин негизги тыянагы — геном экономиясы биологиялык функцияларды тыгыздаштырып, ошол эле учурда кабыл алуучуга ылайыкташуу жана мутацияга сезгичтик жагынан компромисстерди жаратат.
Аз сандагы гендер менен татаал биологиялык функцияларды аткаруу
Вирустардын геном өлчөмдөрү жана алар коддогон белоктордун саны олуттуу айырмаланат. Айрым вирустарда жүздөгөн гендер болсо, башкалары кыйла чектелген генетикалык репертуар менен ийгиликтүү көбөйө алышат.
Полиомавирустар ушул экинчи топтун көрүнүктүү мисалдарынын бири. Polyomaviridae үй-бүлөсүнүн мүчөлөрү көбүнчө болжол менен 5 kb узундуктагы кош чынжырлуу ДНК геномуна ээ, кабыкчасыз вирустар.
Булак изилдөөнүн борборундагы SV40 табигый түрдө адам эмес приматтарды инфекциялай турган полиомавирус. SV40тын болжол менен 5 kb геному кабыл алуучу клетканын ичинде көп баскычтуу инфекциялык циклди башкара ала турган генетикалык жана жөнгө салуучу маалыматты камтыйт.
Бул жерде илимий жактан маанилүүсү — вирустук геном клеткалуу организмдин геному сыяктуу бардык керектүү белокторду өз алдынча коддобойт. Вирус көптөгөн функциялар үчүн клеткада буга чейин бар болгон молекулалык механизмдерге көз каранды.
Демек, полиомавирустардын генетикалык экономиясы бири-бирин толуктаган эки ыкмага таянат: вирустун өз белоктору бир нече милдетти аткарат жана вирустук геномдо коддолбогон көптөгөн функциялар кабыл алуучу клетканын молекулалык инфраструктурасы аркылуу ишке ашат.
Полиомавирустар кичине геномдор менен татаал инфекциялык процесстерди кантип жүргүзөт?
Полиомавирустар болжол менен 5 kb узундуктагы кош чынжырлуу ДНК геномдорунун мүмкүнчүлүгүн көп функциялуу вирустук белоктор, альтернативдүү РНК иштетүү, бири-бирин каптаган cis-жөнгө салуучу ырааттуулуктар жана кабыл алуучу клетканын репликация, транскрипция жана хроматин механизмдери аркылуу кеңейтет. SV40 мисалында чоң T антигени көптөгөн жөнгө салуучу жана репликативдик функцияларды бирге аткарса, VP1, VP2 жана VP3 сыяктуу чектелүү сандагы капсид белоктору жаңы вирус бөлүкчөлөрүнүн түзүлүшүн колдойт. Бул механизмдер кичине геном татаал инфекциялык циклди башкара аларын түшүндүрөт; бирок геномдун кичине болушу вирус кабыл алуучу клеткадан көз карандысыз иштейт дегенди билдирбейт.
Геном экономиясы менен функционалдык татаалдыктын байланышы
Геном экономиясы белгилүү бир биологиялык функцияны аткаруу үчүн керектүү генетикалык коддоо мүмкүнчүлүгүн натыйжалуу пайдаланууну билдирет.
SV40та бир эле белок бир нече молекулалык процессте катыша алат. Бир эле ДНК аймагы бир нече жөнгө салуучу функцияга салым кошо алат. Мындан тышкары, кабыл алуучу клетканын РНК полимеразалары, ДНК полимеразалары жана РНК иштетүү системалары вирустук инфекциянын ар кандай баскычтарында пайдаланылышы мүмкүн.
Бул ар бир молекулалык функция үчүн өзүнчө вирустук ген болбостон генетикалык коддоо мүмкүнчүлүгүн колдонууга шарт түзөт.
Бирок генетикалык экономиянын артыкчылыктары менен чектөөлөрү бири-биринен айырмаланышы керек. Көп функциялуу белокто болгон мутация бир эле милдетти эмес, ошол белок колдогон бир нече биологиялык процессти таасирленте алат.
Полиомавирустардын эволюциялык тарыхы
Сереп полиомавирустардын кабыл алуучулары менен узак мөөнөттүү эволюциялык байланыштарды түзгөнүнө байланыштуу мурдагы филогенетикалык изилдөөлөрдү баалайт.
Булакта келтирилген эволюциялык изилдөөлөр полиомавирустардын болжол менен 500 миллион жылдык эволюциялык тарыхы болушу мүмкүн экенин көрсөтөт.
Бул маани Lano жана Milavetzтин жаңы даталоо анализинин жыйынтыгы эмес. Ал мурда жарыяланган филогенетикалык изилдөөлөрдүн табылгаларына негизделет.
Узак эволюциялык тарых полиомавирустар ар кандай кабыл алуучу түрлөргө ылайык инфекциялык стратегияларды өнүктүрө алганын көрсөтөт. Бирок бул ар бир полиомавирус түрү бирдей кабыл алуучу диапазонго же бирдей патогендүүлүккө ээ деген тыянакты колдобойт.
Адам полиомавирустарындагы серопозитивдүүлүк
Серопозитивдүүлүк — адамдын канында белгилүү бир патогенге каршы антителолордун табылышы. Серопозитивдүүлүк мурдагы таасирленүү же иммундук жооп жөнүндө маалымат бере алат; ал дайыма активдүү инфекцияны билдирбейт.
Серепте келтирилген мурдагы изилдөөлөрдө адамдардын болжол менен %50–80и JC же BK полиомавирустарына каршы серопозитивдүү болушу мүмкүн экени айтылат.
Бул көрсөткүч бардык өлкөлөр, жаш курак топтору жана үлгү популяциялар үчүн бирдиктүү универсалдуу серопреваленттүүлүк мааниси эмес. Ал булакта келтирилген эпидемиологиялык изилдөөлөрдүн чегинде бааланышы керек.
SV40 үчүн болсо резус макакалары жана бабуиндер кошулган айрым туткундагы адам эмес примат популяцияларында жогорку серопозитивдүүлүк көрсөткүчтөрү келтирилет.
SV40 менен адам полиомавирустарынын айырмасы
SV40тын табигый кабыл алуучулары адам эмес приматтар. Ошондуктан SV40 табигый адам полиомавирусу катары классификацияланбайт.
Адам полиомавирустарына BK вирусу, JC вирусу жана Меркель клетка полиомавирусу кирет.
Айрым адам полиомавирустары, өзгөчө иммундук системасы басылган адамдарда, олуттуу оорулар менен байланыштуу. BK вирусу бөйрөк жана заара жолдорунун ткандары менен, JC вирусу болсо айрым неврологиялык оорулар менен байланышкан клиникалык контексттерде маанилүү болушу мүмкүн.
Меркель клетка полиомавирусу Меркель клеткалуу карцинома менен байланышкан адам полиомавирусу.
SV40 болсо адамдарда, өзгөчө тарыхта булганган полиомиелит вакциналарына байланыштуу таасирленүү себептүү изилденген. Сереп бул тарыхый окуяга токтолот; бирок адамдарда белгилүү бир рактардын SV40дан улам пайда болорун көрсөткөн жаңы клиникалык изилдөө бербейт.
Персистенция жана латенттик инфекция
Айрым полиомавирустар кабыл алуучунун ткандарында узак убакыт сакталат жана ылайыктуу шартта кайра активдешиши мүмкүн.
Латенттик инфекция — вирустук геном кабыл алуучуда бар болгону менен толук продуктивдүү инфекциялык цикл тынымсыз жүрбөгөн абалдардын бири. Персистенттүү инфекция болсо вирустук материалдын же инфекциянын узак убакыт сакталышын билдирет.
Сереп өзгөчө BK жана JC вирустары үчүн персистенция жана кайра активдешүү мүмкүнчүлүгүнө көңүл бурат.
Бул биологиялык өзгөчөлүктөр полиомавирустардын таралышы жана инфекциянын туруктуулугу үчүн маанилүү. Бирок бардык полиомавирустар бирдей латенттик инфекция программасын колдонот деп божомолдоого болбойт.
SV40 вирионунун физикалык түзүлүшү
Вирион — клетканын сыртындагы толук калыптанган вирус бөлүкчөсү.
SV40 вириону липиддик кабыкчасы жок белоктук капсидден жана анын ичиндеги кош чынжырлуу тегерек ДНК геномунан турат.
Геном кабыл алуучу клеткадан чыккан гистондор менен байланышкандыктан, жылаңач ДНК түрүндө эмес, хроматинге окшош түзүлүштө болот.
Капсиддин негизги структуралык белогу VP1. VP1 белоктору бештик бирдиктерди, башкача айтканда пентамерлерди түзөт.
VP2 жана VP3 капсиддин ички бөлүктөрүндө жайгашкан, капсиддин бүтүндүгүнө, геномдун корголушуна жана инфекциянын ар кандай баскычтарына салым кошкон жардамчы структуралык белоктор.
SV40тын кабыкчасыз болушу вирустун айлана-чөйрө шарттарына туруктуулугуна таасир этиши мүмкүн. Серепте кабыкчасыз капсид түзүлүшү өзгөчө ысык сыяктуу айлана-чөйрөлүк бузуу факторлоруна карата белгилүү туруктуулук менен байланышат.
Бул касиет абсолюттук экологиялык туруктуулук катары чечмеленбеши керек; вирустук инфекциялуулук айлана-чөйрө шарттарына жараша азайышы мүмкүн.
SV40тын клеткага киришинде GM1 рецепторунун ролу
SV40тын клеткага киришинде вирустук капсид белогу VP1 менен кабыл алуучу клетканын бетиндеги GM1 ганглиозидинин өз ара аракеттенүүсү маанилүү.
Ганглиозиддер клетка мембранасында жайгашкан жана айрым клеткалык таануу жана сигнал процесстерине салым кошкон гликолипиддер.
SV40 GM1 менен өз ара аракеттенүү аркылуу кавеола ортомчулук кылган эндоцитоз менен клеткага кириши мүмкүн.
Эндоцитоз — клетканын тышкы чөйрөсүндөгү айрым заттарды клетка мембранасы аркылуу ичине кабыл алуусун камсыз кылган ташуу процесси.
Булактагы 1-сүрөт вирустун клетка бетинен эндосомалык бөлүмдөргө, андан эндоплазмалык ретикулумга жана кийин ядросуна чейинки клетка ичиндеги ташуу жолун түшүндүрөт.
Эндоплазмалык ретикулумда капсиддин жарым-жартылай ачылышы
Эндоплазмалык ретикулум (ER) — клетка ичинде белоктор иштетилип, ар кандай молекулалык процесстер жүрүүчү мембраналуу органелла.
SV40 клеткага киргенден кийин эндосомалык бөлүмдөр аркылуу ERге ташылат. Бул этапта капсид жарым-жартылай чечилет.
Вирус бөлүкчөсүнүн көзөмөлдөнгөн түрдө ачылышы геномдун кийинки клетка ичиндеги ташуу жана репликация баскычтарына жетиши үчүн маанилүү.
Сереп бул процессте клетканын ER менен байланышкан белок сапатын көзөмөлдөө жана ташуу механизмдери колдонуларын билдирет.
Вирус клеткага кирүүдө өзү коддогон кеңири ташуучу белоктор топтомуна муктаж болбошу геном экономиясынын клетка ичиндеги ташуу деңгээлиндеги мисалы.
Эмне үчүн SV40тын чоң T антигени көп функциялуу вирустук белок?
SV40тын чоң T антигени (Large T antigen) вирустук ДНК репликациясынын башталуу аймагын таануу, кош чынжырлуу ДНКны ачуу, кабыл алуучу репликация белокторун чогултуу, эрте ген экспрессиясын басуу жана кабыл алуучу клетканын циклин өзгөртүү функцияларын бириктирген көп функциялуу вирустук жөнгө салуучу белок. Бул белок SV40тын чектелүү геномунда көп сандагы өзүнчө жөнгө салуучу жана репликативдик белокторду коддоо зарылдыгын азайтат; бирок анын таасири кабыл алуучу клетканын молекулалык механизмдерине көз каранды.
Эрте транскрипциянын башталышы
SV40 геному клетка ядросуна жеткенде эрте гендердин транскрипциясы башталат.
Транскрипция — ДНК ырааттуулугундагы генетикалык маалыматтын РНКга көчүрүлүү процесси.
SV40 эрте транскрипция үчүн кабыл алуучу клетканын РНК полимераза II (RNAPII) системасын колдонот.
Эрте промотор аймагы вирустук геномдун коддобогон жөнгө салуучу бөлүгүндө жайгашат.
Булакта бул аймакта GCге бай ырааттуулуктар, удаалаш кайталанган 72 база жуп (bp) узундуктагы жөнгө салуучу ырааттуулуктар жана Sp1 менен AP-1 сыяктуу транскрипция факторлорунун байланышуу аймактары бар экени айтылат.
Бул жөнгө салуучу элементтер чектелүү ДНК аймагынын эрте ген экспрессиясын натыйжалуу көзөмөлдөшүнө мүмкүндүк берет.
Чоң T жана кичине t антигендеринин өндүрүлүшү
Эрте промотордон синтезделген прекурсор РНК альтернативдүү сплайсинг процесстери аркылуу ар кандай жетилген mRNA түрлөрүнө айланышы мүмкүн.
Бул mRNA түрлөрүнөн чоң T антигени жана кичине t антигени сыяктуу эрте вирустук белоктор өндүрүлөт.
Эки белок тең эрте ген аймагы менен байланыштуу болгону менен бир эле биологиялык милдетти аткарган бирдей продукттар эмес.
Чоң T антигени өзгөчө вирустук ДНК репликациясын баштоо жана клеткалык жөнгө салуучу процесстерди өзгөртүү жагынан маанилүү.
Серептин негизги механисттик түшүндүрмөсү чоң T антигенине багытталган. Кичине t антигенинин бардык молекулалык өз ара аракеттенүүлөрү бирдей деңгээлде талданган эмес.
Чоң T антигени жана ДНК репликациясынын башталышы
SV40тын ДНК репликациясы вирустук геномдогу аныкталган репликация башталуу аймагында башталат.
Чоң T антигени бул аймакка байланып, ДНК кош спиралынын жергиликтүү ачылышын камсыз кылат.
Чоң T антигенинин хеликаза функциясы кош чынжырлуу ДНКнын репликация үчүн ажырашына салым кошот.
Бул процессте кабыл алуучу клеткадан ДНК полимераза альфа–примаза комплекси, репликация белогу A жана топоизомеразалар сыяктуу факторлор колдонулат.
ДНК полимераза жаңы ДНК чынжырын синтездесе, примаза баштоо үчүн керек болгон кыска нуклеин кычкылынын фрагменттерин түзөт. Репликация белогу A ачылган ДНК аймактарын башкарууга, топоизомеразалар болсо репликация учурунда ДНКнын топологиялык чыңалуусун көзөмөлдөөгө катышат.
Репликация башталуу аймагынан эки багыттуу репликация айрылары пайда болуп, вирустук ДНК көчүрүлөт.
SV40 өз геномунда бул функциялардын баары үчүн өзүнчө репликация ферменттерин коддобогону көп функциялуу вирустук жөнгө салуу менен кабыл алуучу ферменттерин бирге пайдаланууга негизделет.
Кабыл алуучу клетканын циклин өзгөртүү
Чоң T антигени вирустук ДНКда гана иштебейт. Ал кабыл алуучу клетканын көбөйүшү жана ДНК синтези процесстерин жөнгө салган белоктор менен да өз ара аракеттенет.
Сереп чоң T антигени p53 жана ретинобластома белок үй-бүлөсүнүн (pRb) мүчөлөрү сыяктуу клетка циклинин жөнгө салуучуларына таасир эте аларын билдирет.
Бул өз ара аракеттенүүлөр кабыл алуучу клетканын ДНК синтези үчүн ыңгайлуу S фазасына киришин колдошу мүмкүн.
S фазасы — клетка циклинде ДНК көчүрүлүүчү баскыч.
Вирустук көз караштан бул өзгөрүү кабыл алуучу клетканын репликация инфраструктурасын SV40 геномун көбөйтүү үчүн пайдаланууну жеңилдетет.
Бирок клетка циклин өзгөртүү менен клиникалык рак пайда болушу бирдей биологиялык натыйжа эмес. Сереп чоң T антигенинин молекулалык таасирин карайт; ал адамдарда SV40 менен байланышкан рактын жыштыгын аныктаган жаңы эпидемиологиялык изилдөө эмес.
Эрте ген экспрессиясынын басылышы
SV40 геномунун репликациясы башталгандан кийин эрте ген экспрессиясы дайыма бирдей интенсивдүүлүктө уланууга тийиш эмес.
Чоң T антигени вирустук репликациянын башталуу жана эрте промотор аймагындагы жөнгө салуучу ырааттуулуктарга байланып, эрте транскрипциянын басылышына салым кошот.
Бул жөнгө салуучу кайтарым байланыш инфекциянын эрте баскычынан кеч баскычына өтүүнү координациялайт.
Демек, чоң T антигени бир эле инфекциялык циклде адегенде көбөйүүгө ыңгайлуу шарттарды түзүп, андан кийин эрте ген экспрессиясын чектеген жөнгө салуучу катары иштей алат.
Альтернативдүү РНК сплайсинги SV40 геномунун мүмкүнчүлүгүн кантип көбөйтөт?
Альтернативдүү РНК сплайсинги (alternative splicing) бир прекурсор РНКдагы ар башка РНК бөлүктөрүн тандап бириктирүү аркылуу бир нече жетилген mRNA продуктусунун түзүлүшүнө мүмкүндүк берет. SV40та эрте жана кеч транскрипция аймактарынан алынган РНКлар ар башка жол менен иштетилип, чектелүү геном узундугунан түрдүү функциядагы белоктордун өндүрүлүшү колдоого алынат. Кеч баскычта VP2, VP3 жана VP4 үчүн көрсөтүлгөн альтернативдүү трансляция башталыштары болсо альтернативдүү РНК сплайсингинен өзүнчө, бирок геном экономиясын толуктаган механизм.
Альтернативдүү сплайсинг механизми
Эукариот клеткаларда айрым РНК транскрипттери жетилген mRNAга айланардан мурда иштетилет.
Альтернативдүү сплайсинг учурунда РНКнын ар кандай бөлүктөрүн сактоо же алып салуу бир генетикалык аймактан ар башка mRNA түрлөрүнүн түзүлүшүнө шарт түзүшү мүмкүн.
SV40 РНКны иштетүү үчүн кабыл алуучу клетканын spliceosome деп аталган сплайсинг комплексин колдонот.
Ошентип, вирус ар түрдүү РНК продуктуларын түзүү үчүн ар бир белокко толугу менен өз алдынча генетикалык аймактарды кармоого мажбур болбойт.
Кеч транскрипция жана капсид белоктору
SV40 вирустук ДНКсынын репликациясы башталгандан кийин кеч ген экспрессиясы активдешет.
Кеч промотор аркылуу жүргөн транскрипция да кабыл алуучу РНК полимераза II системасы менен аткарылат.
Бул баскычта VP1, VP2 жана VP3 сыяктуу капсид белокторунун өндүрүлүшү айкын болот.
Серепте кеч промотордон ар башка транскрипция башталуу чекиттери колдонулушу мүмкүн экени, пайда болгон РНКлар альтернативдүү сплайсинг жана полиаденилденүү процесстеринен өтөрү түшүндүрүлөт.
Полиаденилденүү, көптөгөн эукариот mRNAларынын 3' учунда поли(A) куйругунун түзүлүшүнө байланышкан РНК иштетүү процесси.
Бул механизмдер вирустук геномдун чектелүү узундугунда түрдүү белок продуктуларынын түзүлүшүнө жардам берет.
Альтернативдүү трансляция башталышы менен альтернативдүү РНК иштетүүнүн айырмасы
Альтернативдүү РНК сплайсинги прекурсор РНКнын ар кандай түрдө жетилишине байланыштуу.
Альтернативдүү трансляция башталышы болсо белок синтезинин ошол эле РНКда ар башка башталуу аймактарынан башталышы.
Сереп SV40тын VP2, VP3 жана VP4 белоктору бир эле РНК транскриптинен ар башка трансляция башталуу чекиттерин колдонуу менен өндүрүлүшү мүмкүн экенин билдирет.
Ал эми VP1 өзүнчө сплайсингден өткөн mRNA аркылуу өндүрүлөрү түшүндүрүлөт.
Бул айырма маанилүү; анткени бардык вирустук белок ар түрдүүлүгүн альтернативдүү РНК сплайсингине гана байланыштыруу булакта сүрөттөлгөн генетикалык жөнгө салуу механизмдеринин бир бөлүгүн жокко чыгарат.
Cis-жөнгө салуучу ДНК элементтери
Cis-жөнгө салуучу элементтер (cis-regulatory elements), белгилүү генетикалык аймактардын экспрессиясына жана ДНКдагы процесстерге таасир эткен, ошол эле ДНК молекуласында жайгашкан жөнгө салуучу ырааттуулуктар.
SV40 геномунун коддобогон жөнгө салуучу аймагында репликация башталуу чекити, эрте жана кеч промоторлор жана ар кандай транскрипция факторлорунун байланышуу аймактары тыгыз жайгашкан.
Бир ДНК ырааттуулугу ар түрдүү молекулалык контексттерде бир нече жөнгө салуучу милдетке катыша алышы геном узундугун натыйжалуу пайдаланууга мүмкүндүк берет.
Чоң T антигенинин ошол эле жөнгө салуучу аймактагы ар башка байланышуу чекиттери менен өз ара аракеттенүүсү вирустук ДНК репликациясынын башталышы менен эрте ген экспрессиясынын басылышынын ортосунда байланышты түзөт.
Серептин үчүнчү негизги бөлүгү бул тыгыз cis-жөнгө салуучу архитектураны полиомавирус минимализминин негизги стратегияларынын бири катары карайт.
Вирустук минихромосоманын түзүлүшү
Минихромосома (minichromosome), кичине жана тегерек вирустук ДНК геному гистон белоктору менен байланышып, хроматин түзүлүшүн пайда кылган нуклеопротеиндик уюшуу.
SV40тын кош чынжырлуу ДНКсы кабыл алуучу клеткадан чыккан гистондордун үстүндө уюшулат.
Бул өзгөчөлүк вирустук геномдун таңгакталышына гана эмес, РНК полимеразалары менен репликация факторлору кайсы ДНК аймактарына жете аларына да таасир этет.
Ошондуктан минихромосома вирустук ДНКнын пассивдүү ташуу формасы эмес, ген экспрессиясы жана репликация жөнгө салынган динамикалык түзүлүш.
Эпигенетикалык жөнгө салуу
Эпигенетикалык жөнгө салуу ДНКнын нуклеотиддик ырааттуулугу өзгөрбөстөн, хроматин түзүлүшү же хроматин менен байланышкан химиялык белгилер аркылуу ген экспрессиясынын өзгөрүшүнө мүмкүндүк берген процесстерди камтыйт.
Серепте SV40 хроматининдеги гистон модификациялары жана нуклеосомалардын жайгашуусу эрте жана кеч ген экспрессиясынын жөнгө салынышы менен байланыштуу экени түшүндүрүлөт.
Айрыкча H3 жана H4 гистондорунун ацетилдениши активдүү транскрипция аймактары менен байланышкан.
Булакта келтирилген мурдагы изилдөөлөр ацетилденген H3 РНК полимераза IIнин кийинки жайгашуусун алдын ала айтууга жардам бере аларын; H3 жана H4 ацетилдениши активдүү ген экспрессиясы менен байланышканын көрсөтөт.
H3K9me1 жана H3K9me3 белгилери болсо РНК полимераза IIнин байланышынын басылышы менен байланышат.
Бул белгилер өз алдынча бүт транскрипциялык жөнгө салууну түшүндүргөн көз карандысыз себептер катары каралбашы керек. Сереп гистон белгилери жана хроматин абалдары менен ген экспрессиясынын ортосундагы молекулалык байланыштарды синтездейт.
Нуклеосоманын жайгашуусу жана ДНКга жеткиликтүүлүк
Нуклеосома, ДНК гистон белокторунун айланасында уюшулган негизги хроматин бирдиги.
SV40 минихромосомасында нуклеосомалар туш келди таралган деп эсептелбейт. Алардын жөнгө салуучу аймакка жакын жайгашуусу ДНКдагы кайсы ырааттуулуктар жеткиликтүү болоруна таасир этиши мүмкүн.
Булак вирустук репликациянын башталуу чекити жана эки багыттуу промоторлор камтылган аймакта нуклеосомасыз зона сакталары, ал эми коңшу нуклеосомалар жөнгө салуучу аймакты курчап турары түшүндүрөт.
Инфекциянын ар кандай баскычтарында бул нуклеосомалардын жайгашуусу өзгөрүшү мүмкүн.
Кабыл алуучу клетканын хроматинди кайра түзүү механизмдери жана чоң T антигени бул өзгөрүүлөрдө роль ойнойт.
Ушул себептен SV40 өзүнүн хроматинди жөнгө салуучу ферменттерин кеңири репертуар түрүндө коддобостон, кабыл алуучу клетканын эпигенетикалык системасын пайдалана алат.
Капсид түзүлүшүндөгү VP1 пентамерлери
Вирустук ДНК көчүрүлүп, структуралык белоктор өндүрүлгөндөн кийин жаңы SV40 бөлүкчөлөрү түзүлүшү керек.
Бул процесс капсиддин түзүлүшү жана геномдун капсиддин ичине алынышы (encapsidation) процесси.
SV40тын негизги капсид белогу VP1 өзүнөн-өзү пентамерлерди түзө алат.
Бул пентамерлер жаңы синтезделген вирустук минихромосоманын айланасында биригип, капсид түзүлүшүн пайда кылат.
VP2 жана VP3 сыяктуу жардамчы капсид белоктору капсиддин ички уюшулушуна жана вирус бөлүкчөсүнүн инфекцияга байланышкан касиеттерине салым кошот.
Булактын түшүндүрмөсүнө ылайык, SV40 капсидинин түзүлүшү алдын ала толук калыптанган бош капсиддин ичине ДНКны күчтүү мотор менен түртүү түрүндө каралбайт.
Анын ордуна VP1 пентамерлеринин вирустук нуклеопротеин комплексинин айланасында акырындап биригиши маанилүү.
Бул түзүлүш атайын ATP колдонгон геном таңгактоочу моторлорго болгон муктаждыкты азайтат.
Кабыл алуучу гистондорунун вирустук ДНКда кала бериши кошумча вирустук ДНКны тыгыздоочу факторлорду коддоо зарылдыгын да чектейт.
Жаңы вирус бөлүкчөлөрүнүн клеткадан чыгышы
SV40 инфекциялык циклинин акыркы баскычтарынын бири жаңы түзүлгөн вириондордун клеткадан бөлүнүп чыгышы.
Сереп SV40тын клеткадан чыгышы үчүн өз ара байланышкан бир нече механизмди түшүндүрөт.
Бул механизмдерге клетка ичинде чоң вакуолдордун пайда болушу, инфекциядан улам клеткалык стресс жана айрым изилдөөлөрдө VP4 белогу менен байланышкан мембрананын өткөрүмдүүлүгүндөгү өзгөрүүлөр кирет.
Клеткадан чыгуу механизмдеринин баары бирдей деңгээлде ырасталган эмес. Айрыкча VP4түн белгилүү виопориндик функциясы илимий талаш-тартыштын предмети.
Вакуолизация жана клетка мембранасынын бүтүндүгү
Вакуолизация, клетка ичинде суюктук камтыган мембрана менен курчалган көңдөйлөрдүн, башкача айтканда вакуолдордун пайда болушу же чоңоюшу.
SV40 инфекциясында клетка ичиндеги ташуу жана мембрана динамикасындагы өзгөрүүлөр чоң вакуолдордун пайда болушуна салым кошушу мүмкүн.
Булак VP1дин GM1 менен өз ара аракеттенүүсүнөн кийин Ras, Rac1, MKK4 жана JNK камтыган клеткалык сигнал жолдору активдеше аларын билдирет.
Бул процесс күчөгөн эндоцитоз жана эндосомалык бөлүмдөрдүн топтолушу менен байланыштуу болушу мүмкүн.
Эндосомалардын кайра-кайра биригиши чоңураак вакуолдордун пайда болушуна алып келиши мүмкүн.
Вакуолдордун клетканы толтурушу мембрана бүтүндүгүнүн бузулушу жана клетканын талкаланышы менен байланышат.
Вирустун SV40 атындагы "vacuolating" сөзү ушул мүнөздүү клеткалык өзгөрүү менен байланыштуу.
Клеткалык стресс жана өлүм жолдору
SV40тын клетка ичинде көбөйүшү вирустук белок синтезине, ДНК репликациясына жана клеткалык метаболизм процесстерине таасир этет.
Бул аракеттер кабыл алуучу клеткада ар кандай стресс жаратышы мүмкүн.
Сереп митохондрия функциясынын бузулушу, белок өндүрүү жүгү жана ДНК репликациясына байланышкан стресс клетканын өлүм сигналдарына таасир этиши мүмкүн экенин билдирет.
Апоптоз жана башка клетка өлүм механизмдери инфекциянын акыркы баскычтарында вирустун чыгышы менен байланыштуу болушу мүмкүн.
Бул стратегия SV40ка гана мүнөздүү эмес. Булак BK, JC жана чычкан полиомавирустары үчүн да кабыл алуучу клетканын компоненттеринин бузулушуна байланышкан клетка өлүм процесстерин талкуулайт.
VP4 белогу жана виопорин гипотезасы
Виопорин, айрым вирустар коддогон жана клеткалык мембрананын өткөрүмдүүлүгүн өзгөртө алган кичине вирустук мембрана белоктору үчүн колдонулган термин.
SV40 VP4 белогунун гидрофобдук түзүлүшүнөн улам клеткалык мембраналар менен өз ара аракеттене алары жана мембрананын өткөрүмдүүлүгүн жогорулатуучу тешик сымал түзүлүштөрдү пайда кыла алары сунушталган.
Бул сунуш боюнча VP4 эндоплазмалык ретикулум, ядро кабыкчасы жана плазмалык мембрана сыяктуу клеткалык мембраналардын бүтүндүгүнө таасир этип, жаңы вириондордун чыгышын жеңилдетиши мүмкүн.
Бирок булак VP4 виопорин катары иштейт деген түшүндүрмө жалпы кабыл алынбаганын ачык билдирет.
Ошондуктан VP4түн бар-жогу же функциясы боюнча талаштуу маселелер толук далилденген жана бардык полиомавирустарга жалпыланчу механизмдер катары көрсөтүлбөшү керек.
Сереп ошондой эле башка полиомавирустарда SV40 VP4кө түздөн-түз окшош белоктор табылбаганын билдирет.
Иммундук көзөмөлдөн качуу
Кабыл алуучунун иммундук системасы вирустук инфекцияларды ар кандай вирустук молекулалар, клеткалык стресс белгилери жана иммундук сигнал жолдору аркылуу тааный алат.
Сереп полиомавирустардын чектелүү вирустук белок репертуарын иммундук көзөмөлдөн качуу жагынан артыкчылык катары талкуулайт.
Авторлордун чечмелөөсүнө ылайык, азыраак вирустук белок өндүрүлүшү иммундук система тааный ала турган бөтөн белоктордун санынын да чектелишине салым кошушу мүмкүн.
Мындан тышкары, SV40тын кавеола ортомчулук кылган эндоцитозду колдонушу жана эндоплазмалык ретикулумга ташылышы вирустук ДНКнын айрым клеткалык аныктоо системалары менен жолугушуусун азайтышы мүмкүн.
Эндоплазмалык ретикулум менен байланышкан деградацияга (ER-associated degradation, ERAD) окшош кабыл алуучу механизмдерин колдонуу да клетка ичиндеги ташуу жана капсиддин чечилиши үчүн маанилүү.
Сереп бул процесстерди күчтүү сезгенүү реакциясын жаратпастан клеткага кирүү жана эрте репликация баскычтарын ишке ашыруу жагынан баалайт.
Бирок вирустук белоктордун аз болушу бардык кабыл алуучуларда сөзсүз түрдө алсызыраак иммундук жооп пайда болорун көрсөтпөйт. Авторлор берген түшүндүрмө мурдагы механисттик изилдөөлөрдүн концептуалдык синтези.
Булакта SV40 MHC класс I деңгээлин төмөндөтүү үчүн атайын кеңири белок репертуарына ээ эместиги да айтылат.
Бул жагдай полиомавирустар иммунитеттен качуу үчүн дайыма көп сандагы өзүнчө иммуномодуляциялоочу белокторду коддоого тийиш эмес деген көз карашты колдойт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Изилдөө ыкмасы жана далил түрү
Lano жана Milavetzтин иши эксперименттик изилдөө эмес, механизмге багытталган илимий сереп.
Авторлор SV40 жана башка полиомавирустардын геном түзүлүшү, вирион түзүлүшү, кабыл алуучу клеткага кириши, эрте жана кеч транскрипциясы, ДНК репликациясы, капсид түзүлүшү, иммундук көзөмөлдөн качуусу жана клеткадан чыгуу механизмдери тууралуу жарыяланган изилдөөлөрдү баалашкан.
Серептин далилдик базасын молекулалык вирусология, клетка биологиясы, геном уюшулушу, эпигенетикалык жөнгө салуу жана вирустук белок функциялары боюнча мурда жарыяланган иштер түзөт.
Бул макалада жаңы жаныбар үлгүсү, адам когорту, клетка культурасы эксперименттеринин сериясы, вирус геномун секвенирлөө кампаниясы же клиникалык натыйжалуулукту өлчөө билдирилген эмес.
Изилдөө системалуу сереп методологиясы менен жүргүзүлгөн сандык мета-анализ эмес. Булакта жаңы таасир көлөмү, ишеним аралыгы, статистикалык маанилүүлүк эсеби же жалпы эксперименттик маалымат топтому берилбейт.
Булактагы 1-сүрөттүн илимий милдети: Инфекциялык цикл
Булактагы 1-сүрөт SV40 инфекциялык циклин 11 баскычтуу биологиялык процесс катары көрсөтөт.
| Баскыч | Негизги окуя | Катышкан вирустук же клеткалык компонент |
|---|---|---|
| 1 | Кабыл алуучу клетканын бетине байланышы | VP1 жана GM1 ганглиозид рецептору |
| 2 | Эндоцитоз | Кавеола ортомчулук кылган клетка ичине кабыл алуу |
| 3 | Эндоплазмалык ретикулумга ташылуу жана капсиддин жарым-жартылай ачылышы | Клеткалык ташуу жана ER иштетүү системалары |
| 4 | Вирустук геномдун ядроого жетиши | Клеткалык ядролук ташуу механизмдери |
| 5 | Эрте транскрипция | РНК полимераза II; чоң T жана кичине t антигенинин mRNAлары |
| 6 | Эрте белоктордун трансляциясы | Кабыл алуучу клетканын белок синтези механизмдери |
| 7 | Вирустук ДНК репликациясы | Чоң T антигени жана кабыл алуучунун ДНК репликация белоктору |
| 8 | Кеч транскрипция | Кеч промотор, РНК полимераза II жана структуралык белок mRNAлары |
| 9 | Структуралык белоктордун трансляциясы | VP1, VP2 жана VP3 синтези |
| 10 | Капсид түзүлүшү жана геном таңгакталышы | VP1 пентамерлери, VP2/VP3 жана вирустук минихромосома |
| 11 | Жаңы вириондордун чыгышы | Клетка бүтүндүгүнүн бузулушу жана байланышкан клеткалык процесстер |
Сүрөт инфекциянын биологиялык ырааттуулугун көрсөтөт. Бирок ар бир баскыч канча убакытка созулары тууралуу сандык убакыт катарын камтыбайт. Схемадагы баскыч номерлери эксперименттик убакыт, репликация ылдамдыгы же вирустардын саны катары чечмеленбеши керек.
Булактагы 2-сүрөттүн илимий милдети: Вирион жана геном уюшулушу
Булактагы 2-сүрөт эки башка структуралык масштабды бириктирет.
2a-сүрөт толук түзүлгөн SV40 вирионунун тышкы белоктук капсидин, VP1 пентамерлеринин жайгашуусун, VP2 жана VP3 белокторун жана капсиддин ичиндеги гистондор менен байланышкан вирустук ДНКны көрсөтөт.
2b-сүрөт болсо тегерек вирустук геномдогу жөнгө салуучу аймакты, эрте жана кеч транскрипция аймактарын жана белок коддоочу бөлүктөрдү көрсөтөт.
2b-сүрөттүн түшүндүрмөсүндө чоң T антигени, кичине t антигени, VP1, VP2, VP3, VP4 жана LP1 (agnoprotein) аттары келтирилет.
Бул эки масштабды бирге көрсөтүүнүн илимий мааниси — кичине геном чектелүү сандагы структуралык белокторду жана жөнгө салуучу элементтерди колдонуп толук вирион түзө алат.
Булак ичиндеги аталыш боюнча эскертүү: Макаланын киришиндеги “алты белок” деген сөз менен 2b-сүрөттө тизмеленген белок аттарынын саны толук дал келбейт. Булак бул айырманы жоё тургандай кылып белоктор кайсы эсептөө критерийи боюнча классификацияланганын түшүндүрбөйт. Ошондуктан сүрөт түшүндүрмөсүндө берилген аттар сакталган, сандык дал келбестик үнсүз өзгөртүлгөн эмес.
SV40 белокторунун негизги функциялары
| Белок | Негизги функция же булакта көрсөтүлгөн байланыш | Илимий чечмелөөнүн чеги |
|---|---|---|
| Чоң T антигени | ДНК репликациясы, хеликаза активдүүлүгү, транскрипцияны жөнгө салуу жана клетка циклин көзөмөлдөө | Функциялардын маанилүү бөлүгү кабыл алуучу клетканын белоктору менен өз ара аракеттенүүгө көз каранды. |
| Кичине t антигени | Эрте вирустук белок; клеткалык жөнгө салуучу процесстер менен байланыштуу | Сереп анын бардык молекулалык өз ара аракеттенүүлөрүн бирдей деңгээлде баалабайт. |
| VP1 | Капсид пентамерлеринин түзүлүшү жана GM1 рецепторуна байланышы | Структуралык капсид функциясы менен кабыл алуучу клеткага кирүүдөгү ролу айырмаланышы керек. |
| VP2 | Жардамчы капсид белогу, геном жана капсид өз ара аракеттенүүлөрү, клетка ичиндеги процесстер | Бир нече структуралык жана клеткалык функциялар менен байланыштуу. |
| VP3 | Жардамчы капсид белогу, капсиддин бүтүндүгү жана клетка ичиндеги өз ара аракеттенүүлөр | VP2 менен айрым милдеттери дал келиши мүмкүн; белоктор бирдей эмес. |
| VP4 | Сунушталган виопорин жана клетка мембранасынын өткөрүмдүүлүгүнө байланышкан функция | Виопорин механизми илимий талаш-тартыштын предмети. |
| LP1 / agnoprotein | Булактагы 2b-сүрөттө кеч ген аймагы менен байланышкан продукт катары аталат. | Макала LP1дин молекулалык функциясын башка белоктор сыяктуу майда-чүйдөсүнө чейин карабайт. |
Бул таблица SV40тын бардык белоктору эксперименттик түрдө бир изилдөөнүн ичинде өлчөнгөнүн билдирбейт. Ал булак серепте түшүндүрүлгөн белок функциялары жана сүрөттөрдөгү аталыштар боюнча өз алдынча түзүлгөн.
Вирустук минимализм стратегияларынын функционалдык салыштырылышы
| Стратегия | Колдонулган молекулалык механизм | Геном экономиясына салымы | Көз карандылык же чектөө |
|---|---|---|---|
| Көп функциялуу белок | Чоң T антигенинин ар кандай милдеттери | Бир нече жөнгө салуучу жана репликативдик функция бир белокто биригет. | Белоктогу өзгөрүүлөр бир нече биологиялык процесске таасир этиши мүмкүн. |
| Альтернативдүү РНК иштетүү | Ар кандай сплайсинг продуктулары | Чектелүү коддоо аймагынан ар башка mRNA продуктулары алынат. | Кабыл алуучу клетканын РНК иштетүү системасы талап кылынат. |
| Альтернативдүү трансляция башталышы | VP2, VP3 жана VP4 менен байланышкан башталуу чекиттери | Бир эле РНКдан ар башка белок продуктуларынын түзүлүшүнө салым кошот. | Белок синтези жана жөнгө салынышы кабыл алуучу системага көз каранды. |
| Cis-жөнгө салуучу тыгыздык | Репликация башталышы, промоторлор жана байланышуу аймактары | Бир ДНК аймагы ар кандай жөнгө салуучу милдеттерди аткарат. | Жөнгө салуучу аймактардагы өзгөрүүлөр бир нече процесске таасир этиши мүмкүн. |
| Хроматинди колдонуу | Гистон модификациясы жана нуклеосома жайгашуусу | Өзүнчө вирустук хроматин жөнгө салуучу ферменттерге муктаждык азаят. | Кабыл алуучунун эпигенетикалык механизмдерине көз карандылык пайда болот. |
| Кабыл алуучунун репликация системасын колдонуу | ДНК полимеразалары, примаза, топоизомеразалар жана жардамчы факторлор | Вируска мүнөздүү кеңири ДНК синтези ферменттеринин репертуары талап кылынбайт. | Ылайыктуу клетка цикли жана кабыл алуучу факторлор керек. |
| Капсиддин өзүнөн-өзү уюшулушу | VP1 пентамерлери жана жардамчы капсид белоктору | Атайын таңгактоо механизминин зарылдыгы азаят. | Туура белок өз ара аракеттенүүлөрү жана ядролук уюшуу талап кылынат. |
Геном экономиясынын биологиялык артыкчылыктары
Сереп чектелүү геномдун вирустук репликация жана бөлүкчө түзүү жагынан ар кандай артыкчылыктарын талкуулайт.
Биринчиден, көчүрүлүшү керек болгон генетикалык материалдын көлөмү чектелүү болушу ДНК репликациясы талап кылган молекулалык ресурстарды азайтышы мүмкүн.
Экинчиден, көп функциялуу белоктор өз-өзүнчө өндүрүлүүгө тийиш болгон вирустук белоктордун санын азайтышы мүмкүн.
Үчүнчүдөн, вирус өзүнүн репликация жана хроматинди жөнгө салуучу белокторун кеңири түрдө коддобогону генетикалык аймакты башка зарыл функциялар үчүн колдонууга шарт түзүшү мүмкүн.
Төртүнчүдөн, VP1 сыяктуу капсид белокторунун өзүнөн-өзү уюшулушу вирион түзүлүшүн чектелүү белок репертуары менен бүтүрүүгө шарт түзүшү мүмкүн.
Бешинчиден, кабыл алуучу клетканын жөнгө салуу системаларын колдонуу вирустук инфекциянын ар кандай баскычтарын учурдагы клеткалык механизмдер менен бириктирүүгө жардам бериши мүмкүн.
Бул артыкчылыктар серепте механисттик жана эволюциялык алкакта түшүндүрүлөт. Булак бардык артыкчылыктарды бир экспериментте сандык түрдө салыштырган эмес.
Геном экономиясынын биологиялык чектөөлөрү
Минималдуу геном камсыз кылган натыйжалуулук маанилүү биологиялык көз карандылыктарды жаратат.
SV40тын репликациясы кабыл алуучу клетканын ДНК полимеразаларына, транскрипциясы РНК полимераза IIге, РНК иштетилиши болсо кабыл алуучунун spliceosome механизмиге көз каранды.
Вирус бул инфраструктураны пайдалана алышы үчүн ылайыктуу клеткалык шарттар болушу керек.
Бул жагдай кайсы кабыл алуучу түрлөр жана кайсы ткань түрлөр инфекция үчүн ыңгайлуу экенине таасир этиши мүмкүн.
Экинчи чектөө — көп функциялуу белоктордогу мутациялар кеңири таасир бере алышы. Чоң T антигенинин функциясындагы өзгөрүү репликациянын башталышы, ген экспрессиясынын жөнгө салынышы жана клетка цикли менен өз ара аракеттенүүлөрдүн бир нечесине таасир этиши мүмкүн.
Үчүнчү чектөө — кабыл алуучу механизмдерине көз карандылык ошол эле учурда кабыл алуучунун коргонуу системалары менен кездешүү мүмкүнчүлүгүн да жаратат.
Ошондуктан минимализм бардык биологиялык шарттарда артыкчылык берген бир тараптуу пайда эмес. Геном экономиясы менен функционалдык ийкемдүүлүктүн ортосунда эволюциялык компромисстер бар.
Булакта берилген тандалган сандык жана структуралык маалыматтар
| Параметр | Булактагы маани | Бирдик же контекст | Илимий статус |
|---|---|---|---|
| SV40 геномунун узундугу | Болжол менен 5 | kb | Белгилүү геномдук өзгөчөлүк |
| Вирустук ДНК түзүлүшү | Кош чынжырлуу, тегерек | ДНК геному | Структуралык өзгөчөлүк |
| Кириште билдирилген белок саны | 6 | Булактын киришиндеги сөз | 2b-сүрөттөгү аталыштар менен эсептөөдө дал келбестик бар. |
| Полиомавирустардын эволюциялык тарыхы | Болжол менен 500 миллион | Жыл | Мурдагы филогенетикалык изилдөөлөрдөн алынган баа |
| BK же JC серопозитивдүүлүгү | Болжол менен %50–80 | Изилденген адам популяциялары | Мурдагы эпидемиологиялык изилдөөлөрдөн алынган аралык |
| SV40 эрте промоторундагы кайталануучу ырааттуулук | 72 | bp | Булакта көрсөтүлгөн геномдук жөнгө салуучу элемент |
| VP1 негизги капсид бирдиги | 5 | Суббирдиктүү пентамер | Структуралык белок уюшулушу |
| Булактагы 1-сүрөттөгү процесс | 11 | Схемалык баскыч | Инфекциялык циклдин окутуучу сүрөттөлүшү; убакыт же ылдамдык өлчөмү эмес. |
Булакта бул маанилерди бириктирген жаңы статистикалык модель, көз карандысыз эксперименттик натыйжалуулук маалымат топтому же салыштырмалуу геном оптималдаштыруу анализи билдирилген эмес.
Кичине геном полиомавирустар иммундук системадан толугу менен качарын далилдейби?
Жок. Полиомавирустардын кичине геномдору жана чектелүү белок репертуары айрым кабыл алуучуларда иммундук көзөмөлгө таасир бере турган молекулалык өзгөчөлүктөр менен байланыштуу; бирок геномдун кичине болушу бардык полиомавирустар иммундук системадан толугу менен качарын далилдебейт. Сереп аз сандагы вирустук антигендердин болушу, кабыл алуучу клетканын ташуу жолдорун колдонуу жана инфекциянын эрте баскычтарында күчтүү клеткалык бузулууну чектөө сыяктуу механизмдерди түшүндүрөт; бирок булар иммундук жоопту канчалык азайтарын көрсөткөн жаңы салыштырма эксперимент бербейт.
Изилдөө колдогон жыйынтыктар
- SV40 жана башка полиомавирустар чектелүү геном узундугуна карабастан татаал инфекциялык циклдерди ишке ашыра алары илимий адабият тарабынан колдоого алынат.
- Чоң T антигени вирустук ДНК репликациясынын башталышында жана кабыл алуучу клетканын жөнгө салуучу механизмдеринин өзгөртүлүшүндө борбордук роль ойнойт.
- Альтернативдүү РНК сплайсинги жана альтернативдүү трансляция башталышы чектелүү коддоо мүмкүнчүлүгүнөн ар башка белок продуктуларынын түзүлүшүн колдойт.
- SV40 геномунун cis-жөнгө салуучу элементтери бир ДНК аймагында бир нече генетикалык көзөмөл функциясын бириктирет.
- Вирустук ДНКнын кабыл алуучу гистондор менен минихромосома түзүшү ген экспрессиясынын эпигенетикалык деңгээлде жөнгө салынышына салым кошот.
- VP1 пентамерлеринин өзүнөн-өзү уюшулушу чектелүү белок репертуары менен капсид түзүлүшүн колдойт.
- Вирустук инфекциянын ар кандай баскычтарында кабыл алуучу клетканын репликация, транскрипция жана РНК иштетүү механизмдери колдонулат.
- Геном экономиясы молекулалык натыйжалуулук берип, ошол эле учурда кабыл алуучуга шайкештик жана мутациянын таасири жагынан чектөөлөрдү да жаратат.
Изилдөө колдобогон жыйынтыктар
- Бардык полиомавирустар бир эле кабыл алуучуларда бирдей патогендүүлүккө ээ экенин көрсөтпөйт.
- SV40 табигый адам полиомавирусу экенин көрсөтпөйт.
- SV40 адамдарда белгилүү бир рактын себеби экенин жаңы клиникалык маалыматтар менен далилдебейт.
- Болжол менен %50–80 серопозитивдүүлүк аралыгы бардык адам популяцияларына колдонулушу мүмкүн экенин көрсөтпөйт.
- Полиомавирустар бардык иммундук механизмдерден кача аларын далилдебейт.
- VP4түн виопорин функциясы бардык изилдөөчүлөр тарабынан кабыл алынганын көрсөтпөйт.
- Геномдун кичирейиши ар бир учурда жогорку көбөйүү ылдамдыгын же жугуштуулукту жаратат деп далилдебейт.
- Чоң T антигени бардык милдетин кабыл алуучу белокторсуз аткарарын көрсөтпөйт.
- Жаңы вируска каршы дарылоо, вакцина, диагностикалык тест же клиникалык кийлигишүү иштеп чыгуу ийгилигин билдирбейт.
- Булактын киришиндеги алты белок деген сөз менен 2b-сүрөттөгү белок аталыштарынын эсептөө айырмасын чечпейт.
Серептин негизги методологиялык чектөөлөрү
Изилдөө адабияттык сереп болгондуктан, түшүндүрүлгөн бардык механизмдер бир эксперименттик система жана бирдей шарттарда салыштырылган эмес.
SV40ка тиешелүү молекулалык табылгалардын бардыгын BK, JC же Меркель клетка полиомавирусу сыяктуу башка үй-бүлө мүчөлөрүнө түздөн-түз жалпылоого болбойт.
Айрыкча кабыл алуучу клетканын тропизми, иммундук система менен өз ара аракеттенүү жана клеткадан чыгуу жолдору вирус түрүнө жараша өзгөрүшү мүмкүн.
Сереп геном экономиясы инфекциянын ийгилигин канчалык жогорулатарын сандык себеп-натыйжа модели менен өлчөбөйт.
Вирустук минимализмдин иммунитеттен качууга кошкон салымы концептуалдык жана механисттик алкакта бааланган. Жаңы кабыл алуучу иммунитет эксперименти берилген эмес.
VP4 виопорин механизми болсо булакта ачык илимий талаш-тартыштын темасы катары сүрөттөлөт. Механизмди толук далилденген деп көрсөтүү серептин өзүнүн этият илимий чегинен ашмак.
Белок саны боюнча кириш менен сүрөт түшүндүрмөсүндөгү айырма булактын белок репертуарын чечмелөөдө эске алынышы керек.
Бул чектөөлөр серептин негизги илимий салымын жокко чыгарбайт. Бирок макала эмнени түшүндүрөрүн жана кайсы суроолор үчүн көз карандысыз эксперименттик ырастоо керектигин аныктайт.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Minimal Genome, Maximal Effect: How Polyomavirus Genomes Are Capable of Complex Pathogenesis.
Авторлор: Michaela Lano; Barry Milavetz.
Жооптуу автор: Barry Milavetz.
Мекеме: Department of Biomedical Sciences, University of North Dakota School of Medicine and Health Sciences, Grand Forks, ND 58203, USA.
Журнал: Viruses.
Басмакана: MDPI.
Библиографиялык жазуу: Viruses 2026, 18(5), 533.
DOI: 10.3390/v18050533.
Расмий жарыя шилтемеси: https://www.mdpi.com/1999-4915/18/5/533
Атайын чыгарылыш: Polyomavirus.
Жарыя датасы: 1 Май 2026. Макала 7 Апрель 2026да алынган, 28 Апрель 2026да кайра каралып, 29 Апрель 2026да кабыл алынган.
Булактын түрү: Рецензияланган илимий сереп (Review). Молекулалык вирусология, вирустук геном уюшулушу, хроматин биологиясы жана вирус–кабыл алуучу өз ара аракеттенүүлөрүнүн механисттик талдоосу.
Негизги илимий ыкма: SV40 жана башка полиомавирустардын компакттуу геном архитектураларынын инфекциялык циклдеги функционалдык натыйжаларын мурдагы молекулалык изилдөөлөр аркылуу баалаган адабият синтези.
Негизги каралган механизмдер: Кабыл алуучу рецепторлорго байланышы, кавеола ортомчулук кылган эндоцитоз, эндоплазмалык ретикулум аркылуу клетка ичиндеги ташуу, эрте жана кеч транскрипция, эки багыттуу ДНК репликациясы, альтернативдүү РНК сплайсинги, альтернативдүү трансляция башталыштары, cis-жөнгө салуучу элементтер, вирустук минихромосома, гистон модификациялары, нуклеосома жайгашуусу, чоң T антигенинин функциялары, капсид түзүлүшү, вакуолизация жана иммундук көзөмөлдөн качуу.
Негизги вирустук белоктор: Чоң T антигени, кичине t антигени, VP1, VP2, VP3 жана талаштуу виопорин функциясы менен бааланган VP4. Булактагы 2b-сүрөттө LP1 (agnoprotein) да аталат.
Жаңы эксперименттик маалымат: Изилдөө жаңы эксперименттик маалымат өндүргөн эмес.
Статистикалык анализ: Жаңы статистикалык тест, p мааниси, таасир өлчөмү же ишеним аралыгы билдирилген эмес.
Булактагы 1-сүрөт: SV40 инфекциялык цикли. GM1ге байланышы, клетка ичиндеги ташуу, эрте транскрипция, вирустук ДНК репликациясы, кеч транскрипция, капсид түзүлүшү жана чыгыш баскычтарынын схемалык түшүндүрмөсү.
Булактагы 2-сүрөт: SV40 вирионунун капсид жана минихромосома түзүлүшү менен вирустук геномдун эрте, кеч жана жөнгө салуучу аймактарынын көрсөтүлүшү.
Сүрөт даярдоо билдирүүсү: Авторлор булак сүрөттөрдү түзүү үчүн BioRender колдонушканын, мазмунду карап чыгып оңдошконун жана жарыяланган мазмун үчүн жооптуу экенин билдиришкен. Сүрөттөрдүн BioRender булагынан болушу аларды кайра колдонууда тиешелүү лицензия шарттарын өзүнчө эске алууну талап кылат.
Лицензия: Creative Commons Attribution (CC BY) ачык жеткиликтүүлүк лицензиясы. Булак сүрөттөрдөгү өзүнчө үчүнчү тараптын пайдалануу шарттары да кошумча бааланышы керек.
Каржылоо: Изилдөө Америка Кошмо Штаттарынын National Institutes of Health (NIH) курамындагы National Institute of General Medical Sciences тарабынан 5P30GM154634-03, 1P20GM155890 жана 5P20GM139759-05 номерлүү колдоолор алкагында каржыланган.
Каржылоо билдирүүсүнүн чеги: Жарыянын мазмуну үчүн авторлор гана жооптуу; билдирилген көз караштар NIHдин расмий көз карашын сөзсүз түрдө билдирбейт деп көрсөтүлгөн.
Авторлордун салымы: Концептуалдаштыруу M.L. жана B.M.; ыкма M.L. жана B.M.; программалык камсыздоо M.L. жана B.M.; валидация M.L. жана B.M.; формалдык анализ M.L. жана B.M.; изилдөө M.L. жана B.M.; ресурстар M.L. жана B.M.; маалымат курaциясы M.L. жана B.M.; алгачкы долбоор M.L.; карап чыгуу жана редакциялоо M.L. жана B.M.; визуалдаштыруу M.L. жана B.M.; консультация B.M.; долбоорду башкаруу B.M.; каржылоону алуу B.M. деп билдирилген.
Этика комитети: Колдонулбайт деп билдирилген.
Маалымдалган макулдук: Колдонулбайт деп билдирилген.
Маалыматтардын жеткиликтүүлүгү: Жаңы маалымат өндүрүлгөн эмес.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Негизги методологиялык чектөө: Макала жаңы эксперимент жүргүзбөгөн илимий сереп. Ар башка жарыялардан алынган геномдук, молекулалык жана клеткалык механизмдер бир жалпы эксперименттик түзүлүштө ырасталган эмес.
Булак ичиндеги көңүл буруу 1: Макаланын киришинде SV40 үчүн алты белок деген сөз колдонулса, 2b-сүрөт түшүндүрмөсүндө чоң T, кичине t, VP1, VP2, VP3, VP4 жана LP1 аттары бар. Бул эсептөө айырмасы булактан тышкаркы чечмелөө менен оңдолгон эмес.
Булак ичиндеги көңүл буруу 2: VP4түн виопорин аркылуу клеткадан чыгууга салымы булакта сунушталган жана жалпы кабыл алынбаган механизм.
Булак ичиндеги көңүл буруу 3: Иммундук көзөмөлдөн качуу тууралуу түшүндүрмөлөр серептин механисттик чечмелөөлөрү; алар бул изилдөөдө жүргүзүлгөн жаңы иммундук жооп өлчөмүнүн жыйынтыктары эмес.
Илимий колдонуу чеги: Бул Verianla макаласы түпнуска серептин вирустук геном экономиясы, көп функциялуу белоктор, хроматиндин жөнгө салынышы жана кабыл алуучуга көз карандылык боюнча илимий механизмдерин өз алдынча окутуучу түзүлүштө түшүндүрөт. Толук эксперименттик протоколдор, түпнуска молекулалык далилдер, тарыхый булактар жана академиялык шилтеме үчүн DOI аркылуу түпнуска сереп жана ал шилтеме берген биринчилик изилдөөлөр каралышы керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген