


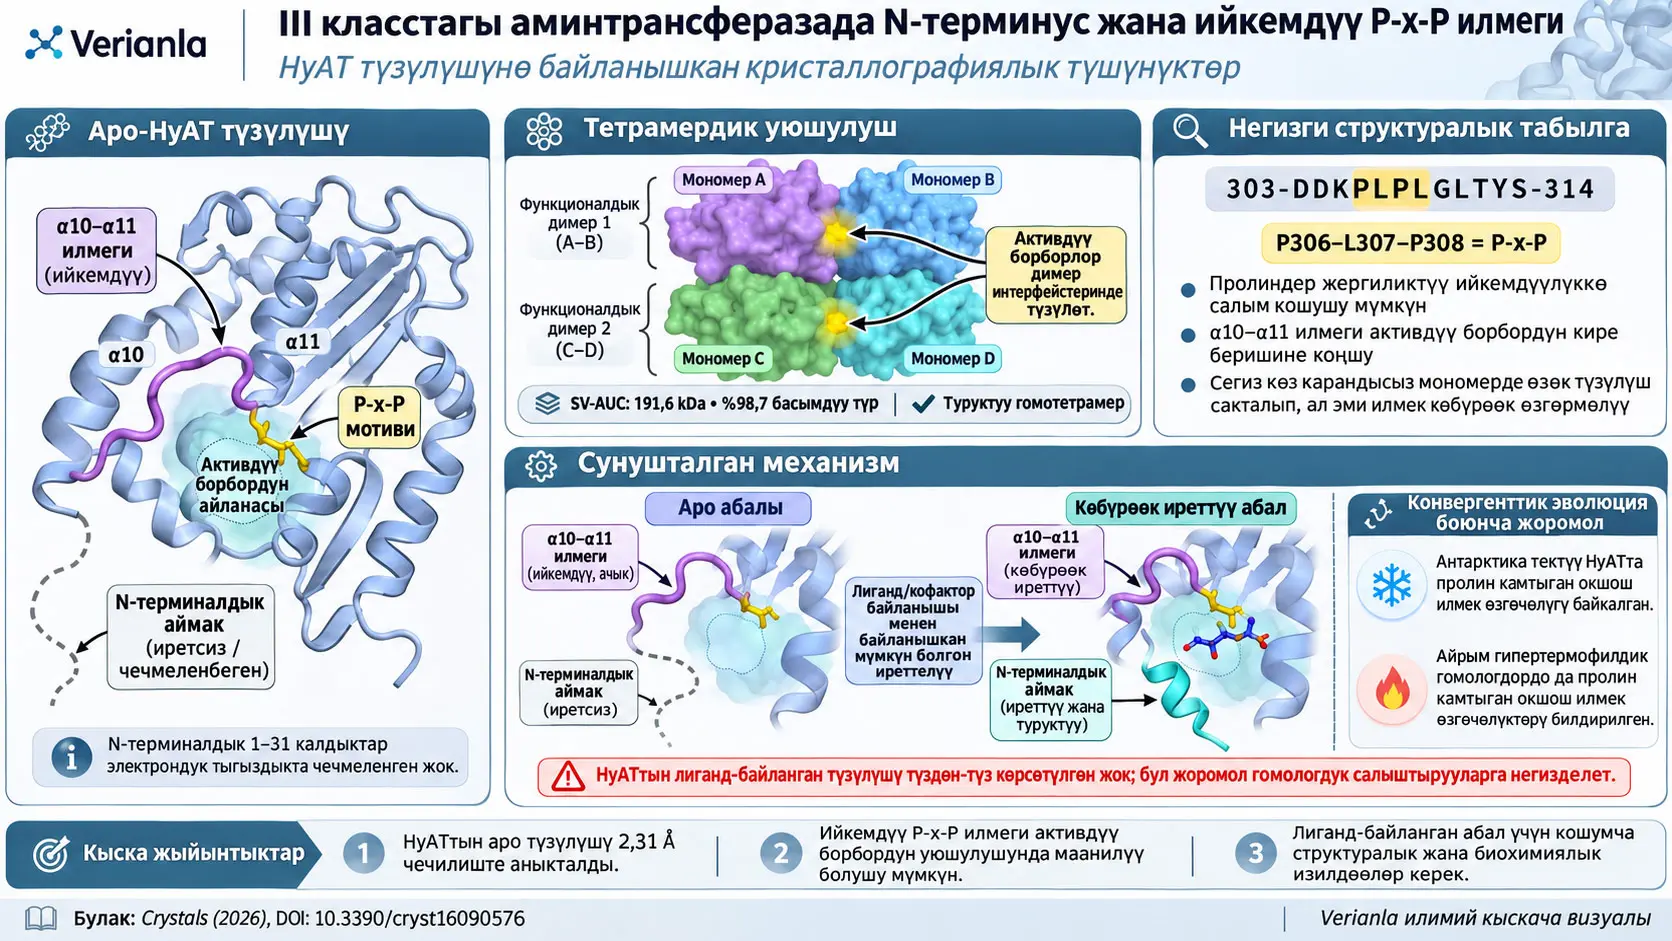
HyAT — Антарктика эңилчектеринен бөлүнүп алынган Hymenobacter sp. PAMC 26554 менен байланышкан геномдук ырааттуулуктан тандалып, III класстагы бүктөлүүгө ээ деп болжолдонгон пиридоксаль 5′-фосфатка (Pyridoxal 5′-phosphate, PLP) көз каранды аминтрансфераза. Бул изилдөө HyATтын биохимиялык реакция ылдамдыгын же субстрат тандоочулугун өлчөөдөн көрө, ферменттин каталитикалык функциясы менен байланышкан структуралык алкакты чечмелейт. Изилдөөчүлөр HyATтын апо, башкача айтканда байланышкан кофактор же субстрат көрсөтүлбөгөн кристаллдык түзүлүшүн 2,31 Å чечилишинде аныкташкан; аналитикалык ультрацентрифугалоо, кристаллографиялык салыштыруулар, B-фактор анализи, структуралык гомолог издөө жана ырааттуулукту салыштыруу аркылуу активдүү борбордун жанындагы ийкемдүү аймактарды изилдешкен.
HyAT эритмеде туруктуу гомотетрамер катары байкалган. Бирок каталитикалык активдүү борбор бир мономердин ичинде толук түзүлбөйт: бир мономердин борбордук β-катмары менен кошуна мономердин чоң домениндеги α1, α2 жана α11 спиралдары биргелешип суббирдиктер аралык жарака түзөт. Ошондуктан тетрамер структуралык жактан эки функционалдык гомодимердин арка-аркага биригиши катары каралышы мүмкүн; ар бир гомодимер эки симметриялуу активдүү борборду алып жүрөт.
Изилдөөнүн негизги табылгасы — активдүү борбордун кире беришине жакын α10–α11 илмекчесинин апо-HyATта айкын структуралык ийкемдүүлүк көрсөтүшү. D303–S314 калдыктарын камтыган бул илмекчеде 303-DDKPLPLGLTYS-314 ырааттуулугу бар жана P306 менен P308 пролиндери P-x-P мотивин түзөт. Мотивдеги “x” белгиси эки пролиндин ортосундагы жалгыз аминокислота позициясын билдирет; HyATта бул позиция L307, башкача айтканда лейцин. Изилдөөчүлөр пролиндердин спираль түзүлүшүн буза ала турган геометриялык касиеттери бул илмекченин катуу экинчи даражадагы структурага өтүшүн чектеп, жергиликтүү ийкемдүүлүккө салым кошушу мүмкүн экенин сунушташат.
Апо түзүлүштө α10–α11 илмекчеси гана эмес, N-терминалдык аймак да иретсиз. Болжол менен 1–31 номерлүү N-терминалдык калдыктар электрондук тыгыздыкта чечилген эмес жана сегиз көз карандысыз мономердин көбүндө модель P32ден башталган. Ал эми белоктун өзөгү сегиз мономердин арасында болжол менен 0,30 Å RMSD менен абдан жакшы дал келет. Бул карама-каршылык жалпы белок бүктөлүшү сакталган учурда активдүү борбордун айланасындагы белгилүү аймактар кыйла кыймылдуу болушу мүмкүн экенин көрсөтөт.
Изилдөөчүлөр апо-HyATты, айрыкча апо жана PMP менен байланышкан түзүлүштөрү белгилүү болгон Vibrio fluvialis аминтрансферазасы жана башка лиганд менен байланышкан III класстагы гомологдор менен салыштырышкан. Гомологдордо кофактор/лиганд байланышкан учурда тиешелүү илмекчелердин тартиптүүрөөк жана N-терминалдык бутактын туруктуураак болушу HyAT үчүн иретсиздиктен тартипке өтүү моделин сунуштоого алып келген. Бирок бул изилдөө HyATтын лиганд менен байланышкан кристаллдык түзүлүшүн чечкен эмес. Ошондуктан лиганд HyATтагы P-x-P илмекчесин түздөн-түз жабат же N-терминалдык аймакты түздөн-түз турукташтырат деген жыйынтык HyATтын өзүндө структуралык жактан азырынча көрсөтүлгөн натыйжа эмес, гомологдорду салыштыруу менен колдоого алынган механисттик гипотеза.
P-x-P камтыган аймак Антарктикадан чыккан HyATта гана эмес, Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 жана Thermococcus litoralis DSM 5473 сыяктуу гипертермофилдик гомологдордо да сакталышы изилдөөчүлөрдү кеңири эволюциялык түшүндүрмөгө алып келген. Авторлор өтө суук жана өтө ысык чөйрөлөрдө белоктун глобалдык каркасына ар башка туруктуулук талаптары коюлса да, пролин мотиви активдүү борбордун айланасында жергиликтүү кыймылдуулукту сактаган жалпы чечим болушу мүмкүн деп сунушташат. Бул конвергенттик эволюция боюнча түшүндүрмө түздөн-түз адаптация эксперименти эмес; ал ырааттуулук жана түзүлүш салыштыруусуна негизделген илимий түшүндүрмө.
Аминтрансфераза жана PLP деген эмне?
Аминтрансферазалар — амин тобун бир аминокислотадан кето кычкылга же тескери багытта өткөрө алган ферменттер үй-бүлөсү. Бул реакциялар клеткалык азот алмашуусу, аминокислоталардын биосинтези жана аминокислоталардын ажырашы сыяктуу процесстердин борборунда турат. Көптөгөн аминтрансферазалар катализ үчүн пиридоксаль 5′-фосфат (PLP) деп аталган кофакторду колдонушат. PLP реакция учурунда амин тобунун химиялык өзгөрүшүнө ортомчулук кылган жардамчы молекула. PLPнин аминденген формасы пиридоксамин 5′-фосфат (PMP) деп аталат.
Булак изилдөө аминтрансфераза реакциясынын толук механизмин кайра текшербейт. PLP/PMP маалыматы бул жерде HyAT түзүлүшү кайсы кофактордук чөйрөдө иштей турганын түшүнүү үчүн керек. Бул изилдөөдө HyAT үчүн түздөн-түз өлчөнгөн \(K_m\), \(k_{cat}\), оптималдуу температура же субстраттык спецификалуулук мааниси берилген эмес.
III класстагы аминтрансферазалардын структуралык өзгөчөлүгү
Аминтрансферазалар ырааттуулук окшоштугу жана бүктөлүү өзгөчөлүктөрү боюнча ар кандай класстарга бөлүнөт. III класстагы аминтрансферазалар борборунда β-катмар жана аны курчаган α-спиралдар бар компакттуу бүктөлүүгө ээ. Бул үй-бүлөдө функционалдык бирдик көбүнчө димер же тетрамер болуп, активдүү борборлор суббирдиктер бири-бирине тийген интерфейстерде пайда болот.
Бул өзгөчөлүк маанилүү; анткени “активдүү борбор” белоктун бир чынжырында жайгашкан чөнтөк гана эмес. HyATта бир мономердин структуралык элементтери менен кошуна мономердин структуралык элементтери туура мейкиндиктик абалга келгенде катализ үчүн керектүү чөнтөк толукталат. Ошондуктан суббирдиктердин кантип биригиши ферменттин структуралык функциясынын бир бөлүгү.
HyAT кантип тандалды?
Изилдөөчүлөр III класстагы аминтрансфераза ырааттуулуктарын суроо катары колдонуп, NCBI кирүү номери AMR27191.1 болгон гипотетикалык белок ырааттуулугун табышкан. Булактын ыкмалар бөлүмүндө бул ырааттуулук Антарктика эңилчектеринен бөлүнүп алынган Hymenobacter psoromatis PAMC 26554 толук геномдук ырааттуулугунда бар экени айтылса, белок изилдөө бою Hymenobacter sp. PAMC 26554тен чыккан HyAT деп аталган. Домен ырааттуулугу InterProScan аркылуу III класстагы аминтрансфераза катары аннотацияланган.
Булак HyAT үчүн жетиштүү функционалдык эксперимент жок болгондуктан белгилүү бир формалдуу EC номери берилгенин билдирбейт. Демек, бул структуралык изилдөө белок кайсы так биохимиялык субстраттарды кандай ылдамдыкта айлантарын чечкен эмес.
HyATтагы P-x-P Мотиви Эмне Үчүн Маанилүү?
HyATтагы P-x-P мотиви активдүү борбордун кире беришиндеги α10–α11 илмекчесинде жайгашкан P306–L307–P308 ырааттуулугу болуп саналат жана изилдөөчүлөр эки пролин жергиликтүү экинчи даражадагы структуранын түзүлүшүн чектеп, илмекченин апо абалында ийкемдүү бойдон калышына салым кошушу мүмкүн деп сунушташат. Бул мотивдин мааниси түздөн-түз өлчөнгөн каталитикалык ылдамдыктын өсүшүнөн эмес; электрондук тыгыздык, B-фактор, мономерлер аралык структуралык айырмачылыктар жана гомологдорду салыштыруу ошол эле аймакты кыймылдуу деп көрсөткөнүнөн келип чыгат.
Пролин эмне үчүн өзгөчө аминокислота?
Пролиндин каптал чынжыры каркас азотуна кайра байланышкандыктан, башка көптөгөн аминокислоталарга салыштырмалуу каркас геометриясын күчтүүрөөк чектейт. Бул өзгөчөлүк айрым спираль геометрияларынын үзгүлтүксүздүгүн буза алат. Булак изилдөө P306 жана P308дин “helix breaker” касиети α10–α11 илмекчесинде катуу экинчи даражадагы структуранын түзүлүшүнө бөгөт коюуга салым кошушу мүмкүн деп түшүндүрөт.
Бул “эки пролин бар болгондуктан илмекченин ийкемдүүлүгү сөзсүз түрдө пролиндерден гана келип чыгат” дегенди билдирбейт. Изилдөө P-x-P мотивин маанилүү структуралык талапкер катары аныктайт; мотивдин таасирин өзүнчө мутациялар менен текшерген эксперимент жүргүзүлгөн эмес.
α10–α11 илмекчеси так кайда жайгашкан?
Булакта ийкемдүү α10–α11 илмекчеси D303–S314 калдыктарынын ортосунда аныкталат. Илмекче активдүү борбор жаракасынын кире беришине жанаша жайгашкан. α1–α2 илмекчеси P86–K91 менен бирге субстрат же кофактор активдүү борборго кирген каналдын каптал дубалдарынын бир бөлүгүн түзөт.
Ошондуктан илмекченин ийкемдүүлүгү алыстагы беттик кыймыл гана эмес; ал активдүү борбордун кирүү геометриясынын дароо жанында жүрөт. Авторлордун “gating” же дарбазалоо идеясынын структуралык негизи ушул.
B-фактор эмнени көрсөтөт?
Кристаллографиялык B-фактор атомдордун кристаллдык түзүлүштөгү позициялык иретсиздиги же кыймылдуулугу менен байланышкан параметр жана Å2 бирдигинде көрсөтүлөт. Булактагы 2-сүрөттө B-фактору төмөн аймактар ичке/көк, B-фактору жогору жана ошондуктан ийкемдүүрөөк деп түшүндүрүлгөн аймактар калың/кызыл түрдө берилген. α1–α2 жана α10–α11 илмекчелери жогорку ийкемдүүлүк ачык көрүнгөн аймактардын катарына кирет.
B-факторду түздөн-түз “атом мынча Å жылды” деп түшүндүрүү туура эмес. Кристаллографиялык иретсиздик, кыймылдуулук жана модель/электрондук тыгыздык өзгөчөлүктөрү B-факторго биргелешип таасир этиши мүмкүн. Бул изилдөөдө эң маанилүүсү — нормалдаштырылган B-факторлордун бир эле структуралык аймакты ар кандай апо/лиганд абалдары жана гомологдор арасында салыштыруу үчүн колдонулушу.
Электрондук тыгыздыкта көрүнбөгөн N-терминалдык аймак эмнени билдирет?
Рентген кристаллографиясында атомдук модель өлчөнгөн дифракция маалыматтарынан алынган электрондук тыгыздык картасына жайгаштырылат. Полипептиддик аймак кристалл ичинде бир жана туруктуу конформацияда болбосо, ал аймактан келген тыгыздык өтө начар же чачыранды болушу мүмкүн жана изилдөөчү ал калдыктарды атомдук моделге ишенимдүү жайгаштыра албайт.
HyATтын өзөк түзүлүшү жакшы аныкталганы менен болжол менен 1–31 номерлүү N-терминалдык сегмент электрондук тыгыздыкта чечилген эмес. Сегиз көз карандысыз чынжырдын көбүндө модель P32ден башталат. Авторлор муну N-терминалдык аймак апо абалында жогорку даражада иретсиз экенинин көрсөткүчү катары түшүндүрүшөт.
Сегиз мономер эмне үчүн өзүнчө маанилүү?
Кристаллографиялык асимметриялык бирдикте сегиз HyAT мономеринин болушу изилдөөчүлөргө бир эле белоктун кристалл ичиндеги сегиз көз карандысыз үлгүсүн салыштырууга мүмкүнчүлүк берген. Белоктун өзөгү бул мономерлерде болжол менен 0,30 Å RMSD менен дал келген, ал эми α10–α11 илмекчесинин каркас жолдору кыйла айкын айырмачылыктарды көрсөткөн.
RMSD (root mean square deviation; орточо квадраттык четтөөнүн квадраттык тамыры) — үстү-үстүнө коюлган атомдордун же Cα позицияларынын орточо геометриялык айырмасын жыйынтыктаган структуралык окшоштук өлчөмү. Төмөн RMSD салыштырылып жаткан өзөктөрдүн бири-бирине жакын экенин көрсөтөт. Бул жердеги болжол менен 0,30 Å өзөк RMSDсине салыштырмалуу илмекчеде байкалган гетерогендүүлүк ийкемдүүлүк бүт белокко тараган кокустук бузулуудан көрө белгилүү аймактарда топтолгон деген түшүндүрмөнү колдойт.
Лиганд Байланганда HyAT Илмекчесинин Жабылышы Түздөн-Түз Көрсөтүлгөнбү?
Жок. Бул изилдөөдө чечилген түзүлүш апо-HyAT; HyATтын PLP-, PMP- же субстрат менен байланышкан кристаллдык түзүлүшү аныкталган эмес. Иретсиздиктен тартипке өтүү модели апо-HyATтын B-факторлору жана электрондук тыгыздыгы менен апо жана PMP менен байланышкан Vibrio fluvialis аминтрансферазасынын жана башка лиганд менен байланышкан гомологдордун структуралык салыштыруусуна негизделет. Ошондуктан “лиганд байланышканда HyAT илмекчеси жабылат” деген жыйынтык HyAT экспериментинен түздөн-түз эмес, күчтүү, бирок азырынча ырасталышы керек болгон структуралык тыянактан турат.
Vibrio fluvialis салыштыруусу эмне үчүн колдонулган?
Vibrio fluvialis аминтрансферазасы (VfAT) апо түзүлүшү (PDB: 5ZTX) да, PMP менен байланышкан түзүлүшү (PDB: 4E3Q) да белгилүү болгон аз сандагы ылайыктуу гомологдордун бири болгондуктан салыштыруу модели катары колдонулган. HyAT менен VfATтын жалпы түзүлүштөрү болжол менен 1,18 Å RMSD менен окшош деп табылган.
Нормалдаштырылган B-фактор анализинде апо-VfATтын α10–α11ге туура келген аймагында жогорку ийкемдүүлүк байкалса, PMP менен байланышкан VfATта ошол эле аймактын B-факторлору төмөндөйт. Изилдөөчүлөр муну кофактордун байланышы илмекчени тартиптүүрөөк абалга келтириши мүмкүн экенине салыштырма далил катары колдонушкан.
N-терминалдык аймак менен α10–α11 илмекчеси кандай байланышта?
HyATтын эң жакын структуралык гомологдорунун PDB 6JIX, 6IO1 жана 6S54 түзүлүштөрүндө N-терминалдык сегмент тартиптүү спираль–бурулуш–спираль мотивин түзүп, кошуна суббирдиктин α1–α2 жана α10–α11 илмекчелеринин ортосундагы оюкка жайгашат. Бул үч түзүлүш HyAT мономери менен тиешелүүлүгүнө жараша болжол менен 1,000 Å, 1,042 Å жана 1,218 Å Cα RMSD маанилери менен дал келет.
HyATта болсо ошол эле N-терминалдык бөлүк чечилген эмес жана эки кошуна илмекче жогорку ийкемдүүлүк көрсөтөт. Авторлор сунуштаган модель боюнча α10–α11 илмекчесинин лиганд же кофактор таасири менен турукташуусу кошуна суббирдиктин N-терминалдык бутагына бекем “docking scaffold” бере алат; N-терминалдык аймактын тартипке келиши да активдүү борбордун айланасындагы структуралык жыйналууну толуктай алат.
Бул байланыш күчтүү структуралык салыштырууларга негизделсе да, себептүүлүк HyATта мутация, убакыт боюнча чечилишке ээ түзүлүш, лиганд менен байланышкан HyAT кристалы же түздөн-түз динамикалык өлчөө аркылуу текшерилген эмес.
HyAT Тетрамер Болсо, Функционалдык Активдүү Борбор Эмне Үчүн Димер Интерфейсинде?
HyAT эритмеде туруктуу тетрамер түзөт; бирок тетрамер эки функционалдык гомодимердин арка-аркага биригишинен пайда болот жана ар бир активдүү борбор бир гомодимердин ичиндеги эки мономердин интерфейсинде түзүлөт. Ошондуктан “тетрамердик олигомер абалы” менен “активдүү борборду түзгөн негизги каталитикалык суббирдиктик мамиле” ар башка структуралык деңгээлдерди билдирет.
Биринчи жана экинчи белок интерфейстери
PDBePISA анализи HyAT кристаллдык түзүлүшүндө A–B, C–D, E–F жана G–H чынжыр жуптарын биринчи гомодимерлер катары аныктаган. Биринчи димер интерфейсинин орточо аянты 2709,9 Å2 деп билдирилип, булак анын жанында p = 0,004 маанисин берген. Макала бул p маанисинин кеңири статистикалык түшүндүрмөсүн өзүнчө бербегендиктен, бул жерде ага жаңы маани жүктөлбөйт.
Андан кийин эки функционалдык гомодимер кичирээк экинчи интерфейс аркылуу арка-аркага биригип тетрамерди түзөт. Бул экинчи контакттын орточо көмүлгөн бет аянты 1133,2 Å2. Тетрамер түзүлгөндө эки биринчи димердин активдүү борборлору эриткичке жеткиликтүү тышкы бетте калат.
AUC эмне үчүн керек болгон?
Кристалда сегиз мономердин көрүнүшү өзүнөн өзү белок эритмеде сегиздик комплекс түзөрүн далилдебейт; кристалл таңгакталуу контакттары биологиялык эмес коңшулуктарды жаратышы мүмкүн. Ошондуктан изилдөөчүлөр чыныгы эритмедеги олигомер абалын өзүнчө седиментация ылдамдыгынын аналитикалык ультрацентрифугалоосу (sedimentation velocity analytical ultracentrifugation, SV-AUC) менен өлчөшкөн.
AUC бөлүштүрүүсүндө молекулалык массасы 191,6 kDa деп эсептелген компонент жалпы сигналдын %98,7ин түзгөн жана изилдөөчүлөр муну HyAT эритмеде туруктуу тетрамер түзөрүнүн далили катары түшүндүрүшкөн.
Структуралык гомологдор менен салыштыруу
| Белок | PDB | Dali Z-баллы | HyAT менен ырааттуулук окшоштугу | Булакта берилген олигомер абалы |
|---|---|---|---|---|
| HyAT | 22PO | — | %100 | Тетрамер |
| Taurine-2-oxoglutarate aminotransferase | 6JIX | 56,3 | %38 | Димер |
| ω-transaminase | 6IO1 | 53,6 | %38 | Димер |
| Class-III-ω-transaminase | 6S54 | 53,0 | %40 | Тетрамер |
| Transaminase | 6FYQ | 52,9 | %36 | Димер |
| Amine transaminase | 5LH9 | 52,9 | %35 | Тетрамер |
| ω-transaminase | 9J50 | 52,2 | %33 | Димер |
| Transaminase | 6GWI | 52,2 | %32 | Димер |
Dali Z-баллы — белок түзүлүштөрүн үч өлчөмдүү окшоштук жагынан салыштырган Dali ыкмасынын структуралык дал келүү көрсөткүчү. Бул таблица HyATтын ырааттуулук окшоштугу болжол менен %32–40 гана болгон ар кандай III класстагы гомологдор менен дагы эле күчтүү структуралык окшоштукка ээ экенин көрсөтөт.
HyAT мономери менен тетрамердик гомолог PDB 5LH9дун тиешелүү мономери үстү-үстүнө коюлганда 1,317 Å RMSD алынган. Эки белоктун тетрамерлери да эки функционалдык гомодимер арка-аркага бириккен окшош төртүнчүлүк түзүлүштү көрсөтөт.
Суук жана ысык чектерде бир эле пролин мотивинин болушу кантип түшүндүрүлгөн?
Ырааттуулукту салыштыруу P-x-P камтыган аймак HyATтан тышкары гипертермофилдик археялардын Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 жана Thermococcus litoralis DSM 5473 гомологдорунда да сакталганын көрсөткөн.
Бул байкоо биринчи караганда кызыктуу; анткени суук чөйрөдө иштеген белок менен өтө жогорку температурада иштеген белоктордун глобалдык туруктуулук талаптары ар башка. Авторлор бул бүт белоктун ийкемдүүлүгүн өзгөртүүнүн ордуна активдүү борбордун жанындагы белгилүү бир илмекченин кыймылдуулугун жөнгө салган жалпы структуралык чечим болушу мүмкүн деп сунушташат.
Туруктуулук–активдүүлүк компромисси
Белок катализи үчүн белгилүү даражада структуралык кыймыл керек; ошол эле учурда жогорку термалык туруктуулук көбүнчө катуураак каркас менен байланышышы мүмкүн. Авторлор бул эки талаптын ортосундагы чыңалууну stability–activity trade-off катары талкуулашат.
Гипертермофилдик гомологдордо авторлордун модели төмөнкүдөй: глобалдык белок өзөгү жогорку температурада денатурацияга туруштук берүү үчүн күчтүү турукташса, P-x-P камтыган жергиликтүү илмекче керектүү каталитикалык кыймылдуулукту сактай алат. Антарктикадан чыккан HyAT үчүн болсо ошол эле пролин геометриясы төмөн температурада чектелген молекулалык кыймылдарга карабай активдүү борбордун айланасында жергиликтүү ийкемдүүлүктү сактоого жардам бериши мүмкүн деп сунушталат.
Булак ошондой эле суук шарттарда пролин мотиви илмекче кыймылынын активдешүү энергиясынын тосмосун төмөндөтүшү мүмкүн деп түшүндүрөт. Бирок изилдөөдө бул активдешүү энергиясы түздөн-түз өлчөнгөн эмес. Ошондуктан бул билдирүү эксперименттик энергия өлчөөсү эмес, авторлордун структуралык механизм түшүндүрмөсү.
Изилдөө түздөн-түз айткан нерселер менен сунуш кылган нерселерди ажыратуу
| Билдирүү | Далилдин статусу |
|---|---|
| HyAT кристаллдык түзүлүшү 2,31 Å чечилишинде аныкталган. | Түздөн-түз эксперименттик кристаллография натыйжасы |
| HyAT эритмеде негизинен тетрамердик түр болуп саналат. | Түздөн-түз SV-AUC натыйжасы |
| α10–α11 илмекчеси жана N-терминалдык аймак апо түзүлүштө жогорку иретсиздик/ийкемдүүлүк көрсөтөт. | Электрондук тыгыздык, сегиз мономер жана B-фактор анализине негизделген структуралык натыйжа |
| P306 жана P308 P-x-P мотивинин бөлүктөрү. | Түздөн-түз ырааттуулук/түзүлүш маалыматы |
| Лиганддын байланышы HyAT илмекчесин тартипке келтирип, N-терминусту турукташтырат. | HyAT үчүн түздөн-түз көрсөтүлгөн эмес; гомологдорду салыштырууга негизделген сунуш |
| Илмекче субстраттын жетүүсүн жөнгө салган дарбаза ролун аткарат. | Структуралык орду жана гомологдорго негизделген механисттик гипотеза |
| P-x-P температуралык чектерде туруктуулук–активдүүлүк компромиссин чечкен конвергенттик стратегия. | Ырааттуулук/түзүлүш салыштыруусуна негизделген эволюциялык түшүндүрмө |
Изилдөөнүн Ыкмасы жана Жыйынтыктары
1. Ген тандоо, клондоо жана белок өндүрүү
NCBI кирүү номери AMR27191.1 болгон гипотетикалык белок ырааттуулугу III класстагы аминтрансфераза ырааттуулуктарын колдонуу менен жүргүзүлгөн окшоштук издөөсүнөн тандалган. Домен аннотациясы InterProScan аркылуу жасалган.
Тандалган HyAT коддоочу ырааттуулугу кодон-оптималдаштырылып, синтезделген жана NdeI менен XhoI рестрикция аймактарын колдонуу аркылуу pET28a экспрессия векторуна клондолгон. Рекомбинанттык плазмида белок өндүрүү үчүн Escherichia coli BL21(DE3) клеткаларына өткөрүлгөн.
Трансформацияланган клеткалар 4 L LB чөйрөсүндө, 50 µg/mL канамицин катышуусунда 37 °C жана 120 rpm шартында өстүрүлгөн. Клетка культурасынын 600 nmдеги оптикалык тыгыздыгы \(OD_{600}=0,6\)га жеткенде 0,5 mM IPTG кошулуп, белок экспрессиясы индукцияланган. Андан кийин культура 25 °C жана 120 rpmде түн бою инкубацияланган.
Клеткалар 5000 rpmде 20 мүнөт, 4 °C шартында центрифугалоо менен чогултулган. Пеллет 20 mM Tris-HCl, pH 8,0; 200 mM NaCl; 5 mM имидазол камтыган лизис буферинде кайра суспензияланып, 4 °Cде ультраүндүк ажыратуу колдонулган. Эриген үстүңкү фаза 15.000 rpmде 40 мүнөт, 4 °C шартында центрифугалоодон кийин алынган.
2. Ni-NTA жана өлчөм боюнча бөлүү хроматографиясы
HyAT камтыган супернатант Ni-NTA агароза колонкасына колдонулган. Спецификалык эмес белокторду алып салуу үчүн 30 mM имидазол камтыган буфер колдонулуп; максаттуу белок 300 mM имидазол менен элюцияланган.
N-терминалдык полигистидин белгиси бодо мал плазмасынан алынган тромбин менен 4 °Cде түн бою инкубациялоо аркылуу алып салынган. Андан кийин ÄKTA avant FPLC системасы жана HiLoad Superdex 200 pg колонкасы колдонулуп, өлчөм боюнча бөлүү хроматографиясы жүргүзүлгөн. Колонка буфери 20 mM Tris-HCl, pH 8,0 жана 200 mM NaCl.
Тазаланган белок SDS-PAGE аркылуу ырасталып, 10 kDa MWCO Amicon Ultra фильтри менен 50 mg/mLге чейин концентрацияланып жана кристаллдаштырууда жаңы колдонулган. Кийинки колдонуу үчүн −80 °Cде сакталгандыгы айтылган.
3. Кристаллдаштыруу
Баштапкы кристаллдаштыруу скрининги 96 уячалуу sitting-drop планшеттеринде 23 °Cде жүргүзүлгөн. Ар бир тамчыда 400 nL HyAT белогу менен 400 nL кристаллдаштыруу скрининг эритмеси аралаштырылган. Белок концентрациялары 15 mg/mL жана 30 mg/mL катары сыналган.
MCSG I–IV, PGA Screen жана ыңгайлаштырылган SGC скрининг топтомдору колдонулган. Эң ылайыктуу кристалдар болжол менен 1 күндөн кийин 0,1 M Tris-HCl, pH 8,5; 0,2 M MgCl2; %15 PEG 8000 шартында байкалган.
4. Рентген дифракция маалыматтарын чогултуу
Бир кристалл Pohang Light Source IIдеги макромолекулалык кристаллографиянын BL-5C нур линиясы менен өлчөнгөн. Кристалл гониометрге коюлардан мурда резервуар эритмесине акыркы концентрациясы %20 (v/v) глицерол боло тургандай криопротектор кошулган эритмеге кыска убакыт малып алынган.
Дифракция сүрөттөрү ар бир кадр үчүн 1° осцилляция менен, 12,658 keV энергияда жана 0,97949 Å толкун узундугунда Eiger 9M детектору аркылуу чогултулган. Маалыматтар HKL2000 менен индекстелип, интеграцияланып жана масштабдалган.
Кристалдар P21 мейкиндик тобуна кирет. Элементардык уяча параметрлери:
- a = 100,81 Å
- b = 152,26 Å
- c = 117,37 Å
- α = 90°
- β = 104,9°
- γ = 90°
5. Түзүлүштү чечүү жана рафинация
Баштапкы модель PDB 6JIX коддуу taurine-2-oxo-glutarate aminotransferase түзүлүшү молекулалык алмаштыруу шаблону катары колдонулуп түзүлгөн. MOLREP/CCP4i эсептөөсүндө Matthews коэффициенти VM = 2,42 жана эриткич курамы %49,24 негизинде асимметриялык бирдикте сегиз молекула моделденген.
Кол менен модель түзүү жана оңдоолор Coot менен, кайталанма автоматтык рафинация phenix.refinement менен жүргүзүлгөн. Акыркы түзүлүш MolProbity аркылуу текшерилген. Атом координаттары жана структуралык факторлор Protein Data Bankка PDB 22PO кирүү коду менен жүктөлгөн.
| Метрика | Жалпы маани | Эң жогорку чечилиш кабыгы |
|---|---|---|
| Чечилиш | 50–2,31 Å | 2,35–2,31 Å |
| Жалпы чагылуулар | 960.661 | 92.794 |
| Уникалдуу чагылуулар | 147.794 | 14.267 |
| Орточо I/σ(I) | 17,32 | 1,8 |
| Rmerge | 0,084 | 0,724 |
| Redundancy | 6,5 | 6,1 |
| Толуктук | %99,3 | %98,2 |
| Рафинация чечилиши | 33,56–2,31 Å | 2,40–2,31 Å |
| Working-set чагылуулар саны | 147.794 | 14.268 |
| Test-set чагылуулар саны | 7440 | 706 |
| Аминокислота калдыгы | 3334 | — |
| Суу молекуласы | 802 | — |
| Rcryst | 0,196 | 0,241 |
| Rfree | 0,25 | 0,315 |
| R.m.s. байланыш узундугу | 0,009 Å | — |
| R.m.s. байланыш бурчу | 1,09° | — |
| Орточо белок B мааниси | 40,77 Å2 | — |
| Орточо эриткич B мааниси | 38,97 Å2 | — |
Rmerge эмнени өлчөйт?
Булак Table 1де \(R_{merge}\) төмөнкүдөй аныктайт:
\[ R_{\mathrm{merge}}= \frac{\sum |\langle I\rangle-I|} {\sum \langle I\rangle} \]
Формула эмнени эсептейт? Бир эле кристаллографиялык чагылууга тиешелүү кайталанма өлчөөлөр жалпы орточо интенсивдүүлүк маанисинен канчалык четтегенин жыйынтыктайт.
Өзгөрмөлөр: \(I\) бир өлчөнгөн дифракция интенсивдүүлүгүн; \(\langle I\rangle\) ошол эле чагылуунун кайталанма өлчөөлөрүнүн орточо интенсивдүүлүгүн билдирет.
Бирдик: Алым жана бөлүм бирдей интенсивдүүлүк бирдигинде болгондуктан \(R_{merge}\) өлчөмсүз.
Математикалык ролу: Кайталанма чагылуу өлчөөлөрүнүн ортосундагы абсолюттук айырмалардын суммасы орточо интенсивдүүлүктөрдүн суммасына нормалдаштырылат.
Түшүндүрмө: Өлчөөлөр орточо мааниге жакындаган сайын катыш кичирейет. Бирок маани чечилиш кабыгы жана маалымат өзгөчөлүктөрү менен бирге бааланышы керек. Булак жалпы \(R_{merge}=0,084\), эң жогорку чечилиш кабыгында 0,724 деп билдирет.
Rcryst жана Rfree эмнени билдирет?
Булак \(R_{cryst}\) маанисин төмөнкүдөй аныктайт:
\[ R_{\mathrm{cryst}}= \frac{\sum \left||F_o|-|F_c|\right|} {\sum |F_o|} \]
\(F_o\) эксперименттик түрдө байкалган структуралык фактор амплитудасын; \(F_c\) атомдук моделден эсептелген структуралык фактор амплитудасын билдирет. \(R_{cryst}\) рафинацияланган атомдук модель байкалган дифракция маалыматын канчалык деңгээлде кайра чыгарарын баалаган өлчөмсүз дал келүү көрсөткүчү.
Булакта \(R_{cryst}=0,196\), эң жогорку чечилиш кабыгында 0,241 берилген.
Rfree үчүн булак өзүнчө жаңы теңдеме жазбайт; бардык чагылуулардын %5и рафинация баскычтарынан сыртта калтырылган тест топтому аркылуу эсептелгенин билдирет. Ошентип, модель өзүнүн рафинация маалыматына гана ашыкча ылайыкташып кетишин көзөмөлдөө үчүн көз карандысыз текшерүү камсыздалат. Булак \(R_{free}=0,25\), эң жогорку чечилиш кабыгында 0,315 маанисин билдирген.
I/σ(I), толуктук жана redundancy деген эмне?
I/σ(I) — өлчөнгөн дифракция интенсивдүүлүгүнүн өзүнүн белгисиздигине катышы. Булак жалпы орточо маанини 17,32, эң жогорку чечилиш кабыгындагы маанини 1,8 деп берет.
Толуктук (completeness) теориялык жактан өлчөнө ала турган уникалдуу чагылуулардын канчасы маалымат топтомунда бар экенин көрсөтөт. HyAT маалымат топтому үчүн жалпы толуктук %99,3, эң жогорку чечилиш кабыгында %98,2.
Redundancy бир эле уникалдуу чагылуу орточо канча жолу өлчөнгөнүн билдирет. Булак жалпы 6,5 жана жогорку чечилиш кабыгында 6,1 маанилерин билдирген.
6. Аналитикалык ультрацентрифугалоо шарттары
HyAT олигомерленүү абалы Proteome Lab XL-A аналитикалык ультрацентрифугасы жана AN-60 Ti ротору колдонулуп изилденген. Белок 20 mM Tris-HCl, pH 8,0 жана 200 mM NaCl буферинде даярдалган.
SEDNTERP v3.0.4 менен булакта тиешелүүлүгүнө жараша төмөнкү маанилер эсептелген:
- жарым-жартылай өзгөчө көлөм: 0,7356 mL/g,
- буфер тыгыздыгы: 1,00709 g/mL,
- буфер илешкектүүлүгү: 0,01026 Poise,
- эсептөө температурасы: 20 °C.
Үлгү 42.000 rpmге чейин ылдамдатылып, 20 °Cде 10 мүнөт баштапкы шартта кармалган. Седиментация профили 280 nmде ар 5 мүнөт сайын көзөмөлдөнүп, жалпы 40 абсорбция сканы SEDFIT v18.1 менен анализденген. Визуалдаштыруу GraphPad Prism v5.02 менен жүргүзүлүп; белок интерфейстери PDBePISA аркылуу бааланган.
7. Мономердин структуралык архитектурасы
HyAT мономери III класстагы аминтрансферазалардын канондук бүктөлүшүнө ээ жана борбордук жети жиптүү β-катмар α-спиралдар менен курчалган.
Белок эки негизги структуралык доменге бөлүнөт. Чоң домен β4–β10 жиптери түзгөн борбордук β-катмарды жана аны курчаган α-спиралдарды камтыйт. Кичине домен болсо N-терминалдан да, C-терминалдан да келген үзгүлтүктүү сегменттерден турат; N-терминалдан үч β-жипти, C-терминалдан төрт β-жипти жана α12, α14, α15 спиралдарын камтыйт.
Эки домендин ортосунда эки шарнир аймагы аныкталган. Биринчи шарнир N-терминалдык аймакта β3 менен α1 ортосундагы D53–D67 сегменти. Экинчи шарнир α11 менен α12 ортосунда жайгашат жана булак бул жерде бир аспарагин калдыгы жергиликтүү спиралдык ийилиш түзөрүн билдирет.
8. Активдүү борбордун структуралык компоненттери
HyATтын каталитикалык көңдөйү бир мономердин борбордук β-катмары менен кошуна суббирдиктин чоң доменинен келген α1, α2 жана α11 спиралдары биргелешип түзгөн суббирдиктер аралык жаракада жайгашат.
Булак D251 жана сакталган активдүү-борбор калдыгы K280 кофактор байланышуучу чөнтөктө мейкиндиктик жактан уюшулганын билдирет. 1-сүрөт V253тү да активдүү борбордун айланасындагы маанилүү калдыктардын бири катары көрсөтөт; бирок текст V253 үчүн D251 же K280 деңгээлинде өзүнчө каталитикалык функция аныктамасын бербегендиктен бул жерде кошумча роль ыйгарылбайт.
9. Илмекче жана N-терминалдык иретсиздик
Электрондук тыгыздык эки илмекчеде өзгөчө начар же үзгүлтүктүү:
- α1–α2 илмекчеси: P86–K91,
- α10–α11 илмекчеси: D303–S314.
Мындан тышкары, болжол менен N-терминалдык 1–31 калдыктар толугу менен чечилген эмес. Сегиз чынжырдын көбүндө модель P32ден башталат.
Сегиз көз карандысыз мономерди үстү-үстүнө койгондо өзөк RMSD болжол менен 0,30 Å болсо, α10–α11 илмекчесинин каркас конформациялары айкын айырмаланат. Изилдөөчүлөр муну апо ферментте бир туруктуу илмекче түзүлүшүнүн ордуна конформациялар ансамбли бар экенинин көрсөткүчү катары түшүндүрүшкөн.
10. P-x-P ырааттуулугу
HyATтын α10–α11 илмекчесинин ичинде булакта төмөнкү сегмент берилет:
303-DDKPLPLGLTYS-314
Бул жердеги пролиндер:
- P306,
- P308.
Демек, борбордук мотив P306-L307-P308 түрүндө.
Булактын структуралык түшүндүрмөсү боюнча эки пролин катуу спиралдык экинчи даражадагы түзүлүштүн пайда болушун буза жана жергиликтүү конформациялык ар түрдүүлүктү көбөйтө алат. Бирок пролиндердин кайсынысы болбосун мутацияланган функционалдык эксперимент жок болгондуктан, мотивдин таасиринин көлөмүн бул изилдөөдөн сандык түрдө чыгарууга болбойт.
11. Гомолог салыштырууларынан чыгарылган тартипке келүү модели
HyATтын апо түзүлүшүндө α10–α11 илмекчеси жана N-терминалдык бутак иретсиз. Ал эми тандалган гомологдордо N-терминалдык спираль–бурулуш–спираль бутак кошуна мономердин α1–α2 жана α10–α11 илмекчелеринин ортосундагы оюкка жайгашып, полярдуу/полярдуу эмес контакттар менен бекемделет.
Авторлор бул салыштыруудан төмөнкү ырааттуу моделди сунушташат:
- Апо абалында P-x-P камтыган α10–α11 илмекчеси ийкемдүү болуп, ачыгыраак конформацияларды үлгүлөшү мүмкүн.
- Бул түзүлүш активдүү борбордун кире беришинин жеткиликтүүлүгүн көбөйтүшү мүмкүн.
- Лиганд же кофактор байланышы илмекченин тартиптүүрөөк конформацияга өтүшүнө шарт түзүшү мүмкүн.
- Туруктуураак илмекче кошуна суббирдиктин N-терминалдык бутагына структуралык docking бетин бере алат.
- N-терминалдык бутактын тартипке келиши активдүү борбордун айланасындагы жыйналууну толуктай алат.
Бул беш баскыч изилдөөчүлөр сунуштаган механизм. Баскычтардын баары HyATта түздөн-түз убакыттык ырааттуулукта байкалган эмес.
12. Эволюциялык салыштыруу
P-x-P камтыган тиешелүү илмекче аймагы гипертермофилдик гомологдордо да аныкталган. Изилдөөдө аталган организмдер:
- Pyrococcus horikoshii OT3,
- Thermococcus kodakarensis KOD1,
- Thermococcus litoralis DSM 5473.
Авторлор бул окшоштукту глобалдык белок туруктуулугу ар башка багыттагы тандалма басымга дуушар болсо да, активдүү борбордун айланасындагы жергиликтүү ийкемдүүлүк пролин геометриясы аркылуу жөнгө салынышы мүмкүн болгон конвергенттик эволюция стратегиясы катары түшүндүрүшөт.
Изилдөө колдогон жыйынтыктар
- HyATтын апо кристаллдык түзүлүшү 2,31 Å чечилишинде аныкталган.
- HyAT эритмеде негизинен туруктуу тетрамердик уюшулууну көрсөтөт.
- Функционалдык активдүү борбор мономерлер аралык гомодимер интерфейсинде түзүлөт.
- α10–α11 илмекчеси D303–S314 жана α1–α2 илмекчеси P86–K91 апо түзүлүштө жогорку ийкемдүүлүк/иретсиздик көрсөтөт.
- N-терминалдык болжол менен 1–31 калдыктар апо түзүлүштүн электрондук тыгыздыгында чечилген эмес.
- Сегиз мономердин өзөгү жогорку окшоштукту көрсөтсө, α10–α11 илмекчеси көбүрөөк структуралык гетерогендүүлүк көрсөтөт.
- HyATтын α10–α11 илмекчесинде P306–L307–P308 P-x-P мотиви бар.
- Апо жана кофактор менен байланышкан гомологдорду салыштыруу лиганд байланышы менен байланышкан жергиликтүү тартипке келүү гипотезасына шайкеш келет.
- P-x-Pге окшош мотивдин изилденген гипертермофилдик гомологдордо да сакталышы авторлордун конвергенттик эволюция түшүндүрмөсүн колдогон салыштырма байкоо.
Изилдөө колдобогон жалпылоолор
- HyAT кайсы табигый субстратта эң жогорку активдүүлүккө ээ экени бул изилдөөдө аныкталган эмес.
- HyAT үчүн \(K_m\), \(V_{max}\), \(k_{cat}\) же каталитикалык натыйжалуулук маанилери билдирилген эмес.
- P306 же P308 мутациялары активдүүлүктү канчалык өзгөртөрү сыналган эмес.
- HyATтын лиганд менен байланышкан кристаллдык түзүлүшү чечилген эмес.
- Сунушталган ачык→жабык өтүү HyATта убакыт ичинде түздөн-түз сүрөттөлгөн эмес.
- P-x-P мотиви субстрат жетүүсүн сөзсүз көзөмөлдөй турганы биохимиялык жактан далилденген эмес.
- Суук жана ысык адаптациянын ортосундагы конвергенттик эволюция механизми түздөн-түз эволюциялык эксперимент менен ырасталган эмес.
- Бул структуралык изилдөө өнөр жай биокатализинин натыйжалуулугун же өндүрүш масштабын көрсөткөн эмес.
Изилдөөнүн негизги чектөөсү жана кийинки экспериментке муктаждык
Макаланын эң маанилүү ачык изилдөө муктаждыгы — HyATтын лиганд менен байланышкан түзүлүшүн жана түздөн-түз биохимиялык функциясын изилдөө. Авторлор α10–α11 илмекчесинин чыныгы функциясын тактоо үчүн кошумча лиганд менен байланышкан структуралык жана биохимиялык изилдөөлөр керек экенин ачык билдиришет.
Айрыкча P306/P308 сыяктуу мотив калдыктарынын багытталган мутациялары, лиганддуу HyAT кристалы же башка жогорку чечилишке ээ түзүлүштөр жана ылайыктуу активдүүлүк/байланыш эксперименттери учурдагы структуралык моделде сунушталган себептик байланыштарды текшерүү үчүн зарыл болот. Бул акыркы сүйлөмдөгү эксперимент түрлөрү учурдагы изилдөөдө жасалган эксперименттер эмес; учурдагы белгисиздик кандай түздөн-түз далилдер менен жоюлушу мүмкүн экенин түшүндүргөн окутуучу алкак.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Structural Insights into the N-Terminus and a Flexible P-x-P Loop near the Active Site of a Class III Aminotransferase
Авторлор: Jisub Hwang; Hackwon Do; Jun Hyuck Lee.
Авторлордун тартиби: Jisub Hwang → Hackwon Do → Jun Hyuck Lee.
Тең салым: Булак PDFде тең биринчи авторлук/тең салым белгиси билдирилген эмес.
Corresponding authors: Hackwon Do жана Jun Hyuck Lee.
Аффилиация 1: Research Unit for Low-Temperature Convergence Technology, Korea Polar Research Institute, Incheon 21990, Republic of Korea.
Аффилиация 2: Department of Polar Sciences, University of Science and Technology, Incheon 21990, Republic of Korea.
Журнал: Crystals.
Басма: MDPI, Basel, Switzerland.
Том / макала: Volume 16, Article 576.
DOI: 10.3390/cryst16090576.
Жөнөтүлгөн күнү: 10 август 2026.
Ревизия күнү: 28 август 2026.
Кабыл алынган күнү: 1 сентябрь 2026.
Жарыяланган күнү: 3 сентябрь 2026.
Булактын түрү: Эксперименттик структуралык биология / белок кристаллографиясы боюнча изилдөө макаласы.
Рецензия абалы: Жарыяланган журналдык макала; PDFде received, revised, accepted жана published даталары бар.
Расмий шилтеме: https://doi.org/10.3390/cryst16090576
Лицензия: Creative Commons Attribution 4.0 International (CC BY 4.0).
Белок түзүлүшү маалымат базасы: RCSB Protein Data Bank.
PDB кирүү коду: 22PO.
Каржылоо: Korea Polar Research Institute гранты; Ministry of Oceans and Fisheries тарабынан каржыланган KOPRI PE26150 жана PE26220 долбоор номерлери.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Маалыматтардын жеткиликтүүлүгү: Бул изилдөөдө түзүлгөн структуралык маалымат топтому RCSB PDB Protein Data Bankта HyAT үчүн 22PO кирүү номери менен берилген.
Авторлордун салымдары: Концептуалдаштыруу, көзөмөл жана долбоорду башкаруу H.D. жана J.H.L.; изилдөө жана методология J.H. жана H.D.; маалыматтарды курациялоо J.H.; формалдуу анализ жана валидация J.H. жана H.D.; визуалдаштыруу J.H. жана H.D.; биринчи долбоор J.H. жана H.D.; карап чыгуу жана редакциялоо H.D. жана J.H.L.
Жасалма интеллектти колдонуу жөнүндө билдирүү: Авторлор макаланын англис тилиндеги текстинин тактыгын, грамматикасын жана окумдуулугун жакшыртуу үчүн ChatGPT (GPT-5.6, OpenAI) колдонушканын; натыйжаны өздөрү карап чыгып редакциялашканын жана жарыяланган мазмун үчүн жоопкерчиликти өздөрүнө алышканын билдиришкен.
Кошумча материал: Булак макала Figure S1, Figure S2 жана Figure S3тү кошумча материал катары тизмектейт. Бул кошумча материал файлдары колдонуучу жүктөгөн негизги PDFдин ичинде жок болгондуктан, Verianla баалоосунда кошумча сүрөттөр өз алдынча визуалдык текшерүүдөн өткөрүлгөн эмес. Негизги текстте бул сүрөттөр тууралуу ачык билдирилген табылгалар сакталган.
Булак ичиндеги олигомер ыкмасы боюнча эскертүү: Table 2деги HyAT сабында олигомер абалы үчүн “Tetramer (GPC)” деген сөз колдонулат. Ал эми Methods 2.4, Results 3.2 жана Figure 1B HyAT олигомерленүүсү sedimentation velocity analytical ultracentrifugation (SV-AUC) аркылуу анализденгенин ачык билдирет. Verianla бул айырманы үнсүз оңдогон эмес; кеңири ыкма жана натыйжа баяндамасындагы SV-AUC экспериментин негиз катары алып, таблицадагы белгинин айырмасын булак ичиндеги шайкешсиздик катары сактаган.
Негизги илимий түшүндүрмө чеги: Изилдөө HyATтын апо түзүлүшүн түздөн-түз аныктаган. Лиганд/кофактор байланышуусунан кийинки илмекченин тартипке келиши, N-терминалдын турукташуусу, активдүү-борбор дарбазалоо механизми жана температуралык чектердеги конвергенттик адаптация модели жарым-жартылай гомолог түзүлүштөрдү жана ырааттуулуктарды салыштыруудан чыгарылган түшүндүрмөлөр. HyATтын лиганд менен байланышкан түзүлүшү жана мотивдин түздөн-түз биохимиялык функциясы келечекте ырасталышы керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген