


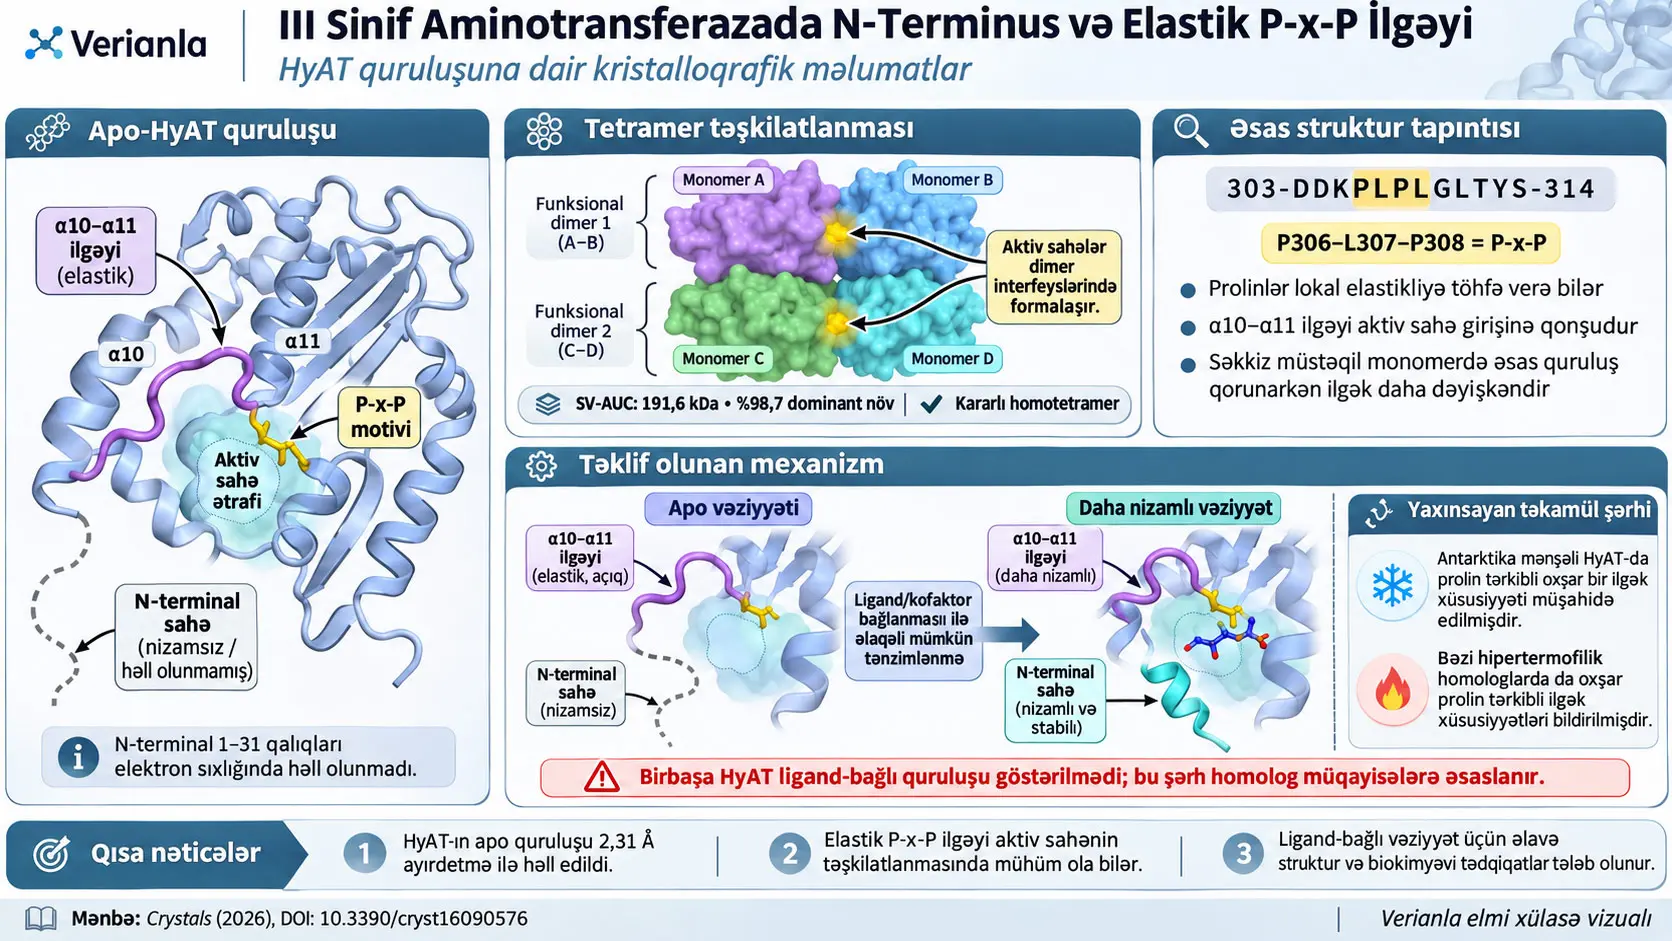
HyAT, Antarktika likenlərindən təcrid edilmiş Hymenobacter sp. PAMC 26554 ilə əlaqəli genom ardıcıllığından seçilmiş və sinif III qatlanmasına malik olduğu proqnozlaşdırılan piridoksal 5′-fosfat (Pyridoxal 5′-phosphate, PLP)-asılı aminotransferazadır. Bu tədqiqat HyAT-nin biokimyəvi reaksiya sürətini və ya substrat seçiciliyini ölçməkdən daha çox, fermentin katalitik funksiyası ilə əlaqəli struktur çərçivəni aydınlaşdırır. Tədqiqatçılar HyAT-nin apo, yəni bağlı kofaktor və ya substrat göstərilməyən kristal quruluşunu 2,31 Å ayırdetmə qabiliyyətində müəyyən etmiş; analitik ultrasentrifuqalama, kristalloqrafik müqayisələr, B-faktoru analizi, struktur homoloq axtarışı və ardıcıllıq müqayisəsi ilə aktiv sahə yaxınlığındakı elastik bölgələri araşdırmışlar.
HyAT məhlulda sabit homotetramer kimi müşahidə edilmişdir. Bununla belə, katalitik aktiv sahə tək bir monomer daxilində tam formalaşmır: bir monomerin mərkəzi β-təbəqəsi ilə qonşu monomerin böyük domenindəki α1, α2 və α11 heliksləri birlikdə subvahidlərarası yarıq əmələ gətirir. Buna görə tetramer struktur baxımından iki funksional homodimerin arxa-arxaya birləşməsi kimi düşünülə bilər; hər homodimer iki simmetrik aktiv sahə daşıyır.
Tədqiqatın mərkəzi tapıntısı aktiv sahənin girişinə qonşu α10–α11 ilgəyinin apo-HyAT-də nəzərəçarpacaq struktur elastikliyi göstərməsidir. D303–S314 qalıqlarını əhatə edən bu ilgəkdə 303-DDKPLPLGLTYS-314 ardıcıllığı yerləşir və P306 ilə P308 prolinləri P-x-P motivi yaradır. Motiv göstərimindəki “x” iki prolin arasındakı tək amin turşusu mövqeyini bildirir; HyAT-də bu mövqe L307, yəni lösindir. Tədqiqatçılar prolinlərin heliks yaranmasını poza bilən həndəsi xüsusiyyətlərinin bu ilgəyin sərt ikinci dərəcəli quruluş qazanmasını məhdudlaşdıra və yerli elastikliyə töhfə verə biləcəyini təklif edirlər.
Apo quruluşda yalnız α10–α11 ilgəyi deyil, N-terminal bölgə də nizamsızdır. Təxminən 1–31 nömrəli N-terminal qalıqlar elektron sıxlığında həll olunmamış və səkkiz müstəqil monomerin çoxunda model P32-dən başlana bilmişdir. Bunun əksinə olaraq, zülal nüvəsi səkkiz monomer arasında təxminən 0,30 Å RMSD ilə olduqca yaxşı üst-üstə düşür. Bu ziddiyyət ümumi zülal qatlanmasının qorunduğu halda aktiv sahə ətrafındakı müəyyən bölgələrin xeyli daha hərəkətli ola biləcəyini göstərir.
Tədqiqatçılar apo-HyAT-ni xüsusilə apo və PMP-bağlı strukturları məlum olan Vibrio fluvialis aminotransferazası ilə və digər ligand-bağlı sinif III homoloqları ilə müqayisə etmişlər. Homoloqlarda kofaktor/ligand bağlanmış vəziyyətdə uyğun ilgəklərin daha nizamlı və N-terminal qolun daha sabit olması, HyAT üçün nizamsızlıqdan nizama keçid modeli təklif etmələrinə səbəb olmuşdur. Lakin bu tədqiqat HyAT-nin ligand-bağlı kristal quruluşunu həll etməmişdir. Buna görə ligandın HyAT-dəki P-x-P ilgəyini birbaşa bağladığı və ya N-terminal bölgəni birbaşa stabilləşdirdiyi hələ HyAT üzərində struktur olaraq göstərilmiş nəticə deyil, homoloq müqayisələri ilə dəstəklənən mexanistik hipotezdir.
P-x-P ehtiva edən bölgənin yalnız Antarktika mənşəli HyAT-də deyil, Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 və Thermococcus litoralis DSM 5473 kimi hipertermofil homoloqlarda da qorunması tədqiqatçıları daha geniş təkamül şərhinə gətirmişdir. Müəlliflər çox soyuq və çox isti mühitlərdə qlobal zülal skeletinin fərqli sabitlik tələbləri olmasına baxmayaraq, prolin motivinin aktiv sahə ətrafında yerli hərəkətliliyi qoruyan ortaq həll ola biləcəyini təklif edirlər. Bu konvergent təkamül şərhi birbaşa adaptasiya təcrübəsi deyil; ardıcıllıq və quruluş müqayisəsinə əsaslanan elmi şərhdir.
Aminotransferaza və PLP nədir?
Aminotransferazalar amin qrupunu bir amin turşusundan keto turşusuna və ya əks istiqamətdə ötürə bilən ferment ailəsidir. Bu reaksiyalar hüceyrəvi azot metabolizmi, amin turşusu biosintezi və amin turşularının parçalanması kimi proseslərin mərkəzində yer alır. Bir çox aminotransferaza kataliz üçün piridoksal 5′-fosfat (PLP) adlı kofaktordan istifadə edir. PLP reaksiya boyunca amin qrupunun kimyəvi çevrilməsinə vasitəçilik edən köməkçi molekuldur. PLP-nin aminləşmiş forması piridoksamin 5′-fosfat (PMP) adlanır.
Mənbə tədqiqat bütün aminotransferaza reaksiya mexanizmini yenidən sınaqdan keçirmir. PLP/PMP məlumatı burada HyAT strukturunun hansı kofaktor mühitində işlədiyini anlamaq üçün zəruridir. Bu tədqiqatda HyAT üçün birbaşa ölçülmüş \(K_m\), \(k_{cat}\), optimal temperatur və ya substrat spesifikliyi dəyəri verilmir.
Sinif III aminotransferazaların struktur xüsusiyyəti
Aminotransferazalar ardıcıllıq oxşarlığı və qatlanma xüsusiyyətlərinə görə müxtəlif siniflərə ayrılır. Sinif III aminotransferazalar mərkəzdə β-təbəqə və ətrafında α-helikslər olan kompakt qatlanmaya malikdir. Bu ailədə funksional vahid əksər hallarda dimer və ya tetramerdir və aktiv sahələr subvahidlərin bir-biri ilə təmas etdiyi interfeyslərdə yaranır.
Bu xüsusiyyət vacibdir; çünki “aktiv sahə” yalnız zülalın bir zəncirində yerləşən cib deyil. HyAT-də bir monomerin struktur elementləri ilə qonşu monomerin struktur elementləri düzgün məkan mövqeyinə gəldikdə kataliz üçün lazım olan cib tamamlanır. Buna görə subvahidlərin necə birləşməsi fermentin struktur funksiyasının bir hissəsidir.
HyAT necə seçildi?
Tədqiqatçılar sinif III aminotransferaza ardıcıllıqlarını sorğu kimi istifadə edərək NCBI giriş nömrəsi AMR27191.1 olan hipotetik zülal ardıcıllığına çatmışlar. Mənbənin metod bölməsi bu ardıcıllığın Antarktika likenlərindən təcrid edilmiş Hymenobacter psoromatis PAMC 26554-ün tam genom ardıcıllığında yerləşdiyini bildirdiyi halda, zülal tədqiqat boyunca Hymenobacter sp. PAMC 26554 mənşəli HyAT kimi adlandırılmışdır. Domen ardıcıllığı InterProScan ilə sinif III aminotransferaza kimi annotasiya edilmişdir.
Mənbə HyAT üçün kifayət qədər funksional təcrübə olmadığından spesifik formal EC nömrəsinin təyin edildiyini bildirmir. Buna görə bu struktur tədqiqat zülalın hansı dəqiq biokimyəvi substratları hansı sürətlə çevirdiyini müəyyən etməmişdir.
HyAT-dəki P-x-P Motivi Niyə Vacibdir?
HyAT-dəki P-x-P motivi aktiv sahənin girişindəki α10–α11 ilgəyində yerləşən P306–L307–P308 ardıcıllığıdır və tədqiqatçılar iki prolinin yerli ikinci dərəcəli quruluşun yaranmasını məhdudlaşdıraraq ilgəyin apo vəziyyətdə elastik qalmasına töhfə verə biləcəyini təklif edirlər. Bu motivin əhəmiyyəti birbaşa ölçülmüş katalitik sürət artımından deyil; elektron sıxlığı, B-faktoru, monomerlərarası struktur fərqlər və homoloq müqayisələrinin eyni bölgəni hərəkətli göstərməsindən qaynaqlanır.
Prolin niyə xüsusi amin turşusudur?
Prolinin yan zənciri skelet azotuna geri bağlandığı üçün digər bir çox amin turşusu ilə müqayisədə skelet həndəsəsini daha güclü məhdudlaşdırır. Bu xüsusiyyət bəzi heliks həndəsələrinin davamlılığını poza bilər. Mənbə tədqiqat P306 və P308-in “helix breaker” xüsusiyyətinin α10–α11 ilgəyində sərt ikinci dərəcəli quruluş yaranmasının qarşısını almağa töhfə verə biləcəyini şərh edir.
Bu, “iki prolin olduğu üçün ilgəyin elastikliyi mütləq yalnız prolinlərdən qaynaqlanır” demək deyil. Tədqiqat P-x-P motivini mühüm struktur namizəd kimi müəyyən edir; motivin təsirini ayrı-ayrı mutasiyalarla sınaqdan keçirən təcrübə aparılmamışdır.
α10–α11 ilgəyi dəqiq haradadır?
Mənbədə elastik α10–α11 ilgəyi D303–S314 qalıqları arasında müəyyən edilir. İlgək aktiv sahə yarığının girişinə qonşudur. α1–α2 ilgəyi P86–K91 ilə birlikdə substratın və ya kofaktorun aktiv sahəyə daxil olduğu kanalın yan divarlarının bir hissəsini təşkil edir.
Buna görə ilgəyin elastikliyi yalnız uzaq səth hərəkəti deyil; aktiv sahə giriş həndəsəsinin dərhal yanında baş verir. Müəlliflərin “gating” və ya qapılama ideyasının struktur əsası budur.
B-faktoru nəyi göstərir?
Kristalloqrafik B-faktoru atomların kristal quruluş daxilində mövqesəl nizamsızlığı və ya hərəkətliliyi ilə əlaqəli parametrdir və Å2 vahidi ilə ifadə edilir. Mənbə Şəkil 2-də daha aşağı B-faktorlu bölgələr nazik/mavi, daha yüksək B-faktorlu və buna görə daha elastik kimi şərh edilən bölgələr qalın/qırmızı formada göstərilmişdir. α1–α2 və α10–α11 ilgəkləri yüksək elastikliyin aydın olduğu bölgələr arasındadır.
B-faktorunu birbaşa “atom bu qədər Å hərəkət edib” kimi şərh etmək düzgün deyil. Kristalloqrafik nizamsızlıq, hərəkətlilik və model/elektron sıxlığı xüsusiyyətləri birlikdə B-faktoruna təsir edə bilər. Bu tədqiqatda əsas mühüm məqam normallaşdırılmış B-faktorlarının eyni struktur bölgənin müxtəlif apo/ligand vəziyyətləri və homoloqlar arasında müqayisəsində istifadə edilməsidir.
Elektron sıxlığında görünməyən N-terminal bölgə nə deməkdir?
Rentgen kristalloqrafiyasında atom modeli ölçülmüş difraksiya məlumatlarından çıxarılan elektron sıxlığı xəritəsinə yerləşdirilir. Polipeptid bölgəsi kristal daxilində tək və sabit konformasiyada deyilsə, həmin bölgədən gələn sıxlıq çox zəif və ya dağınıq ola bilər və tədqiqatçı həmin qalıqları atom modelinə etibarlı şəkildə yerləşdirə bilməz.
HyAT-nin nüvə quruluşu yaxşı müəyyən edilsə də, təxminən 1–31 nömrəli N-terminal seqment elektron sıxlığında həll olunmamışdır. Səkkiz müstəqil zəncirin çoxunda model P32-dən başlayır. Müəlliflər bunu N-terminal bölgənin apo vəziyyətdə yüksək dərəcədə nizamsız olduğunun göstəricisi kimi şərh edirlər.
Səkkiz monomer niyə ayrıca vacibdir?
Kristalloqrafik asimmetrik vahiddə səkkiz HyAT monomerinin olması tədqiqatçılara eyni zülalın kristal daxilində səkkiz müstəqil nümunəsini müqayisə etmək imkanı vermişdir. Zülal nüvəsi bu monomerlərdə təxminən 0,30 Å RMSD ilə üst-üstə düşərkən α10–α11 ilgəyinin skelet trayektoriyaları daha aydın fərqlər göstərmişdir.
RMSD (root mean square deviation; orta kvadratik yayınmanın kvadrat kökü), üst-üstə salınmış atom və ya Cα mövqelərinin orta həndəsi fərqini xülasə edən struktur oxşarlıq ölçüsüdür. Aşağı RMSD müqayisə edilən nüvələrin bir-birinə yaxın olduğunu göstərir. Buradakı təxminən 0,30 Å nüvə RMSD-si ilə müqayisədə ilgəkdə görünən heterogenlik elastikliyin bütün zülala yayılan təsadüfi pozulmadan daha çox müəyyən bölgələrdə cəmləndiyi şərhini dəstəkləyir.
Ligand Bağlandıqda HyAT İlgəyinin Bağlandığı Birbaşa Göstərilibmi?
Xeyr. Bu tədqiqatda həll edilən quruluş apo-HyAT-dir; HyAT-nin PLP-, PMP- və ya substrat-bağlı kristal quruluşu müəyyən edilməmişdir. Nizamsızlıqdan nizama keçid modeli apo-HyAT-nin B-faktorları və elektron sıxlığı ilə apo və PMP-bağlı Vibrio fluvialis aminotransferazasının və digər ligand-bağlı homoloqların struktur müqayisəsinə əsaslanır. Buna görə “ligand bağlandıqda HyAT ilgəyi bağlanır” nəticəsi birbaşa HyAT təcrübəsindən deyil, güclü, lakin hələ təsdiqlənməli olan struktur çıxarışdan ibarətdir.
Vibrio fluvialis müqayisəsi niyə istifadə edildi?
Vibrio fluvialis aminotransferazası (VfAT) həm apo quruluşu (PDB: 5ZTX), həm də PMP-bağlı quruluşu (PDB: 4E3Q) məlum olan azsaylı uyğun homoloqlardan biri olduğu üçün müqayisə modeli kimi istifadə edilmişdir. HyAT ilə VfAT-nin ümumi quruluşları təxminən 1,18 Å RMSD ilə oxşar tapılmışdır.
Normallaşdırılmış B-faktoru analizində apo-VfAT-nin α10–α11-ə uyğun bölgəsində yüksək elastiklik göründüyü halda, PMP-bağlı VfAT-də eyni bölgənin B-faktorları azalır. Tədqiqatçılar bunu kofaktor bağlanmasının ilgəyi daha nizamlı hala gətirə biləcəyinə dair müqayisəli sübut kimi istifadə etmişlər.
N-terminal bölgə ilə α10–α11 ilgəyi necə əlaqələndirilir?
HyAT-nin ən yaxın struktur homoloqlarından PDB 6JIX, 6IO1 və 6S54 strukturlarında N-terminal seqment nizamlı heliks–dönüş–heliks motivi yaradır və qonşu subvahidin α1–α2 ilə α10–α11 ilgəkləri arasında yaranan yivə yerləşir. Bu üç struktur HyAT monomeri ilə müvafiq olaraq təxminən 1,000 Å, 1,042 Å və 1,218 Å Cα RMSD dəyərləri ilə üst-üstə düşür.
HyAT-də isə eyni N-terminal hissə həll olunmamışdır və iki qonşu ilgək daha yüksək elastiklik göstərir. Müəlliflərin təklif etdiyi modelə görə α10–α11 ilgəyinin ligand və ya kofaktor təsiri ilə stabilləşməsi qonşu subvahidin N-terminal qoluna möhkəm “docking scaffold” verə bilər; N-terminal bölgənin nizamlanması da aktiv sahə ətrafındakı struktur montajı tamamlaya bilər.
Bu əlaqə güclü struktur müqayisələrə əsaslansa da, səbəb-nəticə əlaqəsi HyAT üzərində mutasiya, zaman-həllolunan struktur, ligand-bağlı HyAT kristalı və ya birbaşa dinamik ölçmə ilə sınaqdan keçirilməmişdir.
HyAT Tetramer Halındadırsa, Funksional Aktiv Sahə Niyə Dimer İnterfeysindədir?
HyAT məhlulda sabit tetramer yaradır; lakin tetramer iki funksional homodimerin arxa-arxaya birləşməsi ilə əmələ gəlir və hər aktiv sahə bir homodimer daxilində iki monomerin interfeysində yaranır. Buna görə “tetramerik oliqomer vəziyyəti” ilə “aktiv sahəni yaradan əsas katalitik subvahid münasibəti” müxtəlif struktur səviyyələri ifadə edir.
Birincili və ikincili zülal interfeysləri
PDBePISA analizi HyAT kristal quruluşunda A–B, C–D, E–F və G–H zəncir cütlərini birincili homodimerlər kimi müəyyən etmişdir. Birincili dimer interfeysinin orta sahəsi 2709,9 Å2 olaraq bildirilmiş və mənbə bunun yanında p = 0,004 dəyərini vermişdir. Məqalə bu p dəyərinin ətraflı statistik şərhini ayrıca açıqlamadığı üçün burada yeni məna yüklənmir.
Daha sonra iki funksional homodimer daha kiçik ikincili interfeys vasitəsilə arxa-arxaya birləşərək tetrameri əmələ gətirir. Bu ikincili təmasın orta basdırılmış səth sahəsi 1133,2 Å2-dir. Tetramer yaranarkən hər iki birincili dimerin aktiv sahələri həllediciyə əlçatan xarici səthdə qalır.
AUC niyə lazım idi?
Kristalda səkkiz monomerin görünməsi öz-özlüyündə zülalın məhlulda səkkizli kompleks yaratdığını sübut etmir; kristal qablaşdırma təmasları bioloji olmayan qonşuluqlar yarada bilər. Buna görə tədqiqatçılar həqiqi məhluldakı oliqomer vəziyyətini ayrıca sedimentasiya sürəti analitik ultrasentrifuqalama (sedimentation velocity analytical ultracentrifugation, SV-AUC) ilə ölçmüşlər.
AUC paylanmasında molekulyar kütləsi 191,6 kDa olaraq hesablanan komponent ümumi siqnalın %98,7-sini təşkil etmiş və tədqiqatçılar bunu HyAT-nin məhlulda sabit tetramer yaratmasının sübutu kimi şərh etmişlər.
Struktur homoloqlarla müqayisə
| Zülal | PDB | Dali Z-balı | HyAT ilə ardıcıllıq eyniliyi | Mənbədə verilən oliqomer vəziyyəti |
|---|---|---|---|---|
| HyAT | 22PO | — | %100 | Tetramer |
| Taurine-2-oxoglutarate aminotransferase | 6JIX | 56,3 | %38 | Dimer |
| ω-transaminase | 6IO1 | 53,6 | %38 | Dimer |
| Class-III-ω-transaminase | 6S54 | 53,0 | %40 | Tetramer |
| Transaminase | 6FYQ | 52,9 | %36 | Dimer |
| Amine transaminase | 5LH9 | 52,9 | %35 | Tetramer |
| ω-transaminase | 9J50 | 52,2 | %33 | Dimer |
| Transaminase | 6GWI | 52,2 | %32 | Dimer |
Dali Z-balı zülal quruluşlarını üçölçülü oxşarlıq baxımından müqayisə edən Dali metodunun struktur uyğunluq göstəricisidir. Buradakı cədvəl HyAT-nin ardıcıllıq eyniliyi yalnız təxminən %32–40 səviyyəsində olan müxtəlif sinif III homoloqlarla yenə də güclü struktur oxşarlıq daşıdığını göstərir.
HyAT monomeri ilə tetramerik homoloq PDB 5LH9-un uyğun monomeri üst-üstə salındıqda 1,317 Å RMSD alınmışdır. Hər iki zülalın tetramerləri də iki funksional homodimerin arxa-arxaya birləşdiyi oxşar kvaterner düzülüş göstərir.
Prolin motivinin həm soyuq, həm də isti termal uclarda olması necə şərh edildi?
Ardıcıllıq müqayisəsi P-x-P ehtiva edən bölgənin HyAT ilə yanaşı hipertermofil arxeyalardan Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 və Thermococcus litoralis DSM 5473 homoloqlarında da qorunduğunu göstərmişdir.
Bu müşahidə ilk baxışda maraqlıdır; çünki soyuq mühitdə işləyən zülalla çox yüksək temperaturda işləyən zülalların qlobal sabitlik tələbləri fərqlidir. Müəlliflər bunun bütün zülalın elastikliyini dəyişdirmək əvəzinə yalnız aktiv sahəyə yaxın müəyyən ilgəyin hərəkətliliyini tənzimləyən ortaq struktur həll ola biləcəyini təklif edirlər.
Sabitlik–aktivlik mübadiləsi
Zülal katalizi üçün müəyyən dərəcədə struktur hərəkət tələb olunur; bunun əksinə yüksək termal sabitlik adətən daha sərt skeletlə əlaqələndirilə bilər. Müəlliflər bu iki tələb arasındakı gərginliyi stability–activity trade-off kimi müzakirə edirlər.
Hipertermofil homoloqlarda müəlliflərin modeli belədir: qlobal zülal nüvəsi yüksək temperaturda denaturasiyaya müqavimət göstərmək üçün güclü şəkildə stabilləşdiyi halda, P-x-P ehtiva edən yerli ilgək tələb olunan katalitik hərəkətliliyi qoruya bilər. Antarktika mənşəli HyAT üçün isə eyni prolin həndəsəsinin aşağı temperaturda məhdudlaşan molekulyar hərəkətlərə qarşı aktiv sahə ətrafında yerli elastikliyi saxlamağa kömək edə biləcəyi təklif edilir.
Mənbə həmçinin soyuq şəraitdə prolin motivinin ilgək hərəkətinin aktivləşmə enerjisi baryerini azalda biləcəyini şərh edir. Lakin tədqiqatda bu aktivləşmə enerjisi birbaşa ölçülməmişdir. Buna görə ifadə eksperimental enerji ölçümü deyil, müəlliflərin struktur mexanizm şərhidir.
Tədqiqatın birbaşa dedikləri ilə təklif etdiklərini ayırmaq
| İfadə | Sübut statusu |
|---|---|
| HyAT kristal quruluşu 2,31 Å ayırdetmə qabiliyyətində müəyyən edildi. | Birbaşa eksperimental kristalloqrafiya nəticəsi |
| HyAT məhlulda üstünlük təşkil edən tetramerik növdür. | Birbaşa SV-AUC nəticəsi |
| α10–α11 ilgəyi və N-terminal bölgə apo quruluşda yüksək nizamsızlıq/elastiklik göstərir. | Elektron sıxlığı, səkkiz monomer və B-faktoru analizinə əsaslanan struktur nəticə |
| P306 və P308 P-x-P motivinin hissələridir. | Birbaşa ardıcıllıq/quruluş məlumatı |
| Ligand bağlanması HyAT ilgəyini nizamlayır və N-terminusu stabilləşdirir. | HyAT üçün birbaşa göstərilməyib; homoloq müqayisələrinə əsaslanan təklif |
| İlgək substrat girişini tənzimləyən qapı rolunu oynayır. | Struktur mövqe və homoloqlara əsaslanan mexanistik hipotez |
| P-x-P termal uclarda sabitlik–aktivlik mübadiləsini həll edən konvergent strategiyadır. | Ardıcıllıq/quruluş müqayisəsinə əsaslanan təkamül şərhi |
Tədqiqatın Metodu və Nəticələri
1. Gen seçimi, klonlama və zülal istehsalı
NCBI giriş nömrəsi AMR27191.1 olan hipotetik zülal ardıcıllığı sinif III aminotransferaza ardıcıllıqları istifadə edilməklə aparılan oxşarlıq skanından seçilmişdir. Domen annotasiyası InterProScan ilə aparılmışdır.
Seçilmiş HyAT kodlaşdırıcı ardıcıllığı kodon-optimizasiya edilmiş, sintez olunmuş və NdeI ilə XhoI restriksiya sahələrindən istifadə edilərək pET28a ekspressiya vektoruna klonlanmışdır. Rekombinant plazmid zülal istehsalı üçün Escherichia coli BL21(DE3) hüceyrələrinə köçürülmüşdür.
Transformasiya olunmuş hüceyrələr 4 L LB mühitində, 50 µg/mL kanamisin iştirakı ilə 37 °C və 120 rpm-də böyüdülmüşdür. Hüceyrə kulturasının 600 nm-də optik sıxlığı \(OD_{600}=0,6\)-ya çatdıqda 0,5 mM IPTG əlavə olunmuş və zülal ekspressiyası induksiya edilmişdir. Kultura daha sonra 25 °C və 120 rpm-də gecə boyunca inkubasiya edilmişdir.
Hüceyrələr 5000 rpm-də 20 dəqiqə, 4 °C-də sentrifuqalanaraq toplanmışdır. Pellet 20 mM Tris-HCl, pH 8,0; 200 mM NaCl; 5 mM imidazol ehtiva edən lizis buferində yenidən suspenziya edilmiş və 4 °C-də ultrasəs parçalanması tətbiq olunmuşdur. Həll olunan üst faza 15.000 rpm-də 40 dəqiqə, 4 °C-də sentrifuqalamadan sonra götürülmüşdür.
2. Ni-NTA və ölçüyə görə ayırma xromatoqrafiyası
HyAT ehtiva edən supernatant Ni-NTA aqaroza kolonuna tətbiq edilmişdir. Spesifik olmayan zülalları uzaqlaşdırmaq üçün 30 mM imidazol ehtiva edən bufer istifadə edilmiş; hədəf zülal 300 mM imidazol ilə elüsiya edilmişdir.
N-terminal polihistidin etiketi mal-qara plazmasından alınan trombinlə 4 °C-də gecə boyunca inkubasiya yolu ilə uzaqlaşdırılmışdır. Ardınca ÄKTA avant FPLC sistemi və HiLoad Superdex 200 pg kolonu istifadə edilərək ölçüyə görə ayırma xromatoqrafiyası aparılmışdır. Kolon buferi 20 mM Tris-HCl, pH 8,0 və 200 mM NaCl-dir.
Təmizlənmiş zülal SDS-PAGE ilə təsdiqlənmiş, 10 kDa MWCO Amicon Ultra filtrlə 50 mg/mL-yə konsentrasiya edilmiş və kristallaşdırmada təzə istifadə olunmuşdur. Sonrakı istifadə üçün −80 °C-də saxlandığı bildirilmişdir.
3. Kristallaşdırma
İlkin kristallaşdırma skanı 96 quyulu sitting-drop lövhələrində 23 °C-də aparılmışdır. Hər damcıda 400 nL HyAT zülalı ilə 400 nL kristallaşdırma skan məhlulu qarışdırılmışdır. Zülal konsentrasiyaları 15 mg/mL və 30 mg/mL olaraq sınaqdan keçirilmişdir.
MCSG I–IV, PGA Screen və fərdiləşdirilmiş SGC skan dəstlərindən istifadə edilmişdir. Ən uyğun kristallar təxminən 1 gün sonra 0,1 M Tris-HCl, pH 8,5; 0,2 M MgCl2; %15 PEG 8000 şəraitində müşahidə edilmişdir.
4. Rentgen difraksiya məlumatlarının toplanması
Tək kristal Pohang Light Source II-dəki makromolekulyar kristalloqrafiya BL-5C şüa xəttində ölçülmüşdür. Kristal qoniometrə yerləşdirilməzdən əvvəl rezervuar məhluluna son konsentrasiyası %20 (v/v) qliserol olacaq şəkildə kriyoprotektant əlavə edilmiş məhlula qısa müddət batırılmışdır.
Difraksiya görüntüləri hər kadr üçün 1° ossilyasiya ilə, 12,658 keV enerjidə və 0,97949 Å dalğa uzunluğunda Eiger 9M detektoru ilə toplanmışdır. Məlumatlar HKL2000 ilə indekslənmiş, inteqrasiya edilmiş və miqyaslandırılmışdır.
Kristallar P21 fəza qrupundadır. Vahid hüceyrə parametrləri:
- a = 100,81 Å
- b = 152,26 Å
- c = 117,37 Å
- α = 90°
- β = 104,9°
- γ = 90°
5. Quruluşun həlli və rafinasiya
Başlanğıc model PDB 6JIX kodlu taurine-2-oxo-glutarate aminotransferase quruluşu molekulyar əvəzləmə şablonu kimi istifadə edilməklə yaradılmışdır. MOLREP/CCP4i hesablamasında Matthews əmsalı VM = 2,42 və həlledici tərkibi %49,24 əsasında asimmetrik vahiddə səkkiz molekul modelləşdirilmişdir.
Manual model qurulması və düzəlişlər Coot ilə, təkrarlanan avtomatik rafinasiya phenix.refinement ilə aparılmışdır. Son quruluş MolProbity ilə doğrulanmışdır. Atom koordinatları və struktur faktorları Protein Data Bank-a PDB 22PO giriş kodu ilə yerləşdirilmişdir.
| Metrika | Ümumi dəyər | Ən yüksək ayırdetmə qabiliyyəti qabığı |
|---|---|---|
| Ayırdetmə qabiliyyəti | 50–2,31 Å | 2,35–2,31 Å |
| Ümumi əksolunma | 960.661 | 92.794 |
| Unikal əksolunma | 147.794 | 14.267 |
| Orta I/σ(I) | 17,32 | 1,8 |
| Rmerge | 0,084 | 0,724 |
| Redundancy | 6,5 | 6,1 |
| Tamlıq | %99,3 | %98,2 |
| Rafinasiya ayırdetmə qabiliyyəti | 33,56–2,31 Å | 2,40–2,31 Å |
| Working-set əksolunma sayı | 147.794 | 14.268 |
| Test-set əksolunma sayı | 7440 | 706 |
| Amin turşusu qalığı | 3334 | — |
| Su molekulu | 802 | — |
| Rcryst | 0,196 | 0,241 |
| Rfree | 0,25 | 0,315 |
| R.m.s. rabitə uzunluğu | 0,009 Å | — |
| R.m.s. rabitə bucağı | 1,09° | — |
| Orta zülal B dəyəri | 40,77 Å2 | — |
| Orta həlledici B dəyəri | 38,97 Å2 | — |
Rmerge nəyi ölçür?
Mənbə Table 1-də \(R_{merge}\) aşağıdakı kimi müəyyən edilir:
\[ R_{\mathrm{merge}}= \frac{\sum |\langle I\rangle-I|} {\sum \langle I\rangle} \]
Formula nəyi hesablayır? Eyni kristalloqrafik əksolunmaya aid təkrar ölçmələrin ümumi orta intensivlik dəyərindən nə dərəcədə yayınmasını xülasə edir.
Dəyişənlər: \(I\), tək ölçülmüş difraksiya intensivliyini; \(\langle I\rangle\), eyni əksolunmanın təkrar ölçmələrinin orta intensivliyini təmsil edir.
Vahid: Surət və məxrəc eyni intensivlik vahidində olduğuna görə \(R_{merge}\) ölçüsüzdür.
Riyazi rol: Təkrarlanan əksolunma ölçmələri arasındakı mütləq fərqlərin cəmi orta intensivliklərin cəminə normallaşdırılır.
Şərh: Ölçmələr orta dəyərə daha yaxın olduqda nisbət kiçilir. Lakin dəyər ayırdetmə qabiliyyəti qabığı və məlumat xüsusiyyətləri ilə birlikdə qiymətləndirilməlidir. Mənbə ümumi \(R_{merge}=0,084\), ən yüksək ayırdetmə qabiliyyəti qabığında isə 0,724 bildirir.
Rcryst və Rfree nəyi göstərir?
Mənbə \(R_{cryst}\) dəyərini belə müəyyən edir:
\[ R_{\mathrm{cryst}}= \frac{\sum \left||F_o|-|F_c|\right|} {\sum |F_o|} \]
\(F_o\) eksperimental olaraq müşahidə edilən struktur faktoru amplitudasını; \(F_c\) atom modelindən hesablanan struktur faktoru amplitudasını təmsil edir. \(R_{cryst}\), rafinasiya edilmiş atom modelinin müşahidə olunan difraksiya məlumatını nə dərəcədə yenidən yaratdığını qiymətləndirən ölçüsüz uyğunluq ölçüsüdür.
Mənbədə \(R_{cryst}=0,196\), ən yüksək ayırdetmə qabiliyyəti qabığında 0,241 verilmişdir.
Rfree üçün mənbə ayrıca yeni tənlik yazmır; bütün əksolunmaların %5-inin rafinasiya mərhələlərindən kənarda saxlanılan test dəsti istifadə edilərək hesablandığını bildirir. Beləliklə modelin yalnız öz rafinasiya məlumatına həddindən artıq uyğunlaşmasını izləmək üçün müstəqil nəzarət təmin edilir. Mənbə \(R_{free}=0,25\), ən yüksək ayırdetmə qabiliyyəti qabığında 0,315 dəyərini bildirmişdir.
I/σ(I), tamlıq və redundancy nə deməkdir?
I/σ(I) ölçülən difraksiya intensivliyinin öz qeyri-müəyyənliyinə nisbətidir. Mənbə ümumi orta dəyəri 17,32, ən yüksək ayırdetmə qabiliyyəti qabığını 1,8 olaraq verir.
Tamlıq (completeness) nəzəri olaraq ölçülə biləcək unikal əksolunmaların nə qədərinin məlumat dəstində olduğunu göstərir. HyAT məlumat dəsti üçün ümumi tamlıq %99,3, ən yüksək ayırdetmə qabiliyyəti qabığında %98,2-dir.
Redundancy eyni unikal əksolunmanın orta hesabla neçə dəfə ölçüldüyünü ifadə edir. Mənbə ümumi 6,5 və yüksək ayırdetmə qabiliyyəti qabığında 6,1 dəyərlərini bildirmişdir.
6. Analitik ultrasentrifuqalama şəraiti
HyAT oliqomerləşmə vəziyyəti Proteome Lab XL-A analitik ultrasentrifuqa və AN-60 Ti rotor istifadə edilməklə araşdırılmışdır. Zülal 20 mM Tris-HCl, pH 8,0 və 200 mM NaCl buferində hazırlanmışdır.
SEDNTERP v3.0.4 ilə mənbədə müvafiq olaraq aşağıdakı dəyərlər hesablanmışdır:
- qismən spesifik həcm: 0,7356 mL/g,
- bufer sıxlığı: 1,00709 g/mL,
- bufer özlülüyü: 0,01026 Poise,
- hesablama temperaturu: 20 °C.
Nümunə 42.000 rpm-ə qaldırılmış və 20 °C-də 10 dəqiqə ilkin şəraitdə saxlanmışdır. Sedimentasiya profili 280 nm-də hər 5 dəqiqədə bir izlənmiş və ümumilikdə 40 absorbans skanı SEDFIT v18.1 ilə analiz edilmişdir. Vizuallaşdırma GraphPad Prism v5.02 ilə aparılmış; zülal interfeysləri PDBePISA ilə qiymətləndirilmişdir.
7. Monomerin struktur arxitekturası
HyAT monomeri sinif III aminotransferazaların kanonik qatlanmasını daşıyır və mərkəzi yeddi zəncirli β-təbəqə α-helikslərlə əhatə olunur.
Zülal iki əsas struktur domenə ayrılır. Böyük domen β4–β10 zəncirlərinin yaratdığı mərkəzi β-təbəqəni və onu əhatə edən α-heliksləri ehtiva edir. Kiçik domen isə həm N-terminal, həm də C-terminaldan gələn fasiləli seqmentlərdən ibarətdir; N-terminaldan üç β-zəncir, C-terminaldan dörd β-zəncir ilə α12, α14 və α15 helikslərini ehtiva edir.
İki domen arasında iki menteşə bölgəsi müəyyən edilmişdir. Birinci menteşə N-terminal bölgədə β3 ilə α1 arasındakı D53–D67 seqmentidir. İkinci menteşə α11 ilə α12 arasındadır və mənbə burada bir asparagin qalığının yerli helikal bükülmə yaratdığını bildirir.
8. Aktiv sahənin struktur komponentləri
HyAT-nin katalitik boşluğu bir monomerin mərkəzi β-təbəqəsi ilə qonşu subvahidin böyük domenindən gələn α1, α2 və α11 helikslərinin birlikdə yaratdığı subvahidlərarası yarıqda yerləşir.
Mənbə D251 və qorunmuş aktiv-sahə qalığı K280-in kofaktor bağlanma cibində məkan baxımından təşkil olunduğunu bildirir. Şəkil 1 həmçinin V253-ü aktiv sahə ətrafındakı mühüm qalıqlardan biri kimi göstərir; lakin mətn V253 üçün D251 və ya K280 səviyyəsində ayrıca katalitik funksiya təsviri vermədiyindən burada əlavə rol təyin edilmir.
9. İlgək və N-terminal nizamsızlığı
Elektron sıxlığı iki ilgəkdə xüsusilə zəif və ya fasiləlidir:
- α1–α2 ilgəyi: P86–K91,
- α10–α11 ilgəyi: D303–S314.
Bundan əlavə, təxminən N-terminal 1–31 qalıqları tamamilə həll olunmamışdır. Səkkiz zəncirin çoxunda model P32-dən başlayır.
Səkkiz müstəqil monomerin üst-üstə salınmasında nüvə RMSD təxminən 0,30 Å olduğu halda, α10–α11 ilgəyinin skelet konformasiyaları aydın şəkildə ayrılır. Tədqiqatçılar bunu apo fermentdə tək sabit ilgək quruluşundan daha çox konformasiyalar ansamblının olduğunun göstəricisi kimi şərh etmişlər.
10. P-x-P ardıcıllığı
HyAT-nin α10–α11 ilgəyi daxilində mənbədə aşağıdakı seqment verilir:
303-DDKPLPLGLTYS-314
Buradakı prolinlər:
- P306,
- P308.
Beləliklə mərkəzi motiv P306-L307-P308 şəklindədir.
Mənbənin struktur şərhinə görə iki prolin sərt helikal ikinci dərəcəli quruluş yaranmasını poza və yerli konformasiya müxtəlifliyini artıra bilər. Lakin prolinlərdən hər hansı birinin mutasiyaya uğradıldığı funksional təcrübə olmadığı üçün motivin təsirinin böyüklüyünü bu tədqiqatdan kəmiyyətcə çıxarmaq mümkün deyil.
11. Homoloq müqayisələrindən çıxarılan nizamlanma modeli
HyAT-nin apo quruluşunda α10–α11 ilgəyi və N-terminal qol nizamsızdır. Bunun əksinə olaraq, seçilmiş homoloqlarda N-terminal heliks–dönüş–heliks qolu qonşu monomerin α1–α2 və α10–α11 ilgəkləri arasındakı yivə yerləşir və polar/qeyri-polar təmaslarla dəstəklənir.
Müəlliflər bu müqayisədən aşağıdakı ardıcıl modeli təklif edirlər:
- Apo vəziyyətdə P-x-P ehtiva edən α10–α11 ilgəyi elastik ola və daha açıq konformasiyaları nümunələyə bilər.
- Bu quruluş aktiv sahə girişinin əlçatanlığını artıra bilər.
- Ligand və ya kofaktor bağlanması ilgəyin daha nizamlı konformasiyaya keçməsini təmin edə bilər.
- Daha sabit ilgək qonşu subvahidin N-terminal qoluna struktur docking səthi verə bilər.
- N-terminal qolun nizamlanması aktiv sahə ətrafındakı montajı tamamlaya bilər.
Bu beş mərhələ tədqiqatçıların təklif etdiyi mexanizmdir. Mərhələlərin hamısı HyAT üzərində birbaşa zaman ardıcıllığında müşahidə edilməmişdir.
12. Təkamül müqayisəsi
P-x-P ehtiva edən uyğun ilgək bölgəsi hipertermofil homoloqlarda da aşkar edilmişdir. Tədqiqatda adı çəkilən orqanizmlər:
- Pyrococcus horikoshii OT3,
- Thermococcus kodakarensis KOD1,
- Thermococcus litoralis DSM 5473.
Müəlliflər bu ortaq xüsusiyyəti qlobal zülal sabitliyi fərqli istiqamətlərdə seleksiya təzyiqi altında olsa belə, aktiv sahə ətrafındakı yerli elastikliyin prolin həndəsəsi ilə tənzimlənə biləcəyi konvergent təkamül strategiyası kimi şərh edirlər.
Tədqiqatın dəstəklədiyi nəticələr
- HyAT-nin apo kristal quruluşu 2,31 Å ayırdetmə qabiliyyətində müəyyən edilmişdir.
- HyAT məhlulda üstünlük təşkil edən sabit tetramerik təşkilatlanma göstərir.
- Funksional aktiv sahə monomerlərarası homodimer interfeysində yaranır.
- α10–α11 ilgəyi D303–S314 və α1–α2 ilgəyi P86–K91 apo quruluşda yüksək elastiklik/nizamsızlıq göstərir.
- N-terminal təxminən 1–31 qalıqları apo quruluşun elektron sıxlığında həll olunmamışdır.
- Səkkiz monomerin nüvəsi yüksək oxşarlıq göstərdiyi halda, α10–α11 ilgəyi daha çox struktur heterogenlik göstərir.
- HyAT-nin α10–α11 ilgəyində P306–L307–P308 P-x-P motivi vardır.
- Apo və kofaktor-bağlı homoloqların müqayisəsi ligand bağlanması ilə əlaqəli yerli nizamlanma hipotezi ilə uyğundur.
- P-x-P-bənzər motivin araşdırılmış hipertermofil homoloqlarda da qorunması müəlliflərin konvergent təkamül şərhini dəstəkləyən müqayisəli müşahidədir.
Tədqiqatın dəstəkləmədiyi ümumiləşdirmələr
- HyAT-nin hansı təbii substratda ən yüksək aktivliyə malik olduğu bu tədqiqatda müəyyən edilməmişdir.
- HyAT üçün \(K_m\), \(V_{max}\), \(k_{cat}\) və ya katalitik səmərəlilik dəyərləri bildirilməmişdir.
- P306 və ya P308 mutasiyalarının aktivliyi nə qədər dəyişdirdiyi sınaqdan keçirilməmişdir.
- HyAT-nin ligand-bağlı kristal quruluşu həll edilməmişdir.
- Təklif olunan açıq→qapalı keçid HyAT üzərində zaman ərzində birbaşa görüntülənməmişdir.
- P-x-P motivinin substrat girişini mütləq idarə etdiyi biokimyəvi olaraq sübut edilməmişdir.
- Soyuq və isti adaptasiya arasındakı konvergent təkamül mexanizmi birbaşa təkamül təcrübəsi ilə təsdiqlənməmişdir.
- Bu struktur tədqiqat sənaye biokataliz performansı və ya istehsal miqyası göstərmir.
Tədqiqatın əsas məhdudiyyəti və növbəti təcrübə ehtiyacı
Məqalənin ən mühüm açıq tədqiqat ehtiyacı HyAT-nin ligand-bağlı quruluşunun və birbaşa biokimyəvi funksiyasının araşdırılmasıdır. Müəlliflər α10–α11 ilgəyinin həqiqi funksiyasını dəqiqləşdirmək üçün əlavə ligand-bağlı struktur və biokimyəvi tədqiqatların lazım olduğunu açıq şəkildə bildirirlər.
Xüsusilə P306/P308 kimi motiv qalıqlarının istiqamətləndirilmiş mutasiyaları, ligandlı HyAT kristal və ya digər yüksək ayırdetmə qabiliyyətli strukturlar və uyğun aktivlik/bağlanma təcrübələri mövcud struktur modeldə irəli sürülən səbəb əlaqələrini sınaqdan keçirmək üçün lazım olacaq. Bu son cümlədəki təcrübə növləri mövcud tədqiqatda aparılmış təcrübələr deyil; mövcud qeyri-müəyyənliyin hansı növ birbaşa sübutlarla aradan qaldırıla biləcəyini izah edən öyrədici çərçivədir.
Mənbə və Metod Qeydi
Orijinal tədqiqat: Structural Insights into the N-Terminus and a Flexible P-x-P Loop near the Active Site of a Class III Aminotransferase
Müəlliflər: Jisub Hwang; Hackwon Do; Jun Hyuck Lee.
Müəllif sırası: Jisub Hwang → Hackwon Do → Jun Hyuck Lee.
Bərabər töhfə: Mənbə PDF-də bərabər birinci müəlliflik/bərabər töhfə işarəsi bildirilməmişdir.
Corresponding authors: Hackwon Do və Jun Hyuck Lee.
Afiliyaşiya 1: Research Unit for Low-Temperature Convergence Technology, Korea Polar Research Institute, Incheon 21990, Republic of Korea.
Afiliyaşiya 2: Department of Polar Sciences, University of Science and Technology, Incheon 21990, Republic of Korea.
Jurnal: Crystals.
Nəşriyyat: MDPI, Basel, Switzerland.
Cild / məqalə: Volume 16, Article 576.
DOI: 10.3390/cryst16090576.
Təqdim tarixi: 10 avqust 2026.
Reviziya tarixi: 28 avqust 2026.
Qəbul tarixi: 1 sentyabr 2026.
Nəşr tarixi: 3 sentyabr 2026.
Mənbə növü: Eksperimental struktur biologiyası / zülal kristalloqrafiyası tədqiqat məqaləsi.
Rəyçilik statusu: Dərc olunmuş jurnal məqaləsidir; PDF-də received, revised, accepted və published tarixləri vardır.
Rəsmi keçid: https://doi.org/10.3390/cryst16090576
Lisenziya: Creative Commons Attribution 4.0 International (CC BY 4.0).
Zülal strukturu məlumat deposu: RCSB Protein Data Bank.
PDB giriş kodu: 22PO.
Maliyyələşdirmə: Korea Polar Research Institute qrantı; Ministry of Oceans and Fisheries tərəfindən maliyyələşdirilən KOPRI PE26150 və PE26220 layihə nömrələri.
Maraqlar toqquşması: Müəlliflər maraqlar toqquşmasının olmadığını bəyan etmişlər.
Məlumatların əlçatanlığı: Bu tədqiqatda yaradılmış struktur məlumat dəsti RCSB PDB Protein Data Bank-da HyAT üçün 22PO giriş nömrəsi ilə təqdim olunur.
Müəllif töhfələri: Konseptuallaşdırma, nəzarət və layihə idarəetməsi H.D. və J.H.L.; tədqiqat və metodologiya J.H. və H.D.; məlumat kurasiyası J.H.; formal analiz və doğrulama J.H. və H.D.; vizuallaşdırma J.H. və H.D.; ilk layihə J.H. və H.D.; nəzərdən keçirmə və redaktə H.D. və J.H.L.
Süni intellekt istifadəsi bəyanatı: Müəlliflər məqalənin ingilis dilindəki mətninin aydınlığını, qrammatikasını və oxunaqlığını yaxşılaşdırmaq məqsədilə ChatGPT (GPT-5.6, OpenAI) istifadə etdiklərini; çıxışı özlərinin nəzərdən keçirib redaktə etdiklərini və nəşr məzmununa görə məsuliyyəti üzərlərinə götürdüklərini bildirmişlər.
Əlavə material: Mənbə məqalə Figure S1, Figure S2 və Figure S3-ü əlavə material kimi sadalayır. Bu əlavə material faylları istifadəçi tərəfindən yüklənən əsas PDF daxilində olmadığı üçün Verianla qiymətləndirməsində əlavə şəkillər müstəqil olaraq vizual araşdırmaya məruz qalmamışdır. Əsas mətnin bu şəkillər barədə açıq şəkildə bildirdiyi tapıntılar qorunmuşdur.
Mənbədaxili oliqomer metod qeydi: Table 2, HyAT sətrində oliqomer vəziyyəti üçün “Tetramer (GPC)” ifadəsini istifadə edir. Bunun əksinə Methods 2.4, Results 3.2 və Figure 1B HyAT oliqomerləşməsinin sedimentation velocity analytical ultracentrifugation (SV-AUC) ilə analiz edildiyini açıq şəkildə bildirir. Verianla bu fərqi səssizcə düzəltməyib; ətraflı metod və nəticə təsvirindəki SV-AUC təcrübəsini əsas götürməklə yanaşı, cədvəl etiketindəki fərqi mənbədaxili uyğunsuzluq kimi qoruyub.
Əsas elmi şərh sərhədi: Tədqiqat HyAT-nin apo quruluşunu birbaşa müəyyən etmişdir. Ligand/kofaktor bağlanmasından sonrakı ilgək nizamlanması, N-terminal stabilləşməsi, aktiv-sahə qapılama mexanizmi və termal uclardakı konvergent adaptasiya modeli qismən homoloq quruluş və ardıcıllıq müqayisələrindən çıxarılan şərhlərdir. HyAT-nin ligand-bağlı quruluşunun və motivin birbaşa biokimyəvi funksiyasının gələcəkdə təsdiqlənməsi tələb olunur.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib