


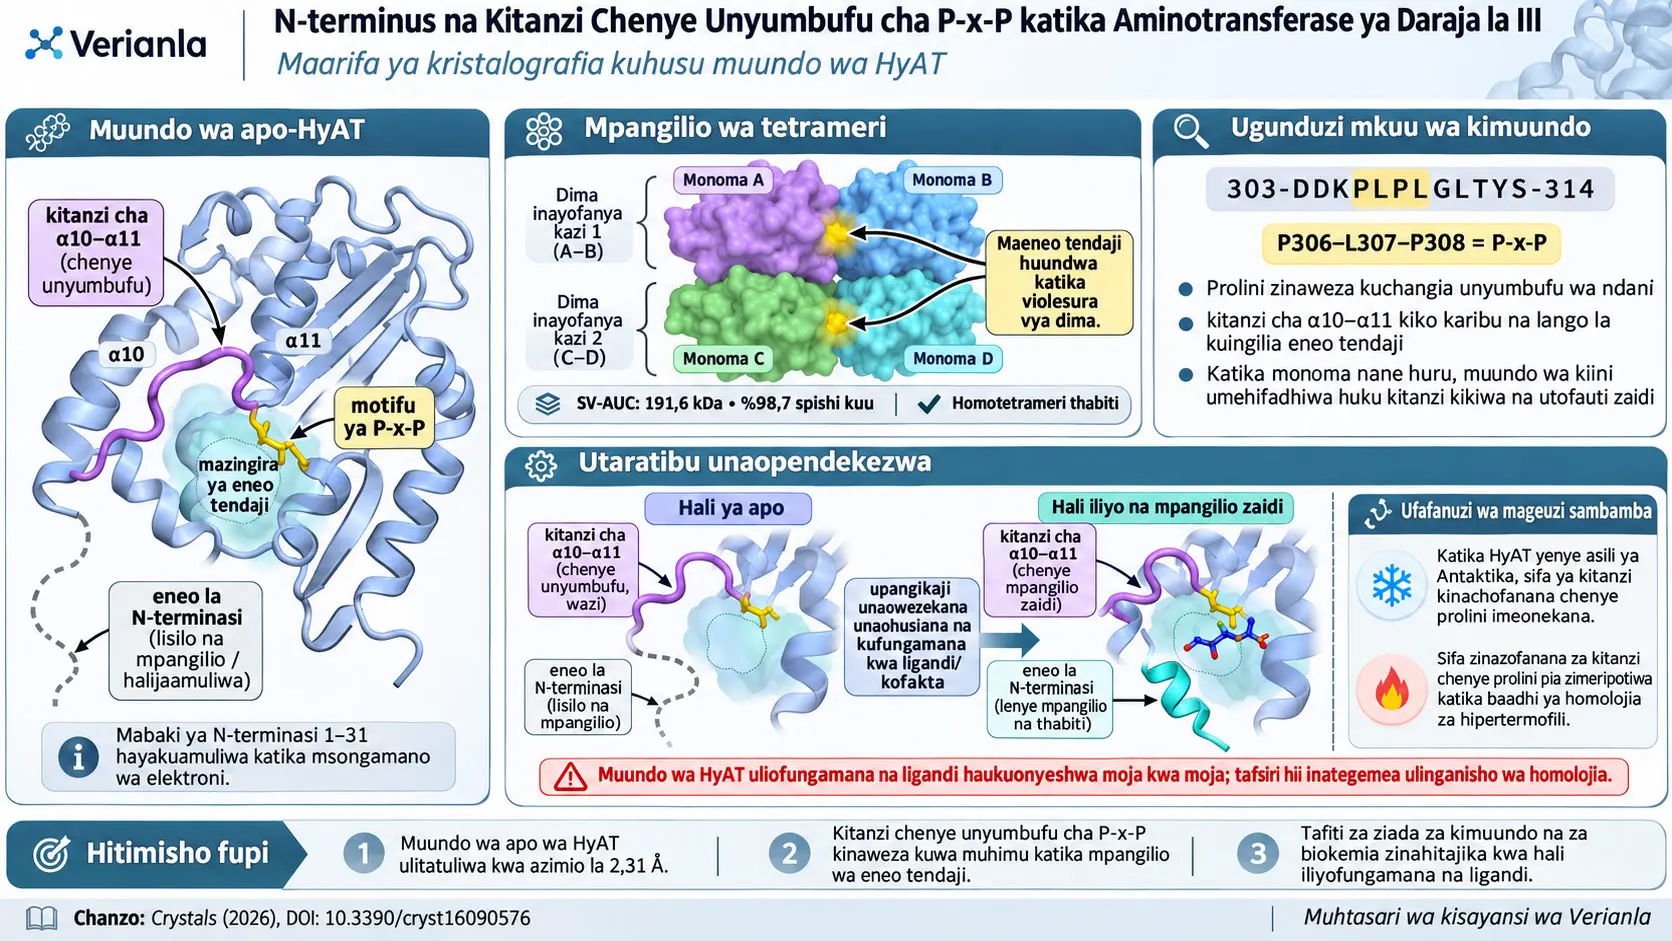
HyAT ni aminotransferase inayotegemea pyridoxal 5′-phosphate (Pyridoxal 5′-phosphate, PLP), iliyochaguliwa kutoka kwenye mfuatano wa jenomu unaohusishwa na Hymenobacter sp. PAMC 26554 iliyotengwa kutoka kwenye licheni za Antaktika na kutabiriwa kuwa na mkunjo wa daraja la III. Badala ya kupima kasi ya mmenyuko wa kibiokemia au uteuzi wa substrate wa HyAT, utafiti huu unafafanua mfumo wa kimuundo unaohusishwa na kazi ya kichocheo ya kimeng'enya. Watafiti waliamua muundo wa kioo wa apo wa HyAT, yaani muundo ambao hauonyeshi kofakta au substrate iliyofungamana, katika mwonekano wa 2,31 Å; wakachunguza maeneo yenye unyumbufu karibu na eneo tendaji kwa kutumia ultracentrifugation ya uchanganuzi, ulinganisho wa kristalografia, uchanganuzi wa B-factor, utafutaji wa homologu za kimuundo na ulinganisho wa mifuatano.
HyAT ilionekana katika suluhisho kama homotetramer thabiti. Hata hivyo, eneo tendaji la kichocheo halikamiliki ndani ya monoma moja: β-sheet ya kati ya monoma moja pamoja na helix za α1, α2 na α11 katika domeni kubwa ya monoma jirani huunda ufa wa kati ya subunit. Kwa hiyo, tetramer inaweza kutazamwa kimuundo kama muungano wa nyuma-kwa-nyuma wa homodimer mbili za kikazi; kila homodimer ina maeneo tendaji mawili yenye ulinganifu.
Ugunduzi mkuu wa utafiti ni kwamba kitanzi cha α10–α11 kilicho karibu na mlango wa eneo tendaji kinaonyesha unyumbufu mkubwa wa kimuundo katika apo-HyAT. Kitanzi hiki, kinachojumuisha mabaki D303–S314, kina mfuatano 303-DDKPLPLGLTYS-314, na prolini P306 na P308 huunda motifu ya P-x-P. Herufi “x” katika uwasilishaji wa motifu inaonyesha nafasi moja ya asidi ya amino kati ya prolini hizo mbili; katika HyAT nafasi hiyo ni L307, yaani leusini. Watafiti wanapendekeza kwamba sifa za kijiometri za prolini, ambazo zinaweza kuvuruga uundaji wa helix, zinaweza kuzuia kitanzi hiki kupata muundo mgumu wa sekondari na kuchangia unyumbufu wa eneo hilo.
Katika muundo wa apo, si kitanzi cha α10–α11 pekee kilicho na mpangilio usio thabiti; eneo la N-terminal pia halijapangwa vizuri. Takriban mabaki ya N-terminal namba 1–31 hayakuweza kutatuliwa katika msongamano wa elektroni, na katika monoma nyingi kati ya nane huru, modeli iliweza kuanzishwa kutoka P32. Kinyume chake, kiini cha protini kinaingiliana vizuri sana kati ya monoma nane kwa takriban 0,30 Å RMSD. Tofauti hii inaonyesha kwamba wakati mkunjo wa jumla wa protini unahifadhiwa, baadhi ya maeneo maalumu karibu na eneo tendaji yanaweza kuwa yenye mwendo mkubwa zaidi.
Watafiti walilinganisha apo-HyAT hasa na aminotransferase ya Vibrio fluvialis, ambayo miundo yake ya apo na iliyofungamana na PMP inajulikana, pamoja na homologu nyingine za daraja la III zilizofungamana na ligand. Katika homologu hizo, hali ya kufungamana kwa kofakta/ligand inaambatana na vitanzi vinavyolingana kuwa na mpangilio zaidi na mkono wa N-terminal kuwa thabiti zaidi, jambo lililowaongoza kupendekeza modeli ya mpito kutoka kutokuwa na mpangilio kwenda kwenye mpangilio kwa HyAT. Hata hivyo, utafiti huu haukutatua muundo wa kioo wa HyAT iliyofungamana na ligand. Kwa hiyo, kwamba ligand hufunga moja kwa moja kitanzi cha P-x-P katika HyAT au hutuliza moja kwa moja eneo la N-terminal si matokeo ambayo bado yameonyeshwa kimuundo kwenye HyAT yenyewe, bali ni nadharia ya kimakanika inayoungwa mkono na ulinganisho wa homologu.
Uhifadhi wa eneo lenye P-x-P si tu katika HyAT ya asili ya Antaktika bali pia katika homologu za hyperthermophile kama Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 na Thermococcus litoralis DSM 5473 uliwaongoza watafiti kutoa tafsiri pana zaidi ya mageuzi. Waandishi wanapendekeza kwamba ingawa mifupa ya protini kwa ujumla ina mahitaji tofauti ya uthabiti katika mazingira ya baridi kali na joto kali, motifu ya prolini inaweza kuwa suluhisho la pamoja linalodumisha uhamaji wa eneo karibu na eneo tendaji. Tafsiri hii ya mageuzi yanayokaribiana si jaribio la moja kwa moja la urekebishaji; ni tafsiri ya kisayansi inayotegemea ulinganisho wa mfuatano na muundo.
Aminotransferase na PLP ni nini?
Aminotransferase ni familia ya vimeng'enya vinavyoweza kuhamisha kundi la amino kutoka asidi ya amino kwenda kwenye keto acid au kwa mwelekeo wa kinyume. Miitikio hii iko katikati ya michakato kama metaboli ya nitrojeni ya seli, usanisi wa asidi za amino na uvunjaji wa asidi za amino. Aminotransferase nyingi hutumia kofakta inayoitwa pyridoxal 5′-phosphate (PLP) kwa ajili ya kichocheo. PLP ni molekuli saidizi inayowezesha mabadiliko ya kikemia ya kundi la amino wakati wa mmenyuko. Aina ya PLP iliyopokea kundi la amino huitwa pyridoxamine 5′-phosphate (PMP).
Utafiti wa chanzo haujaribu upya utaratibu mzima wa mmenyuko wa aminotransferase. Taarifa ya PLP/PMP hapa inahitajika kuelewa mazingira ya kofakta ambamo muundo wa HyAT hufanya kazi. Katika utafiti huu hakuna thamani ya \(K_m\), \(k_{cat}\), halijoto bora au umaalumu wa substrate ya HyAT iliyopimwa moja kwa moja iliyotolewa.
Sifa ya kimuundo ya aminotransferase za daraja la III
Aminotransferase hugawanywa katika madaraja mbalimbali kulingana na kufanana kwa mfuatano na sifa za mkunjo. Aminotransferase za daraja la III zina mkunjo wa kompakt wenye β-sheet katikati na α-helix zinazouzunguka. Katika familia hii, kitengo cha kikazi mara nyingi huwa dimer au tetramer na maeneo tendaji huundwa kwenye interface ambako subunit hugusana.
Sifa hii ni muhimu; kwa sababu “eneo tendaji” si mfuko uliopo tu kwenye mnyororo mmoja wa protini. Katika HyAT, vipengele vya kimuundo vya monoma moja na vya monoma jirani vinapofika katika nafasi sahihi ya anga, mfuko unaohitajika kwa kichocheo hukamilika. Kwa hiyo, namna subunit zinavyoungana ni sehemu ya kazi ya kimuundo ya kimeng'enya.
HyAT ilichaguliwaje?
Watafiti walitumia mifuatano ya aminotransferase za daraja la III kama hoja ya utafutaji na kufikia mfuatano wa protini dhahania wenye namba ya ufikiaji ya NCBI AMR27191.1. Ingawa sehemu ya mbinu ya chanzo inaripoti kwamba mfuatano huu unapatikana katika mfuatano kamili wa jenomu wa Hymenobacter psoromatis PAMC 26554 iliyotengwa kutoka kwenye licheni za Antaktika, protini hiyo katika utafiti mzima imeelezwa kuwa ya asili ya Hymenobacter sp. PAMC 26554 na kuitwa HyAT. Mfuatano wa domeni uliainishwa kwa InterProScan kama aminotransferase ya daraja la III.
Chanzo hakiripoti kwamba namba rasmi mahususi ya EC ilipewa HyAT kwa sababu hakuna majaribio ya kutosha ya kikazi. Kwa hiyo, utafiti huu wa kimuundo haujabainisha ni substrate zipi sahihi za kibiokemia ambazo protini hubadilisha na kwa kasi gani.
Kwa Nini Motifu ya P-x-P katika HyAT ni Muhimu?
Motifu ya P-x-P katika HyAT ni mfuatano P306–L307–P308 ulio katika kitanzi cha α10–α11 kwenye mlango wa eneo tendaji, na watafiti wanapendekeza kwamba prolini hizo mbili zinaweza kuchangia kitanzi kubaki na unyumbufu katika hali ya apo kwa kuzuia uundaji wa muundo wa sekondari wa eneo hilo. Umuhimu wa motifu hii hautokani na ongezeko la kasi ya kichocheo lililopimwa moja kwa moja; unatokana na msongamano wa elektroni, B-factor, tofauti za kimuundo kati ya monoma na ulinganisho wa homologu kuonyesha eneo hilo hilo kuwa lenye mwendo.
Kwa nini prolini ni asidi ya amino ya pekee?
Kwa sababu mnyororo wa pembeni wa prolini hurudi na kuungana na nitrojeni ya uti wa mgongo, huzuia jiometri ya uti wa mgongo kwa nguvu zaidi kuliko asidi nyingi nyingine za amino. Sifa hii inaweza kuvuruga mwendelezo wa baadhi ya jiometri za helix. Utafiti wa chanzo unatafsiri kwamba sifa ya “helix breaker” ya P306 na P308 inaweza kuchangia kuzuia uundaji wa muundo mgumu wa sekondari katika kitanzi cha α10–α11.
Hii haimaanishi kwamba “kwa kuwa kuna prolini mbili, unyumbufu wa kitanzi lazima utokane na prolini pekee”. Utafiti unatambua motifu ya P-x-P kama mgombea muhimu wa kimuundo; hakuna jaribio lililofanywa la kupima athari ya motifu kwa mabadiliko ya jeni ya kila nafasi moja moja.
Kitanzi cha α10–α11 kiko wapi hasa?
Katika chanzo, kitanzi chenye unyumbufu cha α10–α11 kinafafanuliwa kati ya mabaki D303–S314. Kitanzi kiko karibu na mlango wa ufa wa eneo tendaji. Pamoja na kitanzi cha α1–α2 P86–K91, huunda sehemu ya kuta za pembeni za njia ambayo substrate au kofakta hupitia kufikia eneo tendaji.
Kwa hiyo, unyumbufu wa kitanzi si mwendo wa uso wa mbali tu; hutokea karibu kabisa na jiometri ya mlango wa eneo tendaji. Huu ndio msingi wa kimuundo wa wazo la waandishi la “gating” au udhibiti wa lango.
B-factor inaeleza nini?
B-factor ya kristalografia ni parameta inayohusiana na kutokuwa na mpangilio wa nafasi au uhamaji wa atomu ndani ya muundo wa kioo na huonyeshwa kwa kitengo cha Å2. Katika Kielelezo 2 cha chanzo, maeneo yenye B-factor ya chini yanaonyeshwa kuwa membamba/bluu, na maeneo yenye B-factor ya juu na hivyo kutafsiriwa kuwa yenye unyumbufu zaidi yanaonyeshwa kuwa manene/nyekundu. Vitanzi vya α1–α2 na α10–α11 ni miongoni mwa maeneo ambako unyumbufu mkubwa unaonekana wazi.
Si sahihi kutafsiri B-factor moja kwa moja kama “atomu imesogea Å kiasi hiki”. Kutokuwa na mpangilio wa kristalografia, uhamaji na sifa za modeli/msongamano wa elektroni zinaweza kuathiri B-factor kwa pamoja. Katika utafiti huu, jambo muhimu ni matumizi ya B-factor zilizosanifishwa katika kulinganisha eneo lilelile la kimuundo kati ya hali mbalimbali za apo/ligand na homologu.
Eneo la N-terminal lisiloonekana katika msongamano wa elektroni linamaanisha nini?
Katika kristalografia ya X-ray, modeli ya atomu huwekwa kwenye ramani ya msongamano wa elektroni inayotokana na data ya difraksia iliyopimwa. Ikiwa eneo la polipeptidi halipo katika konformasheni moja thabiti ndani ya kioo, msongamano kutoka eneo hilo unaweza kuwa dhaifu sana au kusambaa, na mtafiti hawezi kuweka mabaki hayo kwa kuaminika katika modeli ya atomu.
Ingawa muundo wa kiini cha HyAT umefafanuliwa vizuri, sehemu ya N-terminal ya takriban mabaki 1–31 haikuweza kutatuliwa katika msongamano wa elektroni. Katika minyororo mingi kati ya nane huru, modeli huanza kutoka P32. Waandishi wanatafsiri hili kama dalili kwamba eneo la N-terminal lina kiwango kikubwa cha kutokuwa na mpangilio katika hali ya apo.
Kwa nini monoma nane ni muhimu pia?
Kuwepo kwa monoma nane za HyAT katika unit isiyolingana ya kristalografia kuliwapa watafiti nafasi ya kulinganisha sampuli nane huru za protini ileile ndani ya kioo. Wakati kiini cha protini kinaingiliana katika monoma hizi kwa takriban 0,30 Å RMSD, njia za uti wa mgongo za kitanzi cha α10–α11 zilionyesha tofauti zilizo wazi zaidi.
RMSD (root mean square deviation; mzizi wa wastani wa mraba wa mkengeuko) ni kipimo cha ufanano wa kimuundo kinachofupisha tofauti ya wastani ya kijiometri ya nafasi za atomu au Cα zilizowekwa juu ya nyingine. RMSD ya chini inaonyesha kwamba viini vinavyolinganishwa vinafanana kwa karibu. Heterojenia iliyoonekana katika kitanzi ikilinganishwa na RMSD ya kiini ya takriban 0,30 Å inaunga mkono tafsiri kwamba unyumbufu umejikita katika maeneo maalumu badala ya kuwa uharibifu wa nasibu unaoenea kwenye protini nzima.
Je, Kufungwa kwa Kitanzi cha HyAT Wakati Ligand Inapofungamana Kumeonyeshwa Moja kwa Moja?
Hapana. Muundo uliotatuliwa katika utafiti huu ni apo-HyAT; muundo wa kioo wa HyAT iliyofungamana na PLP, PMP au substrate haujaamuliwa. Modeli ya mpito kutoka kutokuwa na mpangilio kwenda kwenye mpangilio inategemea B-factor na msongamano wa elektroni wa apo-HyAT pamoja na ulinganisho wa kimuundo wa aminotransferase ya Vibrio fluvialis katika hali ya apo na iliyofungamana na PMP, na homologu nyingine zilizofungamana na ligand. Kwa hiyo, hitimisho kwamba “ligand inapofungamana kitanzi cha HyAT hufunga” halitokani na jaribio la moja kwa moja la HyAT, bali ni hitimisho la kimuundo lenye nguvu lakini ambalo bado linahitaji kuthibitishwa.
Kwa nini ulinganisho wa Vibrio fluvialis ulitumiwa?
Aminotransferase ya Vibrio fluvialis (VfAT) ilitumiwa kama modeli ya kulinganisha kwa sababu ni mojawapo ya homologu chache zinazofaa ambazo muundo wake wa apo (PDB: 5ZTX) na muundo uliofungamana na PMP (PDB: 4E3Q) unajulikana. Miundo ya jumla ya HyAT na VfAT ilionekana kufanana kwa takriban 1,18 Å RMSD.
Katika uchanganuzi wa B-factor zilizosanifishwa, eneo linalolingana na α10–α11 la apo-VfAT linaonyesha unyumbufu mkubwa, huku B-factor za eneo hilo hilo zikipungua katika VfAT iliyofungamana na PMP. Watafiti walitumia hili kama ushahidi wa kulinganisha kwamba kufungamana kwa kofakta kunaweza kukifanya kitanzi kiwe na mpangilio zaidi.
Eneo la N-terminal na kitanzi cha α10–α11 vinahusishwaje?
Katika miundo PDB 6JIX, 6IO1 na 6S54, ambayo ni miongoni mwa homologu za kimuundo zilizo karibu zaidi na HyAT, sehemu ya N-terminal huunda motifu yenye mpangilio ya helix–turn–helix na kukaa kwenye mfereji unaoundwa kati ya vitanzi vya α1–α2 na α10–α11 vya subunit jirani. Miundo hii mitatu huingiliana na monoma ya HyAT kwa takriban 1,000 Å, 1,042 Å na 1,218 Å Cα RMSD, mtawalia.
Katika HyAT, sehemu hiyo hiyo ya N-terminal haijatatuliwa na vitanzi viwili jirani vinaonyesha unyumbufu mkubwa zaidi. Kulingana na modeli iliyopendekezwa na waandishi, kutulia kwa kitanzi cha α10–α11 kutokana na athari ya ligand au kofakta kunaweza kutoa “docking scaffold” imara kwa mkono wa N-terminal wa subunit jirani; mpangilio wa eneo la N-terminal pia unaweza kukamilisha mkusanyiko wa kimuundo karibu na eneo tendaji.
Ingawa uhusiano huu unatokana na ulinganisho thabiti wa kimuundo, sababu na athari hazijajaribiwa katika HyAT kwa mabadiliko ya jeni, muundo wenye azimio la wakati, kioo cha HyAT kilichofungamana na ligand au kipimo cha moja kwa moja cha mienendo.
Ikiwa HyAT ni Tetramer, Kwa Nini Eneo Tendaji la Kikazi Liko Kwenye Interface ya Dimer?
HyAT huunda tetramer thabiti katika suluhisho; hata hivyo, tetramer huundwa kwa kuungana nyuma-kwa-nyuma kwa homodimer mbili za kikazi, na kila eneo tendaji huundwa kwenye interface ya monoma mbili ndani ya homodimer moja. Kwa hiyo, “hali ya oligomer ya tetramer” na “uhusiano msingi wa subunit za kichocheo unaounda eneo tendaji” huwakilisha viwango tofauti vya kimuundo.
Interface za msingi na za pili za protini
Uchanganuzi wa PDBePISA ulitambua jozi za minyororo A–B, C–D, E–F na G–H katika muundo wa kioo wa HyAT kama homodimer za msingi. Eneo la wastani la interface ya dimer ya msingi liliripotiwa kuwa 2709,9 Å2, na chanzo kilitoa thamani ya p = 0,004 kando yake. Kwa kuwa makala haielezi kando tafsiri ya kina ya kitakwimu ya thamani hii ya p, hakuna maana mpya inayoongezwa hapa.
Baadaye homodimer mbili za kikazi huungana nyuma-kwa-nyuma kupitia interface ya pili ndogo zaidi na kuunda tetramer. Eneo la wastani la uso uliofichwa katika mgusano huu wa pili ni 1133,2 Å2. Tetramer inapoundwa, maeneo tendaji ya dimer zote mbili za msingi hubaki kwenye uso wa nje unaofikika na kiyeyushi.
Kwa nini AUC ilihitajika?
Kuonekana kwa monoma nane katika kioo peke yake hakuthibitishi kwamba protini huunda kompleksi ya sehemu nane katika suluhisho; migusano ya ufungashaji wa kioo inaweza kuunda ujirani usio wa kibayolojia. Kwa hiyo, watafiti walipima hali halisi ya oligomer katika suluhisho kwa kutumia ultracentrifugation ya uchanganuzi ya kasi ya sedimentation (sedimentation velocity analytical ultracentrifugation, SV-AUC).
Katika usambazaji wa AUC, sehemu yenye uzito wa molekuli uliokokotolewa kuwa 191,6 kDa iliwakilisha %98,7 ya ishara yote, na watafiti wakatafsiri hili kama ushahidi kwamba HyAT huunda tetramer thabiti katika suluhisho.
Ulinganisho na homologu za kimuundo
| Protini | PDB | Alama ya Dali Z | Ufanano wa mfuatano na HyAT | Hali ya oligomer iliyoripotiwa katika chanzo |
|---|---|---|---|---|
| HyAT | 22PO | — | %100 | Tetramer |
| Taurine-2-oxoglutarate aminotransferase | 6JIX | 56,3 | %38 | Dimer |
| ω-transaminase | 6IO1 | 53,6 | %38 | Dimer |
| Class-III-ω-transaminase | 6S54 | 53,0 | %40 | Tetramer |
| Transaminase | 6FYQ | 52,9 | %36 | Dimer |
| Amine transaminase | 5LH9 | 52,9 | %35 | Tetramer |
| ω-transaminase | 9J50 | 52,2 | %33 | Dimer |
| Transaminase | 6GWI | 52,2 | %32 | Dimer |
Alama ya Dali Z ni kiashiria cha ulinganifu wa kimuundo wa mbinu ya Dali inayolinganisha miundo ya protini kwa kufanana kwa pande tatu. Jedwali hapa linaonyesha kwamba ingawa ufanano wa mfuatano wa HyAT na homologu mbalimbali za daraja la III ni takriban %32–40 pekee, bado ina ufanano mkubwa wa kimuundo nazo.
Monoma ya HyAT ilipowekwa juu ya monoma inayolingana ya homologu tetrameriki PDB 5LH9, 1,317 Å RMSD ilipatikana. Tetramer za protini zote mbili pia zinaonyesha mpangilio wa quaternary unaofanana ambapo homodimer mbili za kikazi huungana nyuma-kwa-nyuma.
Uwepo wa motifu ileile ya prolini kwenye ncha za baridi na joto ulitafsiriwaje?
Ulinganisho wa mfuatano ulionyesha kwamba eneo lenye P-x-P limehifadhiwa, pamoja na HyAT, katika homologu za archaea hyperthermophilic Pyrococcus horikoshii OT3, Thermococcus kodakarensis KOD1 na Thermococcus litoralis DSM 5473.
Uchunguzi huu unavutia kwa mtazamo wa kwanza; kwa sababu mahitaji ya uthabiti wa jumla wa protini inayofanya kazi katika mazingira ya baridi na protini zinazofanya kazi katika joto la juu sana ni tofauti. Waandishi wanapendekeza kuwa hii inaweza kuwa suluhisho la kawaida la kimuundo linalorekebisha uhamaji wa kitanzi maalumu karibu na eneo tendaji badala ya kubadilisha unyumbufu wa protini nzima.
Ubadilishanaji kati ya uthabiti na shughuli
Kichocheo cha protini kinahitaji kiwango fulani cha mwendo wa kimuundo; kwa upande mwingine, uthabiti mkubwa wa joto kwa kawaida unaweza kuhusishwa na kiunzi kigumu zaidi. Waandishi wanajadili mvutano kati ya mahitaji haya mawili kama stability–activity trade-off.
Katika homologu za hyperthermophile, modeli ya waandishi ni hii: wakati kiini cha protini kwa ujumla kimetulizwa kwa nguvu ili kustahimili denaturation katika joto la juu, kitanzi cha eneo lenye P-x-P kinaweza kudumisha uhamaji wa kichocheo unaohitajika. Kwa HyAT ya asili ya Antaktika, inapendekezwa kwamba jiometri ileile ya prolini inaweza kusaidia kudumisha unyumbufu wa eneo karibu na eneo tendaji dhidi ya miondoko ya molekuli inayozuiwa katika halijoto ya chini.
Chanzo pia kinatafsiri kwamba katika hali ya baridi motifu ya prolini inaweza kupunguza kizuizi cha nishati ya uanzishaji kwa mwendo wa kitanzi. Hata hivyo, nishati hii ya uanzishaji haikupimwa moja kwa moja katika utafiti. Kwa hiyo, kauli hii si kipimo cha majaribio cha nishati, bali ni tafsiri ya waandishi ya utaratibu wa kimuundo.
Kutenganisha yale ambayo utafiti unasema moja kwa moja na yale unayopendekeza
| Kauli | Hali ya ushahidi |
|---|---|
| Muundo wa kioo wa HyAT uliamuliwa katika mwonekano wa 2,31 Å. | Matokeo ya moja kwa moja ya kristalografia ya majaribio |
| HyAT ni hasa aina ya tetramer katika suluhisho. | Matokeo ya moja kwa moja ya SV-AUC |
| Kitanzi cha α10–α11 na eneo la N-terminal vinaonyesha kutokuwa na mpangilio/unyumbufu mkubwa katika muundo wa apo. | Matokeo ya kimuundo yanayotegemea msongamano wa elektroni, monoma nane na uchanganuzi wa B-factor |
| P306 na P308 ni sehemu za motifu ya P-x-P. | Taarifa ya moja kwa moja ya mfuatano/muundo |
| Kufungamana kwa ligand hupanga kitanzi cha HyAT na kutuliza N-terminus. | Haijaonyeshwa moja kwa moja kwa HyAT; pendekezo linalotegemea ulinganisho wa homologu |
| Kitanzi hufanya kazi kama lango linalodhibiti ufikiaji wa substrate. | Nadharia ya kimakanika inayotegemea nafasi ya kimuundo na homologu |
| P-x-P ni mkakati wa mageuzi yanayokaribiana unaotatua ubadilishanaji wa uthabiti–shughuli kwenye ncha za halijoto. | Tafsiri ya mageuzi inayotegemea ulinganisho wa mfuatano/muundo |
Mbinu na Matokeo ya Utafiti
1. Uteuzi wa jeni, uundaji wa kloni na uzalishaji wa protini
Mfuatano wa protini dhahania wenye namba ya ufikiaji ya NCBI AMR27191.1 ulichaguliwa kupitia uchunguzi wa ufanano kwa kutumia mifuatano ya aminotransferase za daraja la III. Uainishaji wa domeni ulifanywa kwa InterProScan.
Mfuatano uliochaguliwa wa usimbaji wa HyAT ulifanyiwa uboreshaji wa kodoni, ukasanifiwa na kuingizwa katika vekta ya ekspresheni pET28a kwa kutumia maeneo ya restriksheni ya NdeI na XhoI. Plasmidi rekombinanti iliingizwa katika seli za Escherichia coli BL21(DE3) kwa ajili ya uzalishaji wa protini.
Seli zilizobadilishwa zilikuzwa katika 4 L LB medium, zikiwa na 50 µg/mL kanamisin, katika 37 °C na 120 rpm. Msongamano wa macho wa utamaduni wa seli katika 600 nm ulipofikia \(OD_{600}=0,6\), 0,5 mM IPTG iliongezwa na ekspresheni ya protini ikachochewa. Kisha utamaduni uliwekwa 25 °C na 120 rpm usiku kucha.
Seli zilikusanywa kwa kusentrifugi katika 5000 rpm kwa dakika 20, 4 °C. Pellet ilisuspensiwa upya katika buffer ya lysis yenye 20 mM Tris-HCl, pH 8,0; 200 mM NaCl; 5 mM imidazole na kuvunjwa kwa ultrasound katika 4 °C. Awamu ya juu iliyoyeyuka ilichukuliwa baada ya kusentrifugi katika 15.000 rpm kwa dakika 40, 4 °C.
2. Ni-NTA na kromatografia ya kutenganisha kwa ukubwa
Supernatant yenye HyAT iliwekwa kwenye kolamu ya agarose ya Ni-NTA. Buffer yenye 30 mM imidazole ilitumika kuondoa protini zisizo mahususi; protini lengwa ilitolewa kwa 300 mM imidazole.
Lebo ya N-terminal ya polyhistidine iliondolewa kwa kuinkubeta na thrombin kutoka plasma ya ng'ombe katika 4 °C usiku kucha. Kisha kromatografia ya kutenganisha kwa ukubwa ilifanywa kwa kutumia mfumo wa ÄKTA avant FPLC na kolamu ya HiLoad Superdex 200 pg. Buffer ya kolamu ilikuwa 20 mM Tris-HCl, pH 8,0 na 200 mM NaCl.
Protini iliyosafishwa ilithibitishwa kwa SDS-PAGE, ikakolezwa hadi 50 mg/mL kwa kichujio cha 10 kDa MWCO Amicon Ultra na kutumiwa ikiwa safi katika ukristalishaji. Iliripotiwa kuhifadhiwa katika −80 °C kwa matumizi ya baadaye.
3. Ukristalishaji
Uchunguzi wa awali wa ukristalishaji ulifanywa katika sahani za sitting-drop zenye visima 96 katika 23 °C. Katika kila tone, 400 nL ya protini ya HyAT ilichanganywa na 400 nL ya suluhisho la uchunguzi wa ukristalishaji. Viwango vya protini vya 15 mg/mL na 30 mg/mL vilijaribiwa.
MCSG I–IV, PGA Screen na seti maalumu za uchunguzi za SGC zilitumika. Fuwele zinazofaa zaidi zilionekana baada ya takriban siku 1 katika hali ya 0,1 M Tris-HCl, pH 8,5; 0,2 M MgCl2; %15 PEG 8000.
4. Ukusanyaji wa data ya difraksia ya X-ray
Fuwele moja ilipimwa kwenye mstari wa miale wa kristalografia ya makromolekuli BL-5C katika Pohang Light Source II. Kabla ya kuwekwa kwenye goniometer, fuwele ilizamishwa kwa muda mfupi katika suluhisho la reservoir lililoongezewa cryoprotectant hadi mkusanyiko wa mwisho wa %20 (v/v) glycerol.
Picha za difraksia zilikusanywa kwa 1° oscillation kwa kila fremu, katika nishati ya 12,658 keV na urefu wa wimbi wa 0,97949 Å kwa kutumia detector ya Eiger 9M. Data iliwekewa faharasa, kuunganishwa na kupimwa kwa HKL2000.
Fuwele ziko katika kundi la anga la P21. Parameta za unit cell ni:
- a = 100,81 Å
- b = 152,26 Å
- c = 117,37 Å
- α = 90°
- β = 104,9°
- γ = 90°
5. Utatuzi na uboreshaji wa muundo
Modeli ya awali iliundwa kwa kutumia muundo wa taurine-2-oxo-glutarate aminotransferase wenye kodi ya PDB 6JIX kama kiolezo cha molecular replacement. Katika hesabu ya MOLREP/CCP4i, molekuli nane ziliwekwa katika unit isiyolingana kwa msingi wa mgawo wa Matthews VM = 2,42 na maudhui ya kiyeyushi %49,24.
Ujenzi na marekebisho ya modeli kwa mkono yalifanywa kwa Coot, na uboreshaji wa kiotomatiki wa kurudiwa kwa phenix.refinement. Muundo wa mwisho ulithibitishwa kwa MolProbity. Koordinati za atomu na factor za muundo ziliwekwa katika Protein Data Bank kwa kodi ya ufikiaji PDB 22PO.
| Metriki | Thamani ya jumla | Ganda la mwonekano wa juu zaidi |
|---|---|---|
| Mwonekano | 50–2,31 Å | 2,35–2,31 Å |
| Reflections zote | 960.661 | 92.794 |
| Reflections za kipekee | 147.794 | 14.267 |
| Wastani I/σ(I) | 17,32 | 1,8 |
| Rmerge | 0,084 | 0,724 |
| Redundancy | 6,5 | 6,1 |
| Ukamilifu | %99,3 | %98,2 |
| Mwonekano wa refinement | 33,56–2,31 Å | 2,40–2,31 Å |
| Idadi ya reflections za Working-set | 147.794 | 14.268 |
| Idadi ya reflections za Test-set | 7440 | 706 |
| Mabaki ya asidi ya amino | 3334 | — |
| Molekuli za maji | 802 | — |
| Rcryst | 0,196 | 0,241 |
| Rfree | 0,25 | 0,315 |
| Urefu wa bondi wa R.m.s. | 0,009 Å | — |
| Pembe ya bondi ya R.m.s. | 1,09° | — |
| Thamani ya wastani ya B ya protini | 40,77 Å2 | — |
| Thamani ya wastani ya B ya kiyeyushi | 38,97 Å2 | — |
Rmerge inapima nini?
Chanzo kinafafanua \(R_{merge}\) katika Table 1 kwa namna ifuatayo:
\[ R_{\mathrm{merge}}= \frac{\sum |\langle I\rangle-I|} {\sum \langle I\rangle} \]
Fomula inahesabu nini? Inafupisha kwa kiasi gani vipimo vinavyorudiwa vya reflection ileile ya kristalografia vinatofautiana na thamani ya wastani ya intensity ya pamoja.
Vigezo: \(I\) inawakilisha intensity moja ya difraksia iliyopimwa; \(\langle I\rangle\) inawakilisha wastani wa intensity ya vipimo vinavyorudiwa vya reflection ileile.
Kitengo: Kwa sababu numerator na denominator ziko katika kitengo kilekile cha intensity, \(R_{merge}\) haina kipimo.
Jukumu la kihisabati: Jumla ya tofauti kamili kati ya vipimo vinavyorudiwa vya reflection hugawanywa kwa jumla ya intensity za wastani ili kusanifishwa.
Tafsiri: Vipimo vinapokuwa karibu zaidi na thamani ya wastani, uwiano hupungua. Hata hivyo, thamani inapaswa kutathminiwa pamoja na ganda la mwonekano na sifa za data. Chanzo kinaripoti \(R_{merge}=0,084\) kwa jumla na 0,724 katika ganda la mwonekano wa juu zaidi.
Rcryst na Rfree zinaeleza nini?
Chanzo kinafafanua thamani ya \(R_{cryst}\) kama ifuatavyo:
\[ R_{\mathrm{cryst}}= \frac{\sum \left||F_o|-|F_c|\right|} {\sum |F_o|} \]
\(F_o\) inawakilisha amplitude ya factor ya muundo iliyozingatiwa kwa majaribio; \(F_c\) inawakilisha amplitude ya factor ya muundo iliyohesabiwa kutoka modeli ya atomu. \(R_{cryst}\) ni kipimo kisicho na kitengo cha ulinganifu kinachotathmini kwa kiwango gani modeli ya atomu iliyoboreshwa inaweza kuzalisha upya data ya difraksia iliyozingatiwa.
Katika chanzo \(R_{cryst}=0,196\), na 0,241 katika ganda la mwonekano wa juu zaidi.
Kwa Rfree, chanzo hakiandiki mlinganyo mpya tofauti; kinasema kwamba ilihesabiwa kwa kutumia seti ya majaribio ambayo %5 ya reflections zote ziliachwa nje ya hatua za refinement. Hivyo, udhibiti huru hupatikana ili kufuatilia iwapo modeli inalingana kupita kiasi na data yake ya refinement pekee. Chanzo kinaripoti \(R_{free}=0,25\), na 0,315 katika ganda la mwonekano wa juu zaidi.
I/σ(I), ukamilifu na redundancy zinamaanisha nini?
I/σ(I) ni uwiano wa intensity ya difraksia iliyopimwa na kutokuwa na uhakika kwake. Chanzo kinatoa wastani wa jumla wa 17,32 na 1,8 katika ganda la mwonekano wa juu zaidi.
Ukamilifu (completeness) unaonyesha ni sehemu gani ya reflections za kipekee ambazo kidhana zinaweza kupimwa zipo katika seti ya data. Kwa seti ya data ya HyAT, ukamilifu wa jumla ni %99,3 na katika ganda la mwonekano wa juu zaidi ni %98,2.
Redundancy inaonyesha kwa wastani reflection ileile ya kipekee ilipimwa mara ngapi. Chanzo kinaripoti 6,5 kwa jumla na 6,1 katika ganda la mwonekano wa juu.
6. Hali za ultracentrifugation ya uchanganuzi
Hali ya oligomerization ya HyAT ilichunguzwa kwa kutumia ultracentrifuge ya uchanganuzi Proteome Lab XL-A na rotor AN-60 Ti. Protini iliandaliwa katika buffer ya 20 mM Tris-HCl, pH 8,0 na 200 mM NaCl.
Kwa SEDNTERP v3.0.4, chanzo kilikokotoa thamani zifuatazo mtawalia:
- ujazo mahususi wa sehemu: 0,7356 mL/g,
- msongamano wa buffer: 1,00709 g/mL,
- mnato wa buffer: 0,01026 Poise,
- halijoto ya hesabu: 20 °C.
Sampuli iliongezwa hadi 42.000 rpm na kushikiliwa katika hali ya mwanzo ya 20 °C kwa dakika 10. Profaili ya sedimentation ilifuatiliwa katika 280 nm kila baada ya dakika 5, na jumla ya skani 40 za absorbance zilichanganuliwa kwa SEDFIT v18.1. Uwasilishaji wa picha ulifanywa kwa GraphPad Prism v5.02; interface za protini zilitathminiwa kwa PDBePISA.
7. Usanifu wa kimuundo wa monoma
Monoma ya HyAT ina mkunjo wa kanoni wa aminotransferase za daraja la III, na β-sheet ya kati yenye nyuzi saba imezungukwa na α-helix.
Protini imegawanywa katika domeni mbili kuu za kimuundo. Domeni kubwa ina β-sheet ya kati inayoundwa na nyuzi β4–β10 pamoja na α-helix zinazoizunguka. Domeni ndogo huundwa na sehemu zisizoendelea zinazotoka N-terminal na C-terminal; ina nyuzi tatu za β kutoka N-terminal, nyuzi nne za β kutoka C-terminal pamoja na helix za α12, α14 na α15.
Maeneo mawili ya hinge yamefafanuliwa kati ya domeni hizo mbili. Hinge ya kwanza ni sehemu ya D53–D67 katika eneo la N-terminal kati ya β3 na α1. Hinge ya pili iko kati ya α11 na α12, na chanzo kinasema kwamba hapa baki moja la asparagine huunda mpindo wa helix wa eneo.
8. Vipengele vya kimuundo vya eneo tendaji
Tundu la kichocheo la HyAT liko katika ufa wa kati ya subunit unaoundwa kwa pamoja na β-sheet ya kati ya monoma moja pamoja na helix za α1, α2 na α11 kutoka domeni kubwa ya subunit jirani.
Chanzo kinasema kwamba D251 na baki lililohifadhiwa la eneo tendaji K280 zimepangwa katika nafasi ndani ya mfuko wa kufungamana kwa kofakta. Kielelezo 1 pia kinaonyesha V253 kama mojawapo ya mabaki muhimu karibu na eneo tendaji; hata hivyo, kwa sababu maandishi hayatoi jukumu maalumu la kichocheo kwa V253 katika kiwango sawa na D251 au K280, hakuna jukumu la ziada linalopewa hapa.
9. Kutokuwa na mpangilio kwa kitanzi na N-terminal
Msongamano wa elektroni ni dhaifu au umekatika hasa katika vitanzi viwili:
- Kitanzi cha α1–α2: P86–K91,
- Kitanzi cha α10–α11: D303–S314.
Zaidi ya hayo, takriban mabaki ya N-terminal 1–31 hayakuweza kutatuliwa kabisa. Katika minyororo mingi kati ya nane, modeli huanza kutoka P32.
Katika kuweka monoma nane huru juu ya nyingine, RMSD ya kiini ni takriban 0,30 Å, huku konformasheni za uti wa mgongo za kitanzi cha α10–α11 zikitofautiana wazi. Watafiti walitafsiri hili kama ishara kwamba katika kimeng'enya cha apo kuna mkusanyiko wa konformasheni badala ya muundo mmoja thabiti wa kitanzi.
10. Mfuatano wa P-x-P
Ndani ya kitanzi cha α10–α11 cha HyAT, chanzo kinatoa sehemu ifuatayo:
303-DDKPLPLGLTYS-314
Prolini zilizo hapa ni:
- P306,
- P308.
Kwa hiyo, motifu ya kati ni P306-L307-P308.
Tafsiri ya kimuundo ya chanzo ni kwamba prolini hizo mbili zinaweza kuvuruga uundaji wa muundo mgumu wa sekondari wa helix na kuongeza utofauti wa konformasheni wa eneo. Hata hivyo, kwa kuwa hakuna jaribio la kikazi ambamo prolini yoyote imebadilishwa, ukubwa wa athari ya motifu hauwezi kutolewa kwa kiasi kutoka katika utafiti huu.
11. Modeli ya mpangilio iliyotokana na ulinganisho wa homologu
Katika muundo wa apo wa HyAT, kitanzi cha α10–α11 na mkono wa N-terminal havina mpangilio. Kinyume chake, katika homologu zilizochaguliwa, mkono wa N-terminal wa helix–turn–helix hukaa kwenye mfereji kati ya vitanzi vya α1–α2 na α10–α11 vya monoma jirani na kuimarishwa na migusano polar/nonpolar.
Waandishi wanapendekeza modeli ifuatayo ya hatua kwa hatua kutokana na ulinganisho huu:
- Katika hali ya apo, kitanzi cha α10–α11 chenye P-x-P kinaweza kuwa na unyumbufu na kuchukua konformasheni zilizo wazi zaidi.
- Muundo huu unaweza kuongeza ufikivu wa mlango wa eneo tendaji.
- Kufungamana kwa ligand au kofakta kunaweza kuwezesha kitanzi kuhamia kwenye konformasheni yenye mpangilio zaidi.
- Kitanzi kilicho thabiti zaidi kinaweza kutoa uso wa docking wa kimuundo kwa mkono wa N-terminal wa subunit jirani.
- Mpangilio wa mkono wa N-terminal unaweza kukamilisha mkusanyiko karibu na eneo tendaji.
Hatua hizi tano ni utaratibu uliopendekezwa na watafiti. Si hatua zote zimeonekana moja kwa moja kwa mpangilio wa wakati katika HyAT.
12. Ulinganisho wa mageuzi
Eneo linalolingana la kitanzi chenye P-x-P pia limegunduliwa katika homologu za hyperthermophile. Viumbe vilivyotajwa katika utafiti ni:
- Pyrococcus horikoshii OT3,
- Thermococcus kodakarensis KOD1,
- Thermococcus litoralis DSM 5473.
Waandishi wanatafsiri ufanano huu kama mkakati wa mageuzi yanayokaribiana ambapo hata kama uthabiti wa protini kwa ujumla uko chini ya shinikizo la uteuzi katika mielekeo tofauti, unyumbufu wa eneo karibu na eneo tendaji unaweza kurekebishwa kupitia jiometri ya prolini.
Matokeo yanayoungwa mkono na utafiti
- Muundo wa kioo wa apo wa HyAT uliamuliwa katika mwonekano wa 2,31 Å.
- HyAT huonyesha hasa mpangilio thabiti wa tetramer katika suluhisho.
- Eneo tendaji la kikazi huundwa kwenye interface ya homodimer kati ya monoma.
- Kitanzi cha α10–α11 D303–S314 na kitanzi cha α1–α2 P86–K91 vinaonyesha unyumbufu/kutokuwa na mpangilio mkubwa katika muundo wa apo.
- Takriban mabaki ya N-terminal 1–31 hayakuweza kutatuliwa katika msongamano wa elektroni wa muundo wa apo.
- Kiini cha monoma nane kinaonyesha ufanano mkubwa huku kitanzi cha α10–α11 kikionyesha heterojenia kubwa zaidi ya kimuundo.
- Katika kitanzi cha α10–α11 cha HyAT kuna motifu ya P306–L307–P308 P-x-P.
- Ulinganisho wa homologu za apo na zilizofungamana na kofakta unaendana na nadharia ya mpangilio wa eneo unaohusishwa na kufungamana kwa ligand.
- Uhifadhi wa motifu inayofanana na P-x-P katika homologu za hyperthermophile zilizochunguzwa ni uchunguzi wa kulinganisha unaounga mkono tafsiri ya waandishi ya mageuzi yanayokaribiana.
Ujumla ambao utafiti hauungi mkono
- Utafiti huu haujaamua HyAT ina shughuli ya juu zaidi kwenye substrate ipi ya asili.
- Thamani za \(K_m\), \(V_{max}\), \(k_{cat}\) au ufanisi wa kichocheo kwa HyAT hazijaripotiwa.
- Haijajaribiwa ni kwa kiwango gani mabadiliko ya P306 au P308 hubadilisha shughuli.
- Muundo wa kioo wa HyAT iliyofungamana na ligand haujatatuliwa.
- Mpito uliopendekezwa wa wazi→fungwa haujaonyeshwa moja kwa moja kwa muda katika HyAT.
- Haijathibitishwa kibiokemia kwamba motifu ya P-x-P inadhibiti moja kwa moja ufikiaji wa substrate.
- Utaratibu wa mageuzi yanayokaribiana kati ya urekebishaji wa baridi na joto haujathibitishwa kwa jaribio la moja kwa moja la mageuzi.
- Utafiti huu wa kimuundo hauonyeshi utendaji wa biocatalysis ya viwandani au kiwango cha uzalishaji.
Kizuizi kikuu cha utafiti na hitaji la majaribio yanayofuata
Hitaji muhimu zaidi la utafiti ambalo bado liko wazi katika makala ni kuchunguza muundo wa HyAT iliyofungamana na ligand na kazi yake ya moja kwa moja ya kibiokemia. Waandishi wanaeleza wazi kwamba tafiti zaidi za kimuundo na kibiokemia za hali iliyofungamana na ligand zinahitajika ili kuthibitisha kazi halisi ya kitanzi cha α10–α11.
Hasa, mabadiliko yaliyoelekezwa ya mabaki ya motifu kama P306/P308, kioo cha HyAT chenye ligand au miundo mingine ya mwonekano wa juu na majaribio yanayofaa ya shughuli/kufungamana yatahitajika ili kupima uhusiano wa kisababishi uliopendekezwa katika modeli ya kimuundo ya sasa. Aina za majaribio katika sentensi hii ya mwisho si majaribio yaliyofanywa katika utafiti wa sasa; ni mfumo wa maelezo unaoonyesha ni aina gani za ushahidi wa moja kwa moja zinaweza kuondoa kutokuwa na uhakika uliopo.
Maelezo ya Chanzo na Mbinu
Utafiti asili: Structural Insights into the N-Terminus and a Flexible P-x-P Loop near the Active Site of a Class III Aminotransferase
Waandishi: Jisub Hwang; Hackwon Do; Jun Hyuck Lee.
Mpangilio wa waandishi: Jisub Hwang → Hackwon Do → Jun Hyuck Lee.
Mchango sawa: PDF ya chanzo hairipoti alama ya uandishi wa kwanza wa pamoja/mchango sawa.
Corresponding authors: Hackwon Do na Jun Hyuck Lee.
Afiliyesheni 1: Research Unit for Low-Temperature Convergence Technology, Korea Polar Research Institute, Incheon 21990, Republic of Korea.
Afiliyesheni 2: Department of Polar Sciences, University of Science and Technology, Incheon 21990, Republic of Korea.
Jarida: Crystals.
Mchapishaji: MDPI, Basel, Switzerland.
Juzuu / makala: Volume 16, Article 576.
DOI: 10.3390/cryst16090576.
Tarehe ya kuwasilishwa: 10 Agosti 2026.
Tarehe ya marekebisho: 28 Agosti 2026.
Tarehe ya kukubaliwa: 1 Septemba 2026.
Tarehe ya kuchapishwa: 3 Septemba 2026.
Aina ya chanzo: Makala ya utafiti wa biolojia ya miundo ya majaribio / kristalografia ya protini.
Hali ya mapitio ya rika: Ni makala ya jarida iliyochapishwa; PDF ina tarehe za received, revised, accepted na published.
Kiungo rasmi: https://doi.org/10.3390/cryst16090576
Leseni: Creative Commons Attribution 4.0 International (CC BY 4.0).
Hifadhi ya data ya muundo wa protini: RCSB Protein Data Bank.
Msimbo wa ufikiaji wa PDB: 22PO.
Ufadhili: Ruzuku ya Korea Polar Research Institute; nambari za miradi KOPRI PE26150 na PE26220 zilizofadhiliwa na Ministry of Oceans and Fisheries.
Mgongano wa maslahi: Waandishi wametangaza kwamba hawana mgongano wa maslahi.
Upatikanaji wa data: Seti ya data ya muundo iliyotolewa katika utafiti huu inapatikana katika RCSB PDB Protein Data Bank kwa HyAT kwa nambari ya ufikiaji 22PO.
Michango ya waandishi: Uundaji wa dhana, usimamizi na usimamizi wa mradi H.D. na J.H.L.; utafiti na mbinu J.H. na H.D.; uratibu wa data J.H.; uchanganuzi rasmi na uthibitishaji J.H. na H.D.; uonyeshaji wa data J.H. na H.D.; rasimu ya kwanza J.H. na H.D.; mapitio na uhariri H.D. na J.H.L.
Taarifa ya matumizi ya akili bandia: Waandishi wamesema kwamba walitumia ChatGPT (GPT-5.6, OpenAI) ili kuboresha uwazi, sarufi na usomaji wa maandishi ya Kiingereza ya makala; walipitia na kuhariri matokeo wenyewe na wamekubali kuwajibika kwa maudhui ya uchapishaji.
Nyenzo za ziada: Makala ya chanzo inaorodhesha Figure S1, Figure S2 na Figure S3 kama nyenzo za ziada. Kwa kuwa faili hizi za nyenzo za ziada hazipo ndani ya PDF kuu iliyopakiwa na mtumiaji, katika tathmini ya Verianla vielelezo vya ziada havikufanyiwa ukaguzi huru wa kuona. Matokeo yaliyoripotiwa wazi kuhusu vielelezo hivi katika maandishi makuu yamehifadhiwa.
Dokezo la mbinu ya oligomeri ndani ya chanzo: Table 2 hutumia usemi “Tetramer (GPC)” kwa hali ya oligomeri katika mstari wa HyAT. Kinyume chake, Methods 2.4, Results 3.2 na Figure 1B zinaeleza wazi kwamba oligomerization ya HyAT ilichanganuliwa kwa sedimentation velocity analytical ultracentrifugation (SV-AUC). Verianla haijasahihisha tofauti hii kimyakimya; huku ikizingatia jaribio la SV-AUC katika maelezo ya kina ya mbinu na matokeo, imehifadhi tofauti ya lebo ya jedwali kama kutokuwiana ndani ya chanzo.
Kikomo kikuu cha tafsiri ya kisayansi: Utafiti uliamua moja kwa moja muundo wa apo wa HyAT. Upangikaji wa kitanzi baada ya kufungamana kwa ligand/kofakta, uimarishaji wa N-terminal, utaratibu wa kufungua na kufunga eneo tendaji na modeli ya uadaptishaji unaokaribiana katika hali za mwisho za joto ni tafsiri zinazotokana kwa sehemu na ulinganisho wa miundo homologu na mfuatano. Muundo wa HyAT uliofungamana na ligand na kazi ya moja kwa moja ya kibayokemia ya motifu zinahitaji kuthibitishwa katika siku zijazo.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *