

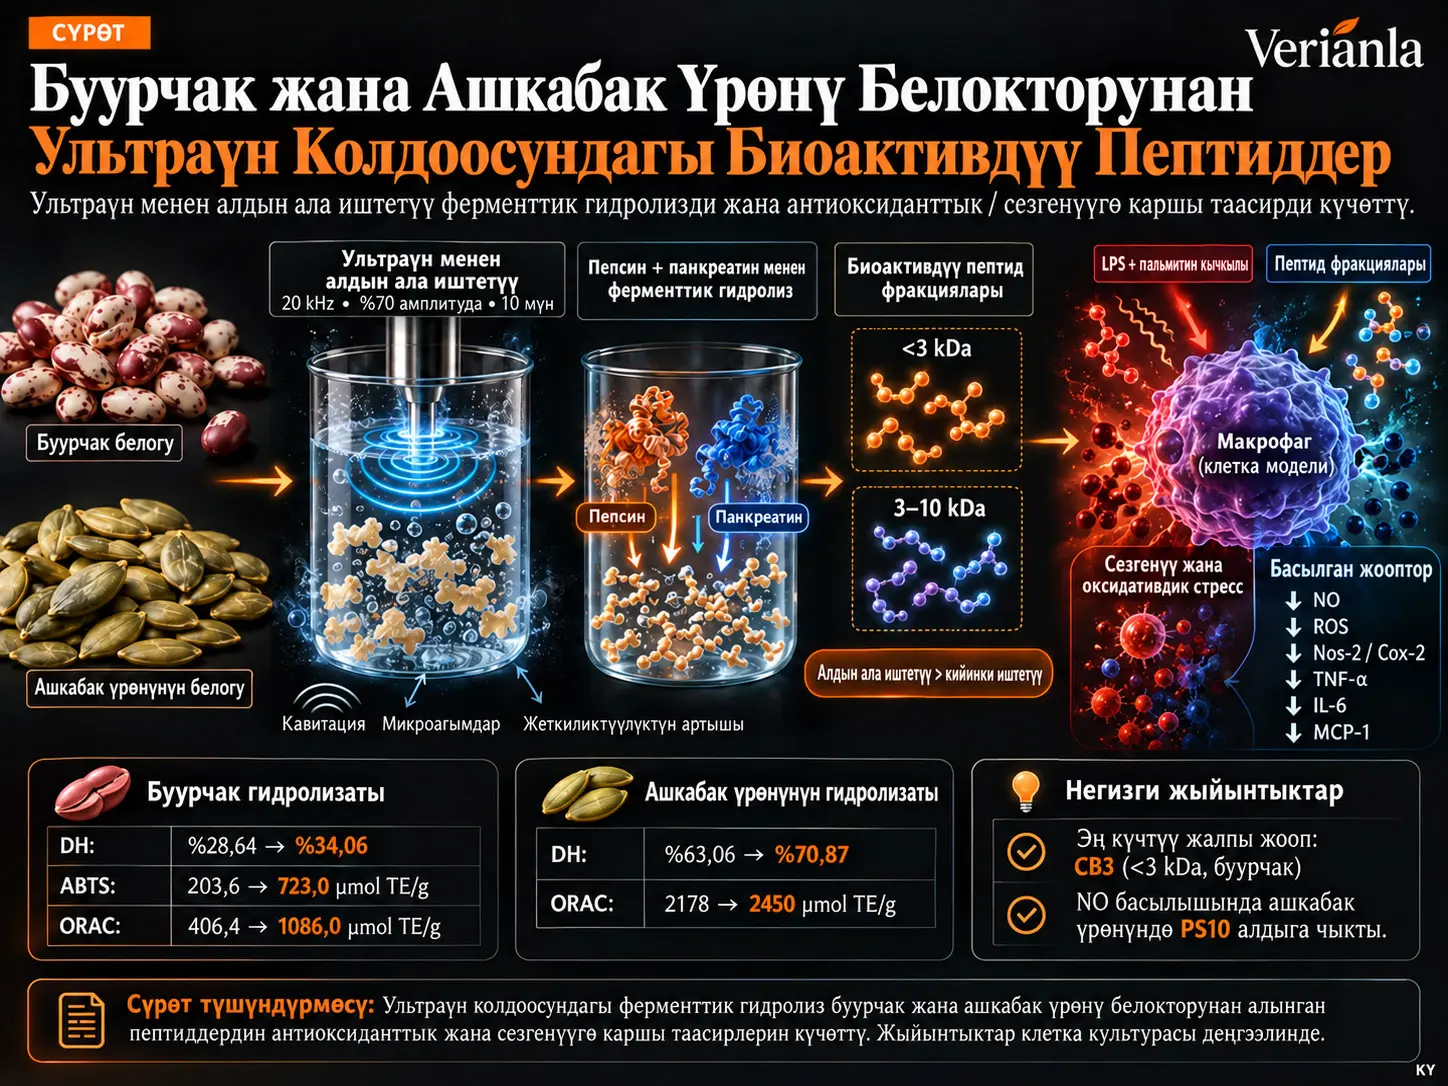
Ультраүн менен колдоого алынган ферменттик белок гидролизаты — өсүмдүк белокторунун ферменттер аркылуу майда пептиддерге ажырашы ультраүн кавитациясы менен колдоого алынган пептиддер аралашмасы. Бул in vitro изилдөө буурчак жана ашкабак үрөнүнүн белокторуна ультраүндү ферменттик гидролизге чейин же андан кийин колдонуу гидролиз даражасын жана антиоксиданттык сыйымдуулукту кандай өзгөртөрүн; алынган пептид фракциялары LPS жана пальмитин кычкылы менен стимулданган RAW264.7 макрофагдарында сезгенүү жана оксидативдик жоопту азайтабы же жокпу, ошону изилдеген.
Ультраүн менен алдын ала иштетүү эки өсүмдүк белогу булагында тең гидролиз даражасы эң жогору болгон иштетүү болгон. Буурчак гидролизатында гидролиз даражасы контроль тобунда %28,64 болсо, алдын ала ультраүн тобунда %34,06 га; ашкабак үрөнүндө %63,06 дан %70,87 ге жогорулаган. Буурчак гидролизатында ABTS жана ORAC антиоксиданттык сыйымдуулугу да алдын ала иштетүү менен айкын көбөйгөн. Ашкабак үрөнүндө эң жогорку ORAC алдын ала ультраүн тобунда байкалса, ABTS боюнча алдын ала жана кийинки ультраүн топтору статистикалык жактан бири-биринен айырмаланган эмес.
Ультраүн менен алдын ала иштетилип алынган гидролизаттар 3–10 kDa жана <3 kDa болуп эки молекулалык масса фракциясына бөлүнгөн. RAW264.7 клеткаларында бардык фракциялар 32,5–500 µg/mL аралыгында %95 тен жогору клетка жашоого жөндөмдүүлүгүн көрсөтүп, LPS + пальмитин кычкылынан келип чыккан NO өндүрүшүн дозага көз каранды түрдө баскан. Кийинки тажрыйбаларда 250 µg/mL концентрациясы колдонулган.
Пептиддерди сезгенүү стимулуна чейин, ошол эле учурда же башталгандан кийин колдонуу салыштырылган тажрыйбаларда бардык фракциялар оң контролго салыштырмалуу NO жана ROS өндүрүшүн азайткан. Жалпысынан эң күчтүү сезгенүүгө каршы жооп бир убакта колдонууда байкалган жана буурчактын <3 kDa фракциясы болгон CB3 көптөгөн жыйынтык көрсөткүчтөрдө өзгөчөлөнгөн. CB3 Nos-2 жана Cox-2 mRNA деңгээлдерин %70 тен ашык азайтып, TNF-α өндүрүшүндө болжол менен %75 төмөндөө көрсөткөн жана IL-6 менен MCP-1 ге да эң күчтүү таасирлердин бирин жараткан.
Бирок изилдөө NF-κB/MAPK же NRF2 жолдорун түздөн-түз өлчөгөн эмес. Бул жолдордун катышуусу NO, ROS, Nos-2/Cox-2 жана цитокиндердеги өзгөрүүлөрдөн жана мурунку адабияттан чыгарылат. Активдүү пептид ырааттуулуктары да LC-MS/MS менен аныкталган эмес. Ошондуктан жыйынтыктар азык-түлүктөн чыккан пептиддердин потенциалдуу сезгенүүгө каршы биологиялык активдүүлүгү боюнча лабораториялык далил болуп саналат; адамдар ооз аркылуу кабыл алгандан кийин да ошол эле натыйжалуулук жарарын көрсөтпөйт.
Изилдөөнүн негизги көйгөйү
Семирүү менен байланышкан өнөкөт төмөн деңгээлдеги сезгенүү — липополисахариддер жана каныккан май кислоталары сыяктуу стимулдар иммундук клеткалардагы сезгенүү сигнал жолдорун дайыма активдүү кармап турушу мүмкүн болгон татаал биологиялык абал. Макрофагдарда бул жооп NO, ROS, сезгенүүгө байланыштуу ферменттер жана цитокиндердин жогорулашы менен коштолушу мүмкүн.
Өсүмдүк белокторунун ферменттик гидролизи учурунда бөлүнүп чыккан кыска пептиддердин айрымдары антиоксиданттык же сезгенүүгө каршы биологиялык активдүүлүк көрсөтүшү мүмкүн. Бирок гидролиздин натыйжалуулугу белок түзүлүшүнүн фермент үчүн канчалык ачык экенине, белок агрегациясына жана фермент–субстрат байланышынын жетиштүүлүгүнө жараша болот.
Бул изилдөөнүн негизги технологиялык суроосу — ультраүн кавитациясы белок түзүлүшүн гидролизге чейин ачып, ферменттердин субстратка жетүүсүн көбөйтөбү же жокпу. Экинчи суроо — пайда болгон пептиддер химиялык антиоксидант тесттеринде гана эмес, сезгенүү макрофаг моделинде да биологиялык жооп жаратабы же жокпу.
Ультраүн эмнеге ферменттик гидролизге жардам бере алат?
Ультраүн колдонулганда суюктук чөйрөдө чоңоюп, андан кийин кыйрап түшүүчү кавитация көбүкчөлөрү пайда болушу мүмкүн. Булак бул микрочөйрөлөр белок–белок өз ара аракеттенүүлөрүн бузуп, белоктордун экинчилик жана үчүнчүлүк түзүлүшүн ачып, агрегаттарды таратып жана фермент жетчү беттик аянтты көбөйтө аларын түшүндүрөт.
Бул физикалык өзгөрүүлөр жаңы протеаза ферментин жаратпайт. Негизги таасир — бар болгон белок субстратын пепсин жана панкреатин сыяктуу ферменттер үчүн жеткиликтүүрөөк кылуу.
Ультраүндү Ферменттик Гидролизге Чейин Колдонуу Эмне Үчүн Натыйжалуураак Болду?
Булактын жыйынтыктарына ылайык, алдын ала ультраүн али ажырабаган белок түзүлүшүн жана агрегаттарды ферменттер менен байланышуудан мурда өзгөрткөндүктөн фермент–субстрат жеткиликтүүлүгүн көбөйткөн; кийинки ультраүн болсо ферменттик кесүүлөрдүн көбү бүткөндөн кийин колдонулгандыктан, гидролиз даражасына кошумча салымы чектелүү калган.
Белок булактары
Изилдөөдө органикалык Bayo сортундагы буурчак жана ашкабак үрөнү колдонулган. Материалдар Мексиканын Tlaxcala аймагындагы жергиликтүү өндүрүүчүлөрдөн алынган.
Буурчак жана ашкабак үрөнү майдаланып, 0,18 mm электен өткөрүлгөн. Ашкабак үрөнүнүн уну липиддерди алып салуу үчүн 1:20 салмак/көлөм катышында гексан менен 60 °Cде 1 саат иштетилген.
Белок экстракциясында ундар сууда 1:10 салмак/көлөм катышында суспензияланган. Буурчак үчүн pH 8, ашкабак үрөнү үчүн pH 11 ге жөндөлүп; суспензиялар 25 °Cде 1 саат аралаштырылган. Биринчи центрифугалоо 5000×gде 15 мүнөт жүргүзүлүп, супернатант pH 4,5 ке келтирилгенден кийин 10.000×gде 15 мүнөт кайра центрифугаланган. Белок чөкмөлөрү −50 °C жана 0,1 mBar шартында 48 саат лиофилизацияланган.
Ашказан-ичеги ферменттик гидролизи
Буурчак жана ашкабак үрөнүнүн белок концентраттары сууда 1:20 салмак/көлөм катышында таратылып, pH 1 M HCl менен 2 ге жөндөлгөн.
Пепсин фермент:субстрат катышы 1:20 салмак/салмак болчудай кошулуп, 37 °Cде 2 саат инкубацияланган. Андан кийин pH 7,5 ке көтөрүлүп пепсин таасирсиздендирилген, чочкодон алынган панкреатин кайрадан 1:20 фермент:субстрат катышында кошулуп, дагы 2 саат инкубация жүргүзүлгөн.
Сиңирүү 75 °Cде 20 мүнөт ысытуу менен токтотулуп, үлгүлөр 16.000×gде 10 мүнөт центрифугаланып, алынган супернатанттар лиофилизацияланган.
Ультраүн шарттары
| Параметр | Шарт |
|---|---|
| Түзмөк | Branson 450S-Digital Sonifier |
| Зонд | 1/2 дюйм disruptor horn |
| Жыштык | 20 kHz |
| Амплитуда | %70 |
| Жалпы колдонуу | 10 мүнөт |
| Pulse режими | 25 секунд күйүк / 25 секунд өчүк |
| Температура көзөмөлү | Муз ваннасы |
| Чөйрө | Аба менен каныккан |
Алдын ала иштетүүдө ультраүн пепсин жана панкреатин кошулганга чейин табигый белок концентратына колдонулган. Кийинки иштетүүдө болсо ультраүн пепсин–панкреатин сиңирүүсү бүткөндөн кийин алынган гидролизатка колдонулган.
Буурчак жана ашкабак үрөнү бирдей гидролизденген жок
SDS-PAGE жыйынтыктарында буурчак белогундагы болжол менен 35–48 kDa фазеолин суббирдиктери гидролизден кийин да айкын сакталган. Булак фазеолин буурчактын жалпы белокторунун маанилүү бөлүгүн түзөрүн жана ашказан-ичеги сиңирүүсүнө туруктуу экенин белгилейт.
Ал эми ашкабак үрөнү белокторунун негизги 11S глобулин жана 2S альбумин тилкелери сиңирүүдөн кийин негизинен жоголгон. Ашкабак үрөнү гидролизатынын буурчакка салыштырмалуу кыйла жогорку гидролиз даражасын көрсөтүшү ушул белок түзүлүшүнүн айырмасына шайкеш келет.
Tricine-SDS-PAGE эки булакта тең 10 kDaдан төмөн пептиддер пайда болгонун көрсөттү.
| Булак | Метрика | Ультраүнсүз контроль | Алдын ала ультраүн | Кийинки ультраүн |
|---|---|---|---|---|
| Буурчак | DH (%) | 28,64 ± 1,78 | 34,06 ± 0,68 | 30,13 ± 0,93 |
| Буурчак | ABTS (µmol TE/g) | 203,60 ± 4,69 | 723,00 ± 9,91 | 615,90 ± 7,24 |
| Буурчак | ORAC (µmol TE/g) | 406,40 ± 11,50 | 1086,00 ± 50,82 | 756,20 ± 42,22 |
| Ашкабак үрөнү | DH (%) | 63,06 ± 1,39 | 70,87 ± 2,13 | 64,58 ± 1,81 |
| Ашкабак үрөнү | ABTS (µmol TE/g) | 515,80 ± 3,72 | 561,60 ± 10,24 | 554,60 ± 4,77 |
| Ашкабак үрөнү | ORAC (µmol TE/g) | 2178,00 ± 43,96 | 2450,00 ± 61,46 | 2219,00 ± 70,91 |
ABTS жана ORAC бир эле нерсени өлчөйбү?
Жок. Булак антиоксиданттык сыйымдуулукту эки башка химиялык принцип менен баалаган. ABTS тести негизинен электрон өткөрүүгө негизделген антиоксиданттык сыйымдуулукту, ORAC болсо суутек атомун өткөрүү менен байланышкан радикалды кармоо сыйымдуулугун билдирет.
Эки тестти чогуу колдонуу пептид аралашмасынын антиоксиданттык касиетин бир эле реакция түрү менен баалабоого мүмкүндүк берет. Бирок ABTS же ORAC маанисинин жогору болушу адам организминде ушундай көлөмдөгү клиникалык антиоксиданттык таасир сөзсүз жарарын көрсөтпөйт.
Пептид фракциялары кантип түзүлдү?
Клеткалык тажрыйбалар үчүн ультраүн менен алдын ала иштетилген буурчак жана ашкабак үрөнүнүн гидролизаттары ультрафильтрация аркылуу молекулалык массалары боюнча бөлүнгөн:
- CB10: буурчак 3–10 kDa фракциясы
- CB3: буурчак <3 kDa фракциясы
- PS10: ашкабак үрөнү 3–10 kDa фракциясы
- PS3: ашкабак үрөнү <3 kDa фракциясы
Кичине Пептиддер Ар Дайым Күчтүүрөөк Сезгенүүгө Каршы Таасир Көрсөттүбү?
Жок. Буурчакта <3 kDa CB3 фракциясы көптөгөн клеткалык жыйынтык көрсөткүчтөрдө эң күчтүү фракция болсо, ашкабак үрөнүндө NO басылышы боюнча 3–10 kDa PS10 фракциясы PS3 төн күчтүүрөөк болгон; бул жыйынтык биологиялык натыйжалуулук молекулалык массага гана эмес, пептид ырааттуулугуна, аминокислоталык курамга жана структуралык өзгөчөлүктөргө да көз каранды экенин көрсөтөт.
RAW264.7 макрофаг модели
RAW264.7 чычкан макрофаг клеткалары DMEM/F12 чөйрөсүндө %10 FBS жана %1 пенициллин–стрептомицин менен, 37 °C, %5 CO2 жана %95 нымдуу аба шартында өстүрүлгөн. Бардык клеткалык тажрыйбаларда passage 10 колдонулган.
Сезгенүү моделинде клеткалар 100 ng/mL LPS жана 100 µM пальмитин кычкылы менен стимулданган. Бул эки стимулду бирге колдонуу семирүү менен байланышкан эндотоксин жана каныккан май кислотасы стрессин макрофаг деңгээлинде окшоштурууну көздөйт.
Алгачкы доза скрининги
Гидролизат фракциялары 32,5–500 µg/mL аралыгында сыналган. Бардык фракцияларда клетка жашоого жөндөмдүүлүгү %95 тен жогору сакталган.
LPS + пальмитин кычкылы оң контролу NO өндүрүшүн терс контролго салыштырмалуу болжол менен төрт эсе көбөйткөн. Төрт пептид фракциясынын баары NO өндүрүшүн доза көбөйгөн сайын азайткан.
CB10, CB3 жана PS10 үчүн 250 µg/mLден 500 µg/mLге көтөрүлгөндө кошумча олуттуу азайуу болбогондуктан негизги убакыттык тажрыйбаларда 250 µg/mL колдонулган.
Pre-, co- жана post-treatment эмнени билдирет?
| Тартип | Иштетүү ирети | Булак көздөгөн биологиялык контекст |
|---|---|---|
| Pre-treatment | Алгач пептид фракциясы; 4 сааттан кийин LPS + PA; андан соң 20 саат | Сезгенүү стимулуна чейинки коргоочу таасир |
| Co-treatment | Пептид фракциясы менен LPS + PA бир убакта; 24 саат | Курч сезгенүү жообунун башталышына кийлигишүү |
| Post-treatment | Алгач LPS + PA; 4 сааттан кийин пептид фракциясы; андан соң 20 саат | Башталган сезгенүү жообуна таасир |
NO жыйынтыктары
Үч убакыттык тартипте тең пептид фракциялары LPS + PA оң контролуна салыштырмалуу NO өндүрүшүн олуттуу азайткан.
Pre-treatment тартибинде CB3 жана PS10 эң күчтүү NO басылышын көрсөткөн. Бул табылга буурчак жана ашкабак үрөнү үчүн бирдей молекулалык масса фракциясы эң мыкты болбогонун көрсөтөт.
Co-treatment учурунда бардык фракциялар күчтүү басылыш көрсөткөн жана CB3 эң ачык жоопту жараткан.
Post-treatment тартибинде PS3 төн башка фракциялар NO деңгээлин терс контроль деңгээлине чейин түшүргөн. Бул жыйынтык пептиддер сезгенүү стимулуна чейин гана эмес, жооп башталгандан кийин да in vitro натыйжалуу болушу мүмкүн экенин көрсөтөт.
ROS жыйынтыктары
DCFH-DA флуоресценциясы клетка ичиндеги оксидант жүгү үчүн колдонулган кыйыр көрсөткүч. LPS + PA бардык убакыттык тартиптерде ROS сигналын көбөйткөн.
Бардык пептид фракциялары оң контролго салыштырмалуу ROS өндүрүшүн олуттуу баскан. Pre-treatment учурунда фракциялардын ROSко таасиринин ортосунда айкын айырма байкалган эмес.
Co-treatment учурунда CB3 ROSту эң күчтүү баскан фракциялардын бири болгон. Булак ошондой эле CB3 жана PS3 сыяктуу кичирээк пептид фракциялары клетка ичиндеги ROSту басууда чоңураак фракциялардан күчтүү болушу мүмкүн экенин талкуулайт.
Post-treatment учурунда төрт фракция тең ROS деңгээлин оң контролдон жана булактын баяны боюнча терс контролдон төмөн түшүргөн.
NO менен ROS бир эле биологиялык жыйынтык эмес
NO бул моделде NOS-2 активдүүлүгү менен байланышкан сезгенүүчү азот түрлөрүнүн өндүрүлүшүн; DCFH-DA флуоресценциясы болсо клетка ичиндеги оксидативдик жүккө байланышкан сигналды билдирет. Бир пептид фракциясы NOго күчтүү таасир көрсөтсө, ROSко да так ошол эле иретте натыйжалуу болушу керек дегенди билдирбейт.
Чынында, ашкабак үрөнүнүн PS10 фракциясы NO басылышында өзгөчөлөнгөнүнө карабастан, кичирээк PS3 фракциясынын айрым ROS салыштырууларында күчтүү болушу пептид өлчөмүнө жараша механизм айырмаланышы мүмкүн экенин көрсөтөт.
Nos-2 жана Cox-2 эмне үчүн өлчөндү?
Nos-2 индуциялануучу азот оксиди синтазасын коддойт жана сезгенүү шарттарындагы жогорку NO өндүрүшүнүн негизги булактарынын бири. Cox-2 болсо сезгенүүгө байланышкан простагландин синтезинде кызмат кылган индуциялануучу циклооксигеназаны коддойт.
LPS + PA стимуляциясы Nos-2 mRNAсын стимулданбаган клеткаларга салыштырмалуу 10,5 эсе, Cox-2 mRNAсын болжол менен 7 эсе көбөйткөн.
CB3 бул эки гендин экспрессиясын %70 тен ашык азайткан. CB10, PS10 жана PS3 да эки генди %35 тен ашык баскан.
Бул жыйынтык NO азайышы химиялык NO тазалоо менен гана түшүндүрүлбөй турганын жана сезгенүү ферменттеринин транскрипция деңгээлинде да өзгөрүү болгонун көрсөтөт.
NF-κB/MAPK жана NRF2 Жолдору Бул Изилдөөдө Түз Далилдендиби?
Жок. Nos-2, Cox-2, NO, ROS жана цитокиндердеги өзгөрүүлөр NF-κB/MAPK басылышы жана NRF2 менен байланышкан антиоксиданттык жоопко шайкеш келет, бирок изилдөө фосфорланган жол белокторун, NF-κB reporter активдүүлүгүн же NRF2 ядролук транслокациясын түз өлчөбөгөндүктөн, бул механизмдер ырасталган молекулалык жол эмес, колдоого алынган гипотеза катары бааланууга тийиш.
TNF-α
TNF-α өнөкөт сезгенүү учурунда көптөгөн метаболизмдик жана иммундук жоопторго таасир этүүчү сезгенүүгө байланышкан цитокин. Бардык пептид фракциялары LPS + PA оң контролуна салыштырмалуу TNF-α өндүрүшүн олуттуу азайткан.
Эң күчтүү жыйынтык CB3 фракциясында байкалып, булак болжол менен %75 азайуу билдирген.
IL-6
IL-6 контекстке жараша сезгенүүгө түрткү берүүчү да, жөнгө салуучу да функция аткара алган плейотроптук цитокин. Бул клетка моделинде LPS + PA менен күчтүү жогорулаган.
Төрт гидролизат фракциясынын баары IL-6 деңгээлин беш эседен ашык азайткан, эң күчтүү жооп кайрадан CB3 тө байкалган.
MCP-1
Monocyte Chemoattractant Protein-1 (MCP-1) моноциттердин сезгенүү аймактарына көчүшүн багыттаган хемокин. Өнөкөт метаболизмдик сезгенүүдө ашыкча MCP-1 өндүрүшү ткандарга иммундук клеткалардын инфильтрациясын уланта алат.
Бардык фракциялар MCP-1 өндүрүшүн азайткан; CB3 болжол менен эки эсе төмөндөөнү көрсөткөн.
Үч цитокиндин чогуу азайышы эмнени билдирет?
TNF-α, IL-6 жана MCP-1 дин бир эле тажрыйба тартибинде бир убакта азайышы бир гана цитокинди түз нейтралдаштырууга караганда кеңири транскрипциялык сезгенүү жообунун басылышына шайкеш келет.
Авторлор бул көрүнүштү NF-κB огунун мүмкүн болгон катышуусу менен түшүндүрүшкөн. Бирок жол деңгээлиндеги себептик байланыш экспериментте түз көрсөтүлгөн эмес.
Активдүү пептиддердин ким экени белгилүүбү?
Жок. Ультрафильтрация молекулалык масса диапазондорун гана бөлгөн. CB3 түн <3 kDa болушу анын ичиндеги кайсы так пептид ырааттуулугу активдүүлүк үчүн жооптуу экенин билдирбейт.
Пептиддердин аминокислота ырааттуулуктары, электрдик заряддары, N- жана C-терминалдык өзгөчөлүктөрү же TLR4 кө түз байланышуу аффинитеттери бул изилдөөдө өлчөнгөн эмес.
Булак келечекте LC-MS/MS пептид секвенирлөөсүн, молекулалык docking жана эксперименттик жол ырастоосун сунуштайт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Эксперименттик иштетүү чынжыры
- Буурчак жана ашкабак үрөнү материалын майдалоо жана белок концентратын даярдоо.
- Ашкабак үрөнүнүн унун гексан менен майсыздандыруу.
- Белокторду щелочтуу чөйрөдө экстракциялоо жана pH 4,5 те чөктүрүү.
- Белок концентраттарын лиофилизациялоо.
- Ультраүн менен алдын ала иштетүү тобунда белокко 20 kHz, %70 амплитуда, 10 мүнөт ультраүн колдонуу.
- Пепсин менен 2 саат жана панкреатин менен 2 саат in vitro ашказан-ичеги гидролизи.
- Кийинки ультраүн тобунда ферменттик гидролиз бүткөндөн кийин ошол эле ультраүн шартын колдонуу.
- Гидролиз даражасын OPA ыкмасы менен аныктоо.
- SDS-PAGE жана Tricine-SDS-PAGE менен белок/пептид профилдерин баалоо.
- ABTS жана ORAC менен химиялык антиоксиданттык сыйымдуулукту өлчөө.
- Эң натыйжалуу алдын-ала ультраүн гидролизаттарын 3–10 kDa жана <3 kDa фракцияларына бөлүү.
- RAW264.7 макрофагдарында жашоого жөндөмдүүлүк жана NO доза скрининги.
- 250 µg/mL менен pre-, co- жана post-treatment тажрыйбалары.
- NO, ROS, Nos-2, Cox-2, TNF-α, IL-6 жана MCP-1 өлчөөлөрү.
Гидролиз даражасы кантип өлчөндү?
Гидролиз даражасы Nielsen жана кесиптештеринин o-phthaldialdehyde (OPA) ыкмасы менен аныкталган. DH белок чынжырларындагы пептид байланыштарынын ферменттик ажыроо даражасын билдирет.
Жогорураак DH адатта көбүрөөк пептид байланышы үзүлүп, кичине пептиддер пайда болгонун көрсөтөт; бирок жогорку DH ар бир биологиялык активдүүлүктө автоматтык түрдө жогорку натыйжалуулукту билдирбейт, муну ашкабак үрөнүнүн фракция жыйынтыктары ачык көрсөтөт.
ABTS жана ORAC өлчөөсү
ABTS жана ORAC үчүн Trolox стандарттык ийри сызыктары даярдалып, R2 маанилери 0,98 ден жогору сакталган.
ABTS стандарттык диапазону 25–200 µmol/L, ORAC диапазону 6,25–200 µmol/L. Жыйынтыктар µmol Trolox equivalents/g protein түрүндө берилген.
Клеткалык ROS анализи
ROS өндүрүшү 10 µM DCFH-DA колдонуу менен бааланган. Клеткалар зонд менен 37 °Cде 30 мүнөт инкубацияланган; флуоресценция 485 nm козголуу жана 530 nm эмиссия толкун узундуктарында Cytation 5 окугучу менен өлчөнгөн.
Жыйынтыктар терс контроль %100 деп кабыл алынып, салыштырмалуу ROS пайызы түрүндө берилген.
NO анализи
Клетка культурасынын супернатантындагы NO Griess Reagent System аркылуу кыйыр түрдө нитрит боюнча өлчөнгөн. 1,56–100 µM натрий нитрит стандарттык ийри сызыгы колдонулуп, жыйынтыктар µM нитрит түрүндө берилген.
qPCR
Co-treatment тажрыйбаларынан кийин total RNA бөлүнүп алынып, cDNAга айландырылган. Nos-2 жана Cox-2 гендери QuantStudio 3 түзмөгүндө qPCR менен өлчөнүп, Ppib эндогендик контроль катары колдонулган.
Салыштырмалуу mRNA экспрессиясы \(2^{-\Delta\Delta C_T}\) ыкмасы менен эсептелген.
Бул ыкма максаттуу гендин Ct маанисин адегенде эталон ген менен нормалдаштырып, андан соң эксперименттик топту эталон шарт менен салыштырып, салыштырмалуу экспрессия өзгөрүүсүн берет. Жыйынтык абсолюттук mRNA молекулаларынын саны эмес, эталонго салыштырмалуу эсе өзгөрүү болуп саналат.
Цитокин анализи
TNF-α, IL-6 жана MCP-1 клетка культурасынын супернатанттарында ELISA киттери менен өлчөнгөн. Бул тажрыйбалар co-treatment тартибинде гана жана 250 µg/mL пептид фракциясы колдонулуп жүргүзүлгөн.
Кайталоо түзүлүшү жана статистика
DH, ABTS жана ORAC анализдеринде үч көз карандысыз ферменттик гидролиз процедурасы биологиялык кайталоо катары колдонулуп, ар бир биологиялык кайталоо техникалык жактан үч жолу өлчөнгөн.
Клеткалык тажрыйбалар ар башка күндөрдө жүргүзүлгөн үч көз карандысыз RAW264.7 клетка культурасы менен биологиялык трипликат катары аткарылып; ар бир биологиялык кайталоодо ар бир шарт үчүн техникалык үчтүк уяча колдонулган.
Нормалдуу бөлүштүрүү Shapiro–Wilk тести, дисперсиянын бир тектүүлүгү Levene тести менен α=0,05 деңгээлинде бааланган. Булак бардык маалымат топтомдору бул параметрдик божомолдорго туура келгенин билдирет.
Топтор бир багыттуу ANOVA жана Tukey көп салыштыруу тести менен анализделип, p<0,05 маанилүү деп кабыл алынган. Анализдерде GraphPad Prism 10.6.1 жана Minitab 22.4.0.0 колдонулган.
Figure 1 дин илимий ролу
Figure 1 пептиддердин сезгенүү стимулуна карата убакытташтырылышын көрсөтөт. Pre-treatment модели пептиддин стимулга чейинки таасирин, co-treatment бир убакта башталган таасирин, post-treatment болсо сезгенүү жообу башталгандан кийинки таасирин изилдейт.
Булак сүрөтүндөгү көрүнгөн белгилерде 125 жана 250 µg/mL болгонуна карабастан, ыкма тексти негизги үч-убакытташтыруу тажрыйбалары бир концентрацияда, 250 µg/mLде жүргүзүлгөнүн жана Figure 4–7 түшүндүрмөлөрү да 250 µg/mL колдонулганын билдирет. Булак ичиндеги бул берүү айырмасы чечмелөөдө сакталууга тийиш.
Figure 2 нин илимий ролу
SDS-PAGE менен чоң белоктордун, Tricine-SDS-PAGE менен кичине пептиддердин бөлүштүрүлүшү көрүнөт. Буурчакта фазеолин тилкелеринин туруктуу калышы, ашкабак үрөнүндө болсо чоң сактоочу белок тилкелеринин күчтүүрөөк жоголушу эки чийки заттын сиңирилиш айырмасын түшүндүрөт.
Figure 2 түшүндүрмөсүндө PSP жана PSH “common bean protein” жана “common bean hydrolysate” деп ачылышы текст менен шайкеш эмес; эксперименттик контекст PSP/PSH ашкабак үрөнүнүн белогу/гидролизатын билдирерин көрсөтөт.
Figure 3 түн илимий ролу
Figure 3 төрт пептид фракциясынын 32,5–500 µg/mL аралыгындагы NO доза–жообун салыштырат. Буурчакта CB3, ашкабак үрөнүндө PS10 күчтүү профилдердин бирин көрсөтөт.
График ошондой эле 250 µg/mLдин кийинки тажрыйбалар үчүн тандалышынын эксперименттик негизин түзөт.
Figure 4 жана Figure 5 чогуу кантип окулушу керек?
Figure 4 NO, Figure 5 ROS жообун үч башка убакытташтырууда көрсөтөт. Эки жыйынтык тең жалпысынан пептид менен иштетүүдө азайганы менен, фракциялардын ирети бирдей эмес.
Ошондуктан сезгенүүгө каршы активдүүлүктү NO же ROS менен гана аныктоо толук эмес болмок. Булак бул эки өлчөөнү бири-бирин толуктоочу биологиялык жыйынтыктар катары колдонгон.
Figure 6 эмнени көрсөтөт?
Figure 6 co-treatment учурунда Nos-2 жана Cox-2 mRNA деңгээлдерин салыштырат. LPS + PA эки генди тең күчтүү жогорулатса, бардык пептид фракциялары экспрессияны азайткан.
CB3 эки генде тең %70 тен жогору басылыш көрсөткөн. Бул жыйынтык клеткалык NO өзгөрүүсү жок дегенде жарым-жартылай ген экспрессиясынын деңгээлиндеги өзгөрүү менен бирге жүргөнүн колдойт.
Figure 7 эмнени көрсөтөт?
Figure 7 TNF-α, IL-6 жана MCP-1 белок деңгээлдерин ELISA менен салыштырат. Үч сезгенүүчү медиатордун тең бардык пептид фракцияларында азайышы кеңири сезгенүү жообунун басылышына шайкеш келет.
CB3 үч цитокинде тең эң туруктуу күчтүү профилди көрсөткөн.
Изилдөөнүн күчтүү жактары
- Ультраүндү алдын ала жана кийин колдонуу бир эле өсүмдүк белогу булактарында түз салыштырылган.
- Буурчак жана ашкабак үрөнүнүн ар башка белок түзүлүштөрү бир эле эксперименттик алкакта бааланган.
- Химиялык антиоксиданттык сыйымдуулук ABTS жана ORAC болуп эки башка принцип менен өлчөнгөн.
- Гидролизаттар молекулалык масса боюнча фракцияланып, биологиялык активдүүлүк фракция деңгээлинде изилденген.
- Клеткалык жооп NO менен гана эмес, ROS, mRNA жана үч башка цитокин менен чогуу бааланган.
- Пептиддердин сезгенүү стимулуна карата убакытташтырылышы үч өзүнчө моделде изилденген.
- Биологиялык кайталоолор көз карандысыз күндөрдө жүргүзүлүп, техникалык кайталоолор менен колдоого алынган.
Изилдөөнүн негизги чектөөлөрү
- Изилдөө in vitro клетка модели гана; адамдарда же жаныбарларда терапиялык натыйжалуулукту көрсөтпөйт.
- Активдүү пептиддердин аминокислота ырааттуулуктары LC-MS/MS менен аныкталган эмес.
- Пептиддердин электр заряды жана чыныгы түзүлүш–активдүүлүк байланышы аныкталган эмес.
- TLR4 кө түз байланышуу же LPS нейтралдаштыруу эксперименттик түрдө өлчөнгөн эмес.
- NF-κB/MAPK фосфорланышы Western blot менен ырасталган эмес.
- NF-κB reporter assay жүргүзүлгөн эмес.
- NRF2 ядролук транслокациясы түз бааланган эмес.
- 250 µg/mL in vitro концентрациясына кадимки тамактануу аркылуу ичегиде же кан айланууда жетүүгө болобу, белгисиз.
- Пептиддердин ашказан-ичеги туруктуулугу жана ичеги өткөрүмдүүлүгү бааланган эмес.
- Плазма туруктуулугу жана фармакокинетикалык маалымат жок.
- Өнөр жай масштабына чоңойтуу жана экономикалык ишке ашыруу сыналган эмес.
- Ультраүн жыштыгынын, амплитудасынын жана узактыгынын кеңири оптималдаштыруу картасы түзүлгөн эмес.
Изилдөө колдогон жыйынтыктар
Ультраүндү ферменттик гидролизге чейин колдонуу колдонулган эксперименттик шарттарда буурчак жана ашкабак үрөнүнүн белокторунун гидролиз даражасын жогорулаткан.
Ультраүндү алдын ала жана кийин колдонуу гидролизаттардын ABTS жана ORAC менен өлчөнгөн антиоксиданттык сыйымдуулугун жалпысынан жогорулаткан; алдын ала колдонуу өзгөчө буурчак жана ашкабак үрөнүнүн ORAC жыйынтыктарында күчтүүрөөк болгон.
Ультраүн менен алдын ала иштетүүдөн алынган пептид фракциялары RAW264.7 клеткаларында LPS + пальмитин кычкылынан келип чыккан NO жана ROS өндүрүшүн азайткан.
Пептид фракциялары Nos-2 жана Cox-2 mRNAсын жана TNF-α, IL-6 жана MCP-1 өндүрүшүн азайткан.
CB3 фракциясы клеткалык сезгенүүгө каршы жыйынтыктардын көбүндө эң күчтүү жана туруктуу фракциялардын бири болгон.
Пептид өлчөмү менен биологиялык активдүүлүктүн ортосундагы байланыш белок булагына жана өлчөнгөн жыйынтыкка көз каранды.
Изилдөө колдобогон жыйынтыктар
Изилдөө буурчак же ашкабак үрөнүнүн пептиддери адамдарда семирүүнү, диабетти же майлуу боор оорусун дарылай турганын көрсөтпөйт.
250 µg/mL клетка культурасы концентрациясына кадимки тамактануу менен адам ткандарында жетүүгө болору көрсөтүлгөн эмес.
CB3 же башка фракциялардын NF-κB, MAPK, NRF2 же TLR4 менен түз молекулалык өз ара аракеттенүүсү далилденген эмес.
Кайсы так пептид ырааттуулуктары антиоксиданттык же сезгенүүгө каршы активдүүлүк үчүн жооптуу экени белгисиз.
Кичирээк молекулалык масса ар бир учурда жогорку биологиялык активдүүлүктү камсыздай турганы көрсөтүлгөн эмес.
Ультраүн менен алдын ала иштетүү өнөр жай масштабында экономикалык же техникалык жактан эң мыкты процесс экени көрсөтүлгөн эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түп нуска изилдөө: Ultrasound-Assisted Enzymatic Hydrolysates from Common Bean and Pumpkin Seed Proteins: Antioxidant and Anti-Inflammatory Properties
Авторлор: Erick Huerta-Rodriguez; Omar Sanchez-Jimenez; Cristina Chuck-Hernández; Margarita L. Martinez-Fierro; Idalia Garza-Veloz; Diana L. Cárdenas-Chávez; Cesar A. Ponce-Ponce de Leon; Maria del Refugio Rocha-Pizaña.
Жооптуу автор: Maria del Refugio Rocha-Pizaña.
Мекемелер: Escuela de Ingenieria y Ciencias, Tecnologico de Monterrey, Monterrey, Mexico; Molecular Medicine Laboratory, Unidad Academica de Medicina Humana y C.S, Universidad Autonoma de Zacatecas, Zacatecas, Mexico.
Журнал: Antioxidants.
Басмакана: MDPI, Basel, Switzerland.
Жарыя маалыматы: 2026; том 15; сан 5; макала 578. Жарыяланган күнү: 3 Mayıs 2026.
DOI: 10.3390/antiox15050578
Булак түрү: Рецензияланган, ачык жеткиликтүү түп нуска эксперименттик изилдөө макаласы; азык-түлүк белогу технологиясы жана in vitro макрофаг модели.
Лицензия: Creative Commons Attribution (CC BY).
Өсүмдүк материалы: Органикалык Bayo буурчагы жана ашкабак үрөнү; Tlaxcala, Mexico.
Белок гидролизи: Пепсин жана панкреатин; ар бир этапта фермент:субстрат 1:20 салмак/салмак; пепсин pH 2 жана 37 °Cде 2 саат; андан соң pH 7,5 жана панкреатин менен 2 саат; 75 °Cде 20 мүнөт фермент инактивациясы.
Ультраүн: Branson 450S-Digital Sonifier; 20 kHz; %70 амплитуда; 10 мүнөт; 25 секунд күйүк/25 секунд өчүк; муз ваннасы.
Пептид фракциялары: Буурчак CB10 (3–10 kDa), CB3 (<3 kDa); ашкабак үрөнү PS10 (3–10 kDa), PS3 (<3 kDa).
Антиоксиданттык анализ: ABTS жана ORAC; жыйынтыктар µmol Trolox equivalents/g protein түрүндө берилген.
Клетка модели: RAW264.7 чычкан макрофагдары, passage 10.
Сезгенүү стимулу: LPS 100 ng/mL + пальмитин кычкылы 100 µM.
Негизги клеткалык пептид концентрациясы: 250 µg/mL.
Клеткалык жыйынтыктар: Клетканын жашоого жөндөмдүүлүгү, нитрит/NO, DCFH-DA ROS, Nos-2 жана Cox-2 mRNA, TNF-α, IL-6 жана MCP-1.
qPCR: \(2^{-\Delta\Delta C_T}\) ыкмасы; Ppib эндогендик контроль.
Статистика: Shapiro–Wilk нормалдуулук тести; Levene дисперсия бир тектүүлүк тести; бир багыттуу ANOVA жана Tukey post hoc; p<0,05.
Кайталоо түзүлүшү: Үч көз карандысыз биологиялык кайталоо; ар бир биологиялык кайталоодо техникалык трипликаттар.
Программалык камсыздоо: GraphPad Prism 10.6.1 жана Minitab 22.4.0.0.
Supplementary материал: Figure S1 төрт пептид фракциясынын RAW264.7 клетка жашоого жөндөмдүүлүгүнө таасирин көрсөтөт.
Каржылоо: Булактын Funding бөлүмү тышкы каржылоо алынбаганын билдирет.
Колдоо жана ыраазычылык: Tecnologico de Monterrey лабораториялык материал колдоосу; органикалык буурчак жана ашкабак үрөнүн берген жергиликтүү өндүрүүчүлөр/уюмдар; SECIHTI изилдөө стипендиясы No. 1049616.
Этика комитети: Колдонулбайт.
Маалымдалган макулдук: Колдонулбайт.
Маалымат жеткиликтүүлүгү: Түп нуска салымдар макалада жана кошумча материалда берилген; кошумча суроолор жооптуу авторго жөнөтүлүшү мүмкүн.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышын билдиришкен эмес.
Авторлордун салымдары: Концептуалдаштыруу Maria del Refugio Rocha-Pizaña, Cristina Chuck-Hernández, Margarita L. Martinez-Fierro жана Idalia Garza-Veloz; методология Erick Huerta-Rodriguez жана Maria del Refugio Rocha-Pizaña; валидация жана формалдуу анализ Erick Huerta-Rodriguez; изилдөө Erick Huerta-Rodriguez жана Omar Sanchez-Jimenez; алгачкы долбоор Erick Huerta-Rodriguez; көзөмөл, долбоорду башкаруу жана каржылоону алуу Maria del Refugio Rocha-Pizaña тарабынан жүргүзүлгөн.
Булак ичиндеги аталыш эскертүүсү: Ашкабак түрүнүн аталышы abstractта “Cucurbita argyoesperma”, кириш жана ыкмада “Cucurbita argyosperma” деп берилген. Verianla бул айырманы булак ичиндеги жазуу дал келбестиги катары сактайт.
Булак Figure 2 эскертүүсү: Figure 2 түшүндүрмөсүндө PSP жана PSH жаңылыш “common bean” деп ачылгандай көрүнөт; эксперименттик текст алардын ашкабак үрөнүнүн белогу жана гидролизаты экенин так көрсөтөт.
Figure 1 ыкма эскертүүсү: Сүрөттө 125 жана 250 µg/mL белгилери болгонуна карабастан, Бөлүм 2.8.3 жана Figure 4–7 негизги тажрыйбаларда 250 µg/mL колдонулганын билдирет. Verianla негизги клеткалык жыйынтыктарда 250 µg/mL маанисин негиз катары алат жана сүрөттөгү айырманы жашырбайт.
Негизги механисттик чектөө: NF-κB/MAPK жана NRF2 жолдорунун катышуусу төмөнкү агым жыйынтыктарынан чыгарылат; түз pathway активдештирүү тажрыйбалары жүргүзүлгөн эмес.
Пептид кимдиги чектөөсү: Фракциялар молекулалык масса боюнча гана аныкталган. Биоактивдүү ырааттуулуктар, аминокислота курамы жана рецепторго байланышуу механизмдери түз аныкталган эмес.
Трансляциялык чектөө: Ашказан-ичеги туруктуулугу, Caco-2 сыяктуу ичеги транспорту, плазма туруктуулугу, фармакокинетика жана ооз аркылуу алынган пептиддер 250 µg/mL эквиваленттүү ткандын таасирине жетеби же жокпу, текшерилген эмес.
Өнөр жай чектөөсү: Ультраүн менен алдын ала иштетүү лаборатория деңгээлинде артыкчылык көрсөткөн; жыштык, амплитуда, узактык жана масштабды чоңойтуунун экономикалык оптималдаштырылышы аяктаган эмес.
Verianla баяндоо ыкмасы: Бул мазмун abstract же conclusion бөлүмүнүн гана котормосу эмес. Белок экстракциясы, ашказан-ичеги гидролизи, ультраүндү алдын ала/кийин колдонуу, молекулалык масса боюнча фракциялоо, SDS-PAGE/Tricine-SDS-PAGE, DH, ABTS, ORAC, клетка жашоого жөндөмдүүлүгү, NO, ROS, үч убакыттык тартип, qPCR, цитокин ELISAсы, статистика жана механисттик чектөөлөр өзүнчө илимий катмарлар катары кайра түзүлгөн.
Ден соолукка байланыштуу чечмелөө чектөөсү: Жыйынтыктар лаборатория шартындагы өсүмдүк белогу гидролизаттарына тиешелүү жана буурчак же ашкабак үрөнүн керектөө адамдардагы белгилүү сезгенүү ооруларын дарылайт дегенди билдирбейт.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген