


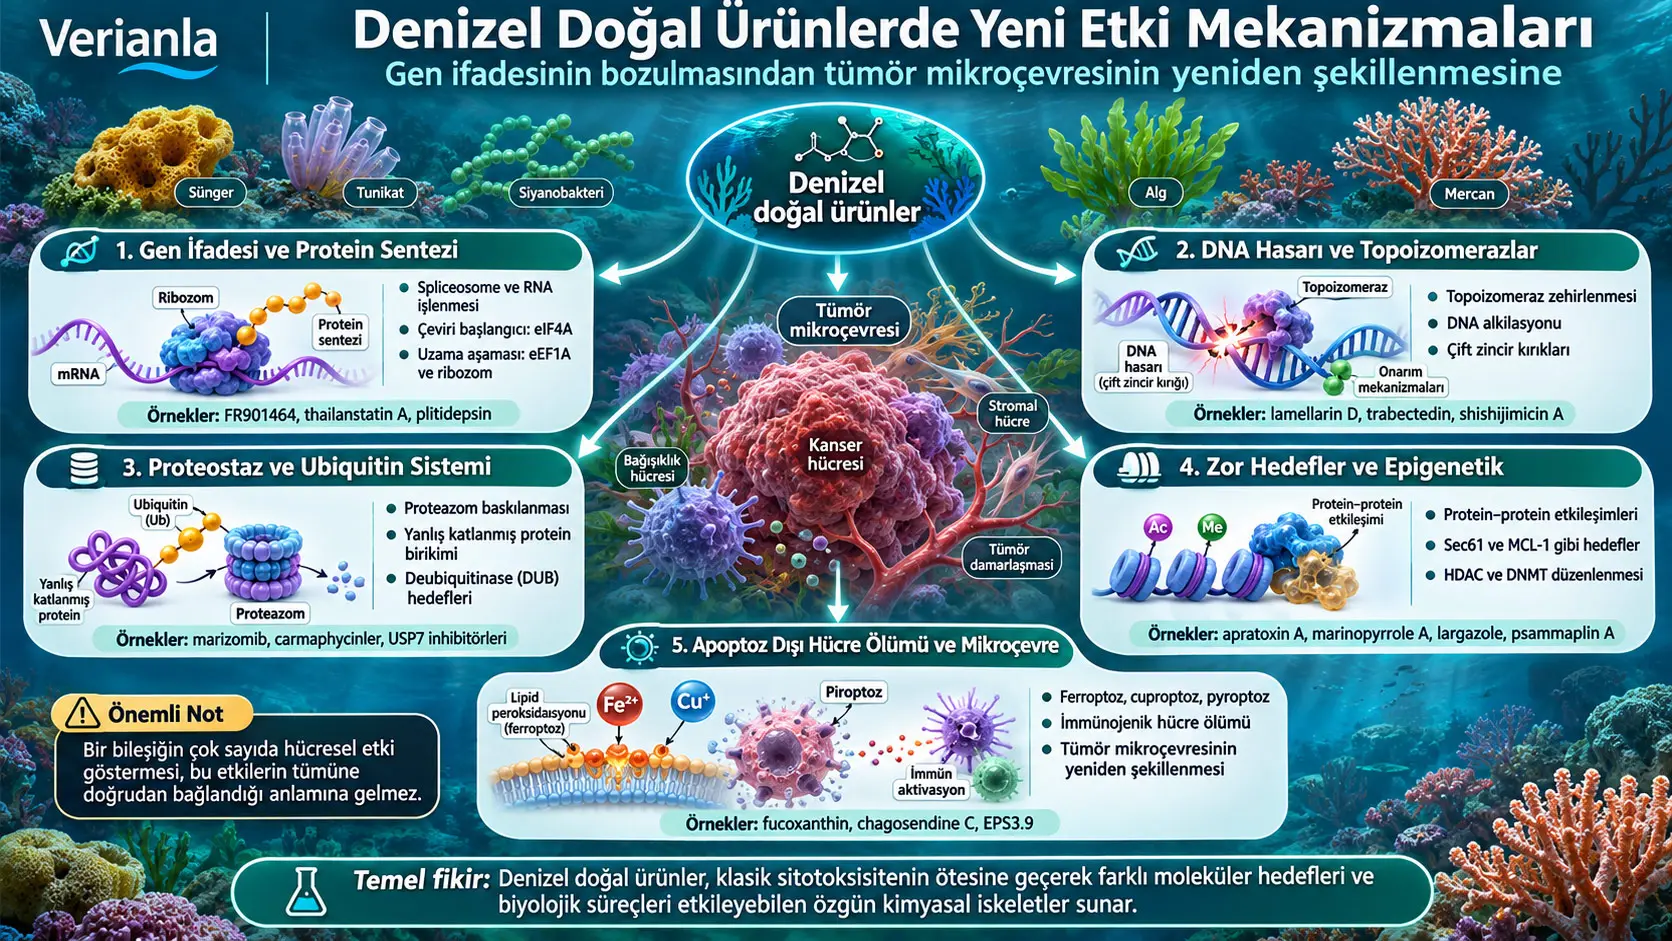
Denizel doğal ürünler (marine natural products, MNPs), denizel organizmalar veya deniz kökenli mikroorganizmalar tarafından üretilen ve biyolojik hedeflerle etkileşebilen yapısal olarak çeşitli doğal moleküllerdir. Bu derleme, MNP'leri yalnız “hangi kanser hücresini ne kadar öldürüyor?” sorusuyla değerlendirmek yerine, doğrudan moleküler hedefleri ve etki mekanizmaları (mechanisms of action, MoAs) üzerinden sınıflandırmaktadır. Makale spliceosome baskılanması, translasyonun başlatılması veya uzamasının engellenmesi, topoizomeraz zehirlenmesi, DNA alkilasyonu, proteazom ve deubiquitinase düzenlenmesi, zor ilaçlanabilir protein–protein etkileşimleri, epigenetik enzimler ve ferroptoz, cuproptoz veya pyroptoz gibi apoptoz dışı hücre ölümü yolları dahil çok farklı mekanizmaları bir araya getirmektedir. Çalışma yeni deney üretmemektedir; önceki moleküler, hücresel, hayvan ve klinik çalışmaları mekanizma-merkezli biçimde sentezleyen bir derlemedir.
Makalenin temel mesajlarından biri, denizel doğal ürünlerin değerinin yalnız yüksek sitotoksisitelerinden kaynaklanmadığıdır. Bazı bileşikler klasik küçük moleküllerin erişmekte zorlandığı protein–protein arayüzlerine, ribozomal komplekslere veya protein sentezi gibi çok bileşenli biyolojik makinelere bağlanabilir. Örneğin FR901464 ve thailanstatin A spliceosome oluşumunu; pateamine A ve hippuristanol eIF4A üzerinden translasyon başlangıcını; plitidepsin eEF1A2 üzerinden protein uzamasını; trabectedin DNA'nın küçük oluğundaki guanini alkilleyerek transkripsiyonla eşleşmiş DNA onarım mekanizmasını; marizomib proteazomu; largazole sınıf I HDAC'leri hedeflemektedir.
Derleme ayrıca “bir bileşik bir hücrede on farklı sinyal yolunu değiştirdi, öyleyse on proteine de doğrudan bağlanıyor” şeklindeki yanlış çıkarıma karşı açık bir sınır koymaktadır. Birincil bileşik–protein etkileşimi hücre içinde stres yanıtı, transkripsiyon değişiklikleri, protein yıkımı, sitokin salımı ve hücre ölümü gibi çok sayıda ikincil sonucu tetikleyebilir. Bu nedenle doğrudan bağlanma hedefi ile aşağı akış biyolojik sonuç ayrı tutulmalıdır.
Gen ifadesi düzeyinde FR901464 ve thailanstatin A, U2 snRNP içindeki SF3b alt kompleksinin branch-point sequence ile kararlı eşleşmesini engelleyerek spliceosome montajını bozmakta; intron retention ve exon skipping gibi yanlış RNA işlenmesine yol açmaktadır. Leucettamine B ise CLK/DYRK kinazlarını baskılayarak SR proteinlerinin fosforilasyonunu azaltmakta ve U2 snRNP'nin doğru yere alınmasını zorlaştırmaktadır.
Translasyon düzeyinde farklı MNP'ler aynı biyolojik sürecin farklı düğümlerine müdahale etmektedir. Pateamine A, eIF4A–RNA arayüzünü stabilize eden bir “molecular clamp” gibi davranırken hippuristanol eIF4A'nın karboksil-terminal bölgesine bağlanarak RNA bağlanmasını ve ATP-bağımlı RNA açma faaliyetini sınırlar. Plitidepsin eEF1A2'yi; psymberin ribozomun 60S alt birimi ve peptidyl transferase center'ı hedeflemektedir. Dolayısıyla “protein sentezi inhibitörü” etiketi altında birbirinden biyokimyasal olarak farklı çok sayıda mekanizma bulunmaktadır.
DNA'yı hedefleyen denizel ürünlerde de benzer çeşitlilik vardır. Lamellarin D ve bazı pyridoacridine alkaloidleri topoizomeraz–DNA cleavage komplekslerini stabilize ederek yeniden ligasyonu engelleyebilir. Trabectedin DNA'nın minor groove bölgesinde guaninin N2 konumunu alkiller ve oluşan adduct transkripsiyonla eşleşmiş nucleotide-excision-repair sistemiyle işlenirken ölümcül DNA kırıkları ortaya çıkabilir. Shishijimicin A ise Bergman cyclization sonrasında radikal üreterek DNA omurgasından hidrojen koparır ve doğrudan strand break oluşturabilir.
Proteostaz alanında marizomib, 20S proteazomun β5, β2 ve β1 katalitik faaliyetlerini baskılayan güçlü bir inhibitör olarak ele alınmıştır. Kaynak β5 için IC50=3,5±0,3 nM, β2 için 28±2 nM ve β1 için 430±34 nM değerlerini aktarmaktadır. Protein yıkımı engellendiğinde ubiquitinlenmiş veya yanlış katlanmış proteinler birikir, endoplazmik retikulum stresi artar ve hücre ölüm yolları tetiklenebilir. Buna karşılık Sulawesin A ve Spongiacidin C gibi bileşikler tüm proteazomu kapatmak yerine ubiquitin zincirlerini düzenleyen USP7 gibi deubiquitinase enzimlerini hedefleyerek daha seçici proteostaz müdahalesi örnekleri sunmaktadır.
Derleme klasik enzim aktif bölgelerine sahip olmayan veya geniş protein–protein temas yüzeyleri nedeniyle tarihsel olarak “undruggable” kabul edilen hedefleri de inceler. Siladenoserinol A ve hoiamide D p53–Hdm2/MDM2 etkileşimini; marinopyrrole A ve renieramycin T anti-apoptotik MCL-1'i; apratoxin A ve coibamide A ise Sec61 translocon sistemini hedeflemektedir. Benzosceptrin C'nin DHHC3 palmitoyl-transferazını baskılayarak PD-L1'in lizozomal yıkımını artırması, denizel doğal ürün mekanizmalarının tümör hücresinin kendi sinyallerinin ötesinde bağışıklık mikroçevresini de değiştirebileceğini gösteren örneklerden biridir.
Epigenetik alanda largazole'un aktif thiol metaboliti sınıf I HDAC1–3 enzimlerini güçlü biçimde baskılarken psammaplin A hem HDAC hem DNMT inhibisyonu göstermektedir. Kaynak largazole thiol için HDAC1–3 IC50 değerlerini 0,1–1,7 nM; psammaplin A için HDAC ve DNMT IC50 değerlerini sırasıyla 4,2 nM ve 18,6 nM olarak aktarmaktadır. Bu mekanizmalar DNA dizisini değiştirmeden kromatin erişilebilirliği ve gen ifadesini değiştirebilir.
Apoptoz dışı hücre ölümü bölümünde chagosendine C–FDX1 bağlantılı cuproptoz; fucoxanthin ile ilişkilendirilen ferroptoz; EPS3.9'un NLRP3–caspase-1–GSDMD ekseni üzerinden pyroptoz oluşturması; callyspongiolide'nin V-ATPase inhibisyonu sonrası lizozomal deasidifikasyon, demir azalması ve mitokondri işlev bozukluğu oluşturması gibi mekanizmalar tartışılmaktadır. Bu yollar, klasik BCL-2/BAX–caspase eksenine bağımlı olmayan kanser hücresi ölüm stratejilerinin araştırılmasına olanak vermektedir.
Derlemenin translasyonel sonucu ise güçlü biyolojik etkinliğin tek başına ilaç geliştirmeye yetmediğidir. Yazarlar üç temel darboğazı sürdürülebilir üretim, farmakokinetik uyumsuzluk ve moleküler hedefin geç tanımlanması olarak gruplandırmaktadır. Fermentasyon, heterolog biosynthetic gene cluster üretimi, chemoproteomics, cryo-EM, yapay zekâ destekli yapısal tahmin ve scaffold simplification yaklaşımları bu sorunları azaltabilecek araçlar olarak tartışılmaktadır.
En önemli yorum sınırı: Derlemede geçen bileşiklerin büyük bölümünün etkileri in vitro biyokimyasal deneyler, kanser hücre hatları, organoidler veya hayvan modellerinden gelir. Bazı denizel kökenli ilaç veya analoglar klinik kullanıma veya klinik araştırmalara ulaşmış olsa da, makalede adı geçen her bileşiğin insanlarda etkili veya güvenli bir tedavi olduğu anlamına gelmez. IC50, EC50 veya Kd değerinin çok düşük olması da tek başına klinik etkinlik, toksikolojik güvenlik, biyoyararlanım veya terapötik indeks garantisi değildir.
Denizel doğal ürün nedir?
Denizel doğal ürünler; süngerler, tunikatlar, mollusklar, mercanlar, algler, cyanobacteria, actinomycetes, funguslar ve diğer denizel organizmalardan veya deniz ortamıyla ilişkili mikroorganizmalardan elde edilen ikincil metabolitlerdir. Bu moleküller organizmanın yaşaması için zorunlu temel metabolizma ürünleri olmak zorunda değildir; rekabet, savunma, iletişim veya çevresel adaptasyon gibi biyolojik süreçlerde rol oynayabilirler.
Deniz ortamındaki yoğun ekolojik rekabet, yüksek basınç, değişken ışık, tuzluluk ve farklı simbiyotik ilişkiler çok çeşitli moleküler iskeletlerin evrimleşmesine katkıda bulunabilir. Derlemenin yaklaşımı, bu yapısal farklılığı yalnız “ilginç kimya” olarak değil, alışılmadık biyolojik hedeflere erişme kapasitesinin kaynaklarından biri olarak değerlendirmektir.
Makale tarihsel bağlamda cytarabine, vidarabine, trabectedin ve eribulin mesylate gibi deniz kökenli veya deniz doğal ürünlerinden geliştirilmiş klinik açıdan önemli ilaçları hatırlatmaktadır. Ziconotide ise Conus magus deniz salyangozundan köken alan bir conopeptide örneğidir ve omurilik nöronlarındaki N-tipi voltage-gated calcium channels'ı bloke eden opioid-dışı analjezik mekanizmasıyla düzenleyici onaya ulaşmıştır.
Etki mekanizması ne demektir?
Etki mekanizması, bir molekülün biyolojik sistemi hangi birincil moleküler etkileşim üzerinden değiştirdiğini ve bu etkileşimin sonraki hücresel sonuçlara nasıl bağlandığını anlatır. “Hücreyi öldürüyor” bir fenotiptir; “SF3b'ye bağlanarak spliceosome montajını bozuyor” ise mekanistik açıklamadır.
Bu ayrım özellikle doğal ürün araştırmalarında önemlidir. Bir molekülün proliferasyonu durdurması, ROS'u artırması, NF-κB'yi azaltması ve caspase aktivasyonu oluşturması dört ayrı doğrudan hedefi olduğu anlamına gelmeyebilir. Bunların tümü tek bir birincil proteinin inhibisyonundan sonra ortaya çıkan aşağı akış olayları olabilir.
Bir Denizel Doğal Ürünün Doğrudan Hedefi ile Aşağı Akış Etkisi Neden Aynı Şey Değildir?
Doğrudan hedef, bileşiğin fiziksel veya fonksiyonel olarak ilk temas ettiği protein, kompleks, DNA bölgesi veya biyolojik makinedir; aşağı akış etki ise bu ilk müdahalenin hücre içindeki sinyal ağlarında oluşturduğu ikincil sonuçtur. Örneğin proteazom inhibisyonu doğrudan hedef etkileşimidir; ubiquitinlenmiş protein birikimi, ER stresi, NF-κB değişimi ve apoptosis bunun ardından gelişebilecek sonuçlardır.
Spliceosome nedir?
Spliceosome, ökaryotik hücrelerde öncül mRNA'daki intronları çıkarıp exonları birleştiren büyük ribonucleoprotein kompleksidir. U1, U2, U4/U6 ve U5 snRNP gibi küçük nükleer ribonucleoproteinlerden ve çok sayıda yardımcı proteinden oluşur.
Bir gen DNA'dan RNA'ya kopyalandığında ortaya çıkan pre-mRNA doğrudan olgun protein kodlayan RNA değildir. İntronların doğru yerlerden çıkarılması gerekir. Yanlış splice-site seçimi, intron retention veya exon skipping protein dizisini ve gen fonksiyonunu ciddi biçimde değiştirebilir.
SF3b ve branch-point sequence neden önemlidir?
U2 snRNP'nin SF3b alt kompleksi pre-mRNA üzerindeki branch-point bölgesinin tanınmasında rol oynar. FR901464 ve thailanstatin A'nın kaynakta açıklanan mekanizması, SF3b çevresindeki montajı işlevsiz hale getirerek U2 snRNP'nin branch-point sequence ile kararlı eşleşmesini engellemektir.
Sonuç spliceosome montajının durması, intronların korunması, exonların yanlış atlanması ve olgun mRNA üretiminin azalmasıdır. Hücre için gerekli proteinlerin doğru izoformlarının kaybı hücresel strese, cell-cycle arrest ve apoptosis'e ilerleyebilir.
Leucettamine B aynı yolu neden farklı biçimde etkiliyor?
Leucettamine B doğrudan aynı SF3b bağlanma biçimiyle tanımlanmamaktadır. Kaynak onu CLK4 ve DYRK1A kinazlarının düşük nanomolar inhibitörü olarak verir: CLK4 için IC50=43,4 nM, DYRK1A için IC50=74,9 nM. CLK/DYRK inhibisyonu SR splicing proteinlerinin fosforilasyonunu azaltır, bu proteinlerin çekirdekteki doğru konumunu bozabilir ve U2 snRNP'nin branch-point bölgesine alınmasını engelleyebilir.
Translasyon başlangıcı nedir?
Translasyon başlangıcı, ribozomun mRNA üzerine yerleşip doğru başlangıç kodonunu tanıdığı ve protein sentezine hazır hale geldiği aşamadır. eIF4F kompleksi bu süreçte önemli rol oynar; kompleksin eIF4A bileşeni ATP-bağımlı bir RNA helicase'dir.
Birçok onkogenin mRNA'sının 5′ untranslated region bölgesi güçlü ikincil RNA yapıları oluşturabilir. eIF4A bu yapıları çözerek ribozomun mRNA boyunca tarama yapmasını kolaylaştırır. Bu nedenle eIF4A'nın bloke edilmesi, özellikle yüksek translasyon çıktısına bağımlı hücrelerde hassasiyet oluşturabilir.
Pateamine A nasıl bir “molecular clamp” gibi davranıyor?
Pateamine A, kaynakta eIF4A ile RNA arasındaki arayüze bağlanan interfacial inhibitor olarak anlatılmaktadır. Molekülün farklı bölgeleri hem RNA bazları hem eIF4A kalıntılarıyla temas ederek eIF4A'yı RNA üzerinde verimsiz, kapalı bir kompleks halinde stabilize eder.
Böylece eIF4A'nın normal döngüsel çalışması ve yeniden kullanılması engellenir; 48S pre-initiation complex oluşumu bozulur ve cap-dependent translation başlangıcı baskılanır.
Hippuristanol'un mekanizması neden farklıdır?
Hippuristanol eIF4A'nın karboksil-terminal bölgesine allosterik biçimde bağlanır ve RNA bağlanmasını engeller. Kaynak eIF4A ATPase inhibisyonu için 50–300 nM aralığında biyokimyasal IC50 bildirmektedir.
Dolayısıyla Pateamine A eIF4A–RNA kompleksini yanlış durumda “kilitlerken”, hippuristanol eIF4A'nın RNA'ya bağlanması ve RNA açma işlevini doğrudan sınırlar. Aynı biyolojik düğüm iki farklı mekanistik yolla hedeflenmiş olur.
Elisabatin A ne yapıyor?
Elisabatin A eIF4A1'in ATP bağlanmasıyla rekabet eden bir inhibitör olarak sunulmaktadır. ATP kullanımı engellendiğinde helicase aktivitesi ve dolayısıyla translasyon başlangıcı bozulur. Kaynak solid tumor cell lines için yaklaşık 40 µM LD50 bildirmektedir; bu değer diğer assay türlerinin IC50 veya Kd değerleriyle doğrudan karşılaştırılmamalıdır.
Protein sentezinin uzama aşaması nedir?
Başlangıç tamamlandıktan sonra ribozom mRNA boyunca ilerler ve amino asitleri büyüyen polypeptide zincirine ekler. Bu aşama translation elongation olarak adlandırılır. eEF1A aminoacyl-tRNA'nın ribozoma taşınmasında; ribozomun peptidyl transferase center'ı ise peptid bağının oluşturulmasında görev alır.
Denizel doğal ürünler bu sistemin farklı noktalarını hedefler: Didemnin B ve plitidepsin eEF1A ailesini; psymberin, tedanolide ve lissoclimide türevleri ribozomal bölgeleri; onnamide ve mycalamide ailesi ise büyük ribozomal alt birimdeki E-site çevresini etkiler.
Didemnin B ve plitidepsin
Didemnin B için kaynak PPT1 ve eEF1A1 inhibisyonunu bildirir; eEF1A1 için Kd=120 nM verilmektedir. Didemnin B'nin dose-limiting toxicity sorunları ikinci nesil analogue plitidepsinin geliştirilmesine yol açmıştır.
Plitidepsin kaynakta eEF1A2'ye bağlanan bir molekül olarak aktarılır ve Kd=80 nM değeri verilir. eEF1A2'nin engellenmesi aminoacyl-tRNA'nın ribozom A-site'ına taşınmasını bozar.
Kaynak ayrıca plitidepsin için SARS-CoV-2 replikasyonunda EC50=0,88 nM değerini aktarmaktadır. Bu değer belirli antiviral deney bağlamına aittir ve insanlarda bütün viral enfeksiyonlar için 0,88 nM tedavi dozu anlamına gelmez.
Psymberin neden farklıdır?
Psymberin veya irciniastatin A, büyük 60S ribosomal subunit ve peptidyl transferase center ile ilişkilendirilmiştir. Kaynak Kd=2,1 nM bildirir. Ribosome profiling deneylerinde HCT-116 hücrelerinde elongation yavaşlaması ve AAA-lysine kodonlarında 80S stalling raporlanmıştır.
Kaynak ayrıca colorectal cancer patient-derived organoidlerinde 3–25 nM IC50 aralığı aktarır. Bu sonuç organoid deneyidir; doğrudan hasta tedavi sonucu değildir.
Gen ifadesi ve protein sentezi mekanizmalarının ortak haritası
Topoizomeraz nedir?
DNA'nın replikasyon ve transkripsiyon sırasında açılıp yeniden sarılması torsional stress oluşturur. Topoizomerazlar DNA zincirini kontrollü biçimde geçici olarak kesip yeniden birleştirerek bu mekanik gerilimi çözer.
Tip I topoizomeraz bir DNA zincirini keserken Tip II topoizomeraz iki zinciri birden geçici olarak keser. Normal durumda kesilmiş DNA yeniden ligate edilir. “Topoizomeraz zehri” ise enzimi yalnız kapatmak yerine enzimin DNA'yı kesmiş halde oluşturduğu cleavage complex'i stabilize ederek DNA'nın yeniden birleştirilmesini engeller.
Replikasyon machinery'si bu kalıcı kompleksle karşılaştığında ölümcül DNA double-strand breaks oluşabilir.
Lamellarin D
Lamellarin D düzlemsel pentacyclic pyrrole çekirdeği sayesinde GC-rich DNA bölgelerine intercalate olabilir ve Topo I cleavage complexes'i stabilize eder. Kaynak NCI-60 panelindeki çeşitli lösemi, meme, kolon ve melanoma hücrelerinde IC50=10–80 nM aralığı bildirir.
Bileşiğin önemli bir ikinci özelliği P-glycoprotein-mediated drug efflux'i 0,1 µM gibi sub-cytotoxic konsantrasyonda azaltabilmesidir. Derleme bu durumu “self-potentiating” bir özellik olarak yorumlamaktadır: molekül hem Topo I'yi hedefler hem kendi hücre dışına pompalanmasını sınırlayabilir.
Trabectedin neden klasik DNA alkilleyicilerinden farklıdır?
Ecteinascidin-743 veya trabectedin, DNA minor groove'a bağlanır ve guaninin N2 pozisyonunu alkiller. Oluşan adduct transkripsiyonla eşleşmiş nucleotide-excision-repair machinery tarafından işlenirken verimsiz/futile repair süreci meydana gelir ve double-strand breaks oluşabilir.
Bu mekanizma, “DNA'yı alkillemek” ile sınırlı değildir; hücrenin hasarı düzeltmeye çalışması da sitotoksik mekanizmanın parçası haline gelir. Derleme trabectedin'in ileri soft-tissue sarcoma için onaylanmış olmasını bu mekanizmanın klinik doğrulanmasına örnek olarak göstermektedir.
Shishijimicin A nasıl DNA hasarı oluşturuyor?
Shishijimicin A'nın trisulfide trigger bölgesi bioreductive activation sonrasında Bergman cyclization oluşturabilir. Ortaya çıkan 1,4-benzenoid diradical DNA omurgasından hidrojen atomları kopararak strand break meydana getirir.
Kaynak P388 hücreleri için IC50=0,48 pM bildirir. Picomolar düzeydeki bu aşırı yüksek in vitro potency, aynı zamanda normal dokular açısından çok ciddi off-target toxicity riski yaratabileceğinden derleme ADC tabanlı hedefli taşıma yaklaşımlarını tartışmaktadır.
Proteostaz nedir?
Proteostaz, hücrenin protein sentezi, katlanması, kalite kontrolü ve yıkımı arasındaki dengeyi korumasıdır. Yanlış katlanmış veya artık ihtiyaç duyulmayan proteinlerin uzaklaştırılması bu sistemin temel parçasıdır.
Ubiquitin–proteasome system'de proteinler belirli ubiquitin zincirleriyle işaretlenebilir. 19S regulatory particle bu proteinleri tanır, açar ve 20S catalytic core'a aktarır. Kaynak 20S proteasomun β5 chymotrypsin-like, β2 trypsin-like ve β1 caspase-like katalitik bölgelerini ayrı ayrı ele almaktadır.
Marizomib proteazomu nasıl inhibe ediyor?
Salinosporamide A veya marizomib, doğal γ-lactam-β-lactone iskeletine sahip non-peptidic proteasome inhibitörüdür. Kaynak β-lactone carbonyl grubunun proteazom subunitlerindeki katalitik Thr1 Oγ hydroxyl tarafından nucleophilic attack'a uğradığını ve covalent ester adduct oluşturduğunu anlatmaktadır.
Derlemede verilen IC50 değerleri:
| Aktivite | Alt birim | IC50 |
|---|---|---|
| Chymotrypsin-like | β5 | 3,5 ± 0,3 nM |
| Trypsin-like | β2 | 28 ± 2 nM |
| Caspase-like | β1 | 430 ± 34 nM |
Proteazom baskılandığında yanlış katlanmış ve ubiquitinlenmiş proteinler birikir. Kaynak bunu ER stress, pro-apoptotic protein artışı ve NF-κB survival signaling değişiklikleriyle ilişkilendirmektedir. Bu sonuçlar aşağı akış etkileridir; marizomibin doğrudan hedefi proteazomdur.
Deubiquitinase nedir?
Deubiquitinases (DUBs), proteinlerden veya ubiquitin zincirlerinden ubiquitin moleküllerini çıkarabilen enzimlerdir. UPS'nin yalnız “proteinlere ubiquitin ekleme ve proteazomda yok etme” sisteminden ibaret olmadığını; ubiquitin işaretlerinin sürekli düzenlenebildiğini gösterir.
Kaynakta Sulawesin A'nın USP7 için IC50=2,8 µM; Spongiacidin C'nin USP7 için IC50=3,8 µM ve USP21 için IC50=16,6 µM gösterdiği aktarılır. Hyrtioreticulin A ise doğrudan DUB'dan farklı olarak E1–ubiquitin intermediate oluşumunu IC50=2,4 µM düzeyinde baskılayan bir örnektir.
“Undruggable” hedef ne demektir?
“Undruggable” sözcüğü bir proteinin mutlak olarak ilaçlanamayacağı anlamına gelmez. Terim tarihsel olarak küçük moleküllerin bağlanabileceği belirgin derin cep içermeyen, geniş veya dinamik protein–protein yüzeyleri kullanan, intrinsically disordered bölgeler taşıyan veya katalitik aktif bölgesi olmayan hedefler için kullanılmıştır.
Derleme transcription factors, RAS ailesi GTPases, adaptör proteinler, epigenetik reader proteinler ve BCL-2 ailesi üyeleri gibi sınıfları bu problem altında tartışmaktadır.
p53–MDM2/Hdm2 etkileşiminin bozılması
Siladenoserinol A, Hdm2'nin hydrophobic N-terminal pocket bölgesini doldurarak p53–Hdm2 protein–protein etkileşimini bozabilir; kaynak IC50=2,0 µM verir. Hoiamide D ise p53 transactivation-domain kalıntılarını taklit ederek p53–MDM2 etkileşimini EC50=4,5 µM düzeyinde bozduğu aktarılan başka bir scaffold'dur.
Buradaki terapötik mantık, p53 proteininin doğrudan “aktive edilmesi” yerine onu baskılayan MDM2/Hdm2 etkileşiminin kaldırılması ve wild-type p53 fonksiyonunun serbestleşmesidir.
Sec61 neden bir “bottleneck target” olarak önemlidir?
Sec61 translocon, secreted ve membrane proteinlerin endoplazmik retikulum membranından geçişinde merkezî bir kanaldır. Apratoxin A ve coibamide A gibi MNP'ler Sec61 sistemini baskılayarak EGFR, HER2, VEGFR ve farklı secreted factors gibi çok sayıda proteinin maturation ve membrane insertion sürecini engelleyebilir.
Bu strateji onlarca receptor'ü ayrı ayrı hedeflemek yerine ortak biyosentetik darboğaza müdahale eder. Ancak geniş client repertoire aynı zamanda therapeutic window açısından dikkat gerektiren bir özelliktir.
MCL-1 nasıl hedefleniyor?
Marinopyrrole A'nın MCL-1'in BH3 groove'una doğrudan bağlanarak pro-apoptotic BIM/BAK ile etkileşimini bozduğu ve MCL-1'in proteasomal degradation'ını hızlandırdığı aktarılmaktadır. Renieramycin T de kaynakta doğrudan MCL-1 inhibitor olarak sınıflandırılır ve farklı tumor cell lines için IC50=4,7–98 nM aralığı bildirilir.
Epigenetik ne demektir?
Epigenetik düzenleme, DNA'nın temel nükleotit dizisini değiştirmeden genlerin erişilebilirliğini ve ifade düzeyini etkileyen moleküler düzenlemelerdir. DNA methylation, histone acetylation, methylation ve başka histone modifications bu katmana dahildir.
HDAC enzimleri histonlardan acetyl gruplarını uzaklaştırabilir; bu nedenle HDAC inhibition kromatin yapısını ve gen ifadesini değiştirebilir. DNMT enzimleri ise DNA methylation ile ilişkilidir.
Largazole
Largazole bir prodrug'dır. Aktif largazole thiol metaboliti katalitik Zn2+ iyonunu chelate ederek özellikle class I HDAC1–3'ü inhibe eder. Kaynak IC50=0,1–1,7 nM aralığı ve class II enzimlere göre 100 kattan yüksek selectivity aktarmaktadır.
Derleme bu seçiciliği p21WAF1/CIP1 ve p27KIP1 gibi genlerin transcriptional reactivation'ı ve G1 arrest ile ilişkilendirir. Kaynak ayrıca murine xenograft bağlamında aktif metabolitin tümör içi konsantrasyonunun plazmadan yaklaşık 10 kat yüksek olabildiğini aktarmaktadır.
Psammaplin A neden çift etkili?
Psammaplin A hem HDAC hem DNA methyltransferase inhibitor olarak ele alınmaktadır. Kaynak HDAC için IC50=4,2 nM ve DNMT için IC50=18,6 nM bildirir. Daha sonraki karşılaştırmada HDAC1 için 45 nM, HDAC6 için 2,8 µM değerleri verilerek class selectivity vurgulanmaktadır.
Derleme iki epigenetik katmanın aynı anda hedeflenmesini, histone hyperacetylation ile promoter demethylation'ın birlikte silenced tumor-suppressor genes üzerinde cooperative de-repression oluşturabilmesi üzerinden tartışmaktadır.
IC50, EC50, Kd, LC50 ve LD50 Birbirinden Nasıl Ayrılır?
IC50 bir fonksiyonu %50 inhibe etmek için gereken konsantrasyonu, EC50 ölçülen etkinin %50'sini oluşturan konsantrasyonu, Kd ligand–hedef bağlanmasının denge ayrışma sabitini, LC50 deney sistemindeki örneklerin %50'sinde lethal etki oluşturan konsantrasyonu ve LD50 ise %50 lethal dose kavramını ifade eder; bunlar farklı deney sorularını ölçtükleri için sayıları doğrudan birbirine eşdeğer potency sıralaması gibi çevirmek doğru değildir.
| Metrik | Ne ölçer? | Düşük değer genel olarak ne ifade eder? | Temel yorum sınırı |
|---|---|---|---|
| IC50 | Bir biyolojik aktivitenin %50 inhibisyonu için gereken konsantrasyon | İlgili assay içinde daha yüksek inhibisyon potency'si | Assay koşullarına ve hedef konsantrasyonuna bağlıdır; doğrudan bağlanma afinitesi değildir |
| EC50 | Maksimum ölçülebilir etkinin yarısını oluşturan konsantrasyon | İlgili fonksiyonel yanıtta daha düşük etkin konsantrasyon | Kd ile eş anlamlı değildir |
| Kd | Ligand–hedef kompleksinin equilibrium dissociation davranışı | Aynı sistem içinde genellikle daha güçlü equilibrium affinity | Hücresel etkinliği veya klinik dozu tek başına belirlemez |
| LC50 | Belirli deney sisteminde %50 lethal etki oluşturan konsantrasyon | Daha yüksek cytotoxic potency | Hedef selectivity veya terapötik indeks hakkında tek başına bilgi vermez |
| LD50 | %50 lethal dose kavramı | Daha düşük lethal dose | Kullanılan organizma/assay ve doz tanımı bilinmeden diğer metriklerle karşılaştırılamaz |
Örneğin bir bileşiğin Kd değerinin 2 nM olması, hücrede IC50 değerinin de 2 nM olacağı anlamına gelmez. Hücre membranı geçirgenliği, intracellular concentration, protein binding, metabolism, ATP düzeyi, hedef abundance ve çok sayıda başka faktör hücresel etkinliği değiştirir.
Non-apoptotic cell death neden araştırılıyor?
Kanser hücreleri apoptosis sistemindeki p53, BCL-2/BAX, caspase veya mitochondrial death machinery üzerinde direnç geliştirebilir. Bu nedenle ferroptosis, pyroptosis, cuproptosis ve lysosome-dependent death gibi farklı biyokimyasal ölüm yolları apoptosis-resistant tümörleri hedeflemek için araştırılmaktadır.
Cuproptosis
Cuproptosis bakırla ilişkili düzenlenmiş hücre ölümü yoludur. Kaynak chagosendine C'nin copper chaperone FDX1'e Kd=8,31 µM ile bağlandığını; intracellular copper accumulation, lipoylated TCA-cycle protein aggregation ve iron–sulfur cluster depletion ile ilişkilendirildiğini aktarmaktadır.
Mitochondrial collapse sonrasında sitozole çıkan mtDNA'nın cGAS–STING pathway'ini tetiklemesi, type I interferon yanıtı ve CD8+ T-cell infiltration ile tümör bağışıklık mikroçevresini değiştirebilecek aşağı akış bağlantı olarak tartışılmaktadır.
Ferroptosis
Ferroptosis, iron-dependent lipid peroxidation ile ilişkili düzenlenmiş hücre ölümüdür. Kaynak fucoxanthin için bazı tongue ve ovarian carcinoma modellerinde Fe2+, ROS ve lipid peroxidation artışı; Nrf2/HO-1/GPX4 axis azalması ve TFR1/p53 artışı üzerinden ferroptotik mekanizma raporlayan çalışmaları aktarmaktadır.
Pyroptosis
Pyroptosis inflamatuvar caspase ve gasdermin pore oluşumuyla ilişkili hücre ölümüdür. Derlemede EPS3.9 adlı yaklaşık 17 kDa exopolysaccharide'ın plasma-membrane phospholipids ile etkileşerek NLRP3 inflammasome–caspase-1–GSDMD zincirini aktive ettiği aktarılmaktadır.
GSDMD pore oluşumu IL-1β ve IL-18 salımını kolaylaştırır; böylece hücre ölümü aynı zamanda çevredeki innate immune cells'i etkileyen inflammatory signal haline gelebilir.
Denizel Doğal Ürünler Tümör Mikroçevresini Nasıl Yeniden Şekillendirebilir?
Derlemede tümör mikroçevresinin yeniden şekillenmesi tek bir molekülle değil; PD-L1 stabilitesinin azaltılması, immunogenic cell death sırasında DAMP salımı, dendritic-cell maturation, CD8+ T-cell recruitment ve cGAS–STING/type I interferon yanıtı gibi farklı mekanizmalar üzerinden açıklanmaktadır; bu sonuçların kanıt düzeyi bileşiğe göre hücre kültürü veya hayvan modeliyle sınırlı olabilir.
Benzosceptrin C, DHHC3 palmitoyltransferase'ı Kd=385 nM ile baskılayan bir örnek olarak aktarılır. PD-L1 palmitoylation kaybı proteinin lysosomal degradation'ını artırabilir; böylece CD8+ T-cell fonksiyonunun yeniden etkinleşmesine katkı sağlayabilir.
Naamidine J, CSE1L'ye Kd=5,41 µM ile bağlanarak SP1 nuclear translocation/transcriptional activity'yi azaltır; kaynak aynı zamanda PD-L1 expression azalması ve CD8+ cytotoxicity restoration bildiren çalışmaları aktarır.
Aspercyclicin A, kaynakta 3–8 nM aralığında PERK–eIF2α–ATF4/CHOP ER stress ile immunogenic, caspase-independent cell death oluşturan bir molekül olarak anlatılır. Calreticulin yüzey ekspozisyonu, HMGB1 ve ATP salımı gibi damage-associated molecular patterns dendritic-cell maturation ve CD8+ T-cell priming ile ilişkilendirilmektedir.
Crassolide için p38α MAPK inhibition, ER stress ve calreticulin/HMGB1/ATP üzerinden immunogenic cell death bağlantıları aktarılmıştır. Bu tür etkiler dying tumor cell'i bağışıklık sistemi açısından daha görünür hale getirebilir; ancak kaynakta raporlanan preclinical sonuçlar doğrudan insan klinik yanıtı olarak yorumlanmamalıdır.
Çalışmanın Yöntemi ve Bulguları
1. Çalışma tasarımı
Bu çalışma bir Review makalesidir. Yazarlar yeni bir deneysel örneklem, yeni compound screening paneli veya yeni klinik cohort üretmemiştir. Literatürdeki denizel doğal ürünleri birincil moleküler hedef ve temel biyolojik süreç etrafında sınıflandırmıştır.
Kaynak ayrı bir “Materials and Methods” veya formal systematic review protokolü sunmamaktadır. PDF'de veri tabanı adları, arama tarihleri, tam search strings, PRISMA flow, dahil etme/dışlama kriterleri veya risk-of-bias değerlendirmesi raporlanmamaktadır. Dolayısıyla literatürdeki bütün denizel doğal ürünlerin nicel meta-analizi olarak yorumlanmamalıdır.
2. Hedef-merkezli sınıflandırma
Makalenin ana organizasyonu şu mekanistik eksenleri kullanmaktadır:
- Gen ifadesi machinery'sinin hedeflenmesi: splicing, translation initiation, elongation ve global protein synthesis.
- Genomic instability oluşturulması: topoizomeraz zehirlenmesi, DNA intercalation/alkylation ve radical-mediated strand break.
- Proteostasis network'ünün değiştirilmesi: proteazom ve ubiquitin sistemleri.
- Tarihsel olarak zor ilaçlanabilir protein veya protein–protein arayüzlerinin hedeflenmesi.
- Epigenetik düzenleme.
- Apoptoz dışı ve immunogenic cell-death yollarının tetiklenmesi.
- Bu mekanizmaların üretim, farmakokinetik ve target deconvolution açısından ilaç geliştirmeye taşınması.
3. Gen ifadesini hedefleyen başlıca bileşikler
| Bileşik | Birincil hedef / süreç | Kaynakta öne çıkan nicel bilgi | Ana mekanistik sonuç |
|---|---|---|---|
| FR901464 | SF3b / U2 snRNP spliceosome montajı | Kaynak bu bölümde tek birleşik IC50 vermiyor | Mis-splicing, intron retention, exon skipping |
| Thailanstatin A | SF3b / spliceosome | Antiproliferative IC50=59–500 nM | Pre-mRNA splicing bozulması |
| Leucettamine B | CLK4 / DYRK1A | 43,4 nM / 74,9 nM | SR protein hypophosphorylation ve U2 snRNP recruitment bozulması |
| Pateamine A | eIF4A–RNA interfacial complex | Kaynak bölümünde merkezi tek IC50 verilmemiş | 48S pre-initiation complex oluşumunun engellenmesi |
| Hippuristanol | eIF4A C-terminal domain | ATPase IC50=50–300 nM | RNA binding ve ATP-dependent unwinding baskılanması |
| Elisabatin A | eIF4A1, ATP bağlanmasıyla rekabet | Kaynakta LD50≈40 µM | Translation initiation bozulması |
| Didemnin B | PPT1 ve eEF1A1 | eEF1A1 Kd=120 nM | Translation elongation baskılanması |
| Plitidepsin | eEF1A2 | Kd=80 nM; kaynak SARS-CoV-2 için EC50=0,88 nM aktarır | Aminoacyl-tRNA delivery bozulması |
| Eudistomin C | 40S ribosomal uS11/RPS14A | P388 IC50=80 nM | 48S complex formation engellenmesi |
| Psymberin | 60S subunit / PTC | Kd=2,1 nM; CRC organoid IC50=3–25 nM | Elongation yavaşlaması ve 80S stalling |
| Onnamide A / Theopederin B / Mycalamide A-B | 60S E-site | Bileşik-bağımlı | Deacylated tRNA kilitlenmesi ve elongation arrest |
| Tedanolide C / Chlorolissoclimide / Dichlorolissoclimide | PTC çevresi | Bileşik-bağımlı | Ribosomal elongation baskılanması |
| Agelastatin A | Ribosomal PTC | Kaynak nanomolar cytotoxicity bildirir | Protein translation baskılanması |
| Girodazole | 23S rRNA ve ribosomal protein L15 çevresi | Merkezi tek değer verilmemiş | Protein synthesis machinery'nin bozulması |
4. DNA bütünlüğünü hedefleyen başlıca bileşikler
| Bileşik | Doğrudan/ana hedef | Kaynakta öne çıkan değer | Yorum |
|---|---|---|---|
| Lamellarin D | Topo I cleavage complex + P-gp | NCI-60 IC50=10–80 nM; P-gp etkisi 0,1 µM | Topo I zehirlenmesi ve drug-efflux azaltılması |
| Sansalvamide | Topo I + Hsp90 | Kaynak mekanistik çoklu hedef vurgusu yapar | DNA break ve oncoprotein destabilizasyonu |
| Makaluvamine G | Topo I / GC-rich DNA | DNA intercalation Ks=20 µM | Topo I inhibition |
| Ascididemin | Topo I ve Topo II | Topo II IC50=75 µM | Dual topoizomeraz poisoning |
| Wakayin | DNA intercalation + Topo I/II | HCT-116 IC50=1,5 µM | S-phase arrest |
| Thiocoraline A | DNA polymerase α / DNA elongation | Topo II inhibition raporlanmamıştır | DNA elongation baskılanması |
| Shermilamine B / Kuanoniamine A | Topo II ve DNA intercalation ile ilişkili | Kaynak toplu olarak aktarır | Pyridoacridine sınıfı |
| Aaptamine | DNA intercalation; çoklu aşağı akış etkileri | Kaynak tek merkezi potency değeri vermiyor | p21 activation, G2/M arrest ve başka yollar |
| Trabectedin | DNA minor groove, guanine N2 alkilasyonu | Kaynak advanced soft-tissue sarcoma onayını belirtir | TC-NER üzerinden futile repair ve DSB |
| Shishijimicin A | Radical-mediated DNA backbone damage | P388 IC50=0,48 pM | Bergman cyclization sonrası DNA strand break |
| Variolin B | CDK1/2/4/7/9 + pseudo-Holliday DNA | NCI-60 IC50=50–100 nM | Cell-cycle inhibition + genotoxic mekanizma |
| Fascaplysin | CDK4 + GC-rich DNA | CDK4 IC50=0,35 µM | G2/M arrest ve mitochondrial apoptosis |
5. Proteostaz hedefleri
| Bileşik | Ana hedef | Kaynak değeri | Mekanistik özellik |
|---|---|---|---|
| Marizomib | 20S β5, β2 ve β1 | 3,5±0,3; 28±2; 430±34 nM | Covalent, geniş proteazom inhibisyonu |
| Fellutamide B | β5 | IC50=9,4 nM | Reversible hemiacetal |
| Strongylophorines-13/14 | 20S proteasome; ayrıca PTP1B | 20S IC50=2,1 µM; PTP1B=8–9 µM | Çoklu biyolojik aktivite |
| Palau'amine | 20S β5 çevresi | IC50=3 µM | Substrate entry'nin engellenmesi |
| Epoxyphomalin B | 20S proteasome | 27 µM tested concentration | Proteazom inhibition |
| Secomycalolide A | 20S chymotrypsin-like β5 | IC50=11 µg/mL | Reversible pocket occupation |
| 12R-hydroxy-bromosphaerol | 20S α4–α5 interface | RenG2/BEAS-2B IC50=4,3 µM | Inactive conformation stabilization |
| Neo-kauluamine | 20S α4–α5 interface / CT-L | IC50=0,13 µM | Allosteric interface-targeting örneği |
| Scytonemide A | 20S CT-L | IC50=96 nM | Kaynak olası covalent mechanism tartışır |
| Carmaphycins A/B | β5 | Yeast IC50=2,5 nM | Epoxyketone sınıfı |
| Sulawesin A | USP7 | IC50=2,8 µM | MDM2 deubiquitination baskılanması |
| Spongiacidin C | USP7 / USP21 | 3,8 µM / 16,6 µM | Seçici DUB inhibition |
| Hyrtioreticulin A | E1–ubiquitin intermediate formation | IC50=2,4 µM | Ubiquitination upstream inhibition |
6. Zor hedefler ve protein–protein etkileşimleri
| Bileşik | Hedef | Kaynakta verilen ana bilgi |
|---|---|---|
| Siladenoserinol A | p53–Hdm2 PPI | IC50=2,0 µM |
| Dragmacidin D | PP1 | Derleme, özgün yayında assay ayrıntısının verilmediğini özellikle not eder |
| Hoiamide D | p53–MDM2 PPI | EC50=4,5 µM |
| Apratoxin A | Sec61/TRAP | Cytotoxic IC50=0,3–0,5 nM |
| Coibamide A | Sec61 translocon | Secreted/membrane protein processing'in blokajı |
| Benzosceptrin C | DHHC3 | Kd=385 nM; PD-L1 palmitoylation/stability etkisi |
| Naamidine J | CSE1L | Kd=5,41 µM; K562 IC50=11,3 µM |
| Marinopyrrole A | MCL-1 BH3 groove | MCL-1/BIM-BAK etkileşimini bozar |
| Renieramycin T | MCL-1 | Tumor cell IC50=4,7–98 nM |
| Tanzawaic acid D | FOXO1 | FOXO1–DNA complex stabilization |
7. Epigenetik bileşikler
| Bileşik | Hedef | Kaynakta verilen potency |
|---|---|---|
| Largazole | Class I HDAC1–3 | 0,1–1,7 nM |
| Psammaplin A | HDAC + DNMT | 4,2 nM + 18,6 nM |
| Azumamide E | HDAC1–3; daha zayıf HDAC8 ve class II | HDAC1–3 yaklaşık 0,1–0,05 µM; HDAC8=3,7 µM |
| Santacruzamate A | HDAC2 | IC50=0,119 nM |
| Microsporin A | HDAC'ler | HDAC mixture IC50=0,14 µM; HDAC8=0,55 µM |
8. Apoptoz dışı hücre ölümü örnekleri
| Bileşik | Ana hedef/yol | Kaynakta öne çıkan bilgi |
|---|---|---|
| Chagosendine C | FDX1 / cuproptosis | Kd=8,31 µM |
| Kahalalide F | ATP depletion, oncotic swelling, membrane lysis | Apoptotic checkpoints'i bypass eden necrotic death |
| Fucoxanthin | Iron/ROS/lipid peroxidation / ferroptosis | Nrf2/HO-1/GPX4 ve TFR1/p53 bağlantıları |
| EPS3.9 | NLRP3–caspase-1–GSDMD / pyroptosis | Yaklaşık 17 kDa exopolysaccharide |
| Aspercyclicin A | PERK–eIF2α–ATF4/CHOP / immunogenic death | Kaynak 3–8 nM çalışma aralığı aktarır |
| Crassolide | p38α MAPK / immunogenic death | ER stress, calreticulin, ATP ve HMGB1 bağlantısı |
| Monanchoxymycalin C | JNK1/2 activation | Caspase-independent death |
| Callyspongiolide | V-ATPase | V-ATPase IC50≈10 nM; lymphoma cell IC50=60–70 nM |
9. Derlemenin klinik ve translasyonel yorumu
Yazarlar denizel doğal ürünlerde çok yüksek potency bulunmasının ilaç geliştirme zincirini otomatik olarak tamamlamadığını vurgular. Derlemede düzenleyici onaya ulaşan marine-derived compounds sayısının 20'den az olduğu belirtilmektedir.
Bu fark üç ana translasyonel darboğazla açıklanmaktadır:
- Supply sustainability: birçok bileşik doğal organizmada son derece düşük miktarda bulunur ve vahşi ortamdan toplama ekonomik veya ekolojik olarak sürdürülebilir değildir.
- Pharmacokinetic mismatch: yüksek moleküler karmaşıklık, düşük oral bioavailability, hızlı hepatic clearance veya proteolytic degradation gibi sorunlar güçlü in vitro molekülü zayıf ilaç adayına dönüştürebilir.
- Target deconvolution delay: phenotypic screening güçlü bir etki gösterebilir ancak hangi proteinin birincil hedef olduğunun belirlenmesi yıllar alabilir ve rasyonel medicinal chemistry'yi geciktirebilir.
Denizel Doğal Ürünlerin Kliniğe Taşınmasını Hangi Üç Temel Engel Sınırlıyor?
Derlemenin tartışmasına göre başlıca üç engel sürdürülebilir ve ölçeklenebilir madde temini, güçlü biyolojik aktiviteye rağmen uygun olmayan farmakokinetik özellikler ve phenotypic etkiden gerçek moleküler hedefe ulaşmayı geciktiren target deconvolution problemidir.
10. Sürdürülebilir üretim
Deniz süngerleri veya başka yavaş büyüyen organizmalardan doğal hasat, birçok güçlü molekül için klinik ölçekli üretim sağlayamaz. Kaynak marizomib üreticisi Salinispora tropica gibi kültüre alınabilen mikroorganizmaların fermentation sistemlerinde çoğaltılabilmesini önemli bir çözüm olarak göstermektedir.
Biosynthetic gene clusters'in E. coli, yeast veya engineered Streptomyces gibi heterolog hosts içine aktarılması ise molekülün doğal organizmasını hasat etmeden üretim yapılabilmesini sağlayabilecek sentetik biyoloji stratejisidir.
11. Chemoproteomics ve cryo-EM
Phenotypic screening'de hücre ölümü görülebilir ancak hedef bilinmeyebilir. Derleme activity-based chemoproteomics'in eEF1A2 gibi hedeflerin belirlenmesinde; cryo-electron microscopy'nin ise MNP–target complex yapılarını atomik düzeye yaklaşan çözünürlüklerde incelemede kullanılmasını önemli bir gelişme olarak değerlendirmektedir.
Bu bilgi medicinal chemist'in molekülü kör biçimde değiştirmesi yerine hangi fonksiyonel grubun hangi protein yüzeyiyle etkileştiğini anlamasına yardımcı olabilir.
12. Yapay zekâ ve yapısal tahmin
Derleme AlphaFold3 ve RoseTTAFold gibi AI destekli protein/yapı tahmin araçlarının MNP–protein interaction adaylarını önceliklendirmede kullanılabileceğini tartışmaktadır. Kaynak bu yaklaşımın sentez yükünü azaltabileceğine ilişkin güçlü bir değerlendirme yapmaktadır.
Bu bölüm, makalenin kendisinin yeni bir AI modeli geliştirdiği anlamına gelmez. AI bu derlemede gelecek drug-discovery pipeline'ının yardımcı teknolojilerinden biri olarak tartışılmaktadır.
13. Scaffold simplification
Çok karmaşık doğal ürünlerin her atomunun biyolojik hedef için gerekli olması gerekmez. Derlemede önerilen yaklaşım “mechanistic essence” veya temel pharmacophore korunurken sentezi zorlaştıran ve farmakokinetiği kötüleştiren kısımların azaltılmasıdır.
Ancak yapı sadeleştirilirken selectivity ve target binding kaybolabilir. Bu nedenle scaffold simplification yalnız molekülü küçültme değil, yapı–aktivite ilişkisiyle yönlendirilen medicinal chemistry işlemidir.
14. Onkoloji dışı kullanım alanları
Makale denizel doğal ürünlerin yalnız kanserle sınırlı olmadığını özellikle vurgular. Plitidepsin'in antiviral protein-synthesis mekanizması, Santacruzamate A'nın HDAC2 selectivity'sinin nöroinflamatuvar bağlamı ve bazı marine alkaloids'in antibiofilm etkileri bu “mechanism-first, indication-second” yaklaşımına örnek olarak verilmektedir.
Çalışmanın desteklediği sonuçlar
- Denizel doğal ürünler çok farklı moleküler hedef ve biyolojik süreçlere müdahale eden yapısal olarak çeşitli scaffold'lar sağlar.
- Bazı MNP'ler klasik enzim aktif bölgelerinden farklı olarak RNA–protein arayüzleri, ribozomal bölgeler ve protein–protein interaction surfaces gibi zor hedeflere erişebilir.
- Spliceosome, eIF4A/eEF1A, ribozomal PTC, topoizomeraz, proteazom, DUB, MCL-1, Sec61, HDAC/DNMT ve farklı non-apoptotic death pathways derlemede ayrı mekanistik sınıflar halinde desteklenmektedir.
- Birincil moleküler hedef ile aşağı akış signaling/fenotip ayrımının korunması mekanizma yorumunun temelidir.
- Çeşitli MNP'lerde nanomolar veya picomolar in vitro potency literatürde raporlanmıştır.
- Bazı deniz kökenli bileşik veya analoglar düzenleyici onaya ya da klinik geliştirme aşamalarına ulaşmıştır.
- Apoptoz dışı hücre ölümü ve immunogenic cell death mekanizmaları apoptosis-resistant kanser biyolojisini araştırmak için alternatif yollar sağlamaktadır.
- Target identification, cryo-EM, chemoproteomics, synthetic biology ve hesaplamalı araçlar doğal ürün geliştirme sürecinin önemli tamamlayıcılarıdır.
- Sürdürülebilir üretim, farmakokinetik ve target deconvolution başlıca translasyonel engellerdir.
Çalışmanın desteklemediği genellemeler
- Makaledeki bütün denizel doğal ürünlerin insanlarda güvenli veya etkili ilaç olduğu gösterilmemiştir.
- Düşük IC50 veya Kd tek başına klinik başarı kanıtı değildir.
- In vitro cytotoxicity sonucu hasta tedavi etkinliği değildir.
- Mouse/xenograft antitumor sonucu insan klinik sonucu değildir.
- Bir proteinin expression veya phosphorylation değişikliği bileşiğin o proteine doğrudan bağlandığını tek başına göstermez.
- Apoptoz dışı hücre ölümünün oluşması bütün tümörlerde aynı mekanizmanın çalışacağını göstermez.
- “Undruggable” hedeflere yönelik bir scaffold keşfi onun optimize edilmiş ilaç olduğu anlamına gelmez.
- Denizel kökenli molekülün doğal olması toksikolojik olarak güvenli olduğu anlamına gelmez.
- Kaynağın klinik aşama ifadeleri bu Verianla çalışmasında bağımsız clinical-trial registry meta-analiziyle yeniden doğrulanmamıştır.
- Bu derleme formal bir meta-analiz olmadığı için farklı çalışmaların IC50 değerleri tek ortak deneyin karşılaştırmalı potency sıralaması gibi kullanılmamalıdır.
Çalışmanın güçlü yanı
Derlemenin güçlü yanı yüzlerce doğal ürün çalışmasını yalnız yapı veya organizma kökenine göre sıralamak yerine “hangi moleküler düğüm bozuluyor?” sorusu etrafında düzenlemesidir. Bu yaklaşım cytotoxicity listelerinden daha mekanistik bir öğrenme yapısı sağlar.
Ayrıca translation, DNA damage, proteostasis, PPI, epigenetics ve regulated cell death gibi normalde ayrı literatürlerde incelenen süreçleri aynı mekanizma haritasında bir araya getirir.
Çalışmanın temel sınırlılıkları
Derleme formal systematic-review arama protokolü raporlamadığı için hangi yayınların hangi veritabanı ve kriterle seçildiği yeniden üretilebilir biçimde verilmemiştir. Bu durum literatür kapsamının nicel olarak ne ölçüde eksiksiz olduğunu değerlendirmeyi zorlaştırır.
İkinci sınırlılık, bir araya getirilen kanıtların aynı deney düzeyinde olmamasıdır. Bazı bilgiler saf protein binding assay'den, bazıları tumor cell line'dan, bazıları organoid, murine model veya klinik çalışmalardan gelir. Bu nedenle bütün potency değerlerini tek tabloda doğrudan büyüklük sırasına göre karşılaştırmak bilimsel olarak doğru değildir.
Üçüncü sınırlılık, bazı bileşiklerde birincil hedefin güçlü yapısal/biyofiziksel kanıtla desteklenmesine karşılık bazı örneklerde mekanizma bilgisinin daha dolaylı veya eksik olmasıdır. Derleme Dragmacidin D için özgün çalışmada assay ayrıntısının verilmediğini kendisi açıkça belirtmektedir.
Dördüncü sınırlılık kaynak şekil açıklamalarında yer yer kapsam genellemelerinin bulunmasıdır. Özellikle Şekil 2 caption'ının 4–18 numaralı bileşiklerin tümünü eIF4A interfacial inhibitors olarak tanımlayan ifadesi, ana metindeki eEF1A ve ribosomal PTC/E-site mekanizmalarıyla tam uyumlu değildir.
Kaynak ve Yöntem Notu
Özgün çalışma: Marine Natural Products with Novel Mechanisms of Action: From Disrupting Gene Expression to Reshaping the Tumor Microenvironment and Beyond
Yazarlar: Jinqi Huang; Jinli Liu; Chuanke Chong; Yuewei Guo; Xin Jin.
Yazar sırası: Jinqi Huang → Jinli Liu → Chuanke Chong → Yuewei Guo → Xin Jin.
Eş katkı: Kaynak PDF'de eş birinci yazarlık/eş katkı işareti belirtilmemektedir.
Sorumlu yazarlar: Chuanke Chong; Yuewei Guo; Xin Jin.
Afiliyasyon 1: School of Pharmaceutical Sciences & Institute of Materia Medica, Shandong First Medical University & Shandong Academy of Medical Sciences, Jinan 250117, China.
Afiliyasyon 2: Shandong Laboratory of Yantai Drug Discovery, Bohai Rim Advanced Research Institute for Drug Discovery, Yantai 264117, China.
Dergi: Chemistry.
Yayıncı: MDPI, Basel, Switzerland.
Cilt / sayı / makale: Volume 8, Issue 10, Article 145.
DOI: 10.3390/chemistry8100145.
Gönderim tarihi: 11 Eylül 2026.
Revizyon tarihi: 14 Ekim 2026.
Kabul tarihi: 16 Ekim 2026.
Yayın tarihi: 20 Ekim 2026.
Kaynak türü: Review; denizel doğal ürünlerin moleküler hedeflerini ve etki mekanizmalarını hedef-merkezli biçimde sentezleyen kapsamlı derleme.
Hakemlik durumu: Gönderim, revizyon ve kabul tarihleri bulunan yayımlanmış dergi makalesidir.
Resmî bağlantı: https://doi.org/10.3390/chemistry8100145
Lisans: Creative Commons Attribution (CC BY).
Finansman: Key R&D Program of Shandong Province, 2024CXPT029 ve 2025CXPT012; National Natural Science Foundation of China, Grant No. 82304372.
Institutional Review Board: Not applicable.
Informed Consent: Not applicable.
Veri erişilebilirliği: Kaynak “All data are included in this review” beyanını vermektedir.
Çıkar çatışması: Yazarlar çıkar çatışması olmadığını beyan etmiştir.
Yazar katkıları: Jinqi Huang ve Jinli Liu conceptualization; Yuewei Guo ve Xin Jin original draft preparation, review/editing ve visualization; Chuanke Chong, Yuewei Guo ve Xin Jin supervision; Yuewei Guo ve Xin Jin project administration ve funding acquisition görevlerini üstlenmiştir. Kaynak bütün yazarların derlemenin hazırlanmasına katkıda bulunduğunu belirtmektedir.
Formal systematic-review yöntemi notu: Makale abstract'ta MNP'leri “systematically groups” biçiminde tanımlasa da PDF ayrı bir PRISMA protokolü, search database listesi, search string, çalışma seçim akışı veya meta-analysis yöntemi sunmamaktadır. Verianla bu nedenle çalışmayı formal systematic review/meta-analysis olarak yeniden sınıflandırmamaktadır.
Kaynak-içi Şekil 2 tutarlılık notu: Şekil 2 caption'ı compounds 4–18'i topluca eIF4A'ya bağlanan interfacial translation inhibitors şeklinde tanımlar. Aynı makalenin Bölüm 2.3 ve 2.4'ü ise 7–18 grubunda eEF1A1/eEF1A2, 40S uS11, 60S PTC, E-site, 23S rRNA ve L15 gibi farklı hedefleri açıkça tanımlamaktadır. Verianla ana mekanizma anlatımında ayrıntılı metin bölümlerini esas almış ve caption kapsamını sessizce “düzeltilmiş kaynak” gibi sunmamıştır.
Kanıt düzeyi notu: Bu derlemede aktarılan sonuçlar saf protein ve biochemical binding assay, kanser hücre hatları, patient-derived organoid, hayvan modeli ve klinik bağlam gibi farklı düzeylerden gelmektedir. Aynı tabloda verilen sayılar bu nedenle tek laboratuvarda aynı protokolle üretilmiş karşılaştırmalı veri değildir.
Farmakolojik metrik notu: IC50, EC50, Kd, LC50 ve LD50 farklı deneysel büyüklüklerdir. Sayısal değerleri aynı birimde olsa bile birbirinin yerine kullanılmamalıdır.
Doğrudan hedef sınırı: Bir bileşik sonrasında değişen bütün pathway veya proteinler doğrudan moleküler hedef olarak kabul edilmemiştir. Derlemenin kendi uyarısına uygun biçimde birincil target engagement ile downstream cellular response ayrılmıştır.
Klinik yorum sınırı: Kaynakta bazı bileşikler için regulatory approval veya clinical-stage ifadeleri bulunmaktadır. Verianla'nın bu metni, bu ifadeleri bağımsız clinical registry incelemesiyle genişletmemekte ve klinik etkiyi kaynak iddiasının ötesine taşımamaktadır.
Matematik/formül notu: Kaynak derlemede merkezi bir matematiksel model veya numaralandırılmış bilimsel denklem bulunmamaktadır. Bu nedenle Verianla kaynak dışı farmakodinamik formül üretmemiş; IC50, EC50, Kd, LC50 ve LD50 kavramlarını metinsel olarak açıklamıştır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir