


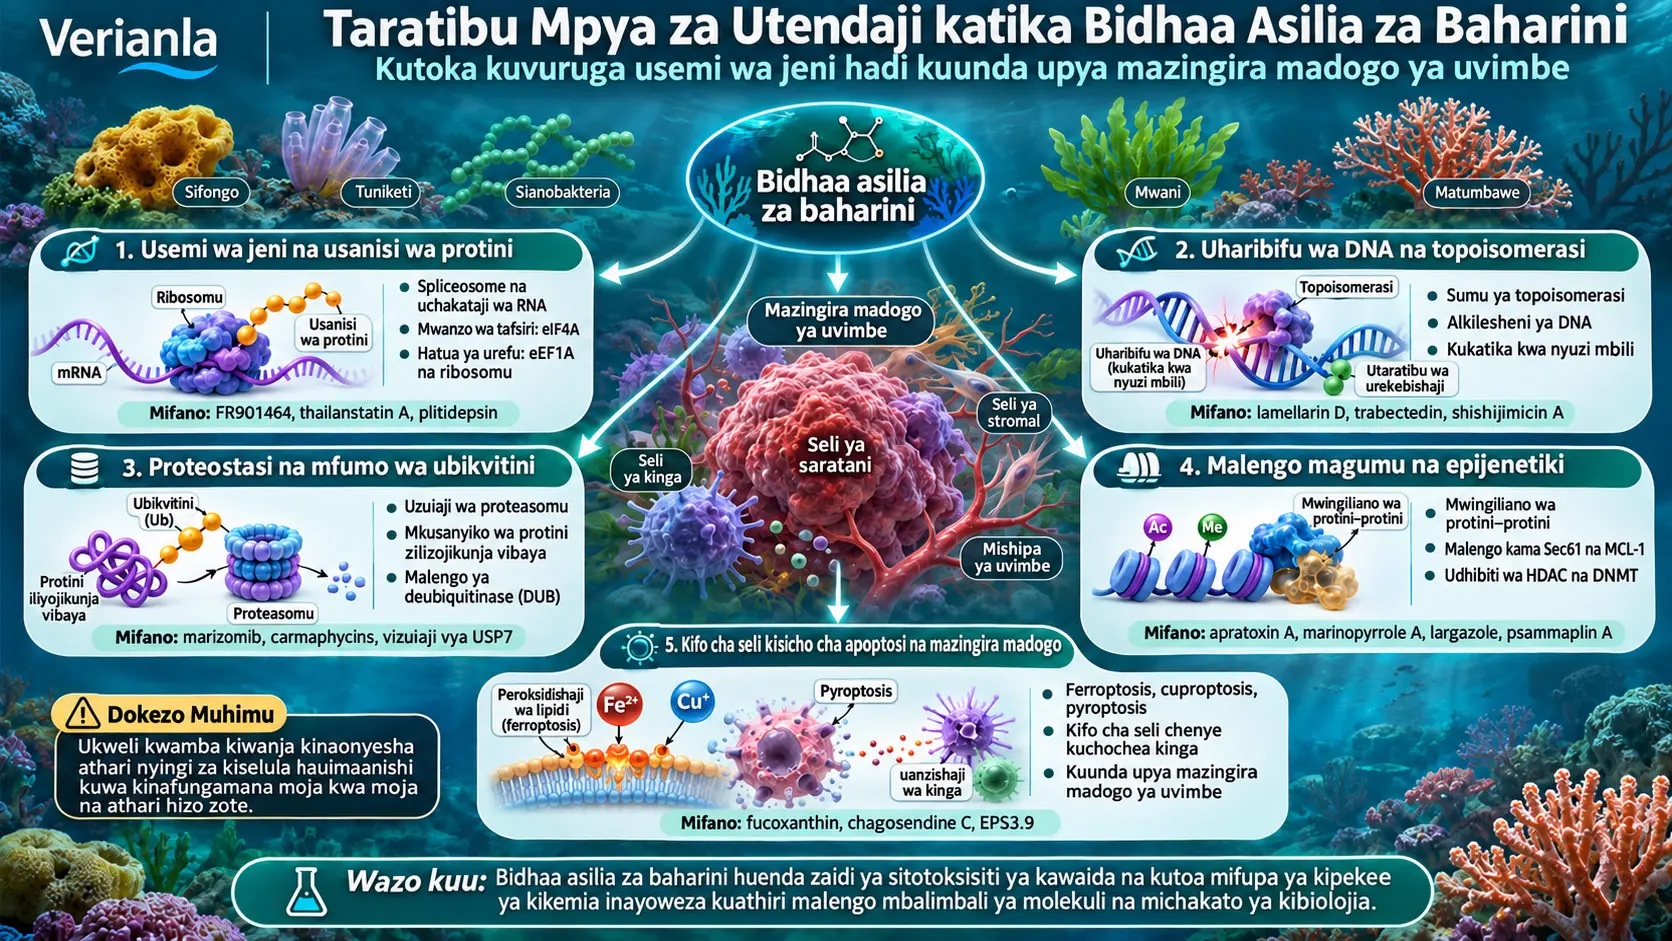
Bidhaa asilia za baharini (marine natural products, MNPs), ni molekuli asilia zenye miundo mbalimbali zinazozalishwa na viumbe wa baharini au vijidudu vyenye asili ya baharini na zinazoweza kuingiliana na malengo ya kibiolojia. Badala ya kutathmini MNPs kwa swali la “zinaua seli gani za saratani na kwa kiwango gani?”, mapitio haya yanazipanga kulingana na malengo yake ya moja kwa moja ya molekuli na taratibu za utendaji (mechanisms of action, MoAs). Makala inaunganisha taratibu nyingi tofauti, ikiwemo ukandamizaji wa spliceosome, kuzuia uanzishaji au uendelezaji wa translation, sumu ya topoisomerase, alkylation ya DNA, udhibiti wa proteasome na deubiquitinase, mwingiliano mgumu kulengwa wa protini–protini, vimeng’enya vya epigenetiki na njia za kifo cha seli zisizo za apoptosis kama ferroptoz, cuproptoz au pyroptoz. Utafiti hauzalishi jaribio jipya; ni mapitio yanayosintetisha tafiti za awali za molekuli, seli, wanyama na kliniki kwa mtazamo unaozingatia utaratibu.
Moja ya ujumbe mkuu wa makala ni kwamba thamani ya bidhaa asilia za baharini haitokani tu na sitotoksisiti yake kubwa. Baadhi ya misombo inaweza kufungamana na violesura vya protini–protini, kompleks za ribosomu au mashine za kibiolojia zenye vipengele vingi kama usanisi wa protini ambazo molekuli ndogo za kawaida hupata shida kuzifikia. Kwa mfano, FR901464 na thailanstatin A hulenga uundaji wa spliceosome; pateamine A na hippuristanol huathiri uanzishaji wa translation kupitia eIF4A; plitidepsin huathiri uendelezaji wa protini kupitia eEF1A2; trabectedin hulenga utaratibu wa ukarabati wa DNA unaoambatana na transcription kwa ku-alkylate guanine katika mfereji mdogo wa DNA; marizomib hulenga proteasome; na largazole hulenga HDAC za daraja la I.
Mapitio pia yanaweka mpaka wazi dhidi ya hitimisho potofu kwamba “ikiwa kiwanja kimebadilisha njia kumi tofauti za ishara katika seli, basi kinafungamana moja kwa moja na protini zote kumi”. Mwingiliano wa awali wa kiwanja–protini unaweza kuchochea matokeo mengi ya pili ndani ya seli, kama mwitikio wa msongo, mabadiliko ya transcription, uharibifu wa protini, utoaji wa cytokine na kifo cha seli. Kwa hiyo, shabaha ya kufungamana moja kwa moja lazima itenganishwe na matokeo ya kibiolojia ya downstream.
Katika kiwango cha usemi wa jeni, FR901464 na thailanstatin A huharibu mkusanyiko wa spliceosome kwa kuzuia ulinganifu thabiti wa subcomplex ya SF3b ndani ya U2 snRNP na branch-point sequence, na hivyo kusababisha uchakataji usio sahihi wa RNA kama intron retention na exon skipping. Leucettamine B, kwa upande mwingine, hupunguza phosphorylation ya protini za SR kwa kukandamiza kinase za CLK/DYRK na kufanya uletaji wa U2 snRNP kwenye eneo sahihi kuwa mgumu.
Katika kiwango cha translation, MNP tofauti huingilia nodi tofauti za mchakato huo wa kibiolojia. Pateamine A hutenda kama “molecular clamp” inayostabilisha kiolesura cha eIF4A–RNA, ilhali hippuristanol hufungamana na eneo la carboxyl-terminal la eIF4A na kupunguza kufungamana kwa RNA pamoja na shughuli ya kufungua RNA inayotegemea ATP. Plitidepsin hulenga eEF1A2; psymberin hulenga subunit ya 60S ya ribosomu na peptidyl transferase center. Kwa hiyo, chini ya lebo ya “kizuizi cha usanisi wa protini” kuna taratibu nyingi zinazotofautiana kibayokemia.
Utofauti sawa unaonekana pia katika bidhaa za baharini zinazolenga DNA. Lamellarin D na baadhi ya alkaloidi za pyridoacridine zinaweza kustabilisha kompleks za topoisomerase–DNA cleavage na kuzuia religation. Trabectedin hu-alkylate nafasi ya N2 ya guanine katika eneo la minor groove la DNA, na adduct inayoundwa inapochakatwa na mfumo wa nucleotide-excision-repair unaoambatana na transcription, mipasuko hatari ya DNA inaweza kutokea. Shishijimicin A, kwa upande mwingine, huzalisha radical baada ya Bergman cyclization, huondoa hidrojeni kutoka uti wa mgongo wa DNA na inaweza kusababisha strand break moja kwa moja.
Katika eneo la proteostasis, marizomib imejadiliwa kama kizuizi chenye nguvu cha shughuli za katalitiki za β5, β2 na β1 za 20S proteasome. Chanzo kinatoa IC50=3,5±0,3 nM kwa β5, 28±2 nM kwa β2 na 430±34 nM kwa β1. Uharibifu wa protini unapozuiwa, protini zilizo-ubiquitinishwa au zilizokunjika vibaya hujikusanya, msongo wa retikulamu endoplasmatiki huongezeka na njia za kifo cha seli zinaweza kuchochewa. Kinyume chake, misombo kama Sulawesin A na Spongiacidin C hulenga vimeng’enya vya deubiquitinase kama USP7 vinavyodhibiti minyororo ya ubiquitin, badala ya kufunga proteasome yote, na hivyo kutoa mifano ya uingiliaji teule zaidi wa proteostasis.
Mapitio pia huchunguza malengo ambayo hayana maeneo tendaji ya kawaida ya kimeng’enya au ambayo kihistoria yamechukuliwa kuwa “undruggable” kwa sababu ya nyuso pana za mgusano wa protini–protini. Siladenoserinol A na hoiamide D hulenga mwingiliano wa p53–Hdm2/MDM2; marinopyrrole A na renieramycin T hulenga MCL-1 ya kupinga apoptosis; apratoxin A na coibamide A hulenga mfumo wa Sec61 translocon. Kuongezeka kwa lysosomal degradation ya PD-L1 kupitia ukandamizaji wa DHHC3 palmitoyl-transferase na Benzosceptrin C ni mfano unaoonyesha kwamba taratibu za bidhaa asilia za baharini zinaweza kubadilisha pia mazingira madogo ya kinga nje ya ishara za ndani za seli ya uvimbe.
Katika epigenetiki, metaboliti hai ya thiol ya largazole hukandamiza kwa nguvu vimeng’enya HDAC1–3 vya daraja la I, wakati psammaplin A huonyesha uzuiaji wa HDAC na DNMT. Chanzo kinatoa thamani za IC50 za HDAC1–3 kwa largazole thiol kuwa 0,1–1,7 nM; na IC50 za HDAC na DNMT kwa psammaplin A kuwa 4,2 nM na 18,6 nM mtawalia. Taratibu hizi zinaweza kubadilisha upatikanaji wa chromatin na usemi wa jeni bila kubadilisha mfuatano wa DNA.
Katika sehemu ya kifo cha seli kisicho cha apoptosis, taratibu kama cuproptoz inayohusishwa na chagosendine C–FDX1; ferroptoz inayohusishwa na fucoxanthin; pyroptoz inayosababishwa na EPS3.9 kupitia mhimili wa NLRP3–caspase-1–GSDMD; na deacidification ya lysosome, kupungua kwa chuma na hitilafu ya utendaji wa mitochondria baada ya uzuiaji wa V-ATPase na callyspongiolide zinajadiliwa. Njia hizi huruhusu uchunguzi wa mikakati ya kuua seli za saratani isiyotegemea mhimili wa kawaida wa BCL-2/BAX–caspase.
Hitimisho la kitafsiri la mapitio ni kwamba shughuli kubwa ya kibiolojia pekee haitoshi kwa maendeleo ya dawa. Waandishi wanapanga vikwazo vitatu vikuu kuwa uzalishaji endelevu, kutolingana kwa pharmacokinetics na kuchelewa kutambua shabaha ya molekuli. Fermentation, uzalishaji wa heterolog biosynthetic gene cluster, chemoproteomics, cryo-EM, utabiri wa kimuundo unaosaidiwa na akili bandia na scaffold simplification vinajadiliwa kama zana zinazoweza kupunguza matatizo haya.
Mpaka muhimu zaidi wa tafsiri: Athari za sehemu kubwa ya misombo iliyotajwa katika mapitio hutokana na majaribio ya biokemia ya in vitro, mistari ya seli za saratani, organoid au modeli za wanyama. Ingawa baadhi ya dawa au analogi zenye asili ya baharini zimefikia matumizi ya kliniki au majaribio ya kliniki, hili halimaanishi kwamba kila kiwanja kilichotajwa katika makala ni tiba yenye ufanisi au salama kwa binadamu. Thamani ndogo sana ya IC50, EC50 au Kd pia peke yake haihakikishi ufanisi wa kliniki, usalama wa kitoksikolojia, bioavailability au therapeutic index.
Bidhaa asilia ya baharini ni nini?
Bidhaa asilia za baharini ni metaboliti za pili zinazopatikana kutoka kwa sponge, tunicate, mollusk, matumbawe, mwani, cyanobacteria, actinomycetes, fungus na viumbe wengine wa baharini au vijidudu vinavyohusiana na mazingira ya baharini. Molekuli hizi si lazima ziwe bidhaa za msingi za metabolism zinazohitajika moja kwa moja kwa uhai wa kiumbe; zinaweza kushiriki katika michakato ya kibiolojia kama ushindani, ulinzi, mawasiliano au urekebishaji wa mazingira.
Ushindani mkubwa wa kiikolojia katika mazingira ya bahari, shinikizo kubwa, mwanga unaobadilika, chumvi na mahusiano mbalimbali ya ushirikiano yanaweza kuchangia mageuzi ya mifupa ya molekuli yenye utofauti mkubwa. Mtazamo wa mapitio ni kutathmini utofauti huu wa kimuundo si kama “kemia ya kuvutia” tu, bali pia kama mojawapo ya vyanzo vya uwezo wa kufikia shabaha zisizo za kawaida za kibiolojia.
Makala inakumbusha katika muktadha wa kihistoria dawa muhimu kliniki kama cytarabine, vidarabine, trabectedin na eribulin mesylate zilizotokana na vyanzo vya baharini au bidhaa asilia za baharini. Ziconotide ni mfano wa conopeptide inayotokana na konokono wa baharini Conus magus na imepata idhini ya udhibiti kwa utaratibu wake wa kutuliza maumivu usio wa opioid unaozuia N-type voltage-gated calcium channels katika neuroni za uti wa mgongo.
Utaratibu wa utendaji unamaanisha nini?
Utaratibu wa utendaji, unaeleza ni kupitia mwingiliano gani wa msingi wa molekuli ambapo molekuli hubadilisha mfumo wa kibiolojia na jinsi mwingiliano huo unavyounganishwa na matokeo ya seli yanayofuata. “Huua seli” ni fenotipu; “hufungamana na SF3b na kuvuruga mkusanyiko wa spliceosome” ni maelezo ya kiutaratibu.
Tofauti hii ni muhimu hasa katika utafiti wa bidhaa asilia. Kusimamisha proliferation, kuongeza ROS, kupunguza NF-κB na kusababisha uanzishaji wa caspase kwa molekuli hakumaanishi lazima kuwa ina shabaha nne tofauti za moja kwa moja. Zote zinaweza kuwa matukio ya downstream yanayotokea baada ya uzuiaji wa protini moja ya msingi.
Kwa Nini Shabaha ya Moja kwa Moja ya Bidhaa Asilia ya Baharini si Sawa na Athari ya Downstream?
Shabaha ya moja kwa moja ni protini, kompleks, eneo la DNA au mashine ya kibiolojia ambayo kiwanja hugusa kwanza kimwili au kiutendaji; athari ya downstream ni matokeo ya pili yanayosababishwa na uingiliaji huu wa kwanza katika mitandao ya ishara ndani ya seli. Kwa mfano, uzuiaji wa proteasome ni mwingiliano wa moja kwa moja wa shabaha; kujikusanya kwa protini zilizo-ubiquitinishwa, msongo wa ER, mabadiliko ya NF-κB na apoptosis ni matokeo yanayoweza kufuatia.
Spliceosome ni nini?
Spliceosome, ni kompleks kubwa ya ribonucleoprotein katika seli za eukaryoti inayotoa intron kutoka pre-mRNA na kuunganisha exon. Inaundwa na ribonucleoprotein ndogo za nyuklia kama U1, U2, U4/U6 na U5 snRNP pamoja na protini nyingi za usaidizi.
Jeni linaponakiliwa kutoka DNA hadi RNA, pre-mRNA inayotokea si RNA iliyokomaa inayosimba protini moja kwa moja. Intron lazima ziondolewe katika maeneo sahihi. Uchaguzi usio sahihi wa splice-site, intron retention au exon skipping unaweza kubadilisha sana mfuatano wa protini na kazi ya jeni.
Kwa nini SF3b na branch-point sequence ni muhimu?
Subcomplex ya SF3b ya U2 snRNP hushiriki katika utambuzi wa eneo la branch-point kwenye pre-mRNA. Utaratibu wa FR901464 na thailanstatin A ulioelezwa katika chanzo ni kufanya mkusanyiko unaozunguka SF3b usifanye kazi na kuzuia ulinganifu thabiti wa U2 snRNP na branch-point sequence.
Matokeo ni kusimama kwa mkusanyiko wa spliceosome, kubaki kwa intron, kurukwa vibaya kwa exon na kupungua kwa uzalishaji wa mRNA iliyokomaa. Kupotea kwa isoform sahihi za protini muhimu kwa seli kunaweza kuendelea hadi msongo wa seli, cell-cycle arrest na apoptosis.
Kwa nini Leucettamine B huathiri njia hiyo hiyo kwa namna tofauti?
Leucettamine B haijaelezwa kwa namna ile ile ya kufungamana moja kwa moja na SF3b. Chanzo huiwasilisha kama kizuizi cha nanomolar ya chini cha kinase za CLK4 na DYRK1A: IC50=43,4 nM kwa CLK4 na IC50=74,9 nM kwa DYRK1A. Uzuiaji wa CLK/DYRK hupunguza phosphorylation ya protini za SR splicing, unaweza kuvuruga mahali sahihi pa protini hizi katika kiini na kuzuia uletaji wa U2 snRNP kwenye eneo la branch-point.
Uanzishaji wa translation ni nini?
Uanzishaji wa translation ni hatua ambapo ribosomu hukaa kwenye mRNA, hutambua kodoni sahihi ya kuanza na kuwa tayari kwa usanisi wa protini. Kompleks ya eIF4F ina jukumu muhimu katika mchakato huu; sehemu ya eIF4A ya kompleks ni RNA helicase inayotegemea ATP.
Eneo la 5′ untranslated region la mRNA za oncogene nyingi linaweza kuunda miundo thabiti ya pili ya RNA. eIF4A hufungua miundo hii na kurahisisha ribosomu kuchanganua mRNA. Kwa hiyo, kuzuia eIF4A kunaweza kuleta unyeti hasa katika seli zinazotegemea pato kubwa la translation.
Pateamine A hufanyaje kazi kama “molecular clamp”?
Pateamine A inaelezwa katika chanzo kama interfacial inhibitor inayofungamana kwenye kiolesura kati ya eIF4A na RNA. Sehemu tofauti za molekuli hugusana na besi za RNA na mabaki ya eIF4A, na kustabilisha eIF4A kwenye RNA kama kompleks iliyofungwa isiyo na tija.
Kwa njia hii, kazi ya kawaida ya mzunguko wa eIF4A na matumizi yake tena huzuiwa; uundaji wa 48S pre-initiation complex huvurugika na uanzishaji wa cap-dependent translation hukandamizwa.
Kwa nini utaratibu wa Hippuristanol ni tofauti?
Hippuristanol hufungamana kwa allosteric na eneo la carboxyl-terminal la eIF4A na kuzuia kufungamana kwa RNA. Chanzo kinaripoti kwa uzuiaji wa eIF4A ATPase 50–300 nM kama masafa ya biokemia ya IC50.
Kwa hiyo, Pateamine A inapofunga kompleks ya eIF4A–RNA katika hali isiyofaa, hippuristanol hupunguza moja kwa moja kufungamana kwa eIF4A na RNA na kazi yake ya kufungua RNA. Nodi ile ile ya kibiolojia inalengwa kwa njia mbili tofauti za kiutaratibu.
Elisabatin A hufanya nini?
Elisabatin A inawasilishwa kama kizuizi kinachoshindana na ATP kwa kufungamana na eIF4A1. Matumizi ya ATP yanapozuiwa, shughuli ya helicase na hivyo uanzishaji wa translation huvurugika. Chanzo kinaripoti LD50 ya takriban 40 µM kwa solid tumor cell lines; thamani hii haipaswi kulinganishwa moja kwa moja na IC50 au Kd za aina nyingine za assay.
Hatua ya uendelezaji wa usanisi wa protini ni nini?
Baada ya uanzishaji kukamilika, ribosomu husonga kando ya mRNA na kuongeza amino asidi kwenye mnyororo wa polypeptide unaokua. Hatua hii huitwa translation elongation. eEF1A hushiriki katika kuleta aminoacyl-tRNA kwenye ribosomu; peptidyl transferase center ya ribosomu hushiriki katika kuunda kifungo cha peptide.
Bidhaa asilia za baharini hulenga sehemu tofauti za mfumo huu: Didemnin B na plitidepsin hulenga familia ya eEF1A; viambato vya psymberin, tedanolide na lissoclimide hulenga maeneo ya ribosomu; familia za onnamide na mycalamide huathiri eneo la E-site katika subunit kubwa ya ribosomu.
Didemnin B na plitidepsin
Kwa Didemnin B, chanzo kinaripoti uzuiaji wa PPT1 na eEF1A1; Kd=120 nM hutolewa kwa eEF1A1. Matatizo ya dose-limiting toxicity ya Didemnin B yalisababisha maendeleo ya analogue ya kizazi cha pili, plitidepsin.
Plitidepsin inaelezwa katika chanzo kama molekuli inayofungamana na eEF1A2 na Kd=80 nM hutolewa. Uzuiaji wa eEF1A2 huvuruga kuletwa kwa aminoacyl-tRNA kwenye A-site ya ribosomu.
Chanzo pia kinatoa EC50=0,88 nM kwa plitidepsin katika replikeshini ya SARS-CoV-2. Thamani hii ni ya muktadha maalum wa jaribio la antiviral na haimaanishi dozi ya matibabu ya 0,88 nM kwa maambukizi yote ya virusi kwa binadamu.
Kwa nini Psymberin ni tofauti?
Psymberin au irciniastatin A imehusishwa na 60S ribosomal subunit kubwa na peptidyl transferase center. Chanzo kinaripoti Kd=2,1 nM. Katika majaribio ya Ribosome profiling, kupungua kwa kasi ya elongation katika seli za HCT-116 na 80S stalling kwenye kodoni za AAA-lysine kumeripotiwa.
Chanzo pia kinatoa masafa ya IC50 ya 3–25 nM katika colorectal cancer patient-derived organoid. Hili ni matokeo ya jaribio la organoid; si matokeo ya moja kwa moja ya matibabu ya mgonjwa.
Ramani ya pamoja ya taratibu za usemi wa jeni na usanisi wa protini
Topoisomerase ni nini?
Kufunguka na kujizungusha tena kwa DNA wakati wa replikeshini na transcription husababisha torsional stress. Topoisomerases hutatua mkazo huu wa kimitambo kwa kukata kwa muda na kuunganisha tena mnyororo wa DNA kwa udhibiti.
Topoisomerase ya aina I hukata mnyororo mmoja wa DNA, wakati topoisomerase ya aina II hukata kwa muda minyororo yote miwili. Kwa kawaida DNA iliyokatwa huunganishwa tena kwa ligation. “Sumu ya topoisomerase” badala ya kuizima tu kimeng’enya, hustabilisha cleavage complex ambayo kimeng’enya huunda DNA ikiwa imekatwa na kuzuia DNA kuunganishwa tena.
Replikeshini machinery inapokutana na kompleks hii ya kudumu, DNA double-strand breaks hatari zinaweza kutokea.
Lamellarin D
Lamellarin D inaweza ku-intercalate katika maeneo ya GC-rich DNA kwa sababu ya kiini chake tambarare cha pentacyclic pyrrole na hustabilisha Topo I cleavage complexes. Chanzo kinaripoti masafa ya IC50=10–80 nM katika seli mbalimbali za leukemia, matiti, koloni na melanoma kwenye paneli ya NCI-60.
Sifa ya pili muhimu ya kiwanja ni uwezo wake wa kupunguza P-glycoprotein-mediated drug efflux katika konsentrasheni ya sub-cytotoxic kama 0,1 µM. Mapitio yanatafsiri hali hii kama sifa ya “self-potentiating”: molekuli hulenga Topo I na pia inaweza kupunguza kusukumwa kwake yenyewe nje ya seli.
Kwa nini Trabectedin ni tofauti na vi-alkylate vya kawaida vya DNA?
Ecteinascidin-743 au trabectedin, hufungamana na DNA minor groove na ku-alkylate nafasi ya N2 ya guanine. Adduct inayoundwa inapochakatwa na nucleotide-excision-repair machinery inayohusishwa na transcription, mchakato usio na tija wa futile repair hutokea na double-strand breaks zinaweza kutokea.
Utaratibu huu hauishii kwenye “ku-alkylate DNA” pekee; jaribio la seli kurekebisha uharibifu pia huwa sehemu ya utaratibu wa sitotoksisiti. Mapitio yanataja kuidhinishwa kwa trabectedin kwa advanced soft-tissue sarcoma kama mfano wa uthibitisho wa kliniki wa utaratibu huu.
Shishijimicin A husababishaje uharibifu wa DNA?
Eneo la trisulfide trigger la Shishijimicin A linaweza kusababisha Bergman cyclization baada ya bioreductive activation. 1,4-benzenoid diradical inayotokea huondoa atomi za hidrojeni kutoka uti wa mgongo wa DNA na kuleta strand break.
Chanzo kinaripoti IC50=0,48 pM kwa seli za P388. Kwa kuwa potency hii ya juu sana ya in vitro katika kiwango cha picomolar inaweza pia kuleta hatari kubwa sana ya off-target toxicity kwa tishu za kawaida, mapitio yanajadili mbinu za usafirishaji unaolengwa kwa msingi wa ADC.
Proteostasis ni nini?
Proteostasis, ni kudumisha usawa kati ya usanisi, kukunjika, udhibiti wa ubora na uharibifu wa protini katika seli. Kuondoa protini zilizokunjika vibaya au zisizohitajika tena ni sehemu ya msingi ya mfumo huu.
Katika ubiquitin–proteasome system, protini zinaweza kuwekewa alama kwa minyororo maalum ya ubiquitin. 19S regulatory particle hutambua protini hizi, huzifungua na kuzipeleka kwenye 20S catalytic core. Chanzo kinajadili tofauti maeneo ya katalitiki β5 chymotrypsin-like, β2 trypsin-like na β1 caspase-like ya 20S proteasome.
Marizomib huizuiaje proteasome?
Salinosporamide A au marizomib, ni non-peptidic proteasome inhibitor yenye skeleton asilia ya γ-lactam-β-lactone. Chanzo kinaeleza kwamba kundi la β-lactone carbonyl hupata nucleophilic attack kutoka catalytic Thr1 Oγ hydroxyl katika subunit za proteasome na kuunda covalent ester adduct.
Thamani za IC50 zilizotolewa katika mapitio:
| Shughuli | Subunit | IC50 |
|---|---|---|
| Chymotrypsin-like | β5 | 3,5 ± 0,3 nM |
| Trypsin-like | β2 | 28 ± 2 nM |
| Caspase-like | β1 | 430 ± 34 nM |
Proteasome inapokandamizwa, protini zilizokunjika vibaya na zilizo-ubiquitinishwa hujikusanya. Chanzo kinaunganisha hali hii na ER stress, kuongezeka kwa protini za pro-apoptotic na mabadiliko ya NF-κB survival signaling. Haya ni matokeo ya downstream; shabaha ya moja kwa moja ya marizomib ni proteasome.
Deubiquitinase ni nini?
Deubiquitinases (DUBs), ni vimeng’enya vinavyoweza kuondoa molekuli za ubiquitin kutoka kwenye protini au minyororo ya ubiquitin. Hii inaonyesha kwamba UPS si mfumo wa “kuongeza ubiquitin kwenye protini na kuziharibu kwenye proteasome” pekee; alama za ubiquitin zinaweza kudhibitiwa kila mara.
Chanzo kinaeleza kwamba Sulawesin A ina IC50=2,8 µM kwa USP7; Spongiacidin C ina IC50=3,8 µM kwa USP7 na IC50=16,6 µM kwa USP21. Hyrtioreticulin A, tofauti na DUB ya moja kwa moja, ni mfano unaokandamiza uundaji wa E1–ubiquitin intermediate katika kiwango cha IC50=2,4 µM.
Shabaha “undruggable” inamaanisha nini?
Neno “undruggable” halimaanishi kwamba protini haiwezi kabisa kulengwa na dawa. Kihistoria limetumika kwa malengo yasiyo na mfuko wa kina ulio wazi ambapo molekuli ndogo zinaweza kufungamana, yanayotumia nyuso pana au zinazobadilika za protini–protini, yenye maeneo intrinsically disordered au yasiyo na eneo tendaji la katalitiki.
Mapitio yanajadili madaraja kama transcription factors, GTPases za familia ya RAS, protini adapter, protini za epigenetic reader na wanachama wa familia ya BCL-2 chini ya tatizo hili.
Kuvuruga mwingiliano wa p53–MDM2/Hdm2
Siladenoserinol A inaweza kujaza eneo la hydrophobic N-terminal pocket la Hdm2 na kuvuruga mwingiliano wa protini–protini wa p53–Hdm2; chanzo kinatoa IC50=2,0 µM. Hoiamide D ni scaffold nyingine iliyoripotiwa kuvuruga mwingiliano wa p53–MDM2 katika kiwango cha EC50=4,5 µM kwa kuiga mabaki ya p53 transactivation-domain.
Mantiki ya kitabibu hapa si “kuamsha” p53 moja kwa moja, bali kuondoa mwingiliano wa MDM2/Hdm2 unaoikandamiza na kuachilia kazi ya wild-type p53.
Kwa nini Sec61 ni muhimu kama “bottleneck target”?
Sec61 translocon ni njia kuu ya secreted na membrane proteins kupita kwenye utando wa retikulamu endoplasmatiki. MNPs kama Apratoxin A na coibamide A zinaweza kukandamiza mfumo wa Sec61 na kuzuia maturation na membrane insertion ya protini nyingi kama EGFR, HER2, VEGFR na secreted factors mbalimbali.
Mkakati huu huingilia kizuizi cha pamoja cha biosynthesis badala ya kulenga receptor kadhaa moja moja. Hata hivyo, client repertoire pana pia ni sifa inayohitaji tahadhari kwa upande wa therapeutic window.
MCL-1 inalengwaje?
Inaripotiwa kwamba Marinopyrrole A hufungamana moja kwa moja na BH3 groove ya MCL-1, huvuruga mwingiliano wake na pro-apoptotic BIM/BAK na kuharakisha proteasomal degradation ya MCL-1. Renieramycin T pia imeainishwa katika chanzo kama MCL-1 inhibitor ya moja kwa moja na masafa ya IC50=4,7–98 nM yanaripotiwa kwa tumor cell lines tofauti.
Epigenetiki inamaanisha nini?
Udhibiti wa epigenetiki, ni marekebisho ya molekuli yanayoathiri upatikanaji na kiwango cha usemi wa jeni bila kubadilisha mfuatano wa msingi wa nukleotidi wa DNA. DNA methylation, histone acetylation, methylation na histone modifications nyingine ni sehemu ya tabaka hili.
Vimeng’enya vya HDAC vinaweza kuondoa vikundi vya acetyl kutoka histone; hivyo HDAC inhibition inaweza kubadilisha muundo wa chromatin na usemi wa jeni. Vimeng’enya vya DNMT vinahusishwa na DNA methylation.
Largazole
Largazole ni prodrug. Metaboliti hai ya largazole thiol hu-chelate ioni ya katalitiki ya Zn2+ na hasa kuzuia class I HDAC1–3. Chanzo kinaripoti masafa ya IC50=0,1–1,7 nM na selectivity zaidi ya mara 100 dhidi ya vimeng’enya vya class II.
Mapitio yanaunganisha selectivity hii na p21WAF1/CIP1 na p27KIP1 pamoja na transcriptional reactivation ya jeni kama hizo na G1 arrest. Chanzo pia kinaripoti kwamba katika muktadha wa murine xenograft, konsentrasheni ya metaboliti hai ndani ya uvimbe inaweza kuwa takriban mara 10 zaidi kuliko katika plazma.
Kwa nini Psammaplin A ina athari mbili?
Psammaplin A inajadiliwa kama HDAC na DNA methyltransferase inhibitor. Chanzo kinaripoti IC50=4,2 nM kwa HDAC na IC50=18,6 nM kwa DNMT. Katika ulinganisho wa baadaye, 45 nM kwa HDAC1 na 2,8 µM kwa HDAC6 hutolewa ili kusisitiza class selectivity.
Mapitio yanajadili kulenga tabaka mbili za epigenetiki kwa wakati mmoja kupitia uwezo wa histone hyperacetylation na promoter demethylation kwa pamoja kuunda cooperative de-repression kwenye silenced tumor-suppressor genes.
IC50, EC50, Kd, LC50 na LD50 Zinatofautianaje?
IC50 huonyesha konsentrasheni inayohitajika kuzuia kazi kwa %50, EC50 konsentrasheni inayozalisha %50 ya athari inayopimwa, Kd ni constant ya equilibrium dissociation ya kufungamana kwa ligand–shabaha, LC50 ni konsentrasheni inayosababisha athari lethal kwa %50 ya sampuli katika mfumo wa jaribio, na LD50 hueleza dhana ya %50 lethal dose; kwa kuwa hupima maswali tofauti ya majaribio, si sahihi kutafsiri namba zao moja kwa moja kama mpangilio sawa wa potency.
| Metriki | Hupima nini? | Thamani ya chini kwa kawaida huashiria nini? | Mpaka mkuu wa tafsiri |
|---|---|---|---|
| IC50 | Konsentrasheni inayohitajika kwa uzuiaji wa %50 wa shughuli ya kibiolojia | Potency ya juu zaidi ya uzuiaji ndani ya assay husika | Hutegemea hali za assay na konsentrasheni ya shabaha; si affinity ya kufungamana moja kwa moja |
| EC50 | Konsentrasheni inayozalisha nusu ya athari kubwa inayoweza kupimwa | Konsentrasheni tendaji ya chini zaidi katika mwitikio husika wa kiutendaji | Si sawa na Kd |
| Kd | Tabia ya equilibrium dissociation ya kompleks ya ligand–shabaha | Katika mfumo huo huo kwa kawaida affinity ya equilibrium yenye nguvu zaidi | Haibaini peke yake ufanisi wa seli au dozi ya kliniki |
| LC50 | Konsentrasheni inayosababisha athari lethal katika %50 ya sampuli katika mfumo maalum wa jaribio | Cytotoxic potency ya juu zaidi | Peke yake haitoi taarifa kuhusu selectivity ya shabaha au therapeutic index |
| LD50 | Dhana ya %50 lethal dose | Lethal dose ya chini zaidi | Haiwezi kulinganishwa na metriki nyingine bila kujua kiumbe/assay iliyotumika na ufafanuzi wa dozi |
Kwa mfano, Kd ya kiwanja kuwa 2 nM haimaanishi IC50 yake katika seli pia itakuwa 2 nM. Upenyezaji wa utando wa seli, intracellular concentration, protein binding, metabolism, kiwango cha ATP, abundance ya shabaha na mambo mengine mengi hubadilisha shughuli ya seli.
Kwa nini non-apoptotic cell death inachunguzwa?
Seli za saratani zinaweza kuendeleza ukinzani katika mfumo wa apoptosis dhidi ya p53, BCL-2/BAX, caspase au mitochondrial death machinery. Kwa hiyo, njia tofauti za kifo cha kibayokemia kama ferroptosis, pyroptosis, cuproptosis na lysosome-dependent death zinachunguzwa ili kulenga uvimbe wa apoptosis-resistant.
Cuproptosis
Cuproptosis ni njia ya kifo cha seli kilichodhibitiwa kinachohusiana na shaba. Chanzo kinaeleza kwamba chagosendine C hufungamana na copper chaperone FDX1 kwa Kd=8,31 µM na kuhusishwa na intracellular copper accumulation, lipoylated TCA-cycle protein aggregation na iron–sulfur cluster depletion.
Baada ya mitochondrial collapse, mtDNA inayotoka hadi sitosoli inaweza kuchochea cGAS–STING pathway; hii inajadiliwa kama uhusiano wa downstream unaoweza kubadilisha mazingira madogo ya kinga ya uvimbe kupitia mwitikio wa type I interferon na CD8+ T-cell infiltration.
Ferroptosis
Ferroptosis ni kifo cha seli kilichodhibitiwa kinachohusiana na iron-dependent lipid peroxidation. Chanzo kinaeleza tafiti zinazoripoti, kwa fucoxanthin katika baadhi ya modeli za tongue na ovarian carcinoma, kuongezeka kwa Fe2+, ROS na lipid peroxidation; kupungua kwa Nrf2/HO-1/GPX4 axis na kuongezeka kwa TFR1/p53 kupitia utaratibu wa ferroptotic.
Pyroptosis
Pyroptosis ni kifo cha seli kinachohusiana na caspase za uchochezi na uundaji wa gasdermin pore. Mapitio yanaeleza kwamba exopolysaccharide ya takriban 17 kDa iitwayo EPS3.9 huingiliana na plasma-membrane phospholipids na kuamsha mnyororo wa NLRP3 inflammasome–caspase-1–GSDMD.
Uundaji wa GSDMD pore hurahisisha utoaji wa IL-1β na IL-18; hivyo kifo cha seli kinaweza pia kuwa inflammatory signal inayoathiri innate immune cells zilizo karibu.
Bidhaa Asilia za Baharini Zinawezaje Kuunda Upya Mazingira Madogo ya Uvimbe?
Katika mapitio, uundaji upya wa mazingira madogo ya uvimbe haujaelezwa kwa molekuli moja bali kupitia taratibu tofauti kama kupunguza uthabiti wa PD-L1, utoaji wa DAMP wakati wa immunogenic cell death, dendritic-cell maturation, CD8+ T-cell recruitment na mwitikio wa cGAS–STING/type I interferon; kiwango cha ushahidi wa matokeo haya kinaweza kuwa na kikomo cha utamaduni wa seli au modeli ya mnyama kulingana na kiwanja.
Benzosceptrin C, inaelezwa kama mfano unaokandamiza DHHC3 palmitoyltransferase kwa Kd=385 nM. Kupotea kwa PD-L1 palmitoylation kunaweza kuongeza lysosomal degradation ya protini na hivyo kusaidia kufufua kazi ya CD8+ T-cell.
Naamidine J, hufungamana na CSE1L kwa Kd=5,41 µM na kupunguza SP1 nuclear translocation/transcriptional activity; chanzo pia kinataja tafiti zinazoripoti kupungua kwa PD-L1 expression na kurejeshwa kwa CD8+ cytotoxicity restoration.
Aspercyclicin A, inaelezwa katika chanzo kama molekuli inayosababisha immunogenic, caspase-independent cell death katika masafa ya 3–8 nM kupitia PERK–eIF2α–ATF4/CHOP ER stress. Damage-associated molecular patterns kama uonyeshaji wa calreticulin kwenye uso, utoaji wa HMGB1 na ATP vinaunganishwa na dendritic-cell maturation na CD8+ T-cell priming.
Crassolide imehusishwa na p38α MAPK inhibition, ER stress na immunogenic cell death kupitia calreticulin/HMGB1/ATP. Athari hizi zinaweza kufanya dying tumor cell ionekane zaidi kwa mfumo wa kinga; hata hivyo, matokeo ya preclinical yaliyoripotiwa katika chanzo hayapaswi kutafsiriwa kama mwitikio wa moja kwa moja wa kliniki kwa binadamu.
Mbinu na Matokeo ya Utafiti
1. Muundo wa utafiti
Utafiti huu ni makala ya Review. Waandishi hawakutengeneza sampuli mpya ya majaribio, paneli mpya ya compound screening au cohort mpya ya kliniki. Waliainisha bidhaa asilia za baharini katika fasihi kwa kuzingatia shabaha ya msingi ya molekuli na mchakato mkuu wa kibiolojia.
Chanzo hakitoi sehemu tofauti ya “Materials and Methods” au protokoli ya formal systematic review. PDF haitoi majina ya hifadhidata, tarehe za utafutaji, search strings kamili, PRISMA flow, vigezo vya kuingiza/kutoa au tathmini ya risk-of-bias. Kwa hiyo, haipaswi kutafsiriwa kama meta-analysis ya kiasi ya bidhaa zote asilia za baharini katika fasihi.
2. Uainishaji unaozingatia shabaha
Mpangilio mkuu wa makala hutumia mihimili ifuatayo ya kiutaratibu:
- Kulenga machinery ya usemi wa jeni: splicing, translation initiation, elongation na global protein synthesis.
- Kusababisha genomic instability: sumu ya topoisomerase, DNA intercalation/alkylation na radical-mediated strand break.
- Kubadilisha proteostasis network: proteasome na mifumo ya ubiquitin.
- Kulenga protini au violesura vya protini–protini vilivyochukuliwa kihistoria kuwa vigumu kulengwa na dawa.
- Udhibiti wa epigenetiki.
- Kuchochea njia za non-apoptotic na immunogenic cell-death.
- Kuhamisha taratibu hizi kwenye maendeleo ya dawa kwa upande wa uzalishaji, pharmacokinetics na target deconvolution.
3. Misombo kuu inayolenga usemi wa jeni
| Kiwanja | Shabaha ya msingi / mchakato | Taarifa kuu ya kiasi katika chanzo | Matokeo makuu ya kiutaratibu |
|---|---|---|---|
| FR901464 | SF3b / U2 snRNP mkusanyiko wa spliceosome | Chanzo hakitoi IC50 moja iliyojumuishwa katika sehemu hii | Mis-splicing, intron retention, exon skipping |
| Thailanstatin A | SF3b / spliceosome | Antiproliferative IC50=59–500 nM | Kuvurugika kwa Pre-mRNA splicing |
| Leucettamine B | CLK4 / DYRK1A | 43,4 nM / 74,9 nM | SR protein hypophosphorylation na kuvurugika kwa U2 snRNP recruitment |
| Pateamine A | eIF4A–RNA interfacial complex | Hakuna IC50 moja kuu iliyotolewa katika sehemu ya chanzo | Kuzuia uundaji wa 48S pre-initiation complex |
| Hippuristanol | eIF4A C-terminal domain | ATPase IC50=50–300 nM | Kukandamizwa kwa RNA binding na ATP-dependent unwinding |
| Elisabatin A | eIF4A1, ushindani na kufungamana kwa ATP | LD50≈40 µM katika chanzo | Kuvurugika kwa Translation initiation |
| Didemnin B | PPT1 na eEF1A1 | eEF1A1 Kd=120 nM | Kukandamizwa kwa Translation elongation |
| Plitidepsin | eEF1A2 | Kd=80 nM; chanzo kinatoa EC50=0,88 nM kwa SARS-CoV-2 | Kuvurugika kwa Aminoacyl-tRNA delivery |
| Eudistomin C | 40S ribosomal uS11/RPS14A | P388 IC50=80 nM | Kuzuia 48S complex formation |
| Psymberin | 60S subunit / PTC | Kd=2,1 nM; CRC organoid IC50=3–25 nM | Kupungua kwa kasi ya Elongation na 80S stalling |
| Onnamide A / Theopederin B / Mycalamide A-B | 60S E-site | Inategemea kiwanja | Kufungwa kwa Deacylated tRNA na elongation arrest |
| Tedanolide C / Chlorolissoclimide / Dichlorolissoclimide | Eneo la PTC | Inategemea kiwanja | Kukandamizwa kwa Ribosomal elongation |
| Agelastatin A | Ribosomal PTC | Chanzo kinaripoti nanomolar cytotoxicity | Kukandamizwa kwa Protein translation |
| Girodazole | Eneo la 23S rRNA na ribosomal protein L15 | Hakuna thamani moja kuu iliyotolewa | Kuvurugika kwa Protein synthesis machinery |
4. Misombo kuu inayolenga uadilifu wa DNA
| Kiwanja | Shabaha ya moja kwa moja/kuu | Thamani kuu katika chanzo | Tafsiri |
|---|---|---|---|
| Lamellarin D | Topo I cleavage complex + P-gp | NCI-60 IC50=10–80 nM; athari ya P-gp 0,1 µM | Sumu ya Topo I na kupunguza drug-efflux |
| Sansalvamide | Topo I + Hsp90 | Chanzo kinasisitiza ulengaji wa taratibu nyingi | DNA break na oncoprotein destabilization |
| Makaluvamine G | Topo I / GC-rich DNA | DNA intercalation Ks=20 µM | Topo I inhibition |
| Ascididemin | Topo I na Topo II | Topo II IC50=75 µM | Dual topoisomerase poisoning |
| Wakayin | DNA intercalation + Topo I/II | HCT-116 IC50=1,5 µM | S-phase arrest |
| Thiocoraline A | DNA polymerase α / DNA elongation | Topo II inhibition haijaripotiwa | Kukandamizwa kwa DNA elongation |
| Shermilamine B / Kuanoniamine A | Inahusishwa na Topo II na DNA intercalation | Chanzo kinawasilisha kwa pamoja | Daraja la Pyridoacridine |
| Aaptamine | DNA intercalation; athari nyingi za downstream | Chanzo hakitoi thamani moja kuu ya potency | p21 activation, G2/M arrest na njia nyingine |
| Trabectedin | DNA minor groove, alkylation ya guanine N2 | Chanzo kinataja idhini ya advanced soft-tissue sarcoma | futile repair na DSB kupitia TC-NER |
| Shishijimicin A | Radical-mediated DNA backbone damage | P388 IC50=0,48 pM | DNA strand break baada ya Bergman cyclization |
| Variolin B | CDK1/2/4/7/9 + pseudo-Holliday DNA | NCI-60 IC50=50–100 nM | Cell-cycle inhibition + utaratibu wa genotoxic |
| Fascaplysin | CDK4 + GC-rich DNA | CDK4 IC50=0,35 µM | G2/M arrest na mitochondrial apoptosis |
5. Shabaha za proteostasis
| Kiwanja | Shabaha kuu | Thamani ya chanzo | Sifa ya kiutaratibu |
|---|---|---|---|
| Marizomib | 20S β5, β2 na β1 | 3,5±0,3; 28±2; 430±34 nM | Covalent, uzuiaji mpana wa proteasome |
| Fellutamide B | β5 | IC50=9,4 nM | Hemiacetali inayoweza kurejea |
| Strongylophorines-13/14 | 20S proteasome; pia PTP1B | 20S IC50=2,1 µM; PTP1B=8–9 µM | Shughuli nyingi za kibiolojia |
| Palau'amine | Eneo la 20S β5 | IC50=3 µM | Kuzuia Substrate entry |
| Epoxyphomalin B | 20S proteasome | Kiwango kilichojaribiwa cha 27 µM | Proteasome inhibition |
| Secomycalolide A | 20S chymotrypsin-like β5 | IC50=11 µg/mL | Kukaliwa kwa mfuko kunakoweza kurejea |
| 12R-hydroxy-bromosphaerol | 20S α4–α5 interface | RenG2/BEAS-2B IC50=4,3 µM | Uimarishaji wa konformeshini isiyotenda |
| Neo-kauluamine | 20S α4–α5 interface / CT-L | IC50=0,13 µM | Mfano wa Allosteric interface-targeting |
| Scytonemide A | 20S CT-L | IC50=96 nM | Chanzo kinajadili uwezekano wa covalent mechanism |
| Carmaphycins A/B | β5 | Yeast IC50=2,5 nM | Daraja la Epoxyketone |
| Sulawesin A | USP7 | IC50=2,8 µM | Kukandamizwa kwa MDM2 deubiquitination |
| Spongiacidin C | USP7 / USP21 | 3,8 µM / 16,6 µM | Uzuiaji teule wa DUB |
| Hyrtioreticulin A | E1–ubiquitin intermediate formation | IC50=2,4 µM | Uzuiaji wa hatua ya juu ya ubikuitinesheni |
6. Shabaha ngumu na mwingiliano wa protini–protini
| Kiwanja | Shabaha | Taarifa kuu iliyotolewa katika chanzo |
|---|---|---|
| Siladenoserinol A | p53–Hdm2 PPI | IC50=2,0 µM |
| Dragmacidin D | PP1 | Mapitio yanabainisha hasa kwamba maelezo ya assay hayakutolewa katika uchapishaji asilia |
| Hoiamide D | p53–MDM2 PPI | EC50=4,5 µM |
| Apratoxin A | Sec61/TRAP | IC50 ya sitotoksisiti=0,3–0,5 nM |
| Coibamide A | Sec61 translocon | Kuzuiwa kwa Secreted/membrane protein processing |
| Benzosceptrin C | DHHC3 | Kd=385 nM; athari ya PD-L1 palmitoylation/stability |
| Naamidine J | CSE1L | Kd=5,41 µM; K562 IC50=11,3 µM |
| Marinopyrrole A | MCL-1 BH3 groove | Huvuruga mwingiliano wa MCL-1/BIM-BAK |
| Renieramycin T | MCL-1 | IC50 ya seli za uvimbe=4,7–98 nM |
| Tanzawaic acid D | FOXO1 | Uimarishaji wa kompleksi ya FOXO1–DNA |
7. Misombo ya epigenetiki
| Kiwanja | Shabaha | Potency iliyotolewa katika chanzo |
|---|---|---|
| Largazole | Class I HDAC1–3 | 0,1–1,7 nM |
| Psammaplin A | HDAC + DNMT | 4,2 nM + 18,6 nM |
| Azumamide E | HDAC1–3; HDAC8 na class II dhaifu zaidi | HDAC1–3 takriban 0,1–0,05 µM; HDAC8=3,7 µM |
| Santacruzamate A | HDAC2 | IC50=0,119 nM |
| Microsporin A | HDAC | HDAC mixture IC50=0,14 µM; HDAC8=0,55 µM |
8. Mifano ya kifo cha seli kisicho cha apoptosis
| Kiwanja | Shabaha/njia kuu | Taarifa kuu katika chanzo |
|---|---|---|
| Chagosendine C | FDX1 / cuproptosis | Kd=8,31 µM |
| Kahalalide F | Kupungua kwa ATP, uvimbe wa onkotiki, lisi ya utando | Necrotic death inayopita apoptotic checkpoints |
| Fucoxanthin | Iron/ROS/lipid peroxidation / ferroptosis | Mahusiano ya Nrf2/HO-1/GPX4 na TFR1/p53 |
| EPS3.9 | NLRP3–caspase-1–GSDMD / pyroptosis | Takriban 17 kDa exopolysaccharide |
| Aspercyclicin A | PERK–eIF2α–ATF4/CHOP / immunogenic death | Chanzo kinatoa masafa ya kazi ya 3–8 nM |
| Crassolide | p38α MAPK / immunogenic death | Uhusiano wa ER stress, calreticulin, ATP na HMGB1 |
| Monanchoxymycalin C | Uanzishaji wa JNK1/2 | Kifo kisichotegemea kaspasi |
| Callyspongiolide | V-ATPase | V-ATPase IC50≈10 nM; lymphoma cell IC50=60–70 nM |
9. Tafsiri ya kliniki na translational ya mapitio
Waandishi wanasisitiza kwamba kuwepo kwa potency ya juu sana katika bidhaa asilia za baharini hakukamilishi kiotomatiki mnyororo wa maendeleo ya dawa. Mapitio yanasema kuwa idadi ya marine-derived compounds iliyofikia idhini ya udhibiti ni chini ya 20.
Tofauti hii inaelezwa na vikwazo vitatu vikuu vya translational:
- Uendelevu wa ugavi: misombo mingi hupatikana kwa kiasi kidogo sana katika viumbe asilia na ukusanyaji kutoka mazingira ya porini si endelevu kiuchumi au kiikolojia.
- Kutolingana kwa farmakokinetiki: matatizo kama ugumu mkubwa wa molekuli, oral bioavailability ndogo, hepatic clearance ya haraka au proteolytic degradation yanaweza kubadilisha molekuli yenye nguvu in vitro kuwa mgombea dhaifu wa dawa.
- Kuchelewa kwa utambuzi wa lengo: phenotypic screening inaweza kuonyesha athari kubwa, lakini kutambua ni protini gani shabaha ya msingi kunaweza kuchukua miaka na kuchelewesha medicinal chemistry ya kimantiki.
Ni Vikwazo Gani Vitatu Vikuu Vinavyozuia Bidhaa Asilia za Baharini Kufikishwa Kliniki?
Kwa mujibu wa mjadala wa mapitio, vikwazo vitatu vikuu ni upatikanaji endelevu na unaoweza kupanuliwa wa dutu, sifa zisizofaa za pharmacokinetics licha ya shughuli kubwa ya kibiolojia, na tatizo la target deconvolution linalochelewesha kufika kutoka athari ya phenotypic hadi shabaha halisi ya molekuli.
10. Uzalishaji endelevu
Uvunaji asilia kutoka sponge za baharini au viumbe vingine vinavyokua polepole hauwezi kutoa uzalishaji wa kiwango cha kliniki kwa molekuli nyingi zenye nguvu. Chanzo kinaonyesha ukuzaji wa vijidudu vinavyoweza kufugwa kama Salinispora tropica, mtengenezaji wa marizomib, katika mifumo ya fermentation kama suluhisho muhimu.
Kuhamisha biosynthetic gene clusters katika heterolog hosts kama E. coli, yeast au engineered Streptomyces ni mkakati wa synthetic biology unaoweza kuruhusu uzalishaji bila kuvuna kiumbe asilia cha molekuli.
11. Chemoproteomics na cryo-EM
Katika phenotypic screening kifo cha seli kinaweza kuonekana lakini shabaha ikawa haijulikani. Mapitio yanatathmini matumizi ya activity-based chemoproteomics katika kutambua shabaha kama eEF1A2 na cryo-electron microscopy katika kuchunguza miundo ya MNP–target complex kwa azimio linalokaribia kiwango cha atomu kama maendeleo muhimu.
Taarifa hii inaweza kumsaidia medicinal chemist kuelewa ni kundi gani la kikazi linaingiliana na uso gani wa protini badala ya kubadilisha molekuli kwa upofu.
12. Akili bandia na utabiri wa kimuundo
Mapitio yanajadili kwamba zana za utabiri wa protini/muundo zinazosaidiwa na AI kama AlphaFold3 na RoseTTAFold zinaweza kutumika kuweka kipaumbele kwa wagombea wa MNP–protein interaction. Chanzo kinatoa tathmini thabiti kwamba njia hii inaweza kupunguza mzigo wa usanisi.
Sehemu hii haimaanishi kwamba makala yenyewe ilitengeneza modeli mpya ya AI. AI inajadiliwa katika mapitio haya kama moja ya teknolojia saidizi za drug-discovery pipeline ya baadaye.
13. Urahisishaji wa kiunzi cha molekuli
Si kila atomu ya bidhaa asilia yenye muundo tata lazima iwe muhimu kwa shabaha ya kibiolojia. Njia inayopendekezwa katika mapitio ni kupunguza sehemu zinazofanya usanisi kuwa mgumu na pharmacokinetics kuwa mbaya huku “mechanistic essence” au pharmacophore kuu ikihifadhiwa.
Hata hivyo, selectivity na target binding zinaweza kupotea muundo unaposahilishwa. Kwa hiyo scaffold simplification si kupunguza ukubwa wa molekuli tu, bali ni mchakato wa medicinal chemistry unaoongozwa na uhusiano wa muundo–shughuli.
14. Maeneo ya matumizi nje ya onkolojia
Makala inasisitiza hasa kwamba bidhaa asilia za baharini hazijawekewa kikomo na saratani pekee. Utaratibu wa antiviral protein-synthesis wa plitidepsin, muktadha wa neuroinflammation wa HDAC2 selectivity ya Santacruzamate A na athari za antibiofilm za baadhi ya marine alkaloids hutolewa kama mifano ya mtazamo huu wa “mechanism-first, indication-second”.
Matokeo yanayoungwa mkono na utafiti
- Bidhaa asilia za baharini hutoa scaffold zenye miundo mbalimbali zinazoingilia shabaha nyingi tofauti za molekuli na michakato ya kibiolojia.
- Baadhi ya MNP zinaweza kufikia shabaha ngumu kama violesura vya RNA–protein, maeneo ya ribosomu na protein–protein interaction surfaces, tofauti na maeneo tendaji ya kawaida ya vimeng’enya.
- Spliceosome, eIF4A/eEF1A, ribosomal PTC, topoisomerase, proteasome, DUB, MCL-1, Sec61, HDAC/DNMT na non-apoptotic death pathways mbalimbali zinaungwa mkono katika mapitio kama madaraja tofauti ya kiutaratibu.
- Kuhifadhi tofauti kati ya shabaha ya msingi ya molekuli na signaling/fenotipu ya downstream ni msingi wa tafsiri ya utaratibu.
- Nanomolar au picomolar in vitro potency imeripotiwa katika fasihi kwa MNP mbalimbali.
- Baadhi ya misombo au analogi zenye asili ya baharini zimefikia idhini ya udhibiti au hatua za maendeleo ya kliniki.
- Taratibu za kifo cha seli kisicho cha apoptosis na immunogenic cell death hutoa njia mbadala za kuchunguza biolojia ya saratani ya apoptosis-resistant.
- Target identification, cryo-EM, chemoproteomics, synthetic biology na zana za kompyuta ni nyongeza muhimu za mchakato wa maendeleo ya bidhaa asilia.
- Uzalishaji endelevu, pharmacokinetics na target deconvolution ni vikwazo vikuu vya translational.
Ujumla ambao utafiti hauungi mkono
- Haijaonyeshwa kwamba bidhaa zote asilia za baharini katika makala ni dawa salama au zenye ufanisi kwa binadamu.
- IC50 au Kd ya chini peke yake si ushahidi wa mafanikio ya kliniki.
- Matokeo ya in vitro cytotoxicity si ufanisi wa matibabu kwa mgonjwa.
- Matokeo ya Mouse/xenograft antitumor si matokeo ya kliniki kwa binadamu.
- Mabadiliko ya expression au phosphorylation ya protini hayathibitishi peke yake kwamba kiwanja hufungamana moja kwa moja na protini hiyo.
- Kutokea kwa kifo cha seli kisicho cha apoptosis hakumaanishi kwamba utaratibu huo huo utafanya kazi katika uvimbe wote.
- Kugunduliwa kwa scaffold inayolenga shabaha “undruggable” hakumaanishi kwamba ni dawa iliyoboreshwa.
- Kuwa asilia kwa molekuli yenye asili ya baharini hakumaanishi kuwa ni salama kitoksikolojia.
- Kauli za hatua ya kliniki katika chanzo hazijathibitishwa upya katika kazi hii ya Verianla kwa meta-analysis huru ya clinical-trial registry.
- Kwa kuwa mapitio haya si formal meta-analysis, thamani za IC50 kutoka tafiti tofauti hazipaswi kutumiwa kama mpangilio wa kulinganisha potency wa jaribio moja la pamoja.
Nguvu ya utafiti
Nguvu ya mapitio ni kupanga mamia ya tafiti za bidhaa asilia kuzunguka swali “ni nodi gani ya molekuli inayovurugika?” badala ya kuzipanga tu kwa muundo au asili ya kiumbe. Mtazamo huu hutoa muundo wa kujifunza unaozingatia zaidi utaratibu kuliko orodha za cytotoxicity.
Pia huunganisha katika ramani moja ya utaratibu michakato kama translation, DNA damage, proteostasis, PPI, epigenetics na regulated cell death ambayo kwa kawaida huchunguzwa katika fasihi tofauti.
Mapungufu makuu ya utafiti
Kwa sababu mapitio hayaripoti protokoli ya utafutaji ya formal systematic-review, haijaelezwa kwa namna inayoweza kurudiwa ni machapisho gani yalichaguliwa kutoka hifadhidata gani na kwa vigezo gani. Hali hii hufanya iwe vigumu kutathmini kwa kiasi jinsi upeo wa fasihi ulivyo kamili.
Kizuizi cha pili ni kwamba ushahidi uliokusanywa hauko katika kiwango sawa cha majaribio. Baadhi ya taarifa hutoka kwenye pure protein binding assay, nyingine tumor cell line, nyingine organoid, murine model au tafiti za kliniki. Kwa hiyo si sahihi kisayansi kulinganisha thamani zote za potency katika jedwali moja moja kwa moja kwa mpangilio wa ukubwa.
Kizuizi cha tatu ni kwamba katika baadhi ya misombo shabaha ya msingi inaungwa mkono na ushahidi mkubwa wa kimuundo/kibiofizikia, wakati katika mifano mingine taarifa ya utaratibu ni ya moja kwa moja kidogo au haijakamilika. Mapitio yenyewe yanaeleza wazi kwamba kwa Dragmacidin D maelezo ya assay hayakutolewa katika utafiti asilia.
Kizuizi cha nne ni kuwepo kwa ujumla wa upeo katika baadhi ya maelezo ya vielelezo vya chanzo. Hasa, kauli ya caption ya Kielelezo 2 inayofafanua compounds 4–18 zote kama interfacial translation inhibitors zinazofungamana na eIF4A haiendani kikamilifu na taratibu za eEF1A na ribosomal PTC/E-site katika maandishi makuu.
Maelezo ya Chanzo na Mbinu
Utafiti asilia: Marine Natural Products with Novel Mechanisms of Action: From Disrupting Gene Expression to Reshaping the Tumor Microenvironment and Beyond
Waandishi: Jinqi Huang; Jinli Liu; Chuanke Chong; Yuewei Guo; Xin Jin.
Mpangilio wa waandishi: Jinqi Huang → Jinli Liu → Chuanke Chong → Yuewei Guo → Xin Jin.
Mchango sawa: PDF ya chanzo haijaonyesha alama ya uandishi wa kwanza wa pamoja/mchango sawa.
Waandishi wa mawasiliano: Chuanke Chong; Yuewei Guo; Xin Jin.
Ushirika 1: School of Pharmaceutical Sciences & Institute of Materia Medica, Shandong First Medical University & Shandong Academy of Medical Sciences, Jinan 250117, China.
Ushirika 2: Shandong Laboratory of Yantai Drug Discovery, Bohai Rim Advanced Research Institute for Drug Discovery, Yantai 264117, China.
Jarida: Chemistry.
Mchapishaji: MDPI, Basel, Switzerland.
Juzuu / toleo / makala: Volume 8, Issue 10, Article 145.
DOI: 10.3390/chemistry8100145.
Tarehe ya kuwasilisha: 11 Septemba 2026.
Tarehe ya marekebisho: 14 Oktoba 2026.
Tarehe ya kukubaliwa: 16 Oktoba 2026.
Tarehe ya kuchapishwa: 20 Oktoba 2026.
Aina ya chanzo: Review; mapitio mapana yanayosintetisha shabaha za molekuli na taratibu za utendaji wa bidhaa asilia za baharini kwa mtazamo unaozingatia shabaha.
Hali ya uhakiki: Ni makala ya jarida iliyochapishwa yenye tarehe za kuwasilisha, kurekebisha na kukubaliwa.
Kiungo rasmi: https://doi.org/10.3390/chemistry8100145
Leseni: Creative Commons Attribution (CC BY).
Ufadhili: Key R&D Program of Shandong Province, 2024CXPT029 na 2025CXPT012; National Natural Science Foundation of China, Grant No. 82304372.
Bodi ya Mapitio ya Taasisi:Haitumiki.
Ridhaa yenye ufahamu:Haitumiki.
Upatikanaji wa data: Chanzo kinatoa kauli “All data are included in this review”.
Mgongano wa maslahi: Waandishi wametangaza kutokuwepo kwa mgongano wa maslahi.
Michango ya waandishi: Jinqi Huang na Jinli Liu conceptualization; Yuewei Guo na Xin Jin original draft preparation, review/editing na visualization; Chuanke Chong, Yuewei Guo na Xin Jin supervision; Yuewei Guo na Xin Jin project administration na funding acquisition. Chanzo kinasema kwamba waandishi wote walichangia maandalizi ya mapitio.
Dokezo la mbinu ya formal systematic-review: Ingawa makala katika abstract inaeleza MNPs kwa kauli “systematically groups”, PDF haitoi protokoli tofauti ya PRISMA, orodha ya search database, search string, mtiririko wa uteuzi wa tafiti au mbinu ya meta-analysis. Kwa hiyo Verianla haiainishi upya utafiti huu kama formal systematic review/meta-analysis.
Dokezo la ulinganifu wa ndani wa Kielelezo 2: Caption ya Kielelezo 2 inaeleza compounds 4–18 kwa pamoja kama interfacial translation inhibitors zinazofungamana na eIF4A. Hata hivyo, Sehemu 2.3 na 2.4 za makala hiyo hiyo zinaeleza wazi katika kundi la 7–18 shabaha tofauti kama eEF1A1/eEF1A2, 40S uS11, 60S PTC, E-site, 23S rRNA na L15. Verianla imetumia sehemu za maandishi ya kina kama msingi wa maelezo makuu ya utaratibu na haijawasilisha kimya kimya upeo wa caption kama “chanzo kilichosahihishwa”.
Dokezo la kiwango cha ushahidi: Matokeo yaliyoletwa katika mapitio haya yanatoka katika viwango tofauti, ikiwemo pure protein na biochemical binding assay, mistari ya seli za saratani, patient-derived organoid, modeli za wanyama na muktadha wa kliniki. Kwa hiyo namba zilizo katika jedwali moja si data za kulinganisha zilizozalishwa katika maabara moja kwa protokoli moja.
Dokezo la metriki za kifamasia: IC50, EC50, Kd, LC50 na LD50 ni vipimo tofauti vya majaribio. Hata kama thamani zake za namba ziko katika kitengo kilekile, hazipaswi kutumiwa kwa kubadilishana.
Mpaka wa shabaha ya moja kwa moja: Pathway au protini zote zinazobadilika baada ya kiwanja hazijachukuliwa kama shabaha za moja kwa moja za molekuli. Kwa mujibu wa tahadhari ya mapitio yenyewe, target engagement ya msingi imetenganishwa na downstream cellular response.
Mpaka wa tafsiri ya kliniki: Chanzo kina kauli za regulatory approval au clinical-stage kwa baadhi ya misombo. Maandishi haya ya Verianla hayapanui kauli hizo kwa ukaguzi huru wa clinical registry na hayapeleki athari ya kliniki zaidi ya dai la chanzo.
Dokezo la hisabati/formula: Hakuna modeli kuu ya hisabati au mlinganyo wa kisayansi uliowekewa namba katika mapitio ya chanzo. Kwa hiyo Verianla haijaunda formula ya pharmacodynamics nje ya chanzo; imeeleza dhana za IC50, EC50, Kd, LC50 na LD50 kwa maandishi.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *