


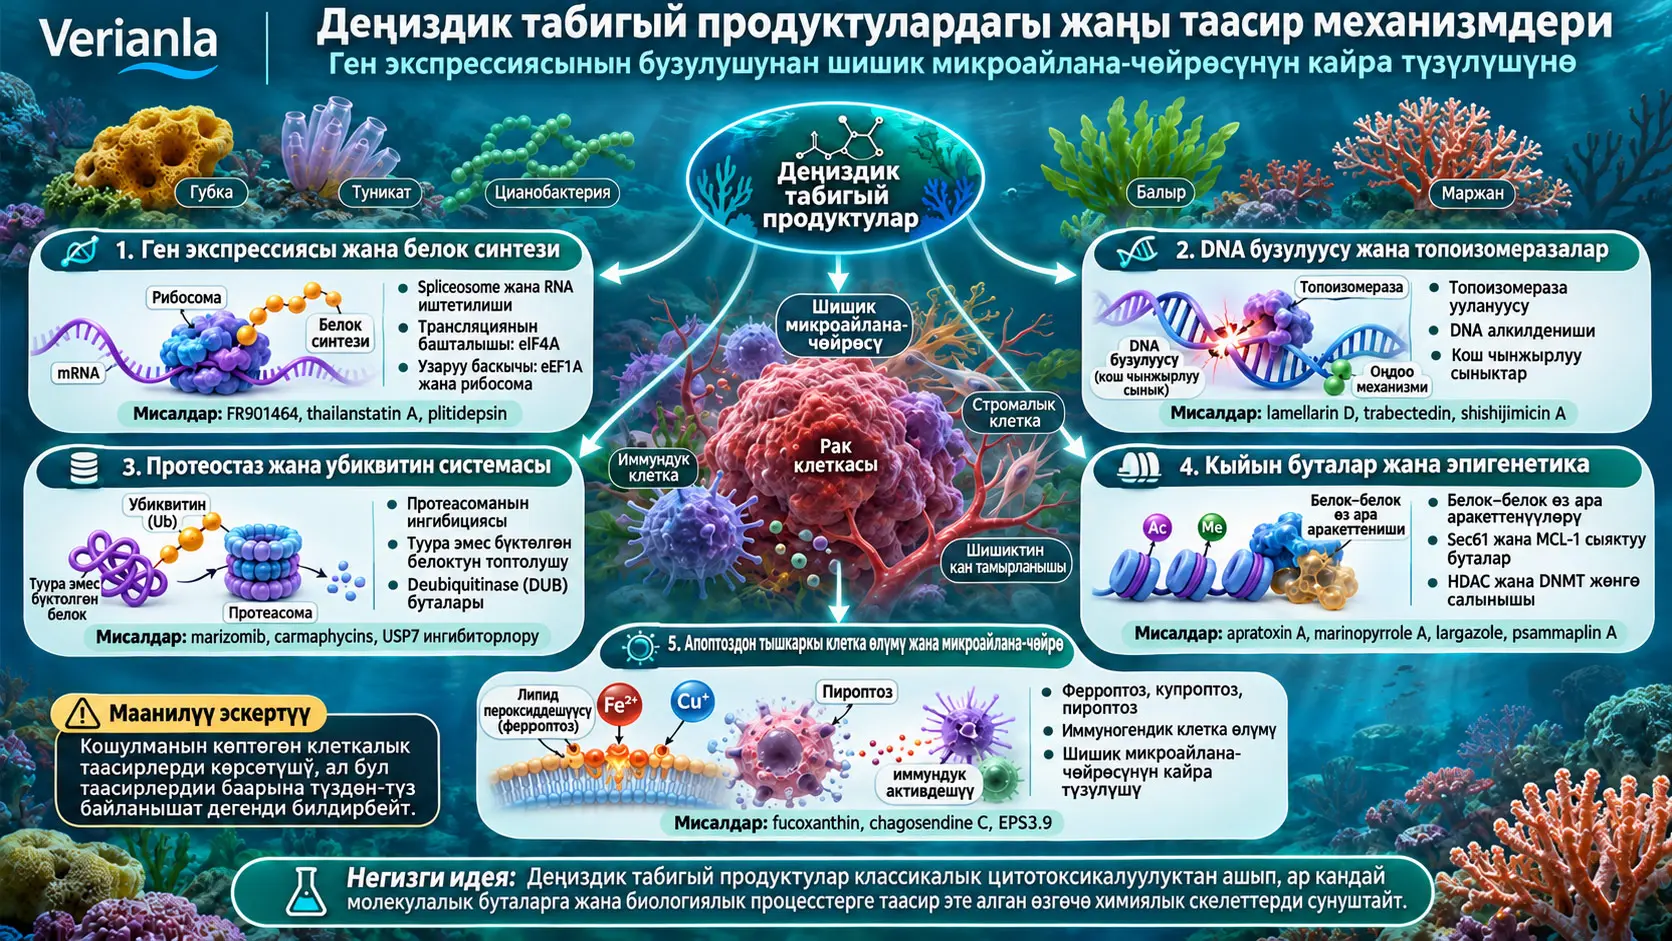
Деңиздик табигый продуктулар (marine natural products, MNPs), деңиз организмдери же деңизден келип чыккан микроорганизмдер тарабынан өндүрүлүп, биологиялык буталар менен өз ара аракеттене алган түзүлүшү ар түрдүү табигый молекулалар. Бул сереп MNPлерди жөн гана “кайсы рак клеткасын канчалык өлтүрөт?” деген суроо менен баалоонун ордуна, алардын түз молекулалык буталары жана таасир механизмдери (mechanisms of action, MoAs) боюнча классификациялайт. Макала spliceosome басылышы, трансляциянын башталышы же узарышынын бөгөттөлүшү, топоизомераза уулануусу, ДНК алкилденүүсү, протеасома жана deubiquitinase жөнгө салынышы, дарылоого кыйын белок–белок өз ара аракеттенүүлөрү, эпигенетикалык ферменттер жана ferroptoz, cuproptoz же pyroptoz сыяктуу апоптоздон тышкаркы клетка өлүмү жолдорун кошкондо абдан ар түрдүү механизмдерди бириктирет. Изилдөө жаңы эксперимент жаратпайт; мурдагы молекулалык, клеткалык, жаныбардык жана клиникалык изилдөөлөрдү механизм-борборлуу түрдө синтездеген сереп болуп саналат.
Макаланын негизги билдирүүлөрүнүн бири деңиздик табигый продуктулардын баалуулугу алардын жогорку цитотоксикалуулугу менен гана түшүндүрүлбөй турганы. Айрым кошулмалар классикалык кичине молекулалар жетиши кыйын болгон белок–белок интерфейстерине, рибосомалык комплекстерге же белок синтези сыяктуу көп компоненттүү биологиялык машиналарга байланыша алат. Мисалы, FR901464 жана thailanstatin A spliceosome түзүлүшүн; pateamine A жана hippuristanol eIF4A аркылуу трансляциянын башталышын; plitidepsin eEF1A2 аркылуу белок узарышын; trabectedin ДНКнын кичине оюгундагы гуанинди алкилдеп транскрипция менен байланышкан ДНК оңдоо механизмин; marizomib протеасоманы; largazole болсо I класстагы HDACтерди бутага алат.
Сереп ошондой эле “бир кошулма клеткада он башка сигналдык жолду өзгөрттү, демек он белоктун баарына түз байланышат” деген туура эмес жыйынтыкка так чек коёт. Баштапкы кошулма–белок өз ара аракети клетка ичинде стресс жообу, транскрипциялык өзгөрүүлөр, белок бузулушу, цитокин бөлүнүшү жана клетка өлүмү сыяктуу көптөгөн экинчи натыйжаларды козгой алат. Ошондуктан түз байланыш бутагы менен төмөнкү агымдагы биологиялык натыйжа өзүнчө каралышы керек.
Ген экспрессиясы деңгээлинде FR901464 жана thailanstatin A U2 snRNP ичиндеги SF3b субкомплексинин branch-point sequence менен туруктуу жупташуусун бөгөттөп, spliceosome чогулушун бузат; intron retention жана exon skipping сыяктуу туура эмес РНК иштетүүгө алып келет. Leucettamine B болсо CLK/DYRK киназаларын басып, SR белокторунун фосфорлануусун азайтат жана U2 snRNPнин туура жерге тартылышын кыйындатат.
Трансляция деңгээлинде ар кандай MNPлер ошол эле биологиялык процесстин ар башка түйүндөрүнө кийлигишет. Pateamine A eIF4A–РНК интерфейсин турукташтырган “molecular clamp” сыяктуу аракеттенсе, hippuristanol eIF4Aнын карбоксил-терминалдык аймагына байланып, РНК байланышын жана ATP-каранды РНК ачуу ишин чектейт. Plitidepsin eEF1A2ни; psymberin болсо рибосоманын 60S суббирдигин жана peptidyl transferase centerди бутага алат. Демек, “белок синтези ингибитору” деген аталыштын астында биохимиялык жактан бири-биринен айырмаланган көп механизм бар.
ДНКны бутага алган деңиз продуктуларында да ушундай ар түрдүүлүк бар. Lamellarin D жана айрым pyridoacridine алкалоиддери топоизомераза–ДНК cleavage комплекстерин турукташтырып, кайра лигирлөөнү бөгөттөшү мүмкүн. Trabectedin ДНКнын minor groove аймагында гуаниндин N2 ордун алкилдеп, пайда болгон adduct транскрипция менен байланышкан nucleotide-excision-repair системасы тарабынан иштетилгенде өлүмгө алып келүүчү ДНК үзүлүүлөрү жаралышы мүмкүн. Shishijimicin A болсо Bergman cyclizationдан кийин радикал түзүп, ДНК каркасынан суутек ажыратып, түз strand break пайда кылышы мүмкүн.
Протеостаз тармагында marizomib 20S протеасоманын β5, β2 жана β1 каталитикалык активдүүлүктөрүн баскан күчтүү ингибитор катары каралган. Булак β5 үчүн IC50=3,5±0,3 nM, β2 үчүн 28±2 nM жана β1 үчүн 430±34 nM маанилерин берет. Белок бузулушу бөгөттөлгөндө ubiquitinделген же туура эмес бүктөлгөн белоктор топтолот, эндоплазмалык ретикулум стресси күчөйт жана клетка өлүмүнүн жолдору ишке кириши мүмкүн. Ал эми Sulawesin A жана Spongiacidin C сыяктуу кошулмалар бүт протеасоманы жабуунун ордуна ubiquitin чынжырларын жөнгө салган USP7 сыяктуу deubiquitinase ферменттерин бутага алып, тандалма протеостаз кийлигишүүсүнүн мисалдарын берет.
Сереп классикалык фермент активдүү борборлору жок же кең белок–белок байланыш беттеринен улам тарыхый жактан “undruggable” деп эсептелген буталарды да карайт. Siladenoserinol A жана hoiamide D p53–Hdm2/MDM2 өз ара аракеттенүүсүн; marinopyrrole A жана renieramycin T анти-апоптотикалык MCL-1ди; apratoxin A жана coibamide A болсо Sec61 translocon системасын бутага алат. Benzosceptrin Cнин DHHC3 palmitoyl-transferaseти басып, PD-L1дин лизосомалык бузулушун күчөтүшү деңиздик табигый продуктулардын механизмдери шишик клеткасынын өз сигналдарынан тышкары иммундук микроайлана-чөйрөнү да өзгөртө аларын көрсөткөн мисалдардын бири.
Эпигенетика тармагында largazoleдун активдүү thiol метаболити I класстагы HDAC1–3 ферменттерин күчтүү басса, psammaplin A HDAC жана DNMT ингибициясын тең көрсөтөт. Булак largazole thiol үчүн HDAC1–3 IC50 маанилерин 0,1–1,7 nM; psammaplin A үчүн HDAC жана DNMT IC50 маанилерин тиешелүүлүгүнө жараша 4,2 nM жана 18,6 nM деп берет. Бул механизмдер ДНК ырааттуулугун өзгөртпөстөн хроматиндин жеткиликтүүлүгүн жана ген экспрессиясын өзгөртө алат.
Апоптоздон тышкаркы клетка өлүмү бөлүмүндө chagosendine C–FDX1 менен байланышкан cuproptoz; fucoxanthin менен байланышкан ferroptoz; EPS3.9дун NLRP3–caspase-1–GSDMD огу аркылуу pyroptoz түзүшү; callyspongiolideдин V-ATPase ингибициясынан кийин лизосомалык деацидификация, темир азайышы жана митохондриялык функция бузулушун түзүшү сыяктуу механизмдер талкууланат. Бул жолдор классикалык BCL-2/BAX–caspase огунан көз каранды болбогон рак клеткасы өлүм стратегияларын изилдөөгө мүмкүнчүлүк берет.
Серептин трансляциялык жыйынтыгы күчтүү биологиялык активдүүлүктүн өзү гана дары иштеп чыгууга жетишсиз экендиги. Авторлор үч негизги тоскоолдукту туруктуу өндүрүш, фармакокинетикалык шайкешсиздик жана молекулалык бутанын кеч аныкталышы катары топтоштурат. Ферментация, heterolog biosynthetic gene cluster өндүрүшү, chemoproteomics, cryo-EM, жасалма интеллект колдогон түзүлүш божомолу жана scaffold simplification ыкмалары бул көйгөйлөрдү азайта ала турган каражаттар катары талкууланат.
Эң маанилүү түшүндүрмө чеги: Серепте айтылган кошулмалардын көпчүлүк таасирлери in vitro биохимиялык эксперименттерден, рак клетка линияларынан, органоиддерден же жаныбар моделдеринен алынган. Айрым деңизден келип чыккан дарылар же аналогдор клиникалык колдонууга же клиникалык изилдөөлөргө жетсе да, бул макалада аталган ар бир кошулма адамдарда натыйжалуу же коопсуз дарылоо дегенди билдирбейт. IC50, EC50 же Kd маанисинин өтө төмөн болушу да өзүнөн өзү клиникалык натыйжалуулукка, токсикологиялык коопсуздукка, биожеткиликтүүлүккө же терапиялык индекске кепилдик бербейт.
Деңиздик табигый продукт деген эмне?
Деңиздик табигый продуктулар — губкалардан, туникаттардан, моллюскалардан, кораллдардан, балырлардан, cyanobacteria, actinomycetes, fungusтардан жана башка деңиз организмдеринен же деңиз чөйрөсүнө байланышкан микроорганизмдерден алынган экинчи метаболиттер. Бул молекулалар организмдин жашоосу үчүн сөзсүз керек негизги метаболизм продуктулары болууга тийиш эмес; атаандаштык, коргонуу, байланыш же айлана-чөйрөгө адаптация сыяктуу биологиялык процесстерде роль ойной алышат.
Деңиз чөйрөсүндөгү күчтүү экологиялык атаандаштык, жогорку басым, өзгөрмө жарык, туздуулук жана ар түрдүү симбиотикалык байланыштар абдан ар түрдүү молекулалык каркастардын эволюциясына салым кошушу мүмкүн. Серептин ыкмасы бул түзүлүштүк айырманы жөн гана “кызыктуу химия” катары эмес, адаттан тыш биологиялык буталарга жетүү мүмкүнчүлүгүнүн булактарынын бири катары баалайт.
Макала тарыхый контекстте cytarabine, vidarabine, trabectedin жана eribulin mesylate сыяктуу деңизден келип чыккан же деңиздик табигый продуктулардан иштелип чыккан клиникалык жактан маанилүү дарыларды эске салат. Ziconotide болсо Conus magus деңиз үлүлүнөн келип чыккан conopeptide мисалы болуп, жүлүн нейрондорундагы N-тибиндеги voltage-gated calcium channelsды бөгөттөгөн опиоиддик эмес аналгетикалык механизми менен жөнгө салуучу жактырууга жеткен.
Таасир механизми деген эмне?
Таасир механизми, молекула биологиялык системаны кайсы баштапкы молекулалык өз ара аракет аркылуу өзгөртөрүн жана ал өз ара аракет кийинки клеткалык натыйжаларга кантип байланышарын түшүндүрөт. “Клетканы өлтүрөт” — фенотип; “SF3bге байланып spliceosome чогулушун бузат” — механизмдик түшүндүрмө.
Бул айырма айрыкча табигый продукт изилдөөлөрүндө маанилүү. Молекуланын пролиферацияны токтотушу, ROSту көбөйтүшү, NF-κBни азайтышы жана caspase активдешүүсүн жаратышы анын төрт өзүнчө түз бутасы бар дегенди билдирбеши мүмкүн. Булардын баары бир баштапкы белоктун ингибициясынан кийин пайда болгон төмөнкү агым окуялары болушу мүмкүн.
Деңиздик Табигый Продукттун Түз Бутасы менен Төмөнкү Агым Таасири Эмне Үчүн Бир Нерсе Эмес?
Түз бута — кошулма физикалык же функциялык жактан биринчи тийген белок, комплекс, ДНК аймагы же биологиялык машина; төмөнкү агым таасири болсо ушул алгачкы кийлигишүүнүн клетка ичиндеги сигналдык тармактарда пайда кылган экинчи натыйжасы. Мисалы, протеасома ингибициясы түз бута өз ара аракети; ubiquitinделген белоктордун топтолушу, ER стресси, NF-κB өзгөрүшү жана apoptosis болсо андан кийин өнүгүшү мүмкүн болгон натыйжалар.
Spliceosome деген эмне?
Spliceosome, эукариоттук клеткаларда прекурсор mRNAдагы интрондорду алып, экзондорду бириктирген чоң ribonucleoprotein комплекс. U1, U2, U4/U6 жана U5 snRNP сыяктуу кичине өзөктүк ribonucleoproteinдерден жана көп жардамчы белоктордон турат.
Ген ДНКдан РНКга көчүрүлгөндө пайда болгон pre-mRNA түздөн-түз жетилген белок коддоочу РНК эмес. Интрондор туура жерлерден алынышы керек. Туура эмес splice-site тандоосу, intron retention же exon skipping белок ырааттуулугун жана ген функциясын олуттуу өзгөртө алат.
SF3b жана branch-point sequence эмне үчүн маанилүү?
U2 snRNPнин SF3b субкомплекси pre-mRNAдагы branch-point аймагын таанууда роль ойнойт. FR901464 жана thailanstatin Aнын булакта сүрөттөлгөн механизми SF3b айланасындагы чогулууну иштебей турган абалга келтирип, U2 snRNPнин branch-point sequence менен туруктуу жупташуусун бөгөттөө болуп саналат.
Натыйжада spliceosome чогулушу токтойт, интрондор сакталат, экзондор туура эмес өткөрүлүп кетет жана жетилген mRNA өндүрүшү азаят. Клеткага керектүү белоктордун туура изоформаларынын жоголушу клеткалык стресс, cell-cycle arrest жана apoptosisке алып барышы мүмкүн.
Leucettamine B ошол эле жолго эмне үчүн башкача таасир этет?
Leucettamine B ошол эле SF3b байланышы менен түз аныкталбайт. Булак аны CLK4 жана DYRK1A киназаларынын төмөн наномолярдык ингибитору катары берет: CLK4 үчүн IC50=43,4 nM, DYRK1A үчүн IC50=74,9 nM. CLK/DYRK ингибициясы SR splicing белокторунун фосфорлануусун азайтып, бул белоктордун өзөктөгү туура жайгашуусун буза жана U2 snRNPнин branch-point аймагына тартылышын тосо алат.
Трансляциянын башталышы деген эмне?
Трансляциянын башталышы — рибосома mRNAга жайгашып, туура башталгыч кодонду таанып, белок синтезине даяр болгон этап. eIF4F комплекси бул процессте маанилүү роль ойнойт; комплекстин eIF4A компоненти ATP-каранды РНК helicase.
Көптөгөн онкогендердин mRNAсынын 5′ untranslated region аймагы күчтүү экинчи РНК түзүлүштөрүн түзүшү мүмкүн. eIF4A бул түзүлүштөрдү ачып, рибосоманын mRNA боюнча сканерлөөсүн жеңилдетет. Ошондуктан eIF4Aны бөгөттөө, айрыкча жогорку трансляция чыгарылышына көз каранды клеткаларда сезгичтик жаратышы мүмкүн.
Pateamine A кантип “molecular clamp” сыяктуу иштейт?
Pateamine A булакта eIF4A менен РНК ортосундагы интерфейске байланышкан interfacial inhibitor катары сүрөттөлөт. Молекуланын ар түрдүү бөлүктөрү РНК негиздери жана eIF4A калдыктары менен байланышып, eIF4Aны РНКда натыйжасыз, жабык комплекс катары турукташтырат.
Ошентип eIF4Aнын кадимки циклдик иши жана кайра колдонулушу бөгөттөлөт; 48S pre-initiation complex түзүлүшү бузулат жана cap-dependent translation башталышы басылат.
Hippuristanol механизми эмне үчүн башкача?
Hippuristanol eIF4Aнын карбоксил-терминалдык аймагына аллостерикалык түрдө байланып, РНК байланышын бөгөттөйт. Булак eIF4A ATPase ингибициясы үчүн 50–300 nM диапазонунда биохимиялык IC50 берет.
Демек, Pateamine A eIF4A–РНК комплексин туура эмес абалда “бекитсе”, hippuristanol eIF4Aнын РНКга байланышын жана РНК ачуу функциясын түз чектейт. Бир эле биологиялык түйүн эки башка механизмдик жол менен бутага алынат.
Elisabatin A эмне кылат?
Elisabatin A eIF4A1дин ATP байланышы менен атаандашкан ингибитор катары берилет. ATP колдонуу бөгөттөлгөндө helicase активдүүлүгү жана ошону менен трансляциянын башталышы бузулат. Булак solid tumor cell lines үчүн болжол менен 40 µM LD50 берет; бул маанини башка assay түрлөрүнүн IC50 же Kd маанилери менен түз салыштырууга болбойт.
Белок синтезинин узаруу этабы деген эмне?
Башталуу аяктагандан кийин рибосома mRNA боюнча жылып, аминокислоталарды өсүп жаткан polypeptide чынжырына кошот. Бул этап translation elongation деп аталат. eEF1A aminoacyl-tRNAны рибосомага жеткирүүгө; рибосоманын peptidyl transferase centerи болсо пептиддик байланыш түзүүгө катышат.
Деңиздик табигый продуктулар бул системанын ар башка чекиттерин бутага алат: Didemnin B жана plitidepsin eEF1A үй-бүлөсүн; psymberin, tedanolide жана lissoclimide туундулары рибосомалык аймактарды; onnamide жана mycalamide үй-бүлөсү болсо чоң рибосомалык суббирдиктеги E-site айланасын таасирлейт.
Didemnin B жана plitidepsin
Didemnin B үчүн булак PPT1 жана eEF1A1 ингибициясын билдирет; eEF1A1 үчүн Kd=120 nM берилет. Didemnin Bнин dose-limiting toxicity көйгөйлөрү экинчи муундагы analogue plitidepsin иштелип чыгышына алып келген.
Plitidepsin булакта eEF1A2ге байланышкан молекула катары берилет жана Kd=80 nM мааниси көрсөтүлөт. eEF1A2нин бөгөттөлүшү aminoacyl-tRNAнын рибосома A-siteына жеткирилишин бузат.
Булак ошондой эле plitidepsin үчүн SARS-CoV-2 репликациясында EC50=0,88 nM маанисин берет. Бул маанилүү белгилүү бир антивирустук эксперимент контекстине тиешелүү жана адамдардагы бардык вирустук инфекциялар үчүн 0,88 nM дарылоо дозасы дегенди билдирбейт.
Psymberin эмне үчүн айырмаланат?
Psymberin же irciniastatin A чоң 60S ribosomal subunit жана peptidyl transferase center менен байланышкан. Булак Kd=2,1 nM берет. Ribosome profiling эксперименттеринде HCT-116 клеткаларында elongation жайлашы жана AAA-lysine кодондорунда 80S stalling кабарланган.
Булак ошондой эле colorectal cancer patient-derived organoidдерде 3–25 nM IC50 диапазонун берет. Бул органоид эксперименти; түз бейтап дарылоо натыйжасы эмес.
Ген экспрессиясы жана белок синтези механизмдеринин жалпы картасы
Топоизомераза деген эмне?
ДНКнын репликация жана транскрипция учурунда ачылып, кайра оролушу torsional stress жаратат. Топоизомеразалар ДНК чынжырын көзөмөлдөнгөн түрдө убактылуу кесип, кайра бириктирүү аркылуу бул механикалык чыңалууну чечет.
I типтеги топоизомераза бир ДНК чынжырын кессе, II типтеги топоизомераза эки чынжырды тең убактылуу кесет. Кадимки абалда кесилген ДНК кайра ligate кылынат. “Топоизомераза уусу” болсо ферментти жөн гана өчүрүүнүн ордуна фермент ДНКны кескен абалда түзгөн cleavage complexти турукташтырып, ДНКнын кайра бириктирилишин бөгөттөйт.
Репликация machineryси бул туруктуу комплекс менен жолукканда өлүмгө алып келүүчү ДНК double-strand breaks пайда болушу мүмкүн.
Lamellarin D
Lamellarin D жалпак pentacyclic pyrrole өзөгү аркылуу GC-rich ДНК аймактарына intercalate болушу жана Topo I cleavage complexesти турукташтырышы мүмкүн. Булак NCI-60 панелиндеги ар түрдүү лейкоз, эмчек, жоон ичеги жана melanoma клеткаларында IC50=10–80 nM диапазонун билдирет.
Кошулманын маанилүү экинчи өзгөчөлүгү P-glycoprotein-mediated drug effluxти 0,1 µM сыяктуу sub-cytotoxic концентрацияда азайта алышы. Сереп муну “self-potentiating” өзгөчөлүк катары түшүндүрөт: молекула Topo Iди бутага алат жана ошол эле учурда өзүнүн клеткадан сыртка сордурулушун чектей алат.
Trabectedin эмне үчүн классикалык ДНК алкилдөөчүлөрүнөн айырмаланат?
Ecteinascidin-743 же trabectedin, ДНК minor grooveга байланышып, гуаниндин N2 позициясын алкилдейт. Пайда болгон adduct транскрипция менен байланышкан nucleotide-excision-repair machinery тарабынан иштетилгенде натыйжасыз/futile repair процесси жүрүп, double-strand breaks пайда болушу мүмкүн.
Бул механизм “ДНКны алкилдөө” менен гана чектелбейт; клетканын жабыркоону оңдоого аракет кылышы да цитотоксикалык механизмдин бир бөлүгүнө айланат. Сереп trabectedinдин advanced soft-tissue sarcoma үчүн бекитилгенин бул механизмдин клиникалык ырасталышына мисал катары көрсөтөт.
Shishijimicin A ДНКны кантип жабыркатат?
Shishijimicin Aнын trisulfide trigger аймагы bioreductive activationдан кийин Bergman cyclization түзүшү мүмкүн. Пайда болгон 1,4-benzenoid diradical ДНК каркасынан суутек атомдорун ажыратып, strand break жаратат.
Булак P388 клеткалары үчүн IC50=0,48 pM берет. Пикомолярдык деңгээлдеги бул өтө жогорку in vitro potency ошол эле учурда нормалдуу ткандар үчүн өтө олуттуу off-target toxicity коркунучун жаратышы мүмкүн болгондуктан, сереп ADC негизиндеги максаттуу жеткирүү ыкмаларын талкуулайт.
Протеостаз деген эмне?
Протеостаз, клетканын белок синтези, бүктөлүшү, сапат көзөмөлү жана бузулушу ортосундагы тең салмакты сактоосу. Туура эмес бүктөлгөн же эми керек эмес белокторду жок кылуу бул системанын негизги бөлүгү.
Ubiquitin–proteasome systemде белоктор белгилүү ubiquitin чынжырлары менен белгилениши мүмкүн. 19S regulatory particle бул белокторду таанып, ачып, 20S catalytic coreго өткөрөт. Булак 20S протеасоманын β5 chymotrypsin-like, β2 trypsin-like жана β1 caspase-like каталитикалык аймактарын өзүнчө карайт.
Marizomib протеасоманы кантип ингибирлейт?
Salinosporamide A же marizomib, табигый γ-lactam-β-lactone каркасына ээ non-peptidic proteasome ингибитору. Булак β-lactone carbonyl тобу протеасома subunitтериндеги каталитикалык Thr1 Oγ hydroxyl тарабынан nucleophilic attackка кабылып, covalent ester adduct түзөрүн түшүндүрөт.
Серепте берилген IC50 маанилери:
| Активдүүлүк | Суббирдик | IC50 |
|---|---|---|
| Chymotrypsin-like | β5 | 3,5 ± 0,3 nM |
| Trypsin-like | β2 | 28 ± 2 nM |
| Caspase-like | β1 | 430 ± 34 nM |
Протеасома басылганда туура эмес бүктөлгөн жана ubiquitinделген белоктор топтолот. Булак муну ER stress, pro-apoptotic белоктордун өсүшү жана NF-κB survival signaling өзгөрүүлөрү менен байланыштырат. Бул натыйжалар төмөнкү агым таасирлери; marizomibдин түз бутасы протеасома.
Deubiquitinase деген эмне?
Deubiquitinases (DUBs), белоктордон же ubiquitin чынжырларынан ubiquitin молекулаларын алып сала алган ферменттер. Бул UPS “белокторго ubiquitin кошуп, протеасомада жок кылуу” системасы гана эмес экенин; ubiquitin белгилери дайыма жөнгө салынышы мүмкүн экенин көрсөтөт.
Булакта Sulawesin Aнын USP7 үчүн IC50=2,8 µM; Spongiacidin Cнин USP7 үчүн IC50=3,8 µM жана USP21 үчүн IC50=16,6 µM көрсөткөнү айтылат. Hyrtioreticulin A болсо түз DUBдан айырмаланып E1–ubiquitin intermediate түзүлүшүн IC50=2,4 µM деңгээлинде баскан мисал.
“Undruggable” бута деген эмне?
“Undruggable” деген сөз белокту таптакыр дары менен бутага алууга болбойт дегенди билдирбейт. Термин тарыхый жактан кичине молекулалар байланыша турган так терең чөнтөгү жок, кең же динамикалык белок–белок беттерин колдонгон, intrinsically disordered аймактары бар же каталитикалык активдүү борбору жок буталар үчүн колдонулган.
Сереп transcription factors, RAS үй-бүлөсүндөгү GTPases, адаптер белоктор, эпигенетикалык reader белоктор жана BCL-2 үй-бүлө мүчөлөрү сыяктуу класстарды ушул көйгөйдүн алкагында талкуулайт.
p53–MDM2/Hdm2 өз ара аракетинин бузулушу
Siladenoserinol A Hdm2нин hydrophobic N-terminal pocket аймагын толтуруп, p53–Hdm2 белок–белок өз ара аракетин буза алат; булак IC50=2,0 µM берет. Hoiamide D болсо p53 transactivation-domain калдыктарын окшоштуруп, p53–MDM2 өз ара аракетин EC50=4,5 µM деңгээлинде бузары айтылган башка scaffold.
Бул жердеги терапиялык логика p53 белогун түз “активдештирүү” эмес, аны баскан MDM2/Hdm2 өз ара аракетин жоюп, wild-type p53 функциясын бошотуу.
Sec61 эмне үчүн “bottleneck target” катары маанилүү?
Sec61 translocon secreted жана membrane белоктордун эндоплазмалык ретикулум мембранасынан өтүшүндөгү борбордук канал. Apratoxin A жана coibamide A сыяктуу MNPлер Sec61 системасын басып, EGFR, HER2, VEGFR жана ар түрдүү secreted factors сыяктуу көп белоктун maturation жана membrane insertion процессин бөгөттөй алат.
Бул стратегия ондогон receptorлорду өзүнчө бутага алуунун ордуна жалпы биосинтетикалык тар жерге кийлигишет. Бирок кең client repertoire ошол эле учурда therapeutic window жагынан этияттыкты талап кылат.
MCL-1 кантип бутага алынат?
Marinopyrrole A MCL-1дин BH3 grooveуна түз байланышып, pro-apoptotic BIM/BAK менен өз ара аракетин бузары жана MCL-1дин proteasomal degradationын тездетери айтылат. Renieramycin T да булакта түз MCL-1 inhibitor катары классификацияланып, ар түрдүү tumor cell lines үчүн IC50=4,7–98 nM диапазону берилет.
Эпигенетика деген эмне?
Эпигенетикалык жөнгө салуу, ДНКнын негизги нуклеотид ырааттуулугун өзгөртпөстөн гендердин жеткиликтүүлүгүнө жана экспрессия деңгээлине таасир эткен молекулалык жөнгө салуулар. DNA methylation, histone acetylation, methylation жана башка histone modifications ушул катмарга кирет.
HDAC ферменттери гистондордон acetyl топторун алып сала алат; ошондуктан HDAC inhibition хроматин түзүлүшүн жана ген экспрессиясын өзгөртө алат. DNMT ферменттери болсо DNA methylation менен байланышкан.
Largazole
Largazole — prodrug. Активдүү largazole thiol метаболити каталитикалык Zn2+ ионун chelate кылып, айрыкча class I HDAC1–3тү ингибирлейт. Булак IC50=0,1–1,7 nM диапазонун жана class II ферменттерге салыштырмалуу 100 эседен жогору selectivity берет.
Сереп бул тандалмалуулукту p21WAF1/CIP1 жана p27KIP1 сыяктуу гендердин transcriptional reactivationы жана G1 arrest менен байланыштырат. Булак ошондой эле murine xenograft контекстинде активдүү метаболиттин шишик ичиндеги концентрациясы плазмадан болжол менен 10 эсе жогору болушу мүмкүн экенин берет.
Psammaplin A эмне үчүн кош таасирдүү?
Psammaplin A HDAC жана DNA methyltransferase inhibitor катары каралат. Булак HDAC үчүн IC50=4,2 nM жана DNMT үчүн IC50=18,6 nM билдирет. Кийинки салыштырууда HDAC1 үчүн 45 nM, HDAC6 үчүн 2,8 µM маанилери берилип, class selectivity баса белгиленет.
Сереп эки эпигенетикалык катмарды бир убакта бутага алууну histone hyperacetylation менен promoter demethylation бирге silenced tumor-suppressor genes үстүндө cooperative de-repression түзө алышы аркылуу талкуулайт.
IC50, EC50, Kd, LC50 жана LD50 Бири-биринен Кантип Айырмаланат?
IC50 функцияны %50 ингибирлөө үчүн керек концентрацияны, EC50 өлчөнгөн таасирдин %50син жараткан концентрацияны, Kd ligand–бута байланышынын тең салмак диссоциация туруктуусун, LC50 эксперимент системасындагы үлгүлөрдүн %50синде lethal таасир жараткан концентрацияны, LD50 болсо %50 lethal dose түшүнүгүн билдирет; алар ар башка эксперимент суроолорун өлчөгөндүктөн, сандарын түздөн-түз бирдей potency тартиби катары чечмелөө туура эмес.
| Метрика | Эмнени өлчөйт? | Төмөн маани жалпысынан эмнени билдирет? | Негизги түшүндүрмө чеги |
|---|---|---|---|
| IC50 | Биологиялык активдүүлүктү %50 ингибирлөө үчүн керек концентрация | Тиешелүү assay ичинде жогору ингибиция potencyси | Assay шарттарына жана бута концентрациясына көз каранды; түз байланыш affinityси эмес |
| EC50 | Максималдуу өлчөнө турган таасирдин жарымын түзгөн концентрация | Тиешелүү функциялык жоопто төмөн эффективдүү концентрация | Kd менен синоним эмес |
| Kd | Ligand–бута комплексинин equilibrium dissociation жүрүмү | Ошол эле система ичинде адатта күчтүүрөөк equilibrium affinity | Клеткалык натыйжалуулукту же клиникалык дозаны өзүнөн өзү аныктабайт |
| LC50 | Белгилүү эксперимент системасында үлгүлөрдүн %50синде lethal таасир жараткан концентрация | Жогору cytotoxic potency | Бута selectivity же терапиялык индекс тууралуу өзүнөн өзү маалымат бербейт |
| LD50 | %50 lethal dose түшүнүгү | Төмөн lethal dose | Колдонулган организм/assay жана доза аныктамасы билинмейинче башка метрикалар менен салыштырууга болбойт |
Мисалы, кошулманын Kd мааниси 2 nM болушу клеткадагы IC50 мааниси да 2 nM болот дегенди билдирбейт. Клетка мембранасынын өткөрүмдүүлүгү, intracellular concentration, protein binding, metabolism, ATP деңгээли, бута abundance жана көп башка факторлор клеткалык натыйжалуулукту өзгөртөт.
Non-apoptotic cell death эмне үчүн изилденет?
Рак клеткалары apoptosis системасындагы p53, BCL-2/BAX, caspase же mitochondrial death machinery боюнча туруктуулук өнүктүрүшү мүмкүн. Ошондуктан ferroptosis, pyroptosis, cuproptosis жана lysosome-dependent death сыяктуу ар башка биохимиялык өлүм жолдору apoptosis-resistant шишиктерди бутага алуу үчүн изилденүүдө.
Cuproptosis
Cuproptosis — жез менен байланышкан жөнгө салынган клетка өлүм жолу. Булак chagosendine C copper chaperone FDX1ге Kd=8,31 µM менен байланышаарын; intracellular copper accumulation, lipoylated TCA-cycle protein aggregation жана iron–sulfur cluster depletion менен байланышканын берет.
Mitochondrial collapseтан кийин цитозолго чыккан mtDNAнын cGAS–STING pathwayин ишке киргизиши, type I interferon жообу жана CD8+ T-cell infiltration аркылуу шишик иммундук микроайлана-чөйрөсүн өзгөртө ала турган төмөнкү агым байланыш катары талкууланат.
Ferroptosis
Ferroptosis — iron-dependent lipid peroxidation менен байланышкан жөнгө салынган клетка өлүмү. Булак fucoxanthin үчүн айрым tongue жана ovarian carcinoma моделдеринде Fe2+, ROS жана lipid peroxidation өсүшү; Nrf2/HO-1/GPX4 axis азайышы жана TFR1/p53 өсүшү аркылуу ferroptotic механизм билдирген изилдөөлөрдү берет.
Pyroptosis
Pyroptosis — сезгенүүчү caspase жана gasdermin pore түзүлүшү менен байланышкан клетка өлүмү. Серепте EPS3.9 деп аталган болжол менен 17 kDa exopolysaccharide plasma-membrane phospholipids менен өз ара аракеттенип, NLRP3 inflammasome–caspase-1–GSDMD чынжырын активдештирери айтылат.
GSDMD pore түзүлүшү IL-1β жана IL-18 бөлүнүшүн жеңилдетет; ошентип клетка өлүмү ошол эле учурда айланадагы innate immune cellsке таасир эткен inflammatory signalга айланышы мүмкүн.
Деңиздик Табигый Продуктулар Шишик Микроайлана-Чөйрөсүн Кантип Кайра Түзө Алт?
Серепте шишик микроайлана-чөйрөсүнүн кайра түзүлүшү бир молекула менен эмес; PD-L1 туруктуулугун азайтуу, immunogenic cell death учурунда DAMP бөлүнүшү, dendritic-cell maturation, CD8+ T-cell recruitment жана cGAS–STING/type I interferon жообу сыяктуу ар башка механизмдер менен түшүндүрүлөт; бул натыйжалардын далил деңгээли кошулмага жараша клетка маданияты же жаныбар модели менен чектелиши мүмкүн.
Benzosceptrin C, DHHC3 palmitoyltransferaseти Kd=385 nM менен баскан мисал катары берилет. PD-L1 palmitoylation жоголушу белоктун lysosomal degradationын көбөйтө алат; ошентип CD8+ T-cell функциясынын кайра активдешишине салым кошушу мүмкүн.
Naamidine J, CSE1Lге Kd=5,41 µM менен байланып, SP1 nuclear translocation/transcriptional activityни азайтат; булак ошол эле учурда PD-L1 expression азайышы жана CD8+ cytotoxicity restoration билдирген изилдөөлөрдү берет.
Aspercyclicin A, булакта 3–8 nM диапазонунда PERK–eIF2α–ATF4/CHOP ER stress менен immunogenic, caspase-independent cell death түзгөн молекула катары сүрөттөлөт. Calreticulin бетке чыгышы, HMGB1 жана ATP бөлүнүшү сыяктуу damage-associated molecular patterns dendritic-cell maturation жана CD8+ T-cell priming менен байланышат.
Crassolide үчүн p38α MAPK inhibition, ER stress жана calreticulin/HMGB1/ATP аркылуу immunogenic cell death байланыштары берилген. Мындай таасирлер dying tumor cellди иммундук система үчүн көрүнүктүүрөөк кыла алат; бирок булакта берилген preclinical натыйжаларды түз адам клиникалык жообу катары чечмелөөгө болбойт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
1. Изилдөө дизайны
Бул изилдөө Review макаласы. Авторлор жаңы эксперименттик үлгү, жаңы compound screening панели же жаңы клиникалык cohort түзгөн эмес. Адабияттагы деңиздик табигый продуктуларды баштапкы молекулалык бута жана негизги биологиялык процесс айланасында классификациялаган.
Булак өзүнчө “Materials and Methods” же formal systematic review протоколун бербейт. PDFде маалымат базаларынын аттары, издөө даталары, толук search strings, PRISMA flow, киргизүү/чыгаруу критерийлери же risk-of-bias баалоосу берилген эмес. Ошондуктан адабияттагы бардык деңиздик табигый продуктулардын сандык meta-analysis катары чечмеленбеши керек.
2. Бута-борборлуу классификация
Макаланын негизги уюшулушу төмөнкү механизмдик окторду колдонот:
- Ген экспрессиясы machineryсин бутага алуу: splicing, translation initiation, elongation жана global protein synthesis.
- Genomic instability түзүү: топоизомераза уулануусу, DNA intercalation/alkylation жана radical-mediated strand break.
- Proteostasis networkтү өзгөртүү: протеасома жана ubiquitin системалары.
- Тарыхый жактан дарылоого кыйын белокторду же белок–белок интерфейстерин бутага алуу.
- Эпигенетикалык жөнгө салуу.
- Апоптоздон тышкаркы жана immunogenic cell-death жолдорун ишке киргизүү.
- Бул механизмдерди өндүрүш, фармакокинетика жана target deconvolution жагынан дары иштеп чыгууга өткөрүү.
3. Ген экспрессиясын бутага алган негизги кошулмалар
| Кошулма | Баштапкы бута / процесс | Булакта белгиленген сандык маалымат | Негизги механизмдик натыйжа |
|---|---|---|---|
| FR901464 | SF3b / U2 snRNP spliceosome чогулушу | Булак бул бөлүмдө бирдиктүү IC50 бербейт | Mis-splicing, intron retention, exon skipping |
| Thailanstatin A | SF3b / spliceosome | Antiproliferative IC50=59–500 nM | Pre-mRNA splicing бузулушу |
| Leucettamine B | CLK4 / DYRK1A | 43,4 nM / 74,9 nM | SR protein hypophosphorylation жана U2 snRNP recruitment бузулушу |
| Pateamine A | eIF4A–RNA interfacial complex | Булак бөлүмүндө бир борбордук IC50 берилген эмес | 48S pre-initiation complex түзүлүшүнүн бөгөттөлүшү |
| Hippuristanol | eIF4A C-terminal domain | ATPase IC50=50–300 nM | RNA binding жана ATP-dependent unwinding басылышы |
| Elisabatin A | eIF4A1, ATP байланышы менен атаандашуу | Булакта LD50≈40 µM | Translation initiation бузулушу |
| Didemnin B | PPT1 жана eEF1A1 | eEF1A1 Kd=120 nM | Translation elongation басылышы |
| Plitidepsin | eEF1A2 | Kd=80 nM; булак SARS-CoV-2 үчүн EC50=0,88 nM берет | Aminoacyl-tRNA delivery бузулушу |
| Eudistomin C | 40S ribosomal uS11/RPS14A | P388 IC50=80 nM | 48S complex formation бөгөттөлүшү |
| Psymberin | 60S subunit / PTC | Kd=2,1 nM; CRC organoid IC50=3–25 nM | Elongation жайлашы жана 80S stalling |
| Onnamide A / Theopederin B / Mycalamide A-B | 60S E-site | Кошулмага көз каранды | Deacylated tRNA бекитилиши жана elongation arrest |
| Tedanolide C / Chlorolissoclimide / Dichlorolissoclimide | PTC айланасы | Кошулмага көз каранды | Ribosomal elongation басылышы |
| Agelastatin A | Ribosomal PTC | Булак наномолярдык cytotoxicity билдирет | Protein translation басылышы |
| Girodazole | 23S rRNA жана ribosomal protein L15 айланасы | Бир борбордук маани берилген эмес | Protein synthesis machinery бузулушу |
4. ДНК бүтүндүгүн бутага алган негизги кошулмалар
| Кошулма | Түз/негизги бута | Булакта белгиленген маани | Түшүндүрмө |
|---|---|---|---|
| Lamellarin D | Topo I cleavage complex + P-gp | NCI-60 IC50=10–80 nM; P-gp таасири 0,1 µM | Topo I уулануусу жана drug-efflux азайышы |
| Sansalvamide | Topo I + Hsp90 | Булак механизмдик көп буталуулукту баса белгилейт | DNA break жана oncoprotein destabilization |
| Makaluvamine G | Topo I / GC-rich DNA | DNA intercalation Ks=20 µM | Topo I inhibition |
| Ascididemin | Topo I жана Topo II | Topo II IC50=75 µM | Кош топоизомераза poisoning |
| Wakayin | DNA intercalation + Topo I/II | HCT-116 IC50=1,5 µM | S-phase arrest |
| Thiocoraline A | DNA polymerase α / DNA elongation | Topo II inhibition билдирилген эмес | DNA elongation басылышы |
| Shermilamine B / Kuanoniamine A | Topo II жана DNA intercalation менен байланышкан | Булак жалпылап берет | Pyridoacridine классы |
| Aaptamine | DNA intercalation; көп төмөнкү агым таасирлери | Булак бир борбордук potency маанисин бербейт | p21 activation, G2/M arrest жана башка жолдор |
| Trabectedin | DNA minor groove, guanine N2 алкилденүүсү | Булак advanced soft-tissue sarcoma бекитүүсүн белгилейт | TC-NER аркылуу futile repair жана DSB |
| Shishijimicin A | Radical-mediated DNA backbone damage | P388 IC50=0,48 pM | Bergman cyclizationдан кийин DNA strand break |
| Variolin B | CDK1/2/4/7/9 + pseudo-Holliday DNA | NCI-60 IC50=50–100 nM | Cell-cycle inhibition + генотоксикалык механизм |
| Fascaplysin | CDK4 + GC-rich DNA | CDK4 IC50=0,35 µM | G2/M arrest жана mitochondrial apoptosis |
5. Протеостаз буталары
| Кошулма | Негизги бута | Булак мааниси | Механизмдик өзгөчөлүк |
|---|---|---|---|
| Marizomib | 20S β5, β2 жана β1 | 3,5±0,3; 28±2; 430±34 nM | Covalent, кең протеасома ингибициясы |
| Fellutamide B | β5 | IC50=9,4 nM | Кайтарымдуу гемиацеталь |
| Strongylophorines-13/14 | 20S proteasome; ошондой эле PTP1B | 20S IC50=2,1 µM; PTP1B=8–9 µM | Көп биологиялык активдүүлүк |
| Palau'amine | 20S β5 айланасы | IC50=3 µM | Substrate entryнин бөгөттөлүшү |
| Epoxyphomalin B | 20S proteasome | 27 µM сыналган концентрация | Протеасома inhibition |
| Secomycalolide A | 20S chymotrypsin-like β5 | IC50=11 µg/mL | Кайтарымдуу чөнтөктү ээлөө |
| 12R-hydroxy-bromosphaerol | 20S α4–α5 interface | RenG2/BEAS-2B IC50=4,3 µM | Активдүү эмес конформацияны турукташтыруу |
| Neo-kauluamine | 20S α4–α5 interface / CT-L | IC50=0,13 µM | Allosteric interface-targeting мисалы |
| Scytonemide A | 20S CT-L | IC50=96 nM | Булак мүмкүн болгон covalent mechanismди талкуулайт |
| Carmaphycins A/B | β5 | Yeast IC50=2,5 nM | Epoxyketone классы |
| Sulawesin A | USP7 | IC50=2,8 µM | MDM2 deubiquitination басылышы |
| Spongiacidin C | USP7 / USP21 | 3,8 µM / 16,6 µM | Тандалма DUB inhibition |
| Hyrtioreticulin A | E1–ubiquitin intermediate formation | IC50=2,4 µM | Убиквитиндешүүнүн жогорку агымдагы ингибициясы |
6. Кыйын буталар жана белок–белок өз ара аракеттери
| Кошулма | Бута | Булакта берилген негизги маалымат |
|---|---|---|
| Siladenoserinol A | p53–Hdm2 PPI | IC50=2,0 µM |
| Dragmacidin D | PP1 | Сереп түпнуска жарыялоодо assay чоо-жайы берилбегенин өзгөчө белгилейт |
| Hoiamide D | p53–MDM2 PPI | EC50=4,5 µM |
| Apratoxin A | Sec61/TRAP | Цитотоксикалык IC50=0,3–0,5 nM |
| Coibamide A | Sec61 translocon | Secreted/membrane protein processing бөгөттөлүшү |
| Benzosceptrin C | DHHC3 | Kd=385 nM; PD-L1 palmitoylation/stability таасири |
| Naamidine J | CSE1L | Kd=5,41 µM; K562 IC50=11,3 µM |
| Marinopyrrole A | MCL-1 BH3 groove | MCL-1/BIM-BAK өз ара аракетин бузат |
| Renieramycin T | MCL-1 | Шишик клеткасынын IC50=4,7–98 nM |
| Tanzawaic acid D | FOXO1 | FOXO1–DNA комплексин турукташтыруу |
7. Эпигенетикалык кошулмалар
| Кошулма | Бута | Булакта берилген potency |
|---|---|---|
| Largazole | Class I HDAC1–3 | 0,1–1,7 nM |
| Psammaplin A | HDAC + DNMT | 4,2 nM + 18,6 nM |
| Azumamide E | HDAC1–3; алсызыраак HDAC8 жана class II | HDAC1–3 болжол менен 0,1–0,05 µM; HDAC8=3,7 µM |
| Santacruzamate A | HDAC2 | IC50=0,119 nM |
| Microsporin A | HDACтер | HDAC mixture IC50=0,14 µM; HDAC8=0,55 µM |
8. Апоптоздон тышкаркы клетка өлүмүнүн мисалдары
| Кошулма | Негизги бута/жол | Булакта белгиленген маалымат |
|---|---|---|
| Chagosendine C | FDX1 / cuproptosis | Kd=8,31 µM |
| Kahalalide F | ATP азайышы, онкотикалык шишүү, мембрана лизиси | Apoptotic checkpointsти bypass кылган necrotic death |
| Fucoxanthin | Iron/ROS/lipid peroxidation / ferroptosis | Nrf2/HO-1/GPX4 жана TFR1/p53 байланыштары |
| EPS3.9 | NLRP3–caspase-1–GSDMD / pyroptosis | Болжол менен 17 kDa exopolysaccharide |
| Aspercyclicin A | PERK–eIF2α–ATF4/CHOP / immunogenic death | Булак 3–8 nM иш диапазонун берет |
| Crassolide | p38α MAPK / immunogenic death | ER stress, calreticulin, ATP жана HMGB1 байланышы |
| Monanchoxymycalin C | JNK1/2 активдешүүсү | Каспазага көз каранды эмес өлүм |
| Callyspongiolide | V-ATPase | V-ATPase IC50≈10 nM; lymphoma cell IC50=60–70 nM |
9. Серептин клиникалык жана трансляциялык түшүндүрмөсү
Авторлор деңиздик табигый продуктуларда өтө жогорку potency болушу дары иштеп чыгуу чынжырын автоматтык түрдө бүтүрбөй турганын белгилешет. Серепте жөнгө салуучу жактырууга жеткен marine-derived compounds саны 20дан аз экени айтылат.
Бул айырма үч негизги трансляциялык тоскоолдук менен түшүндүрүлөт:
- Туруктуу камсыздоо: көп кошулмалар табигый организмде өтө аз өлчөмдө кездешет жана жапайы чөйрөдөн чогултуу экономикалык же экологиялык жактан туруктуу эмес.
- Фармакокинетикалык шайкешсиздик: жогорку молекулалык татаалдык, төмөн oral bioavailability, тез hepatic clearance же proteolytic degradation сыяктуу көйгөйлөр күчтүү in vitro молекуланы начар дары талапкерине айландырышы мүмкүн.
- Бутаны аныктоонун кечигиши: phenotypic screening күчтүү таасир көрсөтүшү мүмкүн, бирок кайсы белок баштапкы бута экенин аныктоо жылдарга созулуп, рационалдуу medicinal chemistryни кечиктириши мүмкүн.
Деңиздик Табигый Продуктуларды Клиникага Өткөрүүнү Кайсы Үч Негизги Тоскоолдук Чектейт?
Серептин талкуусуна ылайык, негизги үч тоскоолдук — туруктуу жана масштабдала турган зат менен камсыз кылуу, күчтүү биологиялык активдүүлүккө карабастан ылайыксыз фармакокинетикалык касиеттер жана phenotypic таасирден чыныгы молекулалык бутага жетүүнү кечиктирген target deconvolution көйгөйү.
10. Туруктуу өндүрүш
Деңиз губкаларынан же башка жай өсүүчү организмдерден табигый жыйноо көп күчтүү молекулалар үчүн клиникалык масштабдагы өндүрүштү камсыз кыла албайт. Булак marizomib өндүрүүчүсү Salinispora tropica сыяктуу өстүрүүгө боло турган микроорганизмдерди fermentation системаларында көбөйтүүнү маанилүү чечим катары көрсөтөт.
Biosynthetic gene clustersти E. coli, yeast же engineered Streptomyces сыяктуу heterolog hosts ичине өткөрүү болсо молекуланын табигый организмин жыйнабай туруп өндүрүүгө мүмкүндүк бере турган синтетикалык биология стратегиясы.
11. Chemoproteomics жана cryo-EM
Phenotypic screeningде клетка өлүмү көрүнүшү мүмкүн, бирок бута белгисиз болушу мүмкүн. Сереп activity-based chemoproteomicsти eEF1A2 сыяктуу буталарды аныктоодо; cryo-electron microscopyни болсо MNP–target complex түзүлүштөрүн атом деңгээлине жакын чечилиште изилдөөдө колдонууну маанилүү өнүгүү катары баалайт.
Бул маалымат medicinal chemistке молекуланы сокур өзгөртүүнүн ордуна кайсы функциялык топ кайсы белок бети менен өз ара аракеттенерин түшүнүүгө жардам берет.
12. Жасалма интеллект жана түзүлүш божомолу
Сереп AlphaFold3 жана RoseTTAFold сыяктуу AI колдогон белок/түзүлүш божомол куралдарын MNP–protein interaction талапкерлерин артыкчылыктуу тандоодо колдонууга болорун талкуулайт. Булак бул ыкма синтез жүгүн азайта аларына күчтүү баа берет.
Бул бөлүм макаланын өзү жаңы AI моделин иштеп чыккан дегенди билдирбейт. AI бул серепте келечектеги drug-discovery pipelineдын жардамчы технологияларынын бири катары талкууланат.
13. Молекулалык каркасты жөнөкөйлөтүү
Өтө татаал табигый продуктулардын ар бир атому биологиялык бута үчүн зарыл болушу шарт эмес. Серепте сунушталган ыкма “mechanistic essence” же негизги pharmacophore сакталган учурда синтезди кыйындаткан жана фармакокинетиканы начарлаткан бөлүктөрдү азайтуу.
Бирок түзүлүш жөнөкөйлөтүлгөндө selectivity жана target binding жоголушу мүмкүн. Ошондуктан scaffold simplification молекуланы жөн гана кичирейтүү эмес, түзүлүш–активдүүлүк байланышы менен багытталган medicinal chemistry процесси.
14. Онкологиядан тышкаркы колдонуу тармактары
Макала деңиздик табигый продуктулар рак менен гана чектелбей турганын өзгөчө белгилейт. Plitidepsinдин антивирустук protein-synthesis механизми, Santacruzamate Aнын HDAC2 selectivityсинин нейроинфламациялык контексти жана айрым marine alkaloidsтин antibiofilm таасирлери бул “mechanism-first, indication-second” ыкмасына мисал катары берилет.
Изилдөө колдогон жыйынтыктар
- Деңиздик табигый продуктулар ар түрдүү молекулалык буталарга жана биологиялык процесстерге кийлигишкен түзүлүшү ар түрдүү scaffoldдорду берет.
- Айрым MNPлер классикалык фермент активдүү борборлорунан айырмаланып RNA–protein интерфейстери, рибосомалык аймактар жана protein–protein interaction surfaces сыяктуу кыйын буталарга жете алат.
- Spliceosome, eIF4A/eEF1A, ribosomal PTC, топоизомераза, протеасома, DUB, MCL-1, Sec61, HDAC/DNMT жана ар түрдүү non-apoptotic death pathways серепте өзүнчө механизмдик класстар катары колдоого алынат.
- Баштапкы молекулалык бута менен төмөнкү агым signaling/фенотип айырмасын сактоо механизм түшүндүрмөсүнүн негизи.
- Ар түрдүү MNPлерде наномолярдык же пикомолярдык in vitro potency адабиятта билдирилген.
- Айрым деңизден келип чыккан кошулмалар же аналогдор жөнгө салуучу жактырууга же клиникалык өнүгүү этаптарына жеткен.
- Апоптоздон тышкаркы клетка өлүмү жана immunogenic cell death механизмдери apoptosis-resistant рак биологиясын изилдөө үчүн альтернативдүү жолдорду берет.
- Target identification, cryo-EM, chemoproteomics, synthetic biology жана эсептөө куралдары табигый продукт иштеп чыгуу процессинин маанилүү толуктоочулары.
- Туруктуу өндүрүш, фармакокинетика жана target deconvolution негизги трансляциялык тоскоолдуктар.
Изилдөө колдобогон жалпылоолор
- Макаладагы бардык деңиздик табигый продуктулар адамдарда коопсуз же натыйжалуу дары экени көрсөтүлгөн эмес.
- Төмөн IC50 же Kd өзүнөн өзү клиникалык ийгиликтин далили эмес.
- In vitro cytotoxicity натыйжасы бейтапты дарылоонун натыйжалуулугу эмес.
- Mouse/xenograft antitumor натыйжасы адамдагы клиникалык натыйжа эмес.
- Белоктун expression же phosphorylation өзгөрүшү кошулма ошол белокко түз байланышарын өзүнөн өзү көрсөтпөйт.
- Апоптоздон тышкаркы клетка өлүмүнүн пайда болушу бардык шишиктерде бир эле механизм иштей турганын көрсөтпөйт.
- “Undruggable” бутага багытталган scaffold табылышы анын оптималдаштырылган дары экенин билдирбейт.
- Деңизден келип чыккан молекуланын табигый болушу токсикологиялык жактан коопсуз экенин билдирбейт.
- Булактын клиникалык этап тууралуу билдирүүлөрү бул Verianla изилдөөсүндө көз карандысыз clinical-trial registry meta-analysis менен кайра ырасталган эмес.
- Бул сереп formal meta-analysis эмес болгондуктан, ар башка изилдөөлөрдүн IC50 маанилерин бир жалпы эксперименттин салыштырма potency тартиби катары колдонууга болбойт.
Изилдөөнүн күчтүү жагы
Серептин күчтүү жагы жүздөгөн табигый продукт изилдөөлөрүн жөн гана түзүлүшү же организмдин келип чыгышы боюнча тизүүнүн ордуна “кайсы молекулалык түйүн бузулат?” деген суроонун айланасында уюштурушу. Бул ыкма cytotoxicity тизмелерине караганда механизмдик үйрөнүү түзүмүн берет.
Мындан тышкары translation, DNA damage, proteostasis, PPI, epigenetics жана regulated cell death сыяктуу адатта өзүнчө адабияттарда изилденген процесстерди бир механизм картасында бириктирет.
Изилдөөнүн негизги чектөөлөрү
Сереп formal systematic-review издөө протоколун билдирбегендиктен, кайсы жарыялоолор кайсы маалымат базасы жана критерийлер менен тандалганы кайра өндүрүүгө боло турган түрдө берилген эмес. Бул адабият камтуусу сандык жактан канчалык толук экенин баалоону кыйындатат.
Экинчи чектөө — бириктирилген далилдер бир эле эксперимент деңгээлинде эмес. Айрым маалыматтар таза protein binding assayден, айрымдары tumor cell lineдан, башкалары organoid, murine model же клиникалык изилдөөлөрдөн алынган. Ошондуктан бардык potency маанилерин бир таблицада түз чоңдук тартиби менен салыштыруу илимий жактан туура эмес.
Үчүнчү чектөө — айрым кошулмаларда баштапкы бута күчтүү түзүлүштүк/биофизикалык далил менен колдоого алынса, айрым мисалдарда механизм маалыматы кыйыр же толук эмес. Сереп Dragmacidin D үчүн түпнуска изилдөөдө assay чоо-жайы берилбегенин өзү ачык белгилейт.
Төртүнчү чектөө — булак сүрөт түшүндүрмөлөрүндө айрым жерлерде камтууну жалпылоочу билдирүүлөр бар. Айрыкча 2-сүрөт captionы 4–18 номерлүү кошулмалардын баарын eIF4Aга байланышкан interfacial translation inhibitors деп сүрөттөгөн билдирүүсү негизги тексттеги eEF1A жана ribosomal PTC/E-site механизмдери менен толук шайкеш эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Marine Natural Products with Novel Mechanisms of Action: From Disrupting Gene Expression to Reshaping the Tumor Microenvironment and Beyond
Авторлор: Jinqi Huang; Jinli Liu; Chuanke Chong; Yuewei Guo; Xin Jin.
Авторлордун тартиби: Jinqi Huang → Jinli Liu → Chuanke Chong → Yuewei Guo → Xin Jin.
Тең салым: Булак PDFде тең биринчи авторлук/тең салым белгиси көрсөтүлгөн эмес.
Жооптуу авторлор: Chuanke Chong; Yuewei Guo; Xin Jin.
Аффилиация 1: School of Pharmaceutical Sciences & Institute of Materia Medica, Shandong First Medical University & Shandong Academy of Medical Sciences, Jinan 250117, China.
Аффилиация 2: Shandong Laboratory of Yantai Drug Discovery, Bohai Rim Advanced Research Institute for Drug Discovery, Yantai 264117, China.
Журнал: Chemistry.
Басма: MDPI, Basel, Switzerland.
Том / сан / макала: Volume 8, Issue 10, Article 145.
DOI: 10.3390/chemistry8100145.
Жөнөтүлгөн күнү: 11 сентябрь 2026.
Ревизия күнү: 14 октябрь 2026.
Кабыл алынган күнү: 16 октябрь 2026.
Жарыяланган күнү: 20 октябрь 2026.
Булактын түрү: Review; деңиздик табигый продуктулардын молекулалык буталарын жана таасир механизмдерин бута-борборлуу түрдө синтездеген кеңири сереп.
Рецензия абалы: Жөнөтүү, ревизия жана кабыл алуу даталары бар жарыяланган журналдык макала.
Расмий шилтеме: https://doi.org/10.3390/chemistry8100145
Лицензия: Creative Commons Attribution (CC BY).
Каржылоо: Key R&D Program of Shandong Province, 2024CXPT029 жана 2025CXPT012; National Natural Science Foundation of China, Grant No. 82304372.
Институционалдык этика кеңеши:Колдонулбайт.
Маалыматтуу макулдук:Колдонулбайт.
Маалыматтардын жеткиликтүүлүгү: Булак “All data are included in this review” билдирүүсүн берет.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдирген.
Авторлордун салымдары: Jinqi Huang жана Jinli Liu conceptualization; Yuewei Guo жана Xin Jin original draft preparation, review/editing жана visualization; Chuanke Chong, Yuewei Guo жана Xin Jin supervision; Yuewei Guo жана Xin Jin project administration жана funding acquisition милдеттерин аткарган. Булак бардык авторлор серепти даярдоого салым кошконун билдирет.
Formal systematic-review ыкмасы боюнча эскертүү: Макала abstractта MNPлерди “systematically groups” деп сүрөттөсө да, PDF өзүнчө PRISMA протоколун, search database тизмесин, search string, изилдөө тандоо агымын же meta-analysis ыкмасын бербейт. Ошондуктан Verianla изилдөөнү formal systematic review/meta-analysis катары кайра классификациялабайт.
Булак ичиндеги 2-сүрөт шайкештик эскертүүсү: 2-сүрөт captionы compounds 4–18ди топ катары eIF4Aга байланышкан interfacial translation inhibitors деп сүрөттөйт. Ошол эле макаланын 2.3 жана 2.4 бөлүмдөрү болсо 7–18 тобунда eEF1A1/eEF1A2, 40S uS11, 60S PTC, E-site, 23S rRNA жана L15 сыяктуу ар башка буталарды ачык көрсөтөт. Verianla негизги механизм баянында кеңири текст бөлүмдөрүн негиз кылып, caption камтуусун үнсүз “оңдолгон булак” катары көрсөткөн эмес.
Далил деңгээли боюнча эскертүү: Бул серепте берилген натыйжалар таза protein жана biochemical binding assay, рак клетка линиялары, patient-derived organoid, жаныбар модели жана клиникалык контекст сыяктуу ар башка деңгээлдерден алынган. Ошондуктан бир таблицада берилген сандар бир лабораторияда бир эле протокол менен алынган салыштырма маалымат эмес.
Фармакологиялык метрика боюнча эскертүү: IC50, EC50, Kd, LC50 жана LD50 ар башка эксперименттик чоңдуктар. Сандык маанилери бирдей бирдикте болсо да, бири-биринин ордуна колдонулбашы керек.
Түз бута чеги: Кошулмадан кийин өзгөргөн бардык pathway же белоктор түз молекулалык бута катары кабыл алынган эмес. Серептин өз эскертүүсүнө ылайык баштапкы target engagement менен downstream cellular response бөлүнгөн.
Клиникалык түшүндүрмө чеги: Булакта айрым кошулмалар үчүн regulatory approval же clinical-stage билдирүүлөрү бар. Verianlaнын бул тексти бул билдирүүлөрдү көз карандысыз clinical registry талдоосу менен кеңейтпейт жана клиникалык таасирди булак дооматынан ары алып барбайт.
Математика/формула боюнча эскертүү: Булак серепте борбордук математикалык модель же номерленген илимий теңдеме жок. Ошондуктан Verianla булактан тышкаркы фармакодинамикалык формула түзгөн эмес; IC50, EC50, Kd, LC50 жана LD50 түшүнүктөрүн текст менен түшүндүргөн.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген