

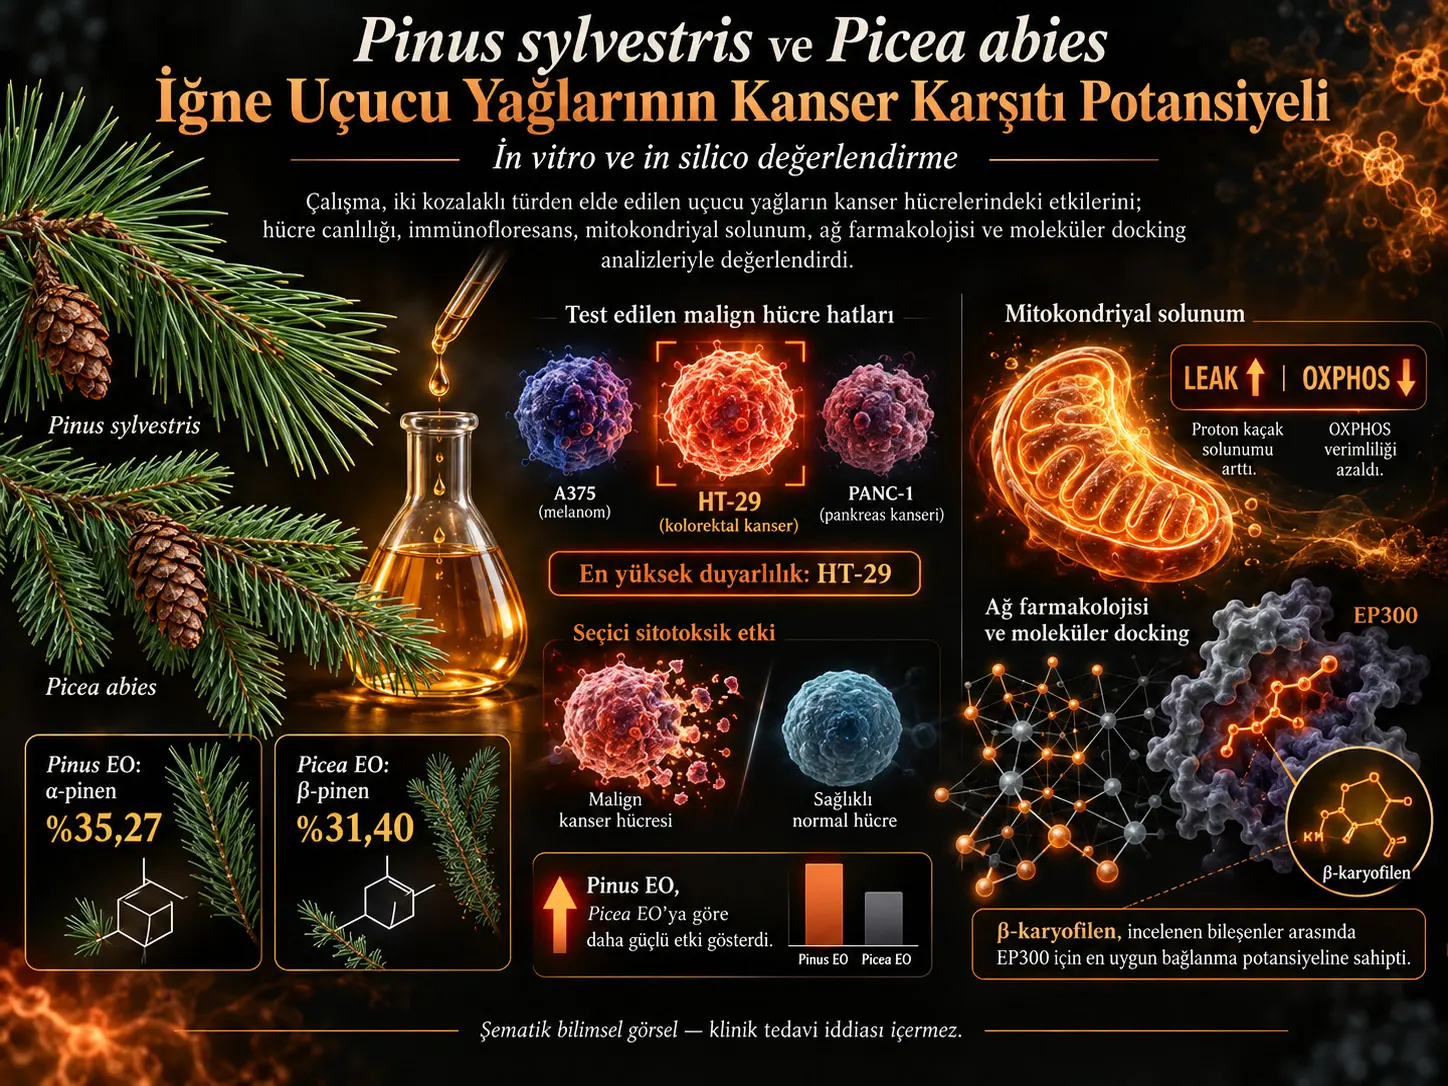
Uçucu yağ (essential oil, EO), bitki materyalindeki uçucu ve çoğunlukla lipofilik bileşiklerin yoğunlaştığı çok bileşenli doğal bir karışımdır. Bu çalışma, Pinus sylvestris ve Picea abies iğnelerinden elde edilen uçucu yağların kimyasal bileşimini ve kanser hücreleri üzerindeki etkilerini laboratuvar ortamında karşılaştırmış; hücre canlılığı, immünofloresan ve mitokondriyal respirometri deneylerini ağ farmakolojisi ve moleküler docking analizleriyle birleştirmiştir.
GC–MS analizi, iki uçucu yağın da monoterpen bakımından zengin olduğunu göstermiştir. Pinus sylvestris uçucu yağının başlıca bileşeni %35,27 ile α-pinen; Picea abies uçucu yağının başlıca bileşeni ise %31,40 ile β-pinen olarak belirlenmiştir. Pinus EO ayrıca %20,58 β-pinen, %15,60 3-karen, %10,20 limonen ve %8,18 β-karyofillen içermiştir.
Hücre canlılığı deneylerinde A375 melanoma, HT-29 kolorektal adenokarsinom ve PANC-1 pankreatik adenokarsinom hücreleri ile malign olmayan referans olarak immortalize HaCaT keratinositleri kullanılmıştır. Her iki uçucu yağ da malign hücrelerde konsantrasyona bağlı sitotoksisite göstermiş, ancak Pinus EO üç kanser hücre hattında da Picea EO'dan daha düşük IC50 değerleri üretmiştir.
En güçlü göreli seçicilik HT-29 hücrelerinde görülmüştür. Pinus EO'nun HT-29 IC50 değeri 21,01 ± 2,64 µg/mL ve seçicilik indeksi 14,72 iken Picea EO'nun değerleri sırasıyla 65,92 ± 2,88 µg/mL ve 6,72 olmuştur.
100 µg/mL ile yapılan immünofloresan deneyleri özellikle HT-29 ve PANC-1 hücrelerinde çekirdek kondensasyonu/parçalanması, hücre yuvarlaklaşması, adezyon kaybı ve β-aktin sitoskeletonunda bozulma göstermiştir. Bu değişiklikler apoptoz-benzeri hücre ölümünü düşündürmektedir; ancak apoptoza özgü moleküler belirteçler ölçülmediğinden çalışma apoptozun doğrudan kanıtlandığını ileri sürmemektedir.
Yüksek çözünürlüklü respirometri, uçucu yağ maruziyeti sonrasında LEAK solunumunun arttığı ve OXPHOS bağlantılı solunumun azaldığı genel bir mitokondriyal örüntü göstermiştir. Bu yapı proton kaçağı ve ayrışma-benzeri bir fenotiple uyumludur; fakat ATP düzeyi, mitokondriyal membran potansiyeli ve ROS doğrudan ölçülmediği için gerçek mitokondriyal uncoupling mekanizması doğrulanmış değildir.
Ağ farmakolojisi Pinus EO için kolorektal kanserle örtüşen 80, Picea EO için 79 tahmini protein hedefi belirlemiştir. EP300 her iki ağda da önemli ortak hedeflerden biri olarak belirlenmiş ve moleküler docking için seçilmiştir. β-Karyofillen EP300'e karşı −6,6 kcal/mol ile incelenen uçucu yağ bileşenleri arasındaki en elverişli tahmini bağlanma skorunu göstermiştir. Bununla birlikte docking sonucu doğrudan protein bağlanmasını veya EP300 modülasyonunu kanıtlamaz.
Sonuç olarak çalışma, Pinus ve Picea iğne uçucu yağlarının belirli insan kanser hücre modellerinde araştırılmaya değer in vitro antiproliferatif özellikler gösterdiğini desteklemektedir. Bulgular klinik etkinlik, insanlarda güvenlik veya kanser tedavisi kanıtı değildir; standardizasyon, daha ileri preklinik deneyler ve in vivo doğrulama gerekmektedir.
Araştırmanın çözmeye çalıştığı problem
Uçucu yağların çeşitli kanser modellerindeki biyolojik etkileri daha önce incelenmiş olsa da kozalaklı ağaçlardan elde edilen yağlara ilişkin kanıtlar parçalıdır. Çalışmalar çoğu zaman tek bitki türüne, tek kanser hücre hattına veya tek biyolojik sonlanıma odaklanmaktadır.
Bu çalışmadaki literatür boşluğu daha özeldir: Pinus sylvestris ve Picea abies iğne uçucu yağlarının aynı deney koşulları altında kimyasal içerik, kanser hücresi seçiciliği ve mitokondriyal biyoenerjetik bakımından doğrudan karşılaştırılması sınırlıdır. Ayrıca kimyasal bileşim ile olası moleküler hedefler arasındaki ilişkiyi deneysel hücre verileri ve hesaplamalı ağ analiziyle aynı araştırma içinde bütünleştiren çalışma sayısı azdır.
Bitkiler nereden elde edildi?
Bir yıllık Picea abies ve Pinus sylvestris iğneleri Romanya'nın Doğu Karpatlarındaki Vrancea bölgesinden temin edilmiştir. Picea iğneleri Nisan–Mayıs 2025, Pinus iğneleri Mayıs–Haziran 2025 döneminde toplanmıştır.
Bitki materyali uzmanlar tarafından doğrulanmış ve herbaryum örnekleri Picea için VSNH.BUASTM–130, Pinus için VSNH.BUASTM–132 numaralarıyla saklanmıştır. İğneler ekstraksiyondan önce karanlık ortamda 25 °C'de kurutulmuş ve ince biçimde öğütülmüştür.
Uçucu yağlar nasıl çıkarıldı?
Her bitki için 100 g kuru ve öğütülmüş iğne materyali Craveiro tipi düzenekte 100 °C'de 4 saat buhar/hidrodistilasyona tabi tutulmuştur. Yoğunlaştırılan uçucu yağ analitik dereceli susuz sodyum sülfat üzerinde kurutulmuş, kapalı amber cam şişelere aktarılmış ve analizlere kadar −18 °C'de saklanmıştır.
Ekstraksiyon verimi Picea EO için kuru bitki materyalinin ağırlıkça %0,43'ü, Pinus EO için %0,48'i olmuştur.
GC–MS neden kullanıldı?
Gaz kromatografisi–kütle spektrometrisi (GC–MS), karmaşık uçucu yağ karışımındaki bileşenlerin kromatografik olarak ayrılması ve kütle spektrumları üzerinden kimliklendirilmesini sağlayan analitik yöntemdir. Bu çalışmada GC–MS, hangi terpenlerin iki yağda bulunduğunu ve toplam kromatografik alan içindeki yaklaşık yüzdelerini belirlemek için kullanılmıştır.
Analiz Agilent 6890 GC ve Agilent 5973 MSD quadrupole sistemiyle yapılmıştır. VF-5MS kapiler kolon 30 m × 0,25 mm iç çap ve 0,25 µm film kalınlığına sahiptir. Taşıyıcı gaz helyum, akış hızı 1 mL/dakikadır. Fırın sıcaklığı 50 °C'den 250 °C'ye 6 °C/dakika hızla yükseltilmiş; iyonizasyon 70 eV'de gerçekleştirilmiş ve 50–600 m/z aralığı taranmıştır.
İki uçucu yağın kimyasal profilleri aynı mıydı?
Hayır. İki yağın da monoterpen hidrokarbonları baskın olsa da oranlar ve ikincil bileşenler önemli ölçüde farklıydı.
| Özellik | Pinus sylvestris EO | Picea abies EO |
|---|---|---|
| Ekstraksiyon verimi | %0,48 | %0,43 |
| Tanımlanan bileşen sayısı | 17 | 18 |
| Başlıca bileşen | α-Pinen: %35,27 | β-Pinen: %31,40 |
| İkinci ana bileşen | β-Pinen: %20,58 | α-Pinen: %26,43 |
| Diğer önemli bileşenler | 3-Karen %15,60; limonen %10,20; β-karyofillen %8,18 | D-limonen %11,02; kamfen %7,09; 3-karen %6,68; ökaliptol %4,49 |
Kaynak tartışmasına göre monoterpen hidrokarbonları Picea EO'nun yaklaşık %88,96'sını, Pinus EO'nun yaklaşık %86,68'ini oluşturmaktadır. Pinus EO yaklaşık %11,22 seskiterpen içerirken Picea EO örneğinde seskiterpen saptanmamıştır.
Bu kimyasal profil sabit bir tür özelliği gibi yorumlanmamalıdır. Araştırmacılar uçucu yağ bileşiminin coğrafi köken, mevsim, iğne yaşı, çevresel koşullar ve ekstraksiyon prosedüründen etkilenebileceğini özellikle vurgulamaktadır.
Bu Çalışma Pinus veya Picea Uçucu Yağlarının Kanseri Tedavi Ettiğini Gösteriyor mu?
Hayır. Çalışma yalnız insan hücre hatlarında yapılan in vitro deneyleri ve hesaplamalı in silico hedef tahminlerini içermektedir; hayvanlarda etkinlik, insanlarda doz, güvenlik, farmakokinetik, tedavi başarısı veya klinik yarar test edilmemiştir ve yazarlar kapsamlı in vivo doğrulama gerektiğini açıkça belirtmektedir.
Kullanılan hücre modelleri
| Hücre hattı | Model | Araştırmadaki rolü |
|---|---|---|
| HaCaT | İmmortalize keratinosit | Malign olmayan referans |
| A375 | Melanoma | Kanser modeli |
| HT-29 | Kolorektal adenokarsinom | Kanser modeli; en yüksek uçucu yağ duyarlılığı |
| PANC-1 | Pankreatik adenokarsinom | Kanser modeli |
HaCaT hücreleri “normal insan dokusu” ile eş anlamlı değildir. İmmortalize hücre hattı olmaları nedeniyle primer keratinositlerin ve gerçek dokunun biyolojik özelliklerini tam olarak yeniden üretemezler.
Hücre canlılığı nasıl ölçüldü?
Hücreler 96 kuyucuklu plakalara kuyucuk başına \(1\times10^4\) hücre yoğunluğunda ekilmiş ve yaklaşık %80–85 konfluansa ulaştırılmıştır.
Pinus EO ve Picea EO, 10, 50, 100, 250 ve 500 µg/mL konsantrasyonlarda uygulanmıştır. Son DMSO miktarı deney ve taşıyıcı kontrollerde %0,5 (v/v) olarak tutulmuştur. Pozitif kontrol olarak 5-florourasil kullanılmıştır.
24 saatlik uçucu yağ maruziyetinden sonra Alamar Blue eklenmiş ve 3 saat daha inkübasyon yapılmıştır. Floresans 528 nm eksitasyon ve 590 nm emisyon dalga boylarında Synergy HTX Multi-Mode Microplate Reader ile okunmuştur.
Her deney üç bağımsız biyolojik tekrarla yapılmış; her biyolojik tekrarda üç teknik tekrar bulunmuş ve teknik tekrarların ortalaması istatistiksel analize girmiştir.
IC50 neyi ifade ediyor?
IC50, bu deneyde hücre canlılığını kontrol düzeyinin yaklaşık yarısına düşürmek için gereken uçucu yağ konsantrasyonunun dört parametreli lojistik regresyonla tahmin edilen değeridir. Daha düşük IC50, aynı deney koşulları altında daha yüksek sitotoksik potansiyeli gösterir; ancak bu değer klinik doz değildir.
| Uçucu yağ | HaCaT (µg/mL) | A375 (µg/mL) | HT-29 (µg/mL) | PANC-1 (µg/mL) |
|---|---|---|---|---|
| Pinus EO | 309,17 ± 9,54 | 89,23 ± 3,63 | 21,01 ± 2,64 | 41,34 ± 4,15 |
| Picea EO | 442,73 ± 7,70 | 207,43 ± 6,19 | 65,92 ± 2,88 | 105,39 ± 9,0 |
Üç malign hücre hattının tamamında Pinus EO'nun IC50 değeri Picea EO'dan daha düşüktür. En düşük IC50 değerleri HT-29 kolorektal adenokarsinom hücrelerinde ölçülmüştür.
Seçicilik indeksi nasıl hesaplandı?
Kaynak çalışmada seçicilik indeksi (SI), malign olmayan HaCaT hücrelerinin IC50 değerinin ilgili kanser hücre hattının IC50 değerine oranı olarak hesaplanmıştır:
\[ SI=\frac{IC_{50,\;HaCaT}}{IC_{50,\;kanser}} \]
IC50 değerlerinin ikisi de µg/mL cinsinden olduğu için oran boyutsuzdur. Daha yüksek SI, mevcut hücre hattı sistemi içinde HaCaT ile kanser hücresi arasında daha büyük sitotoksisite ayrımı anlamına gelir. Bu oran klinik terapötik indeks değildir.
| Uçucu yağ | A375 | HT-29 | PANC-1 |
|---|---|---|---|
| Pinus EO | 3,46 | 14,72 | 7,48 |
| Picea EO | 2,13 | 6,72 | 4,20 |
Her iki yağ için de en yüksek SI değeri HT-29 hücrelerinde görülmüştür. Pinus EO bütün üç malign modelde Picea EO'dan daha yüksek SI değerine sahiptir.
100 µg/mL neden sonraki deneyler için seçildi?
100 µg/mL konsantrasyonu, hücre canlılığında istatistiksel olarak anlamlı bir azalma oluştururken immünofloresan ve respirometri için yeterli sayıda canlı hücre bırakması nedeniyle seçilmiştir.
Ancak bu seçimin önemli bir sınırlılığı vardır. Her hücre hattının ve iki uçucu yağın IC50 değeri farklı olduğu için 100 µg/mL bütün koşullarda aynı göreli biyolojik doz anlamına gelmemektedir. Bu nedenle farklı hücre hatlarının mekanistik yanıt büyüklüklerini doğrudan “hangisi intrinsik olarak daha hassas?” biçiminde karşılaştırmak doğru değildir.
Apoptoz Bu Çalışmada Doğrudan Kanıtlandı mı?
Hayır. Hoechst ile görülen çekirdek kondensasyonu/parçalanması, hücre yuvarlaklaşması, adezyon kaybı ve β-aktin sitoskeletonundaki bozulma apoptoz-benzeri morfolojiyle uyumludur; fakat kaspaz aktivasyonu veya başka apoptoza özgü moleküler belirteçler doğrudan ölçülmediği için araştırmacılar sonucu apoptozun kesin kanıtı olarak yorumlamamaktadır.
İmmünofloresan düzeni
Hücreler 12 kuyucuklu plakalara kuyucuk başına \(2\times10^5\) hücre ekilerek hazırlanmış ve 100 µg/mL Pinus EO veya Picea EO ile 24 saat muamele edilmiştir.
β-Aktin, 1:2000 seyreltilmiş monoklonal primer antikor ve Alexa Fluor Plus 488-konjuge 1:500 sekonder antikorla görüntülenmiştir. Çekirdekler Hoechst 33342 ile boyanmıştır. Görüntüler EVOS M5000 sisteminde 40× objektifle alınmış; her biyolojik tekrar için rastgele beş çakışmayan alan sayılmıştır.
Staurosporin 5 µM, apoptoz pozitif kontrolü olarak kullanılmıştır.
| Hücre hattı | Kontrol (%) | Pinus EO (%) | Picea EO (%) | Staurosporin (%) |
|---|---|---|---|---|
| A375 | 3,0 ± 2,0 | 37,65 ± 7,51 | 25,67 ± 6,02 | 78,0 ± 7,55 |
| HT-29 | 2,33 ± 1,52 | 65,33 ± 5,01 | 44,0 ± 5,0 | 89,33 ± 4,04 |
| PANC-1 | 7,0 ± 2,0 | 63,33 ± 5,50 | 40,67 ± 3,05 | 85,0 ± 4,0 |
HT-29 ve PANC-1 hücrelerinde Pinus EO, Picea EO'dan daha yüksek oranda çekirdek değişikliği oluşturmuştur. Ancak bütün uçucu yağ gruplarındaki oranlar pozitif kontrol staurosporinden düşüktür.
Artmış LEAK Solunumu ve Azalmış OXPHOS Ne Anlama Geliyor?
Bu çalışmadaki ortak respirometri örüntüsü, uçucu yağ maruziyetinden sonra proton gradyanının ATP sentezine daha az verimli bağlandığını düşündüren LEAK solunumu artışıyla OXPHOS bağlantılı solunumun azalmasının birlikte görülmesidir; bu durum ayrışma-benzeri bir mitokondriyal fenotiple uyumludur ancak ATP, membran potansiyeli ve proton kaçağı doğrudan ölçülmediğinden gerçek uncoupling mekanizması kanıtlanmış değildir.
Mitokondriyal respirometri nasıl yapıldı?
Oxygraph-2k yüksek çözünürlüklü respirometri sistemi kullanılmıştır. Her ölçüm kamarasına \(2\times10^6\) hücre eklenmiş; test kamarasına 100 µg/mL Pinus EO veya Picea EO uygulanmıştır.
Substrat–uncoupler–inhibitör titrasyon protokolünde sırasıyla digitonin, glutamat ve malat, ADP, süksinat, oligomisin, FCCP, rotenon ve antimycin A kullanılarak farklı mitokondriyal solunum durumları ölçülmüştür.
State 2CI, Kompleks I substratları varlığında ADP ile aktive edilmemiş LEAK durumunu; OXPHOSCI, Kompleks I destekli oksidatif fosforilasyonu; OXPHOSCI+II, Kompleks I ve II'nin birlikte desteklediği OXPHOS kapasitesini; State 4CI+II, oligomisin sonrasındaki fosforillenmeyen LEAK durumunu; ETSCI+II maksimum uncoupled elektron taşıma kapasitesini ve ETSCII Kompleks II'ye bağlı elektron taşıma kapasitesini temsil etmektedir.
A375 hücrelerinde ne oldu?
| Parametre | Kontrol | Pinus EO | Picea EO |
|---|---|---|---|
| State 2CI | 19,04 ± 3,46 | 24,68 ± 4,20 | 30,87 ± 2,92 |
| OXPHOSCI | 38,82 ± 4,68 | 33,99 ± 3,47 | 30,15 ± 3,67 |
| OXPHOSCI+II | 62,88 ± 5,28 | 61,09 ± 8,22 | 51,28 ± 2,04 |
| State 4CI+II | 16,72 ± 3,94 | 21,69 ± 1,18 | 25,09 ± 4,10 |
| ETSCI+II | 62,66 ± 7,93 | 71,03 ± 3,67 | 73,31 ± 6,33 |
| ETSCII | 21,81 ± 2,01 | 25,56 ± 3,68 | 32,81 ± 3,15 |
HT-29 hücrelerinde ne oldu?
| Parametre | Kontrol | Pinus EO | Picea EO |
|---|---|---|---|
| State 2CI | 9,44 ± 2,43 | 20,13 ± 2,10 | 15,03 ± 2,60 |
| OXPHOSCI | 25,85 ± 3,81 | 18,04 ± 2,60 | 18,44 ± 3,40 |
| OXPHOSCI+II | 39,46 ± 3,60 | 30,60 ± 3,57 | 32,02 ± 4,24 |
| State 4CI+II | 16,06 ± 4,95 | 23,44 ± 4,61 | 22,45 ± 5,13 |
| ETSCI+II | 37,89 ± 3,06 | 47,93 ± 3,53 | 44,39 ± 3,35 |
| ETSCII | 24,95 ± 2,73 | 35,13 ± 4,85 | 33,45 ± 2,54 |
PANC-1 hücrelerinde ne oldu?
| Parametre | Kontrol | Pinus EO | Picea EO |
|---|---|---|---|
| State 2CI | 13,45 ± 2,84 | 24,09 ± 3,66 | 19,88 ± 2,22 |
| OXPHOSCI | 23,54 ± 5,30 | 13,93 ± 3,16 | 17,63 ± 2,51 |
| OXPHOSCI+II | 38,31 ± 2,10 | 28,10 ± 2,73 | 33,10 ± 4,29 |
| State 4CI+II | 18,23 ± 2,19 | 25,23 ± 3,53 | 22,50 ± 3,24 |
| ETSCI+II | 46,87 ± 3,55 | 61,38 ± 9,21 | 54,75 ± 4,42 |
| ETSCII | 22,32 ± 4,32 | 32,44 ± 3,41 | 28,42 ± 3,68 |
Kaynak, oksijen akısını pmol O₂/s olarak ölçmüş ve hücre sayısına normalize etmiştir. Bu tablolar hücre hatları arasında doğrudan intrinsik duyarlılık karşılaştırması yapmak için kullanılmamalıdır; bütün respirometri deneyleri aynı 100 µg/mL nominal dozla yapılmış, fakat bu doz her hücre hattının IC50'sine göre farklı göreli maruziyet oluşturmuştur.
Elektron taşıma kapasitesi neden artarken OXPHOS azalabilir?
Çalışmada bazı ETS durumlarının artması, hücrenin daha fazla ATP üretmiş olduğu anlamına gelmez. FCCP ile ölçülen ETS kapasitesi elektron taşıma zincirinin fosforilasyondan ayrıştırılmış maksimum taşıma kapasitesini temsil eder.
Buna karşılık OXPHOS durumları elektron taşımanın ADP fosforilasyonu ve ATP senteziyle bağlantılı kısmını temsil eder. Bu nedenle artmış maksimum ETS kapasitesi ile azalmış OXPHOS aynı hücrede birlikte bulunabilir ve enerji eşleşmesinin bozulduğunu düşündürebilir.
Kaynak ATP üretimini doğrudan ölçmediği için bu yorum enerji metabolizmasına ilişkin mekanistik hipotez düzeyinde tutulmalıdır.
İstatistiksel analiz
Hücre canlılığı için tek yönlü ANOVA ve Dunnett çoklu karşılaştırma testi uygulanmıştır. Respirometri için solunum parametresi ve tedavinin faktör olduğu iki yönlü ANOVA, ardından Bonferroni çoklu karşılaştırma testi kullanılmıştır.
Çekirdek kondensasyonu/parçalanması verileri her hücre hattı için ayrı tek yönlü ANOVA ve Dunnett testiyle değerlendirilmiştir. ANOVA varsayımları Shapiro–Wilk testiyle kontrol edilmiş ve anlamlılık eşiği \(p<0,05\) olarak belirlenmiştir.
Çalışmanın Yöntemi ve Bulguları
Deneysel ve hesaplamalı araştırma zinciri
| Aşama | Yöntem | Bilimsel soru |
|---|---|---|
| 1 | Buhar/hidrodistilasyon | İğnelerden uçucu yağ nasıl elde edilir? |
| 2 | GC–MS | Yağların kimyasal bileşimi nedir? |
| 3 | Alamar Blue | Kanser ve referans hücrelerinin canlılığı nasıl değişiyor? |
| 4 | IC50 ve seçicilik indeksi | Hangi yağ ve hücre hattında göreli sitotoksik potansiyel daha yüksek? |
| 5 | β-Aktin + Hoechst immünofloresan | Hücre iskeleti ve çekirdekte hangi morfolojik değişiklikler oluşuyor? |
| 6 | Oxygraph-2k respirometri | Mitokondriyal solunum durumları nasıl değişiyor? |
| 7 | Ağ farmakolojisi | Uçucu yağ bileşenleri kolorektal kanserle ilişkili hangi proteinlerle hesaplamalı olarak örtüşüyor? |
| 8 | PPI ve zenginleştirme analizi | Hangi hedefler ağda merkezi ve hangi biyolojik süreçler zenginleşmiş görünüyor? |
| 9 | EP300 moleküler docking | Seçilmiş bileşenlerin EP300 bağlanma cebine teorik yerleşimi nasıl? |
Ağ farmakolojisi neden HT-29/kolorektal kanser üzerinde yoğunlaştırıldı?
HT-29 hücreleri hücre canlılığı deneyinde iki uçucu yağa karşı da en düşük IC50 ve en yüksek seçicilik indekslerini göstermiştir. Bu nedenle hesaplamalı ağ farmakolojisi aşamasında kolorektal kanser tercih edilmiştir.
Hedefler nasıl seçildi?
GeneCards'tan kolorektal kanser için relevance score'a göre ilk 1000 protein-kodlayan gen alınmış ve UniProt karşılıklarına dönüştürülmüştür.
GC–MS ile belirlenen uçucu yağ bileşenlerinin SMILES yapıları PubChem'den alınmış ve SwissTargetPrediction üzerinden olası biyolojik hedefler tahmin edilmiştir. InteractiVenn ile uçucu yağ hedefleri ve kolorektal kanser proteinleri kesiştirilmiştir.
Pinus EO için 80, Picea EO için 79 ortak tahmini hedef bulunmuştur.
Bileşen–hedef ağları
Cytoscape 3.10.4 kullanılarak bileşen–hedef ağları oluşturulmuştur. Pinus EO ağı 95 düğüm ve 467 kenar; Picea EO ağı 97 düğüm ve 496 kenar içermektedir.
Bu ağların kenarları deneysel protein bağlanması değildir; SwissTargetPrediction tarafından hesaplamalı olarak tahmin edilen ilişkileri temsil etmektedir.
Protein–protein etkileşim analizi
Ortak hedefler STRING veritabanında insan proteinleri için analiz edilmiş; güven düzeyi >0,700 ve yanlış keşif oranı %5 olarak ayarlanmıştır.
Pinus EO için beş bağlantısız hedef çıkarıldıktan sonra PPI ağı 75 düğüm ve 548 kenardan oluşmuştur. HIF1A, CTNNB1, HSP90AA1, JUN, RELA, PTGS2, BCL2 ve EP300 yüksek dereceli düğümler arasında yer almıştır.
Picea EO PPI ağı 72 düğüm ve 476 kenardan oluşmuş; HIF1A, CTNNB1, HSP90AA1, EP300, PTGS2 ve STAT1 yüksek bağlantılı düğümler arasında bulunmuştur.
CytoHubba MCC sıralaması ve degree, closeness centrality ve betweenness centrality metrikleri birlikte değerlendirilmiştir.
Zenginleştirme analizinin yorumu
Pinus EO tahmini hedeflerinde apoptoz düzenlenmesi ve VEGFA–VEGFR2 sinyallemesi dahil çeşitli biyolojik süreçler zenginleşmiştir. Picea EO'da da apoptoz ve VEGFA–VEGFR2 ile ilişkili terimler görülmüştür.
Bu sonuçların, immünofloresan deneyinde görülen apoptoz-benzeri morfolojiyle kavramsal uyum göstermesi önemlidir; fakat ağ zenginleştirmesi deneysel mekanizma doğrulaması değildir.
EP300 Moleküler Docking Bulgusu Neyi Gösteriyor, Neyi Göstermiyor?
Docking analizi, seçilmiş uçucu yağ bileşenlerinin EP300 bromodomain bağlanma bölgesine hesaplamalı olarak hangi pozisyon ve enerji skorlarıyla yerleşebileceğini tahmin eder; β-karyofillen −6,6 kcal/mol ile incelenen uçucu yağ bileşenleri arasında en elverişli skoru göstermiştir, ancak bu sonuç EP300'e gerçek hücresel bağlanmayı, hedef işgalini veya EP300 fonksiyonunun değiştiğini kanıtlamaz.
EP300 neden seçildi?
EP300 her iki uçucu yağın PPI analizinde ortak önemli hedeflerden biri olarak bulunmuş ve yüksek çözünürlüklü, tanımlı küçük molekül bağlanma cebi içeren deneysel kristal yapısının bulunması nedeniyle yapısal docking için uygun kabul edilmiştir.
Kullanılan insan EP300 bromodomain yapısı PDB ID 5NU5'tir.
Docking protokolü
AutoDock Vina 1.1.2, PyRx 0.8 içinde kullanılmıştır. Protein yapısında Chain A tutulmuş, su ve protein dışı bileşenler çıkarılmıştır.
Grid merkezi:
\[ x=40.373,\quad y=5.164,\quad z=11.258\;\text{Å} \]
Grid boyutları:
\[ 17.486\times15.407\times14.300\;\text{Å} \]
Exhaustiveness değeri 8 olarak ayarlanmıştır.
Ortak kristal ligand 99E aynı koşullarda yeniden dock edilmiş ve kristal konformasyonuna göre RMSD değeri 1,64 Å bulunmuştur. Bu işlem docking geometrisinin makul biçimde yeniden üretilebildiğini kontrol etmek için kullanılmıştır.
| Bileşik | Kaynak | Tahmini bağlanma afinitesi (kcal/mol) |
|---|---|---|
| 99E | Kristal referans ligand | −7,9 |
| β-Karyofillen | Pinus EO | −6,6 |
| Limonen | Pinus EO | −5,8 |
| 3-Karen | Pinus EO / Picea EO | −5,2 |
| D-Limonen | Picea EO | −4,6 |
| Kamfen | Picea EO | −4,5 |
| β-Pinen | Pinus EO / Picea EO | −4,4 |
| α-Pinen | Pinus EO / Picea EO | −4,2 |
Referans 99E ligandının −7,9 kcal/mol skoru bütün incelenen uçucu yağ bileşenlerinden daha elverişlidir. Dolayısıyla β-karyofillen “EP300 için güçlü doğrulanmış inhibitör” şeklinde yorumlanmamalıdır.
β-Karyofillen hangi etkileşimleri gösterdi?
Tahmini modelde β-karyofillen Val1079, Leu1084 ve Val1138 ile alkil temasları; Pro1074, Ile1086, Tyr1089, Tyr1131 ve Asn1132 ile van der Waals temasları göstermiştir. Konvansiyonel hidrojen bağı bulunmamıştır.
Bu etkileşim profili bileşiğin hidrofobik karakteriyle uyumludur, fakat yalnız hesaplamalı yerleşim hipotezidir.
D-Limonen için sonuç
D-Limonen −4,6 kcal/mol tahmini skor göstermiş; Phe1075, Val1079, Ala1128 ve Val1138 ile hidrofobik alkil/π-alkil temasları ve çok sayıda van der Waals teması tahmin edilmiştir. Bu kompleks için de konvansiyonel hidrojen bağı bulunmamıştır.
Çalışmanın desteklediği sonuçlar
Pinus ve Picea iğne uçucu yağları test edilen üç malign hücre hattında 24 saat içinde konsantrasyona bağlı sitotoksisite oluşturmuştur.
Pinus EO, mevcut deney koşullarında A375, HT-29 ve PANC-1 hücrelerinin tümünde Picea EO'dan daha düşük IC50 göstermiştir.
En yüksek göreli seçicilik HT-29 hücrelerinde görülmüştür.
100 µg/mL uygulama sonrasında çekirdek ve sitoskeleton değişiklikleri apoptoz-benzeri hücre morfolojisiyle uyumludur.
Respirometri LEAK artışı ve OXPHOS azalmasıyla uyumlu ortak bir mitokondriyal değişim örüntüsü göstermiştir.
Ağ farmakolojisi ve docking, EP300 dahil çeşitli hedeflerin ileri deneylerde araştırılması için hesaplamalı hipotez üretmiştir.
Çalışmanın desteklemediği sonuçlar
Uçucu yağların insanlarda kanseri tedavi ettiği veya tümör küçülttüğü gösterilmemiştir.
Güvenli insan dozu belirlenmemiştir.
Farmakokinetik, metabolizma ve sistemik toksisite araştırılmamıştır.
Apoptoz moleküler belirteçlerle doğrulanmamıştır.
ATP üretiminin düştüğü doğrudan ölçülmemiştir.
Mitokondriyal uncoupling doğrudan kanıtlanmamıştır.
EP300 veya PTGS2/COX-2'nin uçucu yağ etkisinin gerçek hücresel hedefi olduğu kanıtlanmamıştır.
Moleküler docking gerçek protein–ligand bağlanması değildir.
HaCaT ile hesaplanan seçicilik, primer normal doku veya klinik güvenlik indeksi olarak kabul edilmemelidir.
Çalışmanın temel sınırlılıkları
HaCaT modeli: İmmortalize keratinosit hücre hattı primer normal dokuyu tam temsil etmez.
Tek mekanistik doz: İmmünofloresan ve respirometri yalnız 100 µg/mL'de yapılmıştır; bu doz farklı IC50 değerleri nedeniyle hücre hatları arasında eşdeğer göreli maruziyet değildir.
Apoptoz doğrulaması: Morfoloji apoptoz-benzeridir; spesifik apoptoz belirteçleri ölçülmemiştir.
Mitokondriyal doğrulama: ATP, ROS ve mitokondriyal membran potansiyeli doğrudan ölçülmemiştir.
GeneCards seçimi: İlk 1000 gen relevance score'a göre seçilmiştir; bu skor doğrudan biyolojik önem ölçütü değildir.
Biyoyararlanım: Uçucu yağ bileşenleri hedef tahmininden önce biyoyararlanım filtresinden geçirilmemiştir.
Docking sınırı: Yalnız belirli önemli bileşenler ve EP300 üzerinde teorik etkileşim hesabı yapılmıştır.
In vivo eksikliği: Hayvan veya organizma düzeyinde doğrulama yapılmamıştır.
Karışım karmaşıklığı: Uçucu yağların etkisi sinerjik, additif veya antagonistik bileşen etkileşimlerinden kaynaklanabilir; toplam etkinin tek bileşiğe atanması doğru değildir.
Kimyasal değişkenlik: Botanik köken, çevresel koşullar, hasat zamanı ve ekstraksiyon yöntemi uçucu yağ bileşimini ve biyolojik tekrarlanabilirliği değiştirebilir.
Gelecek araştırmalar için kaynak-destekli yönler
Farklı dozlarda immünofloresan ve mitokondriyal deneyler yapılması, ATP ve membran potansiyelinin ölçülmesi, ROS değerlendirmesi, hedef-etkileşim deneyleriyle EP300 ve diğer tahmini proteinlerin doğrulanması, daha geniş malign ve primer normal hücre panellerinin kullanılması ve sonuçların in vivo modellerde test edilmesi gerekmektedir.
Uçucu yağların klinik geliştirmeye yaklaşabilmesi için ayrıca bileşim standardizasyonu, farmakokinetik, toksikolojik değerlendirme ve biyoyararlanım gibi özelliklerin araştırılması gerekecektir.
Kaynak ve Yöntem Notu
Özgün çalışma: In Vitro and In Silico Assessment of the Anti-Cancer Potential of Pinus sylvestris and Picea abies Needle Essential Oils
Yazarlar: Silvia Gruin; Alexandra Mioc; Roxana Racoviceanu; Tamara Maksimovic; Mihaela Jorgovan; Alexandra Prodea; Elisabeta Atyim; Alexandra T. Lukinich-Gruia; Maria-Alexandra Pricop; Codruța Șoica.
Sorumlu yazar: Alexandra Mioc.
Kurumlar: Faculty of Medicine ve Faculty of Pharmacy, “Victor Babeș” University of Medicine and Pharmacy; Research Centre for Experimental Pharmacology and Drug Design (X-Pharm Design); OncoGen Centre, Clinical County Hospital “Pius Branzeu”; Department of Applied Chemistry and Environmental Engineering and Inorganic Compounds, Polytechnic University of Timisoara, Romanya.
Dergi: Applied Sciences.
Yayınevi: MDPI.
Bibliyografik kayıt: Applied Sciences, 2026, 16(17), Article 8839.
DOI: 10.3390/app16178839.
Resmî bağlantı: https://doi.org/10.3390/app16178839
Yayın süreci: Alınış 27 Temmuz 2026; revizyon 2 Eylül 2026; kabul 3 Eylül 2026; yayın 5 Eylül 2026.
Özel sayı: Natural Products: Biological Activities and Applications.
Kaynak türü: Hakemli ve yayımlanmış deneysel/h hesaplamalı araştırma makalesi; in vitro ve in silico çalışma.
Lisans: Creative Commons Attribution (CC BY).
Bitki materyali: Romanya'nın Doğu Karpatlarındaki Vrancea bölgesinden bir yıllık Picea abies ve Pinus sylvestris iğneleri.
Ekstraksiyon: Craveiro tipi düzenekte 100 g kuru bitki materyali, 100 °C, 4 saat hidrodistilasyon; uçucu yağlar −18 °C'de saklanmıştır.
Kimyasal analiz: Agilent 6890 GC + Agilent 5973 MSD; VF-5MS kolon; NIST11 kütle spektral kütüphanesi ve retention index karşılaştırması.
Hücre modelleri: HaCaT, A375, HT-29 ve PANC-1.
Hücre canlılığı: Alamar Blue; 10, 50, 100, 250 ve 500 µg/mL; 24 saat maruziyet; n=3 bağımsız biyolojik tekrar ve her tekrarda üç teknik tekrar.
İmmünofloresan: 100 µg/mL, 24 saat; β-aktin/Alexa Fluor 488 ve Hoechst 33342; EVOS M5000, 40×; n=3 ve biyolojik tekrar başına beş rastgele alan.
Yüksek çözünürlüklü respirometri: Oxygraph-2k; hücre kamarası başına \(2\times10^6\) hücre; 100 µg/mL uçucu yağ; substrat–uncoupler–inhibitör titrasyon protokolü; n=3 bağımsız hücre hazırlığı.
İstatistik: Tek yönlü ANOVA + Dunnett; iki yönlü ANOVA + Bonferroni; Shapiro–Wilk varsayım kontrolü; \(p<0,05\).
Ağ farmakolojisi: GeneCards, UniProt, PubChem, SwissTargetPrediction, InteractiVenn, Cytoscape 3.10.4, STRING ve Metascape.
STRING koşulları: Güven düzeyi >0,700; FDR %5.
Docking: AutoDock Vina 1.1.2 / PyRx 0.8; EP300 bromodomain PDB ID 5NU5; exhaustiveness 8; protokol redocking RMSD değeri 1,64 Å.
Ana deneysel sonuç: Pinus EO ve Picea EO test edilen malign hücrelerde konsantrasyona bağlı in vitro sitotoksisite göstermiş, en yüksek göreli seçicilik HT-29 hücrelerinde görülmüştür.
Ana hesaplamalı sonuç: EP300 her iki yağ için ortak önemli tahmini hedeflerden biri olarak belirlenmiş; β-karyofillen incelenen uçucu yağ bileşenleri içinde en elverişli EP300 docking skorunu göstermiştir.
Finansman/yayın desteği: “Victor Babeș” University of Medicine and Pharmacy Timișoara, çalışmanın yayın maliyetlerinin karşılanmasına destek sağlamıştır.
Etik kurul: Uygulanabilir değildir.
Bilgilendirilmiş onam: Uygulanabilir değildir.
Veri erişilebilirliği: Özgün katkıların makale içinde bulunduğu, ek soruların sorumlu yazara yöneltilebileceği bildirilmiştir.
Çıkar çatışması: Yazarlar çıkar çatışması bildirmemiştir.
Yazar katkıları: Kavramsallaştırma Silvia Gruin ve Codruța Șoica; yöntem Alexandra Mioc ve Silvia Gruin; yazılım Alexandra T. Lukinich-Gruia ve Tamara Maksimovic; doğrulama Alexandra Mioc, Roxana Racoviceanu ve Alexandra T. Lukinich-Gruia; formal analiz Roxana Racoviceanu, Tamara Maksimovic, Maria-Alexandra Pricop ve Alexandra Mioc; araştırma Silvia Gruin, Roxana Racoviceanu, Maria-Alexandra Pricop, Mihaela Jorgovan, Alexandra Prodea ve Elisabeta Atyim; veri kürasyonu Alexandra Mioc ve Alexandra Prodea; ilk taslak Silvia Gruin, Elisabeta Atyim ve Mihaela Jorgovan; gözden geçirme Alexandra Mioc ve Codruța Șoica; görselleştirme ve gözetim Codruța Șoica tarafından yürütülmüştür.
Temel yorum sınırı: Bulgular in vitro ve in silico düzeydedir. Apoptoz, mitokondriyal uncoupling, EP300 veya PTGS2/COX-2 mekanizmaları doğrudan doğrulanmış klinik veya moleküler mekanizmalar olarak sunulmamalıdır.
Telif ve yeniden kullanım notu: Kaynak makale CC BY lisanslıdır. Bu Verianla içeriği kaynak makalenin mekanik Türkçe çevirisi değildir; deney düzeni, ölçümler, sayısal sonuçlar ve yorum sınırları korunarak bağımsız öğretim yapısında yeniden oluşturulmuştur. Gerçek immünofloresan mikroskopi görüntülerinin üretken modellerle sahte benzerlerinin oluşturulması bilimsel olarak uygun değildir; nicel grafikler ve yöntem akışları ise kaynak verilerinden özgün biçimde yeniden çizilebilir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir