

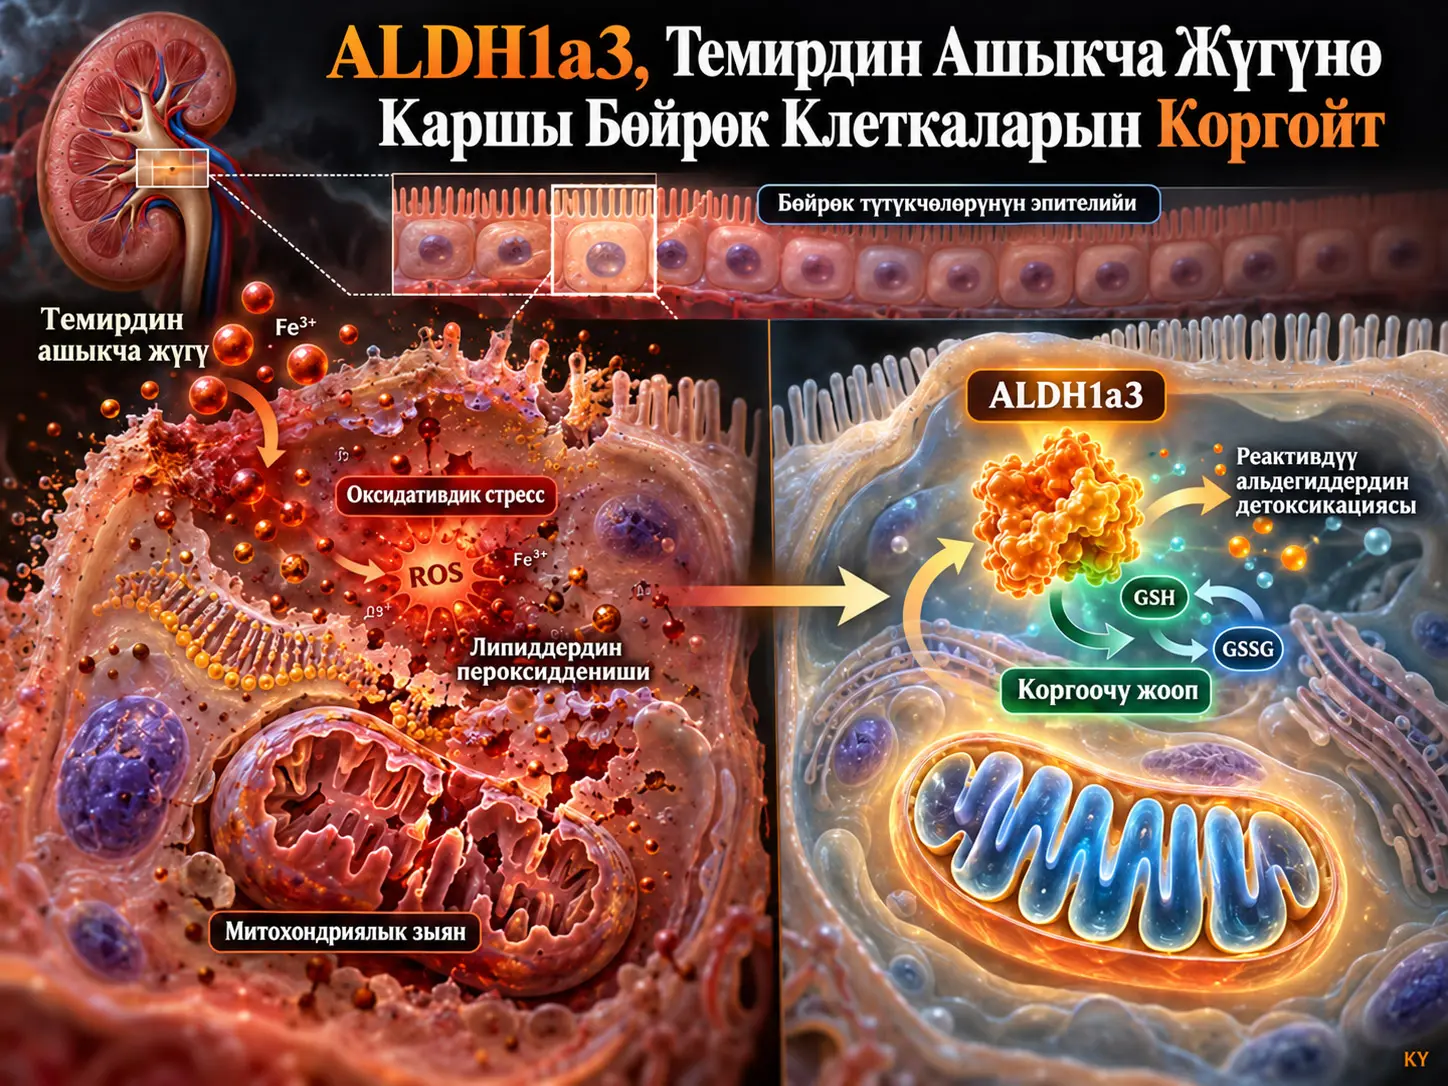
Альдегид дегидрогеназа 1a3 (aldehyde dehydrogenase 1a3, ALDH1a3) — липиддердин пероксидденүүсү учурунда пайда болушу мүмкүн болгон реактивдүү альдегиддерди детоксикациялоого көмөк көрсөтүүчү альдегид дегидрогеназа ферменти. Бул эксперименттик изилдөө өнөкөт темир ашыкча жүктөлүшү бөйрөк түтүкчөлөрүнүн эпителийинде пайда кылган оксидативдик стресс жана митохондриялык зыян маалында ALDH1a3 эндогендик коргоочу фактор катары иштейби же жокпу, ошону изилдеген. Изилдөөчүлөр эркек C57BL/6N чычкандарында 24 жума бою %2,25 феррик цитрат менен өнөкөт темир жүгүн түзүшкөн; ошондой эле TCMK-1 бөйрөк түтүкчөлөрүнүн эпителий клеткаларында феррик аммоний цитратын (FAC) колдонуп, ALDH1a3 ашыкча экспрессиясын жана ингибициясын салыштырышкан.
Өнөкөт темир ашыкча жүктөлүшү бөйрөктө темирдин топтолушун, түтүкчөлүк зыянды, жогорулаган мочевина жана креатининди, төмөндөгөн сыворотка GSH деңгээлин, жогорулаган MDA жана 4-HNE деңгээлдерин жана айкын митохондриялык структуралык бузулууларды пайда кылган. Ошол эле шарттарда бөйрөк түтүкчөлөрүнүн эпителий клеткаларында ALDH1a3 экспрессиясы жогорулаган. TCMK-1 клеткаларында ALDH1a3 ашыкча экспрессиясы клетканын жашоого жөндөмдүүлүгүн жогорулатып, ROS жана MDAны азайтып, митохондриялык мембрана потенциалын сактап, ыңгайлуураак GSH/GSSG редокс абалы менен байланышкан.
ALDH1a3 ингибициясы жалпысынан тескери багыттагы натыйжаларды берген; клетканын жашап калуусу жана жалпы антиоксиданттык сыйымдуулук азайып, Havcr1 жана MDA жогору бойдон калган жана кычкылданган глутатион GSSG көбөйгөн. Бирок ингибитор + FAC тобунда ROS жана митохондриялык мембрана потенциалы FAC тобуна салыштырмалуу кошумча түрдө олуттуу начарлаган эмес. Ошондуктан ALDH1a3 бардык оксидативдик стресс жыйынтыктарын бир эле механизм менен көзөмөлдөйт деген тыянак чыгарууга болбойт.
Ферроптоз жагынан чычкан жана клетка моделдеринин ортосунда маанилүү айырма табылган. Өнөкөт темир жүктөлгөн чычкан бөйрөгүндө ACSL4 жана GPX4 олуттуу өзгөргөн эмес, митохондриялар болсо типтүү ферроптоздук кичирейүүнүн ордуна шишиген. Ал эми FAC берилген TCMK-1 клеткаларында ACSL4 көбөйүп, GPX4 азайган; ALDH1a3 ашыкча экспрессиясы бул өзгөрүүлөрдү тескери бурган. Демек, изилдөө ALDH1a3 клетка моделиндеги ферроптоздук сезимталдык менен байланыштуу экенин колдойт, бирок өнөкөт чычкан бөйрөк зыянынын баарын ферроптоз катары аныктабайт.
Dimercaprol (DP) кийлигишүүсү бөйрөктөгү темирдин топтолушун жана оксидативдик зыянды азайтып, ALDH1a3 экспрессиясынын жогорулашы менен кошо байкалган. Бирок 16 mg/kg жогорку дозада кошумча түтүкчөлүк зыян жана органелла стресси белгилери пайда болгон. Изилдөө ALDH1a3тү темир ашыкча жүктөлүшүнө байланышкан бөйрөк зыяны үчүн потенциалдуу дарылоо бутасы катары сунуштайт; бирок бул жыйынтык жаныбар жана клетка моделдерине негизделген жана адамдарда ырасталган дарылоо стратегиясы эмес.
Темир эмне үчүн бир эле учурда зарыл да, уулуу да болушу мүмкүн?
Темир кычкылтек ташуу, электрон өткөрүү жана көптөгөн ферменттик реакциялар үчүн зарыл элемент. Бирок эркин же туура эмес топтолгон редокс-активдүү темир Фентон жана ага байланышкан редокс реакциялары аркылуу жогорку реактивдүүлүккө ээ оксидант түрлөрүнүн пайда болушуна көмөк көрсөтүшү мүмкүн.
Бул радикалдар белокторго, нуклеин кислоталарына жана өзгөчө көп каныкпаган май кислоталарын камтыган мембрана липиддерине кол салышы мүмкүн. Липиддердин кычкылданышы башталганда мембрананын түзүлүшү гана бузулбастан, малондиальдегид (MDA) жана 4-гидроксиноненал (4-HNE) сыяктуу реактивдүү альдегиддер да пайда болот.
Бул реактивдүү альдегиддер алгачкы ROS окуясынан кийин жашоо мөөнөтү узагыраак болгон экинчи уулуу продуктулар катары белокторду жана мембрана компоненттерин өзгөртө алышат. Изилдөөнүн ALDH1a3кө көңүл бурушунун негизги себеби дал ушул экинчи зыян катмары болуп саналат.
Бөйрөк түтүкчөлөрүнүн эпителий клеткалары эмне үчүн сезимтал?
Бөйрөк түтүкчөлөрүнүн эпителий клеткалары заттарды интенсивдүү кайра соруп алгандыктан энергияга муктаждыгы жогору жана көп сандагы митохондрияларды камтыйт. Митохондриялык электрон ташуу системасы өзү да редокс кошумча продуктуларын жаратышы мүмкүн. Эркин темирдин көбөйүшү митохондриядан чыккан оксиданттар менен бирге клетканын редокс жүгүн жогорулатышы мүмкүн.
Изилдөөдө өнөкөт феррик цитрат жүгүнөн кийин темирдин олуттуу көлөмдө түтүкчөлүк эпителий клеткаларында топтолгону көрсөтүлүшү изилдөө эмне үчүн дал ушул клеткалык компартментке багытталганын түшүндүрөт.
ALDH1a3 Темир Ашыкча Жүктөлгөндө Кантип Коргой Алат?
Булактын эксперименттик жыйынтыктарына ылайык, ALDH1a3 темир жүгү астында көбөйгөн реактивдүү липид пероксидденүү альдегиддеринин жүгүн азайтуу, GSH/GSSG редокс чөйрөсүн көбүрөөк калыбына келген абалда кармоо жана митохондриялык бүтүндүктү сактоого салым кошуу менен байланышкан эндогендик коргоочу фактор; бирок бул изилдөөдө ALDH1a3 бул таасирлердин баарын кайсы бир эле молекулалык жол аркылуу жаратаары толук чечмеленген эмес.
ALDH1a3түн классикалык кызматы жана бул изилдөөдөгү ролу
ALDH1a3 ретинальдегид метаболизми жана ретиноид кислотасынын биологиясы менен белгилүү болгон альдегид дегидрогеназа үй-бүлөсүнүн мүчөсү. Ошол эле фермент үй-бүлөсү клетка үчүн уулуу болушу мүмкүн болгон ар кандай альдегиддердин азыраак реактивдүү карбоксил кислотасы туундуларына кычкылданышына да көмөк көрсөтө алат.
Темир ашыкча жүктөлгөндө липид пероксидденүүсү тездеген сайын реактивдүү альдегиддердин өндүрүлүшү көбөйүп, бул детоксикация жөндөмү бөйрөк түтүкчөлөрүнүн клеткалары үчүн өзгөчө маанилүү болуп калышы мүмкүн.
Темир жүгү ALDH1a3кө кандай таасир берди?
Чычкан бөйрөгүнүн транскриптомдук анализинде ALDH1a3 экспрессиясы темир жүктөлгөн топто жогорулаган. Western blot бул жогорулашты белок деңгээлинде ырастаган.
FTL менен ALDH1a3 иммунофлуоресценттик боёосунда эки сигналдын бөйрөк түтүкчөлөрүнүн эпителий клеткаларында бирге көбөйүшү ALDH1a3 жообу темирди сактоо жообу жүрүп жаткан клеткалык аймактар менен дал келерин көрсөткөн.
TCMK-1 клеткаларында 12 сааттык FAC таасиринде да ушундай жыйынтык байкалган. Өзгөчө 200 µM FAC шартында transferrin азайып, Ferritin Light Chain (FTL) көбөйүп жана ALDH1a3 экспрессиясы жогорулаган.
ALDH1a3 ашыкча экспрессиясы эмнени өзгөрттү?
Изилдөөчүлөр ALDH1a3тү TCMK-1 клеткаларында эксперименттик түрдө ашыкча экспрессия кылып, жөн гана байкоочу экспрессия өсүшүнөн ары өтүп, функцияны-көбөйтүү ыкмасын колдонушкан.
| Жыйынтык көрсөткүч | FAC таасири | ALDH1a3 ашыкча экспрессиясынан кийинки көрүнүш |
|---|---|---|
| Клетканын жашоого жөндөмдүүлүгү | Азайуу | Жакшыртуу |
| Havcr1 | Көбөйүү | Контролго жакындаган азайуу |
| MDA | Көбөйүү | Азайуу |
| ROS | Көбөйүү | Басылышы |
| Митохондриялык мембрана потенциалы | Азайуу | Жакшыраак сакталуу |
| Жалпы антиоксиданттык сыйымдуулук | Стресс менен өзгөрүү | Жогору сыйымдуулук |
| GSH | Азайуу тенденциясы | Жогорураак деңгээлдин сакталуусу |
| GSSG | Көбөйүү | Төмөнүрөөк деңгээл |
| SOD | Өзгөрүү | ALDH1a3 ашыкча экспрессиясына байланыштуу олуттуу кошумча өзгөрүү жок |
| CAT | Өзгөрүү | ALDH1a3 ашыкча экспрессиясына байланыштуу олуттуу кошумча өзгөрүү жок |
GSH/GSSG катышынын биологиялык мааниси
Глутатиондун калыбына келген формасы GSH клетканын негизги тиол-негиздүү антиоксиданттык буферлеринин бири. Оксидативдик реакцияларда GSH кычкылданып GSSG түзүшү мүмкүн. Ошондуктан жогорку GSH жана төмөн GSSG жалпысынан көбүрөөк калыбына келген жана оксидативдик жүктү буферлей алган клеткалык чөйрөгө туура келет.
Булакта GSH төмөнкү байланыш менен эсептелген:
GSH = жалпы глутатион − 2 × GSSG
GSSG молекуласы эки глутатион бирдигинен тургандыктан, жалпы глутатион резервинен кычкылданган фракциянын эки эсеси алынып салынат.
ALDH1a3 ашыкча экспрессиясынын GSH сакталуусу жана GSSG төмөн бойдон калышы менен кошо байкалышы фермент клеткалык редокс чөйрөсүнө салым кошо аларын колдойт. Бирок булак glutathione reductase (GR) жана glutathione peroxidase (GPx) деңгээлдерин түз өлчөгөн эмес.
SOD жана CAT эмне үчүн маанилүү терс жыйынтык?
ALDH1a3 ашыкча экспрессиясында SOD жана CAT активдүүлүгүнүн олуттуу өзгөрбөшү байкалган коргонуу классикалык superoxide dismutase же catalase активдүүлүгүнүн көбөйүшү менен гана түшүндүрүлбөй турганын көрсөтөт.
Ошондуктан авторлор ALDH1a3 реактивдүү альдегиддерди азайтуу жана GSH/GSSG редокс айланмасын сактоо аркылуу башка антиоксиданттык катмар түзүшү мүмкүн экенин талкуулашат.
ALDH1a3 ингибициясы эмнени көрсөттү?
Функцияны-көбөйтүү тажрыйбасын толуктоочу ыкма катары изилдөөчүлөр ALDH1a3-IN-3 ингибиторун FACтен 2 саат мурун колдонуп, клеткаларды жалпысынан 12 саат темир стрессине дуушар кылышкан.
Ингибиция клетканын төмөн жашоого жөндөмдүүлүгү, жогору Havcr1, жогору MDA, төмөн жалпы антиоксиданттык сыйымдуулук жана жогору GSSG менен байланышкан.
Бирок FAC + ингибитор тобунда ROS сигналы жана митохондриялык мембрана потенциалы FAC тобуна салыштырмалуу кошумча түрдө олуттуу өзгөргөн эмес. Демек, функцияны-жоготуу тажрыйбасы жалпы коргоочу ролду колдосо да, бардык фенотиптерде сызыктуу доза–жооп же бир багыттуу начарлоо байкалган эмес.
Бул Изилдөө Ферроптоз Бөйрөк Зыянынын Негизги Себеби Экенин Көрсөтөбү?
Жок. Өнөкөт темир жүктөлгөн чычкан бөйрөктөрүндө ACSL4 жана GPX4 олуттуу өзгөргөн эмес жана митохондриялар классикалык ферроптоздук кичирейүүнүн ордуна шишиген; ферроптозго шайкеш ACSL4 көбөйүшү жана GPX4 азайышы гана бир тектүүрөөк жана курч 12 сааттык FAC клетка моделинде даана көрүнгөн.
Чычкан бөйрөгүндөгү жыйынтык
Темир ашыкча жүктөлүшү менен ферроптоздун байланышы биологиялык жактан күчтүү ыктымалдык болсо да, бул изилдөөнүн in vivo маалыматтары классикалык ферроптоз профилин көрсөткөн эмес.
Supplementary Figure S1де ACSL4 жана GPX4 олуттуу өзгөргөн эмес. Электрондук микроскопияда да типтүү ферроптоздук митохондрия кичирейүүсүнүн ордуна митохондриялык шишүү, кристалардын эриши/сынуусу жана матрикс вакуолизациясы байкалган.
TCMK-1 клеткаларындагы жыйынтык
FAC менен 12 саат темир стресси берилген TCMK-1 клеткаларында ACSL4 жогорулап, GPX4 азайган. Бул көрүнүш ферроптоздук клетка зыянына шайкеш келет.
ALDH1a3 ашыкча экспрессиясы ACSL4 жана GPX4 деңгээлдерин контролдук багытка жылдырган; ингибитор колдонулганда болсо жогорку ACSL4 жана төмөн GPX4 көрүнүшү уланган.
Булак бул моделдик айырманы клетка культурасынын бир тектүү жана түздөн-түз темир стрессине ачыгыраак болушу жана бүтүндөй бөйрөк тканы ар кандай клетка түрлөрүн жана көптөгөн компенсациялык механизмдерди камтышы менен түшүндүрөт.
Митохондрия эмне үчүн борбордо?
Темир ашыкча жүктөлгөн бөйрөктөрдө электрондук микроскопия митохондриялык шишүүнү, криста бузулушун жана матрикс бүтүндүгүнүн жоголушун көрсөткөн. Клетка моделинде JC-1 боёгу менен митохондриялык мембрана потенциалынын төмөндөшү да ошол эле функционалдык бузулууну колдогон.
JC-1 жогорку мембрана потенциалында агрегаттарды түзүп кызыл флуоресценция берет, ал эми мембрана потенциалы түшкөндө мономер түрүндө көбүрөөк жашыл флуоресценция берет. Ошондуктан кызылдан жашылга өтүү изилдөөдө митохондриялык деполяризациянын көрсөткүчү катары колдонулган.
MDA жана 4-HNE эмне үчүн митохондрияга зыян келтириши мүмкүн?
MDA жана 4-HNE липид пероксидденүүсүнүн реактивдүү карбонил продуктулары. Бул альдегиддер мембрана белоктору жана башка макромолекулалар менен реакцияга кирип, алгачкы ROS пайда болушу токтогондон кийин да клеткалык зыянды уланта алышат.
Авторлордун механисттик түшүндүрмөсүнө ылайык, ALDH1a3 бул альдегид жүгүн азайтуу аркылуу митохондриялык мембрана белокторуна жана кардиолипинге болгон экинчи зыянды чектей алат. Бирок изилдөөдө ALDH1a3 тарабынан метаболизмге учураган белгилүү альдегиддердин түз метаболомдук аныкталышы жүргүзүлгөн эмес.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Жаныбар тажрыйбасынын дизайны
| Этап | Шарт | Максат |
|---|---|---|
| Башталыш | 95 даана, 8 жумалык эркек C57BL/6N чычкан | Өнөкөт темир жүгү модели |
| Адаптация | 1 жума; SPF, 18–22 °C, %50–60 нымдуулук, 12 саат жарык/караңгы | Стандартташтырылган кармоо |
| Контроль | n=25, стандарттык диета | Нормалдуу салыштыруу |
| Темир модели | n=70, %2,25 феррик цитраттуу диета | Өнөкөт темир ашыкча жүгү |
| Алгачкы анализ | 24. жумада ар бир баштапкы топтон 10 чычкан | Темир жүгүнүн бөйрөккө таасирин баалоо |
| Экинчи мезгил | Калган чычкандарда нормалдуу диетага өтүү | DP кийлигишүү мезгили |
| DP төмөн | 4 mg/kg/gün, intraperitoneal | Доза жообу |
| DP орто | 8 mg/kg/gün, intraperitoneal | Доза жообу |
| DP жогорку | 16 mg/kg/gün, intraperitoneal | Доза жообу жана уулуулук сигналы |
| Кийлигишүү узактыгы | 4 жума | Бөйрөктүн калыбына келиши жана коопсуздук көрүнүшү |
Бөйрөк функциясы жана гистология
Сывороткадагы мочевина жана креатинин автоматтык биохимиялык анализатор менен өлчөнгөн. Бөйрөк салмагы катталып, орган салмагы/дене салмагы катыштары бааланган.
Парафиндик бөйрөк кесиндилеринде H&E боёосу морфологиялык зыянды, ал эми Пруссия көгү боёосу темирдин топтолушун көрсөткөн. Феррик цитрат тобунда түтүкчөлүк цитоплазмалык вакуолизация жана айкын темир топтолушу байкалган.
Havcr1 эмне үчүн өлчөндү?
Havcr1 Kidney Injury Molecule-1 (KIM-1) деп да аталган бөйрөк түтүкчөлүк жаракат көрсөткүчүн коддойт. Булак Havcr1 mRNAсын qRT-PCR менен өлчөп, 2−ΔΔCt ыкмасын колдонгон.
Бул ыкма максаттуу гендин экспрессиясын ички контроль генине салыштырмалуу нормалдаштырып, андан кийин эталондук топко карата салыштырмалуу өзгөрүүнү эсептейт. Изилдөөдө β-actin эндогендик контроль катары колдонулган.
Транскриптомдук скринингдин ролу
Бөйрөк RNAсы Illumina негизиндеги транскриптомдук секвенирлөөгө алынган. Бул анализ темир ашыкча жүктөлүшүндө өзгөргөн гендерди кеңири масштабда скрининг кылууга мүмкүндүк берип, ALDH1a3тү жогорулаган талапкерлердин бири катары аныктаган.
ALDH1a3 табылгасынын транскриптомдук деңгээлде гана калтырылбашы маанилүү. Белок экспрессиясы Western blot жана клеткалык локализация иммунофлуоресценция менен кошумча ырасталган.
Темирди сактоо жана ташуу көрсөткүчтөрү
Ferritin Light Chain (FTL) клеткалык темир сактоо системасы менен, transferrin болсо темир ташуу менен байланышкан. FAC дозасы жогорулаган клетка тажрыйбасында transferrin азайып, FTL көбөйгөн.
Авторлор бул көрүнүштү клеткалар өсүп жаткан эркин темирди ташууга караганда сактоого көбүрөөк багытталганын көрсөткөн белги катары чечмелешкен.
Оксидативдик стресс өлчөөлөрү
| Өлчөө | Илимий мааниси | Ыкма |
|---|---|---|
| MDA | Липид пероксидденүүсүнүн продуктусу | Биохимиялык кит |
| 4-HNE | Реактивдүү липид пероксидденүү альдегиди | Western blot |
| ROS | Оксидант жүгү менен байланышкан клеткалык флуоресценция | DCFH-DA |
| GSH | Калыбына келген глутатион | Глутатион анализи |
| GSSG | Кычкылданган глутатион | Глутатион анализи |
| Жалпы антиоксиданттык сыйымдуулук | Жалпы редокс буферлөө сыйымдуулугу | Микропластинка негизиндеги кит |
| SOD | Супероксидди өзгөртүү сыйымдуулугу | Total SOD активдүүлүк тести |
| CAT | Суутек пероксидин детоксикациялоо менен байланышкан активдүүлүк | Фермент активдүүлүк тести |
Булак Figure 1 эмнени көрсөтөт?
Figure 1 өнөкөт темир жүгүнүн бардык фенотипин бириктирет: жогорулаган сыворотка темири, көбөйгөн бөйрөк/дене салмагы катышы, мочевина жана креатинин көбөйүшү, H&Eде түтүкчөлүк вакуолизация, Пруссия көгүндө темир топтолушу, Havcr1 көбөйүшү, сыворотка GSH азайышы, бөйрөк MDA жана 4-HNE жогорулашы жана электрондук микроскопияда митохондриялык шишүү.
Ошол эле сүрөттүн JC-1 панелинде 200 µM FAC менен иштетилген TCMK-1 клеткаларында кызыл JC-1 агрегат сигналынын азайышы жана жашыл мономер сигналынын көбөйүшү митохондриялык мембрана потенциалынын төмөндөшүн көрсөтөт.
Булак Figure 2 эмнени көрсөтөт?
Figure 2'деги транскриптомдук volcano plot ALDH1a3 темир жүгү астында жогорулаган гендердин бири экенин көрсөтөт. Western blot ALDH1a3 жана FTL көбөйүшүн ырастайт.
TCMK-1 доза скринингинде FAC көбөйгөн сайын клетканын жашоого жөндөмдүүлүгү азайып, 200 µM деңгээлинде FTL көбөйүп, transferrin азайган. Иммунофлуоресценция панелинде FTL жана ALDH1a3 бөйрөк түтүкчөлөрүндө бирге жогорулайт.
Булак Figure 3 эмнени көрсөтөт?
Figure 3 ALDH1a3 функцияны-көбөйтүү тажрыйбасы. ALDH1a3 ашыкча экспрессиясы FACтан кийин клетканын жашоого жөндөмдүүлүгүн жакшыртат, Havcr1 жана MDAны азайтат, DCFH-DA ROS сигналын төмөндөтөт жана JC-1 менен митохондриялык мембрана потенциалын сактайт.
Жалпы антиоксиданттык сыйымдуулук жогорулаганда SOD активдүүлүгүндө олуттуу кошумча өзгөрүү табылган эмес. GSH/GSSG профили көбүрөөк калыбына келген редокс чөйрөсүнө шайкеш келет.
Булак Figure 4 эмнени көрсөтөт?
Figure 4 ALDH1a3 функцияны-жоготуу тажрыйбасы. Ингибитор колдонуу FAC пайда кылган клеткалык зыянды жалпысынан күчөтөт: жашоого жөндөмдүүлүк төмөндөйт, Havcr1 жана MDA жогору бойдон калат жана жалпы антиоксиданттык сыйымдуулук азаят.
Бирок ROS жана JC-1 жыйынтыктарында FAC тобуна салыштырмалуу кошумча олуттуу начарлоо болбогону ингибитор тажрыйбасы ар бир параметрде ашыкча экспрессия тажрыйбасынын так тескери көрүнүшү эмес экенин көрсөтөт.
Dimercaprol Тажрыйбасынын Эң Маанилүү Жыйынтыгы Эмне?
Dimercaprol сыноодон өткөн бардык дозаларда бөйрөк темир жүгүн азайткан көрүнүштү көрсөткөн, бирок 8 mg/kg орто доза бөйрөк MDA жана морфологиялык жакшыртуу жагынан жагымдуураак көрүнсө, 16 mg/kg жогорку доза кошумча түтүкчөлүк жана органелла стресс белгилерин жараткан; ошондуктан изилдөө DP үчүн “доза көбөйгөн сайын пайда көбөйөт” деген сызыктуу байланышты колдобойт.
Figure 5'теги DP жыйынтыктары
DP кийлигишүүсүнөн кийин бөйрөк/дене салмагы катышы, сыворотка мочевинасы жана креатинин маанилери жакшырган багытта өзгөрүп, сыворотка GSH калыбына келип, Пруссия көгү боёосу менен көрсөтүлгөн темир топтолушу азайган.
Орто доза DP Havcr1 жана MDA менен байланышкан зыяндын жакшырышында күчтүү көрүнүштү көрсөткөн. Төмөн жана орто доза топторунда митохондриялык шишүү азайып, базалдык мембрана түзүлүшү жакшырган.
Жогорку доза тобунда болсо цитоплазмалык электрон тыгыздыгы, эндоплазмалык ретикулумдун кеңейиши жана лизосомалык/митохондриялык аутофагия белгилери сыяктуу жаңы стресс табылгалары пайда болгон.
Клетка культурасында DP
TCMK-1 клеткаларында ар кандай DP концентрациялары адегенде жашоого жөндөмдүүлүк боюнча текшерилип, андан кийин булак 10 µM DPни FAC менен бирге куткаруу тажрыйбасында колдонгон.
10 µM DP FAC берилген клеткалардын жашап калуусун көбөйтүп, DCFH-DA менен өлчөнгөн ROS менен байланышкан сигналды азайткан.
DP менен ALDH1a3 ортосунда себептик байланыш көрсөтүлдүбү?
DP берилген чычкан бөйрөктөрүндө ALDH1a3 белок экспрессиясынын жогорулашы эки процесстин ортосунда байланыш бар экенин көрсөтөт. Авторлор бул байкоонун негизинде DP ALDH1a3тү кыйыр түрдө активдештирип, эндогендик коргонууга салым кошушу мүмкүн деп сунушташат.
Бирок DP ALDH1a3тү кайсы рецептор, транскрипциялык фактор же сигнал жолу аркылуу жогорулатаары изилденген эмес. Ошондуктан бул сунуш изилдөөнүн ичинде эксперименттик жактан толук бүткөн механизм эмес, келечектеги изилдөө гипотезасы.
Статистикалык анализ
Маалыматтар орточо ± стандарттык четтөө түрүндө берилген. Топтор бир багыттуу ANOVA же t-тесттери менен салыштырылып, p<0,05 статистикалык маанилүүлүк чеги катары аныкталган. Анализдерде GraphPad Prism 10 колдонулган.
Булак негизги фигураларда жеке чекиттерди жана маанилүүлүк белгилерин көрсөтөт; бирок бардык панелдер үчүн машина окуй ала турган чийки маалыматтар таблицасын бербегендиктен, Verianla графиктери сүрөттөн так аралык маанилерди чыгарып кайра түзбөйт.
Изилдөөнүн күчтүү жактары
ALDH1a3 корреляциялык экспрессия өзгөрүүсү катары гана изилденген эмес; ашыкча экспрессия жана фармакологиялык ингибиция колдонулуп, эки багыттуу функция тести жүргүзүлгөн.
Жаныбар модели жана бөйрөк түтүкчөлүк клетка модели бир эле изилдөөдө бирге колдонулуп, транскриптомдук талапкер табылгасы белок, иммунофлуоресценция, биохимия жана функционалдык клетка тесттери менен текшерилген.
Темир жүгүнүн жалпы оксидативдик стресси гана эмес, митохондрия морфологиясы, митохондриялык мембрана потенциалы, липид пероксидденүүсү жана глутатион редокс абалы да бирге бааланган.
Dimercaprol тажрыйбасында үч башка дозанын колдонулушу жогорку дозада кошумча зыян сигналынын көрүнүшүнө мүмкүндүк берген.
Изилдөөнүн негизги чектөөлөрү
- Адам бөйрөк бейтаптарында ALDH1a3 же DP кийлигишүүсү сыналган эмес.
- FAC моделин жалпы оксидативдик стресстен айырмалай турган H2O2 салыштыруусу жок.
- SOD тести жалпы SOD активдүүлүгүн өлчөгөн; митохондриялык Mn-SOD өзүнчө өлчөнгөн эмес.
- GSH/GSSG айланмасындагы маанилүү ферменттер GPx жана glutathione reductase түз өлчөнгөн эмес.
- Дени сак контролдук чычкандарга 4, 8 жана 16 mg/kg DP берилбегендиктен, DPнин темир жүгүнөн көз карандысыз ички бөйрөк уулуулугун так бөлүп көрсөтүү мүмкүн эмес.
- ALDH1a3 үчүн генетикалык knockout жаныбар модели колдонулган эмес.
- ALDH1a3 бул моделде кайсы өзгөчө реактивдүү альдегид субстраттарын метаболизмге учуратары метаболомика менен аныкталган эмес.
- DPнин ALDH1a3 экспрессиясын жогорулатуучу жогорку сигнал жолу аныкталган эмес.
- Чычкан бөйрөгүндө ферроптоз көрсөткүчтөрү олуттуу өзгөрбөгөндүктөн, in vitro ферроптоз жыйынтыктарын бардык in vivo зыянга жалпылоого болбойт.
- Ыкма текстинде 24 жумадан кийинки FC чычкандарынын дарыланбаган FC жана үч DP тобуна так сандык бөлүштүрүлүшү ачык билдирилген эмес.
Изилдөө колдогон жыйынтыктар
Өнөкөт феррик цитратка байланышкан темир ашыкча жүктөлүшү чычкан бөйрөгүндө түтүкчөлүк зыян, липид пероксидденүүсү жана митохондриялык бузулуу жараткан.
ALDH1a3 темир стресси астында бөйрөк түтүкчөлөрүнүн эпителий клеткаларында эндогендик түрдө жогорулайт.
TCMK-1 клеткаларында ALDH1a3 ашыкча экспрессиясы темирге байланышкан оксидативдик стресс жана митохондриялык функция бузулуусун азайтуучу фенотип менен байланышкан.
ALDH1a3 ингибициясы жалпы клеткалык жана редокс зыянды күчөткөн.
ALDH1a3түн коргоочу фенотиби SOD же CAT активдүүлүгүндөгү айкын жогорулоого караганда GSH/GSSG тең салмагы жана реактивдүү альдегид жүгүнүн азайышы менен көбүрөөк шайкеш көрүнөт.
DP темир топтолушун азайтып, ALDH1a3 экспрессиясынын өсүшү менен кошо байкалган.
Изилдөө колдобогон жыйынтыктар
Изилдөө ALDH1a3 активдешүүсү адамдардагы өнөкөт бөйрөк оорусун дарылай турганын көрсөтпөйт.
Изилдөө чычкандардагы темирден болгон бардык бөйрөк зыяны ферроптоз экенин далилдебейт.
DP ALDH1a3тү түздөн-түз же белгилүү бир аныкталган сигнал жолу аркылуу активдештирээри көрсөтүлгөн эмес.
16 mg/kg DP төмөн дозалардан натыйжалуураак же коопсузураак экени колдоого алынбайт; тескерисинче, кошумча түтүкчөлүк зыян белгилери байкалган.
ALDH1a3түн коргоочу таасири бир гана реактивдүү альдегиддин детоксикациясынан келип чыгаары көрсөтүлгөн эмес.
Изилдөө ALDH1a3 фармакологиялык активатору коопсуз, тандалма же клиникада колдонууга жарактуу экенин сынаган эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түп нуска изилдөө: ALDH1a3 Protects Against Iron Overload−Induced Oxidative Stress and Mitochondrial Impairment in Renal Tubular Epithelial Cells
Авторлор: Tingting Wei; Zongliang Xiong; Tianci Wang; Chao Huang; Qihui Luo; Riyi Shi; Lanlan Jia; Wentao Liu; Donghui Yang; Zhengli Chen.
Жооптуу автор: Zhengli Chen.
Мекемелер: Laboratory of Experimental Animal Disease Model, College of Veterinary Medicine, Sichuan Agricultural University; Key Laboratory of Animal Disease and Human Health of Sichuan Province, College of Veterinary Medicine, Sichuan Agricultural University; Center for Paralysis Research, Department of Basic Medical Sciences, College of Veterinary Medicine, Purdue University.
Журнал: Antioxidants.
Басмакана: MDPI, Basel, Switzerland.
Жарыя маалыматы: 2026; том 15; макала 577. Жарыяланган күнү: 2 Mayıs 2026.
DOI: 10.3390/antiox15050577
Булак түрү: Рецензияланган, ачык жеткиликтүү түп нуска эксперименттик изилдөө макаласы; жаныбар жана in vitro клетка модели.
Лицензия: Creative Commons Attribution (CC BY).
Жаныбар модели: Сегиз жумалык эркек C57BL/6N чычкандар; контроль n=25, баштапкы феррик цитрат модели n=70; %2,25 феррик цитраттуу диета, 24 жума.
DP кийлигишүүсү: 4, 8 жана 16 mg/kg/gün dimercaprol; intraperitoneal колдонуу; 4 жума.
Клетка модели: TCMK-1 бөйрөк түтүкчөлөрүнүн эпителий клеткалары; феррик аммоний цитраты менен 12 сааттык темир кийлигишүүсү.
Функция тажрыйбалары: ALDH1a3 ашыкча экспрессиясы жана ALDH1a3-IN-3 менен фармакологиялык ингибиция.
Гистология: H&E жана Пруссия көгү боёосу.
Молекулалык ыкмалар: RNA бөлүп алуу, qRT-PCR, Illumina негизиндеги транскриптомдук секвенирлөө, Western blot жана иммунофлуоресценция.
Редокс өлчөөлөрү: MDA, 4-HNE, GSH, GSSG, total SOD, CAT жана жалпы антиоксиданттык сыйымдуулук.
Клеткалык анализ: CCK-8 жашоого жөндөмдүүлүк, DCFH-DA ROS жана JC-1 митохондриялык мембрана потенциалы.
Ферроптоз көрсөткүчтөрү: ACSL4 жана GPX4. Чычкан бөйрөгүндө олуттуу өзгөрүү байкалбаганы менен FAC берилген TCMK-1 клеткаларында ACSL4 көбөйүшү жана GPX4 азайышы билдирилген.
Статистика: GraphPad Prism 10; орточо ± SD; бир багыттуу ANOVA же t-тести; p<0,05.
Supplementary материалдар: Figure S1 чычкан бөйрөгүндө ACSL4/GPX4; Figure S2 ALDH1a3 ашыкча экспрессиясында CAT; Figure S3 клетка моделинде ALDH1a3 ашыкча экспрессиясынан кийин ACSL4/GPX4; Figure S4 ALDH1a3 ингибициясында CAT; Figure S5 ингибициядан кийин ACSL4/GPX4.
Каржылоо: Sichuan International Science and Technology Innovation Cooperation Project; 2023YFH0077 жана 2024YFHZ0325.
Этикалык уруксат: Sichuan Agricultural University Animal Ethics and Welfare Committee; DWYXY−20252023203016.
Маалымат жеткиликтүүлүгү: Изилдөөнү колдогон маалыматтарды негиздүү өтүнүч боюнча жооптуу авторлордон алууга болот.
Кызыкчылыктардын кагылышы: Авторлор жыйынтыктарга таасир бере турган каржылык же жеке кызыкчылыктардын кагылышын билдиришкен эмес.
Авторлордун салымдары: Zhengli Chen концептуалдаштыруу, методология жана каржылоо; Tingting Wei жана Zongliang Xiong маалыматтарды курациялоо жана алгачкы долбоор; Tianci Wang жана Tingting Wei визуалдаштыруу жана изилдөө; Lanlan Jia, Riyi Shi жана Chao Huang көзөмөл; Qihui Luo программалык камсыздоо жана валидация; Donghui Yang карап чыгуу/редакциялоо; Wentao Liu программалык камсыздоого салым кошкон.
Булак ичиндеги ыкма эскертүүсү: 24. жумадан кийин калган 60 FC чычкандын ыкма текстиндеги кичи топ бөлүштүрүлүшү так эмес. Figure 5 дарыланбаган FC салыштыруусун жана үч DP тобун көрсөтөт. Verianla жетишпеген n маалыматын булактан тышкаркы божомол менен толуктаган эмес.
Негизги механисттик чектөө: ALDH1a3 GSH/GSSG айланмасын кантип жөнгө салаары, кайсы өзгөчө альдегиддерди детоксикация кылаары жана DP ALDH1a3тү кайсы жогорку сигнал жолу аркылуу көбөйтөрү түз көрсөтүлгөн эмес.
Ферроптоз чектөөсү: Өнөкөт чычкан бөйрөгүндө типтүү ферроптоз биомаркери же митохондрия морфологиясы аныкталган эмес. Ферроптозго шайкеш табылгалар TCMK-1 клетка моделинде байкалган.
DP коопсуздук чектөөсү: Жогорку DP дозасы кошумча түтүкчөлүк зыян менен байланышкан жана дени сак чычкандарда эквиваленттүү DP доза контроль топтору колдонулган эмес. Ошондуктан бул изилдөө адам үчүн коопсуз бөйрөк DP дозасын аныктабайт.
Verianla баяндоо ыкмасы: Бул мазмун abstract же conclusion бөлүмүнүн гана котормосу эмес. Жаныбар модели, транскриптомдук талапкерди табуу, ALDH1a3 белогун ырастоо, функцияны-көбөйтүү жана функцияны-жоготуу тажрыйбалары, глутатион редокс системасы, ферроптоз көрсөткүчтөрү, митохондриялык түзүлүш жана мембрана потенциалы, DP доза кийлигишүүсү жана булак чектөөлөрү өзүнчө илимий катмарлар түрүндө кайра түзүлгөн.
Клиникалык чечмелөө чектөөсү: ALDH1a3 бул изилдөөдө клиникага чейинки потенциалдуу дарылоо бутасы. Табылгалар адамдарда ALDH1a3 активдештирүү же dimercaprol колдонуу боюнча жеке дарылоо сунушун түзбөйт.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген