


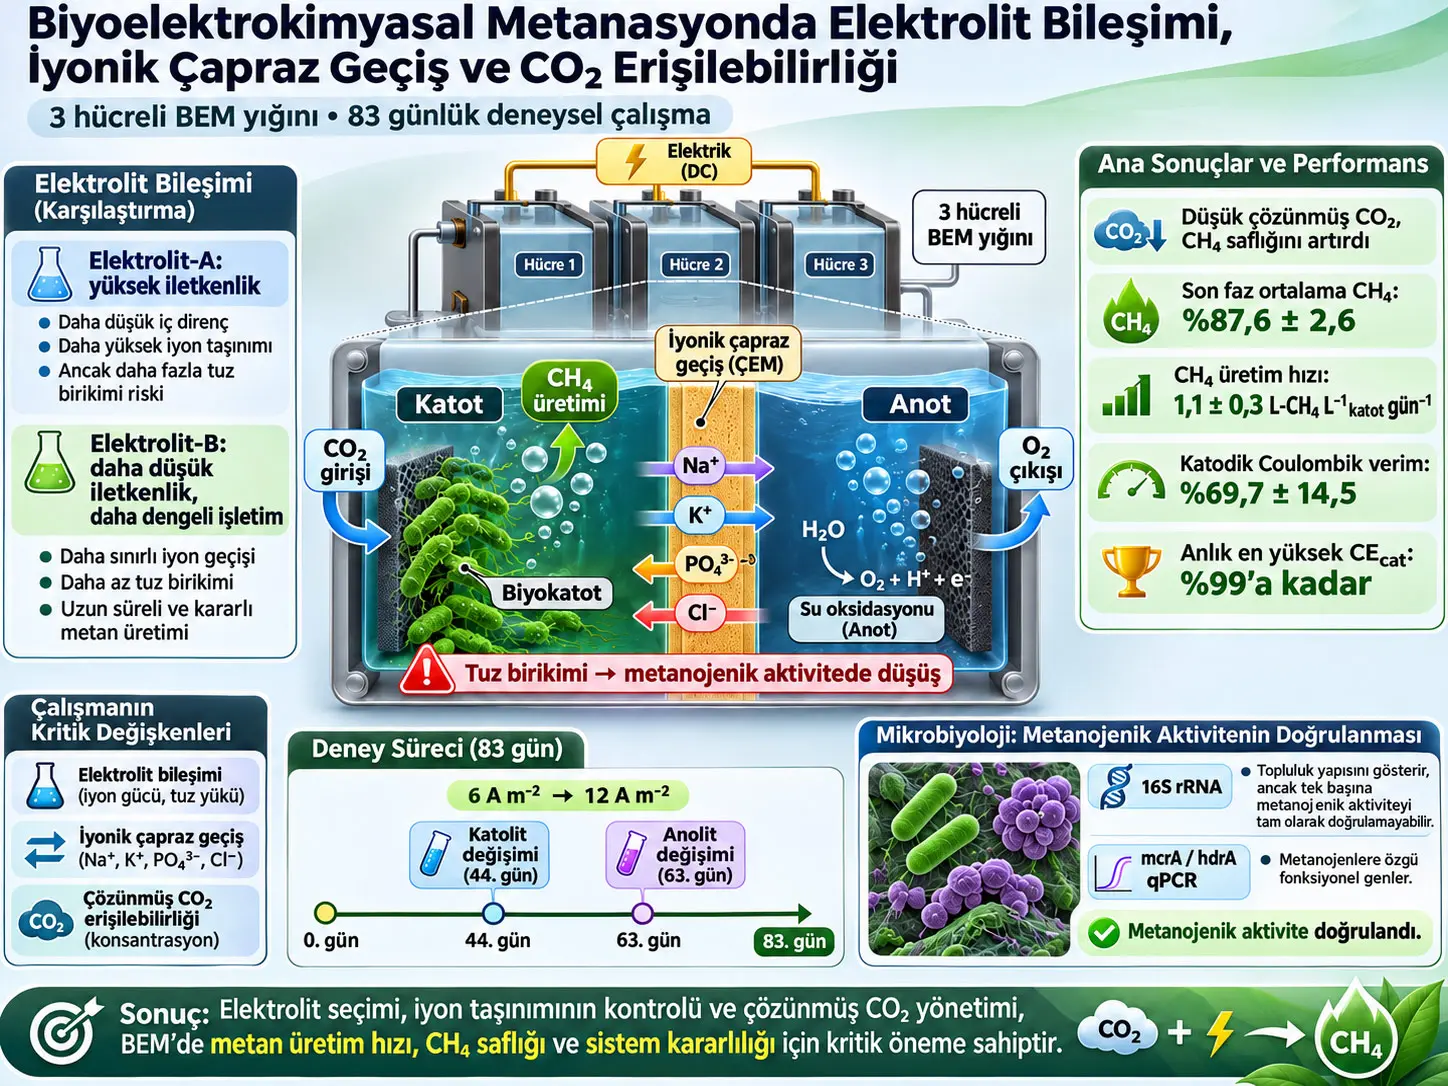
Biyoelektrokimyasal metanasyon (Bioelectrochemical Methanation, BEM), karbondioksiti (CO₂) elektriksel indirgeme eşdeğerleri ve metanojenik mikroorganizmaların katalitik etkinliği aracılığıyla sentetik metana (CH₄) dönüştüren bir karbon kullanımı ve power-to-gas yaklaşımıdır. Bu çalışma, üç çift odacıklı BEM hücresinden oluşan laboratuvar ölçekli bir yığını 83 gün boyunca galvanostatik olarak işletmiş; elektrolit bileşiminin, membran üzerinden iyonik çapraz geçişin, uygulanan akım yoğunluğunun ve çözünmüş CO₂ miktarının CH₄ üretimi, CH₄ saflığı, Coulombik verim, enerji tüketimi ve mikrobiyal topluluk üzerindeki ortak etkilerini incelemiştir.
Yığın ilk 14 gün 6 A m−2, daha sonra 12 A m−2 akım yoğunluğunda işletilmiştir. Katolitte çözünmüş CO₂ konsantrasyonu çalışma boyunca yaklaşık 1,1–0,55 g L−1 düzeyinden son fazda 0,22–0,055 g L−1'ye kadar kademeli olarak azaltılmıştır. Başlangıçta daha yüksek iletkenliğe sahip Elektrolit-A kullanılmış; iyonik çapraz geçiş nedeniyle katolit iletkenliğinin yaklaşık 22 mS cm−1'ye yükselmesi ve metanojenik aktivitenin zayıflaması üzerine 44. günde katolitin %30'u daha düşük iletkenlikli Elektrolit-B ile değiştirilmiştir. Bu değişim katolit iletkenliğini 16,9 mS cm−1'ye düşürmüş ve metan üretiminin yeniden toparlanmasıyla ilişkilendirilmiştir.
Çözünmüş CO₂'nin azaltılması, CH₄ üretim hızını düşürmeden gaz saflığını artırmıştır. Son 76–83 günlük fazda ortalama CH₄ bileşimi %87,6 ± 2,6, özgül CH₄ üretim hızı 1,1 ± 0,3 L-CH₄ L−1katot gün−1 ve ortalama katodik Coulombik verim %69,7 ± 14,5 olarak raporlanmıştır. Deney boyunca anlık katodik Coulombik verim %99'a, anlık CH₄ üretim hızı ise 1,9 L-CH₄ L−1katot gün−1'ye ulaşmıştır.
Gaz bileşimi için farklı veri özetleme düzeyleri bulunmaktadır. Kaynak Şekil 3'teki ayrı micro-GC örneklerinde gün 72 ve 82'de CH₄ oranı %96'yı aşarken, Tablo 3 son çalışma fazının ortalamasını %87,6 ± 2,6 olarak verir. Makalenin özeti bu sonucu “%88'e kadar”, sonuç bölümü ise düşük çözünmüş CO₂ koşullarında “yaklaşık %90 saflık” biçiminde özetlemektedir. Bu değerler aynı istatistiksel büyüklük değildir ve birbirlerinin yerine kullanılmamalıdır.
İyon dengesi, membran üzerinden taşınan yükün yalnız protonlardan oluşmadığını göstermiştir. Na+ ve K+ önemli katyonik yük taşıyıcıları olmuş, fosfat türleri özellikle deneyin erken döneminde yüksek iyonik akı göstermiştir. CEM anyon taşınımını sınırlamak üzere tasarlanmış olmasına rağmen Cl− ve PO43− gibi anyonlar da güçlü konsantrasyon gradyanları altında membranı geçmiştir. Bu iyon göçleri katolit tuzluluğunu artırmış, anolit–katolit pH farkına ve ohmik kayıplara katkıda bulunmuştur.
Mikrobiyal analiz iki farklı yöntemle yapılmıştır. Full-length 16S rRNA Nanopore dizilemesi topluluğun ağırlıklı olarak bakteriyel kısmını göstermiş, fakat metanojenik arkeler kullanılan primerlerin olası yanlılığı nedeniyle bu veri setinde saptanmamıştır. Buna karşılık metanogenezle ilişkili mcrA ve hdrA işlevsel genleri qPCR ile ölçülmüş ve aktif metanojenik topluluğun varlığı desteklenmiştir. Bu ayrım, “16S verisinde arke görülmedi” sonucunun “reaktörde metanojen yoktu” anlamına gelmediğini göstermektedir.
Çalışmanın yorum sınırı önemlidir. Sistem üç hücreli olsa da laboratuvar ölçeğindedir; CO₂ dozlaması manuel yapılmış, mikrobiyal örnekleme elektrota bağlı biyofilm yerine toplu katolitten gerçekleştirilmiş ve endüstriyel ölçekte uzun dönem otomatik işletme doğrulanmamıştır. Sonuçlar BEM ölçek büyütme stratejileri için yol göstericidir ancak ticari ölçek performans garantisi değildir.
Araştırma problemi nedir?
BEM sistemlerinde yalnız elektrot reaksiyonlarını hızlandırmak yeterli değildir. Aynı anda üç farklı alanın dengelenmesi gerekir: elektrokimyasal elektron aktarımı, sıvı fazdaki iyon ve CO₂ taşınımı ve metanojenik mikrobiyal topluluğun fizyolojik gereksinimleri.
Daha yüksek elektrolit iletkenliği ohmik direnci azaltabilir. Buna karşılık yüksek iyon konsantrasyonu ve membran üzerinden sürekli iyon geçişi katolitte tuz birikmesine, ozmotik strese ve metanojenik aktivitenin baskılanmasına neden olabilir. Bu nedenle elektrokimyasal açıdan avantajlı görünen bir elektrolit koşulu biyolojik açıdan olumsuz olabilir.
Benzer bir denge CO₂ için de vardır. Çok yüksek CO₂ beslemesi mikroorganizmalar için karbon bulunabilirliğini artırabilir; ancak dönüştürülmeden kalan CO₂ çıkış gazındaki CH₄'ü seyreltir ve membran üzerinden anot tarafına geçen karbon miktarını artırabilir. Çok düşük CO₂ ise teorik olarak substrat sınırlamasına yol açabilir. Çalışma bu iki uç arasındaki işletme aralığını deneysel olarak araştırmıştır.
Biyoelektrokimyasal Metanasyon (BEM) Nedir?
Biyoelektrokimyasal metanasyon, CO₂'nin bir biyokatotta mikroorganizmalar tarafından CH₄'e indirgenmesi için gerekli indirgeme eşdeğerlerinin elektriksel olarak sağlandığı bir mikrobiyal elektrokimyasal sistemdir; elektron aktarımı doğrudan hücre–elektrot etkileşimiyle veya elektrokimyasal olarak üretilen H₂'nin hidrojenotrofik metanojenler tarafından tüketilmesi gibi dolaylı yollarla gerçekleşebilir ve bu çalışma iki yolun göreli katkısını doğrudan ayırmamıştır.
Doğrudan ve dolaylı elektrometanogenez
Kaynak BEM'de CO₂'nin CH₄'e dönüşümü için iki genel mekanizma sınıfı tanımlar. Birincisi, metanojenlerin katottan doğrudan ekstrasellüler elektron almasıdır. İkincisi ve pratik sistemlerde sıklıkla önemli görülen yol, katotta önce hidrojen evrim reaksiyonuyla H₂ oluşması ve hidrojenotrofik metanojenlerin bu H₂'yi CO₂ indirgemesinde kullanmasıdır.
Bu çalışma mekanizmaların yüzdesel katkısını ölçen izotopik veya mekanizma-ayırıcı bir deney değildir. Dolayısıyla yüksek CH₄ üretimi doğrudan elektron alımının veya H₂-aracılı yolun tek başına baskınlığının kanıtı olarak kullanılmamalıdır.
Üç hücreli BEM sisteminin fiziksel yapısı
Çalışmada BEM 1, BEM 2 ve BEM 3 olarak adlandırılan üç çift odacıklı düz plaka hücre kullanılmıştır. Her hücrenin enine kesit alanı 100 cm², kalınlığı 2 cm ve her bir odacığın hacmi 200 mL'dir.
Anot, 9 cm² titanyum ağ üzerine 12 g m−2 IrO₂ tabanlı mixed-metal-oxide kaplama uygulanmış elektrottur. Katot odacığında yaklaşık 10 g INOX 434 paslanmaz çelik yünü bulunmaktadır. Anot ve katot odacıkları 100 cm² RALEX CMHPP katyon değişim membranıyla ayrılmıştır.
Her hücre ayrı güç kaynağıyla çalıştırılmıştır. Bu nedenle “üç hücreli stack” ifadesi bütün hücrelerin tek elektriksel seri devrede olduğu anlamına gelmez. Hücreler ortak anolit ve katolit devreleri üzerinden birlikte işletilmiş, ancak ayrı güç kaynaklarıyla beslenmiştir.
Anolit ve katolit devridaimi
Üç hücrenin anolitleri 2 L ortak rezervuara, katolitleri ise 3 L ortak rezervuara bağlanmıştır. Her iki sıvı devresinde akış 200 mL dk−1'dir.
Anot devresi 180–200 mbar fazla basınçta tutulmuş ve üretilen O₂ ortak gaz hattında sıvıdan ayrılmıştır. Katot devresi de aynı basınç aralığında işletilmiş ve oluşan CH₄/CO₂ gaz karışımı sıvı fazdan ayrılmıştır.
Katolit sıcaklığı bir plaka ısı değiştiricisi ve termostat yardımıyla 35 °C'de tutulmuştur. Çözünmüş CO₂, InPro5000i sensörüyle katolit devridaim hattında sürekli izlenmiştir.
Elektrolit-A ve Elektrolit-B arasındaki fark
| Bileşen | Elektrolit-A | Elektrolit-B | Birim |
|---|---|---|---|
| Na₂HPO₄·12H₂O | 11,7 | 0,35 | g L−1 |
| KH₂PO₄ | 2,54 | 0,23 | g L−1 |
| NH₄Cl | 0,53 | 0,50 | g L−1 |
| Na₂SO₄ | 0,10 | 0,10 | g L−1 |
| KCl | 0,052 | — | g L−1 |
| CaCl₂·2H₂O | 0,01 | 0,25 | g L−1 |
| MgCl₂·6H₂O | 0,72 | 0,41 | g L−1 |
| NaHCO₃ | — | 0,85 | g L−1 |
| Sistein hidroklorür | — | 0,30 | g L−1 |
| İz element çözeltisi | 1 | 1 | mL L−1 |
| Wolfe vitamin çözeltisi (1000×) | 1 | 1 | mL L−1 |
| pH | 7,5 | 7,7 | — |
| İletkenlik | 15,1 | 4,0 | mS cm−1 |
Elektrolit-A daha yüksek fosfat içeriğine ve yaklaşık dört kat daha yüksek başlangıç iletkenliğine sahiptir. Elektrolit-B ise daha düşük iyonik yoğunluğa sahip olacak ve gerçek tükenmiş atıksu çıkışlarına daha yakın bir ortamı temsil edecek şekilde kullanılmıştır.
Elektrolit-B'nin daha düşük iletkenliği tek başına “daha iyi elektrolit” olduğu anlamına gelmez. Çalışmanın gösterdiği temel denge, yeterli iyonik iletkenlik ile mikroorganizmalar için kabul edilebilir tuzluluk arasında optimum bir aralık gerekliliğidir.
İyonik Çapraz Geçiş BEM Performansını Neden Sınırladı?
İyonik çapraz geçiş, anot ve katot elektrolitleri arasındaki elektrik alanı ve konsantrasyon farkları nedeniyle Na⁺, K⁺, fosfat, Cl⁻ ve diğer iyonların CEM üzerinden net olarak taşınmasıdır; bu çalışmada özellikle katyonların katotta birikmesi katolit iletkenliğini yaklaşık 22 mS cm⁻¹'ye yükseltmiş, yüksek tuzluluk metan üretimindeki düşüşle birlikte görülmüş ve daha seyrek Elektrolit-B ile kısmi katolit değişimi sonrasında sistem toparlanmıştır.
CEM yalnız proton mu taşır?
Hayır. Katyon değişim membranı protonların geçişini desteklese de gerçek elektrolit ortamında elektriksel yükün önemli kısmı diğer katyonlarla taşınabilir. Bu çalışmada Na+ ve K+ başlıca katyonik yük taşıyıcıları olarak belirlenmiştir.
Ayrıca membranın anyonları geri itmesi mutlak bir bariyer anlamına gelmemiştir. Güçlü konsantrasyon gradyanları altında Cl− ve özellikle PO₄3− gibi anyonlar da difüzyonla membranı geçmiştir.
Katolit iletkenliği neden yükseldi?
Katolit başlangıçta yaklaşık 9,5 mS cm−1 iletkenliğe sahipken 44. gün civarında 22 mS cm−1'ye yükselmiştir. Yazarlar bu artışı büyük ölçüde anot tarafından katoda geçen katyonların birikimiyle ilişkilendirmektedir.
Yaklaşık 22 mS cm−1 düzeyi kaynakta belirtilen Methanobacteria tuzluluk tolerans sınırına karşılık gelen yaklaşık 18 mS cm−1 değerini aşmaktadır. Aynı dönemde CH₄ üretim hızının 0,2 ± 0,1 L-CH₄ L−1katot gün−1'ye kadar gerilemesi yüksek tuzlulukla uyumlu bulunmuştur.
44. günde Elektrolit-A'nın %30'unun Elektrolit-B ile değiştirilmesi iletkenliği 16,9 mS cm−1'ye düşürmüş ve daha sonra 19 mS cm−1'nin altında stabilize etmiştir. Yedi günlük uyum süresi dışarıda bırakıldığında CH₄ üretim hızı 1,1 ± 0,3 L-CH₄ L−1katot gün−1'ye toparlanmıştır.
Daha Düşük Çözünmüş CO₂ CH₄ Saflığını Neden Artırdı?
Bu çalışmada daha düşük çözünmüş CO₂ düzeyi, metanojenler için gerekli karbonu tamamen ortadan kaldırmadan çıkış gazındaki dönüştürülmemiş CO₂ miktarını azalttığı için CH₄ yüzdesini yükseltmiştir; son fazda 0,22–0,055 g-CO₂ L⁻¹ aralığında ortalama CH₄ saflığı %87,6 ± 2,6 olurken üretim hızı 1,1 ± 0,3 L-CH₄ L⁻¹katot gün⁻¹ düzeyinde korunmuştur.
CO₂'nin çok yüksek olması neden sorun yaratabilir?
CO₂ parsiyel basıncı yükseldiğinde Henry yasası nedeniyle sıvıda çözünmüş CO₂ miktarı artar. Bu, mikroorganizmaların karbon kaynağına erişimini artırabilir; ancak dönüşmeden kalan CO₂ katot çıkış gazında CH₄'ü doğrudan seyreltir.
Çözünmüş CO₂ ayrıca yüksüz CO₂(aq) biçiminde CEM'den difüzyonla geçebilir. Bu karbon anot tarafındaki O₂ gazına karışarak oksijen ürününün saflığını azaltabilir.
Dolayısıyla amaç CO₂'yi mümkün olan en düşük değere indirmek değildir; metanojenlerin karbon gereksinimini karşılayan fakat aşırı gaz fazı seyreltmesi ve karbon kaybı oluşturmayan işletme aralığını bulmaktır.
CO₂ kontrolünün deneysel sınırı
CO₂, %99,995 saflıkta gaz olarak 20 mL dk−1 debiyle gözenekli difüzörden katolite verilmiştir. Ancak besleme, çözünmüş CO₂ sensörü okunarak manuel olarak açılıp kapatılmıştır.
Bu nedenle hedeflenen çözünmüş CO₂ aralıkları gerçek zamanlı kapalı çevrim kontrolünde kusursuz biçimde sabit tutulmamıştır. Yazarlar CH₄ üretim ve Coulombik verim dalgalanmalarının bir kısmını bu manuel kontrole bağlamaktadır.
Çalışmanın Yöntemi ve Bulguları
83 günlük deney zaman çizelgesi
| Dönem | Akım yoğunluğu | Anolit | Katolit | Çözünmüş CO₂ |
|---|---|---|---|---|
| 0–14 gün | 6 A m−2 | PPMS | Elektrolit-A | %100–50; 1,1–0,55 g L−1 |
| 15–21 gün | 12 A m−2 | PPMS | Elektrolit-A | %100–50; 1,1–0,55 g L−1 |
| 21–44 gün | 12 A m−2 | PPMS | Elektrolit-A | %80–50; 0,88–0,55 g L−1 |
| 44. gün | — | PPMS | %30 katolit değişimi | Elektrolit-B eklenir |
| 45–63 gün | 12 A m−2 | PPMS | Elektrolit-B ağırlıklı | %80–50; 0,88–0,55 g L−1 |
| 63. gün | — | Elektrolit-B'ye tam değişim | Elektrolit-B | — |
| 64–76 gün | 12 A m−2 | Elektrolit-B | Elektrolit-B | %60–20; 0,66–0,22 g L−1 |
| 76–83 gün | 12 A m−2 | Elektrolit-B | Elektrolit-B | %20–5; 0,22–0,055 g L−1 |
Metanojenik inokulum
Metanojen bakımından zengin kültür, Terrassa'daki yerel bir atıksu arıtma tesisinin anaerobik çürütücü çamurundan elde edilmiştir. Biyokato(t) inokülasyonu için çöktürülmüş biyokütleden 300 mL katot odacıklarına anaerobik koşullarda enjekte edilmiştir.
Metanojenik aktivitenin kaybolması üzerine 38. günde inokülasyon işlemi tekrarlanmıştır. Bu olay mikrobiyal topluluk analizinde özellikle 44. gün sonrası değişimlerin yorumlanmasında dikkate alınmalıdır; topluluk değişimi yalnız elektrolit değişiminden kaynaklanmış gibi yorumlanamaz.
Elektrokimyasal karakterizasyon
Linear Sweep Voltammetry (LSV), inokülasyon öncesi abiyotik koşulda ve 28 günlük işletme sonrasında gerçekleştirilmiştir. Tarama hızı 1 mV s−1, katodik potansiyel aralığı −0,50 ile −1,20 V vs Ag/AgCl'dir.
Ölçüm üç elektrotlu düzende yapılmıştır: katot çalışma elektrodu, anot karşı elektrot ve katot odacığındaki Ag/AgCl (3 M KCl) elektrodu referans elektrottur. LSV sırasında harici CO₂ beslenmemiştir.
Biyofilm gelişimi sonrasında yaklaşık −0,80 V vs Ag/AgCl'de indirgenme akımı görülmüş ve −1,20 V'ta yaklaşık 70 A m−2'ye ulaşmıştır. Abiyotik katot aynı potansiyelde yaklaşık 25 A m−2 vermiştir.
Bu değerler son akım yoğunluğunun 70/25 ≈ 2,8 kat olduğunu, yani yaklaşık %180 artış bulunduğunu gösterir. Kaynak bunu “1,8× enhancement” ifadesiyle tanımlamaktadır; ifade artış miktarını kastediyor olabilir. Verianla ham 25 ve 70 A m−2 değerlerini esas alır ve kaynak ifadesini sessizce değiştirmez.
Toplam aşırı potansiyel — Denklem 1
Formül neyi hesaplar? Ölçülen toplam hücre aşırı potansiyelini, pH farkından kaynaklanan kayıp, elektrolit direncinden kaynaklanan iyonik kayıp ve ayrı ayrı çözülemeyen diğer kayıplara ayırır.
- ηpH: anot–katot pH farkından doğan aşırı potansiyel.
- ηionic: anolit ve katolit sıvı fazlarının elektriksel direncinden doğan kayıp.
- ηunknown: anot/katot aktivasyon kayıpları, membran direnci ve diğer taşınım dirençleri gibi ayrı ayrı ölçülmeyen katkıların toplu terimi.
Bu ayrıştırmada ηunknown fiziksel olarak tek bir mekanizma değildir. Ölçülemeyen çeşitli katkıların fark yoluyla elde edilen birleşik kalıntısıdır.
pH kaynaklı aşırı potansiyel — Denklem 2
- R: evrensel gaz sabiti, 8,314 J mol−1 K−1.
- T: mutlak sıcaklık, K.
- F: Faraday sabiti, 96485 C mol−1.
- pHcat: katolit pH'ı.
- pHan: anolit pH'ı.
Denklem matematiksel olarak pH farkı büyüdükçe ηpH'ın büyüdüğünü gösterir. Deneyde anolit pH'ının yaklaşık 2'ye kadar düşmesi, katolit ise yaklaşık nötr–hafif alkali kalması nedeniyle güçlü bir pH gradyanı meydana gelmiştir.
Elektrolit direnci aşırı potansiyeli — Denklem 3
- Iions: membran üzerinden taşınan toplam yük akımına eşdeğer elektrik akımı, A.
- Ran, Rcat: anot ve katot sıvı fazlarının dirençleri.
- d: elektrot ile membran arasındaki uzaklık, cm.
- A: etkin membran alanı, cm².
- σ: elektrolit iletkenliği, S cm−1.
Denklemde iletkenlik σ paydada bulunduğu için diğer değişkenler sabitken daha yüksek iletkenlik ohmik kaybı azaltır. Ancak bu matematiksel avantaj, aşırı tuzluluğun mikroorganizmalar üzerindeki biyolojik zararını içermez. Çalışmanın ana mühendislik dengesi tam olarak bu noktadadır.
Hücre aşırı potansiyeli — Denklem 4
Burada deneysel hücre voltajı ile ayrı elektrot potansiyellerinden yeniden oluşturulan hücre voltajı arasındaki fark toplam aşırı potansiyel olarak alınmıştır.
Yeniden oluşturulan hücre voltajı — Denklem 5
Ecathode,m ve Eanode,m, kendi odacıklarındaki referans elektrotlara göre ölçülen katot ve anot potansiyelleridir.
Enerji tüketimi — Denklem 6
Econ, normal koşullarda üretilen birim CH₄ hacmi başına BEM yığınının elektrik enerjisi tüketimidir.
- Icell,i: i'inci hücrenin akımı.
- Ecell,i: i'inci hücrenin hücre voltajı.
- n: yığındaki hücre sayısı.
- 24 h: günlük enerji hesabı için süre.
- VCH4: normal koşullarda üretilen CH₄ hacmi.
Kararlı 12 A m−2 işletme sırasında kaynak ortalama enerji tüketimini yaklaşık 40 ± 7 kWh Nm−3-CH₄, minimum değeri ise 27 kWh Nm−3-CH₄ olarak raporlamaktadır. Katolit değişimi çevresindeki 48. günde geçici olarak 243 kWh Nm−3-CH₄ değerine ulaşılmıştır; bu değer normal kararlı işletmeyi temsil etmez.
İyonların yük taşınımına katkısı — Denklem 7
- Z: iyonun elektrik yükü; boyutsuzdur.
- F: Faraday sabiti.
- V: iyon konsantrasyonunun ölçüldüğü odacığın hacmi, L.
- Δ[Cion]: ilgili zaman aralığında iyon konsantrasyonu değişimi, mol L−1.
- A: toplam membran alanı, m².
- t: zaman aralığı, s.
Pozitif iion değeri iyonun ilgili odacığa net girdiğini, negatif değer ise ilgili odacıktan net çıktığını ifade eder.
Ana PDF'de bulunmayan qPCR denklemleri
Kaynak metni, mcrA ve hdrA gen kopya sayılarının hesaplanması için Denklem 10 ve Denklem 11'e atıf yapmaktadır; ancak bu denklemlerin kendisi ana PDF'de bulunmamakta, Supplementary Information Tablo S3'e yönlendirilmektedir. Yüklenen ana PDF'nin içeriği bu denklemleri güvenilir biçimde yeniden üretmek için yeterli olmadığından Verianla bunları tahmin ederek yazmamaktadır.
Sıvı ve gaz analizleri
| Ölçüm | Yöntem / cihaz |
|---|---|
| pH ve iletkenlik | HQ40 multimetre, Hach Lange |
| Cl⁻, SO₄²⁻ ve PO₄³⁻ | ICS-3000 iyon kromatografisi, Dionex |
| Na⁺, K⁺, Ca²⁺ ve Mg²⁺ | Agilent 8900 ICP-QQQ ICP-MS |
| Uçucu yağ asitleri | ICS-3000 Conductivity Detector |
| OD600 | Hach DR 3900 spektrofotometre |
| CH₄, CO₂, H₂, O₂, N₂, CO ve H₂S | Agilent 490 Micro GC Natural Gas Analyzer |
| Çözünmüş CO₂ | InPro5000i + M400 transmitter |
Gaz kompozisyonunun gelişimi
İnokülasyondan hemen sonra, gün 2'de katot çıkış gazı yaklaşık %85 CO₂, %13 H₂ ve yalnız yaklaşık %2 CH₄ içermiştir. Bu başlangıç dönemi metanojenik biyokütlenin henüz tam gelişmediği evreyi temsil etmektedir.
Gün 2'den sonra CH₄ oranı kademeli olarak yükselirken CO₂ azalmıştır. Gün 14'te CH₄ baskın gaz haline gelmiş; aynı dönemde hücre voltajı yaklaşık 2,6 V ve ölçülen aşırı potansiyel 0,13 ± 0,07 V civarında bulunmuştur.
Akım yoğunluğu 12 A m−2'ye çıkarıldığında hücre voltajı yaklaşık 3,3–3,7 V'a yükselmiştir. Katot potansiyeli büyük ölçüde değişmezken artışın önemli kısmı elektrolit direnci ve diğer sistem kayıplarıyla ilişkilendirilmiştir.
Kaynak bu sonucu “iyon taşınımı baskın sınırlayıcı hale geldi” yönünde yorumlamakla birlikte ηunknown içinde elektrot kinetiği, membran direnci ve kütle taşınımı gibi çözümlenmemiş katkılar bulunduğunu özellikle belirtmektedir. Dolayısıyla tek sınırlayıcının kesin olarak iyonik direnç olduğu söylenemez.
CH₄ performansının işletme fazlarına göre nicel özeti
| Dönem | Akım | Çözünmüş CO₂ | CH₄ (%) | CO₂ (%) | CH₄ üretim hızı | CEcat (%) | Enerji tüketimi |
|---|---|---|---|---|---|---|---|
| 0–14 | 6 A m−2 | 1,1–0,55 g L−1 | 40,5 ± 4,7 | 31,1 ± 3,2 | 0,2 ± 0,3 | 28,5 ± 36,5 | 33,5 ± 21,9 kWh Nm−3 |
| 15–21 | 12 A m−2 | 1,1–0,55 g L−1 | 62,7 ± 5,8 | 22,9 ± 4,8 | 0,9 ± 0,5 | 55,7 ± 33,2 | 38,7 ± 14,6 kWh Nm−3 |
| 21–44* | 12 A m−2 | 0,88–0,55 g L−1 | 68,0 ± 4,3 | 17,6 ± 4,9 | 0,9 ± 0,5 | 53,4 ± 30,2 | 43,6 ± 10,8 kWh Nm−3 |
| 45–63** | 12 A m−2 | 0,88–0,55 g L−1 | 78,1 ± 16,2 | 13,9 ± 5,3 | 1,1 ± 0,3 | 65,3 ± 20,0 | 38,0 ± 6,4 kWh Nm−3 |
| 64–76 | 12 A m−2 | 0,66–0,22 g L−1 | 85,5 ± 3,2 | 10,0 ± 6,0 | 1,1 ± 0,3 | 65,6 ± 16,0 | 42,0 ± 5,4 kWh Nm−3 |
| 76–83 | 12 A m−2 | 0,22–0,055 g L−1 | 87,6 ± 2,6 | 5,4 ± 3,2 | 1,1 ± 0,3 | 69,7 ± 14,5 | 39,8 ± 9,0 kWh Nm−3 |
* Kaynak 21–44 dönemini tabloda bu şekilde adlandırmakla birlikte istatistiklerin 41. güne kadar olan kararlı veriden hesaplandığını belirtmektedir.
** 45–63 dönemi için raporlanan ortalamalar, katolit değişiminden sonraki uyum dönemi atılarak 52. günden itibaren hesaplanmıştır.
CH₄ üretim hızı sütununun birimi L-CH₄ L−1katot gün−1'dir.
Anot gazı ve karbon crossover
Anot tarafında ana gaz O₂ olmuştur. Gün 21'den itibaren O₂ saflığı yaklaşık %92 ve özgül O₂ üretim hızı yaklaşık 3,4 L-O₂ L−1anot gün−1 olarak raporlanmıştır.
O₂ gazındaki ana safsızlık CO₂'dir. Kaynak, çözünmüş CO₂'nin yüksüz molekül olarak membranı geçmesini bunun önemli nedeni olarak yorumlamaktadır.
Anotta %0–7,7 CH₄ ve %0–1,7 H₂ gibi küçük miktarlar da ölçülmüş ve bunlar membran üzerinden gaz crossover ile uyumlu bulunmuştur.
İyon crossover değerleri — anyonlar
| Dönem | Cl⁻ katot | Cl⁻ anot | SO₄²⁻ katot | SO₄²⁻ anot | PO₄³⁻ katot | PO₄³⁻ anot |
|---|---|---|---|---|---|---|
| 0–14 | −4,7×10⁻² | 1,4×10⁻² | 1,1×10⁻⁴ | −8,6×10⁻⁵ | 8,4×10⁻¹ | −9,3×10⁻¹ |
| 15–21 | −2,0×10⁻² | 1,3×10⁻² | −1,5×10⁻⁵ | 2,5×10⁻⁴ | 2,9×10⁻¹ | −8,3×10⁻² |
| 21–44 | −1,7×10⁻² | 1,9×10⁻³ | 3,3×10⁻⁴ | 2,0×10⁻⁴ | 2,1×10⁻¹ | −2,5×10⁻¹ |
| 45–63 | −3,8×10⁻² | 3,3×10⁻⁴ | — | 2,6×10⁻⁴ | 9,2×10⁻³ | 5,3×10⁻² |
| 64–76 | −9,9×10⁻³ | −5,0×10⁻² | — | 6,2×10⁻³ | −1,0×10⁻¹ | 1,1×10⁻¹ |
| 76–83 | −1,0×10⁻² | −2,6×10⁻² | — | 6,4×10⁻³ | −8,5×10⁻³ | 1,0×10⁻² |
İyon crossover değerleri — katyonlar
| Dönem | Na⁺ katot | Na⁺ anot | K⁺ katot | K⁺ anot | Ca²⁺ katot | Ca²⁺ anot | Mg²⁺ katot | Mg²⁺ anot |
|---|---|---|---|---|---|---|---|---|
| 0–14 | 3,2×10⁻¹ | −3,6×10⁻¹ | 3,4×10⁻¹ | −1,5×10⁻¹ | 3,1×10⁻² | 4,8×10⁻² | 1,0×10⁻² | −1,2×10⁻² |
| 15–21 | 9,8×10⁻² | −1,1×10⁻¹ | 1,3×10⁻¹ | −9,9×10⁻³ | 8,4×10⁻³ | −5,8×10⁻³ | 6,2×10⁻³ | — |
| 21–44 | 3,1×10⁻² | −6,1×10⁻² | 9,8×10⁻² | −6,0×10⁻² | — | — | 3,9×10⁻³ | — |
| 45–63 | 3,7×10⁻² | −2,0×10⁻² | 3,1×10⁻² | −5,6×10⁻³ | 1,4×10⁻² | −1,2×10⁻² | 2,7×10⁻³ | — |
| 64–76 | 2,2×10⁻¹ | −3,2×10⁻¹ | −4,1×10⁻⁴ | 1,1×10⁻² | −5,4×10⁻² | 1,7×10⁻² | 3,1×10⁻³ | −2,4×10⁻² |
| 76–83 | 4,5×10⁻² | −5,8×10⁻² | −7,1×10⁻⁴ | −4,6×10⁻² | — | −2,7×10⁻³ | 2,0×10⁻⁴ | — |
Bu tablo yalnız iyonların ölçülen konsantrasyon değişimlerinden hesaplanan net katkıyı gösterir. Her tekil iyonun bütün yük dengesiyle kusursuz biçimde kapanması beklenmemelidir; örnekleme, reaksiyonlar, eksik ölçülen türler ve diğer taşınım süreçleri toplam sisteme katkıda bulunabilir.
Klorür ve olası klor oluşumu
İlk 63 gün anolit 0,1 M PPMS iken Cl⁻ genel olarak katottan anoda doğru geçmiştir. Anot Elektrolit-B ile değiştirildiğinde anolit Cl⁻ konsantrasyonu başlangıçta artmış, daha sonra tekrar azalmıştır.
Yazarlar bu azalmanın yalnız membran taşınımıyla açıklanamayabileceğini ve yüksek anot potansiyelinde klorürün Cl₂'ye oksitlenmesinin mümkün olduğunu tartışmaktadır.
Burada kesinlik sınırı çok önemlidir: Cl₂ analitik cihazla tespit edilmemiştir. Klor oluşumu, elektrot potansiyeli ve klor kokusuna benzer nitel gözleme dayanan bir olasılıktır. Bu nedenle “klor gazı üretildi” ifadesi deneysel olarak doğrulanmış sonuç değildir.
Mikrobiyolojik analiz nasıl yapılmıştır?
83 gün boyunca toplu katolitten 12 sıvı örneği alınmıştır. Mikrobiyolojik değerlendirme iki döneme ayrılmıştır:
- Faz 1: katolit değişiminden önceki dönem.
- Faz 2: katolit değişiminden sonraki dönem.
Örnekler elektrot biyofilmini bozmamak için bulk katolitten alınmıştır. Bu tasarım biyofilme zarar vermeden uzun dönem izleme sağlar; ancak doğrudan elektrot yüzeyine bağlı topluluğun uzaysal kompozisyonunu ölçmez.
DNA ZymoBIOMICS DNA Miniprep Kit ile çıkarılmış, konsantrasyon Qubit ile ölçülmüştür. Yaklaşık 1,5 kb full-length 16S rRNA amplikonları Oxford Nanopore MinION R10.4.1 flow cell ile dizilenmiştir.
Ham FAST5 verileri Dorado 1.0.1 SUP moduyla basecall edilmiş, EPI2ME Nextflow 16S rRNA workflow ile sınıflandırılmış ve NCBI 16S + 18S rRNA veri tabanı kullanılmıştır. Veri analizi R Studio'da phyloseq ve microeco paketleriyle gerçekleştirilmiştir.
16S rRNA Dizilemesi Metanojenleri Göstermezken qPCR Neden Gösterdi?
Çalışmadaki 16S Nanopore veri setinde metanojenik arkelerin görülmemesi, sistemde metanojen bulunmadığını değil kullanılan SQK-16S114.24 “universal” primerlerinin arkeal dizileri yeterince çoğaltmamış olabileceğini gösterir; bu nedenle araştırmacılar metanogenezle ilişkili mcrA ve hdrA işlevsel genlerini hedefleyen qPCR kullanmış ve metanojenik topluluğu bu bağımsız moleküler belirteçlerle değerlendirmiştir.
16S PCR ve Nanopore koşulları
Kaynak kütüphane hazırlamada DNA 16S Barcoding Kit 24 V14 protokolünü kullanmış, standart LongAmp karışımı yerine repliQa HiFi ToughMix kullanmıştır.
PCR programı:
- 98 °C'de 3 saniye başlangıç denatürasyonu,
- 35 döngü: 98 °C'de 10 saniye, 55 °C'de 5 saniye, 68 °C'de 5 saniye,
- 68 °C'de 1 dakika son uzatma.
mcrA ve hdrA qPCR
mcrA, methyl-coenzyme M reductase enziminin alfa alt birimini kodlayan ve metanogenezin terminal basamağıyla ilişkili bir işlevsel belirteçtir. hdrA ise heterodisulfide reductase subunit A genidir ve metanojenik enerji metabolizmasının önemli bir parçasıdır.
qPCR toplam 10 µL hacimde gerçekleştirilmiştir:
- 5 µL Power Track SYBR Green Master Mix,
- 0,5 µL 10 µM ileri primer,
- 0,5 µL 10 µM geri primer,
- 4 µL plasmid veya DNA şablonu.
qPCR termal programı:
- 95 °C'de 5 dakika,
- 40 döngü: 95 °C'de 10 saniye, 55 °C'de 1 dakika ve 72 °C'de 10 saniye.
Gen kopya sayıları Ct değerleri ve Supplementary Table S3'te verilen standart eğri denklemleriyle hesaplanmıştır. Bu standart eğri denklemleri yüklenen ana PDF'de bulunmadığı için burada yeniden oluşturulmamıştır.
Mikrobiyal toplulukta iki faz arasındaki değişim
| Genus | Faz 1 | Faz 2 için kaynakta belirtilen eğilim |
|---|---|---|
| Azonexus | %7,8–26,3 | %20,5–43,3; giderek artan ve kalıcı topluluk üyesi |
| Acetobacterium | %14,4–38,0 | Daha düşük göreli bolluk; daha dengeli işlevsel rol yorumu |
| Alistipes | %6,5–11,3 | %2,0–12,9 |
| Gudongella | %8,3–18,9 | %0–7,5 |
| Pseudomonas | %6,6–10,6 | Kaynak ana metninde Faz 2 aralığı ayrıca vurgulanmamıştır |
| Tepidimonas | %2,6–9,3 | %3,1–5,7 |
Beta çeşitlilik analizi işletme rejiminin mikrobiyal topluluk üzerinde anlamlı etkisini göstermiştir: PERMANOVA R = 0,5 ve p < 0,05. Genus düzeyinde 20 takson Faz 1 ile Faz 2 arasında düzeltilmiş FDR < 0,05 ile farklı bolluk göstermiştir.
Asetat gerçekten ölçüldü mü?
Hayır. Kaynakta asetat ve diğer ölçülen uçucu yağ asitleri deney boyunca tespit limitinin altında kalmıştır; asetat için bildirilen sınır <0,1 mg L−1'dir.
Buna rağmen yazarlar topluluk bileşimi ve önceki literatüre dayanarak asetatın hızla üretilip aynı hızla tüketilen bir metabolik ara ürün olabileceğini tartışmaktadır. Bu, doğrudan asetat birikimi ölçümü değildir.
Spearman korelasyonlarının anlamı
Faz 1'de Acetobacterium, Yersinia, Entomomonas, Pinisolibacter, Andresenia ve Enterobacter gibi bazı genuslar mcrA ve hdrA kopya sayılarıyla negatif korelasyon göstermiştir. Bazı taksonların iletkenlikle pozitif ilişkisi de görülmüştür.
Faz 2'de Xanthobacter, Anaerosporomusa ve Comamonas mcrA, hdrA ve CH₄ üretimiyle pozitif ilişkiler göstermiş; ancak kaynak bütün ilişkilerin istatistiksel anlamlılığa ulaşmadığını açıkça belirtmektedir.
Lentimicrobium, Oryzisoilbacter ve Rhodopseudomonas için metanojenik gen bolluğu ve CH₄ üretimiyle güçlü pozitif korelasyonlar görülmüştür.
Bu korelasyonlar işlevsel etkileşime ilişkin hipotez üretir; belirli bir bakterinin metan üretimini doğrudan artırdığını tek başına kanıtlamaz.
Çalışmanın güçlü yönleri
- Tek hücre yerine üç hücreli bir BEM yığını 83 gün boyunca incelenmiştir.
- Elektrolit bileşimi, akım yoğunluğu ve CO₂ erişilebilirliği aynı deneysel sistemde birlikte değerlendirilmiştir.
- Sıvı faz iletkenliği, pH, iyon konsantrasyonları, gaz kompozisyonu ve çözünmüş CO₂ birlikte izlenmiştir.
- İyon crossover nicel yük katkısı olarak hesaplanmıştır.
- Elektrokimyasal kayıplar pH, sıvı faz direnci ve çözülmemiş kayıplar olarak ayrıştırılmıştır.
- 16S rRNA topluluk analizi, işlevsel mcrA/hdrA qPCR ile tamamlanmıştır.
- Mikrobiyal topluluk değişimleri PERMANOVA, FDR kontrollü diferansiyel bolluk ve Spearman korelasyonlarıyla değerlendirilmiştir.
- Ham veri için Zenodo deposu sağlanmıştır.
Çalışmanın sınırlılıkları
- Sistem laboratuvar ölçeğindedir; endüstriyel BEM tesisi değildir.
- CO₂ seviyesi otomatik kapalı çevrim kontrolüyle değil manuel olarak ayarlanmıştır.
- Katolit ve anolit bileşimlerinin deney sırasında değişmesi bazı değişkenlerin eş zamanlı değişmesine neden olmuştur; her etki tamamen bağımsız faktör deneyi değildir.
- 38. günde yeniden inokülasyon yapılması mikrobiyal Faz 1/Faz 2 karşılaştırmasının yorumunda ek bir değişkendir.
- 16S rRNA primerleri arkeal organizmaları yeterli duyarlılıkla yakalamamıştır.
- Mikrobiyal örnekler doğrudan katot biyofilminden değil bulk katolitten alınmıştır.
- Spearman korelasyonları nedensellik kanıtı değildir.
- Asetat ve diğer VFA'lar tespit edilmediği için asetat-aracılı metabolik bağ doğrudan madde akışı ölçümüyle doğrulanmamıştır.
- Cl₂ analitik olarak saptanmamış, yalnız olası yan reaksiyon olarak tartışılmıştır.
- ηunknown terimi aktivasyon, membran ve kütle taşınımı gibi birden fazla çözümlenmemiş kaybı birlikte içerir.
- CO₂'nin membran geçişi doğrudan tam karbon bilançosuyla tüm zamanlarda ayrıştırılmamıştır.
- Elektrot malzemelerinin çok daha yüksek akım yoğunluklarında uzun dönem dayanımı bu çalışma tarafından doğrulanmamıştır.
- Kaynak Conclusion'daki 0,96 ± 0,33 L-CH₄ L−1katot gün−1 “best results” değeri ile Tablo 3 son fazdaki 1,1 ± 0,3 değeri aynı biçimde raporlanmamıştır; Verianla bu farkı gizlememektedir.
- LSV metni 25 → 70 A m−2 değişimini “1,8× enhancement” olarak ifade eder; ham değerler son akımın yaklaşık 2,8 kat, artış miktarının yaklaşık %180 olduğunu gösterir.
Çalışmanın desteklediği ve desteklemediği sonuçlar
| Çalışmanın desteklediği | Çalışmanın desteklemediği |
|---|---|
| Aşırı iyonik crossover'ın katolitte tuz birikimi ve metanojenik performans kaybıyla ilişkili olduğu. | Her BEM sisteminde tek optimum iletkenlik değerinin 18 veya 19 mS cm−1 olduğu. |
| Elektrolit-A'dan daha düşük iletkenlikli Elektrolit-B'ye kısmi geçişin sistemin toparlanmasıyla birlikte gerçekleştiği. | Elektrolit-B'nin bütün reaktör, mikrop ve atıksu tiplerinde evrensel olarak optimum olduğu. |
| 6 A m−2'den 12 A m−2'ye çıkıldığında fazla H₂ birikmeden elektrometanogenezin sürdüğü. | Daha da yüksek akım yoğunluklarının aynı şekilde sorunsuz çalışacağı. |
| Düşük çözünmüş CO₂ rejimlerinde CH₄ saflığının yükseldiği ve üretim hızının yaklaşık 1,1 L L−1 gün−1 düzeyinde korunabildiği. | CO₂'nin mümkün olan en düşük seviyede tutulmasının her zaman en iyi işletme stratejisi olduğu. |
| Na⁺, K⁺ ve fosfatın önemli yük taşıyıcıları olduğu. | Membrandaki bütün yükün yalnız protonlarla taşındığı. |
| Cl⁻ davranışı ve anot potansiyeli Cl₂ oluşumunun mümkün olduğunu düşündürdüğü. | Cl₂'nin deneyde analitik olarak kesin biçimde tespit edildiği. |
| 16S primer yanlılığının arkeal metanojenleri kaçırabileceği ve qPCR işlevsel genlerinin tamamlayıcı bilgi sağladığı. | 16S veri setinde arke bulunmamasının metanojenlerin sistemde bulunmadığını gösterdiği. |
| Mikrobiyal topluluk ile işletme koşulları arasında anlamlı ilişkiler bulunduğu. | Spearman korelasyonlarının belirli bakterilerin CH₄ üretimine doğrudan neden olduğunu kanıtladığı. |
| Üç hücreli laboratuvar yığınının 83 gün boyunca kontrollü biçimde işletilebildiği. | Endüstriyel ölçek BEM sisteminin ekonomik, mekanik ve biyolojik olarak doğrulandığı. |
Ölçek büyütme açısından araştırmacıların çıkardığı dersler
Kaynak üç temel kontrol eksenini öne çıkarmaktadır: elektrolit bileşimi ve iyon crossover yönetimi, elektron akışını belirleyen galvanostatik çalışma noktası ve CO₂'nin sıvı fazdaki erişilebilirliği.
Daha büyük sistemlerde membran ve sıvı faz dirençlerinin azaltılması, klor gibi istenmeyen yan reaksiyonların önlenmesi, daha yüksek akım yoğunluklarına dayanıklı elektrotların geliştirilmesi ve CO₂/elektrolit yönetiminin otomatikleştirilmesi gerektiği belirtilmektedir.
Bu öneriler gelecekteki ölçek büyütme için mühendislik yönelimleridir. Çalışmanın kendisi endüstriyel üretim kapasitesi, sermaye maliyeti, yaşam döngüsü analizi veya ticari metan maliyeti hesaplamamıştır.
Çalışmanın temel bilimsel sonucu
Bu çalışmanın ana sonucu, BEM yığını performansının yalnız elektrot potansiyeline veya mikrobiyal topluluğa bakılarak açıklanamayacağıdır. Elektrokimyasal işletme, elektrolit kimyası, membran iyon taşınımı, CO₂ kütle aktarımı ve mikrobiyal aktivite birbirine bağlıdır.
Yüksek iletkenlik başlangıçta elektriksel açıdan avantaj sağlasa da uzun süreli iyon crossover katolitte tuz birikimine yol açmış ve metanojenik aktiviteyi baskılamıştır. Daha düşük iyon içeriğine sahip Elektrolit-B ile kısmi katolit değişimi bu baskıyı azaltmış ve CH₄ üretimini yeniden yükseltmiştir.
Aynı zamanda çözünmüş CO₂'nin kontrollü biçimde azaltılması çıkış gazındaki dönüştürülmemiş CO₂ miktarını düşürmüş ve CH₄ saflığını artırmıştır. Sonuç, BEM ölçek büyütmede yalnız “daha fazla akım” veya “daha fazla CO₂” yaklaşımının yeterli olmadığını; elektron, iyon ve karbon akışlarının birlikte eşleştirilmesi gerektiğini göstermektedir.
Kaynak ve Yöntem Notu
Özgün başlık: Role of electrolytes composition, ionic crossover and CO2 availability in bioelectrochemical methanation
Yazarlar: Maria Vega-Paredes; Simone Colantoni; Amanda Gómez-Rodríguez; Marina Martín-Sandoval; Pablo Sánchez-Cueto; Radu Ghemis; Sebastià Puig; Daniele Molognoni; Eduard Borràs.
Sorumlu yazar: Daniele Molognoni.
Eş katkı: Kaynakta eş birinci yazarlık veya eş katkı beyanı belirtilmemiştir.
Kurum 1: Leitat, Circular Economy and Decarbonization Department, C/ de la Innovació 2, Terrassa, Barcelona 08225, Spain.
Kurum 2: LEQUiA, Institute of the Environment, University of Girona, Facultat de Ciències, 69, Girona 17071, Spain.
Kurum 3: Pla Serra Húnter, Generalitat de Catalunya, Via Laietana 2, Barcelona 08003, Spain.
Dergi: Journal of CO2 Utilization.
Yayınevi: Elsevier Ltd.
Bibliyografik kayıt: Journal of CO2 Utilization, Volume 108 (2026), Article 103460.
DOI: 10.1016/j.jcou.2026.103460
Resmî bağlantı: https://doi.org/10.1016/j.jcou.2026.103460
Yayın zaman çizelgesi: Received: 4 Şubat 2026; revised: 4 Mayıs 2026; accepted: 13 Mayıs 2026; available online: 22 Mayıs 2026.
Kaynak türü: Hakemli özgün deneysel araştırma; laboratuvar ölçekli üç hücreli BEM stack çalışması.
Lisans: Creative Commons Attribution 4.0 International — CC BY 4.0.
Preprint durumu: İncelenen belge yayımlanmış dergi makalesidir. Kaynakta ayrı preprint kimliği belirtilmemiştir.
Deney süresi: 83 gün.
Hücre sayısı: Üç çift odacıklı BEM hücresi.
Akım yoğunluğu: İlk 14 gün 6 A m−2, daha sonra 12 A m−2; normalizasyon 100 cm² katot düzlemsel alanına göre yapılmıştır.
Çalışma sıcaklığı: Katolit 35 °C.
Membran: CMHPP RALEX katyon değişim membranı, 100 cm².
Anot: IrO₂ bazlı mixed-metal-oxide kaplı titanyum ağ; 9 cm²; 12 g m−2 kaplama.
Katot: Yaklaşık 10 g INOX 434 paslanmaz çelik yünü.
Referans elektrot: Ag/AgCl, 3 M KCl, +208 mV vs SHE.
Katolit/anolit devridaimi: 200 mL dk−1.
Gaz beslemesi: %99,995 CO₂; 20 mL dk−1; çözünmüş CO₂ sensörüne göre manuel aralıklı kontrol.
Elektrokimyasal karakterizasyon: LSV; 1 mV s−1; −0,50 ila −1,20 V vs Ag/AgCl.
İyon analizi: Anyonlar ICS-3000 iyon kromatografisi; Na⁺, K⁺, Ca²⁺ ve Mg²⁺ Agilent 8900 ICP-QQQ ICP-MS.
Gaz analizi: BlueSens BCP sensörleri ve Agilent 490 Micro GC Natural Gas Analyzer.
Mikrobiyoloji: Full-length 16S rRNA Oxford Nanopore MinION + mcrA/hdrA qPCR; veri analizi R Studio, phyloseq ve microeco.
İstatistik: Mikrobiyal topluluk için PERMANOVA, diferansiyel bollukta FDR düzeltmesi ve Spearman korelasyon analizi kullanılmıştır. Ana performans tabloları ortalama ± standart sapma olarak verilmiştir.
Finansman: Avrupa Birliği Horizon Europe Research and Innovation Program kapsamındaki NET-Fuels projesi, Grant No. 101083780. Sebastià Puig Serra Hunter Fellow (UdG-AG-575) olup ICREA Academia Award desteğini bildirmiştir. LEQUIA, Catalan Government tarafından Ref. 2021 SGR01352 kapsamında tanınmaktadır.
Çıkar çatışması: Yazarlar çalışmayı etkileyebilecek ticari veya finansal ilişki bulunmadığını beyan etmiştir.
Yapay zekâ kullanım beyanı: Yazarlar çalışma hazırlanırken metnin okunabilirliğini geliştirmek amacıyla COPILOT kullandıklarını; sonrasında içeriği inceleyip düzenlediklerini ve yayımlanan içerikten tam sorumluluk aldıklarını belirtmiştir.
Veri erişilebilirliği: Çalışmanın veri kümesi Zenodo'da DOI 10.5281/zenodo.16994844 ile yayımlanmıştır. Ek materyal makalenin DOI kaydı altında çevrimiçi olarak sunulmaktadır.
CRediT — Daniele Molognoni: Writing – review & editing; Supervision; Project administration; Methodology; Funding acquisition; Conceptualization.
CRediT — Sebastià Puig: Writing – review & editing; Supervision.
CRediT — Eduard Borràs: Writing – review & editing; Supervision; Resources; Project administration; Funding acquisition.
CRediT — Marina Martín-Sandoval: Writing – review & editing; Visualization; Investigation; Data curation.
CRediT — Amanda Gómez-Rodríguez: Writing – review & editing; Investigation; Data curation.
CRediT — Radu Ghemis: Writing – review & editing; Supervision; Resources.
CRediT — Pablo Sánchez-Cueto: Writing – review & editing; Data curation.
CRediT — Simone Colantoni: Writing – original draft; Visualization; Validation; Methodology; Investigation; Formal analysis; Data curation; Conceptualization.
CRediT — Maria Vega-Paredes: Writing – original draft; Visualization; Validation; Investigation; Data curation.
Kaynak içi CH₄ saflığı notu: Şekil 3'teki ayrı micro-GC örneklerinde gün 72 ve 82'de CH₄ oranı %96'yı aşarken, Tablo 3 son fazın ortalama CH₄ değerini %87,6 ± 2,6 olarak verir. Bunlar farklı örnekleme/özetleme düzeyleridir.
Kaynak içi üretim hızı notu: Tablo 3 son faz için 1,1 ± 0,3 L-CH₄ L−1katot gün−1 verirken Conclusion düşük CO₂ koşullarındaki “best results” ifadesinde 0,96 ± 0,33 L-CH₄ L−1katot gün−1 değerini kullanır. Kaynak bu iki sayının hesaplanma farkını açıkça açıklamamaktadır.
LSV ifade notu: Kaynak 25 → 70 A m−2 değişimini “1.8x enhancement” diye ifade eder. Ham değerlerin oranı 2,8; artış miktarı ise yaklaşık %180'dir. Bu nedenle Verianla kaynak metnini ve aritmetik ilişkiyi ayrı ayrı görünür tutmaktadır.
Cl₂ sınırı: Cl₂ analitik olarak tespit edilmemiştir; yalnız elektrokimyasal koşullar ve nitel koku gözlemleri nedeniyle olası yan reaksiyon olarak tartışılmıştır.
Mikrobiyoloji sınırı: 16S rRNA örnekleri bulk katolitten alınmış ve primer yanlılığı nedeniyle metanojenik arkeleri göstermemiştir. Elektrot biyofilminin doğrudan uzamsal topluluk analizi yapılmamıştır.
Ölçek büyütme sınırı: Çalışma laboratuvar ölçekli üç hücreli yığındır. Endüstriyel ölçek, otomatik CO₂ kontrolü, ekonomik fizibilite veya uzun dönem ticari dayanıklılık doğrudan test edilmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir