

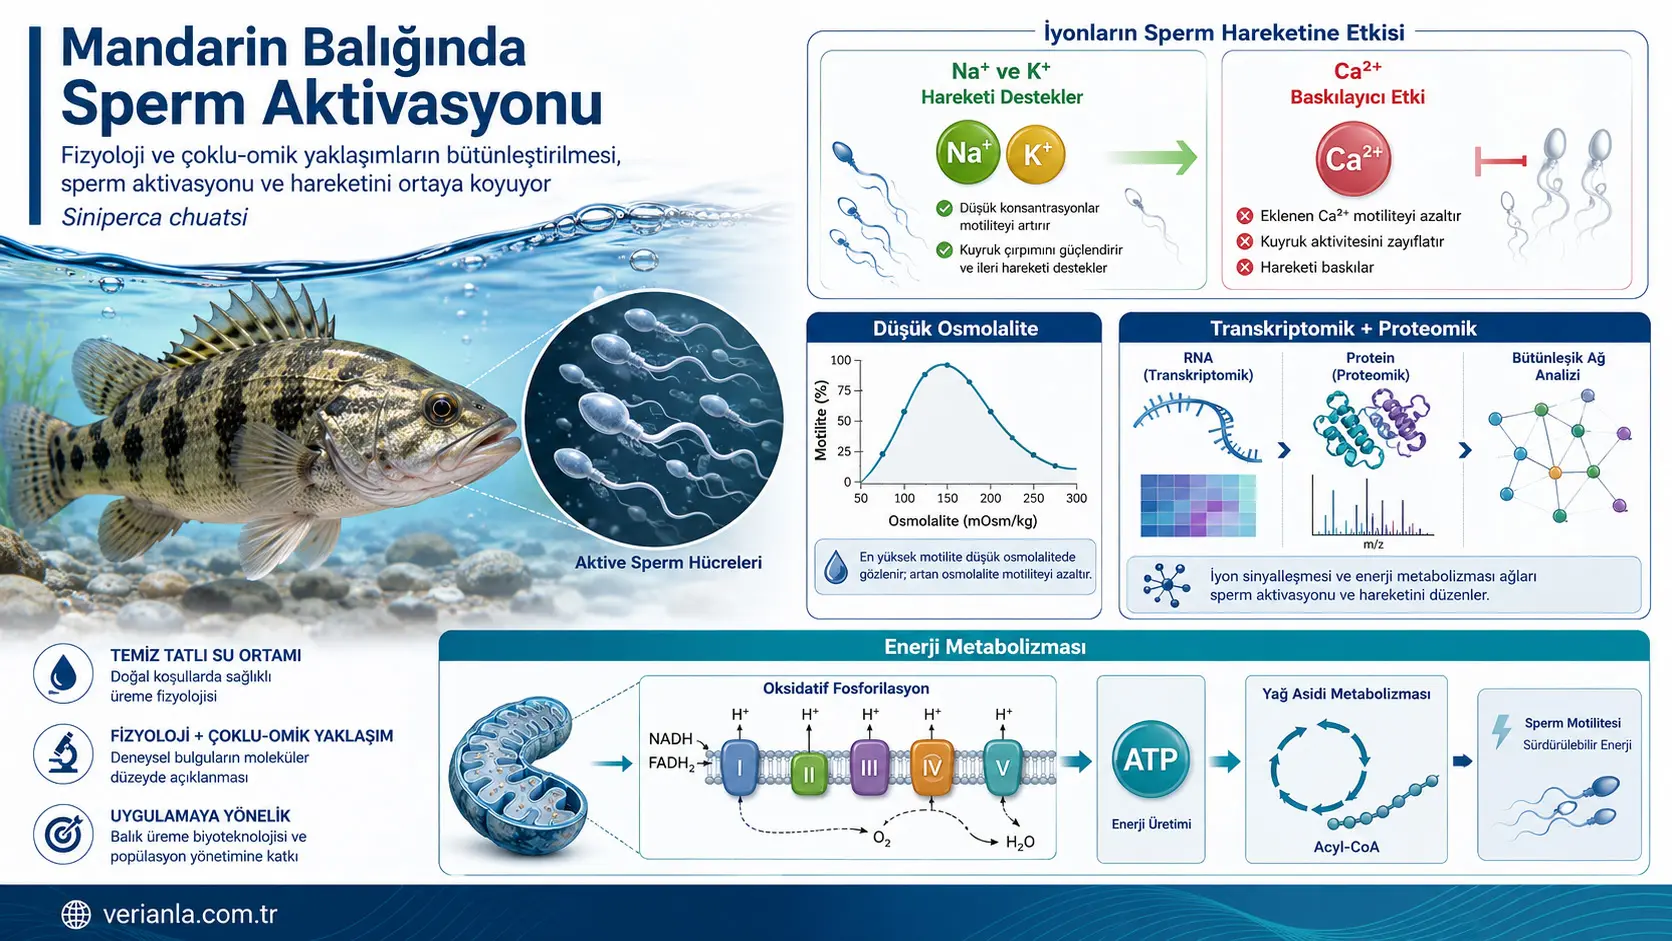
Chuchuk suv baliqlarida sperma hujayralari erkak jinsiy tizimi ichida harakatsiz holatda saqlanadi va suv bilan to‘qnashganda juda qisqa davom etadigan, yuqori energiya talab qiluvchi harakatlanish davriga kiradi. Ushbu qisqa vaqt oralig‘ida sperma hujayrasining tuxumhujayraga yetib borishi muhitning osmolalligiga, natriy, kaliy va kalsiy kabi ionlar miqdoriga, hujayra membranasidagi ion kanallariga hamda foydalanish mumkin bo‘lgan ATF zaxiralariga bog‘liqdir.
Qinghua Wang va uning hamkasblari iqtisodiy jihatdan muhim chuchuk suv turi hisoblangan mandarin balig‘ida (Siniperca chuatsi) sperma faollashuvining fiziologik va molekulyar asoslarini tadqiq qildilar. Tadqiqotda dastlab 24 ta erkak baliqdan olingan sperma namunalari turli osmolallik, NaCl, KCl, CaCl2, ionlar aralashmasi va pH sharoitlarida faollashtirildi. So‘ngra yangi olingan sperma bilan chuchuk suvda 60 soniya davomida faollashtirilgan sperma namunalari transkriptomik va proteomik usullar yordamida o‘zaro taqqoslandi.
Filtrlangan chuchuk suvda sperma harakatchanligi faollashuvdan 10 soniya o‘tgach 89,10 ± 2,83% bo‘lgan bo‘lsa, 20-soniyada 55,62 ± 5,27% ga va 30-soniyada 6,54 ± 3,25% ga tushib ketdi. Bu tezkor pasayish mandarin balig‘i spermasining harakat uchun foydalana oladigan energiya zaxirasi va samarali urug‘lanish vaqti cheklanganligini ko‘rsatadi.
Fiziologik tajribalarda 0–150 mOsm/kg oralig‘ida, ayniqsa faollashuvning dastlabki 10 soniyasida 70 foizdan yuqori harakatchanlik kuzatildi. Shunga qaramay, osmolallik oshgan sari boshlang‘ich harakatchanlik kamaydi va tadqiqotchilar turli tajribalar o‘rtasida barqaror yuqori ko‘rsatkichni ta’minlagani sababli 50 mOsm/kg qiymatini keyingi ion va pH taqqoslashlarida eng mos faollashuv osmolalligi sifatida tanladilar.
Past konsentratsiyali NaCl va KCl eritmalari sperma faollashuvini qo‘llab-quvvatladi. Mualliflar umumiy ion konsentratsiyasi 25 mM dan oshmaydigan Na⁺ va K⁺ muhitlari yuqori harakatchanlikni ta’minlay olishini bildirdilar. NaCl va KCl ning turli nisbatlari umumiy harakatchanlikda katta o‘zgarish keltirib chiqarmadi, ammo 7:1, 1:5 va 1:7 NaCl:KCl nisbatlari tez harakatlanuvchi sperma toifalari ulushini oshirdi.
CaCl2 esa sperma harakatchanligini keskin tarzda susaytirdi. CaCl2:NaCl yoki CaCl2:KCl nisbati 1:500 dan pastga tushirilganda, taxminan 0,06 mM dan past bo‘lgan Ca²⁺ darajalarining harakatchanlikka ta’siri statistik jihatdan ahamiyatsiz bo‘lib qoldi. Bu topilma sun’iy urug‘lantirish paytida faollashtiruvchi eritma tarkibida yuqori miqdorda Ca²⁺ bo‘lmasligi muhim ekanligini ko‘rsatadi.
pH bo‘yicha tajribalarda, 50 mOsm/kg NaCl eritmasi ichida eng yuqori harakatchanlik pH 8 da qayd etildi. Biroq bu natija faqat ma’lum bir NaCl va osmolallik sharoitida, faollashuvdan 10 soniya keyingi o‘lchovga asoslanadi; turli suv tarkiblari yoki real urug‘lantirish muhitlariga to‘g‘ridan-to‘g‘ri tatbiq etilmasligi kerak.
RNK sekvenirlash (RNA-seq) tahlilida faollashtirilgan va yangi sperma o‘rtasida 855 ta turlicha ifodalangan gen (DEG) aniqlandi. Ularning 625 tasi ortgan, 230 tasi kamaygan. Proteomik tahlilda 4 037 ta oqsil identifikasiya qilindi va 752 ta oqsil miqdorida sezilarli o‘zgarish aniqlandi; 297 ta oqsil ko‘paygan, 455 tasi kamaygan.
Ikkala ma’lumot qatlamining birgalikdagi tahlili orqali Na⁺, K⁺ va Ca²⁺ signallari hamda energiya almashinuviga bog‘langan oltita gen va 35 ta oqsil ajratib ko‘rsatildi. grin3bb, cacna1c va chrna7 kabi ion kanallari bilan bog‘liq genlar ko‘paygani; ATP1B, ATP2A, ATP2B, CACNA1H va PRKCB kabi ion tashilishi va hujayra ichi kalsiy muvozanatida ishtirok etuvchi oqsillar miqdori oshgani qayd etildi.
Energiya metabolizmi natijalari sperma faollashuvidan so‘ng glikoliz bilan bog‘liq gen va oqsillarning kamayganini; yog‘ kislotalarining parchalanishi hamda mitoxondrial oksidlovchi fosforillanish komponentlarining ortganini ko‘rsatdi. Tadqiqotchilar ushbu manzarani harakatlanayotgan sperma hujayrasida energiya ishlab chiqarish glikolizdan yog‘ kislotalaridan foydalanish va mitoxondrial ATF hosil bo‘lishi tomon siljishi sifatida talqin qildilar.
Shunga qaramay, molekulyar natijalar hali to‘g‘ridan-to‘g‘ri mexanizm isboti hisoblanmaydi. Hujayra ichidagi Na⁺, K⁺ yoki Ca²⁺ oqimlari o‘lchanmagan; ATF hosil bo‘lishi, mitoxondrial nafas olish, membrana potensiali yoki ion kanallari faolligi bevosita tekshirilmagan. Bundan tashqari, tadqiqot real urug‘lanish darajasini, embrion rivojlanishini yoki lichinkalar chiqish muvaffaqiyatini baholamagan. Shu sababli taklif etilgan faollashtiruvchi eritma sharoitlari sun’iy urug‘lantirish amaliyotlari uchun eksperimental asos yaratadi, xolos; tayyor ishlab chiqarish protokoli yoki muvaffaqiyat kafolati hisoblanmaydi.
Batafsil tushuntirish
Chuchuk suv balig‘i spermasi nima sababdan faqat qisqa vaqt harakatlana oladi?
Baliq sperma hujayralari erkak jinsiy tizimi ichida doimiy harakatda bo‘lmaydi. Seminal plazmaning ionli va osmotik tarkibi spermani vaqtincha harakatsiz holatda saqlaydi. Sperma atrof-muhitdagi suvga chiqarilganda hujayraning tashqi muhiti bir lahzada o‘zgaradi. Chuchuk suv turlarida bu o‘zgarish asosan tashqi muhit osmolalligining seminal plazmaga nisbatan keskin pasayishi bilan boshlanadi.
Osmolallik bir kilogramm erituvchida mavjud bo‘lgan va osmotik bosimga hissa qo‘shadigan erigan zarrachalarning umumiy miqdorini bildiradi. U nafaqat ma’lum bir tuz konsentratsiyasini, balki muhitdagi barcha ionlar va molekulalarning umumiy osmotik ta’sirini ifodalaydi.
Mandarin balig‘i seminal plazmasining osmolalligi 367–380 mOsm/kg deb o‘lchandi. Bunga zid ravishda, sperma hujayralari 0–150 mOsm/kg kabi ancha past osmolallikda kuchli tarzda faollashdi. Ushbu keskin pasayish hujayra membranasida ion harakatlarini, membrana potensialini, hujayra ichi pH darajasini va xivchin harakatini boshlovchi signal jarayonlarini qo‘zg‘atishi mumkin.
Faollashuv boshlangach, sperma xivchinidagi motor oqsillar katta miqdorda ATF sarflaydi. Chuchuk suv baliqlarining sperma hujayralari dengiz baliqlari spermasiga qaraganda odatda ancha cheklangan energiya zaxirasiga ega. Shu sababli harakat tez boshlanadi, ammo qisqa vaqt ichida susayadi.
Tadqiqotning filtrlangan chuchuk suv nazoratidagi vaqt seriyasi ushbu cheklovni aniq ko‘rsatadi:
- Faollashuvdan 10 soniya o‘tgach harakatchanlik: 89,10 ± 2,83%
- Faollashuvdan 20 soniya o‘tgach harakatchanlik: 55,62 ± 5,27%
- Faollashuvdan 30 soniya o‘tgach harakatchanlik: 6,54 ± 3,25%
Ushbu ko‘rsatkichlar harakatning atigi yarim daqiqa ichida deyarli butunlay yo‘qolishini ko‘rsatadi. Sun’iy urug‘lantirish nuqtayi nazaridan, bu holat spermani tuxumhujayra bilan to‘g‘ri vaqtda va to‘g‘ri eritmada uchrashtirish hal qiluvchi ahamiyatga ega ekanligini anglatadi.
Mandarin balig‘i nima uchun tadqiq qilindi?
Siniperca chuatsi — Sharqiy Osiyo chuchuk suv tizimlarida yashovchi, iqtisodiy qimmati yuqori bo‘lgan yirtqich baliqdir. Tadqiqotda turning Xitoy, Koreya va Vetnam kabi mamlakatlarda tarqalgani; go‘sht sifati, to‘yimliligi va mushaklararo mayda suyaklarining yo‘qligi sababli akvakulturada katta ahamiyat kasb etishi qayd etilgan.
Maqolada keltirilgan Xitoy baliqchilik statistikasi ma’lumotlariga ko‘ra, turning akvakultura ishlab chiqarishi 2023-yilda 470 000 tonnadan oshgan. Sun’iy ko‘paytirish texnologiyalari 1980-yillarning oxiridan boshlab rivojlangan bo‘lsa-da, sperma faollashuvini boshqaruvchi osmolallik, ionlar va molekulyar energiya tarmoqlari yetarlicha o‘rganilmagan edi.
Tadqiqotning maqsadi faqat qaysi eritma eng yuqori harakatchanlik berishini aniqlash bilan cheklanmaydi. Ish uchta darajani birlashtiradi:
- Spermaning turli suv va ion sharoitlaridagi real harakatini o‘lchash,
- Faollashuvdan so‘ng spermada mavjud RNK miqdorlarini taqqoslash,
- Faollashuvdan so‘ng oqsil miqdorlari va biologik yo‘llarni baholash.
Ushbu kompleks yondashuv orqali tashqi muhit sharoitlari bilan hujayra ichidagi ion signallari va energiya metabolizmi o‘rtasida ehtimoliy bog‘liqlik o‘rnatishga harakat qilingan.
Baliqlar va sperma namunalari qanday tayyorlandi?
Tajribalar mandarin balig‘ining ko‘payish mavsumi hisoblangan 2026-yilning aprel–iyun oylarida o‘tkazildi. Qo‘llanilgan erkak baliqlarning:
- Tana uzunligi 25 sm dan ortiq,
- Tana vazni 500 grammdan yuqori,
- Yoshi bir yoshdan katta ekanligi bildirildi.
Baliqlar 5 × 5 × 2 metr o‘lchamdagi, aeratsiyalangan va doimiy chuchuk suv oqimi mavjud beton hovuzlarda saqlandi. Suv harorati 23–28°C, erigan kislorod miqdori 6 mg/l dan yuqori, yorug‘lik tartibi esa 13 soat yorug‘ va 11 soat qorong‘i qilib belgilandi.
Baliqlar besh daqiqa davomida evgenol bilan anesteziya qilingach, sperma qorin qismini ohista massaj qilish orqali yig‘ib olindi. Qon, siydik yoki najas bilan ifloslangan namunalar ishlatilmadi. Faqat dastlabki harakatchanlik ko‘rsatkichi 85 foizdan yuqori bo‘lgan sperma namunalari fiziologik va omiks tahlillariga kiritildi.
Eksperimental jarayonlar Sun Yatsen Universiteti Hayot Fanlari Fakulteti Institutsional Hayvonlarni Parvarishlash va Foydalanish Qo‘mitasi tomonidan tasdiqlangani qayd etilgan. PDF da etik qo‘mita tasdiq raqami keltirilmagan.
Sperma harakatchanligi qanday o‘lchandi?
Fiziologik tahlillarda 24 ta erkak baliqdan olingan spermadan foydalanildi. Har bir o‘lchov uchun 0,5 µl sperma 50 µl faollashtiruvchi eritma bilan aralashtirildi. Shu tariqa sperma bilan faollashtiruvchi suyuqlik o‘rtasida hajm jihatidan taxminan 1:100 nisbat hosil qilindi.
Aralashma zudlik bilan optik mikroskop va rangli CCD kamera ostida kuzatildi, harakatchanlik ISAS v2.0 kompyuterlashtirilgan sperma tahlili tizimi orqali hisoblandi. O‘lchovlar:
- 10-soniyada: erta faollashuv,
- 20-soniyada: harakatning saqlanishi,
- 30-soniyada: harakatning susayishi sifatida baholandi.
ISAS tizimi sperma hujayralarini A, B, C va D kabi harakat toifalariga ham ajratdi. Biroq ushbu toifalarning tezlik yoki traektoriya chegaralari PDF da izohlanmagan. Shu sababli A, B, C va D toifalari tadqiqotning o‘z tahlil tizimi doirasidagi nisbiy harakatchanlik guruhlari sifatida qaralishi lozim.
Osmolallik tajribasi nimani aniqlashga qaratilgan edi?
Osmolallik ta’siri ikkita turli eritma yordamida o‘rganildi:
- Saxoza eritmasi: Ionlar qo‘shmasdan, faqatgina sof osmotik ta’sirni baholash uchun qo‘llanildi.
- Sun’iy dengiz tuzi: Na⁺, Mg²⁺, Ca²⁺, K⁺ va Sr²⁺ kabi bir nechta ionni o‘z ichiga olgan qiyosiy muhit.
Har ikki eritma 0 dan 300 mOsm/kg gacha, har 50 mOsm/kg oraliqda tayyorlandi. Shu tariqa bir xil osmolallikda ionlarsiz muhit bilan ko‘p ionli muhit o‘zaro taqqoslandi.
Faollashuvdan 10 soniya o‘tgach, saxoza va sun’iy dengiz tuzi eritmalarining ikkalasida ham 0–150 mOsm/kg oralig‘ida harakatchanlik 70 foizdan yuqori bo‘lib qoldi. Ayniqsa, 0–50 mOsm/kg oralig‘ida boshlang‘ich harakatchanlik juda yuqori bo‘ldi.
Osmolallik 100 mOsm/kg dan oshgani sari harakatchanlik bosqichma-bosqich pasaydi. 250–300 mOsm/kg darajalarida boshlang‘ich harakat sezilarli darajada bostirildi. Bu qiymatlar seminal plazmaning 367–380 mOsm/kg osmolalligiga yaqinlashgan sari sperma o‘zining harakatsiz holatini ko‘proq saqlab qolishini ko‘rsatadi.
20-soniyada sun’iy dengiz tuzida 0–50 mOsm/kg, saxozada esa ayniqsa 50 mOsm/kg nisbatan yuqori harakatchanlikni saqlab qoldi. 30-soniyada barcha sharoitlarda harakatchanlik keskin kamaydi, biroq 150–200 mOsm/kg atrofida boshqa yuqori osmolallik sharoitlariga nisbatan harakat biroz ko‘proq saqlanib qoldi.
Bu yerda muhim muvozanat namoyon bo‘ladi:
- Juda past osmolallik spermani tez va kuchli faollashtiradi.
- Yuqoriroq osmolallik boshlang‘ich harakatchanlikni pasaytiradi.
- Bunga qaramay, ayrim o‘rta-yuqori osmolalliklar harakatning juda qisqa muddatga biroz uzoqroq saqlanishiga yordam berishi mumkin.
Ushbu holat sperma hujayrasining o‘z energiyasini dastlabki soniyalarda katta tezlik bilan sarflashi yoki harakatni pastroq darajada uzoqroq ushlab turishi o‘rtasidagi o‘zaro almashinuvni (trade-off) ifodalaydi. Biroq tadqiqot hujayra ichi ATF miqdorini bevosita o‘lchamagan.
Nima uchun 50 mOsm/kg tanlandi?
0–150 mOsm/kg oralig‘ida yuqori harakatchanlik kuzatilgan bo‘lsa-da, 50 mOsm/kg qiymati sun’iy dengiz tuzi, saxoza, NaCl va KCl tajribalarining barchasida erta faollashuv bo‘yicha barqaror yuqori natija bergani sababli keyingi ion va pH tajribalarida asosiy ishchi osmolallik sifatida tanlandi.
Shu sababli 50 mOsm/kg yagona biologik to‘g‘ri chegara degani emas. Bu tadqiqotchilar tomonidan keyingi tajribalarni standartlashtirish uchun qo‘llanilgan, yuqori boshlang‘ich harakatni ta’minlovchi qulay eksperimental sharoitdir.
Na⁺ va K⁺ sperma harakatiga qanday ta’sir qildi?
NaCl va KCl eritmalari 0–300 mOsm/kg oralig‘ida alohida-alohida sinovdan o‘tkazildi. Faollashuvdan 10 soniya o‘tgach, har ikkala tuzda ham 0–50 mOsm/kg oralig‘ida yuqori harakatchanlik saqlandi.
20-soniyada:
- NaCl 0–100 mOsm/kg oralig‘ida yuqori harakatchanlikni qo‘llab-quvvatladi.
- KCl 0–50 mOsm/kg va 150 mOsm/kg sharoitlarida nisbatan yuqori harakat berdi.
30-soniyada NaCl va KCl muhitlarida harakatchanlik 40 foizdan pastga tushdi. Shunday bo‘lsa-da, 150–200 mOsm/kg atrofida boshqa yuqori osmolallik sharoitlariga qaraganda ko‘proq harakat saqlanib qoldi.
Bir xil osmolallik darajasida ikki ion o‘rtasida vaqt va konsentratsiyaga bog‘liq kichik farqlar qayd etildi:
- 250 mOsm/kg va 10-soniyada NaCl KCl dan yuqoriroq harakatchanlik berdi.
- 200 mOsm/kg va 20-soniyada KCl NaCl dan yuqoriroq natija ko‘rsatdi.
- 250 mOsm/kg va 30-soniyada ham KCl foydasiga farq kuzatildi.
- 50 mOsm/kg va 10-soniyada NaCl eng tez harakatlanuvchi A toifasidagi sperma ulushini KCl ga nisbatan oshirdi.
Natijalar Na⁺ yoki K⁺ ionlari alohida olinganda mutlaq “yoqish tugmasi” kabi ishlamasligini; ularning ta’siri osmolallikka, vaqtga va sperma harakat toifasiga bog‘liqligini ko‘rsatadi.
Past ion konsentratsiyasi nima uchun foydali bo‘lishi mumkin?
Chuchuk suv balig‘i spermasi seminal plazmadan past osmolallikli suvga o‘tganda hujayra ichi va tashqarisidagi ionlar balansi to‘satdan o‘zgaradi. Tadqiqot muhokamasiga ko‘ra, tashqi muhitda K⁺ ning kamligi hujayradan K⁺ chiqishini va membrana giperpolyarizatsiyasini rag‘batlantirishi mumkin. Bu elektr o‘zgarishi sperma faollashuvining dastlabki signallaridan biri bo‘lishi mumkin.
Na⁺ esa sperma hujayrasidagi Na⁺/H⁺ almashinuvchilari va boshqa ion transport tizimlari orqali hujayra ichi pH darajasini tartibga solishga hissa qo‘shishi mumkin. Hujayra ichining ishqoriyroq bo‘lishi xivchindagi dinein motorlarining ATFaza faolligini va xivchin urishlarini qo‘llab-quvvatlashi mumkin.
K⁺ ning kirishi va Na⁺/K⁺-ATFaza faolligi ham harakat boshlangandan so‘ng membrana potensialini va hujayra ichi K⁺ muvozanatini saqlashga xizmat qilishi taxmin qilinadi.
Biroq ushbu tadqiqotda hujayra ichidagi Na⁺ yoki K⁺ miqdori, Na⁺/H⁺ almashinuvchi faolligi, membrana potensiali yoki dinein ATFaza faolligi bevosita o‘lchanmagan. Bu tushuntirishlar fiziologik natijalar va omiks ma’lumotlariga asoslangan mexanistik gipotezalardir.
NaCl va KCl aralashmalari qanday natija berdi?
50 mOsm/kg doimiy osmolallikda NaCl:KCl molyar nisbatlari 7:1, 5:1, 3:1, 1:1, 1:3, 1:5 va 1:7 ko‘rinishida taqqoslandi. Faollashuvdan 10 soniya o‘tgach, umumiy harakatchanlik bo‘yicha nisbatlar o‘rtasida statistik jihatdan ahamiyatli farq topilmadi.
Biroq harakat toifalari tahlil qilinganda 7:1, 1:5 va 1:7 nisbatlari A toifasidagi tezkor sperma ulushini oshirdi. Bu natija turli Na⁺ va K⁺ nisbatlari umumiy harakatlanuvchi sperma foizini o‘zgartirmasdan, harakat sifati taqsimotiga ta’sir ko‘rsatishi mumkinligini bildiradi.
Nisbatlarning nosimmetrik natija berishi bitta oddiy universal Na⁺:K⁺ nisbati mavjud emasligini ham ko‘rsatadi. Tadqiqot ushbu nisbatlarni real tuxum urug‘lantirish sinovlarida tekshirmagan.
Ca²⁺ nima sababdan boshqacha ta’sir ko‘rsatdi?
Ko‘plab hayvon turlarida hujayra ichidagi nazoratli Ca²⁺ signali sperma harakati uchun zarurdir. Aksincha, tashqi muhitda ortiqcha Ca²⁺ bo‘lishi har doim ham foydali emas. Mandarin balig‘i tajribalarida CaCl2 saqlagan faollashtiruvchi eritmalar ham 10-, ham 20-soniyalarda harakatchanlikni keskin pasaytirdi.
CaCl2 eritmasining osmolalligi oshgan sari harakat yanada susaydi; 200–300 mOsm/kg oralig‘ida, ayniqsa 20-soniyada harakat deyarli butunlay to‘xtadi.
Bu natija dastlab omiks tahlillarida ayrim Ca²⁺ kirish kanallari va kalsiy signal oqsillarining ko‘payishi bilan ziddiyatli ko‘rinishi mumkin. Ammo tashqi muhitda yuqori Ca²⁺ bo‘lishi bilan hujayra ichidagi qisqa muddatli va nazoratli Ca²⁺ signali mutlaqo boshqa tushunchalardir.
Tadqiqot ilgari surgan modelga ko‘ra:
- Muayyan kanallar orqali cheklangan Ca²⁺ kirishi signal uzatishni va xivchin harakatini qo‘llab-quvvatlaydi.
- ATP2A va ATP2B kabi nasoslar sitoplazmadagi ortiqcha Ca²⁺ ni hujayra ichi depolariga yoki hujayradan tashqariga chiqarib muvozanatni saqlaydi.
- Tashqi muhitdan haddan tashqari ko‘p Ca²⁺ kirishi bu muvozanatni buzadi.
- Yuqori Ca²⁺ xivchin mikronaychalarining sirpanish harakatini falajlashi yoki mitoxondriya bilan bog‘liq hujayra nobud bo‘lishi yo‘llarini faollashtirishi mumkin.
Ushbu model “Ca²⁺ mutlaqo keraksiz” degan xulosani bermaydi. Aniqroq xulosa shuki, mandarin balig‘i spermasida tashqi faollashtirish muhitiga ko‘p Ca²⁺ qo‘shilishi harakatni to‘xtatadi; hujayra ichidagi Ca²⁺ signali esa juda qat’iy nazorat qilinishi shart.
Ca²⁺ uchun 1:500 nisbati nimani anglatadi?
CaCl2 NaCl yoki KCl bilan turli molyar nisbatlarda aralashtirildi. Qo‘llanilgan CaCl2:NaCl/KCl nisbatlari 1:10 dan 1:1000 gacha bo‘ldi.
Ca²⁺ ulushi kamaygan sari sperma harakatchanligi oshdi. CaCl2:NaCl muhitlarida 1:200, 1:500 va 1:1000 nisbatlari; CaCl2:KCl muhitlarida esa ayniqsa 1:500 va 1:1000 nisbatlari yuqori harakatni ta’minladi.
Mualliflar 1:500 dan past bo‘lgan Ca²⁺ ulushi, ya’ni taxminan 0,06 mM dan past Ca²⁺ darajalari harakatchanlikka sezilarli salbiy ta’sir ko‘rsatmasligini bildirdilar.
Ushbu chegara tajribada ishlatilgan muayyan osmolallik, tuz nisbati va o‘lchov vaqtiga tegishlidir. Barcha tabiiy suv manbalari yoki barcha urug‘lantirish tizimlari uchun o‘zgarmas qoida deb qabul qilinmasligi kerak.
pH nima sababdan muhim edi?
Sperma harakatini ta’minlovchi ion kanallari, fermentlar va xivchin motorlari muhit pH ko‘rsatkichiga juda sezgirdir. Tadqiqotda 50 mOsm/kg NaCl faollashtiruvchi eritmasi pH 4 dan 11 gacha bo‘lgan oraliqda sinab ko‘rildi.
Faollashuvdan 10 soniya o‘tgach, eng yuqori umumiy harakatchanlik pH 8 da kuzatildi. Harakat toifalari bo‘yicha ham pH 8:
- A va B toifasidagi tezkor sperma ulushini oshirdi,
- A+B umumiy tezkor toifani yuqori darajaga ko‘tardi,
- D toifasidagi sust harakatlanuvchi sperma ulushini kamaytirdi.
Natija kuchsiz ishqoriy muhit mandarin balig‘i spermasi faollashuvini qo‘llab-quvvatlashini ko‘rsatadi. Shunga qaramay, pH tajribasi faqatgina NaCl va 50 mOsm/kg sharoitida o‘tkazilgan; KCl, turli suv qattiqligi yoki real tuxum muhitida ayni optimal qiymat tasdiqlanmagan.
1-rasm: Tadqiqotning texnik ish rejasi
1-rasm tadqiqotni uchta asosiy blok shaklida ko‘rsatadi. Birinchi blokda erkak baliqlarni saqlash, sperma yig‘ish va dastlabki harakatchanligi 85 foizdan yuqori bo‘lgan namunalarni saralab olish aks etgan.
Ikkinchi blokda 24 ta erkak baliqdan olingan namunalar bilan o‘tkazilgan fiziologik tahlillar keltirilgan. Bu bo‘lim:
- 0–300 mOsm/kg osmolallik tajribalarini,
- Saxoza va sun’iy dengiz tuzi taqqoslashini,
- NaCl, KCl va CaCl2 tajribalarini,
- Aralash ion nisbatlarini,
- pH 4–11 taqqoslashini qamrab olgan.
Uchinchi blokda yangi sperma bilan faollashtirilgan sperma o‘rtasidagi transkriptomik va proteomik taqqoslash berilgan. RNA-seq, LC-MS/MS, differensial ifodalanish tahlili, KEGG va GO boyitish, oqsil-oqsil o‘zaro ta’sir tarmog‘i va birlashgan mRNK-yo‘l-oqsil tarmog‘i ushbu blokda jamlangan.
Omiks taqqoslash qanday amalga oshirildi?
Omiks tahlili uchun yangi olingan sperma namunalari FS (fresh sperm), filtrlangan chuchuk suvda 60 soniya faollashtirilgan namunalar esa AS (activated sperm) guruhi deb belgilandi.
Rasmlar va ma’lumotlar jadvallarida FS_1, FS_2, FS_3 hamda AS_1, AS_2, AS_3 ko‘rinishida uchtadan tahlil namunasi ko‘rsatilgan. Metodologiya bo‘limida namunalar jami oltita erkak baliqdan olingani bildirilgan.
Faollashtirilgan sperma 60 soniya chuchuk suvda qoldirilgan. Bu muddat erta faollashuvni, harakatning saqlanishini va harakatning keskin susayishini birgalikda qamrab oladi. Fiziologik tajribada 30-soniyadayoq harakatchanlik juda past darajaga tushgani hisobga olinsa, AS guruhi nafaqat eng tez harakatlanish holatini, balki faollashuvdan keyingi energiya sarfi va harakatning so‘nishini ham ifodalaydi.
Shu sababli omiks natijalari “harakatni boshlab beruvchi o‘zgarishlar” bilan “harakat paytida yoki undan keyin yuzaga keladigan o‘zgarishlarni” qat’iy ajratmasligini e’tiborga olish lozim.
Transkriptomik tahlil qanday bajarildi?
Umumiy RNK TRIzol usuli bilan ajratildi, RNK sifati Agilent 2100 Bioanalyzer da baholandi va poliadenillangan mRNK oligo(dT) magnit bonchalari bilan boyitildi. cDNA kutubxonalari Illumina NovaSeq 6000 platformasida sekvenirlindi.
Xom o‘qishlar fastp dasturi bilan tozalandi; adapterlar, sifatsiz ketma-ketliklar va poly-N sohalari olib tashlandi. Toza o‘qishlar S. chuatsi referens genomiga HISAT 2.2.1 bilan tekislandi, transkriptlar StringTie 3.0.1 orqali yig‘ildi.
Genlar miqdori RSEM yordamida FPKM hisobida aniqlandi. Differensial ifodalangan genlar DESeq2 orqali belgilandi va ikkita mezon birga qo‘llanildi:
- Noto‘g‘ri kashfiyotlar ulushi (FDR) < 0,05
- |log2(o‘zgarish karraligi)| > 1
Tadqiqotda formula ochiq berilmagan. log2 karrali o‘zgarishni tushunish uchun qo‘llanilgan asosiy munosabatni quyidagicha ko‘rsatish mumkin:
\[ \log_2(\mathrm{FC})= \log_2\left( \frac{\text{faollashtirilgan spermadagi nisbiy miqdor}} {\text{yangi spermadagi nisbiy miqdor}} \right) \]
Bunda FC (fold change) karrali o‘zgarishdir. Musbat log2FC qiymati faollashtirilgan spermada ortishni, manfiy qiymat esa kamayishni bildiradi. Bu formula yangi model emas, balki qo‘llanilgan ko‘rsatkichning matematik ma’nosini tushuntiradi.
RNA-seq ma’lumotlarining sifati qanday edi?
Oltita namunadan jami 264 432 676 ta xom o‘qish olindi. Filtrlashdan so‘ng 245 324 144 ta toza o‘qish qoldi va xom o‘qishlarning 92,77 foizi tahlilda ishlatildi.
| RNA-seq sifat ko‘rsatkichi | Qayd etilgan natija |
|---|---|
| Jami xom o‘qishlar | 264 432 676 |
| Jami toza o‘qishlar | 245 324 144 |
| Toza o‘qishlar ulushi | 92,77% |
| Namuna boshiga toza asoslar hajmi | 6,02–6,32 Gbp |
| GC miqdori | 50,23–51,41% |
| Q20 | 97% dan yuqori |
| Q30 | 92% dan yuqori |
| Genomga umumiy tekislanish ulushi | 66,97–78,92% |
| Noyob tekislanish ulushi | 56,88–70,95% |
Transkriptlarni yig‘ish natijasida 22 630 tasi ma’lum, 1 043 tasi yangi deb tasniflangan jami 23 673 ta gen aniqlandi.
Transkriptomda qanday o‘zgarishlar topildi?
Faollashtirilgan sperma bilan yangi sperma o‘rtasida jami 855 ta differensial ifodalangan gen (DEG) aniqlandi:
- 625 ta genning nisbiy miqdori oshdi.
- 230 ta genning nisbiy miqdori kamaydi.
Ion kanallari bilan bog‘liq cacna1c, grin3bb va chrna7 genlari sezilarli darajada ko‘paygan genlar qatoriga kirdi.
Oqsil-oqsil o‘zaro ta’siri (PPI) tarmog‘ida rasmda CYTB, COX1 va ATP6 mitoxondrial markaziy tugunlar sifatida ko‘rsatildi. Asosiy matnda CYTB nomi bir joyda “GYTB” shaklida yozilgan; bu preprintda tahrir qilinishi lozim bo‘lgan nomlash xatolaridan biridir.
KEGG tahlilida 25 ta statistik ahamiyatli yo‘l aniqlandi. Ko‘paygan genlar asosan oksidlovchi fosforillanishda; kamaygan genlar esa PPAR signal yo‘lida boyidi.
GO tahlilida 60 ta ahamiyatli atama belgilandi:
- 28 ta biologik jarayon,
- 8 ta hujayraviy komponent,
- 24 ta molekulyar funksiya atamasi.
Ko‘paygan genlar ion birikishi, ATF birikishi va lipid birikishi funksiyalarida; kamaygan genlar esa metabolik jarayonlarni boshqarish va signal uzatish atamalarida to‘plandi.
3-rasm transkriptom natijalarini qanday ko‘rsatadi?
3A-rasmdagi Pirson korrelyatsiya matritsasi biologik namunalar o‘rtasidagi o‘xshashlikni ifodalaydi. Namunalarning korrelyatsiya qiymatlari umumiy hisobda yuqori bo‘lishi bilan birga ayrim yangi va faollashtirilgan namunalar orasida ham kuchli o‘xshashliklar mavjud.
3B-rasmdagi vulqon grafigida qizil nuqtalar ko‘paygan, ko‘k nuqtalar kamaygan genlarni bildiradi. grin3bb, chrna7 va cacna1c yuqori o‘sish va statistik ishonchliligi tufayli alohida belgilangan.
3C-rasmdagi o‘zaro ta’sir tarmog‘i mitoxondrial energiya hosil bo‘lishi bilan bog‘liq COX1, ATP6 va CYTB kabi tugunlarning o‘zaro zich aloqasini ko‘rsatadi.
3D va 3E-rasmlardagi KEGG va GO pufakchali grafiklari oksidlovchi fosforillanish, motor oqsillar, ion birikishi, mikronaychalar motor faolligi va hujayra harakati kabi mavzular faollashgan spermadagi o‘zgarishlar bilan bevosita bog‘liqligini aks ettiradi.
Proteomik tahlil qanday bajarildi?
Sperma oqsillari 6 M mochevina saqlagan bufer bilan ajratib olindi, disulfid bog‘lari DTT bilan qaytarildi va sisteinlar yodasetamid bilan alkillandi. Oqsil miqdori Bredford usulida o‘lchanib, namunalar tripsin fermenti bilan peptidlarga parchalab yuborildi.
Peptidlar C18 ustunlari bilan tozalandi va Vanquish Neo UHPLC tizimiga ulangan Orbitrap Astral mass-spektrometrida tahlil qilindi. O‘lchov ma’lumotlardan mustaqil yozib olish (DIA) rejimida o‘tkazildi.
Ma’lumotlar DIA-NN dasturi yordamida S. chuatsi oqsil ma’lumotlar bazasiga qarshi tahlil qilindi. Peptid va oqsillarni aniqlashda Q-qiymat 0,01 chegarasida qo‘llanildi.
Miqdori o‘zgargan oqsillar (DEP) uchun:
- P < 0,05,
- FC > 1,20 yoki FC < 0,83 mezonlari ishlatildi.
Proteomik karrali o‘zgarishning ma’nosini quyidagicha ifodalash mumkin:
\[ \mathrm{FC}= \frac{\text{faollashtirilgan spermadagi oqsil miqdori}} {\text{yangi spermadagi oqsil miqdori}} \]
FC qiymati 1 dan katta bo‘lsa, oqsil faollashgan spermada ko‘paygan; 1 dan kichik bo‘lsa, kamaygan. Jadvalda PGM1 uchun 0,83 qiymati berilgan bo‘lsa-da, oqsil kamaygan guruhda ko‘rsatilgan. Bu holat chegara qiymatining yaxlitlanishidan kelib chiqqan bo‘lishi mumkin; biroq PDF da qo‘shimcha o‘nlik xonalar berilmagani sababli aniq sababni tasdiqlab bo‘lmaydi.
Proteomda qanday o‘zgarishlar topildi?
Proteomik tahlilda 39 611 ta peptiddan 4 037 ta oqsil identifikasiya qilindi. Asosiy komponentlar tahlili (PCA) yangi va faollashtirilgan sperma guruhlarini bir-biridan aniq ajratdi.
Jami 752 ta miqdori o‘zgargan oqsil (DEP) aniqlandi:
- 297 ta oqsil ko‘paydi.
- 455 ta oqsil kamaydi.
Ion kanallari va ion tashilishi bilan bog‘liq ITPR1, ATP2A, ATP2B, VDAC1, VDAC2, VDAC3, CACNA1H, ATP1B va PRKCB miqdori o‘zgargan oqsillar sirasiga kirdi.
Oqsil-oqsil o‘zaro ta’sir tarmog‘ida oltita asosiy markaziy oqsil belgilandi:
- NDUFB9
- NDUFS3
- NDUFV2
- DDOST
- RPN1
- TKTB
NDUF oilasiga mansub markaziy oqsillarning mitoxondrial elektron tashish zanjiri bilan bog‘liqligi faollashuvdan keyin energiya almashinuvining qanchalik muhimligini tasdiqlaydi.
Proteomik KEGG va GO natijalari
KEGG tahlilida 62 ta statistik ahamiyatli yo‘l topildi. Ko‘paygan oqsillar:
- Oksidlovchi fosforillanish,
- Umumiy metabolik yo‘llar,
- cAMP signal yo‘li,
- Kalsiy signal yo‘lida boyidi.
Kamaygan oqsillar esa:
- Glikoliz/glyukoneogenez,
- Aminokislotalar biosintezi yo‘llarida to‘plandi.
GO tahlilida 172 ta ahamiyatli atama aniqlandi:
- 112 ta biologik jarayon,
- 10 ta hujayraviy komponent,
- 50 ta molekulyar funksiya atamasi.
Ko‘paygan oqsillar oksidlovchi fosforillanish, ATF metabolik jarayoni, ion tashilishi, kation tashilishi va proton tashilishida boyigan bo‘lsa; kamaygan oqsillar glikoliz va uglevodlar metabolizmida jamlandi.
4-rasm proteom natijalarini qanday ko‘rsatadi?
4A-rasmdagi PCA grafigida yangi va faollashtirilgan sperma namunalari turlicha zonalarda to‘plangan. Bu ajralish faollashuvdan so‘ng oqsil profilida yoppasiga o‘zgarish sodir bo‘lganini bildiradi.
4B-rasmdagi vulqon grafigida ATP2A, ATP2B, CACNA1H, ATP1B, PRKCB, VDAC1, VDAC3 va ITPR1 kabi ion regulyatori bo‘lgan oqsillar belgilab ko‘rsatilgan.
4C-rasmdagi o‘zaro ta’sir tarmoqlari mitoxondrial elektron tashish zanjiri, oqsil qayta ishlanishi va glikolitik metabolizm bilan bog‘liq alohida klasterlarni aks ettiradi.
4D-rasmda oksidlovchi fosforillanish, termogenez va metabolik yo‘llar; 4E-rasmda esa elektron tashish zanjiri, ATF sintezi, hujayraviy nafas olish va transmembrana tashuvchi faolligi yaqqol ko‘rinadi.
Transkriptom va proteom qanday birlashtirildi?
Tadqiqotchilar oltita asosiy KEGG yo‘li, 64 ta differensial ifodalangan gen va 185 ta miqdori o‘zgargan oqsildan iborat mRNK-yo‘l-oqsil integrallashgan tarmog‘ini qurdilar.
Ushbu tarmoqda ajralib turgan oltita yo‘l quyidagilardir:
- cAMP signal yo‘li,
- Kalsiy signal yo‘li,
- Oksidlovchi fosforillanish,
- Yog‘ kislotalarining parchalanishi,
- Glikoliz/glyukoneogenez,
- Umumiy metabolik yo‘llar.
ATP2A, ATP1B va ATP2B oqsillari ham cAMP, ham kalsiy signallari bilan bog‘liq deb topildi. pfkpa va LOC122879941 esa glikoliz/glyukoneogenez va umumiy metabolik yo‘llarga ulandi.
5-rasmda yashil ko‘pburchaklar biologik yo‘llarni, qizil hoshiyali oq tugunlar ko‘paygan mRNKlarni, ko‘k hoshiyali oq tugunlar kamaygan mRNKlarni, to‘q sariq tugunlar ko‘paygan oqsillarni va to‘q ko‘k tugunlar kamaygan oqsillarni ifodalaydi.
Tarmoqning o‘ta zichligi yagona chiziqli mexanizm o‘rniga bir vaqtning o‘zida ko‘plab yo‘llar o‘zgarishini ko‘rsatadi. Shunga qaramay, tarmoq bog‘lanishlari ma’lumotlar bazalaridagi o‘xshashliklar va statistik boyitishga asoslanadi; barcha aloqalar mandarin balig‘i spermasida fizik jihatdan bevosita isbotlangan o‘zaro ta’sirlar emas.
Ajratib ko‘rsatilgan oltita asosiy gen
| Gen | Log2FC | O‘zgarish | Tadqiqotda bog‘langan jarayon |
|---|---|---|---|
| grin3bb | 5,33 | Ortish | Hujayra tashqarisidan Na⁺ va Ca²⁺ kirishi bilan bog‘liq NMDAR subbirligi |
| cacna1c | 1,37 | Ortish | L-tipidagi potensialga bog‘liq Ca²⁺ kanali |
| chrna7 | 5,95 | Ortish | Ca²⁺ o‘tkazuvchanligiga ega nikotinli asetilxolin retseptori |
| pfkpa | −1,04 | Kamayish | Glikoliz; 6-fosfofruktokinaza 1 |
| atp6 | 1,86 | Ortish | Mitoxondrial oksidlovchi fosforillanish |
| atp6v1f | 1,04 | Ortish | V-tipidagi proton tashuvchi ATFaza subbirligi |
Na⁺ va K⁺ signallariga oid molekulyar model
grin3bb geni NMDA retseptorlari oilasining bir subbirligini kodlaydi. Tadqiqot talqiniga ko‘ra, ushbu retseptorlar Na⁺ va Ca²⁺ o‘tishiga hissa qo‘shishi mumkin.
ATP1B oqsillari Na⁺/K⁺-ATFaza fermentining beta-subbirliklaridir. Ikkita ATP1B oqsil yozuvi faollashgan spermada mos ravishda 1,42 va 1,59 barobar ko‘paydi. Na⁺/K⁺-ATFaza hujayra membranasidagi Na⁺ va K⁺ gradientlarini saqlashga xizmat qilishi mumkin.
Mualliflar taklif qilgan modelga ko‘ra, past osmolallikli muhit boshlab bergan ionlar chiqishi va membrana giperpolyarizatsiyasi Na⁺ va K⁺ transport tizimlari bilan birgalikda ishlab, harakatning boshlanishi va qisqa muddat saqlanishini ta’minlashi mumkin.
Biroq tadqiqotda Na⁺/K⁺-ATFaza nasos oqimi, ion kanali o‘tkazuvchanligi yoki hujayra ichi ion konsentratsiyasi bevosita o‘lchanmagan.
Ca²⁺ signallariga oid molekulyar model
Ca²⁺ boshqarilishi bilan bog‘liq asosiy o‘zgarishlar quyidagilardan iborat:
- cacna1c va chrna7 genlarida ortish,
- CACNA1H oqsilida 2,50 barobar ortish,
- ATP2A oqsillarida 1,57–1,64 barobar ortish,
- ATP2B oqsillarida 1,40–1,45 barobar ortish,
- PRKCB oqsilida 1,60 barobar ortish,
- ITPR1 oqsilida 0,20 barobargacha kamayish,
- VDAC1, VDAC2 va VDAC3 oqsillarida 1,36–1,40 barobar ortish.
CACNA1H potensialga bog‘liq T-tipidagi Ca²⁺ kanalining tarkibiy qismidir. CHRNA7 esa yuqori Ca²⁺ o‘tkazuvchanligiga ega retseptor sifatida hujayra ichiga Ca²⁺ kirishiga xizmat qilishi mumkin.
Ortgan hujayra ichi Ca²⁺ miqdori PRKCB orqali PKC signal yo‘liga va xivchin bilan bog‘liq oqsillarning fosforillanishiga ta’sir ko‘rsatishi mumkin.
ATP2A Ca²⁺ ni endoplazmatik/sarkoplazmatik to‘rga o‘xshash hujayra ichi depolariga tashiydi. ATP2B esa plazma membranasidan Ca²⁺ ni hujayradan tashqariga chiqarib yuboradi. Ushbu ikki oqsil guruhining ko‘payishi faollashuv paytida Ca²⁺ darajasi nafaqat oshirilishini, balki ayni paytda tezda cheklanishga harakat qilinishini ko‘rsatadi.
ITPR1 ning kamayishi hujayra ichi depolardan Ca²⁺ ajralib chiqishining bostirilishi bilan bog‘langan. VDAC oqsillarining ortishi esa mualliflar tomonidan ortiqcha Ca²⁺ va mitoxondrial hujayra o‘limi signallari o‘rtasidagi ehtimoliy aloqa sifatida baholangan.
Bu natijalar past va nazoratli hujayra ichi Ca²⁺ signali harakatni boshqarishda ishtirok etishi mumkinligini; tashqi muhitdan ortiqcha Ca²⁺ kirishi esa harakatni to‘xtatishini ko‘rsatuvchi ikki tomonlama modelni shakllantiradi.
Energiya metabolizmida nimalar o‘zgardi?
Sperma xivchinining harakati ATF talab qiladi. Tadqiqotda faollashuvdan so‘ng glikoliz bilan bog‘liq bitta gen va ko‘plab oqsillar kamaygani bildirildi:
- pfkpa
- PGM1
- PGM2
- ALDOB
- GAPDHS
- PGK1
- ENO1B
- PKMA izoformalari
Bunga qarama-qarshi o‘laroq, yog‘ kislotalari metabolizmi bilan bog‘liq ACSL, ACSL4 va CPT1A oqsillari ko‘paydi. CPT1A uzun zanjirli yog‘ kislotalarini mitoxondriyaga tashib, beta-oksidlanishga kiritishda xizmat qiluvchi asosiy oqsillardan biridir.
Oksidlovchi fosforillanishga tegishli ikkita gen va o‘nta ATFaza subbirligi oqsili ham ortdi. Qayd etilgan oqsil karrali o‘zgarishlari 1,34 dan 4,98 gacha bo‘ldi.
Ushbu holat tadqiqotchilar tomonidan quyidagi metabolik burilish bilan izohlandi:
- Faollashuvdan oldin glikogen va glikolizdan foydalanish ustun bo‘lishi,
- Faollashuvdan so‘ng glikolizning susayishi,
- Yog‘ kislotalarining parchalanishi kuchayishi,
- Mitoxondrial oksidlovchi fosforillanish orqali ATF sintezining kuchayishi.
Tadqiqot mantiqini tushuntirish uchun ATF sarflanishining asosiy biokimyoviy formulasini quyidagicha ko‘rsatish mumkin:
\[ \mathrm{ATP}+\mathrm{H_2O} \rightarrow \mathrm{ADP}+\mathrm{P_i}+\text{foydalaniladigan energiya} \]
Bu yerda ATF hujayraning energiya tashuvchi molekulasini, ADF pastroq energiyali mahsulotni va Pi noorganik fosfatni bildiradi. Xivchin motorlari ATF gidrolizidan ajralgan energiyani mexanik harakatga aylantiradi. Ushbu tenglama PDF da natijaviy formula sifatida berilmagan; energiya almashinuvining mohiyatini tushuntirish uchun qo‘shilgan.
Glikolizning kamayishi harakatning pasayishini anglatadimi?
Yo‘q. Yagona energiya yo‘lining kamayishi umumiy ATF ishlab chiqarilishi mutlaq tushib ketganini anglatmaydi. Tadqiqotda glikoliz komponentlari kamaygan bo‘lsa-da, yog‘ kislotalari parchalanishi va oksidlovchi fosforillanish komponentlari ko‘paygan.
Tadqiqotchilar bu holatni energiyaning boshqa metabolik manbadan ta’minlana boshlashi sifatida baholadilar. Shunga qaramay:
- ATF konsentratsiyasi o‘lchanmagan.
- Kislorod sarflanish tezligi o‘lchanmagan.
- Yog‘ kislotalari oksidlanish tezligi o‘lchanmagan.
- Glikolitik oqim bevosita o‘lchanmagan.
- Metabolitlar yoki izotopli tahlillar o‘tkazilmagan.
Binobarin, “glikolizdan yog‘ kislotalariga to‘liq metabolik o‘tish” to‘g‘ridan-to‘g‘ri oqim isboti emas, balki gen va oqsil miqdorlari qonuniyatidan chiqarilgan mexanistik talqindir.
6-rasm taklif etgan integrallashgan mexanizm
6-rasm tadqiqotning fiziologik va omiks natijalarini yagona sxemada birlashtiradi. Sxemaning yuqori qismi Na⁺, K⁺ va Ca²⁺ signallarini; pastki qismi esa energiya metabolizmini ko‘rsatadi.
Tavsiya etilgan jarayon quyidagi tartibda kechadi:
- Past osmolallik sperma membranasidagi ionlar muvozanatini o‘zgartiradi.
- Na⁺, K⁺ va cheklangan Ca²⁺ harakatlari ion kanallari va nasoslar orqali boshqariladi.
- Ca²⁺ signali PKC yo‘liga ulanadi.
- ATP2A va ATP2B sitoplazmatik Ca²⁺ darajasini nazorat qilishda ishtirok etadi.
- Ortiqcha Ca²⁺ VDAC vositasidagi mitoxondrial shikastlanish yoki apoptoz bilan bog‘liq bo‘lishi mumkin.
- Glikoliz bilan bog‘liq komponentlar kamayadi.
- Yog‘ kislotalarining parchalanishi va TCA sikliga asetil-KoA yetkazib berilishi ortadi.
- Oksidlovchi fosforillanish ATF hosil bo‘lishini qo‘llab-quvvatlab, xivchin harakatini ta’minlaydi.
Rasmda ayrim bog‘lanishlar yonida “???” belgilari qo‘yilgan. Bu belgilar tadqiqotchilar tegishli kanal yoki mexanizmni hali to‘liq aniqlamaganliklarini ochiq ko‘rsatadi. Shu sababli rasm to‘liq isbotlangan yo‘l emas, balki mavjud ma’lumotlardan tuzilgan taxminiy boshqaruv tarmog‘idir.
Sun’iy urug‘lantirish uchun tavsiya etilgan sharoitlar
Mualliflar fiziologik tajribalarga asoslanib, sun’iy urug‘lantirishda quyidagi dastlabki sharoitlarni tavsiya qiladilar:
- 0,1–0,15% (ya’ni 1–1,5‰) NaCl, KCl yoki ularning aralashmalari,
- Umumiy Na⁺/K⁺ konsentratsiyasini 25 mM dan past darajada ushlab turish,
- Yuqori Ca²⁺ konsentratsiyasidan qochish,
- Ca²⁺ miqdorini imkon qadar 0,06 mM dan past saqlash,
- Kuchsiz ishqoriy (taxminan pH 8) muhitni qo‘llash.
Ushbu tavsiyalar sperma harakatchanligi o‘lchovlaridan kelib chiqqan. Tadqiqot:
- Tuxumhujayralarning urug‘lanish foizini,
- Embrionlarning yashovchanlik darajasini,
- Lichinkalar chiqish foizini,
- Lichinkalar salomatligini,
- Haqiqiy hovuz sharoitidagi suv tarkibi ta’sirini o‘lchamagan.
Shu sababli natijalar sun’iy urug‘lantirish protokolini ishlab chiqish uchun kuchli eksperimental boshlang‘ich nuqtadir; biroq bevosita tasdiqlangan ishlab chiqarish standarti hisoblanmaydi.
O‘tmish nuqtayi nazaridan ahamiyati
Baliq spermasi harakatchanligi bo‘yicha oldingi ishlar osmolallik, Na⁺, K⁺ va Ca²⁺ ta’sirini turli turlarda alohida-alohida ko‘rsatgan edi. Mandarin balig‘ida esa ushbu ekologik omillar bilan gen va oqsil tarmoqlarini bitta tadqiqotda birlashtirgan ma’lumotlar juda kam edi.
Ushbu tadqiqot fiziologik harakat o‘lchovini transkriptomika va proteomika bilan bog‘lab, tashqi muhit bilan hujayra ichi molekulyar javobi o‘rtasida yaxlit tushuncha hosil qildi.
Bugungi kun nuqtayi nazaridan ahamiyati
Tadqiqot sperma harakatchanligi suvning shunchaki “chuchuk” yoki “sho‘r” bo‘lishiga bog‘liq emasligini ko‘rsatadi. Bir xil osmolallikdagi saxoza, sun’iy dengiz tuzi, NaCl, KCl va CaCl2 eritmalari mutlaqo turlicha natijalar berishi mumkin.
Bu topilma sun’iy urug‘lantirish eritmalarida umumiy osmolallik bilan bir qatorda ion turi, ionlar nisbati, pH va o‘lchov vaqti birgalikda baholanishi kerakligini ko‘rsatadi.
Bundan tashqari, Ca²⁺ ning hujayra ichida zarur signal bo‘lishi bilan birga tashqi muhitda ko‘p bo‘lganda harakatni falajlashi ionlarni shunchaki “foydali” yoki “zararli” deb bir tomonlama tasniflab bo‘lmasligini ko‘rsatadi.
Kelajak nuqtayi nazaridan ahamiyati
Taklif etilgan molekulyar tarmoqni tasdiqlash uchun tadqiqotchilar ta’kidlaganidek, quyidagi usullarga ehtiyoj bor:
- Elektrofiziologiya orqali ion kanallari oqimlarini o‘lchash,
- Hujayra ichi Na⁺, K⁺ va Ca²⁺ miqdorini mikroskop ostida vizuallashtirish,
- Membrana potensiali o‘lchovlari,
- Vestern-blot orqali oqsil miqdorini tasdiqlash,
- Immunotsitokimyo orqali oqsillarning spermada joylashuvini aniqlash,
- In situ gibridizatsiya,
- ATF miqdori va mitoxondrial nafas olishni o‘lchash,
- Yog‘ kislotalari oksidlanishi va glikolitik oqim tahlillari,
- Ion kanallari ingibitorlari yoki gen funksiyasi tajribalari,
- Haqiqiy sun’iy urug‘lantirish va lichinka yetishtirish sinovlari.
Faollashuvdan 5, 10, 20, 30 va 60 soniya o‘tgach alohida omiks namunalarini olish ham harakatning boshlanishi bilan energiya tugashi paytidagi o‘zgarishlarni bir-biridan aniq ajratish imkonini bergan bo‘lardi.
Akvakulturaga ehtimoliy ta’siri
Mandarin balig‘ida sperma harakati taxminan 30 soniya ichida deyarli yo‘qolgani sababli inkubatoriya amaliyotlarida vaqtni to‘g‘ri taqsimlash hal qiluvchi ahamiyatga ega. Faollashtiruvchi eritmaning oldindan tayyorlanishi, sperma-tuxum aralashmasining kechiktirilmasligi va Ca²⁺ miqdorining nazorat qilinishi urug‘lantirish protokollarini standartlashtirishga yordam beradi.
Biroq tabiiy suv manbalarining qattiqligi, Mg²⁺ va boshqa ikki valentli ionlar, harorat, sperma zichligi, tuxumhujayra sifati va alohida erkak baliqlarning individual xususiyatlari ham natijaga ta’sir ko‘rsatishi mumkin. Tadqiqot Mg²⁺, Mn²⁺, Sr²⁺, Cd²⁺ va Ba²⁺ kabi boshqa ionlarni bevosita tekshirmagan.
Tadqiqotning kuchli tomonlari
- Fiziologik, transkriptomik va proteomik ma’lumotlar ayni bir tadqiqot doirasida birlashtirilgan.
- Fiziologik tajribalarda 24 ta erkak baliqdan olingan sperma ishlatilgan.
- Faqat dastlabki harakatchanligi 85% dan yuqori va ifloslanmagan namunalar tahlil qilingan.
- Osmolallik ta’siri ionlarsiz saxoza va ko‘p ionli sun’iy dengiz tuzida taqqoslangan.
- NaCl, KCl va CaCl2 alohida-alohida o‘rganilgan.
- Na⁺:K⁺ va Ca²⁺:Na⁺/K⁺ nisbatlari tizimli ravishda qiyoslangan.
- Harakatchanlik 10, 20 va 30-soniyalarda alohida qayd etilgan.
- RNA-seq ma’lumotlarining Q20 va Q30 sifat ko‘rsatkichlari yuqori bo‘lgan.
- Proteomik tahlil yuqori aniqlikdagi Orbitrap Astral va DIA yondashuvi bilan bajarilgan.
- Gen va oqsil natijalari KEGG, GO va PPI tahlillari bilan baholangan.
- Xom transkriptomik va proteomik ma’lumotlar ochiq xalqaro bazalarga yuklangan.
- Natijalar gipotezaviy model ekani va keyingi tasdiqlashlar talab etilishi matnda ochiq bildirilgan.
Tadqiqotning cheklovlari
- Tadqiqot ilmiy taqrizdan (peer review) o‘tmagan preprint hisoblanadi.
- Haqiqiy urug‘lanish, embrion rivojlanishi va lichinka chiqish muvaffaqiyati o‘lchanmagan.
- Ion tajribalari faqat sperma harakatchanligi bilan cheklangan; tuxumhujayra yoki sperma-tuxum o‘zaro ta’siri o‘rganilmagan.
- Omiks taqqoslash ionlarga xos alohida guruhlar bilan emas, faqat yangi sperma va 60 soniya chuchuk suvda faollashgan sperma o‘rtasida o‘tkazilgan.
- Shu sababli muayyan gen va oqsil o‘zgarishlari aynan Na⁺, K⁺ yoki Ca²⁺ tomonidan hosil qilingani bevosita isbotlanmagan.
- 60 soniyalik faollashgan sperma guruhi erta harakat bilan birga harakatning so‘nishi va ehtimoliy energiya tugashini ham qamrab olgan.
- Omiks o‘zgarishlari yangi transkripsiya, RNK barqarorligi, oqsil degradatsiyasi yoki tahliliy ajralish farqlarining qaysi biriga tegishli ekani aniqlashtirilmagan.
- Hujayra ichi ion konsentratsiyalari to‘g‘ridan-to‘g‘ri o‘lchanmagan.
- Ion kanallari oqimlari yoki membrana potensiali o‘lchanmagan.
- ATF miqdori, kislorod sarfi va mitoxondrial nafas olish o‘lchanmagan.
- Glikolizdan yog‘ kislotalari parchalanishiga o‘tish metabolik oqim tahlili bilan tasdiqlanmagan.
- Ajratib ko‘rsatilgan gen va oqsillar Vestern-blot, immunotsitokimyo yoki gen funksiyasini yo‘qotish tajribalari bilan tasdiqlanmagan.
- ISAS harakat toifalarining (A, B, C, D) aniq tezlik chegaralari PDF da berilmagan.
- pH tajribasi faqat 50 mOsm/kg NaCl muhitida o‘tkazilgan.
- Ca²⁺ uchun bildirilgan 0,06 mM chegarasi ma’lum tajriba nisbatlariga asoslanadi.
- Turli erkak baliqlar orasidagi genetik yoki fiziologik o‘zgaruvchanlik batafsil o‘rganilmagan.
- Sun’iy dengiz tuzi bir nechta ionni saqlagani bois alohida bitta ionning ta’sirini ifodalamaydi.
- 2D-rasm izohida o‘lchov vaqti 10 soniya deb berilgan bo‘lsa, matnda ayni taqqoslash 20 soniya deb yozilgan.
- PPI markaziy geni matnda bir joyda GYTB, rasmda esa CYTB deb ko‘rsatilgan.
- Oqsil chegarasi FC < 0,83 deb belgilangan bo‘lsa-da, PGM1 jadvalda 0,83 qiymati bilan kamaygan oqsillar orasida keltirilgan.
Tadqiqot nima demoqda?
- Mandarin balig‘i spermasi seminal plazmaga nisbatan ancha past osmolallikda faollashadi.
- 0–150 mOsm/kg oralig‘i erta faollashuvda yuqori harakatchanlikni ta’minlay oladi.
- 50 mOsm/kg turli tajribalar o‘rtasida qulay va barqaror faollashuv sharoitidir.
- Sperma harakatchanligi 30 soniya ichida deyarli to‘xtaydi.
- Past konsentratsiyali NaCl va KCl sperma harakatini qo‘llab-quvvatlaydi.
- NaCl va KCl nisbatlari harakat sifati toifalariga ta’sir ko‘rsatishi mumkin.
- CaCl2 qo‘shilishi sperma harakatchanligini kuchli tarzda susaytiradi.
- Taxminan 0,06 mM dan past Ca²⁺ darajalari ushbu tajriba sharoitida salbiy ta’sir ko‘rsatmaydi.
- pH 8 ko‘rsatkichi 50 mOsm/kg NaCl muhitida eng yaxshi harakat natijasini beradi.
- Sperma faollashuvidan so‘ng ion tashilishi va kalsiy signallari bilan bog‘liq gen va oqsillar miqdori o‘zgaradi.
- Glikoliz komponentlari kamayib, yog‘ kislotalari parchalanishi va oksidlovchi fosforillanish komponentlari ko‘payadi.
- Oltita gen va 35 ta oqsil asosiy ehtimoliy regulyatorlar sifatida ajralib turadi.
Tadqiqot nima demayapti?
- Tavsiya etilgan faollashtiruvchi eritma urug‘lanish darajasini aniq oshirishini isbotlamayapti.
- pH 8 yoki 50 mOsm/kg barcha baliqchilik xo‘jaliklari uchun mutlaq universal optimal qiymat ekanini da’vo qilmayapti.
- Ca²⁺ ning sperma hujayrasi uchun butunlay keraksiz ekanligini ko‘rsatmayapti.
- Har bir ion kanali yoki oqsilning to‘g‘ridan-to‘g‘ri sababiy rolini isbotlamayapti.
- VDAC ko‘payishi sperma apoptoziga olib kelishini qat’iy ko‘rsatmayapti.
- Glikolizdan yog‘ kislotalari parchalanishiga metabolik oqimni bevosita o‘lchamayapti.
- Omiks o‘zgarishlarining barchasi dastlabki harakatlanishning sababi ekanini ko‘rsatmayapti.
- Sun’iy urug‘lantirishda tuxum, embrion yoki lichinka xavfsizligi bo‘yicha to‘liq kafolat bermayapti.
- Tijoriy inkubatoriya samaradorligi yoki iqtisodiy foydani baholamayapti.
Tadqiqot usullari va natijalari
Eksperimental dizaynning texnik xulosasi
| Bosqich | Namuna yoki sharoit | Qo‘llanilgan usul | Asosiy maqsad |
|---|---|---|---|
| Ota-ona baliqlarni boshqarish | Yetuk erkak mandarin baliqlari | 23–28°C, erigan kislorod > 6 mg/l, tabiiy fotodavr | Sog‘lom sperma namunalarini olish |
| Sperma saralash | Dastlabki harakatchanlik > 85% | Qorin massaji, 4°C da saqlash | Ifloslanmagan va yuqori sifatli namunani tanlash |
| Fiziologik tahlil | 24 ta erkak baliq | ISAS v2.0 bilan 10, 20 va 30-soniyalarda harakat o‘lchovi | Osmolallik, ion va pH ta’sirlarini aniqlash |
| Osmolallik tajribasi | 0–300 mOsm/kg | Saxoza va sun’iy dengiz tuzi | Sof osmotik ta’sir bilan ko‘p ionli ta’sirni taqqoslash |
| Alohida ion tajribasi | NaCl, KCl va CaCl2 | Turli osmolallik darajalari | Ionlarning mustaqil ta’sirini baholash |
| Aralash ion tajribasi | NaCl:KCl va CaCl2:NaCl/KCl nisbatlari | 50 mOsm/kg, 10-soniya | Ion nisbatlari va Ca²⁺ chegarasini belgilash |
| pH tajribasi | pH 4–11 | 50 mOsm/kg NaCl | Harakat uchun mos pH ni baholash |
| Transkriptomika | FS va 60 soniya faollashgan AS namunalari | Illumina NovaSeq 6000 RNA-seq | Differensial ifodalangan genlarni aniqlash |
| Proteomika | Ayni FS va AS taqqoslash | UHPLC-Orbitrap Astral DIA LC-MS/MS | Miqdori o‘zgargan oqsillarni aniqlash |
| Bioinformatika | DEG va DEP ro‘yxatlari | KEGG, GO, STRING, Cytoscape | Ion va energiya boshqaruv tarmog‘ini tuzish |
Fiziologik natijalarning umumiy xulosasi
| Ko‘rsatkich | Asosiy natija | Texnik talqin |
|---|---|---|
| Seminal plazma osmolalligi | 367–380 mOsm/kg | Sperma yuqori osmolallikli seminal muhitda harakatsiz saqlanadi. |
| 0–150 mOsm/kg | 10-soniyada harakatchanlik asosan > 70% | Past osmolallik kuchli faollashuvni ta’minlaydi. |
| 50 mOsm/kg | Turli eritmalarda barqaror yuqori faollashuv | Keyingi ion va pH tajribalari uchun tanlandi. |
| 150–200 mOsm/kg | Pastroq boshlanish, ba’zi holatlarda 30-soniyada ko‘proq harakat saqlanishi | Boshlang‘ich kuch bilan qisqa muddatli harakatni saqlash o‘rtasida muvozanat bo‘lishi mumkin. |
| NaCl va KCl | Past konsentratsiyada yuqori harakatchanlik | Na⁺ va K⁺ ionli gomeostazga hissa qo‘shishi mumkin. |
| CaCl2 | 10 va 20-soniyalarda kuchli susayish | Tashqi muhitda yuqori Ca²⁺ harakatni to‘xtatadi. |
| CaCl2:NaCl/KCl ≤ 1:500 | < 0,06 mM Ca²⁺ darajasida salbiy ta’sir yo‘q | Ca²⁺ ta’sirini past darajada ushlab turish tavsiya etiladi. |
| NaCl:KCl nisbatlari | Umumiy harakat o‘xshash; ayrim nisbatlarda A toifasi ko‘paygan | Ion nisbati harakat sifatiga ta’sir qilishi mumkin. |
| pH 8 | Eng yuqori harakatchanlik va tezkor toifalar ulushi | Kuchsiz ishqoriy muhit eng qulay ko‘rinadi. |
Omiks ma’lumotlarining raqamli xulosasi
| Tahlil | Natija |
|---|---|
| Xom RNA-seq o‘qishlari | 264 432 676 |
| Toza RNA-seq o‘qishlari | 245 324 144 |
| Toza o‘qishlar ulushi | 92,77% |
| Identifikasiya qilingan jami genlar | 23 673 |
| Ma’lum genlar | 22 630 |
| Yangi deb tasniflangan genlar | 1 043 |
| Differensial ifodalangan genlar (DEG) | 855 |
| Ko‘paygan genlar | 625 |
| Kamaygan genlar | 230 |
| Identifikasiya qilingan peptidlar | 39 611 |
| Identifikasiya qilingan oqsillar | 4 037 |
| Miqdori o‘zgargan oqsillar (DEP) | 752 |
| Ko‘paygan oqsillar | 297 |
| Kamaygan oqsillar | 455 |
| Integrallashgan tarmoqdagi asosiy KEGG yo‘llari | 6 |
| Integrallashgan tarmoqdagi DEG lar | 64 |
| Integrallashgan tarmoqdagi DEP lar | 185 |
| Ajratib ko‘rsatilgan asosiy genlar | 6 |
| Ajratib ko‘rsatilgan asosiy oqsillar | 35 |
Ion signallari bilan bog‘liq asosiy oqsillar
| Oqsil | FC | O‘zgarish | Tadqiqotda bog‘langan funksiya |
|---|---|---|---|
| ATP1B | 1,42 va 1,59 | Ortish | Na⁺/K⁺-ATFaza, K⁺ muvozanati |
| CACNA1H | 2,50 | Ortish | Hujayra tashqarisidan Ca²⁺ kirishi |
| ATP2B | 1,40; 1,41; 1,45 | Ortish | Ca²⁺ ni hujayradan tashqariga chiqarish |
| ATP2A | 1,57; 1,57; 1,64 | Ortish | Ca²⁺ ni hujayra ichi depolariga tashish |
| ITPR1 | 0,20 | Kamayish | Hujayra ichi depolardan Ca²⁺ ajralishi |
| PRKCB | 1,60 | Ortish | PKC signal yo‘li |
| VDAC1 | 1,40 | Ortish | Mitoxondrial Ca²⁺ va hujayra o‘limi signallari |
| VDAC2 | 1,36 | Ortish | Mitoxondrial ion va apoptotik boshqaruv |
| VDAC3 | 1,38 | Ortish | Mitoxondrial ion boshqaruvi |
Energiya metabolizmi bilan bog‘liq asosiy oqsillar
| Metabolik bo‘lim | Oqsillar va FC qiymatlari | Umumiy o‘zgarish |
|---|---|---|
| Glikoliz | PGM1 0,83; PGM2 0,70; ALDOB 0,73; GAPDHS 0,72; PGK1 0,81; ENO1B 0,67; PKMA 0,51 va 0,81 | Kamayish |
| Yog‘ kislotalarining parchalanishi | ACSL 1,74; ACSL4 1,53; CPT1A 1,63 | Ortish |
| Oksidlovchi fosforillanish | ATPeF0F6 1,34; ATPeF0D 1,44; ATPeF0O 1,46; ATPeFG 1,64 va 1,76; ATPeF08 3,23; ATPeV0D 2,12; ATPeVS1 3,30; ATPeV0A 3,48; ATPeV0C 4,98 | Ortish |
Rasmlarning asosiy xabarlari
| Rasm | Ko‘rsatilgan tahlil | Asosiy xabar |
|---|---|---|
| 1-rasm | Ota-ona baliqlarni boshqarish, fiziologiya va ko‘p qirrali omiks rejasi | Tadqiqot tashqi muhit tajribalarini RNK va oqsil tahlillari bilan birlashtiradi. |
| 2-rasm | Osmolallik, NaCl, KCl, CaCl2 va ion aralashmalari | Past osmolallik va Na⁺/K⁺ harakatni qo‘llasa, Ca²⁺ uni to‘xtatadi. |
| 3-rasm | Transkriptom korrelyatsiyasi, vulqon grafigi, PPI, KEGG va GO | 855 ta gen o‘zgaradi; ion birikishi va oksidlovchi fosforillanish yetakchilik qiladi. |
| 4-rasm | Proteom PCA, vulqon grafigi, PPI, KEGG va GO | 752 ta oqsil o‘zgaradi; ion tashilishi va mitoxondrial ATF hosil bo‘lishi ajralib turadi. |
| 5-rasm | mRNK-yo‘l-oqsil tarmog‘i | Ion signallari va energiya metabolizmi juda ko‘p gen va oqsillar orqali tutashganini ko‘rsatadi. |
| 6-rasm | Gipotezaviy ion va energiya boshqaruv modeli | Nazoratli ion balansi, yog‘ kislotalari parchalanishi va oksidlovchi fosforillanish harakat bilan bog‘lanadi. |
Statistik baholash
Fiziologik tajribalar kamida uchta takroriylikda bajarildi. Guruhlar Styudent t-testi yoki bir tomonlama ANOVA bilan taqqoslandi, ANOVA dan so‘ng Dunkan ko‘p sonli taqqoslash testi qo‘llanildi. Ma’lumotlar o‘rtacha ± standart og‘ish shaklida berildi va P < 0,05 statistik ahamiyatlilik chegarasi deb olindi.
Transkriptomik tahlilda FDR < 0,05 va |log2FC| > 1; proteomik tahlilda P < 0,05 va FC > 1,20 yoki FC < 0,83 mezonlari qo‘llanildi.
Ma’lumotlarga kirish
Xom transkriptomik ma’lumotlar NCBI Sequence Read Archive (SRA) bazasiga PRJNA1472532 raqami bilan; proteomik ma’lumotlar esa Xitoy Milliy Genomik Ma’lumotlar Markazining OMIX bazasiga OMIX017197 raqami ostida joylashtirilgani bildirilgan.
Manba va uslubiyot eslatmasi
Ushbu sharh Qinghua Wang, Yuxin Zhang, Weiwei Zhang, Yingxin Wu, Jiajie Li, Yizheng Zhang, Lu Li, Zhiming Zhu va Zining Meng tomonidan tayyorlangan “Integrating physiology and multi-omics unveils sperm activation and movement in mandarin fish (Siniperca chuatsi)” nomli ilmiy ishga asoslanadi.
Tadqiqot mandarin balig‘i spermasida osmolallik va ionlarning harakatchanlikka ta’sirini baholovchi fiziologik tajribalar hamda transkriptomik va proteomik tahlillarni birlashtirgan eksperimental preprint maqoladir.
Matnda ochiqchasiga “This preprint research paper has not been peer reviewed” ogohlantirishi keltirilgan. Shu bois tadqiqot ilmiy taqrizdan o‘tmagan. PDF da jurnal qabuli, rasmiy nashr holati yoki maqolaga tegishli tasdiqlangan DOI mavjud emas.
Tadqiqot klinik sinov emas. U inson reproduksiyasi, bepushtlik yoki tibbiy davolash haqida ma’lumot bermaydi. Tajribalar tirik baliqlardan olingan sperma namunalari ustida laboratoriya sharoitida o‘tkazilgan.
Fiziologik natijalar sperma harakatchanligiga tayanadi. Tadqiqotda tuxumhujayra urug‘lanishi, embrion rivojlanishi, lichinka chiqishi yoki baliqchilik xo‘jaligidagi amaliy natijalar bevosita o‘lchanmagan.
Transkriptomik va proteomik tahlillarda yangi olingan sperma bilan chuchuk suvda 60 soniya faollashgan sperma taqqoslangan. Omiks guruhlari alohida NaCl, KCl yoki CaCl2 sharoitlaridan tuzilmagani sababli ma’lum molekulyar o‘zgarishlarning aynan bitta ion tomonidan yuzaga keltirilgani to‘g‘ridan-to‘g‘ri isbotlanmagan.
Tavsiya etilgan Na⁺, K⁺ va Ca²⁺ boshqaruv tarmog‘i gipotezaviy modeldir. Ion kanallari oqimlari, hujayra ichi ion konsentratsiyalari, membrana potensiali, ATF miqdori, mitoxondrial nafas olish va metabolik oqimlar bevosita o‘lchanmagan. Mualliflar elektrofiziologiya, immunotsitokimyo, in situ gibridizatsiya va Vestern-blot kabi usullar orqali qo‘shimcha tasdiqlashlar zarurligini ochiq tan olganlar.
Tadqiqot Guangdong S&T Dasturi, Janubiy Dengiz Fan va Muhandislik laboratoriyasi, Xitoy Qishloq Xo‘jaligi Tadqiqot Tizimi, Xitoy Milliy Tabiiy Fanlar Jamg‘armasi va BIO-KEY Germplazma Saqlash Dasturi tomonidan qo‘llab-quvvatlangan. Mualliflar manfaatlar to‘qnashuvi mavjud emasligini bildirganlar.
Ushbu material faqatgina yuklangan PDF dagi eksperimental uslublar, rasmlar, jadvallar, raqamli natijalar va mualliflar talqinlariga tayanib tayyorlangan. PDF da mavjud bo‘lmagan urug‘lanish kafolati, inkubatoriya muvaffaqiyati, klinik samara yoki qat’iy molekulyar mexanizm da’volari qo‘shilmagan.
Izoh qoldiring
E-pochta manzilingiz chop etilmaydi. Majburiy maydonlar * bilan belgilangan