

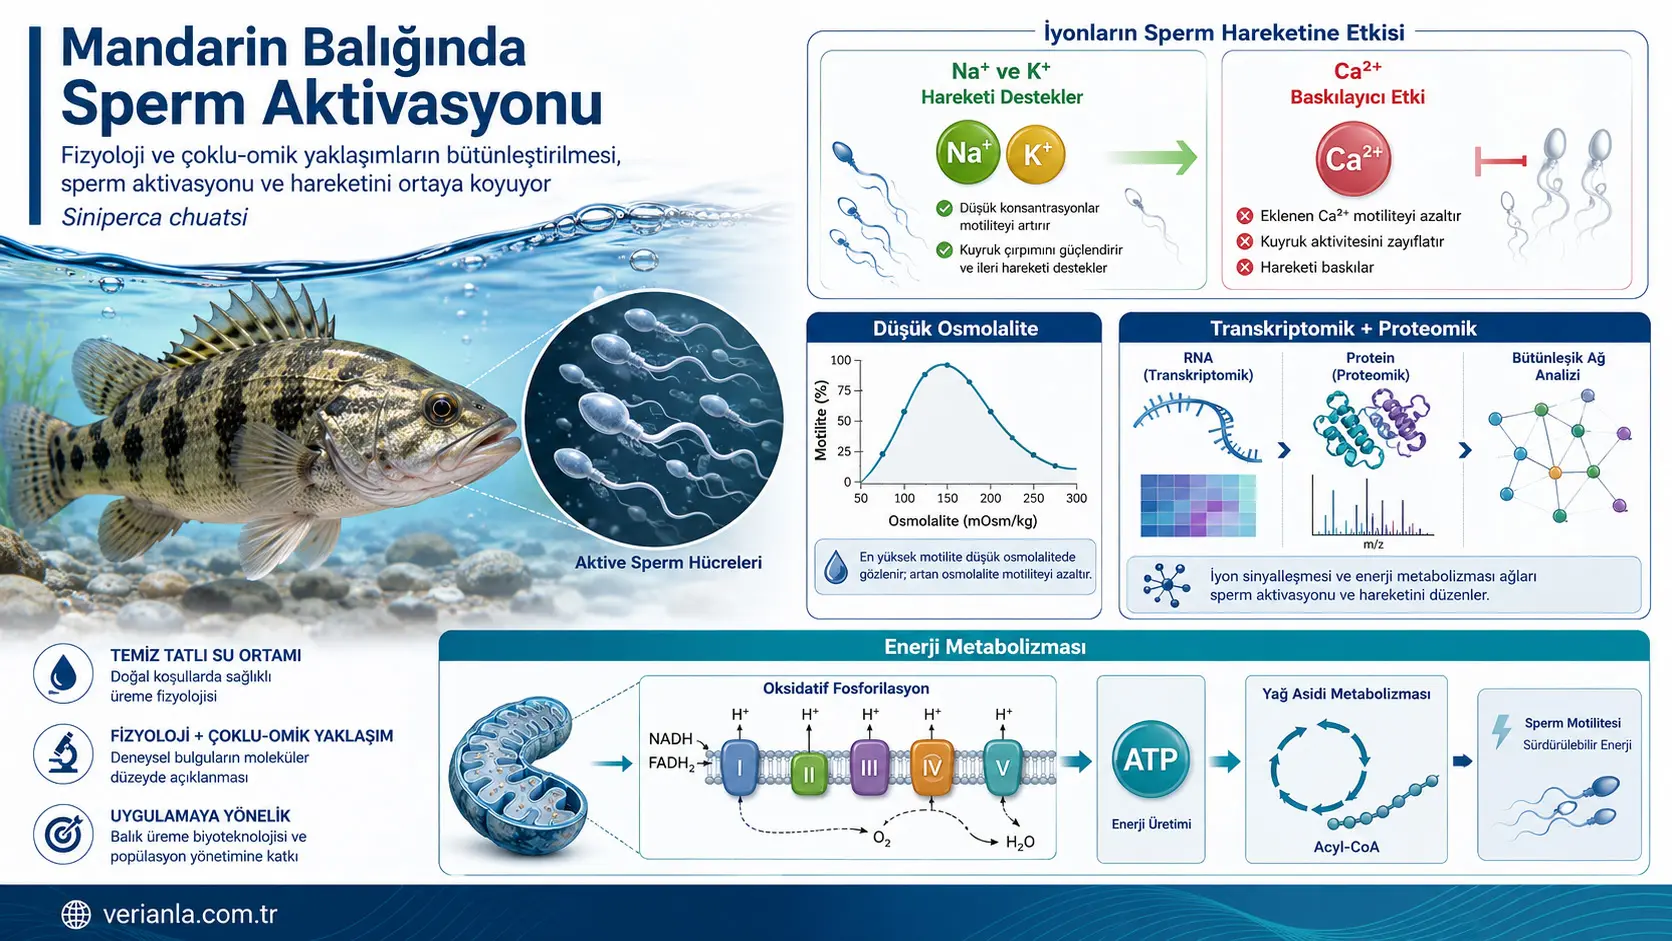
Tatlı su balıklarında sperm hücreleri erkek üreme sistemi içinde hareketsiz durumda tutulur ve suyla karşılaştıklarında çok kısa süren, yüksek enerji gerektiren bir hareket dönemine girer. Bu kısa zaman aralığında sperm hücresinin yumurtaya ulaşabilmesi; ortamın osmolalitesine, sodyum, potasyum ve kalsiyum gibi iyonların miktarına, hücre zarındaki iyon kanallarına ve kullanılabilir ATP rezervlerine bağlıdır.
Qinghua Wang ve çalışma arkadaşları, ekonomik açıdan önemli bir tatlı su türü olan mandarin balığında Siniperca chuatsi sperm aktivasyonunun fizyolojik ve moleküler temelini araştırmıştır. Çalışmada önce 24 erkek balıktan alınan sperm örnekleri farklı osmolalite, NaCl, KCl, CaCl2, iyon karışımı ve pH koşullarında aktive edilmiştir. Ardından taze sperm ile tatlı suda 60 saniye süreyle aktive edilmiş sperm örnekleri transkriptomik ve proteomik yöntemlerle karşılaştırılmıştır.
Filtrelenmiş tatlı suda sperm hareketliliği aktivasyondan 10 saniye sonra %89,10 ± 2,83 iken, 20. saniyede %55,62 ± 5,27’ye ve 30. saniyede %6,54 ± 3,25’e düşmüştür. Bu hızlı kayıp, mandarin balığı sperminin hareket için kullanabileceği enerji rezervinin ve etkin döllenme zamanının sınırlı olduğunu göstermektedir.
Fizyolojik deneylerde 0–150 mOsm/kg aralığında, özellikle aktivasyonun ilk 10 saniyesinde %70’in üzerinde hareketlilik gözlenmiştir. Bununla birlikte osmolalite yükseldikçe başlangıç hareketliliği azalmış ve araştırmacılar farklı deneyler arasında tutarlı yüksek performans sağladığı için 50 mOsm/kg değerini sonraki iyon ve pH karşılaştırmalarında uygun aktivasyon osmolalitesi olarak seçmiştir.
Düşük derişimli NaCl ve KCl çözeltileri sperm aktivasyonunu desteklemiştir. Yazarlar toplam iyon derişimi 25 mM’yi aşmayan Na⁺ ve K⁺ ortamlarının yüksek hareketlilik sağlayabildiğini bildirmiştir. NaCl ve KCl’nin farklı oranları toplam hareketlilikte büyük bir değişiklik yaratmamış, ancak 7:1, 1:5 ve 1:7 NaCl:KCl oranları hızlı hareket eden sperm sınıflarının oranını artırmıştır.
CaCl2 ise sperm hareketliliğini güçlü biçimde baskılamıştır. CaCl2:NaCl veya CaCl2:KCl oranı 1:500’ün altına indirildiğinde, yaklaşık 0,06 mM’den düşük Ca²⁺ düzeylerinin hareketlilik üzerindeki etkisi istatistiksel olarak anlamlı olmamıştır. Bu bulgu, yapay döllenme sırasında aktivasyon çözeltisinin yüksek miktarda Ca²⁺ içermemesinin önemli olabileceğini göstermektedir.
pH deneylerinde, 50 mOsm/kg NaCl çözeltisi içinde en yüksek hareketlilik pH 8’de gözlenmiştir. Ancak bu sonuç yalnızca belirli bir NaCl ve osmolalite koşulunda, aktivasyondan 10 saniye sonraki ölçüme dayanmaktadır; farklı su bileşimleri veya gerçek döllenme ortamları için doğrudan genellenmemelidir.
RNA dizileme analizinde aktive ve taze sperm arasında 855 farklı ifade edilen gen belirlenmiştir. Bunların 625’i artmış, 230’u azalmıştır. Proteomik analizde 4.037 protein tanımlanmış ve 752 proteinin bolluğunda anlamlı değişim saptanmıştır; 297 protein artarken 455 protein azalmıştır.
İki veri katmanının birlikte değerlendirilmesiyle Na⁺, K⁺ ve Ca²⁺ sinyallemesi ile enerji metabolizmasına bağlanan altı gen ve 35 protein öne çıkarılmıştır. grin3bb, cacna1c ve chrna7 gibi iyon kanalıyla ilişkili genlerin arttığı; ATP1B, ATP2A, ATP2B, CACNA1H ve PRKCB gibi iyon taşınması ve hücre içi kalsiyum dengesine katılan proteinlerin yükseldiği bildirilmiştir.
Enerji metabolizması sonuçları, sperm aktivasyonundan sonra glikolizle ilişkili gen ve proteinlerin azaldığını; yağ asidi yıkımı ile mitokondriyal oksidatif fosforilasyon bileşenlerinin arttığını göstermiştir. Araştırmacılar bu deseni, hareket hâlindeki sperm hücresinin enerji üretiminde glikolizden yağ asidi kullanımı ve mitokondriyal ATP üretimine doğru bir kayma yaşaması olarak yorumlamıştır.
Bununla birlikte moleküler sonuçlar henüz doğrudan mekanizma kanıtı değildir. Hücre içi Na⁺, K⁺ veya Ca²⁺ akışı ölçülmemiş; ATP üretimi, mitokondriyal solunum, zar potansiyeli ya da iyon kanalı etkinliği doğrudan test edilmemiştir. Ayrıca çalışma gerçek döllenme oranını, embriyo gelişimini veya yavru çıkış başarısını değerlendirmemiştir. Bu nedenle önerilen aktivasyon çözeltisi koşulları, yapay döllenme uygulamalarına yönelik deneysel bir temel sunmakta; tamamlanmış saha protokolü veya başarı garantisi oluşturmamaktadır.
Detaylı Açıklama
Tatlı su balığı spermi neden yalnızca kısa süre hareket edebiliyor?
Balık sperm hücreleri, erkek üreme sistemi içinde sürekli hareket hâlinde değildir. Seminal plazmanın iyonik ve ozmotik bileşimi spermi geçici olarak hareketsiz tutar. Sperm çevredeki suya bırakıldığında hücrenin dış ortamı bir anda değişir. Tatlı su türlerinde bu değişim çoğunlukla dış ortam osmolalitesinin seminal plazmaya göre belirgin biçimde düşmesiyle başlar.
Osmolalite, bir kilogram çözücü içinde bulunan ve ozmotik basınca katkı sağlayan toplam çözünmüş parçacık miktarını ifade eder. Yalnızca belirli bir tuzun derişimini değil, ortamda bulunan bütün iyon ve moleküllerin toplam ozmotik etkisini temsil eder.
Mandarin balığı seminal plazmasının osmolalitesi 367–380 mOsm/kg olarak ölçülmüştür. Buna karşılık sperm hücreleri 0–150 mOsm/kg gibi çok daha düşük osmolalitelerde güçlü biçimde aktive olmuştur. Bu büyük düşüş hücre zarında iyon hareketlerini, zar potansiyelini, hücre içi pH’yı ve kamçı hareketini başlatan sinyal süreçlerini tetikleyebilir.
Aktivasyon başladıktan sonra sperm kamçısındaki motor proteinler yüksek miktarda ATP tüketir. Tatlı su balıklarının sperm hücreleri, deniz balıklarının spermine kıyasla çoğunlukla daha sınırlı enerji rezervine sahiptir. Bu nedenle hareket hızlı başlar fakat kısa sürede azalır.
Çalışmanın filtrelenmiş tatlı su kontrolündeki zaman serisi bu sınırlılığı açıkça göstermektedir:
- Aktivasyondan 10 saniye sonra hareketlilik: %89,10 ± 2,83
- Aktivasyondan 20 saniye sonra hareketlilik: %55,62 ± 5,27
- Aktivasyondan 30 saniye sonra hareketlilik: %6,54 ± 3,25
Bu değerler, hareketin yalnızca yarım dakika içinde çok büyük ölçüde kaybolduğunu göstermektedir. Yapay döllenme açısından bu durum, spermin yumurtalarla doğru zamanda ve doğru çözelti içinde buluşturulmasının kritik olabileceği anlamına gelir.
Mandarin balığı neden araştırıldı?
Siniperca chuatsi, Doğu Asya tatlı su sistemlerinde yaşayan, ekonomik değeri yüksek yırtıcı bir balıktır. Çalışmada türün Çin, Kore ve Vietnam dâhil olmak üzere Doğu Asya’da dağıldığı; et kalitesi, besin değeri ve kaslar arası kemiklerin bulunmaması gibi özellikleri nedeniyle yetiştiricilikte önem kazandığı belirtilmektedir.
Çalışmada aktarılan Çin balıkçılık istatistiklerine göre türün yetiştiricilik üretimi 2023 yılında 470.000 tonu aşmıştır. Yapay üretim teknikleri 1980’lerin sonlarından itibaren gelişmiş olsa da sperm aktivasyonunu yöneten osmolalite, iyonlar ve moleküler enerji ağları yeterince açıklanmamıştır.
Araştırmanın amacı yalnızca hangi çözeltinin en yüksek hareketliliği verdiğini bulmak değildir. Çalışma üç düzeyi birleştirmektedir:
- Spermin farklı su ve iyon koşullarındaki gerçek hareketinin ölçülmesi,
- Aktivasyon sonrasında spermde bulunan RNA bolluklarının karşılaştırılması,
- Aktivasyon sonrasında protein bolluklarının ve biyolojik yolların değerlendirilmesi.
Bu bütünleştirici yaklaşım sayesinde dış ortam koşulları ile hücre içindeki iyon sinyallemesi ve enerji metabolizması arasında olası bir bağlantı kurulmaya çalışılmıştır.
Balıklar ve sperm örnekleri nasıl hazırlandı?
Deneyler, mandarin balığının üreme mevsimi olan Nisan-Haziran 2026 döneminde gerçekleştirilmiştir. Kullanılan erkek balıkların:
- Vücut uzunluğu 25 cm’den fazla,
- Vücut ağırlığı 500 gramdan fazla,
- Yaşı bir yıldan büyük olarak bildirilmiştir.
Balıklar 5 × 5 × 2 metre boyutlarında, havalandırmalı ve sürekli tatlı su akışı bulunan beton tankta tutulmuştur. Su sıcaklığı 23–28°C, çözünmüş oksijen düzeyi 6 mg/L’nin üzerinde ve ışık düzeni 13 saat aydınlık ile 11 saat karanlık olarak verilmiştir.
Balıklar beş dakika öjenol anestezisine alındıktan sonra sperm karın bölgesine yapılan hafif masajla toplanmıştır. Kan, idrar veya dışkıyla kirlenmiş örnekler kullanılmamıştır. Yalnızca ilk hareketlilik değeri %85’in üzerinde olan sperm örnekleri fizyolojik ve omik analizlere alınmıştır.
Deneysel işlemlerin Sun Yat-sen Üniversitesi Yaşam Bilimleri Fakültesi Kurumsal Hayvan Bakım ve Kullanım Komitesi tarafından onaylandığı belirtilmiştir. PDF’de etik kurul onay numarası verilmemiştir.
Sperm hareketliliği nasıl ölçüldü?
Fizyolojik analizlerde 24 erkek balıktan alınan sperm kullanılmıştır. Her ölçüm için 0,5 µL sperm, 50 µL aktivasyon çözeltisiyle karıştırılmıştır. Böylece sperm ile aktivasyon sıvısı arasında hacimsel olarak yaklaşık 1:100 oranı oluşturulmuştur.
Karışım hemen optik mikroskop ve renkli CCD kamera altında incelenmiş, hareketlilik ISAS v2.0 bilgisayar destekli semen analiz sistemiyle hesaplanmıştır. Ölçümler:
- 10. saniyede: erken aktivasyon,
- 20. saniyede: hareketin korunması,
- 30. saniyede: hareketin gerilemesi olarak değerlendirilmiştir.
ISAS sistemi sperm hücrelerini A, B, C ve D gibi hareket sınıflarına da ayırmıştır. Ancak bu sınıfların hız veya yörünge eşikleri PDF’de açıklanmamıştır. Bu nedenle A, B, C ve D sınıfları çalışmanın kendi analiz sistemi içindeki göreli hareketlilik kategorileri olarak okunmalıdır.
Osmolalite deneyi neyi ayırmayı amaçladı?
Osmolalite etkisi iki farklı çözeltiyle incelenmiştir:
- Sakkaroz çözeltisi: İyon eklemeden yalnızca ozmotik etkinin değerlendirilmesi için kullanılmıştır.
- Yapay deniz tuzu: Na⁺, Mg²⁺, Ca²⁺, K⁺ ve Sr²⁺ gibi birden fazla iyon içeren karşılaştırma ortamıdır.
Her iki çözelti 0 ile 300 mOsm/kg arasında, 50 mOsm/kg aralıklarla hazırlanmıştır. Böylece aynı osmolalitede iyon içermeyen bir ortam ile çoklu iyon içeren bir ortam karşılaştırılmıştır.
Aktivasyondan 10 saniye sonra hem sakkaroz hem de yapay deniz tuzu çözeltilerinde 0–150 mOsm/kg aralığında hareketlilik %70’in üzerinde kalmıştır. Özellikle 0–50 mOsm/kg aralığında başlangıç hareketliliği yüksektir.
Osmolalite 100 mOsm/kg’ın üzerine çıktıkça hareketlilik kademeli olarak azalmıştır. 250–300 mOsm/kg düzeylerinde başlangıç hareketliliği büyük ölçüde baskılanmıştır. Bu değerler seminal plazmanın 367–380 mOsm/kg osmolalitesine yaklaştıkça spermin hareketsiz durumunu daha fazla koruduğunu düşündürmektedir.
20. saniyede yapay deniz tuzunda 0–50 mOsm/kg, sakkarozda ise özellikle 50 mOsm/kg görece yüksek hareketliliği desteklemiştir. 30. saniyede bütün koşullarda hareketlilik büyük ölçüde azalmış, ancak 150–200 mOsm/kg civarında diğer yüksek osmolalite koşullarına kıyasla görece daha fazla hareket korunmuştur.
Burada önemli bir denge ortaya çıkmaktadır:
- Çok düşük osmolalite spermi hızlı ve güçlü biçimde aktive etmektedir.
- Daha yüksek osmolalite başlangıç hareketliliğini azaltmaktadır.
- Buna karşılık bazı orta-yüksek osmolaliteler hareketin çok kısa süre için biraz daha uzun korunmasına yardımcı olabilmektedir.
Bu durum, sperm hücresinin enerjisini ilk saniyelerde yüksek hızla kullanması ile hareketi daha düşük düzeyde sürdürmesi arasındaki değiş tokuşu düşündürmektedir. Ancak çalışma hücre içi ATP miktarını doğrudan ölçmemiştir.
Neden 50 mOsm/kg seçildi?
0–150 mOsm/kg aralığında yüksek hareketlilik görülmesine rağmen 50 mOsm/kg; yapay deniz tuzu, sakkaroz, NaCl ve KCl deneylerinin tamamında erken aktivasyon açısından tutarlı sonuç verdiği için birleşik iyon ve pH deneylerinde çalışma osmolalitesi olarak seçilmiştir.
Bu nedenle 50 mOsm/kg değeri, biyolojik olarak tek geçerli eşik anlamına gelmez. Araştırmacıların sonraki deneyleri standartlaştırmak için kullandığı, yüksek başlangıç hareketliliği sağlayan pratik bir deney koşuludur.
Na⁺ ve K⁺ sperm hareketini nasıl etkiledi?
NaCl ve KCl çözeltileri 0–300 mOsm/kg arasında ayrı ayrı test edilmiştir. Aktivasyondan 10 saniye sonra her iki tuzda da 0–50 mOsm/kg aralığında yüksek hareketlilik korunmuştur.
20. saniyede:
- NaCl, 0–100 mOsm/kg aralığında yüksek hareketliliği desteklemiştir.
- KCl, 0–50 mOsm/kg ile 150 mOsm/kg koşullarında görece yüksek hareketlilik sağlamıştır.
30. saniyede NaCl ve KCl ortamlarında hareketlilik %40’ın altına düşmüştür. Bununla birlikte 150–200 mOsm/kg civarında diğer yüksek osmolalite koşullarından daha fazla hareket korunmuştur.
Aynı osmolalite düzeyinde iki iyon arasında zaman ve derişime bağlı küçük farklılıklar görülmüştür:
- 250 mOsm/kg ve 10. saniyede NaCl, KCl’den daha yüksek hareketlilik sağlamıştır.
- 200 mOsm/kg ve 20. saniyede KCl, NaCl’den daha yüksek hareketlilik göstermiştir.
- 250 mOsm/kg ve 30. saniyede de KCl lehine bir fark bildirilmiştir.
- 50 mOsm/kg ve 10. saniyede NaCl, en hızlı hareket eden A sınıfı sperm oranını KCl’ye göre artırmıştır.
Sonuçlar, Na⁺ veya K⁺ iyonlarının tek başına mutlak bir “açma düğmesi” gibi çalışmadığını; etkilerinin osmolaliteye, zamana ve sperm hareket sınıfına bağlı olduğunu göstermektedir.
Düşük iyon derişimi neden yararlı olabilir?
Tatlı su balığı spermi, seminal plazmadan düşük osmolaliteli suya geçtiğinde hücre içi ve dışı iyon dengesi aniden değişir. Çalışmanın tartışmasına göre düşük dış K⁺ düzeyi hücreden K⁺ çıkışını ve zarın hiperpolarizasyonunu destekleyebilir. Bu elektriksel değişim, sperm aktivasyonunun ilk sinyallerinden biri olabilir.
Na⁺ ise sperm hücresindeki Na⁺/H⁺ değiştiricileri ve başka iyon taşıma sistemleri üzerinden hücre içi pH’nın düzenlenmesine katkıda bulunabilir. Hücre içinin daha alkali hâle gelmesi, kamçıdaki dinein motorlarının ATPaz etkinliğini ve kamçı vuruşlarını destekleyebilir.
K⁺ girişinin ve Na⁺/K⁺-ATPaz etkinliğinin de hareket başladıktan sonra zar potansiyelini ve hücre içi K⁺ dengesini korumaya yardımcı olabileceği düşünülmektedir.
Ancak bu çalışmada hücre içi Na⁺ veya K⁺ miktarı, Na⁺/H⁺ değiştirici etkinliği, zar potansiyeli ya da dinein ATPaz aktivitesi doğrudan ölçülmemiştir. Bu açıklamalar fizyolojik sonuçlarla ve omik verilerle uyumlu mekanistik yorumlardır.
NaCl ve KCl karışımları nasıl sonuç verdi?
50 mOsm/kg sabit osmolalitede NaCl:KCl molar oranları 7:1, 5:1, 3:1, 1:1, 1:3, 1:5 ve 1:7 olarak karşılaştırılmıştır. Aktivasyondan 10 saniye sonra toplam hareketlilik açısından oranlar arasında istatistiksel olarak anlamlı fark bulunmamıştır.
Bununla birlikte hareket sınıfları incelendiğinde 7:1, 1:5 ve 1:7 oranları A sınıfındaki hızlı sperm oranını artırmıştır. Bu sonuç, farklı Na⁺ ve K⁺ oranlarının toplam hareket eden sperm yüzdesini değiştirmeden hareket kalitesinin dağılımını etkileyebileceğini düşündürmektedir.
Oranların simetrik olmayan sonuç vermesi, tek ve basit bir optimum Na⁺:K⁺ oranı bulunmadığını da göstermektedir. Çalışma bu oranları gerçek yumurta döllenme denemelerinde sınamamıştır.
Ca²⁺ neden farklı davrandı?
Birçok hayvan türünde kontrollü hücre içi Ca²⁺ sinyali sperm hareketi için gereklidir. Buna karşılık dış ortamdaki fazla Ca²⁺ her zaman yararlı değildir. Mandarin balığı deneylerinde CaCl2 içeren aktivasyon çözeltileri hem 10. hem de 20. saniyede hareketliliği belirgin biçimde azaltmıştır.
CaCl2 çözeltisinin osmolalitesi yükseldikçe hareketlilik daha da düşmüş; 200–300 mOsm/kg aralığında özellikle 20. saniyede hareket neredeyse tamamen ortadan kalkmıştır.
Bu sonuç ilk bakışta, omik analizlerde bazı Ca²⁺ giriş kanalları ve kalsiyum sinyal proteinlerinin artmasıyla çelişkili görünebilir. Ancak dış ortamda yüksek Ca²⁺ bulunması ile hücre içindeki kısa süreli ve kontrollü Ca²⁺ sinyali aynı şey değildir.
Çalışmanın önerdiği modelde:
- Belirli kanallar üzerinden sınırlı Ca²⁺ girişi sinyal iletimini ve kamçı düzenlenmesini destekleyebilir.
- ATP2A ve ATP2B gibi pompalar sitoplazmadaki fazla Ca²⁺’yı hücre içi depolara veya hücre dışına taşıyarak dengeyi koruyabilir.
- Dış ortamdan aşırı Ca²⁺ girişi bu dengeyi bozabilir.
- Yüksek Ca²⁺, kamçı mikrotübüllerinin kayma hareketini baskılayabilir veya mitokondriyle ilişkili hücresel hasar yollarını etkinleştirebilir.
Bu model, “Ca²⁺ tamamen gereksizdir” sonucunu desteklemez. Daha doğru sonuç, mandarin balığı sperminde dış aktivasyon ortamına fazla Ca²⁺ eklenmesinin hareketliliği baskıladığı; hücre içindeki Ca²⁺ sinyalinin ise sıkı biçimde düzenlenmesi gerektiğidir.
Ca²⁺ için 1:500 oranı ne anlama geliyor?
CaCl2, NaCl veya KCl ile farklı molar oranlarda karıştırılmıştır. Kullanılan CaCl2:NaCl/KCl oranları 1:10 ile 1:1000 arasında değişmiştir.
Ca²⁺ payı azaldıkça sperm hareketliliği artmıştır. CaCl2:NaCl ortamlarında 1:200, 1:500 ve 1:1000 oranları; CaCl2:KCl ortamlarında ise özellikle 1:500 ve 1:1000 oranları yüksek hareketlilik sağlamıştır.
Yazarlar 1:500’den daha düşük Ca²⁺ payının, yaklaşık 0,06 mM’nin altındaki Ca²⁺ düzeylerinin hareketlilik üzerinde anlamlı olumsuz etki göstermediğini belirtmiştir.
Bu eşik deneyde kullanılan belirli osmolalite, tuz oranı ve ölçüm zamanına aittir. Bütün su kaynakları veya bütün döllenme sistemleri için değişmez bir biyolojik sınır olarak yorumlanmamalıdır.
pH neden önemliydi?
Sperm hareketini oluşturan iyon kanalları, enzimler ve kamçı motorları ortam pH’sından etkilenebilir. Çalışmada 50 mOsm/kg NaCl aktivasyon çözeltisi pH 4 ile 11 arasında test edilmiştir.
Aktivasyondan 10 saniye sonra en yüksek toplam hareketlilik pH 8’de görülmüştür. Hareket sınıfları açısından da pH 8:
- A ve B sınıfı hızlı hareket eden sperm oranını artırmış,
- A+B toplam hızlı hareket sınıfını yükseltmiş,
- D sınıfındaki zayıf hareket eden sperm oranını azaltmıştır.
Sonuç, hafif alkali ortamın mandarin balığı sperm aktivasyonunu destekleyebileceğini göstermektedir. Bununla birlikte pH deneyi yalnızca NaCl ve 50 mOsm/kg koşulunda yapılmıştır; KCl, farklı su sertliği veya gerçek yumurta ortamında aynı optimum değer doğrulanmamıştır.
Şekil 1: Çalışmanın teknik yol haritası
Şekil 1 araştırmayı üç ana blok hâlinde göstermektedir. İlk blokta erkek anaçların tutulması, sperm toplanması ve başlangıç hareketliliğinin %85’in üzerinde seçilmesi yer almaktadır.
İkinci blokta 24 erkekten alınan örneklerle yürütülen fizyolojik analizler bulunmaktadır. Bu bölüm:
- 0–300 mOsm/kg osmolalite deneylerini,
- Sakkaroz ve yapay deniz tuzu karşılaştırmasını,
- NaCl, KCl ve CaCl2 deneylerini,
- Birleşik iyon oranlarını,
- pH 4–11 karşılaştırmasını içermektedir.
Üçüncü blokta taze sperm ile aktive edilmiş sperm arasında transkriptomik ve proteomik karşılaştırma gösterilmektedir. RNA-seq, LC-MS/MS, farklı ifade analizi, KEGG ve GO zenginleştirme, protein etkileşim ağı ve bütünleşik mRNA-yolak-protein ağı bu blokta birleştirilmiştir.
Omik karşılaştırma nasıl yapıldı?
Omik analiz için taze sperm örnekleri FS, yani fresh sperm; filtrelenmiş tatlı suda 60 saniye aktive edilen örnekler ise AS, yani activated sperm grubu olarak tanımlanmıştır.
Şekiller ve veri tablolarında FS_1, FS_2, FS_3 ile AS_1, AS_2 ve AS_3 olmak üzere üçer analiz örneği gösterilmektedir. Yöntem bölümü örneklerin toplam altı erkek balıktan elde edildiğini belirtmektedir.
Aktive sperm 60 saniye tatlı suda bırakılmıştır. Bu süre erken aktivasyonu, hareketin korunmasını ve hareketin büyük ölçüde azalmasını birlikte kapsamaktadır. Fizyolojik deneyde 30. saniyede hareketliliğin çok düşük düzeye indiği dikkate alındığında AS grubu yalnızca en hızlı hareket eden sperm durumunu değil, aktivasyon sonrası enerji tüketimi ve hareket gerilemesini de temsil etmektedir.
Bu nedenle omik sonuçların “hareketi başlatan değişiklikler” ile “hareket sırasında veya sonrasında ortaya çıkan değişiklikleri” kesin olarak birbirinden ayırmadığı dikkate alınmalıdır.
Transkriptomik analiz nasıl yapıldı?
Toplam RNA TRIzol yöntemiyle çıkarılmış, RNA kalitesi Agilent 2100 Bioanalyzer ile değerlendirilmiş ve poliadenillenmiş mRNA oligo(dT) manyetik boncuklarla zenginleştirilmiştir. cDNA kütüphaneleri Illumina NovaSeq 6000 platformunda dizilenmiştir.
Ham okumalar fastp yazılımıyla temizlenmiş; adaptör, düşük kaliteli dizi ve poly-N bölgeleri çıkarılmıştır. Temiz okumalar S. chuatsi referans genomuna HISAT 2.2.1 ile hizalanmış, transkriptler StringTie 3.0.1 ile birleştirilmiştir.
Gen bolluğu RSEM kullanılarak FPKM cinsinden hesaplanmıştır. Farklı ifade edilen genler DESeq2 ile belirlenmiş ve iki eşik birlikte uygulanmıştır:
- Yanlış keşif oranı, FDR < 0,05
- |log2(kat değişimi)| > 1
Çalışmada formül açıkça yazılmamıştır. Bildirilen log2 kat değişimini anlamak için kullanılan temel ilişki açıklama amacıyla şöyle gösterilebilir:
\[ \log_2(\mathrm{FC})= \log_2\left( \frac{\text{aktive spermdeki göreli bolluk}} {\text{taze spermdeki göreli bolluk}} \right) \]
Burada FC, fold change yani kat değişimidir. Pozitif log2FC değeri aktive spermde artışı, negatif değer ise azalışı ifade eder. Bu formül çalışmanın sonuçlarını değiştiren yeni bir model değil, kullanılan ölçütün anlamını açıklayan temel ilişkidir.
RNA-seq verilerinin kalitesi nasıldı?
Altı örnekten toplam 264.432.676 ham okuma elde edilmiştir. Filtreleme sonrasında 245.324.144 temiz okuma kalmış ve ham okumaların %92,77’si analizde kullanılabilmiştir.
| RNA-seq kalite ölçütü | Bildirilen sonuç |
|---|---|
| Toplam ham okuma | 264.432.676 |
| Toplam temiz okuma | 245.324.144 |
| Temiz okuma oranı | %92,77 |
| Örnek başına temiz baz miktarı | 6,02–6,32 Gbp |
| GC içeriği | %50,23–51,41 |
| Q20 | %97’nin üzerinde |
| Q30 | %92’nin üzerinde |
| Toplam genom hizalanma oranı | %66,97–78,92 |
| Benzersiz hizalanma oranı | %56,88–70,95 |
Transkript birleştirme sonucunda 22.630’u bilinen, 1.043’ü yeni olarak sınıflandırılan toplam 23.673 gen belirlenmiştir.
Transkriptomda hangi değişiklikler bulundu?
Aktive sperm ile taze sperm arasında toplam 855 farklı ifade edilen gen belirlenmiştir:
- 625 genin göreli bolluğu artmıştır.
- 230 genin göreli bolluğu azalmıştır.
İyon kanallarıyla ilişkili cacna1c, grin3bb ve chrna7 genleri belirgin artış gösteren genler arasındadır.
Protein-protein etkileşim ağı analizinde şekil üzerinde CYTB, COX1 ve ATP6 mitokondriyal merkez düğümler olarak gösterilmiştir. Ana metinde CYTB adı bir yerde “GYTB” biçiminde yazılmıştır; bu, preprintte açıklığa kavuşturulması gereken adlandırma farklılıklarından biridir.
KEGG analizinde 25 anlamlı yol belirlenmiştir. Artan genler özellikle oksidatif fosforilasyonda; azalan genler ise PPAR sinyal yolunda zenginleşmiştir.
GO analizinde 60 anlamlı terim belirlenmiştir:
- 28 biyolojik süreç,
- 8 hücresel bileşen,
- 24 moleküler işlev terimi.
Artan genler iyon bağlama, ATP bağlama ve lipid bağlama işlevlerinde; azalan genler ise metabolik süreçlerin düzenlenmesi ve sinyalleme terimlerinde zenginleşmiştir.
Şekil 3 transkriptom sonuçlarını nasıl gösteriyor?
Şekil 3A’daki Pearson korelasyon matrisi, biyolojik örnekler arasındaki benzerliği göstermektedir. Örneklerin korelasyon değerleri genel olarak yüksek olmakla birlikte bazı taze ve aktive örnekler arasında da güçlü benzerlikler bulunmaktadır.
Şekil 3B’deki volkan grafiğinde kırmızı noktalar artan, mavi noktalar azalan genleri göstermektedir. grin3bb, chrna7 ve cacna1c yüksek artış ve istatistiksel anlamlılıkları nedeniyle özellikle işaretlenmiştir.
Şekil 3C’deki etkileşim ağı, mitokondriyal enerji üretimiyle ilişkili COX1, ATP6 ve CYTB gibi düğümlerin bağlantılı konumunu göstermektedir.
Şekil 3D ve 3E’deki KEGG ve GO kabarcık grafikleri, oksidatif fosforilasyon, motor proteinler, iyon bağlama, mikrotübül motor etkinliği ve hücresel hareket gibi başlıkların aktive spermdeki değişimlerle ilişkili olduğunu göstermektedir.
Proteomik analiz nasıl yapıldı?
Sperm proteinleri 6 M üre içeren tamponla çıkarılmış, disülfit bağları DTT ile indirgenmiş ve sisteinler iyodoasetamid ile alkile edilmiştir. Protein miktarı Bradford yöntemiyle ölçülmüş, örnekler tripsinle peptitlere parçalanmıştır.
Peptitler C18 kolonlarıyla temizlenmiş ve Vanquish Neo UHPLC sistemine bağlı Orbitrap Astral kütle spektrometresinde analiz edilmiştir. Ölçüm, veri bağımsız edinim yani DIA modunda gerçekleştirilmiştir.
Veriler DIA-NN ile S. chuatsi protein veri tabanına karşı analiz edilmiştir. Peptit ve protein tanımlamalarında Q-değeri 0,01 olarak uygulanmıştır.
Farklı bolluk gösteren proteinler için:
- P < 0,05,
- FC > 1,20 veya FC < 0,83 eşikleri kullanılmıştır.
Proteomik kat değişiminin temel anlamı açıklama amacıyla şu şekilde gösterilebilir:
\[ \mathrm{FC}= \frac{\text{aktive spermdeki protein bolluğu}} {\text{taze spermdeki protein bolluğu}} \]
FC değeri 1’den büyük olduğunda protein aktive spermde artmış; 1’den küçük olduğunda azalmıştır. Tabloda PGM1 için 0,83 değeri verilmesine rağmen protein azalan grupta gösterilmektedir. Bu durum eşik sınırındaki değerin yuvarlanmasından kaynaklanabilir; ancak PDF daha fazla ondalık değer sunmadığı için kesin neden doğrulanamamaktadır.
Proteomda hangi değişiklikler bulundu?
Proteomik analizde 39.611 peptitten 4.037 protein tanımlanmıştır. PCA analizi taze ve aktive sperm gruplarını birbirinden ayırmıştır.
Toplam 752 farklı bolluk gösteren protein belirlenmiştir:
- 297 protein artmıştır.
- 455 protein azalmıştır.
İyon kanalı ve iyon taşınmasıyla ilişkili ITPR1, ATP2A, ATP2B, VDAC1, VDAC2, VDAC3, CACNA1H, ATP1B ve PRKCB değişim gösteren proteinler arasındadır.
Protein etkileşim ağı analizinde altı merkez protein belirlenmiştir:
- NDUFB9
- NDUFS3
- NDUFV2
- DDOST
- RPN1
- TKTB
NDUF ailesine ait merkez proteinlerin mitokondriyal elektron taşıma zinciriyle bağlantılı olması, aktivasyon sonrasında enerji metabolizmasının önemini desteklemektedir.
Proteomik KEGG ve GO sonuçları
KEGG analizinde 62 anlamlı yol bulunmuştur. Artan proteinler:
- Oksidatif fosforilasyon,
- Genel metabolik yollar,
- cAMP sinyal yolu,
- Kalsiyum sinyal yolunda zenginleşmiştir.
Azalan proteinler ise:
- Glikoliz/glukoneogenez,
- Amino asit biyosentezi yollarında zenginleşmiştir.
GO analizinde 172 anlamlı terim belirlenmiştir:
- 112 biyolojik süreç,
- 10 hücresel bileşen,
- 50 moleküler işlev terimi.
Artan proteinler oksidatif fosforilasyon, ATP metabolik süreci, iyon taşınması, katyon taşınması ve proton taşınmasında zenginleşirken; azalan proteinler glikoliz ve karbonhidrat metabolizmasında yoğunlaşmıştır.
Şekil 4 proteom sonuçlarını nasıl gösteriyor?
Şekil 4A’daki PCA grafiğinde taze ve aktive sperm örnekleri farklı bölgelerde kümelenmektedir. Bu ayrışma, aktivasyon sonrasında protein profilinde toplu bir değişim bulunduğunu göstermektedir.
Şekil 4B’deki volkan grafiğinde ATP2A, ATP2B, CACNA1H, ATP1B, PRKCB, VDAC1, VDAC3 ve ITPR1 gibi iyon düzenleyici proteinler işaretlenmiştir.
Şekil 4C’deki etkileşim ağları; mitokondriyal elektron taşıma zinciri, protein işleme ve glikolitik metabolizmayla ilişkili farklı kümeler göstermektedir.
Şekil 4D’de oksidatif fosforilasyon, termogenez ve metabolik yollar; Şekil 4E’de ise elektron taşıma zinciri, ATP sentezi, hücresel solunum ve transmembran taşıyıcı etkinliği öne çıkmaktadır.
Transkriptom ve proteom nasıl birleştirildi?
Araştırmacılar altı temel KEGG yolu, 64 farklı ifade edilen gen ve 185 farklı bolluk gösteren proteinden oluşan bir mRNA-yolak-protein ağı kurmuştur.
Bu ağda öne çıkan altı yol şunlardır:
- cAMP sinyal yolu,
- Kalsiyum sinyal yolu,
- Oksidatif fosforilasyon,
- Yağ asidi yıkımı,
- Glikoliz/glukoneogenez,
- Genel metabolik yollar.
ATP2A, ATP1B ve ATP2B proteinleri hem cAMP hem de kalsiyum sinyallemesiyle bağlantılı bulunmuştur. pfkpa ve LOC122879941 ise glikoliz/glukoneogenez ve genel metabolik yollarla ilişkilendirilmiştir.
Şekil 5’te yeşil çokgenler biyolojik yolları, kırmızı kenarlı beyaz düğümler artan mRNA’ları, mavi kenarlı beyaz düğümler azalan mRNA’ları, turuncu düğümler artan proteinleri ve mavi dolu düğümler azalan proteinleri göstermektedir.
Ağın çok yoğun olması tek bir doğrusal mekanizma yerine birçok yolun aynı anda değiştiğini göstermektedir. Bununla birlikte ağ bağlantıları veri tabanı eşleşmeleri ve istatistiksel zenginleşmeye dayanmaktadır; bütün bağlantılar mandarin balığı sperminde deneysel olarak doğrulanmış fiziksel etkileşimler değildir.
Öne çıkarılan altı gen
| Gen | Log2FC | Değişim | Çalışmada ilişkilendirilen süreç |
|---|---|---|---|
| grin3bb | 5,33 | Artış | Hücre dışından Na⁺ ve Ca²⁺ girişiyle ilişkili NMDAR alt birimi |
| cacna1c | 1,37 | Artış | L-tipi voltaja bağımlı Ca²⁺ kanalı |
| chrna7 | 5,95 | Artış | Ca²⁺ geçirgenliği bulunan nikotinik asetilkolin reseptörü |
| pfkpa | −1,04 | Azalış | Glikoliz; 6-fosfofruktokinaz 1 |
| atp6 | 1,86 | Artış | Mitokondriyal oksidatif fosforilasyon |
| atp6v1f | 1,04 | Artış | V-tipi proton taşıyan ATPaz alt birimi |
Na⁺ ve K⁺ sinyallemesine ilişkin moleküler model
grin3bb geni, NMDA reseptör ailesinin bir alt birimini kodlamaktadır. Çalışmanın yorumuna göre bu reseptörler Na⁺ ve Ca²⁺ geçişine katkıda bulunabilir.
ATP1B proteinleri Na⁺/K⁺-ATPazın beta alt birimleridir. İki ATP1B protein kaydı aktive spermde sırasıyla 1,42 ve 1,59 kat artmıştır. Na⁺/K⁺-ATPaz, hücre zarındaki Na⁺ ve K⁺ gradyanlarının korunmasına katkıda bulunabilir.
Yazarların önerdiği modele göre düşük osmolaliteli ortamın başlattığı iyon çıkışı ve zar hiperpolarizasyonu, Na⁺ ve K⁺ taşıma sistemleriyle birlikte çalışarak hareketin başlamasını ve kısa süre korunmasını destekleyebilir.
Ancak çalışmada Na⁺/K⁺-ATPazın pompa akımı, iyon kanal iletkenliği veya hücre içi iyon derişimi doğrudan ölçülmemiştir.
Ca²⁺ sinyallemesine ilişkin moleküler model
Ca²⁺ düzenlenmesiyle ilişkili başlıca değişiklikler şunlardır:
- cacna1c ve chrna7 genlerinde artış,
- CACNA1H proteininde 2,50 kat artış,
- ATP2A proteinlerinde 1,57–1,64 kat artış,
- ATP2B proteinlerinde 1,40–1,45 kat artış,
- PRKCB proteininde 1,60 kat artış,
- ITPR1 proteininde 0,20 kata düşüş,
- VDAC1, VDAC2 ve VDAC3 proteinlerinde 1,36–1,40 kat artış.
CACNA1H, voltaja bağlı T-tipi Ca²⁺ kanalının bir bileşenidir. CHRNA7 yüksek Ca²⁺ geçirgenliğine sahip bir reseptör olarak hücre içine Ca²⁺ girişine katkıda bulunabilir.
Artan hücre içi Ca²⁺, PRKCB aracılığıyla PKC sinyal yolunu ve kamçıyla ilişkili proteinlerin fosforilasyonunu etkileyebilir.
ATP2A, Ca²⁺’yı endoplazmik/sarkoplazmik retikulum benzeri hücre içi depolara taşır. ATP2B ise plazma zarından hücre dışına Ca²⁺ pompalar. Bu iki protein grubunun artması, aktivasyon sırasında Ca²⁺ düzeyinin yalnızca yükseltilmediğini, aynı zamanda hızla sınırlandırılmaya çalışıldığını düşündürmektedir.
ITPR1’in azalması, hücre içi depolardan Ca²⁺ salımının baskılanmasıyla ilişkilendirilmiştir. VDAC proteinlerinin artması ise yazarlar tarafından aşırı Ca²⁺ ve mitokondriyal hücresel ölüm sinyalleri arasında olası bir bağlantı olarak değerlendirilmiştir.
Bu sonuçlar, düşük ve kontrollü hücre içi Ca²⁺ sinyalinin hareket düzenlenmesine katılabileceğini; dış ortamdan fazla Ca²⁺ yüklenmesinin ise hareketi baskılayabileceğini düşündüren çift yönlü bir model oluşturmaktadır.
Enerji metabolizmasında ne değişti?
Sperm kamçısının hareketi ATP gerektirir. Çalışmada aktivasyon sonrasında glikolizle ilişkili bir gen ve çok sayıda proteinin azaldığı bildirilmiştir:
- pfkpa
- PGM1
- PGM2
- ALDOB
- GAPDHS
- PGK1
- ENO1B
- PKMA izoformları
Buna karşılık yağ asidi metabolizmasıyla ilişkili ACSL, ACSL4 ve CPT1A proteinleri artmıştır. CPT1A, uzun zincirli yağ asitlerinin mitokondriye taşınarak beta oksidasyona girmesinde görev alan temel proteinlerden biridir.
Oksidatif fosforilasyona ait iki gen ve on ATPaz alt birimi proteini de artmıştır. Bildirilen protein kat değişimleri 1,34 ile 4,98 arasında değişmektedir.
Bu desen, araştırmacılar tarafından şu metabolik geçişle açıklanmıştır:
- Aktivasyon öncesinde glikojen ve glikoliz kullanımının daha belirgin olması,
- Aktivasyon sonrasında glikolizin azalması,
- Yağ asidi yıkımının artması,
- Mitokondriyal oksidatif fosforilasyonla ATP üretiminin güçlenmesi.
Çalışmanın mantığını açıklamak için ATP kullanımının temel biyokimyasal ilişkisi şu şekilde gösterilebilir:
\[ \mathrm{ATP}+\mathrm{H_2O} \rightarrow \mathrm{ADP}+\mathrm{P_i}+\text{kullanılabilir enerji} \]
Burada ATP hücrenin enerji taşıyan molekülünü, ADP daha düşük enerjili ürünü ve Pi inorganik fosfatı ifade eder. Kamçı motorları ATP hidrolizinden açığa çıkan enerjiyi mekanik harekete dönüştürür. Bu denklem PDF’de sonuç formülü olarak verilmemiş; enerji metabolizmasının temel anlamını açıklamak amacıyla eklenmiştir.
Glikolizin azalması hareketin azalması anlamına mı geliyor?
Hayır. Tek bir enerji yolunun azalması toplam ATP üretiminin mutlaka düştüğü anlamına gelmez. Çalışmada glikoliz bileşenleri azalırken yağ asidi yıkımı ve oksidatif fosforilasyon bileşenleri artmıştır.
Araştırmacılar bu durumu, enerjinin farklı bir metabolik kaynaktan sağlanmaya başlaması olarak yorumlamıştır. Bununla birlikte:
- ATP derişimi ölçülmemiştir.
- Oksijen tüketim hızı ölçülmemiştir.
- Yağ asidi oksidasyon hızı ölçülmemiştir.
- Glikolitik akış doğrudan ölçülmemiştir.
- Metabolit veya izotop izleme analizi yapılmamıştır.
Dolayısıyla “glikolizden yağ asidine kesin metabolik geçiş” doğrudan akış kanıtı değil, gen ve protein bolluğu örüntüsünden çıkarılan mekanistik bir yorumdur.
Şekil 6’nın önerdiği bütünleşik mekanizma
Şekil 6, çalışmanın fizyolojik ve omik sonuçlarını tek bir şemada birleştirmektedir. Şemanın üst bölümü Na⁺, K⁺ ve Ca²⁺ sinyallemesini; alt bölümü enerji metabolizmasını göstermektedir.
Önerilen süreç şu sırayla okunabilir:
- Düşük osmolalite sperm zarındaki iyon dengesini değiştirir.
- Na⁺, K⁺ ve sınırlı Ca²⁺ hareketleri iyon kanalları ve pompalar tarafından düzenlenir.
- Ca²⁺ sinyali PKC yoluna bağlanabilir.
- ATP2A ve ATP2B sitoplazmik Ca²⁺ düzeyinin kontrol edilmesine katkıda bulunur.
- Aşırı Ca²⁺, VDAC aracılı mitokondriyal hasar veya apoptozla ilişkili olabilir.
- Glikolizle ilişkili bileşenler azalır.
- Yağ asidi yıkımı ve TCA döngüsüne asetil-KoA sağlanması artabilir.
- Oksidatif fosforilasyon ATP üretimini destekleyerek kamçı hareketini sürdürür.
Şekilde bazı bağlantıların yanında “???” işaretleri bulunmaktadır. Bu işaretler, araştırmacıların ilgili kanal veya mekanizmayı henüz tanımlamadığını açıkça göstermektedir. Dolayısıyla şekil doğrulanmış eksiksiz bir yolak değil, mevcut verilerden oluşturulmuş varsayımsal bir düzenleyici ağdır.
Yapay döllenme açısından önerilen koşullar
Yazarlar fizyolojik deneylerden hareketle yapay döllenmede şu başlangıç koşullarını önermektedir:
- %0,1–0,15, yani 1–1,5‰ NaCl, KCl veya bunların karışımları,
- Toplam Na⁺/K⁺ derişiminin 25 mM’nin altında tutulması,
- Yüksek Ca²⁺ derişiminden kaçınılması,
- Ca²⁺ düzeyinin mümkünse 0,06 mM’nin altında tutulması,
- Hafif alkali, yaklaşık pH 8 ortamın değerlendirilmesi.
Bu öneriler sperm hareketliliği ölçümlerinden türetilmiştir. Çalışma:
- Yumurta döllenme yüzdesini,
- Embriyo yaşama oranını,
- Yavru çıkış oranını,
- Larva sağlığını,
- Saha koşullarındaki su bileşimi etkisini ölçmemiştir.
Bu nedenle sonuçlar yapay döllenme protokolünün geliştirilmesi için güçlü bir deneysel başlangıç noktasıdır; doğrudan doğrulanmış üretim standardı değildir.
Geçmiş açısından önemi
Balık sperm hareketliliği üzerine önceki çalışmalar osmolalite, Na⁺, K⁺ ve Ca²⁺ etkilerini farklı türlerde ayrı ayrı göstermiştir. Mandarin balığında ise bu çevresel değişkenlerle gen ve protein ağlarını aynı çalışma içinde birleştiren veriler sınırlıydı.
Bu araştırma fizyolojik hareket ölçümünü transkriptomik ve proteomikle birleştirerek, dış ortam ile hücre içi moleküler yanıt arasında bütünlüklü bir çerçeve oluşturmuştur.
Bugün açısından önemi
Çalışma, sperm hareketliliğinin yalnızca suyun “tatlı” veya “tuzlu” olmasına bağlı olmadığını göstermektedir. Aynı osmolalitedeki sakkaroz, yapay deniz tuzu, NaCl, KCl ve CaCl2 çözeltileri farklı sonuçlar oluşturabilmektedir.
Bu bulgu, yapay döllenme çözeltilerinde toplam osmolalitenin yanında iyon türü, iyon oranı, pH ve ölçüm zamanının birlikte değerlendirilmesi gerektiğini ortaya koymaktadır.
Ayrıca Ca²⁺’nın hem gerekli bir hücre içi sinyal olabilmesi hem de dış ortamda fazla bulunduğunda hareketi baskılaması, iyonların “yararlı” veya “zararlı” şeklinde tek yönlü sınıflandırılamayacağını göstermektedir.
Gelecek açısından önemi
Çalışmanın önerdiği moleküler ağın doğrulanması için araştırmacıların da belirttiği gibi şu yöntemlere ihtiyaç vardır:
- Elektrofizyoloji ile iyon kanalı akımlarının ölçülmesi,
- Hücre içi Na⁺, K⁺ ve Ca²⁺ görüntülemesi,
- Zar potansiyeli ölçümleri,
- Western blot ile protein bolluğu doğrulaması,
- İmmünositokimya ile proteinlerin spermdeki konumlarının belirlenmesi,
- In situ hibridizasyon,
- ATP ve mitokondriyal solunum ölçümleri,
- Yağ asidi oksidasyonu ve glikolitik akış analizleri,
- İyon kanalı inhibitörü veya gen işlevi deneyleri,
- Gerçek yapay döllenme ve yavru çıkış denemeleri.
Aktivasyondan 5, 10, 20, 30 ve 60 saniye sonra ayrı omik örneklerin alınması da, hareketin başlaması ile enerji tükenmesi sırasında meydana gelen değişikliklerin birbirinden ayrılmasını sağlayabilir.
Su ürünleri yetiştiriciliğine olası etkisi
Mandarin balığında sperm hareketliliği yaklaşık 30 saniye içinde büyük ölçüde kaybolduğu için kuluçkahane işlemlerinde zamanlama önemlidir. Aktivasyon çözeltisinin önceden hazırlanması, sperm-yumurta karışımının geciktirilmemesi ve Ca²⁺ içeriğinin kontrol edilmesi döllenme protokollerinin standardizasyonuna katkıda bulunabilir.
Bununla birlikte doğal su kaynaklarının sertliği, Mg²⁺ ve başka iki değerlikli iyonlar, sıcaklık, sperm yoğunluğu, yumurta kalitesi ve bireysel erkek farklılıkları da sonuçları etkileyebilir. Çalışma Mg²⁺, Mn²⁺, Sr²⁺, Cd²⁺ ve Ba²⁺ gibi diğer iyonları doğrudan test etmemiştir.
Çalışmanın güçlü yönleri
- Fizyolojik, transkriptomik ve proteomik veriler aynı araştırma çerçevesinde birleştirilmiştir.
- Fizyolojik deneylerde 24 erkek balıktan alınan sperm kullanılmıştır.
- Yalnızca başlangıç hareketliliği %85’in üzerinde ve kirlenmemiş örnekler değerlendirilmiştir.
- Osmolalite etkisi iyon içermeyen sakkaroz ile çoklu iyon içeren yapay deniz tuzunda karşılaştırılmıştır.
- NaCl, KCl ve CaCl2 ayrı ayrı incelenmiştir.
- Na⁺:K⁺ ve Ca²⁺:Na⁺/K⁺ oranları sistematik olarak karşılaştırılmıştır.
- Hareketlilik 10, 20 ve 30 saniyede ayrı ayrı ölçülmüştür.
- RNA-seq verilerinin Q20 ve Q30 kalite değerleri yüksektir.
- Proteomik analiz yüksek çözünürlüklü Orbitrap Astral ve DIA yaklaşımıyla gerçekleştirilmiştir.
- Gen ve protein sonuçları KEGG, GO ve PPI analizleriyle değerlendirilmiştir.
- Ham transkriptomik ve proteomik veriler açık veri tabanlarına aktarılmıştır.
- Sonuçların varsayımsal bir model olduğu ve ileri doğrulama gerektiği metinde açıkça belirtilmiştir.
Çalışmanın sınırlılıkları
- Çalışma hakem değerlendirmesinden geçmemiş bir preprinttir.
- Gerçek döllenme, embriyo gelişimi ve yavru çıkış başarısı ölçülmemiştir.
- İyon deneyleri sperm hareketliliğiyle sınırlıdır; yumurta veya sperm-yumurta etkileşimi incelenmemiştir.
- Omik karşılaştırma iyonlara özgü ayrı gruplarla değil, yalnızca taze sperm ile 60 saniye tatlı suda aktive edilen sperm arasında yapılmıştır.
- Bu nedenle belirli gen ve protein değişimlerinin yalnızca Na⁺, K⁺ veya Ca²⁺ tarafından oluşturulduğu doğrudan gösterilmemiştir.
- 60 saniyelik aktive sperm grubu, erken aktivasyonun yanında hareket gerilemesini ve olası enerji tükenmesini de içermektedir.
- Omik değişikliklerin yeni transkripsiyon, RNA kararlılığı, protein dönüşümü veya analiz edilebilirlik farkından hangisini temsil ettiği ayrılmamıştır.
- Hücre içi iyon derişimleri doğrudan ölçülmemiştir.
- İyon kanalı akımları veya zar potansiyeli ölçülmemiştir.
- ATP miktarı, oksijen tüketimi ve mitokondriyal solunum ölçülmemiştir.
- Glikolizden yağ asidi yıkımına geçiş metabolik akış analiziyle doğrulanmamıştır.
- Öne çıkarılan gen ve proteinler Western blot, immünositokimya veya işlev kaybı deneyleriyle doğrulanmamıştır.
- ISAS hareket sınıflarının A, B, C ve D eşikleri PDF’de verilmemiştir.
- pH deneyi yalnızca 50 mOsm/kg NaCl ortamında yapılmıştır.
- Ca²⁺ için bildirilen 0,06 mM sınırı belirli deney oranlarına dayanmaktadır.
- Farklı erkek balıklar arasındaki genetik veya fizyolojik değişkenlik ayrıntılı olarak incelenmemiştir.
- Yapay deniz tuzu birden fazla iyon içerdiği için tek bir iyonun etkisini temsil etmemektedir.
- Şekil 2D açıklamasında ölçüm zamanı 10 saniye olarak verilirken sonuç metninde aynı karşılaştırma 20 saniye olarak anlatılmıştır.
- PPI merkez geni ana metinde bir yerde GYTB, şekil üzerinde CYTB olarak gösterilmiştir.
- Protein eşik değeri FC < 0,83 olarak belirtilmesine rağmen PGM1 tabloda 0,83 değeriyle azalan proteinler arasında gösterilmiştir.
Çalışma ne söylüyor?
- Mandarin balığı spermi seminal plazmadan çok daha düşük osmolalitede aktive olmaktadır.
- 0–150 mOsm/kg aralığı erken aktivasyonda yüksek hareketliliği destekleyebilmektedir.
- 50 mOsm/kg farklı deneyler arasında uygun ve tutarlı bir aktivasyon koşuludur.
- Sperm hareketliliği 30 saniye içinde büyük ölçüde azalmaktadır.
- Düşük derişimli NaCl ve KCl sperm hareketini desteklemektedir.
- NaCl ve KCl oranları hareket kalitesi sınıflarını etkileyebilir.
- CaCl2 desteği sperm hareketliliğini baskılamaktadır.
- Yaklaşık 0,06 mM’nin altındaki Ca²⁺ düzeyleri çalışmanın koşullarında anlamlı olumsuz etki göstermemiştir.
- pH 8, 50 mOsm/kg NaCl ortamında en iyi hareketlilik değerini sağlamıştır.
- Sperm aktivasyonundan sonra iyon taşıma ve kalsiyum sinyaliyle ilişkili gen ve protein bollukları değişmektedir.
- Glikolizle ilişkili bileşenler azalırken yağ asidi yıkımı ve oksidatif fosforilasyon bileşenleri artmaktadır.
- Altı gen ve 35 protein olası temel düzenleyiciler olarak öne çıkmaktadır.
Çalışma ne söylemiyor?
- Önerilen aktivasyon çözeltisinin döllenme oranını kesin olarak artırdığını göstermemektedir.
- pH 8 veya 50 mOsm/kg değerinin bütün kuluçkahaneler için değişmez optimum olduğunu göstermemektedir.
- Ca²⁺’nın sperm hücresinde bütünüyle gereksiz olduğunu göstermemektedir.
- Her bir iyon kanalı veya proteinin doğrudan nedensel rolünü kanıtlamamaktadır.
- VDAC artışının sperm apoptozuna kesin olarak yol açtığını göstermemektedir.
- Glikolizden yağ asidi yıkımına metabolik akışı doğrudan ölçmemektedir.
- Omik değişikliklerin tamamının ilk hareketin nedeni olduğunu göstermemektedir.
- Yapay döllenmede yumurta, embriyo veya yavru güvenliği konusunda garanti sunmamaktadır.
- Ticari kuluçkahane başarısı veya ekonomik kazanç değerlendirmesi yapmamaktadır.
Çalışmanın Yöntemi ve Bulguları
Deneysel tasarımın teknik özeti
| Aşama | Örnek veya koşul | Uygulanan yöntem | Temel amaç |
|---|---|---|---|
| Anaç yönetimi | Olgun erkek mandarin balıkları | 23–28°C, çözünmüş oksijen > 6 mg/L, doğal fotoperiyot | Sağlıklı sperm örneği elde etmek |
| Sperm seçimi | İlk hareketlilik > %85 | Karın masajı, 4°C’de saklama | Kirlenmemiş ve yüksek kaliteli örnek kullanmak |
| Fizyolojik analiz | 24 erkek balık | ISAS v2.0 ile 10, 20 ve 30 saniyede hareket ölçümü | Osmolalite, iyon ve pH etkilerini belirlemek |
| Osmolalite deneyi | 0–300 mOsm/kg | Sakkaroz ve yapay deniz tuzu | Saf ozmotik etki ile çoklu iyon etkisini karşılaştırmak |
| Tek iyon deneyi | NaCl, KCl ve CaCl2 | Farklı osmolalite düzeyleri | İyonların ayrı etkilerini değerlendirmek |
| Birleşik iyon deneyi | NaCl:KCl ve CaCl2:NaCl/KCl oranları | 50 mOsm/kg, 10. saniye | İyon oranlarını ve Ca²⁺ eşiğini belirlemek |
| pH deneyi | pH 4–11 | 50 mOsm/kg NaCl | Hareket için uygun pH’yı değerlendirmek |
| Transkriptomik | FS ve 60 saniye aktive AS örnekleri | Illumina NovaSeq 6000 RNA-seq | Farklı ifade edilen genleri belirlemek |
| Proteomik | Aynı FS ve AS karşılaştırması | UHPLC-Orbitrap Astral DIA LC-MS/MS | Farklı bolluk gösteren proteinleri belirlemek |
| Biyoinformatik | DEG ve DEP listeleri | KEGG, GO, STRING, Cytoscape | İyon ve enerji düzenleme ağını kurmak |
Fizyolojik sonuçların toplu özeti
| Değişken | Temel sonuç | Teknik yorum |
|---|---|---|
| Seminal plazma osmolalitesi | 367–380 mOsm/kg | Sperm yüksek osmolaliteli seminal ortamda hareketsiz tutulmaktadır. |
| 0–150 mOsm/kg | 10. saniyede hareketlilik çoğunlukla > %70 | Düşük osmolalite güçlü aktivasyon sağlamaktadır. |
| 50 mOsm/kg | Farklı çözeltilerde tutarlı yüksek aktivasyon | Sonraki iyon ve pH deneyleri için seçilmiştir. |
| 150–200 mOsm/kg | Daha düşük başlangıç, bazı koşullarda 30. saniyede görece fazla hareket | Başlangıç gücü ile kısa süreli hareketin korunması arasında denge olabilir. |
| NaCl ve KCl | Düşük derişimde yüksek hareketlilik | Na⁺ ve K⁺ iyonik homeostaza katkıda bulunabilir. |
| CaCl2 | 10 ve 20. saniyede güçlü baskılama | Dış ortamda yüksek Ca²⁺ hareketi engellemektedir. |
| CaCl2:NaCl/KCl ≤ 1:500 | < 0,06 mM Ca²⁺ düzeyinde anlamlı olumsuz etki yok | Ca²⁺ maruziyetinin düşük tutulması önerilmektedir. |
| NaCl:KCl oranları | Toplam hareketlilik benzer; bazı oranlarda A sınıfı artmıştır | İyon oranı hareket kalitesini etkileyebilir. |
| pH 8 | En yüksek hareketlilik ve hızlı sınıf oranı | Hafif alkali ortam yararlı görünmektedir. |
Omik verilerin sayısal özeti
| Analiz | Sonuç |
|---|---|
| Ham RNA-seq okuması | 264.432.676 |
| Temiz RNA-seq okuması | 245.324.144 |
| Temiz okuma oranı | %92,77 |
| Tanımlanan toplam gen | 23.673 |
| Bilinen gen | 22.630 |
| Yeni olarak sınıflandırılan gen | 1.043 |
| Farklı ifade edilen gen | 855 |
| Artan gen | 625 |
| Azalan gen | 230 |
| Tanımlanan peptit | 39.611 |
| Tanımlanan protein | 4.037 |
| Farklı bolluk gösteren protein | 752 |
| Artan protein | 297 |
| Azalan protein | 455 |
| Bütünleşik ağdaki temel KEGG yolu | 6 |
| Bütünleşik ağdaki DEG | 64 |
| Bütünleşik ağdaki DEP | 185 |
| Öne çıkarılan temel gen | 6 |
| Öne çıkarılan temel protein | 35 |
İyon sinyallemesiyle ilişkili temel proteinler
| Protein | FC | Değişim | Çalışmada ilişkilendirilen işlev |
|---|---|---|---|
| ATP1B | 1,42 ve 1,59 | Artış | Na⁺/K⁺-ATPaz, K⁺ dengesi |
| CACNA1H | 2,50 | Artış | Hücre dışından Ca²⁺ girişi |
| ATP2B | 1,40; 1,41; 1,45 | Artış | Ca²⁺’nın hücre dışına pompalanması |
| ATP2A | 1,57; 1,57; 1,64 | Artış | Ca²⁺’nın hücre içi depolara taşınması |
| ITPR1 | 0,20 | Azalış | Hücre içi depolardan Ca²⁺ salımı |
| PRKCB | 1,60 | Artış | PKC sinyal yolu |
| VDAC1 | 1,40 | Artış | Mitokondriyal Ca²⁺ ve hücresel ölüm sinyalleri |
| VDAC2 | 1,36 | Artış | Mitokondriyal iyon ve apoptotik düzenleme |
| VDAC3 | 1,38 | Artış | Mitokondriyal iyon düzenlemesi |
Enerji metabolizmasıyla ilişkili temel proteinler
| Metabolik bölüm | Proteinler ve FC değerleri | Genel değişim |
|---|---|---|
| Glikoliz | PGM1 0,83; PGM2 0,70; ALDOB 0,73; GAPDHS 0,72; PGK1 0,81; ENO1B 0,67; PKMA 0,51 ve 0,81 | Azalış |
| Yağ asidi yıkımı | ACSL 1,74; ACSL4 1,53; CPT1A 1,63 | Artış |
| Oksidatif fosforilasyon | ATPeF0F6 1,34; ATPeF0D 1,44; ATPeF0O 1,46; ATPeFG 1,64 ve 1,76; ATPeF08 3,23; ATPeV0D 2,12; ATPeVS1 3,30; ATPeV0A 3,48; ATPeV0C 4,98 | Artış |
Şekillerin temel mesajları
| Şekil | Gösterilen analiz | Temel mesaj |
|---|---|---|
| Şekil 1 | Anaç yönetimi, fizyoloji ve çoklu omik yol haritası | Çalışma dış ortam deneylerini RNA ve protein analizleriyle birleştirmektedir. |
| Şekil 2 | Osmolalite, NaCl, KCl, CaCl2 ve iyon karışımları | Düşük osmolalite ile Na⁺/K⁺ hareketi desteklerken Ca²⁺ baskılamaktadır. |
| Şekil 3 | Transkriptom korelasyonu, volkan grafiği, PPI, KEGG ve GO | 855 gen değişmekte; iyon bağlama ve oksidatif fosforilasyon öne çıkmaktadır. |
| Şekil 4 | Proteom PCA, volkan grafiği, PPI, KEGG ve GO | 752 protein değişmekte; iyon taşıması ve mitokondriyal ATP üretimi öne çıkmaktadır. |
| Şekil 5 | mRNA-yolak-protein ağı | İyon sinyallemesi ile enerji metabolizmasının çok sayıda gen ve protein üzerinden bağlandığını göstermektedir. |
| Şekil 6 | Varsayımsal iyon ve enerji düzenleme modeli | Kontrollü iyon dengesi, yağ asidi yıkımı ve oksidatif fosforilasyon sperm hareketiyle ilişkilendirilmektedir. |
İstatistiksel değerlendirme
Fizyolojik deneyler en az üç tekrarla yürütülmüştür. Gruplar Student t-testi veya tek yönlü varyans analiziyle karşılaştırılmış, ANOVA sonrasında Duncan çoklu karşılaştırma testi uygulanmıştır. Veriler ortalama ± standart sapma biçiminde sunulmuş ve P < 0,05 anlamlılık sınırı kabul edilmiştir.
Transkriptomik analizde FDR < 0,05 ve |log2FC| > 1; proteomik analizde P < 0,05 ve FC > 1,20 veya FC < 0,83 eşikleri kullanılmıştır.
Veri erişimi
Ham transkriptomik verilerin NCBI Sequence Read Archive veri tabanına PRJNA1472532 erişim numarasıyla; proteomik verilerin ise Çin Ulusal Genomik Veri Merkezi OMIX veri tabanına OMIX017197 erişim numarasıyla yüklendiği belirtilmiştir.
Kaynak ve Yöntem Notu
Bu içerik, Qinghua Wang, Yuxin Zhang, Weiwei Zhang, Yingxin Wu, Jiajie Li, Yizheng Zhang, Lu Li, Zhiming Zhu ve Zining Meng tarafından hazırlanan “Integrating physiology and multi-omics unveils sperm activation and movement in mandarin fish (Siniperca chuatsi)” başlıklı çalışmaya dayanmaktadır.
Çalışma, mandarin balığı sperminde osmolalite ve iyonların hareketlilik üzerindeki etkilerini değerlendiren fizyolojik deneyler ile transkriptomik ve proteomik analizleri birleştiren deneysel bir preprint araştırma makalesidir.
Metinde açıkça “This preprint research paper has not been peer reviewed” uyarısı bulunmaktadır. Bu nedenle çalışma hakem değerlendirmesinden geçmemiştir. PDF’de dergi kabulü, yayımlanmış nihai sürüm veya bu çalışmaya ait doğrulanmış yayın DOI’si bulunmamaktadır.
Araştırma klinik çalışma değildir. İnsan üremesi, insan infertilitesi veya tıbbi tedavi hakkında veri sunmamaktadır. Deneyler canlı balıklardan alınan sperm örnekleri üzerinde laboratuvar ortamında yürütülmüştür.
Fizyolojik sonuçlar sperm hareketliliğine dayanmaktadır. Çalışmada yumurta döllenme oranı, embriyo gelişimi, yavru çıkışı veya kuluçkahane saha performansı doğrudan ölçülmemiştir.
Transkriptomik ve proteomik analizlerde taze sperm ile tatlı suda 60 saniye aktive edilmiş sperm karşılaştırılmıştır. Omik gruplar ayrı NaCl, KCl veya CaCl2 koşullarından oluşturulmadığı için belirli moleküler değişikliklerin tek tek iyonlar tarafından doğrudan meydana getirildiği gösterilmemiştir.
Önerilen Na⁺, K⁺ ve Ca²⁺ düzenleme ağı varsayımsal bir modeldir. İyon kanalı akımları, hücre içi iyon derişimleri, membran potansiyeli, ATP miktarı, mitokondriyal solunum ve metabolik akış doğrudan ölçülmemiştir. Yazarlar elektrofizyoloji, immünositokimya, in situ hibridizasyon ve Western blot gibi yöntemlerle ileri doğrulama gerektiğini açıkça belirtmiştir.
Çalışma Guangdong S&T Programme, Southern Marine Science and Engineering Guangdong Laboratory, Guangdong eyaleti bilim programları, China Agriculture Research System, National Natural Science Foundation of China ve BIO-KEY Germplasm Preservation Program tarafından desteklenmiştir. Yazarlar çıkar çatışması bulunmadığını bildirmiştir.
Bu Türkçe makale yalnızca yüklenen PDF’deki deney düzenekleri, şekiller, tablolar, sayısal sonuçlar ve yazarların yorumlarına dayanarak hazırlanmıştır. PDF’de bulunmayan döllenme başarısı, ticari kuluçkahane garantisi, klinik etki veya kesin moleküler mekanizma iddiası eklenmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir