


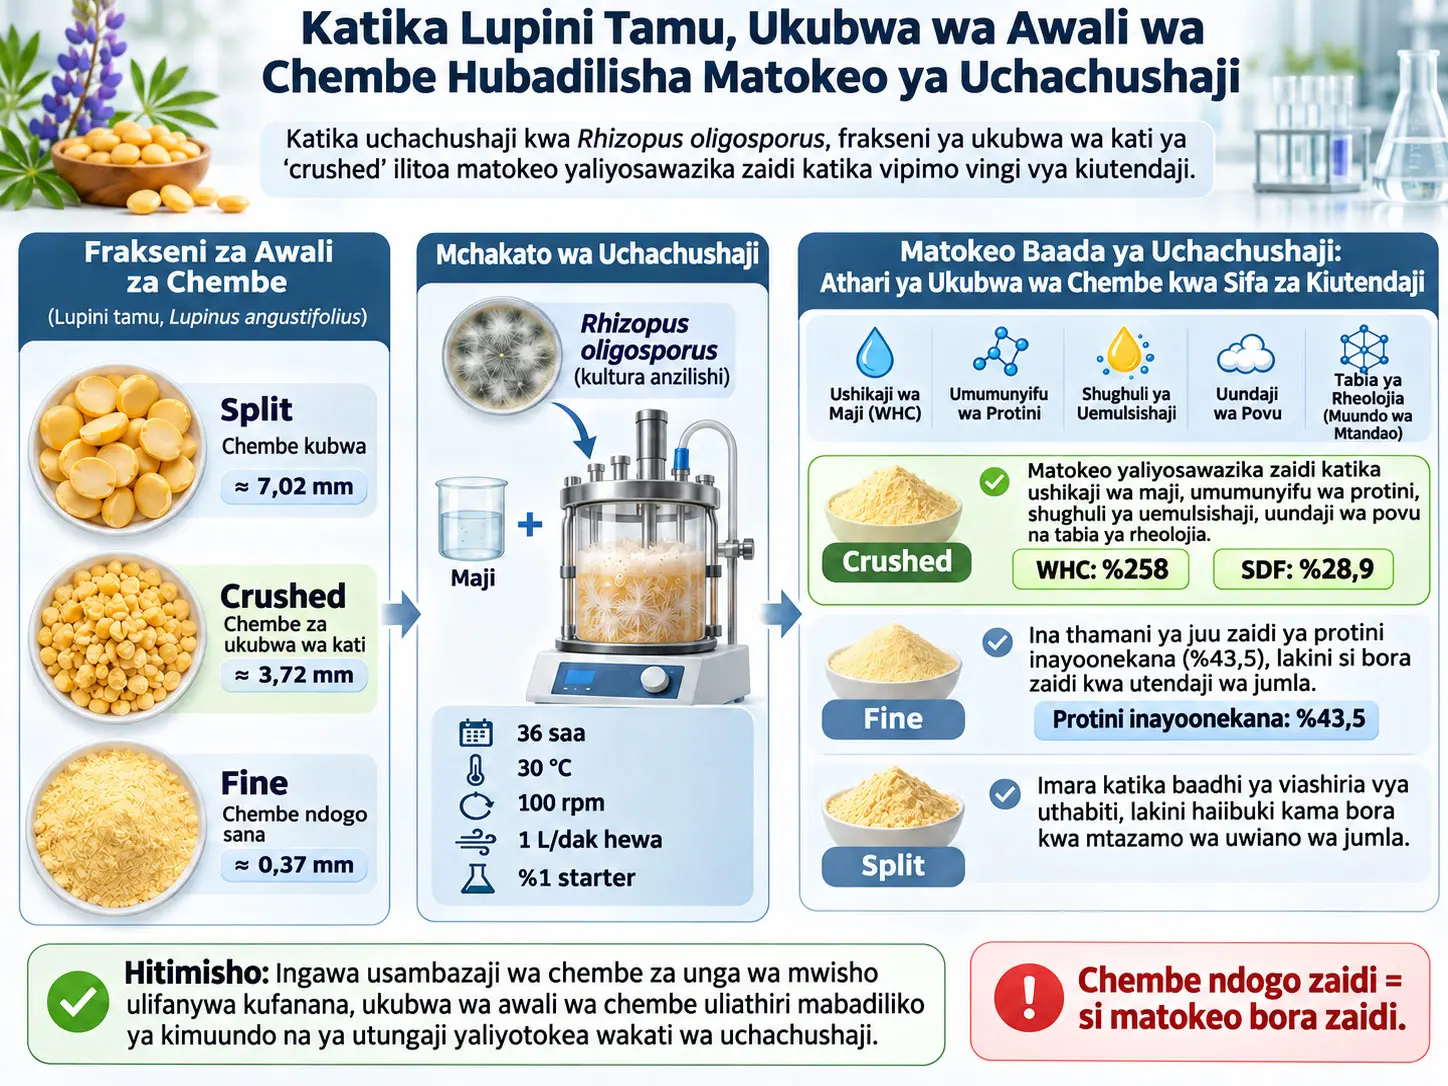
Rhizopus oligosporus unga wa lupini tamu uliochachushwa kwa Lupinus angustifolius ni kiungo cha chakula cha asili ya mimea kinachopatikana kwa kubadilisha ukubwa wa awali wa chembe za mbegu, kuzichachusha katika hali zinazodhibitiwa, kisha kukausha na kusaga. Utafiti ulichunguza iwapo kugawa lupini kabla ya uchachushaji katika ukubwa tatu tofauti wa kimwili—split, crushed na fine—kunabadilisha muundo wa kemikali, muundo wa protini, uwezo wa kushikilia maji na mafuta, uundaji wa jeli, uemulsishaji, uundaji wa povu, umumunyifu na tabia ya reolojia ya unga unaopatikana chini ya hali zilezile za uchachushaji.
Vipenyo vya wastani vya awali vya Feret vilipimwa kuwa 7,02 ± 1,60 mm kwa frakseni ya split, 3,72 ± 0,56 mm kwa crushed na 0,37 ± 0,25 mm kwa fine. Makundi yote matatu yalichachushwa kwa njia ileile kwa 36 saa, 30 °C, 100 rpm na uingizaji hewa wa 1 L/dak, kwa kutumia starter ya kibiashara ya tempeh ya %1. Baada ya uchachushaji, bidhaa zote zilikaushwa kwa kugandisha, zikasagwa na kupitishwa kwenye ungo wa 1 mm. Kutokana na usanifishaji huu, hakukuwa tena na tofauti kubwa kati ya usambazaji wa chembe wa D10, D50 na D90 wa unga wa mwisho. Kwa hiyo, tofauti za kiutendaji zilizofuata zinafikiriwa kutotokana tu na ukubwa wa chembe wa unga wa mwisho, bali pia na mabadiliko ya muundo na ya molekuli yaliyotokea katika miundo tofauti ya kimwili ya awali wakati wa uchachushaji.
Uchachushaji ulipunguza maudhui ya mafuta katika makundi yote ya chembe na kubadilisha usambazaji wa nyuzinyuzi za lishe. Ingawa kiwango cha juu zaidi cha protini kinachoonekana, %43,5, kilionekana katika frakseni ya fine iliyochachushwa, utendaji wa jumla wa kiutendaji ulio bora zaidi haukupatikana katika fine. Frakseni ya crushed yenye ukubwa wa kati ilijitokeza katika vipimo vingi kwa uwezo wa kushikilia maji wa %258, shughuli ya juu zaidi ya uemulsishaji na uwezo wa kutengeneza povu katika pH 2–8, umumunyifu wa protini wa juu zaidi na tabia thabiti zaidi ya mtandao wa viskoelastiki. Frakseni ya crushed pia ilitofautiana wazi na makundi mengine kwa maudhui ya nyuzinyuzi za lishe zinazoyeyuka ya %28,9.
Matokeo yanaonyesha kwamba athari ya ukubwa wa chembe si ya mstari. Chembe kubwa sana zinaweza kupunguza ufikiaji wa vijidudu na vimeng'enya kwenye substrati, ilhali chembe nyembamba kupita kiasi pia hazikuhakikisha utendaji bora. Waandishi wanajadili kwamba hali hii inaweza kuhusiana na ufungashaji mnene wa chembe ndogo, kupungua kwa ujazo wa vinyweleo na vizuizi vinavyowezekana vya uhamishaji wa oksijeni; hata hivyo, uhamishaji wa oksijeni, biomasi ya kuvu, shughuli za vimeng'enya au kinetiki ya kina ya matumizi ya substrati havikupimwa moja kwa moja katika utafiti. Kwa hiyo, mekanizimu hizi si ushahidi wa moja kwa moja wa majaribio, bali ni maelezo ya matokeo yaliyopatikana yanayotegemea fasihi.
Hitimisho muhimu zaidi kwa matumizi ni kwamba sheria rahisi ya “usagaji mwembamba zaidi hutoa uchachushaji bora zaidi” haijaungwa mkono. Ingawa frakseni ya crushed kwa ujumla ilitoa matokeo yenye uwiano bora zaidi, hakuna frakseni moja iliyokuwa bora katika sifa zote za kiutendaji. Kwa mfano, shughuli ya uemulsishaji na uwezo wa kutengeneza povu vilikuwa vya juu katika crushed, lakini frakseni ya split ilionyesha thamani za juu zaidi katika uthabiti wa emulsheni na povu. Kwa hiyo, ukubwa unaofaa wa chembe za awali unapaswa kuchaguliwa kulingana na sifa inayohitajika katika chakula kitakachozalishwa.
Tatizo kuu la utafiti
Lupini ni jamii ya mikunde inayothaminiwa katika uzalishaji wa vyakula vya asili ya mimea kwa sababu ya maudhui yake ya juu ya protini. Hata hivyo, kuwa na protini nyingi pekee hakumaanishi kwamba malighafi ya mimea itakuwa kiungo kinachoumulisha vizuri, kinachotengeneza povu vizuri, kinachounda jeli imara au kinachoshikilia maji vizuri katika uzalishaji wa chakula. Nyuzinyuzi, lipidi, polisakaridi, wanga na vipengele vingine visivyo protini pia huathiri tabia ya kiteknolojia.
Uchachushaji unaweza kubadilisha molekuli kubwa na miundo ya seli katika matriksi ya mimea. R. oligosporus ni kuvu yenye nyuzi inayoliwa inayohusishwa na uzalishaji wa jadi wa tempeh. Katika utafiti huu, badala ya izolati safi ya maabara, ilitumika starter ya tempeh ya kibiashara ya kiwango cha chakula iitwayo RAPRIMA; chanzo kinasema kwamba starter hii ina R. oligosporus kama kijidudu kikuu cha uchachushaji.
Swali kuu la utafiti si tu “je, uchachushaji hubadilisha lupini?” Swali halisi ni ukubwa wa kimwili wa chembe ya awali ni muhimu kwa kiasi gani wakati lupini ileile inachachushwa katika hali zilezile.
Kwa Nini Ukubwa wa Chembe ni Muhimu Katika Uchachushaji?
Ukubwa wa awali wa chembe ni kigezo cha mchakato kinachoweza kuathiri eneo ambalo kijidudu kinaweza kufikia uso wa substrati, usambazaji wa unyevu, umbali ambao vimeng’enya vinapaswa kusafiri kufikia tishu ya mmea na muundo wa nafasi tupu katika matriksi ya uchachushaji. Hata hivyo, utafiti huu haukuonyesha kwamba utendaji huongezeka mfululizo kadiri chembe zinavyopungua; frakseni ya crushed yenye ukubwa wa kati ilitoa uwiano unaofaa zaidi katika vipimo vingi vya kiutendaji.
Frakseni tatu za awali ziliundwaje katika jaribio?
Mbegu za split L. angustifolius za kiwango cha chakula, zilizoondolewa maganda, zilipatikana kutoka Lupin Co. nchini Australia kwa jina la kibiashara LupinQ. Chanzo kinatoa unyevu wa awali wa bidhaa kuwa %9–10.
Makundi matatu ya kimwili ya awali yalitumika:
- Split: lupini iliyogawanywa na kuondolewa maganda iliyotoka kwa msambazaji.
- Crushed: frakseni iliyopitishwa kwenye ungo wa 2,0 mm baada ya usagaji mkavu.
- Fine: frakseni nyembamba zaidi iliyopitishwa kwenye ungo wa 1,0 mm baada ya usagaji mkavu.
Ukubwa wa tundu la ungo na kipenyo halisi cha Feret cha chembe si kipimo kilekile. Kwa kuwa chembe zina maumbo yasiyo ya kawaida, watafiti walitumia kipenyo cha Feret katika uchanganuzi wa picha. Kipenyo cha Feret ni umbali mrefu zaidi wa kalipa kati ya nukta mbili kwenye mpaka wa chembe. Kipenyo cha chini cha Feret kinawakilisha ukubwa mfupi zaidi wa kalipa wa chembe.
Hali za uchachushaji
Gramu 420 zilichukuliwa kutoka kila frakseni ya awali, zikachanganywa na 840 mL za maji na kuchemshwa kwa dakika 20. Substrati zilizopikwa zilichujwa, zikapozwa kwa hewa kwa dakika 15 katika joto la chumba la 20–22 °C, na uzito wa massa iliyopikwa ukarekodiwa.
Starter ya kibiashara ya tempeh ya RAPRIMA ya %1 kwa uzito iliongezwa kwenye substrati. Lupini iliyotiwa inokulamu pia ilichanganywa na 1 L ya maji ya MilliQ na kuchachushwa katika bioreakta inayodhibitiwa ya BioFlo/Celligen 115 kwa saa 36 katika 30 °C, 100 rpm na mtiririko wa hewa wa 1 L/dak. Kiwango kilekile cha starter na hali zilezile za mchakato zilitumika kwa makundi yote matatu ya chembe za awali.
Maandishi ya chanzo wakati mwingine yanajadili utafiti katika muktadha wa fasihi ya uchachushaji wa hali ngumu. Hata hivyo, mpangilio halisi wa majaribio ulitumia bioreakta inayodhibitiwa ambayo iliongezewa kiasi kikubwa cha maji, kuchanganywa na kuingiziwa hewa. Kwa hiyo, mchakato hapa unaelezwa kupitia vigezo halisi vya majaribio vilivyotolewa katika chanzo; haidhaniwi kando kwamba ulikuwa mpangilio wa kawaida wa uchachushaji wa hali ngumu.
Ukubwa wa chembe mwanzoni na mwisho wa uchachushaji
| Hatua | Frakseni | Kipenyo cha Feret, dF (mm) | Kipenyo cha chini cha Feret (mm) |
|---|---|---|---|
| Mwanzoni | Split | 7,02 ± 1,60 | 6,21 ± 1,04 |
| Mwanzoni | Crushed | 3,72 ± 0,56 | 2,92 ± 0,92 |
| Mwanzoni | Fine | 0,37 ± 0,25 | 0,15 ± 0,07 |
| Baada ya 36 saa | Split | 8,50 ± 1,72 | 7,20 ± 2,84 |
| Baada ya 36 saa | Crushed | 5,10 ± 1,21 | 4,41 ± 1,02 |
| Baada ya 36 saa | Fine | 0,61 ± 0,09 | 0,27 ± 0,07 |
Sehemu ya matokeo ya chanzo inasema kwamba ingawa vipenyo vya wastani na vya chini vya Feret viliongezeka kwa thamani za namba, tofauti kati ya mwanzo na mwisho ndani ya frakseni ileile hazikuwa na umuhimu wa kitakwimu, \(p>0.05\). Kinyume chake, sentensi nyingine katika sehemu ya majadiliano hutumia kauli “ongezeko lenye umuhimu” kwa frakseni za split na crushed. Kwa sababu ya mkanganyiko huu wa ndani ya chanzo, maandishi ya Verianla hayahitimishi kwamba uchachushaji uliongeza kipenyo cha chembe kwa namna yenye umuhimu wa hakika.
Hata hivyo, makundi ya usambazaji wa chembe yalipoangaliwa, usambazaji wa picha ulionekana kuhamia kwenye makundi yenye ukubwa mkubwa zaidi. Mwanzoni, takriban %95 ya chembe za fine zilikuwa chini ya 0,50 mm, lakini baada ya uchachushaji takriban %64 ya frakseni ya fine ilikuwa katika kundi la 0,5–1,0 mm. Baada ya uchachushaji, frakseni ya crushed ilihamia hasa kwenye makundi ya 4–8 mm, na split hasa kwenye makundi ya 6–10 mm na zaidi. Mabadiliko haya ya usambazaji yanapaswa kutathminiwa kando na hitimisho la umuhimu lililoripotiwa kwa kipenyo cha wastani.
Kwa Nini Chembe Ndogo Zaidi za Lupini Hazikutoa Matokeo Bora Zaidi ya Kiutendaji?
Ingawa chembe ndogo zinaweza kutoa eneo kubwa zaidi la uso na umbali mfupi wa diffusion, utafiti huu ulionyesha kwamba faida si ya mstari; ufungashaji mnene wa substrati iliyosagwa kupita kiasi unaweza kupunguza ujazo wa vinyweleo na uhamishaji unaowezekana wa oksijeni, na unaweza kusababisha mabadiliko makubwa kupita kiasi katika mpangilio wa kimuundo wa matriksi ya protini/nyuzinyuzi unaohitajika kwa utendaji. Hata hivyo, kwa kuwa uhamishaji wa oksijeni, shughuli za vimeng’enya na biomasi ya kuvu havikupimwa moja kwa moja, hizi si mekanizimu zinazothibitisha kwa uhakika ubora wa frakseni ya crushed, bali ni michakato inayowezekana iliyojadiliwa na waandishi ili kueleza matokeo.
Kwa nini ukubwa wa chembe za unga wa mwisho ni udhibiti muhimu?
Baada ya uchachushaji kukamilika, sampuli zote zilizochachushwa na udhibiti usiochachushwa zilikaushwa kwa kugandisha kwa njia ileile, zikasagwa na kupitishwa kwenye ungo wa 1 mm. Katika uchanganuzi wa Mastersizer, thamani za D10 za bidhaa za mwisho zilikuwa 12,83–13,70 µm, D50 zilikuwa 166,67–171,67 µm na D90 zilikuwa 710,00–799,67 µm, na hakukuwa na tofauti yenye umuhimu kati ya makundi, \(p>0.05\).
Hili ni mojawapo ya mambo muhimu ya muundo wa jaribio. Kwa kuwa usambazaji wa ukubwa wa unga wa mwisho uliotumika katika majaribio ya kiutendaji ulifanywa kufanana, tofauti zilizofuata kati ya makundi ya crushed, split na fine haziwezi kuelezwa tu kwa kusema “unga mmoja ulikuwa mwembamba zaidi”. Tofauti zinaakisi athari za uchachushaji zinazohusiana na muundo wa kimwili wa awali wa malighafi ilipoingia kwenye uchachushaji.
Maudhui ya dutu kavu na urejeshaji wa dutu kavu
Dutu kavu (dry matter, DM) ilitathminiwa katika nyakati za uchachushaji za 0, 12, 24 na 36 saa. Chanzo kilihesabu asilimia ya dutu kavu kwa mlinganyo ufuatao:
\[ DM(\%)=\frac{W_{FD}}{W_{wet}}\times100 \]
Fomula inahesabu nini? Inaonyesha ni kiasi gani cha sampuli yenye unyevu ya uchachushaji kinachobaki kama dutu kavu baada ya ukaushaji kwa kugandisha.
\(W_{FD}\): Ni uzito wa sampuli iliyokaushwa kwa kugandisha kwa gramu.
\(W_{wet}\): Ni uzito wenye unyevu wa sampuli hiyohiyo kabla ya kukausha.
Maana ya kihesabu: Uwiano wa uzito mkavu kwa uzito wenye unyevu hubadilishwa kuwa asilimia. Kadiri uwiano wa maji unavyoongezeka, asilimia ya DM kwa kiasi kilekile cha dutu kavu hupungua.
Urejeshaji wa dutu kavu huhesabiwa kama:
\[ DMR(\%)=\frac{DM_{final}}{DM_{initial}}\times100 \]
\(DM_{initial}\): Jumla ya dutu kavu iliyowekwa mwanzoni katika mfumo wa uchachushaji.
\(DM_{final}\): Dutu kavu iliyobaki iliyohesabiwa kutokana na maudhui ya dutu kavu yaliyopimwa mwishoni mwa uchachushaji na jumla ya uzito wa uchachushaji.
Tafsiri: DMR iliyo karibu na %100 inaonyesha kwamba sehemu kubwa ya dutu kavu ya awali ilirejeshwa mwishoni mwa mchakato. DMR ilikuwa %97,20 ± 0,84 katika split, %95,52 ± 1,30 katika crushed na %94,53 ± 1,37 katika fine. Ingawa kwa namba urejeshaji unaonekana kupungua kadiri chembe zinavyopungua, tofauti kati ya makundi si yenye umuhimu, \(F=3.841\), \(p=0.084\).
Muda wa uchachushaji haukubadilisha maudhui ya DM kwa kiasi chenye umuhimu, \(F=2.090\), \(p=0.137\); mwingiliano wa muda × frakseni ya chembe pia haukuwa na umuhimu, \(F=0.910\), \(p=0.510\). Kinyume chake, athari kuu ya frakseni ya chembe ilikuwa na umuhimu, \(F=11.933\), \(p=0.008\), partial \(\eta^2=0.799\). DM ya wastani katika nyakati zote ilikuwa %24,25 ± 0,15 kwa split, %23,59 ± 0,53 kwa crushed na %22,86 ± 0,20 kwa fine.
Muundo wa karibu ulibadilikaje?
Protini ilipimwa kwa mbinu ya Dumas na kipengele cha ubadilishaji wa nitrojeni-protini cha 5,7; unyevu, majivu, mafuta, wanga na nyuzinyuzi za lishe zilipimwa kwa mbinu husika za AOAC. Kiasi cha wanga kilihesabiwa kwa njia ya tofauti badala ya kipimo cha moja kwa moja cha uchambuzi:
\[ CHO(\%)=100-\left[MC(\%)+CP(\%)+Fat(\%)+Ash(\%)\right] \]
\(MC\): maudhui ya unyevu; \(CP\): protini ghafi; Fat: mafuta; Ash: maudhui ya majivu.
Kwa hiyo, thamani ya “wanga” si uchanganuzi tofauti wa wanga; ni thamani ya tofauti inayopatikana kwa kutoa kutoka 100 jumla ya vipengele vingine vikuu vilivyopimwa.
| Sampuli | Majivu (%) | Protini ghafi (%) | Mafuta (%) | IDF (%) | SDF (%) | Wanga (%) | Kabohaidreti kwa tofauti (%) |
|---|---|---|---|---|---|---|---|
| Haijachachushwa | 2,9 ± 0,1 | 37,1 ± 0,5 | 6,5 ± 0,3 | 35,6 ± 1,2 | 10,3 ± 0,6 | 0,40 ± 0,05 | 48,7 ± 0,8 |
| Split iliyochachushwa | 3,1 ± 0,1 | 32,2 ± 0,6 | 4,7 ± 0,3 | 20,03 ± 2,9 | 6,93 ± 4,2 | 0,35 ± 0,04 | 55,2 ± 1,2 |
| Crushed iliyochachushwa | 3,3 ± 0,1 | 39,5 ± 0,7 | 2,7 ± 0,2 | 10,6 ± 0,8 | 28,9 ± 1,5 | 0,33 ± 0,04 | 50,2 ± 1,0 |
| Fine iliyochachushwa | 3,5 ± 0,1 | 43,5 ± 0,8 | 2,0 ± 0,2 | 16,23 ± 1,0 | 13,7 ± 0,6 | 0,24 ± 0,03 | 47,0 ± 1,0 |
Frakseni ya fine iliyochachushwa ilionyesha mkusanyiko wa juu zaidi wa protini unaoonekana wa %43,5. Hata hivyo, si sahihi kutafsiri thamani hii kuwa “kuvu ilizalisha protini mpya na jumla ya uzito wa protini ukaongezeka kwa kiasi hiki”. Usawa wa uzito wa protini au biomasi ya kuvu haukupimwa moja kwa moja katika utafiti. Kutumika au kupungua kwa vipengele vingine kunaweza kuongeza asilimia ya jamaa ya protini ndani ya jumla ya dutu kavu.
Maudhui ya mafuta yalipungua katika makundi yote yaliyofanyiwa uchachushaji: kutoka %6,5 hadi %4,7 katika split, %2,7 katika crushed na %2,0 katika fine. Chanzo kinajadili shughuli ya lipolysis kama mojawapo ya maelezo yanayowezekana; hata hivyo, kwa kuwa shughuli ya lipase haikupimwa, kupungua huku si athari ya lipase iliyopimwa moja kwa moja.
Mabadiliko ya nyuzinyuzi za lishe yanaonekana hasa katika frakseni ya crushed. Nyuzinyuzi zisizoyeyuka (IDF) zilipungua kutoka %35,6 hadi %10,6, huku nyuzinyuzi zinazoyeyuka (SDF) zikiongezeka hadi %28,9. Chanzo kinahusisha hili na mabadiliko ya polisakaridi za kimuundo au kuwa kwake katika hali inayoyeyuka; hata hivyo, vimeng’enya husika vya kuvu havikupimwa moja kwa moja.
Wasifu wa amino asidi
Amino asidi zilipimwa kwa HPLC ya awamu ya kinyume yenye uundaji wa derivatives za AccQ-Tag baada ya hidrolisisi ya HCl; oksidishaji wa performic acid ulitumika kwa cysteine na methionine.
| Amino asidi | Haijachachushwa | Split iliyochachushwa | Crushed iliyochachushwa | Fine iliyochachushwa |
|---|---|---|---|---|
| Phenylalanine | 1,66 ± 0,11 | 1,57 ± 0,02 | 1,66 ± 0,02 | 1,78 ± 0,01 |
| Histidine | 0,70 ± 0,01 | 0,62 ± 0,01 | 0,64 ± 0,14 | 0,65 ± 0,21 |
| Isoleucine | 1,64 ± 0,02 | 1,55 ± 0,02 | 1,69 ± 0,02 | 1,60 ± 0,02 |
| Leucine | 2,56 ± 0,32 | 2,48 ± 0,11 | 2,58 ± 0,14 | 2,64 ± 0,17 |
| Lysine | 1,95 ± 0,02 | 1,74 ± 0,02 | 1,84 ± 0,02 | 1,83 ± 0,02 |
| Methionine | 0,30 ± 0,02 | 0,30 ± 0,02 | 0,42 ± 0,02 | 0,45 ± 0,02 |
| Threonine | 1,37 ± 0,05 | 1,29 ± 0,13 | 1,33 ± 0,12 | 1,17 ± 0,11 |
| Valine | 1,68 ± 0,13 | 1,60 ± 0,24 | 1,77 ± 0,34 | 1,88 ± 0,02 |
| Jumla ya amino asidi muhimu | 11,86 ± 0,68 | 11,15 ± 0,57 | 12,33 ± 0,96 | 12,00 ± 0,58 |
| Aspartic acid | 3,97 ± 0,02 | 3,70 ± 0,11 | 3,73 ± 0,12 | 3,12 ± 0,04 |
| Serine | 2,08 ± 0,13 | 1,92 ± 0,01 | 1,75 ± 0,02 | 1,41 ± 0,21 |
| Glutamic acid | 10,72 ± 0,03 | 7,94 ± 0,02 | 7,36 ± 0,02 | 10,68 ± 0,11 |
| Proline | 1,84 ± 0,03 | 1,60 ± 0,02 | 1,69 ± 0,02 | 1,63 ± 0,04 |
| Glycine | 1,60 ± 0,04 | 1,82 ± 0,11 | 1,75 ± 0,12 | 2,08 ± 0,03 |
| Alanine | 1,36 ± 0,12 | 1,28 ± 0,02 | 1,87 ± 0,04 | 1,99 ± 0,02 |
| Tyrosine | 1,92 ± 0,12 | 1,74 ± 0,22 | 1,86 ± 0,12 | 2,00 ± 0,02 |
| Arginine | 4,45 ± 0,10 | 3,88 ± 0,14 | 2,59 ± 0,12 | 1,84 ± 0,11 |
| Cysteine | 0,35 ± 0,04 | 0,32 ± 0,03 | 0,33 ± 0,11 | 0,40 ± 0,14 |
| Jumla ya amino asidi zisizo muhimu | 28,29 ± 0,63 | 23,20 ± 0,88 | 22,93 ± 0,83 | 25,15 ± 0,68 |
Thamani za jumla za amino asidi muhimu katika frakseni za crushed na fine zilikuwa juu kuliko katika split. Methionine iliongezeka katika crushed na fine, huku arginine ikipungua katika makundi yote yaliyofanyiwa uchachushaji. Chanzo kinahusisha kupungua kwa arginine na kimetaboliki ya kuvu, na ongezeko la baadhi ya amino asidi na hidrolisisi ya protini na kimetaboliki ya amino asidi; hata hivyo, mikondo husika ya kimetaboliki au shughuli za vimeng’enya hazikupimwa moja kwa moja.
Tofauti ya rangi ilihesabiwaje?
Rangi ilipimwa kwa kolorimita ya Minolta CR-400 katika mfumo wa CIE L*a*b* kwa kutumia mwangaza wa D65, mwangalizi wa kawaida wa 10° na uwazi wa kipimo wa 8 mm.
\[ \Delta E_{ab}^{*}= \sqrt{ (L_2^{*}-L_1^{*})^2+ (a_2^{*}-a_1^{*})^2+ (b_2^{*}-b_1^{*})^2 } \]
Fomula inahesabu nini? Inahesabu umbali wa jumla wa rangi kati ya sampuli iliyochachushwa na rejeleo lisilochachushwa.
\(L^*\): mhimili wa mwanga-giza; \(a^*\): mhimili wa nyekundu-kijani; \(b^*\): mhimili wa njano-bluu.
Kwa kuwa mraba wa tofauti kwenye mihimili mitatu hujumlishwa, alama hazifutiliani; hupatikana umbali wa jumla wa kijiometria wa rangi.
| Sampuli | L* | a* | b* | ΔE |
|---|---|---|---|---|
| Haijachachushwa | 63,71 ± 5,42 | 6,43 ± 1,57 | 36,53 ± 8,33 | — |
| Split iliyochachushwa | 64,57 ± 6,28 | 6,11 ± 1,52 | 36,01 ± 8,72 | 1,38 ± 0,57 |
| Crushed iliyochachushwa | 65,98 ± 7,32 | 6,16 ± 1,23 | 35,71 ± 7,62 | 2,75 ± 0,72 |
| Fine iliyochachushwa | 63,58 ± 9,52 | 6,32 ± 1,28 | 36,32 ± 8,26 | 0,63 ± 0,43 |
Tanbihi ya rangi ndani ya chanzo: Moja ya sentensi za mwanzo katika sehemu ya matokeo inasema kwamba uchachushaji na ukubwa wa chembe zilisababisha tofauti yenye umuhimu katika thamani za L* na a*; sentensi inayofuata mara moja inasema kwamba ni L* pekee iliyoathiriwa kwa kiasi chenye umuhimu na kwamba a* na b* hazikuathiriwa. Katika Jedwali 4, safu za a* na b* zina herufi ileile ya kitakwimu kwa makundi yote. Kwa hiyo, maandishi ya Verianla yanakubali tu kwamba tofauti ya L* imeungwa mkono wazi na hayafichi mkanganyiko kuhusu a*.
Mbinu na Matokeo ya Utafiti
Uwezo wa kushikilia maji na mafuta
Kwa uwezo wa kushikilia maji (WHC) na uwezo wa kushikilia mafuta (OHC), 1 g ya unga ilichanganywa kwa vortex kwa sekunde 30 na 10 mL ya maji yaliyodistiliwa au mafuta ya kanola, ikaachwa kufikia usawa kwa dakika 30 na kisha ikazungushwa kwa centrifuge kwa dakika 30 katika 5000×g. Ujazo wa awamu ya juu iliyotenganishwa ulipimwa na WHC/OHC ikahesabiwa kwa msingi wa uzito mkavu. Chanzo hakitoi mlinganyo wazi wa kihesabu kwa WHC na OHC; kwa hiyo, hakuna fomula ya nje ya chanzo iliyoongezwa hapa.
| Sampuli | WHC (%) | OHC (%) | LGC (%) |
|---|---|---|---|
| Haijachachushwa | 223 ± 8,62 | 209 ± 6,52 | 14 |
| Split iliyochachushwa | 238 ± 6,58 | 196 ± 8,80 | 12 |
| Crushed iliyochachushwa | 258 ± 8,11 | 207 ± 6,25 | 13 |
| Fine iliyochachushwa | 236 ± 6,52 | 205 ± 6,55 | 13 |
Frakseni ya crushed ilitoa thamani ya juu zaidi ya WHC ya %258. Kwa upande wa OHC, unga usiochachushwa ulikuwa na thamani ya juu zaidi ya %209, na split thamani ya chini zaidi ya %196. Kwa hiyo, kuboresha uwezo wa kushikilia maji kwa uchachushaji hakumaanishi kwamba uwezo wa kushikilia mafuta pia huongezeka katika mwelekeo uleule.
Kiwango cha chini cha uundaji jeli (least gelation concentration, LGC) kilibainishwa katika suspensions za 2–20% w/v zilizoandaliwa kwa nyongeza za %2. Sampuli zilipashwa joto kwa saa 1 katika 80 °C, zikapozwa haraka na kuhifadhiwa kwa saa 2 katika 4 °C. Konsentrasheni ya kwanza ambayo haikutiririka baada ya bomba kugeuzwa ilikubaliwa kuwa LGC. LGC ya chini humaanisha uwezo wa kuunda jeli katika konsentrasheni ndogo zaidi ya unga. Split iliyochachushwa ilitoa LGC ya chini zaidi ya %12.
Shughuli na uthabiti wa uemulsishaji
Dispersions za unga wa lupini za %1 w/v ziliwekwa kwenye pH 2, 4, 6 na 8 na kufanyiwa homogenization ya kasi ya juu kwa dakika 10. Katika dakika ya tano, 100 mL ya mafuta ya kanola yaliongezwa polepole. Baada ya mfumo kuzungushwa kwa centrifuge kwa dakika 10 katika 2000×g, shughuli ya uemulsishaji ilihesabiwa kama uwiano wa urefu wa tabaka lililoemulsishwa kwa urefu wa jumla wa mchanganyiko.
Uthabiti wa emulsheni ulitathminiwa kwa kupasha emulsheni zilezile joto katika 80 °C kwa dakika 30, kuzipooza kwa dakika 15 na kuzungusha kwa centrifuge kwa dakika 15 katika 2000×g.
Frakseni ya crushed ilitoa shughuli ya juu zaidi ya uemulsishaji katika thamani zote za pH: katika pH 2, %47,60 ± 9,42; pH 4, %43,20 ± 7,11; pH 6, %48,20 ± 9,71 na pH 8, %48,80 ± 8,24.
Kinyume chake, katika uthabiti wa emulsheni, frakseni ya split ilionyesha thamani za juu zaidi katika pH zote: mtawalia %41,30 ± 40,72; %39,00 ± 8,11; %47,00 ± 8,81 na %47,40 ± 1,34. Matokeo haya yanaonyesha kwamba hakuna usawa wa “shughuli ya juu ya uemulsishaji = lazima uthabiti wa juu zaidi”.
Uundaji wa povu na uthabiti wa povu
Katika jaribio la povu, suspensions za %1 w/v ziliwekwa kwenye pH 2, 4, 6 na 8 na kupigwa kwa mikser ya mkono kwa kasi ya juu kwa dakika 5. Uwezo wa kutengeneza povu ulitathminiwa kwa ujazo wa povu lililotokea ikilinganishwa na ujazo wa suspension ya awali; uthabiti wa povu uliamuliwa kwa uwiano wa povu lililobaki kwa ujazo wa povu wa awali baada ya kusubiri saa 2 katika joto la chumba.
Frakseni ya crushed ilionyesha uwezo wa juu zaidi wa kutengeneza povu katika pH 2, 4, 6 na 8, mtawalia %35,10 ± 8,87; %23,10 ± 4,46; %50,00 ± 8,61 na %55,70 ± 7,65.
Katika uthabiti wa povu, frakseni ya split ilitoa thamani za juu zaidi, mtawalia %24,52 ± 4,22; %15,66 ± 3,12; %43,85 ± 8,21 na %49,36 ± 9,24. Uwezo mkubwa wa frakseni ya crushed wa kutengeneza povu haumaanishi kwamba povu linalozalisha ndilo thabiti zaidi.
Umumunyifu wa protini na athari ya pH
Kwa umumunyifu wa protini, suspension ya unga wa lupini ya %2 w/w iliandaliwa, ikawekwa kwenye pH 2, 4, 6 au 8, ikachanganywa kwa saa 1 na kuzungushwa kwa centrifuge kwa dakika 30 katika 17.000×g. Awamu ya juu ilikaushwa kwa kugandisha na protini ikapimwa kwa mbinu ya Kjeldahl kwa kutumia kipengele cha ubadilishaji wa nitrojeni-protini cha 5,7.
| Sampuli | pH 2 | pH 4 | pH 6 | pH 8 |
|---|---|---|---|---|
| Haijachachushwa | 30,57 ± 7,11 | 22,50 ± 5,61 | 58,20 ± 11,24 | 61,10 ± 9,21 |
| Split iliyochachushwa | 31,80 ± 8,12 | 23,60 ± 5,21 | 60,50 ± 8,14 | 62,90 ± 8,80 |
| Crushed iliyochachushwa | 33,50 ± 9,22 | 24,80 ± 4,31 | 62,50 ± 8,62 | 64,80 ± 11,61 |
| Fine iliyochachushwa | 29,00 ± 7,24 | 21,80 ± 4,92 | 56,50 ± 10,61 | 59,00 ± 10,24 |
Katika sampuli zote, umumunyifu wa chini zaidi ulionekana karibu na pH 4 na wa juu zaidi katika pH 6–8. Frakseni ya crushed ilikuwa na thamani ya juu zaidi ya umumunyifu kati ya makundi yaliyofanyiwa uchachushaji katika pH zote zilizojaribiwa.
Ikiwa Ukubwa wa Chembe wa Unga wa Mwisho Unafanana, Ukubwa wa Chembe wa Awali Unawezaje Bado Kuwa na Athari?
Kwa kuwa kabla ya majaribio ya kiutendaji sampuli zote zilipitia ukaushaji, usagaji na uchujaji wa 1 mm kwa njia ileile, na usambazaji wa mwisho wa D10/D50/D90 haukutofautiana kwa kiasi chenye umuhimu, tofauti za kiutendaji zilizopimwa haziwezi kuelezwa tu na ukubwa wa kimaumbile wa chembe za unga wa mwisho; utafiti unahusisha tofauti hizi na mabadiliko tofauti katika protini, nyuzinyuzi, lipidi na mpangilio wa molekuli yaliyotokana na muundo wa awali wa substrati wakati wa uchachushaji.
Majaribio ya reolojia hupima nini?
Reolojia huchunguza tabia ya kimekanika ya mfumo wa chakula unapokabiliwa na deformation na mtiririko. Utafiti ulitumia reomita ya Anton Paar Physica MCR301 yenye sahani za chuma sambamba za 40 mm na nafasi ya 2 mm kati ya sahani.
Moduli ya uhifadhi \(G'\) inahusiana na nishati inayohifadhiwa na sampuli kwa njia ya elastiki. \(G'\) ya juu inaonyesha tabia thabiti zaidi ya mtandao unaofanana na kigumu/elastiki.
Moduli ya upotevu \(G''\) inawakilisha sehemu ya nishati ya deformation inayopotea kupitia tabia ya mnato.
Tanjenzi ya upotevu:
\[ \tan\delta=\frac{G''}{G'} \]
Ingawa mlinganyo huu haujachapishwa katika chanzo kama mlinganyo tofauti wenye namba, chanzo hutumia pamoja vipimo vya \(G'\), \(G''\) na \(\tan\delta\); umeonyeshwa hapa tu kwa maelezo ya dhana ya uhusiano wa vipimo hivyo. Wakati \(\tan\delta<1\), sehemu ya elastiki hutawala sehemu ya mnato.
Sehemu ya mbinu ya chanzo inaeleza kwamba strain sweep ilifanywa katika %0,001–100 na kwamba %0,01 strain ilichaguliwa ndani ya LVR kwa majaribio yaliyofuata. Kinyume chake, sehemu ya matokeo inasema kwamba thamani ya %0,03 ilitumika. Haiwezekani kubainisha kwa uhakika kutoka ndani ya makala ni thamani ipi ilitumika kweli; kwa hiyo, thamani zote mbili lazima zihifadhiwe kama kutolingana ndani ya chanzo.
Zaidi ya hayo, sehemu ya mbinu inaeleza pasta za unga kama “%25 w/w moisture content”, huku sehemu ya matokeo ikiita sampuli za skani ya joto “%25 w/v dispersions”. Huu ni ukosefu wa uhakika wa pili kuhusu kitengo cha konsentrasheni; Verianla haibadilishi kwa siri kauli moja kuwa nyingine.
Skani ya joto
Kulingana na mbinu ya chanzo, sampuli zilipashwa joto kutoka 25 °C hadi 95 °C kwa kasi ya 4 °C/dak, zikashikiliwa katika 95 °C kwa sekunde 30, zikapozwa hadi 25 °C kwa kasi hiyohiyo na zikahifadhiwa tena kwa sekunde 30 katika 25 °C. Ili kupunguza upotevu wa unyevu, tabaka jembamba la mafuta ya madini liliwekwa kwenye ukingo wa sampuli.
Katika sampuli zote, \(G'>G''\) na \(\tan\delta<1\) zilipatikana. Hii inaonyesha kwamba katika pasta zote za lupini, sehemu ya elastiki ilitawala sehemu ya mnato.
Frakseni ya crushed ilionyesha thamani za juu zaidi za \(G'\) katika kupasha na kupoza. Kadiri joto lilivyoongezeka, \(G'\) na \(G''\) kwa ujumla zilipungua, na urejeshaji wa sehemu ulitokea wakati wa kupoa.
Thamani za \(\tan\delta\) za frakseni ya crushed zilikuwa za chini zaidi, takriban 0,12–0,17; thamani za unga usiochachushwa zilikuwa katika kiwango cha juu zaidi, takriban 0,29–0,36. Kwa hiyo, ingawa unga usiochachushwa unaweza kuonyesha \(G'\) ya juu kiasi katika hali fulani, uwiano wa upotevu wa nishati ya mnato kwa sehemu ya elastiki ni mkubwa zaidi. Ubora wa mtandao haupaswi kutathminiwa kwa kuangalia \(G'\) pekee.
Skani ya masafa
Katika skani ya masafa, chanzo kinaeleza kwamba kiwango cha 0,01–10 Hz kilitumika katika 25 °C. Ingawa chanzo kinakiita “angular frequency”, kinatoa kitengo cha Hz; Verianla haifanyi ubadilishaji wa rad/s ambao haupo kwenye chanzo.
Kadiri masafa yalivyoongezeka, \(G'\) na \(G''\) ziliongezeka katika sampuli zote na \(G'\) ilibaki kubwa kuliko \(G''\) katika kiwango chote. Katika skani ya masafa, mpangilio wa ukubwa wa moduli kwa ujumla ulikuwa crushed > split > fine > haijachachushwa. Frakseni ya crushed ilionyesha utendaji thabiti zaidi wa mtandao wa viskoelastiki.
Uchanganuzi wa FTIR ulionyesha nini?
Spektra za FTIR zilirekodiwa katika 400–4000 cm−1, kwa resolution ya 4 cm−1 na skani 32 kwa kila sampuli. Ili kutathmini muundo wa sekondari wa protini, eneo la Amide I, 1600–1700 cm−1, lilichambuliwa kwa utenganishaji wa curve ya Gaussian.
Bendi pana ya O–H/N–H ya takriban 3303 cm−1 katika unga usiochachushwa ilihamia kwenye eneo la takriban 3275–3289 cm−1 katika sampuli zilizochachushwa. Mabadiliko pia yalionekana katika bendi zinazohusiana na lipidi za takriban 2925 na 2850 cm−1 na katika eneo la carbonyl la takriban 1740 cm−1.
Kilele cha Amide I cha sampuli isiyochachushwa kilikuwa karibu na 1641 cm−1, huku katika frakseni za crushed na fine kikihamia karibu na 1646 cm−1. Mabadiliko haya yanaunga mkono kwamba konformation ya protini na mwingiliano wa molekuli unaoizunguka hubadilika kwa uchachushaji; kuhama kwa kilele kimoja hakuthibitishi moja kwa moja mmenyuko maalum wa protini.
| Muundo | Haijachachushwa | Split iliyochachushwa | Crushed iliyochachushwa | Fine iliyochachushwa |
|---|---|---|---|---|
| β-sheet | 36,25 ± 3,47 | 34,35 ± 4,11 | 35,92 ± 5,11 | 35,13 ± 4,33 |
| Random coil | 15,25 ± 4,11 | 13,81 ± 2,71 | 13,48 ± 2,34 | 13,52 ± 3,14 |
| α-helix | 16,11 ± 4,33 | 15,34 ± 2,07 | 19,78 ± 4,44 | 19,44 ± 2,14 |
| β-turn | 29,26 ± 2,76 | 30,74 ± 4,31 | 27,77 ± 4,17 | 27,35 ± 5,21 |
| Aggregated strands | 2,86 ± 0,37 | 5,76 ± 1,11 | 3,04 ± 1,47 | 4,56 ± 0,78 |
β-sheet iliendelea kuwa muundo unaotawala katika makundi yote. Katika frakseni za crushed na fine, uwiano wa α-helix uliongezeka huku uwiano wa random coil ukipungua ikilinganishwa na sampuli isiyochachushwa. Matokeo haya yalitafsiriwa kuwa uchachushaji ulisababisha upangaji upya wa muundo wa sekondari badala ya ku-denature protini kabisa.
DSC: je, joto la denaturation na enthalpy vinaonyesha jambo lilelile?
Hapana. Joto la denaturation linaonyesha joto ambalo mpito wa joto hutokea; mabadiliko ya enthalpy \(\Delta H\) yanaonyesha kiasi cha nishati ya joto kinachofyonzwa wakati wa mpito huo. Kwa hiyo, sampuli mbili zenye joto sawa au linalofanana la denaturation zinaweza kuwa na thamani tofauti za \(\Delta H\).
Katika DSC, takriban 10 mg ya sampuli ya unga wa lupini ya %40 w/v ilipashwa na kupozwa katika chombo hermetic kati ya 25–120 °C kwa kasi ya 5 °C/dak.
| Sampuli | Peak 1 Td (°C) | Peak 1 ΔH (J/g) | Peak 2 Td (°C) | Peak 2 ΔH (J/g) |
|---|---|---|---|---|
| Haijachachushwa | 88,40 ± 10,02 | 3,30 ± 1,44 | 102,41 ± 10,24 | 2,62 ± 1,05 |
| Split iliyochachushwa | 88,92 ± 8,21 | 5,10 ± 1,72 | 104,92 ± 9,14 | 3,11 ± 1,12 |
| Crushed iliyochachushwa | 89,51 ± 8,43 | 6,72 ± 2,11 | 104,56 ± 9,11 | 4,71 ± 1,41 |
| Fine iliyochachushwa | 88,73 ± 8,712 | 2,32 ± 1,08 | 105,47 ± 7,20 | 1,77 ± 0,52 |
Hakukuwa na tofauti yenye umuhimu kati ya makundi katika joto mbili kuu za denaturation, lakini tofauti zenye umuhimu zilionekana katika thamani za enthalpy. Frakseni ya crushed ilionyesha thamani ya juu zaidi ya \(\Delta H\) katika mipito yote miwili ya endothermic. Chanzo kinatafsiri hili kuwa linaloendana na mwingiliano wa molekuli wenye nguvu zaidi au mpana zaidi unaohitaji nishati zaidi kwa kufunguka kwa joto.
Kutolingana kwa DSC ndani ya chanzo: Jedwali 8 linatoa 89,51 ± 8,43 °C kwa crushed Peak 1, lakini sentensi ya kwanza ya aya ina 89,51 ± 80,43 °C. Katika jedwali hilohilo, thamani ya crushed Peak 2 \(\Delta H\) ni 4,71 ± 1,41 J/g, lakini aya ina 4,71 ± 0,01 J/g. Kwa hiyo, jedwali hapo juu linabeba moja kwa moja thamani za Jedwali 8 asilia, na thamani mbili zinazokinzana katika maandishi zimeelezwa kando.
PCA ilionyesha nini?
Uchanganuzi wa vipengele vikuu (principal component analysis, PCA) ni mbinu ya vigezo vingi inayofupisha vipimo vingi vinavyohusiana kwenye idadi ndogo ya mihimili changamano. PCA haithibitishi sababu; inaonyesha jinsi sampuli zinavyofanana au kutofautiana kwa kuzingatia sifa nyingi.
Kwa PCA, protini, wanga, LGC, WHC, umumunyifu wa protini, uthabiti wa povu, uwiano wa β-sheet na joto la denaturation zilichaguliwa, na vigezo vilisanifishwa ili kupunguza athari ya vitengo tofauti.
PC1 ilieleza %42,7 ya variance ya jumla na PC2 %31,9; vipengele viwili kwa pamoja viliwakilisha %74,6 ya variance. Frakseni ya crushed ilionyesha nafasi tofauti na makundi mengine katika nafasi ya alama za PCA. Nafasi hii haikuwakilisha sifa moja, bali mchanganyiko wa pamoja wa muundo, tabia ya protini, hydration na sifa za kimuundo.
Mwelekeo chanya wa PC1 ulihusishwa na WHC, wanga, uthabiti wa povu na umumunyifu wa protini; mwelekeo hasi ulihusishwa na maudhui ya protini na LGC. Katika PC2, LGC, wanga, β-sheet na uthabiti wa povu ziliwekwa katika mwelekeo chanya; joto la denaturation katika mwelekeo hasi.
Ni muhimu hasa kwamba frakseni ya fine, licha ya kuwa na uwiano wa juu zaidi wa protini unaoonekana, haikuwekwa katika klasta ileile ya PCA na crushed. Matokeo haya yanaunga mkono kwamba ubora wa kiteknolojia wa kiungo cha chakula hauwezi kuelezwa kwa asilimia ya protini pekee.
Korelesheni ya Pearson ilionyesha nini?
Mahusiano chanya yenye nguvu yaliripotiwa kati ya umumunyifu wa protini na shughuli ya uemulsishaji pamoja na uwezo wa kutengeneza povu, \(r>0.94\), \(p<0.01\). Mahusiano haya yanaendana na uwezekano wa protini zinazoyeyuka na kutawanyika kufikia kwa urahisi zaidi sehemu za mpakani za mafuta–maji au hewa–maji.
Hata hivyo, korelesheni si sababu. Uchanganuzi huu hauthibitishi kwamba umumunyifu mkubwa wa protini peke yake “umesababisha” shughuli kubwa ya uemulsishaji. Konformation ya protini, muundo wa nyuzinyuzi na vigezo vingine vya kimuundo hubadilika kwa wakati mmoja.
Uchanganuzi wa kitakwimu
Majaribio yalifanywa kwa angalau marudio matatu na matokeo yakatolewa kama wastani ± mkengeuko wa kawaida. ANOVA ya njia mbili ilitumika kwa ukubwa wa chembe kabla na baada ya uchachushaji; ANOVA ya njia moja na jaribio la Tukey post-hoc vilitumika kwa ulinganisho mwingine wa jumla. Kiwango cha jumla cha umuhimu kilikuwa \(p\leq0.05\). Uchanganuzi ulifanywa kwa SPSS 17.0.
Pia imeelezwa kwamba mfululizo wa muda wa dutu kavu ulitathminiwa kwa repeated-measures ANOVA katika sehemu ya matokeo.
Matokeo yanayoungwa mkono na utafiti
- Ukubwa wa awali wa chembe za substrati unahusiana na sifa za baadaye za fizikokemia na kiutendaji za unga wa lupini uliopatikana chini ya hali zilezile za uchachushaji.
- Uchachushaji ulipunguza maudhui ya mafuta katika makundi yote ya chembe.
- Frakseni zinazoyeyuka na zisizoyeyuka za nyuzinyuzi za lishe zilibadilika kwa viwango tofauti kulingana na ukubwa wa awali wa chembe.
- Frakseni ya crushed ilionyesha WHC ya juu zaidi ya %258.
- Frakseni ya crushed ilionyesha shughuli ya juu zaidi ya uemulsishaji, uwezo wa kutengeneza povu na umumunyifu wa protini katika hali zote za pH zilizojaribiwa.
- Frakseni ya split ilionyesha thamani za juu zaidi kuliko crushed katika uthabiti wa emulsheni na povu.
- Frakseni ya crushed ilionyesha tabia imara ya elastiki/viskoelastiki katika skani za joto na masafa.
- FTIR na DSC zilionyesha kwamba uchachushaji ulisababisha mabadiliko katika muundo wa protini na matriksi huku kwa kiasi kikubwa ukihifadhi joto kuu za mpito wa joto.
- PCA ilionyesha kwamba frakseni ya crushed iliunda wasifu tofauti kwa kuzingatia mchanganyiko wa sifa za vigezo vingi.
- Frakseni ya fine yenye maudhui ya juu zaidi ya protini yanayoonekana haikuonyesha utendaji bora zaidi katika kazi zote.
Matokeo yasiyoungwa mkono na utafiti
- Hitimisho kwamba “kadiri chembe zinavyokuwa ndogo, ndivyo uchachushaji unavyokuwa bora” haliungwi mkono.
- Hitimisho kwamba “frakseni ya crushed ndiyo bora katika matumizi yote ya chakula” haliungwi mkono.
- Hitimisho kwamba “ongezeko la protini katika frakseni ya fine ni ushahidi wa moja kwa moja wa usanisi wa protini mpya” haliungwi mkono.
- Kupungua kwa mafuta si ushahidi wa shughuli ya lipase iliyopimwa moja kwa moja.
- Kupungua kwa IDF pamoja na kuongezeka kwa SDF si ushahidi wa shughuli ya cellulase iliyopimwa moja kwa moja.
- PCA na korelesheni za Pearson hazithibitishi sababu.
- Utendaji wa unga katika maabara hauonyeshi kwamba utendaji uleule umehakikishwa katika mkate halisi, pasta, kinywaji au bidhaa nyingine ya mwisho.
- Ukubalifu wa hisia, uthabiti wa kuhifadhi na utendaji katika mchakato halisi wa chakula havikuthibitishwa katika utafiti huu.
Mapungufu makuu
Biomasi ya kuvu haikupimwa moja kwa moja. Kwa hiyo, haijulikani kwa kiasi gani chembe tofauti za awali zilibadilisha kiasi halisi cha ukuaji wa kuvu.
Kinetiki ya matumizi ya substrati haikupimwa. Ingawa kuna mabadiliko ya dutu kavu na muundo, kasi ya matumizi ya kaboni, nitrojeni au makromolekuli fulani kwa muda haikuamuliwa.
Shughuli za vimeng’enya hazikupimwa. Protease, lipase na vimeng’enya vinavyovunja kabohaidreti ni mekanizimu zinazowezekana zinazojadiliwa; si vipimo vya moja kwa moja vya utafiti huu.
Uhamishaji wa oksijeni haukupimwa. Ufungashaji mnene zaidi katika frakseni ya fine umejadiliwa kama maelezo yanayowezekana ya kupunguza ufikiaji wa oksijeni, lakini haujathibitishwa moja kwa moja.
Hakuna kinetiki ya kina ya uchachushaji. Kasi ya ukuaji wa kuvu, kasi ya kimetaboliki na wasifu wa kiasi wa uzalishaji wa vimeng’enya kwa muda havikuamuliwa.
Hakukuwa na uthibitisho katika chakula halisi. Utendaji wa usindikaji, sifa za kuhifadhi na sifa za hisia za unga uliopatikana katika mifumo ya mfano au ya chakula halisi zinapaswa kutathminiwa kando katika siku zijazo.
Kuna kutolingana kwa kiufundi ndani ya chanzo. Thamani ya strain ya reolojia, kitengo cha konsentrasheni ya reolojia, baadhi ya makosa ya DSC, umuhimu wa rangi na tafsiri ya kitakwimu ya athari ya muda kwenye kipenyo cha chembe hazilingani kikamilifu ndani ya chanzo. Kutokuwa na uhakika huku hakujasahihishwa kimya kimya na Verianla.
Maelezo ya Chanzo na Mbinu
Utafiti asilia: Effect of Particle Size on the Physicochemical and Functional Properties of Sweet Lupin (Lupinus angustifolius) Fermented with Rhizopus oligosporus
Waandishi: Ihlana Nairfana; Jaspreet Singh; Mike Boland; Lovedeep Kaur.
Mpangilio wa waandishi: Mpangilio wa makala asilia umehifadhiwa.
Mchango sawa: Hakuna taarifa wazi ya mchango sawa/uandishi wa kwanza wa pamoja inayoonekana katika chanzo.
Mwandishi wa mawasiliano: Lovedeep Kaur.
Taasisi 1: School of Food Technology and Natural Sciences, Massey University, Palmerston North 4442, New Zealand.
Taasisi 2: Riddet Institute, Massey University, Palmerston North 4442, New Zealand.
Jarida: Foods.
Mchapishaji: MDPI, Basel, Switzerland.
Aina ya chanzo: Article; utafiti wa uchachushaji unaodhibitiwa wa maabara na uainishaji wa kiungo cha chakula.
Hali ya mapitio ya kitaalamu: Foods ni jarida la kisayansi linalopitiwa na wataalamu na makala ni version of record iliyochapishwa.
Juzuu / toleo / namba ya makala: Foods 2026, 15(18), 3306.
DOI: 10.3390/foods15183306.
Tarehe ya kuwasilisha: 30 Julai 2026.
Tarehe ya marekebisho: 3 Septemba 2026.
Tarehe ya kukubaliwa: 9 Septemba 2026.
Tarehe ya kuchapishwa: 18 Septemba 2026.
Rekodi rasmi: Rekodi ya uchapishaji ya MDPI kupitia DOI 10.3390/foods15183306.
Leseni: Creative Commons Attribution (CC BY).
Nyenzo za ziada: Table S1 uchanganuzi wa korelesheni ya Pearson; Figure S1 matokeo ya strain sweep; Table S2 maudhui ya dutu kavu; Table S3 urejeshaji wa dutu kavu.
Ufadhili: New Zealand Ministry of Business, Innovation and Employment (MBIE) Endeavour Fund, Smart Idea, mkataba no. MAU2443.
Bodi ya maadili: Haitumiki.
Ridhaa yenye taarifa: Haitumiki.
Upatikanaji wa data: Imeelezwa kwamba data zitatolewa kwa ombi.
Mgongano wa maslahi: Waandishi wametangaza kwamba hakuna mgongano wa maslahi.
Michango ya waandishi: Lovedeep Kaur: uundaji wa dhana, usimamizi, mbinu, mapitio na uhariri. Jaspreet Singh: uundaji wa dhana, mbinu, mapitio na uhariri, usimamizi. Mike Boland: uundaji wa dhana, mbinu, mapitio na uhariri, usimamizi. Ihlana Nairfana: uundaji wa dhana, uchanganuzi rasmi, utafiti, uratibu wa data na uandishi wa rasimu ya kwanza.
Kutolingana ndani ya chanzo 1 — reolojia: sehemu ya mbinu inaandika %0,01 strain kwa skani zinazofuata, wakati sehemu ya matokeo inaandika %0,03 strain.
Kutolingana ndani ya chanzo 2 — konsentrasheni ya reolojia: sehemu ya mbinu hutumia %25 w/w, huku sehemu ya matokeo ikitumia %25 w/v.
Kutolingana ndani ya chanzo 3 — DSC: Katika Jedwali 8, joto la crushed Peak 1 ni 89,51 ± 8,43 °C, lakini sehemu moja ya aya ina 89,51 ± 80,43 °C; katika Jedwali 8, thamani ya crushed Peak 2 ΔH ni 4,71 ± 1,41 J/g, lakini aya ina 4,71 ± 0,01 J/g.
Kutolingana ndani ya chanzo 4 — rangi: sentensi moja ya matokeo inaeleza tofauti ya a* kuwa yenye umuhimu, huku sentensi inayofuata na Jedwali 4 zikionyesha kwamba tofauti za a* na b* si zenye umuhimu.
Kutolingana ndani ya chanzo 5 — kipenyo cha Feret cha mwanzo/mwisho: sehemu ya matokeo inasema kwamba mabadiliko ndani ya frakseni hayakuwa na umuhimu kwa p > 0,05, lakini sehemu ya majadiliano ina kauli ya ongezeko lenye umuhimu kwa split na crushed.
Kikomo kikuu cha kimetodolojia: Ukuaji wa biomasi ya kuvu, kasi ya matumizi ya substrati, shughuli za vimeng’enya, uhamishaji wa oksijeni na kinetiki ya kina ya uchachushaji havikupimwa moja kwa moja. Usindikaji halisi wa chakula unaolenga matumizi maalum, uhifadhi na utendaji wa hisia pia vinapaswa kuthibitishwa kando.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *