


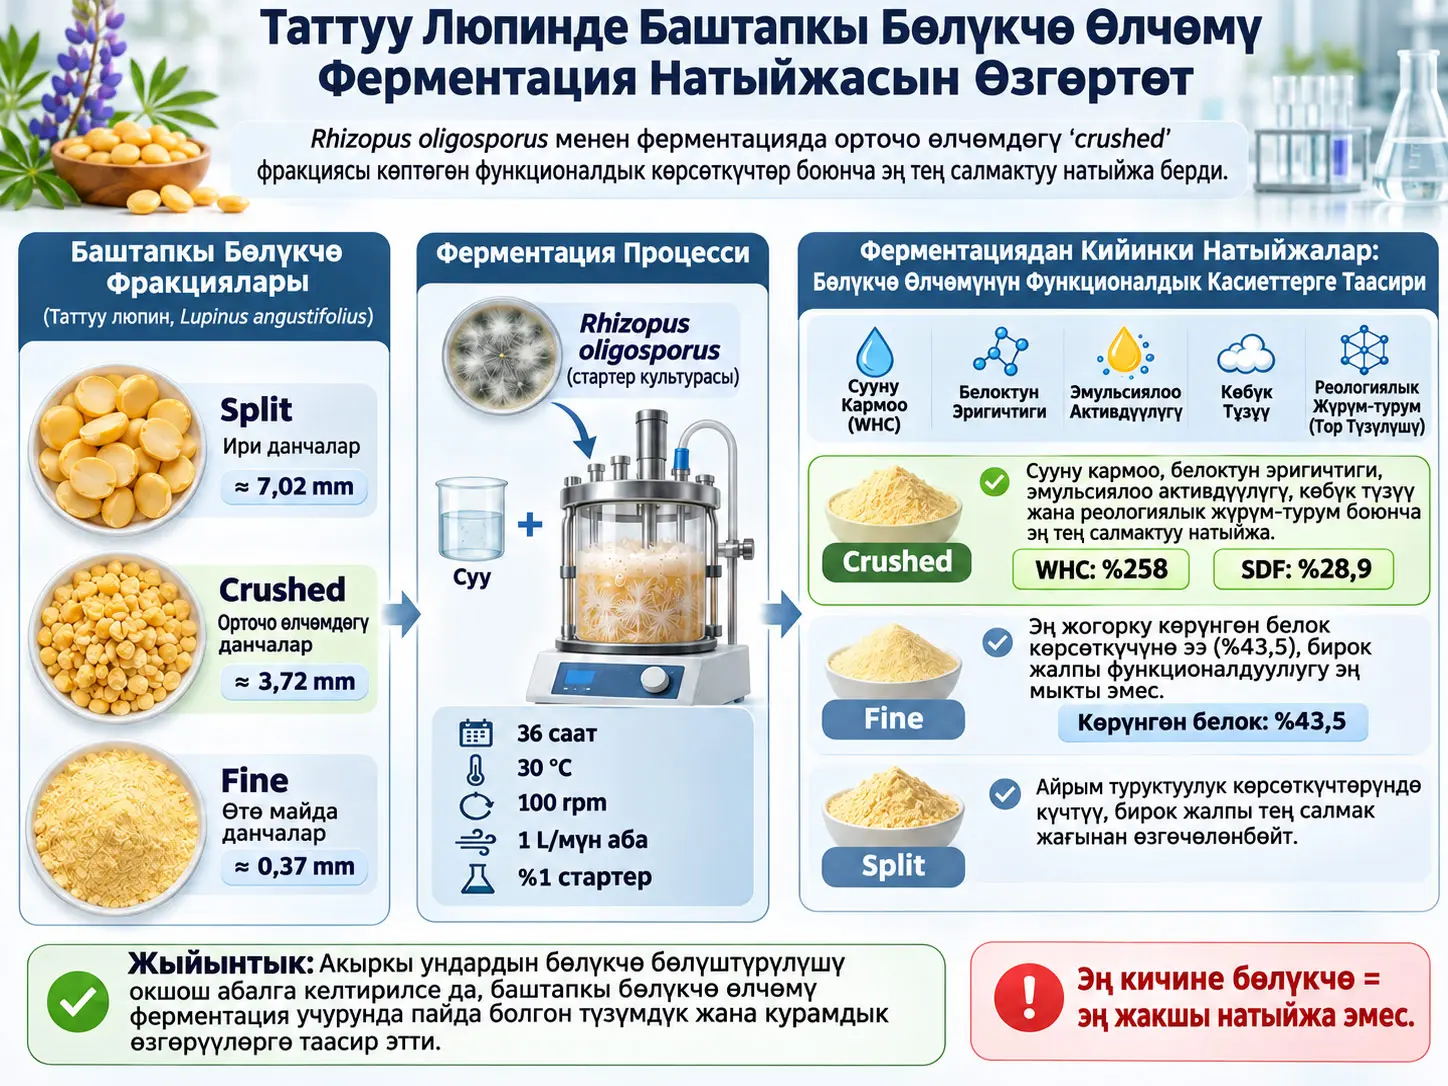
Rhizopus oligosporus менен ферментацияланган таттуу люпин уну — Lupinus angustifolius уруктарынын баштапкы бөлүкчө өлчөмүн өзгөртүп, көзөмөлдөнгөн ферментациядан өткөрүп, андан кийин кургатып жана майдалоо аркылуу алынган өсүмдүк негизиндеги азык-түлүк компоненти. Изилдөө ферментация башталганга чейин люпинди split, crushed жана fine деп аталган үч башка физикалык өлчөмгө бөлүүнүн, бирдей ферментация шарттарында алынган ундун химиялык курамын, белок түзүлүшүн, суу жана май кармоосун, гелденишин, эмульсияланышын, көбүктөнүшүн, эригичтигин жана реологиялык жүрүм-турумун өзгөртөбү же жокпу, ошону изилдеген.
Баштапкы орточо Feret диаметрлери split фракциясы үчүн 7,02 ± 1,60 mm, crushed фракциясы үчүн 3,72 ± 0,56 mm жана fine фракциясы үчүн 0,37 ± 0,25 mm болуп өлчөнгөн. Үч топ тең 36 саат, 30 °C, 100 rpm жана 1 L/dak аэрация шарттарында, %1 коммерциялык tempeh стартерин колдонуу менен бирдей ферментацияланган. Ферментациядан кийин бардык продуктулар тоңдуруп кургатылган, майдаланган жана 1 mm электен өткөрүлгөн. Бул стандартташтыруунун натыйжасында акыркы ундардын D10, D50 жана D90 бөлүкчө бөлүштүрүүлөрүнүн ортосунда маанилүү айырма калган эмес. Ошондуктан кийинки функционалдык айырмачылыктар акыркы ундун дан өлчөмүнөн гана эмес, ферментация учурунда ар башка баштапкы физикалык түзүлүштөрдө пайда болгон курамдык жана молекулалык өзгөрүүлөрдөн келип чыккан деп эсептелет.
Ферментация бардык бөлүкчө топторунда майдын курамын азайтып, азыктык буланын бөлүштүрүлүшүн өзгөрткөн. Эң жогорку көрүнгөн белок үлүшү %43,5 менен ферментацияланган fine фракциясында байкалганы менен, эң күчтүү жалпы функционалдык көрсөткүч fine фракциясында алынган эмес. Орточо өлчөмдөгү crushed фракциясы %258 суу кармоо жөндөмү, pH 2–8 аралыгында эң жогорку эмульсиялоо активдүүлүгү жана көбүк түзүү жөндөмү, эң жогорку белок эригичтиги жана эң күчтүү вискоэластикалык тармак жүрүм-туруму менен көптөгөн көрсөткүчтөрдө айырмаланган. Crushed фракциясы ошондой эле %28,9 эрүүчү азыктык була курамы менен башка топтордон ачык айырмаланган.
Натыйжалар бөлүкчө өлчөмүнүн таасири сызыктуу эмес экенин көрсөтөт. Өтө чоң бөлүкчөлөр микроорганизмдер менен ферменттердин субстратка жетүүсүн чектей алса, өтө майда бөлүкчөлөр да жакшыраак функционалдуулукту кепилдеген эмес. Авторлор муну майда бөлүкчөлөрдүн тыгыз жайгашуусу, көзөнөк көлөмүнүн азайышы жана кычкылтек өткөрүлүшүндөгү мүмкүн болгон чектөөлөр менен байланыштуу болушу мүмкүн деп талкуулашат; бирок изилдөөдө кычкылтек трансфери, козу карын биомассасы, фермент активдүүлүгү же субстратты пайдалануунун майда-чүйдө кинетикасы түз өлчөнгөн эмес. Демек бул механизмдер түз эксперименттик далил эмес, алынган табылгалардын адабиятка таянган түшүндүрмөлөрү.
Изилдөөнүн колдонмо жагынан эң маанилүү жыйынтыгы — “эң майда майдалоо эң жакшы ферментацияны берет” деген жөнөкөй эреженин колдоого алынбаганы. Crushed фракциясы жалпысынан эң тең салмактуу натыйжаларды берген болсо да, бардык функционалдык касиеттер боюнча бир фракция үстөм эмес. Мисалы, эмульсиялоо активдүүлүгү жана көбүк түзүү жөндөмү crushed фракциясында жогору болсо, эмульсия жана көбүк туруктуулугунда split фракциясы жогорураак маанилерди көрсөткөн. Ошондуктан ылайыктуу баштапкы бөлүкчө өлчөмү өндүрүлө турган азык-түлүктүн кайсы касиети талап кылынарына жараша тандалышы керек.
Изилдөөнүн негизги маселеси
Люпин белок курамы жогору болгондуктан өсүмдүк негизиндеги азык-түлүк өндүрүшүндө бааланган буурчак өсүмдүгү. Бирок өсүмдүк чийки затынын белогу гана көп болушу анын азык-түлүк өндүрүшүндө жакшы эмульсиялоочу, жакшы көбүк түзүүчү, күчтүү гел түзүүчү же сууну жакшы кармоочу компонент болорун билдирбейт. Белоктон тышкары була, липид, полисахарид, крахмал жана башка компоненттер да технологиялык жүрүм-турумга таасир берет.
Ферментация өсүмдүк матрицасындагы чоң молекулаларды жана клеткалык түзүлүштөрдү өзгөртө алат. R. oligosporus салттуу tempeh өндүрүшү менен байланышкан жегенге жарамдуу жипче сымал козу карын. Бул изилдөөдө таза лабораториялык изоляттын ордуна RAPRIMA аттуу коммерциялык, азык-түлүк класстагы tempeh стартери колдонулган; булак бул стартер негизги ферментация микроорганизми катары R. oligosporus камтарын билдирет.
Изилдөөнүн негизги суроосу “ферментация люпинди өзгөртөбү?” деген гана суроо эмес. Негизги суроо — бир эле люпин бирдей шарттарда ферментацияланганда баштапкы бөлүкчөнүн физикалык өлчөмү канчалык маанилүү экендиги.
Бөлүкчө Өлчөмү Ферментацияда Эмне Үчүн Маанилүү?
Баштапкы бөлүкчө өлчөмү микроорганизм субстраттын бетине жетчү аянтка, нымдын бөлүштүрүлүшүнө, ферменттердин өсүмдүк тканына жетүү аралыгына жана ферментация матрицасындагы боштук түзүлүшүнө таасир бере алган процесс өзгөрмөсү. Ошол эле учурда бул изилдөө бөлүкчө майдаган сайын натыйжалуулук тынымсыз жогорулай турганын көрсөткөн эмес; орточо өлчөмдөгү crushed фракциясы көптөгөн функционалдык көрсөткүчтөрдө эң ылайыктуу тең салмакты камсыз кылган.
Экспериментте үч баштапкы фракция кантип түзүлгөн?
Азык-түлүк класстагы кабыгы алынган split L. angustifolius уруктары Австралиядагы Lupin Co. компаниясынан LupinQ коммерциялык аталышы менен алынган. Булак продуктунун баштапкы нымдуулугун %9–10 деп көрсөтөт.
Үч баштапкы физикалык топ колдонулган:
- Split: жеткирүүчүдөн келген кабыгы алынган, бөлүнгөн люпин.
- Crushed: кургак майдалоодон кийин 2,0 mm электен өткөрүлгөн фракция.
- Fine: кургак майдалоодон кийин 1,0 mm электен өткөрүлгөн дагы майда фракция.
Электин тешигинин өлчөмү менен чыныгы бөлүкчөнүн Feret диаметри бир эле чоңдук эмес. Бөлүкчөлөр туура эмес формада болгондуктан изилдөөчүлөр сүрөт анализинде Feret диаметрин колдонушкан. Feret диаметри — бөлүкчөнүн чек арасындагы эки чекиттин ортосундагы эң узун калипер аралык. Минималдуу Feret диаметри болсо бөлүкчөнүн кыскараак калипер өлчөмүн билдирет.
Ферментация шарттары
Ар бир баштапкы фракциядан 420 g алынып, 840 mL суу менен аралаштырылып, 20 мүнөт кайнатылган. Бышырылган субстраттар сүзүлүп, 20–22 °C бөлмө температурасында 15 мүнөт аба менен муздатылып, бышырылган масса катталган.
Субстратка масса боюнча %1 RAPRIMA коммерциялык tempeh стартери кошулган. Инокуляцияланган люпин кошумча 1 L MilliQ суу менен аралаштырылып, BioFlo/Celligen 115 көзөмөлдөнгөн биореакторунда 36 саат бою 30 °C, 100 rpm жана 1 L/dak аба агымында ферментацияланган. Бирдей стартер деңгээли жана бирдей процесс шарттары үч баштапкы бөлүкчө тобуна тең колдонулган.
Булак текстте изилдөө айрым жерлерде катуу фазалуу ферментация адабиятынын контекстинде талкууланат. Бирок чыныгы эксперименттик түзүлүштө олуттуу көлөмдө суу кошулган, аралаштырылган жана аэрацияланган көзөмөлдөнгөн биореактор колдонулган. Ошондуктан бул жерде процесс булакта берилген чыныгы эксперимент параметрлери аркылуу сүрөттөлөт; анын классикалык катуу фазалуу ферментация түзүлүшү экени өзүнчө божомолдонбойт.
Баштапкы жана ферментация соңундагы бөлүкчө өлчөмдөрү
| Баскыч | Фракция | Feret диаметри, dF (mm) | Минималдуу Feret диаметри (mm) |
|---|---|---|---|
| Баштапкы | Split | 7,02 ± 1,60 | 6,21 ± 1,04 |
| Баштапкы | Crushed | 3,72 ± 0,56 | 2,92 ± 0,92 |
| Баштапкы | Fine | 0,37 ± 0,25 | 0,15 ± 0,07 |
| 36 сааттан кийин | Split | 8,50 ± 1,72 | 7,20 ± 2,84 |
| 36 сааттан кийин | Crushed | 5,10 ± 1,21 | 4,41 ± 1,02 |
| 36 сааттан кийин | Fine | 0,61 ± 0,09 | 0,27 ± 0,07 |
Булактын натыйжалар бөлүмүндө орточо Feret жана минималдуу Feret диаметрлери сан жагынан көбөйгөнүнө карабастан, бир фракциянын ичиндеги баштапкы–акыркы айырмачылыктар статистикалык жактан маанилүү эмес экени, \(p>0.05\), айтылат. Ал эми талкуу бөлүмүндөгү башка бир сүйлөм split жана crushed фракциялары үчүн “маанилүү өсүү” деген сөздү колдонот. Булактын ичиндеги бул карама-каршылыкка байланыштуу Verianla тексти ферментация бөлүкчө диаметрин сөзсүз маанилүү түрдө көбөйткөн деген жыйынтык чыгарбайт.
Бөлүкчө бөлүштүрүү класстарын караганда визуалдык бөлүштүрүүлөр чоңураак класстарга жылганы байкалган. Баштапкы учурда fine бөлүкчөлөрдүн болжол менен %95и 0,50 mm ден төмөн болсо, ферментациядан кийин fine фракциясынын болжол менен %64ү 0,5–1,0 mm классына жайгашкан. Crushed фракциясы ферментациядан кийин негизинен 4–8 mm класстарына, split фракциясы болсо негизинен 6–10 mm жана андан жогорку класстарга жылган. Бул бөлүштүрүү өзгөрүүлөрү орточо диаметр үчүн билдирилген маанилүүлүк жыйынтыгынан өзүнчө бааланышы керек.
Эң Майда Люпин Бөлүкчөлөрү Эмне Үчүн Эң Жакшы Функционалдык Натыйжаны Берген Жок?
Майдараак бөлүкчөлөр чоңураак бет аянтын жана кыскараак диффузия аралыкты камсыз кыла алганы менен, бул изилдөө артыкчылык сызыктуу эмес экенин көрсөткөн; өтө майдаланган субстраттын тыгыз жайгашуусу көзөнөк көлөмүн жана мүмкүн болгон кычкылтек трансферин чектеп, белок/була матрицасында функция үчүн керектүү түзүлүштүк тартиптин өтө өзгөрүшүнө алып келиши мүмкүн. Бирок кычкылтек трансфери, фермент активдүүлүгү жана козу карын биомассасы түз өлчөнбөгөндүктөн, булар crushed фракциясынын артыкчылыгын так далилдеген механизмдер эмес, авторлор табылгаларды түшүндүрүү үчүн талкуулаган мүмкүн болгон процесстер.
Акыркы ун бөлүкчө өлчөмдөрү эмне үчүн маанилүү көзөмөл түзөт?
Ферментация аяктагандан кийин бардык ферментацияланган үлгүлөр жана ферментацияланбаган көзөмөл бирдей тоңдуруп кургатылып, майдаланып, 1 mm электен өткөрүлгөн. Mastersizer анализинде акыркы продуктулардын D10 маанилери 12,83–13,70 µm, D50 маанилери 166,67–171,67 µm жана D90 маанилери 710,00–799,67 µm аралыгында болуп, топтордун ортосунда маанилүү айырма табылган эмес, \(p>0.05\).
Бул натыйжа эксперименттик дизайндагы маанилүү пункттардын бири. Функционалдык тесттерде колдонулган акыркы ундардын өлчөм бөлүштүрүүлөрү бири-бирине окшош кылынгандыктан, crushed, split жана fine топторунун кийинки айырмачылыктарын “бир ун майдараак болчу” деп гана түшүндүрүүгө болбойт. Айырмачылыктар ферментацияга кирген чийки заттын баштапкы физикалык түзүлүшүнө байланышкан ферментация таасирлерин чагылдырат.
Кургак заттын курамы жана кургак затты кайра алуу
Кургак зат (dry matter, DM) ферментациянын 0, 12, 24 жана 36 сааттык убакыт чекиттеринде бааланган. Булак кургак заттын пайызын төмөнкү теңдеме менен эсептеген:
\[ DM(\%)=\frac{W_{FD}}{W_{wet}}\times100 \]
Формула эмнени эсептейт? Нымдуу ферментация үлгүсүнүн канча бөлүгү тоңдуруп кургаткандан кийин кургак зат болуп калганын көрсөтөт.
\(W_{FD}\): Тоңдуруп кургатылган үлгүнүн грамм менен массасы.
\(W_{wet}\): Ошол эле үлгүнүн кургатууга чейинки нымдуу массасы.
Математикалык мааниси: Кургак массанын нымдуу массага катышы пайызга айландырылат. Суунун үлүшү көбөйгөн сайын бирдей кургак зат үчүн DM пайызы төмөндөйт.
Кургак затты кайра алуу болсо:
\[ DMR(\%)=\frac{DM_{final}}{DM_{initial}}\times100 \]
\(DM_{initial}\): Ферментация системасына башында берилген жалпы кургак зат.
\(DM_{final}\): Ферментация соңунда өлчөнгөн кургак заттын курамы жана жалпы ферментация массасынан эсептелген калган кургак зат.
Түшүндүрмө: %100гө жакын DMR баштапкы кургак заттын чоң бөлүгү процесс соңунда кайра алынганын көрсөтөт. Split фракциясында DMR %97,20 ± 0,84, crushed фракциясында %95,52 ± 1,30 жана fine фракциясында %94,53 ± 1,37 болгон. Сан жагынан бөлүкчө майдаган сайын кайра алуу азайгандай көрүнсө да, топтордун айырмасы маанилүү эмес, \(F=3.841\), \(p=0.084\).
Ферментация убактысы DM курамын маанилүү өзгөрткөн эмес, \(F=2.090\), \(p=0.137\); убакыт × бөлүкчө фракциясы өз ара таасири да маанилүү эмес, \(F=0.910\), \(p=0.510\). Ал эми бөлүкчө фракциясынын негизги таасири маанилүү, \(F=11.933\), \(p=0.008\), жарым-жартылай \(\eta^2=0.799\). Убакыттар боюнча орточо DM split үчүн %24,25 ± 0,15, crushed үчүн %23,59 ± 0,53 жана fine үчүн %22,86 ± 0,20.
Жакын курам кандай өзгөрдү?
Белок Dumas ыкмасы жана 5,7 азот-белок конверсия коэффициенти менен; ным, күл, май, крахмал жана азыктык була тиешелүү AOAC ыкмалары менен өлчөнгөн. Көмүрсуунун көлөмү түз аналитикалык өлчөө ордуна айырма ыкмасы менен эсептелген:
\[ CHO(\%)=100-\left[MC(\%)+CP(\%)+Fat(\%)+Ash(\%)\right] \]
\(MC\): нымдуулук; \(CP\): чийки белок; Fat: май; Ash: күлдүн курамы.
Ошондуктан “көмүрсуу” мааниси өзүнчө көмүрсуу анализи эмес; өлчөнгөн башка негизги компоненттердин суммасын 100дөн алып салуу менен алынган айырма мааниси.
| Үлгү | Күл (%) | Чийки белок (%) | Май (%) | IDF (%) | SDF (%) | Крахмал (%) | Айырма боюнча көмүрсуу (%) |
|---|---|---|---|---|---|---|---|
| Ферментацияланбаган | 2,9 ± 0,1 | 37,1 ± 0,5 | 6,5 ± 0,3 | 35,6 ± 1,2 | 10,3 ± 0,6 | 0,40 ± 0,05 | 48,7 ± 0,8 |
| Ферментацияланган split | 3,1 ± 0,1 | 32,2 ± 0,6 | 4,7 ± 0,3 | 20,03 ± 2,9 | 6,93 ± 4,2 | 0,35 ± 0,04 | 55,2 ± 1,2 |
| Ферментацияланган crushed | 3,3 ± 0,1 | 39,5 ± 0,7 | 2,7 ± 0,2 | 10,6 ± 0,8 | 28,9 ± 1,5 | 0,33 ± 0,04 | 50,2 ± 1,0 |
| Ферментацияланган fine | 3,5 ± 0,1 | 43,5 ± 0,8 | 2,0 ± 0,2 | 16,23 ± 1,0 | 13,7 ± 0,6 | 0,24 ± 0,03 | 47,0 ± 1,0 |
Ферментацияланган fine фракциясы %43,5 менен эң жогорку көрүнгөн белок концентрациясын көрсөткөн. Бирок бул маанини “козу карын жаңы белок өндүрүп, жалпы белок массасы ушунча көбөйдү” деп түшүндүрүү туура эмес. Изилдөөдө белок массасынын балансы же козу карын биомассасы түз өлчөнгөн эмес. Башка компоненттердин сарпталышы же азайышы белоктун жалпы кургак заттагы салыштырмалуу пайызын жогорулата алат.
Майдын курамы бардык ферментацияланган топтордо төмөндөгөн: %6,5тен splitте %4,7ге, crushedда %2,7ге жана fineда %2,0га. Булак липолитикалык активдүүлүктү мүмкүн болгон түшүндүрмөлөрдүн бири катары талкуулайт; бирок липаза активдүүлүгү өлчөнбөгөндүктөн, бул төмөндөө түз өлчөнгөн липаза таасири эмес.
Азыктык буланын өзгөрүшү айрыкча crushed фракциясында көңүл бурууга арзыйт. Эрибеген азыктык була (IDF) %35,6дан %10,6га түшүп, эрүүчү азыктык була (SDF) %28,9га көтөрүлгөн. Булак муну түзүлүштүк полисахариддердин өзгөрүшү же эрүүчү абалга өтүшү менен байланыштырат; бирок тиешелүү козу карын ферменттери түз өлчөнгөн эмес.
Аминокислота профили
Аминокислоталар HCl гидролизинен кийин AccQ-Tag дериватизацияланган тескери фазалуу HPLC менен өлчөнгөн; цистеин жана метионин үчүн performic acid кычкылдануусу колдонулган.
| Аминокислота | Ферментацияланбаган | Ферментацияланган split | Ферментацияланган crushed | Ферментацияланган fine |
|---|---|---|---|---|
| Фенилаланин | 1,66 ± 0,11 | 1,57 ± 0,02 | 1,66 ± 0,02 | 1,78 ± 0,01 |
| Гистидин | 0,70 ± 0,01 | 0,62 ± 0,01 | 0,64 ± 0,14 | 0,65 ± 0,21 |
| Изолейцин | 1,64 ± 0,02 | 1,55 ± 0,02 | 1,69 ± 0,02 | 1,60 ± 0,02 |
| Лейцин | 2,56 ± 0,32 | 2,48 ± 0,11 | 2,58 ± 0,14 | 2,64 ± 0,17 |
| Лизин | 1,95 ± 0,02 | 1,74 ± 0,02 | 1,84 ± 0,02 | 1,83 ± 0,02 |
| Метионин | 0,30 ± 0,02 | 0,30 ± 0,02 | 0,42 ± 0,02 | 0,45 ± 0,02 |
| Треонин | 1,37 ± 0,05 | 1,29 ± 0,13 | 1,33 ± 0,12 | 1,17 ± 0,11 |
| Валин | 1,68 ± 0,13 | 1,60 ± 0,24 | 1,77 ± 0,34 | 1,88 ± 0,02 |
| Жалпы алмашкыс аминокислота | 11,86 ± 0,68 | 11,15 ± 0,57 | 12,33 ± 0,96 | 12,00 ± 0,58 |
| Аспарагин кислотасы | 3,97 ± 0,02 | 3,70 ± 0,11 | 3,73 ± 0,12 | 3,12 ± 0,04 |
| Серин | 2,08 ± 0,13 | 1,92 ± 0,01 | 1,75 ± 0,02 | 1,41 ± 0,21 |
| Глутамин кислотасы | 10,72 ± 0,03 | 7,94 ± 0,02 | 7,36 ± 0,02 | 10,68 ± 0,11 |
| Пролин | 1,84 ± 0,03 | 1,60 ± 0,02 | 1,69 ± 0,02 | 1,63 ± 0,04 |
| Глицин | 1,60 ± 0,04 | 1,82 ± 0,11 | 1,75 ± 0,12 | 2,08 ± 0,03 |
| Аланин | 1,36 ± 0,12 | 1,28 ± 0,02 | 1,87 ± 0,04 | 1,99 ± 0,02 |
| Тирозин | 1,92 ± 0,12 | 1,74 ± 0,22 | 1,86 ± 0,12 | 2,00 ± 0,02 |
| Аргинин | 4,45 ± 0,10 | 3,88 ± 0,14 | 2,59 ± 0,12 | 1,84 ± 0,11 |
| Цистеин | 0,35 ± 0,04 | 0,32 ± 0,03 | 0,33 ± 0,11 | 0,40 ± 0,14 |
| Жалпы алмашма аминокислота | 28,29 ± 0,63 | 23,20 ± 0,88 | 22,93 ± 0,83 | 25,15 ± 0,68 |
Crushed жана fine фракцияларынын жалпы алмашкыс аминокислота маанилери split фракциясынан жогору. Метионин crushed жана fine фракцияларында көбөйгөндө, аргинин бардык ферментацияланган топтордо азайган. Булак аргининдин азайышын козу карын метаболизми менен, айрым аминокислоталардын көбөйүшүн белок гидролизи жана аминокислота метаболизми менен байланыштырат; бирок тиешелүү метаболизмдик агымдар же фермент активдүүлүктөрү түз өлчөнгөн эмес.
Түс айырмасы кантип эсептелген?
Түс Minolta CR-400 колориметри менен, D65 жарыктандыруучу, 10° стандарттык байкоочу жана 8 mm өлчөө апертурасын колдонуп CIE L*a*b* системасында өлчөнгөн.
\[ \Delta E_{ab}^{*}= \sqrt{ (L_2^{*}-L_1^{*})^2+ (a_2^{*}-a_1^{*})^2+ (b_2^{*}-b_1^{*})^2 } \]
Формула эмнени эсептейт? Ферментацияланган үлгү менен ферментацияланбаган эталондун ортосундагы жалпы түс аралыкты эсептейт.
\(L^*\): жарык-караңгы огу; \(a^*\): кызыл-жашыл огу; \(b^*\): сары-көк огу.
Үч октогу айырмачылыктардын квадраттары кошулгандыктан, белгилер бири-бирин жокко чыгарбайт; жалпы геометриялык түс аралык алынат.
| Үлгү | L* | a* | b* | ΔE |
|---|---|---|---|---|
| Ферментацияланбаган | 63,71 ± 5,42 | 6,43 ± 1,57 | 36,53 ± 8,33 | — |
| Ферментацияланган split | 64,57 ± 6,28 | 6,11 ± 1,52 | 36,01 ± 8,72 | 1,38 ± 0,57 |
| Ферментацияланган crushed | 65,98 ± 7,32 | 6,16 ± 1,23 | 35,71 ± 7,62 | 2,75 ± 0,72 |
| Ферментацияланган fine | 63,58 ± 9,52 | 6,32 ± 1,28 | 36,32 ± 8,26 | 0,63 ± 0,43 |
Булак ичиндеги түс боюнча эскертүү: Натыйжалар бөлүмүнүн алгачкы сүйлөмдөрүнүн бири ферментация жана бөлүкчө өлчөмү L* жана a* маанилеринде маанилүү айырма жаратканын билдирет; дароо кийинки сүйлөм болсо L* үчүн гана маанилүү таасир бар экенин жана a* менен b* таасирленбегенин айтат. Таблица 4тө a* жана b* мамычалары бардык топтордо бирдей статистикалык тамганы алып жүрөт. Ошондуктан Verianla тексти L* айырмасы гана ачык колдоого алынганын кабыл алып, a* боюнча карама-каршылыкты жашырбайт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Суу жана май кармоо жөндөмү
Суу кармоо жөндөмү (WHC) жана май кармоо жөндөмү (OHC) үчүн 1 g ун 10 mL дистилденген суу же канола майы менен 30 секунд vortex аркылуу аралаштырылып, 30 мүнөт тең салмакталган жана 5000×gде 30 мүнөт центрифугаланган. Бөлүнгөн үстүнкү фазанын көлөмү өлчөнүп, WHC/OHC кургак салмак негизинде эсептелген. Булак WHC жана OHC үчүн ачык математикалык теңдеме бербейт; ошондуктан бул жерде булактан тышкаркы формула кошулган эмес.
| Үлгү | WHC (%) | OHC (%) | LGC (%) |
|---|---|---|---|
| Ферментацияланбаган | 223 ± 8,62 | 209 ± 6,52 | 14 |
| Ферментацияланган split | 238 ± 6,58 | 196 ± 8,80 | 12 |
| Ферментацияланган crushed | 258 ± 8,11 | 207 ± 6,25 | 13 |
| Ферментацияланган fine | 236 ± 6,52 | 205 ± 6,55 | 13 |
Crushed фракциясы %258 менен эң жогорку WHC маанисин берген. OHC боюнча ферментацияланбаган ун %209 менен эң жогорку, split %196 менен эң төмөн мааниге ээ. Демек ферментациянын суу кармоону жакшыртышы май кармоону да ошол эле багытта көбөйтөт дегенди билдирбейт.
Эң төмөн гелденүү концентрациясы (least gelation concentration, LGC) 2–20% w/v аралыгында, %2лик өсүштөр менен даярдалган суспензияларда аныкталган. Үлгүлөр 80 °Cде 1 саат ысытылып, тез муздатылып, 4 °Cде 2 саат кармалган. Түтүк тескери бурулганда акпаган биринчи концентрация LGC деп кабыл алынган. Төмөн LGC ундун төмөнүрөөк концентрациясында гел түзө алуу дегенди билдирет. Ферментацияланган split %12 менен эң төмөн LGCни берген.
Эмульсиялоо активдүүлүгү жана туруктуулугу
%1 w/v люпин уну дисперсиялары pH 2, 4, 6 жана 8ге жөндөлүп, 10 мүнөт жогорку ылдамдыктагы гомогенизация колдонулган. Бешинчи мүнөттө 100 mL канола майы жай кошулган. Система 2000×gде 10 мүнөт центрифугалангандан кийин эмульсиялоо активдүүлүгү эмульсияланган катмардын бийиктигинин жалпы аралашма бийиктигине катышы катары эсептелген.
Эмульсия туруктуулугу ошол эле эмульсияларды 80 °Cде 30 мүнөт ысытуу, 15 мүнөт муздатуу жана 2000×gде 15 мүнөт центрифугалоо менен бааланган.
Crushed фракциясы бардык pH маанилеринде эң жогорку эмульсиялоо активдүүлүгүн берген: pH 2де %47,60 ± 9,42; pH 4тө %43,20 ± 7,11; pH 6да %48,20 ± 9,71 жана pH 8де %48,80 ± 8,24.
Ал эми эмульсия туруктуулугунда split фракциясы бардык pH маанилеринде эң жогорку көрсөткүчтөрдү берген: тиешелүүлүгүнө жараша %41,30 ± 40,72; %39,00 ± 8,11; %47,00 ± 8,81 жана %47,40 ± 1,34. Бул натыйжа “жогорку эмульсиялоо активдүүлүгү = сөзсүз жогорку туруктуулук” деген теңдик жок экенин көрсөтөт.
Көбүк түзүү жана көбүк туруктуулугу
Көбүк экспериментинде %1 w/v суспензиялар pH 2, 4, 6 жана 8ге жөндөлүп, кол миксери менен жогорку ылдамдыкта 5 мүнөт чалынган. Көбүк түзүү жөндөмү баштапкы суспензия көлөмүнө салыштырмалуу пайда болгон көбүк көлөмү менен бааланган; көбүк туруктуулугу бөлмө температурасында 2 саат кармагандан кийин калган көбүктүн баштапкы көбүк көлөмүнө катышы менен аныкталган.
Crushed фракциясы pH 2, 4, 6 жана 8де тиешелүүлүгүнө жараша %35,10 ± 8,87; %23,10 ± 4,46; %50,00 ± 8,61 жана %55,70 ± 7,65 менен эң жогорку көбүк түзүү жөндөмүн көрсөткөн.
Көбүк туруктуулугунда split фракциясы тиешелүүлүгүнө жараша %24,52 ± 4,22; %15,66 ± 3,12; %43,85 ± 8,21 жана %49,36 ± 9,24 менен эң жогорку маанилерди берген. Crushed фракциясынын жогорку көбүк түзүү жөндөмү ал түзгөн көбүк эң туруктуу дегенди билдирбейт.
Белок эригичтиги жана pH таасири
Белок эригичтиги үчүн %2 w/w люпин уну суспензиясы даярдалып, pH 2, 4, 6 же 8ге жөндөлгөн, 1 саат аралаштырылган жана 17.000×gде 30 мүнөт центрифугаланган. Үстүнкү фаза тоңдуруп кургатылып, белок Kjeldahl ыкмасы менен 5,7 азот-белок конверсия коэффициентин колдонуп өлчөнгөн.
| Үлгү | pH 2 | pH 4 | pH 6 | pH 8 |
|---|---|---|---|---|
| Ферментацияланбаган | 30,57 ± 7,11 | 22,50 ± 5,61 | 58,20 ± 11,24 | 61,10 ± 9,21 |
| Ферментацияланган split | 31,80 ± 8,12 | 23,60 ± 5,21 | 60,50 ± 8,14 | 62,90 ± 8,80 |
| Ферментацияланган crushed | 33,50 ± 9,22 | 24,80 ± 4,31 | 62,50 ± 8,62 | 64,80 ± 11,61 |
| Ферментацияланган fine | 29,00 ± 7,24 | 21,80 ± 4,92 | 56,50 ± 10,61 | 59,00 ± 10,24 |
Бардык үлгүлөрдө эң төмөн эригичтик pH 4 чамасында, эң жогорку эригичтик pH 6–8 аралыгында байкалган. Crushed фракциясы сыналган бардык pH маанилеринде ферментацияланган топтордун ичинде эң жогорку эригичтик мааниге ээ.
Акыркы Ундардын Бөлүкчө Өлчөмү Окшош Болсо, Баштапкы Бөлүкчө Өлчөмү Кантип Дагы Эле Таасир Бере Алат?
Функционалдык тесттерден мурда бардык үлгүлөр бирдей кургатуу, майдалоо жана 1 mm электен өткөрүү процессинен өткөндүктөн жана акыркы D10/D50/D90 бөлүштүрүүлөрү маанилүү айырмаланбагандыктан, өлчөнгөн функционалдык айырмачылыктарды акыркы порошоктун физикалык дан өлчөмү менен гана түшүндүрүүгө болбойт; изилдөө бул айырмачылыктарды ферментация учурунда баштапкы субстрат түзүлүшүнүн белокко, булага, липидге жана молекулалык уюшууга жараткан ар кандай өзгөрүүлөрү менен байланыштырат.
Реологиялык эксперименттер эмнени өлчөйт?
Реология азык-түлүк системасынын деформация жана агымга карата механикалык жүрүм-турумун изилдейт. Изилдөөдө 40 mm параллелдүү болот пластинасы жана 2 mm пластиналар аралык боштугу бар Anton Paar Physica MCR301 реометри колдонулган.
Сактоо модулу \(G'\) үлгү эластикалык түрдө сактаган энергия менен байланыштуу. Жогорку \(G'\) күчтүүрөөк катуу сымал/эластикалык тармак жүрүм-турумун көрсөтөт.
Жоготуу модулу \(G''\) деформация энергиясынын вискоздук жүрүм-турум аркылуу жоголгон бөлүгүн билдирет.
Жоготуу тангенси:
\[ \tan\delta=\frac{G''}{G'} \]
Бул теңдеме булакта өзүнчө номерленген теңдеме катары берилбесе да, булак \(G'\), \(G''\) жана \(\tan\delta\) метрикаларын бирге колдонот; бул жерде ал метрикалардын өз ара байланышын концептуалдык түшүндүрүү үчүн гана көрсөтүлгөн. \(\tan\delta<1\) болгондо эластикалык компонент вискоздук компоненттен үстөм болот.
Булактын ыкма бөлүмүндө strain sweep %0,001–100 аралыгында жүргүзүлүп, кийинки эксперименттер үчүн LVR ичинде %0,01 деформация тандалганы жазылган. Ал эми натыйжалар бөлүмүндө %0,03 мааниси колдонулганы көрсөтүлгөн. Чынында кайсы маани колдонулганын макаланын өзүнөн так чечүүгө болбойт; ошондуктан эки маани тең булак ичиндеги дал келбестик катары сакталышы керек.
Мындан тышкары ыкма бөлүмү ун пасталарын “%25 w/w moisture content” деп аныктаса, натыйжалар бөлүмү температура сканындагы үлгүлөрдү “%25 w/v dispersions” деп атайт. Бул концентрация бирдигине байланышкан экинчи белгисиздик; Verianla бул эки айтылыштын бирин унчукпай экинчисине айландырбайт.
Температура сканы
Булак ыкмасына ылайык үлгүлөр 25 °Cден 95 °Cге 4 °C/dak ылдамдыкта ысытылып, 95 °Cде 30 секунд кармалып, ошол эле ылдамдыкта 25 °Cге муздатылып, 25 °Cде дагы 30 секунд күтүлгөн. Ным жоготууну азайтуу үчүн үлгүнүн четине жука минералдык май катмары колдонулган.
Бардык үлгүлөрдө \(G'>G''\) жана \(\tan\delta<1\) табылган. Бул бардык люпин пасталарында эластикалык компонент вискоздук компоненттен үстөм экенин көрсөтөт.
Crushed фракциясы ысытуу жана муздатуу учурунда эң жогорку \(G'\) маанилерин көрсөткөн. Температура жогорулаган сайын \(G'\) жана \(G''\) жалпысынан төмөндөп, муздоо учурунда жарым-жартылай калыбына келүү болгон.
Crushed фракциясынын \(\tan\delta\) маанилери болжол менен 0,12–0,17 менен эң төмөн; ферментацияланбаган ундун маанилери болсо болжол менен 0,29–0,36 менен эң жогорку аралыктa болгон. Ошондуктан ферментацияланбаган ун айрым шарттарда салыштырмалуу жогорку \(G'\) көрсөткөнү менен, вискоздук энергия жоготуусунун эластикалык компонентке катышы жогору. Тармактын сапатын \(G'\) маанисине гана карап баалоого болбойт.
Жыштык сканы
Жыштык сканында булак 25 °Cде 0,01–10 Hz аралыгы колдонулганын билдирет. Булак муну “angular frequency” деп атаганы менен, бирдикти Hz деп берет; Verianla булакта жок rad/s айландыруусун жасабайт.
Жыштык көбөйгөн сайын бардык үлгүлөрдө \(G'\) да, \(G''\) да жогорулап, \(G'\) бүт аралыкта \(G''\)ден чоң бойдон калган. Жыштык сканында модул чоңдугунун ирети жалпысынан crushed > split > fine > ферментацияланбаган болуп саналат. Crushed фракциясы эң күчтүү вискоэластикалык тармак көрсөткүчүн берген.
FTIR анализи эмнени көрсөттү?
FTIR спектрлери 400–4000 cm−1 аралыгында, 4 cm−1 чечилиште жана ар бир үлгү үчүн 32 скан менен жазылган. Белоктун экинчилик түзүлүшүн баалоо үчүн Amide I аймагы, 1600–1700 cm−1, Gaussian ийри ажыратуу менен анализденген.
Ферментацияланбаган ундагы болжол менен 3303 cm−1 кең O–H/N–H тилкеси ферментацияланган үлгүлөрдө болжол менен 3275–3289 cm−1 аймагына жылган. Липидге байланышкан болжол менен 2925 жана 2850 cm−1 тилкелеринде жана болжол менен 1740 cm−1 карбонил аймагында да өзгөрүүлөр байкалган.
Ферментацияланбаган үлгүнүн Amide I максимуму болжол менен 1641 cm−1 чамасында болсо, crushed жана fine фракцияларында болжол менен 1646 cm−1ге жылган. Бул өзгөрүүлөр белок конформациясы жана анын айланасындагы молекулалык өз ара аракеттенүүлөр ферментация менен өзгөргөнүн колдойт; бир эле пиктин жылышы белгилүү бир белок реакциясын түз далилдебейт.
| Түзүлүш | Ферментацияланбаган | Ферментацияланган split | Ферментацияланган crushed | Ферментацияланган fine |
|---|---|---|---|---|
| β-sheet | 36,25 ± 3,47 | 34,35 ± 4,11 | 35,92 ± 5,11 | 35,13 ± 4,33 |
| Random coil | 15,25 ± 4,11 | 13,81 ± 2,71 | 13,48 ± 2,34 | 13,52 ± 3,14 |
| α-helix | 16,11 ± 4,33 | 15,34 ± 2,07 | 19,78 ± 4,44 | 19,44 ± 2,14 |
| β-turn | 29,26 ± 2,76 | 30,74 ± 4,31 | 27,77 ± 4,17 | 27,35 ± 5,21 |
| Aggregated strands | 2,86 ± 0,37 | 5,76 ± 1,11 | 3,04 ± 1,47 | 4,56 ± 0,78 |
β-sheet бардык топтордо үстөм түзүлүш бойдон калган. Crushed жана fine фракцияларында α-helix үлүшү жогорулап, random coil үлүшү ферментацияланбаган үлгүгө салыштырмалуу төмөндөгөн. Бул натыйжалар ферментация белокту толук денатурациялоонун ордуна экинчилик түзүлүштүн кайра уюшулушуна алып келген деп чечмеленген.
DSC: денатурация температурасы менен энтальпия бир эле нерсени көрсөтөбү?
Жок. Денатурация температурасы жылуулук өтүүсү кайсы температурада болгонун; энтальпия өзгөрүүсү \(\Delta H\) болсо ушул өтүүдө сиңген жылуулук энергиясынын көлөмүн билдирет. Ошондуктан бирдей же окшош денатурация температурасы бар эки үлгүнүн \(\Delta H\) маанилери ар башка болушу мүмкүн.
DSCде болжол менен 10 mg, %40 w/v люпин уну үлгүсү герметикалык табада 25–120 °C аралыгында 5 °C/dak ылдамдыкта ысытылып жана муздатылган.
| Үлгү | Peak 1 Td (°C) | Peak 1 ΔH (J/g) | Peak 2 Td (°C) | Peak 2 ΔH (J/g) |
|---|---|---|---|---|
| Ферментацияланбаган | 88,40 ± 10,02 | 3,30 ± 1,44 | 102,41 ± 10,24 | 2,62 ± 1,05 |
| Ферментацияланган split | 88,92 ± 8,21 | 5,10 ± 1,72 | 104,92 ± 9,14 | 3,11 ± 1,12 |
| Ферментацияланган crushed | 89,51 ± 8,43 | 6,72 ± 2,11 | 104,56 ± 9,11 | 4,71 ± 1,41 |
| Ферментацияланган fine | 88,73 ± 8,712 | 2,32 ± 1,08 | 105,47 ± 7,20 | 1,77 ± 0,52 |
Эки негизги денатурация температурасында топтордун ортосунда маанилүү айырма табылган эмес, бирок энтальпия маанилеринде маанилүү айырмалар байкалган. Crushed фракциясы эки эндотермиялык өтүүдө тең эң жогорку \(\Delta H\) маанисин көрсөткөн. Булак муну жылуулук ачылуу үчүн көбүрөөк энергия талап кылган, күчтүүрөөк же кеңири молекулалар аралык өз ара аракеттенүүлөргө шайкеш деп түшүндүрөт.
Булак ичиндеги DSC дал келбестиги: Таблица 8 crushed Peak 1 үчүн 89,51 ± 8,43 °C берсе, абзацтын биринчи сүйлөмүндө 89,51 ± 80,43 °C деп жазылган. Ошол эле таблицада crushed Peak 2 \(\Delta H\) мааниси 4,71 ± 1,41 J/g болсо, абзацта 4,71 ± 0,01 J/g деп жазылган. Ошондуктан жогорудагы таблица түпнуска Таблица 8 маанилерин түз сактайт, ал эми тексттеги эки карама-каршы маани өзүнчө белгиленет.
PCA эмнени көрсөттү?
Негизги компоненттер анализи (principal component analysis, PCA) бири-бири менен байланышкан көптөгөн өлчөөлөрдү азыраак сандагы курамдык октордо жалпылаган көп өзгөрмөлүү ыкма. PCA себептүүлүктү далилдебейт; үлгүлөр көп касиеттер боюнча бири-бирине канчалык окшош же айырмаланарын көрсөтөт.
PCA үчүн белок, крахмал, LGC, WHC, белок эригичтиги, көбүк туруктуулугу, β-sheet үлүшү жана денатурация температурасы тандалып, ар башка бирдиктердин таасирин азайтуу үчүн өзгөрмөлөр стандартташтырылган.
PC1 жалпы вариациянын %42,7син, PC2 %31,9ун түшүндүргөн; эки компонент бирге %74,6 вариацияны билдирген. Crushed фракциясы PCA упай мейкиндигинде башка топтордон айырмаланган абалды көрсөткөн. Бул абал бир эле касиетке эмес, курам, белок жүрүм-туруму, гидратация жана түзүлүштүк касиеттердин жалпы айкалышына туура келет.
PC1дин оң багыты WHC, крахмал, көбүк туруктуулугу жана белок эригичтиги менен; терс багыты белок курамы жана LGC менен байланышкан. PC2де LGC, крахмал, β-sheet жана көбүк туруктуулугу оң; денатурация температурасы терс багытта жайгашкан.
Fine фракциясы эң жогорку көрүнгөн белок үлүшүнө ээ болгонуна карабастан crushed фракциясы менен бир PCA кластеринде болбогону өзгөчө маанилүү. Бул натыйжа азык-түлүк компонентинин технологиялык сапатын белок пайызы менен гана түшүндүрүүгө болбой турганын колдойт.
Pearson корреляциясы эмнени көрсөттү?
Белок эригичтиги менен эмульсиялоо активдүүлүгү жана көбүк түзүү жөндөмүнүн ортосунда күчтүү оң байланыштар билдирилген, \(r>0.94\), \(p<0.01\). Бул байланыштар эрүүчү жана дисперсиялана алган белоктордун май–суу же аба–суу интерфейстерине оңой жетиши менен шайкеш келет.
Бирок корреляция себептүүлүк эмес. Жогорку белок эригичтиги жалгыз өзү жогорку эмульсиялоо активдүүлүгүн “жаратканын” бул анализ далилдебейт. Белок конформациясы, була курамы жана башка түзүлүштүк өзгөрмөлөр бир убакта өзгөрөт.
Статистикалык анализ
Эксперименттер кеминде үч кайталоо менен жүргүзүлүп, натыйжалар орточо ± стандарттык четтөө катары берилген. Ферментацияга чейинки жана кийинки бөлүкчө өлчөмү үчүн эки факторлуу ANOVA; башка жалпы салыштыруулар үчүн бир факторлуу ANOVA жана Tukey post-hoc тести колдонулган. Жалпы маанилүүлүк чеги \(p\leq0.05\). Анализдер SPSS 17.0 менен жүргүзүлгөн.
Кургак заттын убакыт катары натыйжалар бөлүмүндө repeated-measures ANOVA менен бааланганы да өзүнчө белгиленет.
Изилдөө колдогон жыйынтыктар
- Баштапкы субстрат бөлүкчө өлчөмү бирдей ферментация шарттарында алынган люпин унунун кийинки физика-химиялык жана функционалдык касиеттери менен байланыштуу.
- Ферментация бардык бөлүкчө топторунда майдын курамын азайткан.
- Азыктык буланын эрүүчү жана эрибеген фракциялары баштапкы бөлүкчө өлчөмүнө жараша ар башка деңгээлде өзгөргөн.
- Crushed фракциясы %258 менен эң жогорку WHCни көрсөткөн.
- Crushed фракциясы сыналган бардык pH шарттарында эң жогорку эмульсиялоо активдүүлүгүн, көбүк түзүү жөндөмүн жана белок эригичтигин көрсөткөн.
- Split фракциясы эмульсия жана көбүк туруктуулугунда crushed фракциясынан жогору маанилерди көрсөткөн.
- Crushed фракциясы температура жана жыштык скандарында күчтүү эластикалык/вискоэластикалык жүрүм-турум көрсөткөн.
- FTIR жана DSC ферментация белок жана матрица түзүлүшүндө өзгөрүү жаратканын, бирок негизги жылуулук өтүү температураларын чоң деңгээлде сактаганын көрсөткөн.
- PCA crushed фракциясы көп өзгөрмөлүү касиеттердин айкалышы боюнча айырмаланган профиль түзгөнүн көрсөткөн.
- Эң жогорку көрүнгөн белок курамына ээ fine фракциясы бардык функцияларда эң жакшы көрсөткүч берген эмес.
Изилдөө колдобогон жыйынтыктар
- “Бөлүкчө канчалык майда болсо, ферментация ошончолук жакшы болот” деген жыйынтык колдоого алынбайт.
- “Crushed фракциясы бардык азык-түлүк колдонмолорунда эң жакшы фракция” деген жыйынтык колдоого алынбайт.
- “Fine фракциясындагы белоктун көбөйүшү жаңы белок синтезинин түз далили” деген жыйынтык колдоого алынбайт.
- Майдын азайышы түз өлчөнгөн липаза активдүүлүгүнүн далили эмес.
- IDF азайышы менен SDF көбөйүшү түз өлчөнгөн целлюлаза активдүүлүгүнүн далили эмес.
- PCA жана Pearson корреляциялары себептүүлүктү далилдебейт.
- Лабораториялык ун көрсөткүчү чыныгы нан, макарон, суусундук же башка акыркы продуктуда ошол эле натыйжа кепилденгенин көрсөтпөйт.
- Сенсордук кабыл алуу, сактоо туруктуулугу жана чыныгы азык-түлүк процессиндеги көрсөткүч бул изилдөөдө ырасталган эмес.
Негизги чектөөлөр
Козу карын биомассасы түз өлчөнгөн эмес. Ошондуктан ар башка баштапкы бөлүкчөлөр чыныгы козу карын өсүшүнүн көлөмүн канчалык өзгөрткөнү белгисиз.
Субстратты пайдалануу кинетикасы өлчөнгөн эмес. Кургак зат жана курам өзгөрүүлөрү бар болгону менен, көмүртек, азот же белгилүү макромолекулалардын убакыт боюнча сарпталуу ылдамдыгы аныкталган эмес.
Фермент активдүүлүктөрү өлчөнгөн эмес. Протеаза, липаза жана көмүрсууларды ажыратуучу ферменттер талкууланган мүмкүн болгон механизмдер; алар бул изилдөөнүн түз өлчөөлөрү эмес.
Кычкылтек трансфери өлчөнгөн эмес. Fine фракциясындагы тыгыз жайгашуу кычкылтекке жетүүнү чектеши мүмкүн экени негиздүү түшүндүрмө катары талкууланган, бирок түз ырасталган эмес.
Толук ферментация кинетикасы жок. Козу карын өсүшүнүн ылдамдыгы, метаболизмдик ылдамдык жана фермент өндүрүшүнүн убакыт боюнча сандык профили аныкталган эмес.
Чыныгы азык-түлүктө текшерүү жүргүзүлгөн эмес. Алынган ундардын моделдик же чыныгы азык-түлүк системаларындагы иштетүү көрсөткүчү, сактоо касиеттери жана сенсордук касиеттери келечекте өзүнчө бааланышы керек.
Булак ичинде техникалык дал келбестиктер бар. Реологиялык деформация мааниси, реология концентрациясынын бирдиги, айрым DSC ката чектери, түс маанилүүлүгү жана бөлүкчө диаметринин убакыт таасиринин статистикалык түшүндүрүлүшү булак ичинде бири-бирине толук шайкеш эмес. Бул белгисиздиктер Verianla тарабынан унчукпай оңдолгон эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Effect of Particle Size on the Physicochemical and Functional Properties of Sweet Lupin (Lupinus angustifolius) Fermented with Rhizopus oligosporus
Авторлор: Ihlana Nairfana; Jaspreet Singh; Mike Boland; Lovedeep Kaur.
Авторлордун ирети: Түпнуска макаладагы ирет сакталган.
Тең салым: Булакта ачык тең салым/тең биринчи авторлук билдирүүсү көрүнбөйт.
Жооптуу автор: Lovedeep Kaur.
Мекеме 1: School of Food Technology and Natural Sciences, Massey University, Palmerston North 4442, New Zealand.
Мекеме 2: Riddet Institute, Massey University, Palmerston North 4442, New Zealand.
Журнал: Foods.
Басма: MDPI, Basel, Switzerland.
Булак түрү: Article; көзөмөлдөнгөн лабораториялык ферментация жана азык-түлүк компонентин мүнөздөө изилдөөсү.
Рецензия статусу: Foods рецензияланган илимий журнал жана макала жарыяланган version of record болуп саналат.
Том / сан / макала номери: Foods 2026, 15(18), 3306.
DOI: 10.3390/foods15183306.
Тапшырылган күнү: 30 Июль 2026.
Ревизия күнү: 3 Сентябрь 2026.
Кабыл алынган күнү: 9 Сентябрь 2026.
Жарыяланган күнү: 18 Сентябрь 2026.
Расмий каттоо: DOI 10.3390/foods15183306 аркылуу MDPI жарыялоо жазуусу.
Лицензия: Creative Commons Attribution (CC BY).
Кошумча материал: Table S1 Pearson корреляция анализи; Figure S1 strain sweep натыйжалары; Table S2 кургак заттын курамы; Table S3 кургак затты кайра алуу.
Каржылоо: New Zealand Ministry of Business, Innovation and Employment (MBIE) Endeavour Fund, Smart Idea, келишим no. MAU2443.
Этикалык кеңеш: Колдонулбайт.
Маалыматтуу макулдук: Колдонулбайт.
Маалыматтардын жеткиликтүүлүгү: Маалыматтар суроо-талап боюнча берилери көрсөтүлгөн.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Авторлордун салымы: Lovedeep Kaur: концептуалдаштыруу, көзөмөл, ыкма, карап чыгуу жана түзөтүү. Jaspreet Singh: концептуалдаштыруу, ыкма, карап чыгуу жана түзөтүү, көзөмөл. Mike Boland: концептуалдаштыруу, ыкма, карап чыгуу жана түзөтүү, көзөмөл. Ihlana Nairfana: концептуалдаштыруу, формалдуу анализ, изилдөө, маалыматтарды курациялоо жана биринчи долбоорду жазуу.
Булак ичиндеги дал келбестик 1 — реология: ыкма бөлүмүндө кийинки скандар үчүн %0,01 деформация, натыйжалар бөлүмүндө болсо %0,03 деформация жазылган.
Булак ичиндеги дал келбестик 2 — реология концентрациясы: ыкма бөлүмү %25 w/w, натыйжалар бөлүмү %25 w/v дегенди колдонот.
Булак ичиндеги дал келбестик 3 — DSC: Таблица 8де crushed Peak 1 температурасы 89,51 ± 8,43 °C болсо, абзацтын бир жеринде 89,51 ± 80,43 °C; Таблица 8де crushed Peak 2 ΔH мааниси 4,71 ± 1,41 J/g болсо, абзацта 4,71 ± 0,01 J/g деп жазылган.
Булак ичиндеги дал келбестик 4 — түс: натыйжалар текстиндеги бир сүйлөм a* айырмасын маанилүү деп атаса, кийинки сүйлөм жана Таблица 4 a* менен b* айырмалары маанилүү эмес экенин көрсөтөт.
Булак ичиндеги дал келбестик 5 — баштапкы/акыркы Feret диаметри: натыйжалар бөлүмүндө фракция ичиндеги өзгөрүүлөр p > 0,05 менен маанилүү эмес деп айтылса, талкууда split жана crushed үчүн маанилүү өсүү деген сөз бар.
Негизги методологиялык чек: Козу карын биомассасынын өсүшү, субстратты пайдалануу ылдамдыгы, фермент активдүүлүгү, кычкылтек трансфери жана толук ферментация кинетикасы түз өлчөнгөн эмес. Колдонмого тиешелүү чыныгы азык-түлүк иштетүү, сактоо жана сенсордук көрсөткүч да өзүнчө ырасталышы керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген