


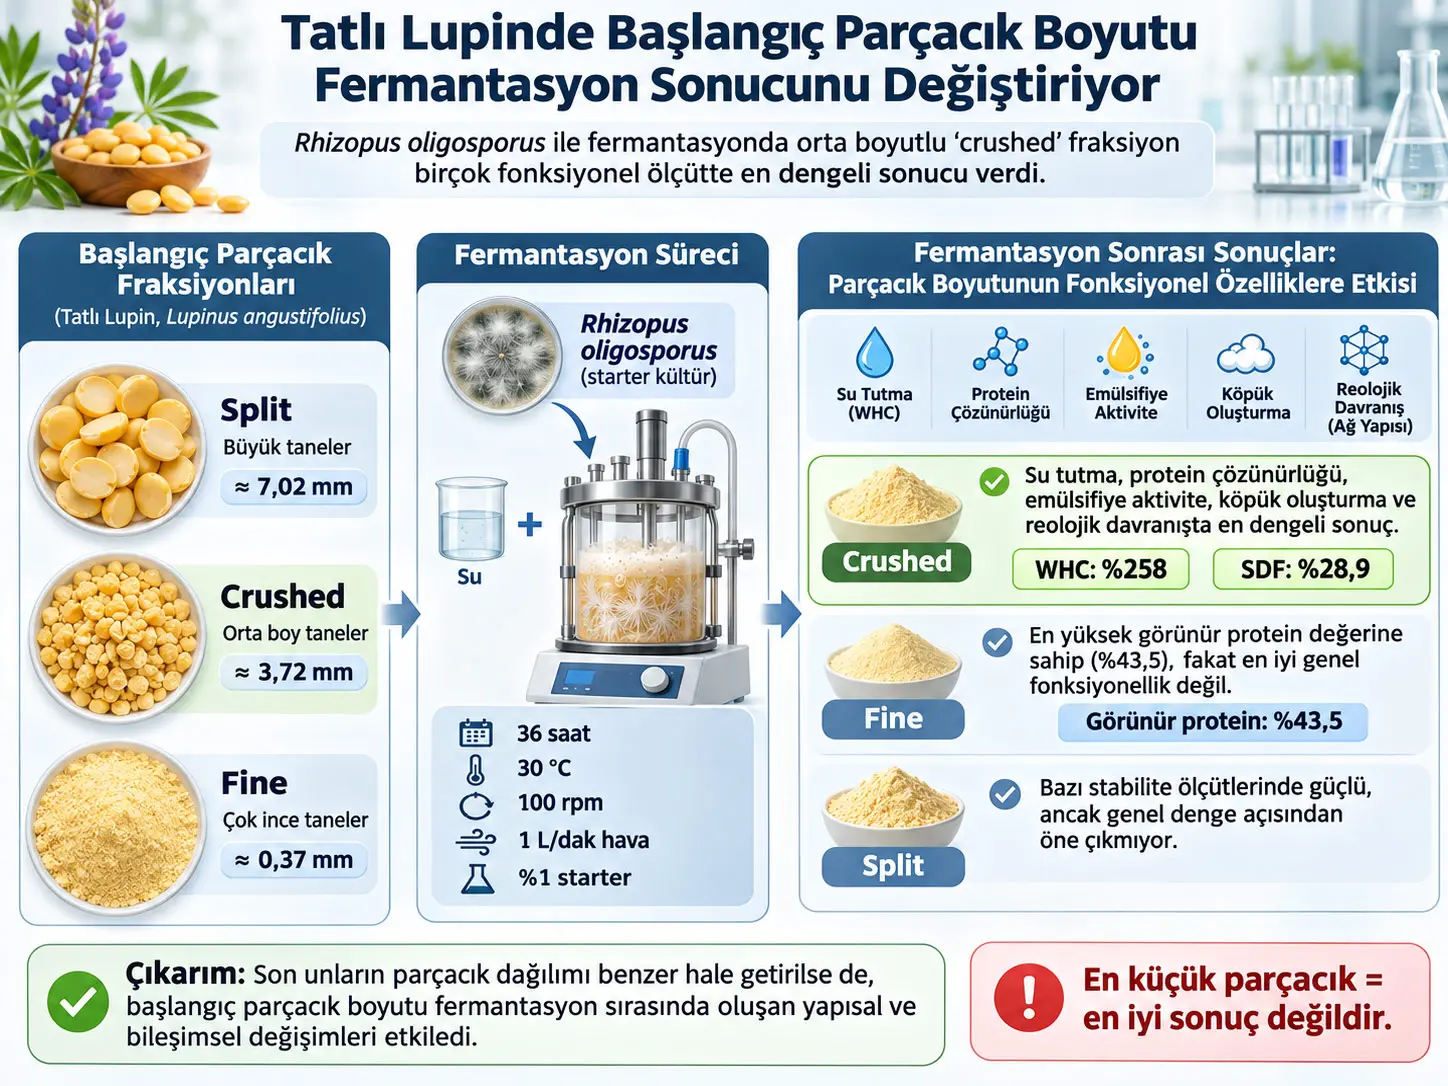
Rhizopus oligosporus ile fermente edilmiş tatlı lupin unu, Lupinus angustifolius tohumlarının başlangıç parçacık boyutu değiştirilerek kontrollü fermantasyona tabi tutulması ve sonrasında kurutulup öğütülmesiyle elde edilen bitki temelli bir gıda bileşenidir. Çalışma, fermantasyon başlamadan önce lupinin split, crushed ve fine olmak üzere üç farklı fiziksel boyuta ayrılmasının, aynı fermantasyon koşulları altında oluşan unun kimyasal bileşimini, protein yapısını, su ve yağ tutmasını, jelleşmesini, emülsifikasyonunu, köpüklenmesini, çözünürlüğünü ve reolojik davranışını değiştirip değiştirmediğini araştırmıştır.
Başlangıçtaki ortalama Feret çapları split fraksiyon için 7,02 ± 1,60 mm, crushed fraksiyon için 3,72 ± 0,56 mm ve fine fraksiyon için 0,37 ± 0,25 mm olarak ölçülmüştür. Üç grup da aynı şekilde 36 saat, 30 °C, 100 rpm ve 1 L/dak havalandırma koşullarında, %1 ticari tempeh starteri kullanılarak fermente edilmiştir. Fermantasyondan sonra bütün ürünler dondurarak kurutulmuş, öğütülmüş ve 1 mm elekten geçirilmiştir. Bu standartlaştırma sonucunda nihai unların D10, D50 ve D90 parçacık dağılımları arasında anlamlı fark kalmamıştır. Bu nedenle sonraki fonksiyonel farklılıkların yalnız nihai unun tane iriliğinden değil, fermantasyon sırasında farklı başlangıç fiziksel yapılarında meydana gelen bileşimsel ve moleküler değişikliklerden kaynaklandığı düşünülmektedir.
Fermantasyon bütün parçacık gruplarında yağ içeriğini azaltmış ve diyet lifi dağılımını değiştirmiştir. En yüksek görünür protein oranı %43,5 ile fermente fine fraksiyonda görülmüş olsa da en güçlü genel fonksiyonel performans fine fraksiyonda elde edilmemiştir. Orta boyutlu crushed fraksiyon %258 su tutma kapasitesi, pH 2–8 aralığında en yüksek emülsifiye aktivite ve köpük oluşturma kapasitesi, en yüksek protein çözünürlüğü ve en güçlü viskoelastik ağ davranışıyla birçok ölçütte öne çıkmıştır. Crushed fraksiyon ayrıca %28,9 çözünür diyet lifi içeriğiyle diğer gruplardan belirgin biçimde ayrılmıştır.
Sonuçlar parçacık boyutu etkisinin doğrusal olmadığını göstermektedir. Çok büyük parçacıklar mikroorganizma ve enzimlerin substrata erişimini sınırlandırabilirken aşırı ince parçacıklar da daha iyi fonksiyonelliği garanti etmemiştir. Yazarlar bunun küçük parçacıklarda yoğun paketlenme, azalan gözenek hacmi ve oksijen aktarımındaki olası kısıtlamalarla ilişkili olabileceğini tartışmaktadır; ancak çalışmada oksijen transferi, fungal biyokütle, enzim aktivitesi veya ayrıntılı substrat kullanım kinetiği doğrudan ölçülmemiştir. Dolayısıyla bu mekanizmalar doğrudan deneysel kanıt değil, elde edilen bulguların literatüre dayalı açıklamalarıdır.
Çalışmanın uygulama açısından en önemli sonucu, “en ince öğütme en iyi fermantasyonu verir” şeklinde basit bir kuralın desteklenmemesidir. Crushed fraksiyon genel olarak en dengeli sonuçları vermiş olsa da bütün fonksiyonel özelliklerde tek bir fraksiyon üstün değildir. Örneğin emülsifiye aktivite ve köpük oluşturma kapasitesi crushed fraksiyonda yüksekken emülsiyon ve köpük stabilitesinde split fraksiyon daha yüksek değerler göstermiştir. Bu nedenle uygun başlangıç parçacık boyutu üretilecek gıdanın hangi özelliğine ihtiyaç duyulduğuna göre seçilmelidir.
Araştırmanın temel problemi
Lupin, yüksek protein içeriği nedeniyle bitki temelli gıda üretiminde değerlendirilen bir baklagildir. Ancak bir bitki hammaddesinin yalnız yüksek protein içermesi, onun gıda üretiminde iyi emülsifiye edici, iyi köpük oluşturan, güçlü jel kuran veya suyu iyi tutan bir bileşen olacağı anlamına gelmez. Protein dışındaki lif, lipid, polisakkarit, nişasta ve diğer bileşenler de teknolojik davranışı etkiler.
Fermantasyon bitkisel matristeki büyük molekülleri ve hücresel yapıları değiştirebilir. R. oligosporus, geleneksel tempeh üretimiyle ilişkilendirilen yenilebilir filamentli bir mantardır. Bu çalışmada saf laboratuvar izolatı yerine RAPRIMA adlı ticari, gıda sınıfı tempeh starteri kullanılmıştır; kaynak bu starterin temel fermantasyon mikroorganizması olarak R. oligosporus içerdiğini belirtmektedir.
Araştırmanın temel sorusu yalnız “fermantasyon lupini değiştiriyor mu?” değildir. Asıl soru, aynı lupin aynı koşullarda fermente edilirken başlangıç parçacığının fiziksel boyutunun ne kadar önemli olduğudur.
Parçacık Boyutu Fermantasyonda Neden Önemlidir?
Başlangıç parçacık boyutu, mikroorganizmanın substrat yüzeyine erişebileceği alanı, nem dağılımını, enzimlerin bitki dokusuna ulaşabileceği mesafeyi ve fermantasyon matrisindeki boşluk yapısını etkileyebilen bir proses değişkenidir. Bununla birlikte bu çalışma parçacık küçüldükçe performansın sürekli arttığını göstermemiş; orta büyüklükteki crushed fraksiyon birçok fonksiyonel ölçütte en uygun dengeyi sağlamıştır.
Deneyde üç başlangıç fraksiyonu nasıl oluşturuldu?
Gıda sınıfı kabuğu alınmış split L. angustifolius tohumları Avustralya'daki Lupin Co.'dan LupinQ ticari adıyla temin edilmiştir. Kaynak ürünün başlangıç nemini %9–10 olarak vermektedir.
Üç başlangıç fiziksel grubu kullanılmıştır:
- Split: tedarikçiden gelen kabuğu alınmış bölünmüş lupin.
- Crushed: kuru öğütme sonrasında 2,0 mm elekten geçirilen fraksiyon.
- Fine: kuru öğütme sonrasında 1,0 mm elekten geçirilen daha ince fraksiyon.
Elek açıklığı ile ölçülen gerçek parçacık Feret çapı aynı büyüklük değildir. Parçacıklar düzensiz şekilli olduğundan araştırmacılar görüntü analizinde Feret çapını kullanmıştır. Feret çapı, bir parçacığın sınırı üzerindeki iki nokta arasındaki en uzun kaliper mesafesidir. Minimum Feret çapı ise parçacığın daha kısa kaliper boyutunu temsil eder.
Fermantasyon koşulları
Her başlangıç fraksiyonundan 420 g alınmış, 840 mL suyla karıştırılmış ve 20 dakika kaynatılmıştır. Pişmiş substratlar süzülmüş, 20–22 °C oda sıcaklığında 15 dakika hava ile soğutulmuş ve pişmiş kütle kaydedilmiştir.
Substrata kütlece %1 RAPRIMA ticari tempeh starteri eklenmiştir. İnoküle edilmiş lupin, ayrıca 1 L MilliQ su ile karıştırılmış ve BioFlo/Celligen 115 kontrollü biyoreaktörde 36 saat boyunca 30 °C, 100 rpm ve 1 L/dak hava akışında fermente edilmiştir. Aynı starter seviyesi ve aynı proses koşulları üç başlangıç parçacık grubuna da uygulanmıştır.
Kaynak metin çalışmayı yer yer katı hâl fermantasyonu literatürü bağlamında tartışmaktadır. Bununla birlikte gerçek deney düzeneğinde önemli miktarda su eklenen, karıştırılan ve havalandırılan kontrollü biyoreaktör kullanılmıştır. Bu nedenle burada süreç kaynakta verilen gerçek deney parametreleri üzerinden tanımlanmaktadır; klasik bir katı hâl fermantasyonu düzeni olduğu ayrıca varsayılmamaktadır.
Başlangıç ve fermantasyon sonu parçacık boyutları
| Aşama | Fraksiyon | Feret çapı, dF (mm) | Minimum Feret çapı (mm) |
|---|---|---|---|
| Başlangıç | Split | 7,02 ± 1,60 | 6,21 ± 1,04 |
| Başlangıç | Crushed | 3,72 ± 0,56 | 2,92 ± 0,92 |
| Başlangıç | Fine | 0,37 ± 0,25 | 0,15 ± 0,07 |
| 36 saat sonrası | Split | 8,50 ± 1,72 | 7,20 ± 2,84 |
| 36 saat sonrası | Crushed | 5,10 ± 1,21 | 4,41 ± 1,02 |
| 36 saat sonrası | Fine | 0,61 ± 0,09 | 0,27 ± 0,07 |
Kaynak sonuç bölümünde ortalama Feret ve minimum Feret çaplarının sayısal olarak artmasına rağmen aynı fraksiyon içinde başlangıç–son farklarının istatistiksel olarak anlamlı olmadığını, \(p>0.05\), belirtmektedir. Buna karşılık tartışma bölümündeki başka bir cümle split ve crushed fraksiyonlar için “anlamlı artış” ifadesini kullanmaktadır. Bu kaynak içi çelişki nedeniyle Verianla metni fermantasyonun parçacık çapını kesin olarak anlamlı biçimde artırdığı sonucunu vermemektedir.
Parçacık dağılımı sınıflarına bakıldığında ise görsel dağılımların daha büyük sınıflara kaydığı görülmüştür. Başlangıçta fine parçacıkların yaklaşık %95'i 0,50 mm'nin altında bulunurken fermantasyon sonrasında fine fraksiyonun yaklaşık %64'ü 0,5–1,0 mm sınıfında yer almıştır. Crushed fraksiyon fermantasyon sonrasında ağırlıklı olarak 4–8 mm sınıflarına, split fraksiyon ise ağırlıklı olarak 6–10 mm ve üzeri sınıflara kaymıştır. Bu dağılım değişiklikleri, ortalama çap için bildirilen anlamlılık sonucundan ayrı değerlendirilmelidir.
En Küçük Lupin Parçacıkları Neden En İyi Fonksiyonel Sonucu Vermedi?
Daha küçük parçacıklar daha fazla yüzey alanı ve daha kısa difüzyon mesafesi sağlayabilse de bu çalışma avantajın doğrusal olmadığını göstermiştir; aşırı incelmiş substratın sıkı paketlenmesi, gözenek hacmini ve olası oksijen aktarımını sınırlayabilir ve protein/lif matrisinde işlev için gerekli yapısal düzenin aşırı değişmesine yol açabilir. Ancak oksijen transferi, enzim aktivitesi ve fungal biyokütle doğrudan ölçülmediğinden bunlar crushed fraksiyonun üstünlüğünü kesin olarak kanıtlayan mekanizmalar değil, yazarların bulguları açıklamak için tartıştığı olası süreçlerdir.
Nihai un parçacık boyutları neden önemli bir kontrol oluşturuyor?
Fermantasyon tamamlandıktan sonra bütün fermente örnekler ve fermente edilmemiş kontrol aynı şekilde dondurarak kurutulmuş, öğütülmüş ve 1 mm elekten geçirilmiştir. Mastersizer analizinde nihai ürünlerin D10 değerleri 12,83–13,70 µm, D50 değerleri 166,67–171,67 µm ve D90 değerleri 710,00–799,67 µm aralığında bulunmuş ve gruplar arasında anlamlı fark görülmemiştir, \(p>0.05\).
Bu sonuç deney tasarımının kritik noktalarından biridir. Fonksiyonel testlerde kullanılan son unların büyüklük dağılımları birbirine benzer hale getirildiği için crushed, split ve fine grupları arasındaki sonraki farkları yalnız “bir un daha inceydi” diye açıklamak mümkün değildir. Farklar fermantasyona giren hammaddenin başlangıç fiziksel yapısıyla ilişkili fermantasyon etkilerini yansıtmaktadır.
Kuru madde içeriği ve kuru madde geri kazanımı
Kuru madde (dry matter, DM) 0, 12, 24 ve 36 saatlik fermantasyon zamanlarında değerlendirilmiştir. Kaynak kuru madde yüzdesini şu denklemle hesaplamıştır:
\[ DM(\%)=\frac{W_{FD}}{W_{wet}}\times100 \]
Formül neyi hesaplar? Islak fermantasyon örneğinin ne kadarının dondurarak kurutma sonrasında kuru madde olarak kaldığını gösterir.
\(W_{FD}\): Dondurarak kurutulan numunenin gram cinsinden kütlesidir.
\(W_{wet}\): Aynı numunenin kurutma öncesindeki yaş kütlesidir.
Matematiksel anlam: Kuru kütlenin yaş kütleye oranı yüzdeye çevrilir. Su oranı yükseldikçe aynı kuru madde için DM yüzdesi düşer.
Kuru madde geri kazanımı ise:
\[ DMR(\%)=\frac{DM_{final}}{DM_{initial}}\times100 \]
\(DM_{initial}\): Fermantasyon sistemine başlangıçta verilen toplam kuru madde.
\(DM_{final}\): Fermantasyon sonunda ölçülen kuru madde içeriği ve toplam fermantasyon kütlesinden hesaplanan kalan kuru madde.
Yorum: %100'e yakın DMR, başlangıç kuru maddesinin büyük kısmının süreç sonunda geri kazanıldığını gösterir. Split fraksiyonda DMR %97,20 ± 0,84, crushed fraksiyonda %95,52 ± 1,30 ve fine fraksiyonda %94,53 ± 1,37 olarak bulunmuştur. Sayısal olarak parçacık küçüldükçe geri kazanım azalmış görünse de grup farkı anlamlı değildir, \(F=3.841\), \(p=0.084\).
Fermantasyon zamanı DM içeriğini anlamlı biçimde değiştirmemiştir, \(F=2.090\), \(p=0.137\); zaman × parçacık fraksiyonu etkileşimi de anlamlı değildir, \(F=0.910\), \(p=0.510\). Buna karşılık parçacık fraksiyonunun ana etkisi anlamlıdır, \(F=11.933\), \(p=0.008\), kısmi \(\eta^2=0.799\). Zamanlar boyunca ortalama DM split için %24,25 ± 0,15, crushed için %23,59 ± 0,53 ve fine için %22,86 ± 0,20'dir.
Yakın bileşim nasıl değişti?
Protein Dumas yöntemi ve 5,7 azot-protein dönüşüm faktörüyle; nem, kül, yağ, nişasta ve diyet lifi ilgili AOAC yöntemleriyle ölçülmüştür. Karbonhidrat miktarı doğrudan analitik ölçüm yerine fark yöntemiyle hesaplanmıştır:
\[ CHO(\%)=100-\left[MC(\%)+CP(\%)+Fat(\%)+Ash(\%)\right] \]
\(MC\): nem içeriği; \(CP\): ham protein; Fat: yağ; Ash: kül içeriğidir.
Bu nedenle “karbonhidrat” değeri ayrı bir karbonhidrat analizi değildir; ölçülen diğer ana bileşenlerin toplamının 100'den çıkarılmasıyla elde edilen fark değeridir.
| Numune | Kül (%) | Ham protein (%) | Yağ (%) | IDF (%) | SDF (%) | Nişasta (%) | Farkla karbonhidrat (%) |
|---|---|---|---|---|---|---|---|
| Fermente edilmemiş | 2,9 ± 0,1 | 37,1 ± 0,5 | 6,5 ± 0,3 | 35,6 ± 1,2 | 10,3 ± 0,6 | 0,40 ± 0,05 | 48,7 ± 0,8 |
| Fermente split | 3,1 ± 0,1 | 32,2 ± 0,6 | 4,7 ± 0,3 | 20,03 ± 2,9 | 6,93 ± 4,2 | 0,35 ± 0,04 | 55,2 ± 1,2 |
| Fermente crushed | 3,3 ± 0,1 | 39,5 ± 0,7 | 2,7 ± 0,2 | 10,6 ± 0,8 | 28,9 ± 1,5 | 0,33 ± 0,04 | 50,2 ± 1,0 |
| Fermente fine | 3,5 ± 0,1 | 43,5 ± 0,8 | 2,0 ± 0,2 | 16,23 ± 1,0 | 13,7 ± 0,6 | 0,24 ± 0,03 | 47,0 ± 1,0 |
Fermente fine fraksiyon %43,5 ile en yüksek görünür protein konsantrasyonunu göstermiştir. Ancak bu değerin “mantar yeni protein üretti ve toplam protein kütlesi bu kadar arttı” şeklinde yorumlanması doğru değildir. Çalışmada protein kütle dengesi veya fungal biyokütle doğrudan ölçülmemiştir. Diğer bileşenlerin tüketilmesi veya azalması, proteinin toplam kuru madde içindeki göreli yüzdesini artırabilir.
Yağ içeriği bütün fermente gruplarda düşmüştür: %6,5'ten splitte %4,7'ye, crushed'da %2,7'ye ve fine'da %2,0'a. Kaynak lipolitik aktiviteyi olası açıklamalardan biri olarak tartışır; ancak lipaz aktivitesi ölçülmediği için bu azalma doğrudan ölçülmüş lipaz etkisi değildir.
Diyet lifi değişimi özellikle crushed fraksiyonda dikkat çekicidir. Çözünmeyen diyet lifi (IDF) %35,6'dan %10,6'ya düşerken çözünür diyet lifi (SDF) %28,9'a yükselmiştir. Kaynak bunu yapısal polisakkaritlerin değişmesi veya çözünür hale gelmesiyle ilişkilendirir; buna karşılık ilgili fungal enzimler doğrudan ölçülmemiştir.
Amino asit profili
Amino asitler HCl hidrolizi sonrasında AccQ-Tag türevlendirmeli ters faz HPLC ile ölçülmüş; sistein ve metiyonin için performik asit oksidasyonu kullanılmıştır.
| Amino asit | Fermente edilmemiş | Fermente split | Fermente crushed | Fermente fine |
|---|---|---|---|---|
| Fenilalanin | 1,66 ± 0,11 | 1,57 ± 0,02 | 1,66 ± 0,02 | 1,78 ± 0,01 |
| Histidin | 0,70 ± 0,01 | 0,62 ± 0,01 | 0,64 ± 0,14 | 0,65 ± 0,21 |
| İzolösin | 1,64 ± 0,02 | 1,55 ± 0,02 | 1,69 ± 0,02 | 1,60 ± 0,02 |
| Lösin | 2,56 ± 0,32 | 2,48 ± 0,11 | 2,58 ± 0,14 | 2,64 ± 0,17 |
| Lizin | 1,95 ± 0,02 | 1,74 ± 0,02 | 1,84 ± 0,02 | 1,83 ± 0,02 |
| Metiyonin | 0,30 ± 0,02 | 0,30 ± 0,02 | 0,42 ± 0,02 | 0,45 ± 0,02 |
| Treonin | 1,37 ± 0,05 | 1,29 ± 0,13 | 1,33 ± 0,12 | 1,17 ± 0,11 |
| Valin | 1,68 ± 0,13 | 1,60 ± 0,24 | 1,77 ± 0,34 | 1,88 ± 0,02 |
| Toplam esansiyel amino asit | 11,86 ± 0,68 | 11,15 ± 0,57 | 12,33 ± 0,96 | 12,00 ± 0,58 |
| Aspartik asit | 3,97 ± 0,02 | 3,70 ± 0,11 | 3,73 ± 0,12 | 3,12 ± 0,04 |
| Serin | 2,08 ± 0,13 | 1,92 ± 0,01 | 1,75 ± 0,02 | 1,41 ± 0,21 |
| Glutamik asit | 10,72 ± 0,03 | 7,94 ± 0,02 | 7,36 ± 0,02 | 10,68 ± 0,11 |
| Prolin | 1,84 ± 0,03 | 1,60 ± 0,02 | 1,69 ± 0,02 | 1,63 ± 0,04 |
| Glisin | 1,60 ± 0,04 | 1,82 ± 0,11 | 1,75 ± 0,12 | 2,08 ± 0,03 |
| Alanin | 1,36 ± 0,12 | 1,28 ± 0,02 | 1,87 ± 0,04 | 1,99 ± 0,02 |
| Tirozin | 1,92 ± 0,12 | 1,74 ± 0,22 | 1,86 ± 0,12 | 2,00 ± 0,02 |
| Arjinin | 4,45 ± 0,10 | 3,88 ± 0,14 | 2,59 ± 0,12 | 1,84 ± 0,11 |
| Sistein | 0,35 ± 0,04 | 0,32 ± 0,03 | 0,33 ± 0,11 | 0,40 ± 0,14 |
| Toplam esansiyel olmayan amino asit | 28,29 ± 0,63 | 23,20 ± 0,88 | 22,93 ± 0,83 | 25,15 ± 0,68 |
Crushed ve fine fraksiyonların toplam esansiyel amino asit değerleri split fraksiyondan yüksektir. Metiyonin crushed ve fine fraksiyonlarda yükselirken arjinin bütün fermente gruplarda düşmüştür. Kaynak arjinin azalmasını fungal metabolizmayla, bazı amino asit artışlarını ise protein hidrolizi ve amino asit metabolizmasıyla ilişkilendirmektedir; ancak ilgili metabolik akışlar veya enzim aktiviteleri doğrudan ölçülmemiştir.
Renk farkı nasıl hesaplandı?
Renk Minolta CR-400 kolorimetre ile, D65 aydınlatıcı, 10° standart gözlemci ve 8 mm ölçüm açıklığı kullanılarak CIE L*a*b* sisteminde ölçülmüştür.
\[ \Delta E_{ab}^{*}= \sqrt{ (L_2^{*}-L_1^{*})^2+ (a_2^{*}-a_1^{*})^2+ (b_2^{*}-b_1^{*})^2 } \]
Formül neyi hesaplar? Fermente örnek ile fermente edilmemiş referans arasındaki toplam renk uzaklığını hesaplar.
\(L^*\): açıklık-koyuluk ekseni; \(a^*\): kırmızı-yeşil ekseni; \(b^*\): sarı-mavi eksenidir.
Üç eksendeki farkların kareleri toplandığı için işaretler birbirini götürmez; toplam geometrik renk uzaklığı elde edilir.
| Numune | L* | a* | b* | ΔE |
|---|---|---|---|---|
| Fermente edilmemiş | 63,71 ± 5,42 | 6,43 ± 1,57 | 36,53 ± 8,33 | — |
| Fermente split | 64,57 ± 6,28 | 6,11 ± 1,52 | 36,01 ± 8,72 | 1,38 ± 0,57 |
| Fermente crushed | 65,98 ± 7,32 | 6,16 ± 1,23 | 35,71 ± 7,62 | 2,75 ± 0,72 |
| Fermente fine | 63,58 ± 9,52 | 6,32 ± 1,28 | 36,32 ± 8,26 | 0,63 ± 0,43 |
Kaynak içi renk notu: Sonuç bölümünün ilk cümlelerinden biri fermantasyon ve parçacık boyutunun L* ve a* değerlerinde anlamlı fark oluşturduğunu ifade eder; hemen sonraki cümle ise yalnız L* için anlamlı etki olduğunu ve a* ile b*'nin etkilenmediğini söyler. Tablo 4'te a* ve b* sütunlarının tüm grupları aynı istatistik harfini taşımaktadır. Bu nedenle Verianla metni yalnız L* farkının açık biçimde desteklendiğini kabul eder ve a* için çelişkiyi saklamaz.
Çalışmanın Yöntemi ve Bulguları
Su ve yağ tutma kapasitesi
Su tutma kapasitesi (WHC) ve yağ tutma kapasitesi (OHC) için 1 g un, 10 mL distile su veya kanola yağıyla 30 saniye vortekslenmiş, 30 dakika dengelenmiş ve 5000×g'de 30 dakika santrifüj edilmiştir. Ayrılan üst fazın hacmi ölçülmüş ve WHC/OHC kuru ağırlık bazında hesaplanmıştır. Kaynak WHC ve OHC için açık bir matematiksel denklem basmamaktadır; bu nedenle burada kaynak dışı formül eklenmemiştir.
| Numune | WHC (%) | OHC (%) | LGC (%) |
|---|---|---|---|
| Fermente edilmemiş | 223 ± 8,62 | 209 ± 6,52 | 14 |
| Fermente split | 238 ± 6,58 | 196 ± 8,80 | 12 |
| Fermente crushed | 258 ± 8,11 | 207 ± 6,25 | 13 |
| Fermente fine | 236 ± 6,52 | 205 ± 6,55 | 13 |
Crushed fraksiyon %258 ile en yüksek WHC değerini vermiştir. OHC açısından ise fermente edilmemiş un %209 ile en yüksek, split %196 ile en düşük değere sahiptir. Dolayısıyla fermantasyonun su tutmayı geliştirmesi, yağ tutmayı da aynı yönde artırdığı anlamına gelmemektedir.
En düşük jelleşme konsantrasyonu (least gelation concentration, LGC) 2–20% w/v arasında, %2'lik artışlarla hazırlanan süspansiyonlarda belirlenmiştir. Numuneler 80 °C'de 1 saat ısıtılmış, hızla soğutulmuş ve 4 °C'de 2 saat tutulmuştur. Tüp ters çevrildiğinde akmayan ilk konsantrasyon LGC olarak kabul edilmiştir. Düşük LGC, daha düşük un konsantrasyonunda jel kurabilme anlamına gelir. Fermente split %12 ile en düşük LGC'yi vermiştir.
Emülsifiye aktivite ve stabilite
%1 w/v lupin unu dispersiyonları pH 2, 4, 6 ve 8'e ayarlanmış ve 10 dakika yüksek hızlı homojenizasyon uygulanmıştır. Beşinci dakikada 100 mL kanola yağı yavaşça eklenmiştir. Sistem 2000×g'de 10 dakika santrifüj edildikten sonra emülsifiye aktivite, emülsifiye tabaka yüksekliğinin toplam karışım yüksekliğine oranı olarak hesaplanmıştır.
Emülsiyon stabilitesi aynı emülsiyonların 80 °C'de 30 dakika ısıtılması, 15 dakika soğutulması ve 2000×g'de 15 dakika santrifüj edilmesiyle değerlendirilmiştir.
Crushed fraksiyon bütün pH değerlerinde en yüksek emülsifiye aktiviteyi vermiştir: pH 2'de %47,60 ± 9,42; pH 4'te %43,20 ± 7,11; pH 6'da %48,20 ± 9,71 ve pH 8'de %48,80 ± 8,24.
Buna karşılık emülsiyon stabilitesinde split fraksiyon bütün pH değerlerinde en yüksek değerleri göstermiştir: sırasıyla %41,30 ± 40,72; %39,00 ± 8,11; %47,00 ± 8,81 ve %47,40 ± 1,34. Bu sonuç “daha yüksek emülsifiye aktivite = mutlaka daha yüksek stabilite” şeklinde bir eşitlik olmadığını göstermektedir.
Köpük oluşturma ve köpük stabilitesi
Köpük deneyinde %1 w/v süspansiyonlar pH 2, 4, 6 ve 8'e ayarlanmış, el mikseriyle yüksek hızda 5 dakika çırpılmıştır. Köpük oluşturma kapasitesi başlangıç süspansiyon hacmine göre oluşan köpük hacmiyle değerlendirilmiş; köpük stabilitesi oda sıcaklığında 2 saat bekletildikten sonra kalan köpüğün başlangıç köpük hacmine oranıyla belirlenmiştir.
Crushed fraksiyon pH 2, 4, 6 ve 8'de sırasıyla %35,10 ± 8,87; %23,10 ± 4,46; %50,00 ± 8,61 ve %55,70 ± 7,65 ile en yüksek köpük oluşturma kapasitesini göstermiştir.
Köpük stabilitesinde ise split fraksiyon sırasıyla %24,52 ± 4,22; %15,66 ± 3,12; %43,85 ± 8,21 ve %49,36 ± 9,24 ile en yüksek değerleri vermiştir. Crushed fraksiyonun yüksek köpük üretme kapasitesi, oluşturduğu köpüğün en kararlı olduğu anlamına gelmemektedir.
Protein çözünürlüğü ve pH etkisi
Protein çözünürlüğü için %2 w/w lupin unu süspansiyonu hazırlanmış, pH 2, 4, 6 veya 8'e ayarlanmış, 1 saat karıştırılmış ve 17.000×g'de 30 dakika santrifüj edilmiştir. Üst faz dondurarak kurutulmuş ve protein Kjeldahl yöntemiyle 5,7 azot-protein dönüşüm faktörü kullanılarak ölçülmüştür.
| Numune | pH 2 | pH 4 | pH 6 | pH 8 |
|---|---|---|---|---|
| Fermente edilmemiş | 30,57 ± 7,11 | 22,50 ± 5,61 | 58,20 ± 11,24 | 61,10 ± 9,21 |
| Fermente split | 31,80 ± 8,12 | 23,60 ± 5,21 | 60,50 ± 8,14 | 62,90 ± 8,80 |
| Fermente crushed | 33,50 ± 9,22 | 24,80 ± 4,31 | 62,50 ± 8,62 | 64,80 ± 11,61 |
| Fermente fine | 29,00 ± 7,24 | 21,80 ± 4,92 | 56,50 ± 10,61 | 59,00 ± 10,24 |
Bütün örneklerde en düşük çözünürlük pH 4 civarında, en yüksek çözünürlük pH 6–8 aralığında görülmüştür. Crushed fraksiyon test edilen bütün pH değerlerinde fermente gruplar içinde en yüksek çözünürlük değerine sahiptir.
Son Unların Parçacık Boyutu Benzerken Başlangıç Parçacık Boyutu Nasıl Hâlâ Etki Gösterebilir?
Fonksiyon testlerinden önce bütün örnekler aynı kurutma, öğütme ve 1 mm eleme işleminden geçtiği ve son D10/D50/D90 dağılımları anlamlı biçimde farklı olmadığı için ölçülen fonksiyon farkları son tozun yalnız fiziksel tane iriliğiyle açıklanamaz; çalışma bu farkları fermantasyon sırasında başlangıç substrat yapısının protein, lif, lipid ve moleküler organizasyon üzerinde oluşturduğu farklı değişimlerle ilişkilendirmektedir.
Reolojik deneyler neyi ölçüyor?
Reoloji, bir gıda sisteminin deformasyon ve akış karşısındaki mekanik davranışını inceler. Çalışmada 40 mm paralel çelik plaka ve 2 mm plaka aralığına sahip Anton Paar Physica MCR301 reometre kullanılmıştır.
Depolama modülü \(G'\), numunenin elastik olarak depoladığı enerjiyle ilişkilidir. Yüksek \(G'\), daha güçlü katı-benzeri/elastik ağ davranışını gösterir.
Kayıp modülü \(G''\), deformasyon enerjisinin viskoz davranışla kaybedilen bölümünü temsil eder.
Kayıp tanjantı:
\[ \tan\delta=\frac{G''}{G'} \]
Bu eşitlik kaynakta ayrı numaralı denklem olarak basılmamış olsa da kaynak \(G'\), \(G''\) ve \(\tan\delta\) metriklerini birlikte kullanmaktadır; burada yalnız metrik ilişkisinin kavramsal açıklaması için gösterilmiştir. \(\tan\delta<1\) olduğunda elastik bileşen viskoz bileşenden baskındır.
Kaynak yöntem bölümünde strain sweep'in %0,001–100 aralığında yapıldığını ve sonraki deneyler için LVR içinde %0,01 gerinim seçildiğini yazmaktadır. Buna karşılık sonuç bölümünde %0,03 değerinin kullanıldığı belirtilmektedir. Hangisinin gerçek uygulanan değer olduğu makale içinden kesin çözülememektedir; bu nedenle iki değer de kaynak içi tutarsızlık olarak korunmalıdır.
Ayrıca yöntem bölümü un pastalarını “%25 w/w moisture content” biçiminde tanımlarken sonuç bölümü sıcaklık taraması örneklerini “%25 w/v dispersions” olarak adlandırmaktadır. Bu ikinci bir konsantrasyon birimi belirsizliğidir; Verianla bu iki ifadeden birini sessizce diğerine çevirmemektedir.
Sıcaklık taraması
Kaynak yöntemine göre numuneler 25 °C'den 95 °C'ye 4 °C/dak hızla ısıtılmış, 95 °C'de 30 saniye tutulmuş, aynı hızla 25 °C'ye soğutulmuş ve 25 °C'de tekrar 30 saniye bekletilmiştir. Nem kaybını azaltmak için numune kenarına ince mineral yağ tabakası uygulanmıştır.
Bütün örneklerde \(G'>G''\) ve \(\tan\delta<1\) bulunmuştur. Bu, bütün lupin pastalarında elastik bileşenin viskoz bileşenden baskın olduğunu gösterir.
Crushed fraksiyon hem ısıtma hem soğutma boyunca en yüksek \(G'\) değerlerini göstermiştir. Sıcaklık yükseldikçe \(G'\) ve \(G''\) genel olarak azalmış, soğuma sırasında kısmi toparlanma meydana gelmiştir.
Crushed fraksiyonun \(\tan\delta\) değerleri yaklaşık 0,12–0,17 ile en düşük; fermente edilmemiş unun değerleri yaklaşık 0,29–0,36 ile en yüksek aralıkta bulunmuştur. Dolayısıyla fermente edilmemiş un bazı koşullarda görece yüksek \(G'\) gösterse de viskoz enerji kaybının elastik bileşene oranı daha yüksektir. Ağ kalitesi yalnız \(G'\) değerine bakılarak değerlendirilmemelidir.
Frekans taraması
Frekans taramasında kaynak 25 °C'de 0,01–10 Hz aralığı kullanıldığını belirtmektedir. Kaynak bunu “angular frequency” olarak adlandırmasına rağmen birimi Hz vermektedir; Verianla kaynakta olmayan rad/s dönüşümü yapmamaktadır.
Frekans arttıkça bütün örneklerde hem \(G'\) hem \(G''\) yükselmiştir ve \(G'\) bütün aralıkta \(G''\)'den büyük kalmıştır. Frekans taramasında modül büyüklüğü sıralaması genel olarak crushed > split > fine > fermente edilmemiş şeklindedir. Crushed fraksiyon en güçlü viskoelastik ağ performansını göstermiştir.
FTIR analizi ne gösterdi?
FTIR spektrumları 400–4000 cm−1 aralığında, 4 cm−1 çözünürlükte ve her örnek için 32 taramayla kaydedilmiştir. Protein ikincil yapısının değerlendirilmesi için Amide I bölgesi, 1600–1700 cm−1, Gaussian eğri ayrıştırmasıyla analiz edilmiştir.
Fermente edilmemiş undaki yaklaşık 3303 cm−1 geniş O–H/N–H bandı fermente örneklerde yaklaşık 3275–3289 cm−1 bölgesine kaymıştır. Lipitle ilişkili yaklaşık 2925 ve 2850 cm−1 bantlarında ve yaklaşık 1740 cm−1 karbonil bölgesinde de değişiklikler görülmüştür.
Fermente edilmemiş örneğin Amide I maksimumu yaklaşık 1641 cm−1 civarındayken crushed ve fine fraksiyonlarda yaklaşık 1646 cm−1'e kaymıştır. Bu değişiklikler protein konformasyonunun ve çevresindeki moleküler etkileşimlerin fermantasyonla değiştiğini desteklemektedir; tek bir pik kayması belirli bir protein reaksiyonunu doğrudan kanıtlamaz.
| Yapı | Fermente edilmemiş | Fermente split | Fermente crushed | Fermente fine |
|---|---|---|---|---|
| β-sheet | 36,25 ± 3,47 | 34,35 ± 4,11 | 35,92 ± 5,11 | 35,13 ± 4,33 |
| Random coil | 15,25 ± 4,11 | 13,81 ± 2,71 | 13,48 ± 2,34 | 13,52 ± 3,14 |
| α-helix | 16,11 ± 4,33 | 15,34 ± 2,07 | 19,78 ± 4,44 | 19,44 ± 2,14 |
| β-turn | 29,26 ± 2,76 | 30,74 ± 4,31 | 27,77 ± 4,17 | 27,35 ± 5,21 |
| Aggregated strands | 2,86 ± 0,37 | 5,76 ± 1,11 | 3,04 ± 1,47 | 4,56 ± 0,78 |
β-sheet bütün gruplarda baskın yapı olmaya devam etmiştir. Crushed ve fine fraksiyonlarda α-helix oranı yükselirken random coil oranı fermente edilmemiş örneğe göre düşmüştür. Bu sonuçlar fermantasyonun proteini tamamen denatüre etmek yerine ikincil yapıda yeniden düzenlenmeye yol açtığı şeklinde yorumlanmıştır.
DSC: denatürasyon sıcaklığı ile entalpi aynı şeyi mi gösterir?
Hayır. Denatürasyon sıcaklığı, termal geçişin hangi sıcaklıkta gerçekleştiğini; entalpi değişimi \(\Delta H\) ise bu geçiş sırasında absorbe edilen ısı enerjisinin büyüklüğünü temsil eder. Bu nedenle aynı veya benzer denatürasyon sıcaklıklarına sahip iki örneğin \(\Delta H\) değerleri farklı olabilir.
DSC'de yaklaşık 10 mg, %40 w/v lupin unu örneği hermetik tavada 25–120 °C arasında 5 °C/dak hızla ısıtılıp soğutulmuştur.
| Numune | Peak 1 Td (°C) | Peak 1 ΔH (J/g) | Peak 2 Td (°C) | Peak 2 ΔH (J/g) |
|---|---|---|---|---|
| Fermente edilmemiş | 88,40 ± 10,02 | 3,30 ± 1,44 | 102,41 ± 10,24 | 2,62 ± 1,05 |
| Fermente split | 88,92 ± 8,21 | 5,10 ± 1,72 | 104,92 ± 9,14 | 3,11 ± 1,12 |
| Fermente crushed | 89,51 ± 8,43 | 6,72 ± 2,11 | 104,56 ± 9,11 | 4,71 ± 1,41 |
| Fermente fine | 88,73 ± 8,712 | 2,32 ± 1,08 | 105,47 ± 7,20 | 1,77 ± 0,52 |
İki ana denatürasyon sıcaklığında gruplar arasında anlamlı fark bulunmamış, ancak entalpi değerlerinde anlamlı farklar görülmüştür. Crushed fraksiyon iki endotermik geçişte de en yüksek \(\Delta H\) değerini göstermiştir. Kaynak bunu termal açılma için daha fazla enerji gerektiren, daha güçlü veya daha yaygın moleküller arası etkileşimlerle uyumlu yorumlamaktadır.
Kaynak içi DSC tutarsızlığı: Tablo 8 crushed Peak 1 için 89,51 ± 8,43 °C verirken paragrafın ilk cümlesinde 89,51 ± 80,43 °C yazmaktadır. Aynı tabloda crushed Peak 2 \(\Delta H\) değeri 4,71 ± 1,41 J/g iken paragrafta 4,71 ± 0,01 J/g olarak yazılmıştır. Bu nedenle yukarıdaki tablo doğrudan özgün Tablo 8 değerlerini taşımakta, metindeki iki çelişkili değer ayrıca belirtilmektedir.
PCA ne gösterdi?
Ana bileşen analizi (principal component analysis, PCA), birbirleriyle ilişkili çok sayıda ölçümü daha az sayıda bileşik eksen üzerinde özetleyen çok değişkenli bir yöntemdir. PCA nedenselliği kanıtlamaz; numunelerin çoklu özellik bakımından birbirine ne kadar benzediğini veya ayrıştığını gösterir.
PCA için protein, nişasta, LGC, WHC, protein çözünürlüğü, köpük stabilitesi, β-sheet oranı ve denatürasyon sıcaklığı seçilmiş ve farklı birimlerin etkisini azaltmak için değişkenler standartlaştırılmıştır.
PC1 toplam varyansın %42,7'sini, PC2 %31,9'unu açıklamış; iki bileşen birlikte %74,6'lık varyansı temsil etmiştir. Crushed fraksiyon PCA skor uzayında diğer gruplardan farklı bir konum göstermiştir. Bu konum tek bir özelliğe değil, bileşim, protein davranışı, hidrasyon ve yapısal özelliklerin ortak kombinasyonuna karşılık gelmektedir.
PC1'in pozitif yönü WHC, nişasta, köpük stabilitesi ve protein çözünürlüğüyle; negatif yönü protein içeriği ve LGC ile ilişkilendirilmiştir. PC2'de LGC, nişasta, β-sheet ve köpük stabilitesi pozitif; denatürasyon sıcaklığı negatif yönde yer almıştır.
Fine fraksiyonun en yüksek görünür protein oranına sahip olmasına rağmen crushed fraksiyonla aynı PCA kümesinde yer almaması özellikle önemlidir. Bu sonuç, bir gıda bileşeninin teknolojik kalitesinin yalnız protein yüzdesiyle açıklanamayacağını desteklemektedir.
Pearson korelasyonu ne gösterdi?
Protein çözünürlüğü ile emülsifiye aktivite ve köpük oluşturma kapasitesi arasında güçlü pozitif ilişkiler raporlanmıştır, \(r>0.94\), \(p<0.01\). Bu ilişkiler çözünebilir ve dağılabilir proteinlerin yağ–su veya hava–su arayüzlerine daha kolay ulaşabilmesiyle uyumludur.
Ancak korelasyon nedensellik değildir. Yüksek protein çözünürlüğünün tek başına yüksek emülsifiye aktiviteyi “yarattığı” bu analizle kanıtlanmaz. Protein konformasyonu, lif bileşimi ve diğer yapısal değişkenler aynı anda değişmektedir.
İstatistiksel analiz
Deneyler en az üç tekrarla gerçekleştirilmiş ve sonuçlar ortalama ± standart sapma olarak verilmiştir. Fermantasyon öncesi ve sonrası parçacık boyutu için iki yönlü ANOVA; diğer genel karşılaştırmalar için tek yönlü ANOVA ve Tukey post-hoc testi kullanılmıştır. Genel anlamlılık sınırı \(p\leq0.05\)'tir. Analizler SPSS 17.0 ile gerçekleştirilmiştir.
Kuru madde zaman serisinin sonuç bölümünde repeated-measures ANOVA ile değerlendirildiği ayrıca belirtilmektedir.
Çalışmanın desteklediği sonuçlar
- Başlangıç substrat parçacık boyutu, aynı fermantasyon koşullarında elde edilen lupin ununun sonraki fizikokimyasal ve fonksiyonel özellikleriyle ilişkilidir.
- Fermantasyon bütün parçacık gruplarında yağ içeriğini azaltmıştır.
- Diyet lifinin çözünür ve çözünmeyen fraksiyonları başlangıç parçacık boyutuna bağlı olarak farklı ölçülerde değişmiştir.
- Crushed fraksiyon %258 ile en yüksek WHC'yi göstermiştir.
- Crushed fraksiyon test edilen bütün pH koşullarında en yüksek emülsifiye aktivite, köpük oluşturma kapasitesi ve protein çözünürlüğünü göstermiştir.
- Split fraksiyon emülsiyon ve köpük stabilitesinde crushed fraksiyondan daha yüksek değerler göstermiştir.
- Crushed fraksiyon sıcaklık ve frekans taramalarında güçlü elastik/viskoelastik davranış göstermiştir.
- FTIR ve DSC, fermantasyonun protein ve matris yapısında değişiklik yaptığını fakat ana termal geçiş sıcaklıklarını büyük ölçüde koruduğunu göstermiştir.
- PCA, crushed fraksiyonun çok değişkenli özellik kombinasyonu bakımından farklı bir profil oluşturduğunu göstermiştir.
- En yüksek görünür protein içeriğine sahip fine fraksiyon bütün işlevlerde en iyi performansı göstermemiştir.
Çalışmanın desteklemediği sonuçlar
- “Parçacık ne kadar küçükse fermantasyon o kadar iyi olur” sonucu desteklenmemektedir.
- “Crushed fraksiyon bütün gıda uygulamalarında en iyi fraksiyondur” sonucu desteklenmemektedir.
- “Fine fraksiyondaki protein artışı yeni protein sentezinin doğrudan kanıtıdır” sonucu desteklenmemektedir.
- Yağ azalması doğrudan ölçülmüş lipaz aktivitesinin kanıtı değildir.
- IDF azalması ile SDF artışı doğrudan ölçülmüş selülaz aktivitesinin kanıtı değildir.
- PCA ve Pearson korelasyonları nedensellik kanıtlamaz.
- Laboratuvar un performansı gerçek ekmek, makarna, içecek veya başka bir son üründe aynı performansın garanti edildiğini göstermez.
- Duyusal kabul, depolama stabilitesi ve gerçek gıda prosesi performansı bu çalışmada doğrulanmamıştır.
Temel sınırlılıklar
Fungal biyokütle doğrudan ölçülmedi. Bu nedenle farklı başlangıç parçacıklarının gerçek fungal büyüme miktarını ne ölçüde değiştirdiği bilinmemektedir.
Substrat kullanım kinetiği ölçülmedi. Kuru madde ve bileşim değişimleri mevcut olsa da karbon, azot veya belirli makromoleküllerin zaman içindeki tüketim hızları belirlenmemiştir.
Enzim aktiviteleri ölçülmedi. Proteaz, lipaz ve karbonhidrat parçalayan enzimler tartışılan olası mekanizmalardır; bu çalışmanın doğrudan ölçümleri değildir.
Oksijen transferi ölçülmedi. Fine fraksiyondaki daha yoğun paketlenmenin oksijen erişimini sınırlandırabileceği makul bir açıklama olarak tartışılmıştır ancak doğrudan doğrulanmamıştır.
Ayrıntılı fermantasyon kinetiği yoktur. Mantar büyüme hızı, metabolik hız ve enzim üretiminin zaman içindeki nicel profili belirlenmemiştir.
Gerçek gıda doğrulaması yapılmadı. Elde edilen unların model veya gerçek gıda sistemlerindeki işleme performansı, depolama özellikleri ve duyusal özellikleri gelecekte ayrıca değerlendirilmelidir.
Kaynak içi teknik tutarsızlıklar vardır. Reolojik gerinim değeri, reoloji konsantrasyon birimi, bazı DSC hata payları, renk anlamlılığı ve parçacık çapındaki zaman etkisinin istatistiksel yorumu kaynak içinde birbiriyle tam uyumlu değildir. Bu belirsizlikler Verianla tarafından sessizce düzeltilmemiştir.
Kaynak ve Yöntem Notu
Özgün çalışma: Effect of Particle Size on the Physicochemical and Functional Properties of Sweet Lupin (Lupinus angustifolius) Fermented with Rhizopus oligosporus
Yazarlar: Ihlana Nairfana; Jaspreet Singh; Mike Boland; Lovedeep Kaur.
Yazar sırası: Özgün makaledeki sıra korunmuştur.
Eş katkı: Kaynakta açık bir eş katkı/eş birinci yazarlık bildirimi görülmemektedir.
Sorumlu yazar: Lovedeep Kaur.
Kurum 1: School of Food Technology and Natural Sciences, Massey University, Palmerston North 4442, New Zealand.
Kurum 2: Riddet Institute, Massey University, Palmerston North 4442, New Zealand.
Dergi: Foods.
Yayıncı: MDPI, Basel, Switzerland.
Kaynak türü: Article; kontrollü laboratuvar fermantasyon ve gıda bileşeni karakterizasyon çalışması.
Hakemlik durumu: Foods hakemli bilimsel dergidir ve makale yayımlanmış version of record'dur.
Cilt / sayı / makale numarası: Foods 2026, 15(18), 3306.
DOI: 10.3390/foods15183306.
Gönderim tarihi: 30 Temmuz 2026.
Revizyon tarihi: 3 Eylül 2026.
Kabul tarihi: 9 Eylül 2026.
Yayın tarihi: 18 Eylül 2026.
Resmî kayıt: DOI 10.3390/foods15183306 üzerinden MDPI yayın kaydı.
Lisans: Creative Commons Attribution (CC BY).
Ek materyal: Table S1 Pearson korelasyon analizi; Figure S1 strain sweep sonuçları; Table S2 kuru madde içeriği; Table S3 kuru madde geri kazanımı.
Finansman: New Zealand Ministry of Business, Innovation and Employment (MBIE) Endeavour Fund, Smart Idea, sözleşme no. MAU2443.
Etik kurul: Uygulanabilir değil.
Bilgilendirilmiş onam: Uygulanabilir değil.
Veri erişilebilirliği: Verilerin talep üzerine sağlanacağı belirtilmiştir.
Çıkar çatışması: Yazarlar çıkar çatışması olmadığını beyan etmiştir.
Yazar katkıları: Lovedeep Kaur: kavramsallaştırma, denetim, yöntem, gözden geçirme ve düzenleme. Jaspreet Singh: kavramsallaştırma, yöntem, gözden geçirme ve düzenleme, denetim. Mike Boland: kavramsallaştırma, yöntem, gözden geçirme ve düzenleme, denetim. Ihlana Nairfana: kavramsallaştırma, formal analiz, araştırma, veri kürasyonu ve ilk taslak yazımı.
Kaynak içi tutarsızlık 1 — reoloji: yöntem bölümünde sonraki taramalar için %0,01 gerinim, sonuç bölümünde ise %0,03 gerinim yazılmıştır.
Kaynak içi tutarsızlık 2 — reoloji konsantrasyonu: yöntem bölümü %25 w/w, sonuç bölümü %25 w/v ifadesini kullanmaktadır.
Kaynak içi tutarsızlık 3 — DSC: Tablo 8'de crushed Peak 1 sıcaklığı 89,51 ± 8,43 °C iken paragrafta bir yerde 89,51 ± 80,43 °C; Tablo 8'de crushed Peak 2 ΔH değeri 4,71 ± 1,41 J/g iken paragrafta 4,71 ± 0,01 J/g yazılmıştır.
Kaynak içi tutarsızlık 4 — renk: sonuç metninin bir cümlesi a* farkını anlamlı olarak nitelerken sonraki cümle ve Tablo 4 a* ile b* farklarının anlamlı olmadığını göstermektedir.
Kaynak içi tutarsızlık 5 — başlangıç/son Feret çapı: sonuç bölümünde fraksiyon içi değişimlerin p > 0,05 ile anlamlı olmadığı belirtilirken tartışmada split ve crushed için anlamlı artış ifadesi bulunmaktadır.
Temel yöntemsel sınır: Fungal biyokütle gelişimi, substrat kullanım hızı, enzim aktivitesi, oksijen transferi ve ayrıntılı fermantasyon kinetikleri doğrudan ölçülmemiştir. Uygulama-spesifik gerçek gıda işleme, depolama ve duyusal performans da ayrıca doğrulanmalıdır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir