

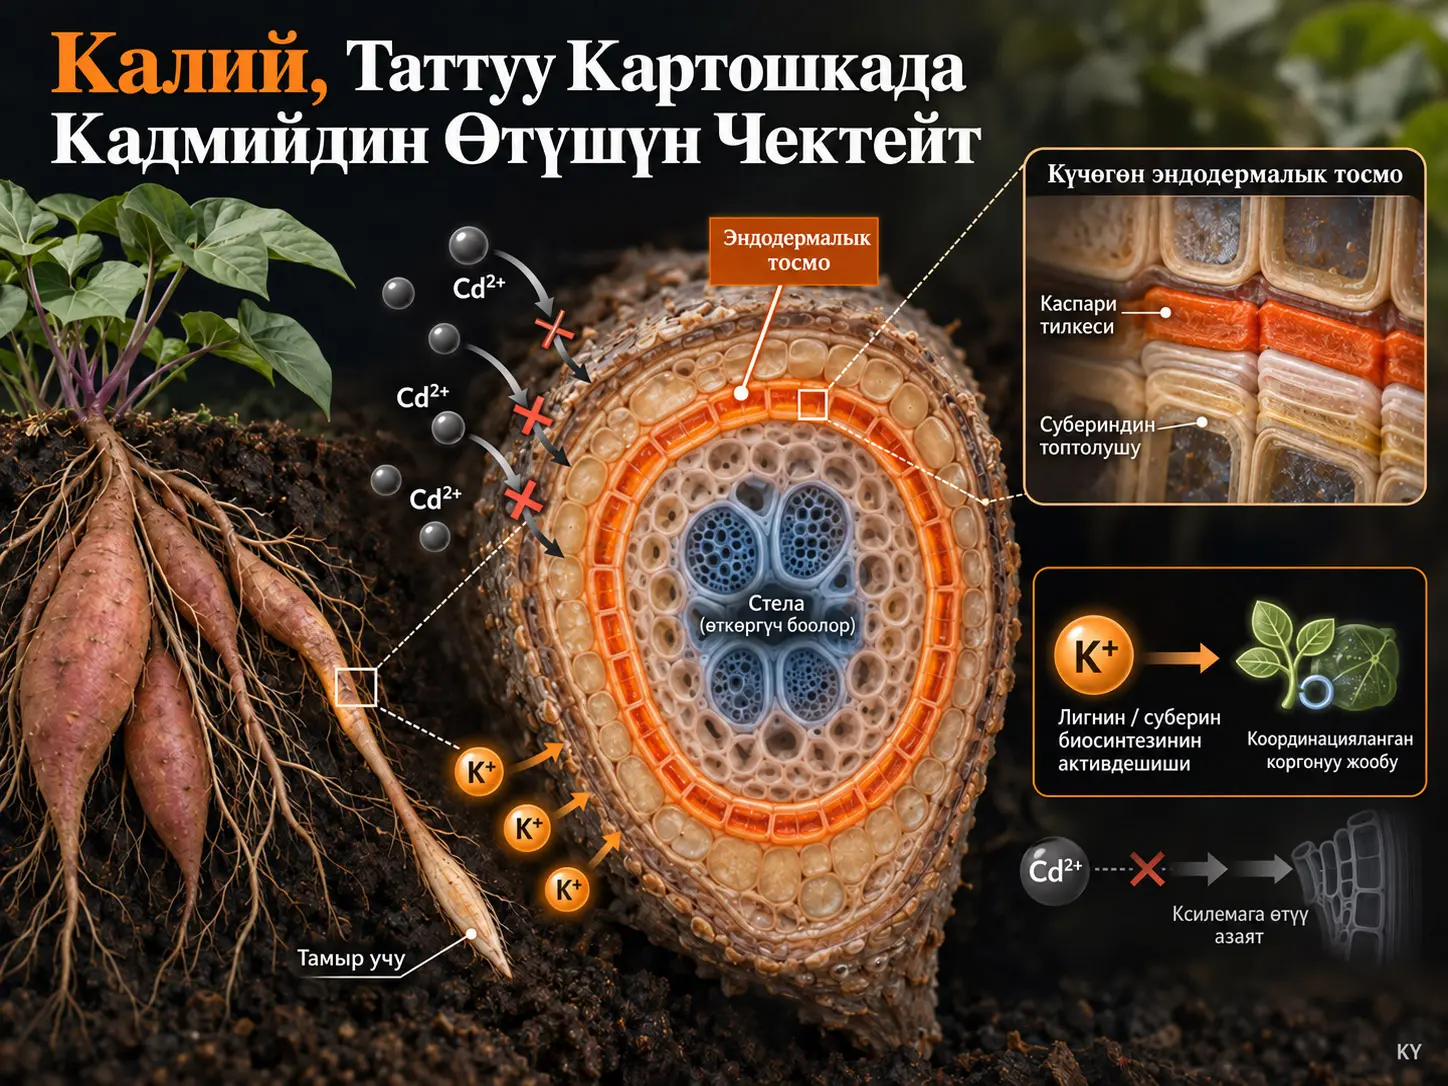
Таттуу картошканын тамырындагы эндодермалык тосмо — тамыр өткөргүч цилиндрине жеткен суунун жана эриген заттардын радиалдык кыймылын чектеген Каспари тилкеси менен суберин ламеллаларынан түзүлгөн тандалма тамыр коргонуу системасы. Бул изилдөө кадмийге дуушар кылынган, Cd аз топтогон таттуу картошка сортунда жетиштүү калий бул тосмону жана тамырдын клетка тибине мүнөздүү коргонуу программаларын кандай өзгөртөрүн бир ядролук RNA секвенирлөө, гендердин кошо-экспрессия анализи, метаболит өлчөөлөрү, гистохимиялык боёолор жана электрондук микроскопия аркылуу изилдеген. Изилдөөчүлөр 3 mM K⁺ колдонуу эндодермисте лигнин жана суберин түзүлүшү менен байланышкан гендерди активдештиргенин, Каспари тилкеси менен субериндин топтолушун күчөткөнүн жана кадмийдин өткөргүч ткандарга өтүшүн чектей ала турган көп катмарлуу тамыр жооп реакциясын пайда кылганын билдиришет. Бирок изилдөөдө түздөн-түз Cd агымы же ткандын Cd концентрациясы сандык түрдө өлчөнбөгөндүктөн, кадмийдин сиңирилиши канчалык азайганы бул эксперименттен өз алдынча сандык мааниде чыгарылбайт.
Бир ядролук транскриптомдо K0Cd1 шартынан 13.598 жана K1Cd1 шартынан 10.175 ядро сапат контролунан өткөн; 19 транскрипциялык кластер тогуз тамыр клетка тибине бөлүнгөн. Эки калий шартынын ортосунда жалпы 16.886 дифференциалдуу экспрессияланган ген аныкталган. Эндодермисте MYB1, MYB54 жана MYB308 сыяктуу транскрипция факторлору жана лигнин/суберин биосинтезине байланышкан гендер өзгөчөлөнсө; эпидермис менен кортексте оксидативдүү стресс жообу менен байланышкан WRKY/NAC/MYB тармактары, ал эми ксилемада экинчи клетка дубалынын түзүлүшү менен байланышкан NAC факторлору даана көрүнгөн. K⁺ берүү ошондой эле көптөгөн RPL жана RPS рибосомалык белок гендеринин Cd шартында байкалган жогорку экспрессиясын азайткан. Авторлордун “энергия бөлүштүрүүнү кайра программалоо” деген түшүндүрмөсү ушул транскрипциялык өзгөрүүгө негизделет; клеткалык энергиянын түздөн-түз керектелиши өлчөнгөн эмес.
Изилдөөнүн негизги маселеси
Кадмий өсүмдүктөр үчүн зарыл эмес жана төмөн концентрацияларда да оксидативдүү стресс, азыктык тең салмаксыздык жана фотосинтездик бузулуу жарата ала турган уулуу металл. Топурактагы Cd²⁺ тамырлар аркылуу сиңип, өсүмдүктүн жегенге жарактуу бөлүктөрүнө ташылышы мүмкүн. Таттуу картошкада бул маселе өзгөчө маанилүү, анткени керектелүүчү запастык тамыр түздөн-түз топурак-тамыр системасынын бөлүгү болуп саналат.
Калий болсо ферменттердин активдешүүсү, белок синтези, фотосинтез, устьицалардын кыймылы жана клеткалык тургор сыяктуу көптөгөн өсүмдүк функциялары үчүн зарыл макроэлемент. Таттуу картошканын калийге муктаждыгы жогору болгондуктан, K жетишсиздиги менен Cd булгануусунун бир эле чөйрөдө болушу өндүрүш жана продукциянын коопсуздугу жагынан кош багыттуу стресс түзүшү мүмкүн.
Мурунку изилдөөлөр жетиштүү K менен азыктандыруу өсүмдүктөрдө Cd топтолушун азайтышы мүмкүн экенин көрсөткөнү менен, тамырдын ар башка клетка типтери бул өз ара таасирге кандай катышары жетиштүү чечмеленген эмес. Бул изилдөөнүн негизги суроосу калий Cd стресси астындагы таттуу картошка тамырында эпидермис, кортекс, эндодермис жана өткөргүч ткандарда бирдей жооп жаратабы же жокпу эмес; ар бир клетка катмары коргонууга ар башка милдет менен катышабы деген суроо.
Эксперименттик салыштыруунун логикасы
Изилдөөчүлөр Cd аз топтогон Nan88 таттуу картошка сортун колдонушкан. Көчөттөр бирдей Cd деңгээлинде эки калий шартына бөлүнгөн:
| Шарт | Калий | Кадмий | Илимий максат |
|---|---|---|---|
| K0Cd1 | 0 mM K+ | 0,1 mg/L Cd2+ | K жетишсиздигинде Cd жообун аныктоо |
| K1Cd1 | 3 mM K+ | 0,1 mg/L Cd2+ | Жетиштүү K болгондо ошол эле Cd таасирине берилген жоопту аныктоо |
Ошентип Cd деңгээли туруктуу кармалып, негизги эксперименттик салыштыруу калийдин бар-жогуна негизделген. K0Cd1 эритмесинде KH2PO4 жана KNO3 тиешелүү NaH2PO4 жана NaNO3 туздары менен алмаштырылып, калийден башка азык кириштерин мүмкүн болушунча сактоо көздөлгөн.
Бир Ядролук RNA Секвенирлөө Бул Изилдөөдө Эмнени Ачып Берди?
Бир ядролук RNA секвенирлөө (SnRNA-seq) таттуу картошканын тамырындагы ар башка клетка типтери бирдей кадмий таасири астында калийге бири-биринен айырмаланган транскрипциялык жооп берерин көрсөттү; изилдөөчүлөр 19 транскрипциялык кластерди тогуз клетка тибине бөлүп, K0Cd1 менен K1Cd1 шарттарынын ортосунда жалпы 16.886 дифференциалдуу экспрессияланган генди аныкташкан.
Тамырдын клеткалык атласы
Эки SnRNA-seq үлгүсүнүн ар биринде 450 миллиондон ашык окуу алынган жана окуулардын %82ден көбү колдонулган референстик геномго картага түшүрүлгөн. Сапат фильтринен кийин K0Cd1 үлгүсүндө 13.598, K1Cd1 үлгүсүндө 10.175 ядро анализге киргизилген. Ар бир ядрого туура келген медианалык ген саны тиешелүүлүгүнө жараша 1.319 жана 1.452 болгон.
UMAP негизиндеги кластерлөө 19 транскрипциялык кластер түзүп, 44 маркер гендин жардамы менен төмөнкү тогуз клетка тиби аныкталган:
- эпидермис,
- кортекс,
- эндодермис,
- флоэма,
- ксилема,
- стела,
- тынч борбор (quiescent center, QC),
- өзөк клетка нишасы (stem cell niche, SCN),
- проксималдык меристема (PM).
Эпидермис кластерлеринде XTH23 жана ZIP1; кортексте EARLI1; эндодермисте DIR10 жана At4g17280; ксилемада At2g25060 жана At3g51220 сыяктуу маркерлер клеткаларды идентификациялоону колдогон. Калийге жооп берген жогору жөнгө салынган гендердин клетка типтеринин ортосундагы Pearson корреляция коэффициенттеринин 0,19дан 0,88ге чейин өзгөрүшү жалпы стресс программалары менен катар даана клетка-тибине мүнөздүү жооптор да бар экенин көрсөтөт.
Дифференциалдуу ген экспрессиясынын клеткалык бөлүштүрүлүшү
| Клетка тиби | DEG саны |
|---|---|
| Ксилема | 1.977 |
| Кортекс | 1.310 |
| Эндодермис | 1.129 |
| Эпидермис | 1.078 |
| Стела | 971 |
| Флоэма | 846 |
Алты негизги клетка тибинде рибосоманын түзүмдүк компоненттери, пептид биосинтези жана трансляция сыяктуу функциялар жалпы түрдө байыган. Рибосома жолу бардык алты негизги клетка тибинде даана көрүнсө, нуклеоцитоплазмалык ташуу ксилемадан башка клеткаларда; оксидативдүү фосфорлануу эпидермис, кортекс, эндодермис жана флоэмада; Calvin цикли аркылуу көмүртек фиксациясы эпидермис, кортекс, флоэма жана стелада байыган.
WGCNA аркылуу жөнгө салуучу тармактарды ажыратуу
Изилдөөчүлөр тогуз клетка тибиндеги дифференциалдуу гендерден салмакталган ген кошо-экспрессия тармагынын анализин түзүшкөн. WGCNA үчүн Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 жана unsigned TOM колдонулуп; гендер 11 кошо-экспрессия модулуна бөлүнгөн.
Эң чоң модуль 2.464 ген камтыган greenyellow, эң кичине модуль болсо алты ген камтыган grey модулу болгон. Эндодермиске байланышкан кызыл модулда MYB1 жана MYB308 менен лигнин жана суберин биосинтезиндеги көптөгөн гендер чогуу жайгашкан. NAC075, NAC079 жана NAC100 факторлору да бул эндодермалык жөнгө салуучу тармак менен жакын байланышта экени билдирилген.
Каспари Тилкеси жана Суберин Ламеллалары Кадмийдин Ташылышын Кантип Чектейт?
Каспари тилкеси эндодермалык клетка дубалындагы лигнинге бай радиалдык диффузия тосмосу, ал эми суберин ламеллалары эндодермалык клетка дубалын каптаган гидрофобдук тосмо болуп саналат; алар биргелешип тамырдын сырткы катмарларынан өткөргүч цилиндрге жеткен заттардын көзөмөлсүз өтүшүн чектейт жана бул изилдөөдө калий берүү эки тосмонун тең түзүлүшү менен байланышкан генетикалык жана түзүмдүк көрсөткүчтөрдү күчөткөн.
Эндодермистеги лигнин жана суберин программасы
K1Cd1 шартында эндодермалык клеткаларда лигнин жана суберин түзүлүшү менен байланышкан 17 ген/фактор даана көрүнгөнү билдирилген. Аларды төрт функционалдык топко бөлүүгө болот:
- Лигнин биосинтези: 4CL, HCT4, CCoAOMT, CCoAOMT5, LAC5 жана PER11.
- Суберин биосинтези: KCS1, KCS20, PAS2A, CYP86A1, CYP86B1, LACS4 жана GPAT5.
- Ташуучу белоктор: ABCG31 жана LTPG2.
- Транскрипция факторлору: MYB1 жана MYB308.
Изилдөө эндодермисти эки кичи типке бөлгөн: эндодермис 1 жана эндодермис 2. CCoAOMT5 жана 4CLден башка лигнин/суберин менен байланышкан дифференциалдуу гендердин көпчүлүгүндө эки дарылоонун ортосундагы өзгөрүү өзгөчө эндодермис 1 клеткаларында байкалганы көрсөтүлгөн.
Лигнин прекурсорлорундагы метаболизмдик өзгөрүү
Калий берилген K1Cd1 тобунда айрым лигнин прекурсорлору даана көбөйгөн:
| Метаболит | Өзгөрүү | Түшүндүрмө |
|---|---|---|
| L-фенилаланин | +%96,7 | Фенилпропаноид/лигнин жолунун эрте прекурсору |
| Ферул кислотасы | +%71,2 | Лигнин биосинтези менен байланышкан аралык метаболит |
| Синапил спирти | +%117,6 | S-лигнин прекурсору |
Тескерисинче, корич кислотасы, p-кумар кислотасы, кониферальдегид, кониферил спирти, p-кумаральдегид жана p-кумарил спиртинин деңгээлдеринде K0Cd1ге салыштырмалуу %38,4–68,8 арасында азайуу билдирилген. Бул метаболит профили өзүнчө жалпы лигнин өлчөмүнүн түздөн-түз өлчөөсү эмес; жолдун ар башка бутактарынын ортосундагы кайра бөлүштүрүүгө ишарат кылат.
Mäule боёосунда K0Cd1 тамырларынын өткөргүч клетка дубалдарындагы ачык кызгылт сары-кызыл көрүнүш K1Cd1 шартында кочкул кызылга өзгөргөнү авторлор тарабынан S-лигниндин топтолушунун көбөйүшүнө шайкеш деп түшүндүрүлгөн.
Электрондук микроскопия жана суберинди боёо
Трансмиссиялык электрондук микроскопия тамыр учунан 4–5 mm аралыктагы эндодермалык Каспари тилкесинде K1Cd1 тобунда даанараак электрон-тыгыз түзүлүштү көрсөткөн. Тамыр учунан 9–10 mm аралыкта да лигнин топтолушу көбөйгөнү билдирилген.
Fluorol Yellow 088 боёосу эндодермалык суберин топтолушу жаш да, жетилгенирээк да тамыр аймактарында K1Cd1 шартында көбөйгөнүн көрсөткөн. Жаш тамыр аймагындагы суберин флуоресценциясынын интенсивдүүлүгү K0Cd1 маанисинин 1,53 эсесине жетип, айырма p < 0,05 деп билдирилген.
Клетка тибине мүнөздүү транскрипция факторлорунун катмары
Тамыр бетине жакын эпидермис жана кортекс клеткаларында WRKY6, WRKY27, WRKY40 жана ERF109 сыяктуу факторлордун K1Cd1 шартында активдешүүсү авторлор тарабынан Cd пайда кылган оксидативдүү стресске каршы күрөшкөн коргонуу системаларынын күчөшү менен байланыштырган. Бул изилдөө тиешелүү факторлордун экспрессиясын көрсөтөт; ROS тазалануу ылдамдыгы түздөн-түз ушул факторлор тарабынан канчалык көбөйгөнү өзүнчө өлчөнгөн эмес.
Эндодермисте MYB1, MYB54 жана MYB308; ксилемада NAC007, NAC073 жана NAC086 сыяктуу факторлордун өзгөчөлөнүшү коргонууда клетка катмарларынын ортосунда милдет бөлүштүрүү бар экенин көрсөтөт. Ксилемадагы NAC тармактары экинчи клетка дубалы, лигнин жана целлюлоза биосинтези менен байланыштырылган.
Флоэмада MYB3, MYB48 жана MYB108дин спецификалык жогорулашы да билдирилген. Бирок авторлор бул флоэмага мүнөздүү MYB факторлорунун алыс аралыктагы Cd ташылышына же сигнал берүүгө кандай таасир этери азырынча түшүндүрүлбөгөнүн жана бул келечектеги изилдөөлөр үчүн ачык суроо экенин белгилешет.
Рибосомалык стресс жообу
Беш дифференциацияланган тамыр клетка катмарында 116 RPL жана 87 RPS гени дифференциалдуу экспрессияланган. K0Cd1 шартында бул гендердин жалпы экспрессиясы жогору; айырма өзгөчө кортекс жана ксилемада даана. Кортексте 108 RPL жана 81 RPS генинин эки шарт ортосундагы абсолюттук fold change мааниси 2ден чоң экени билдирилген.
Кортекс клеткаларынын pseudotime анализи эки өнүгүү бутагын көрсөткөн. Жалпы 3.480 бутакка көз каранды ген беш кластерге бөлүнүп; кластер 1де 711, кластер 2де 1.281 ген болгон. Бул эки кластер бирге бутакка көз каранды гендердин %57,2син түзгөн. RPL жана RPS гендеринин баары генетикалык маалыматты иштетүү жана клеткалык процесстер менен байланышкан кластер 2де жайгашкан.
Калийдин “Энергия Бөлүштүрүүнү Кайра Программалоосу” Түздөн-Түз Өлчөндүбү?
Жок. Изилдөөдө ATP өндүрүлүшү, дем алуу энергиясы, энергия бюджети же клеткалык энергия агымы түздөн-түз өлчөнгөн эмес; “энергия бөлүштүрүүнү кайра программалоо” түшүндүрмөсү K жетишсиздигинде жогорулаган рибосомалык белок гендеринин жетиштүү K шартында басаңдашы менен клетка дубалы жана коргонуу программаларынын күчөшүн бирге баалоого негизделген транскрипциялык жыйынтык.
Бул айырма маанилүү. RPL/RPS экспрессиясынын азайышы рибосома биогенезине бөлүнгөн клеткалык ресурстарга болгон талаптын азайышына шайкеш келиши мүмкүн; бирок ген экспрессиясынын маалыматтары өзүнчө энергия керектөөнүн сандык жактан канчасы башка метаболизмдик жолго багытталганын көрсөтпөйт. Ошондуктан изилдөө ишенимдүү колдогон тыянак — калий Cd стресси астындагы транскрипциялык ресурстарды колдонуу үлгүсүн өзгөртөт.
Изилдөө сунуштаган көп катмарлуу механизм
- Эпидермис жана кортекс: Калий менен бирге стресс жана антиоксидант жооптор менен байланышкан транскрипция факторлорунун тармактары активдешет.
- Эндодермис: MYB1, MYB54 жана MYB308 менен лигнин/суберин биосинтезине байланышкан гендердин экспрессиясы жогорулайт.
- Каспари тилкеси жана суберин ламеллалары: Гистохимиялык жана ультраструктуралык далилдер эндодермалык тосмо күчөгөнүн көрсөтөт.
- Ксилема: NAC007/NAC073/NAC086 менен байланышкан экинчи клетка дубалы программалары өзгөчөлөнөт.
- Рибосомалык программа: K0Cd1де жогору болгон көптөгөн RPL/RPS гендери K1Cd1 шартында төмөнүрөөк экспрессия көрсөтөт.
- Жалпы түшүндүрмө: Авторлор бул катмарларды биргелешип Cdнин тамырдан өткөргүч системага жана жогорку органдарга ташылышын чектеген координацияланган коргонуу модели катары түшүндүрүшөт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Өсүмдүктөрдү өстүрүү жана колдонмолор
Изилдөөдө мурунку иштерде Cd аз топтогон сорт катары аныкталган Nan88 колдонулган. Бир эле эне өсүмдүктөн алынган, эки муун жана жалбырак алып жүргөн сабак бөлүктөрүнүн төмөнкү жалбырагы алынып, төмөнкү мууну деиондоштурулган сууга салынган. Үч күн тамырлангандан кийин көчөттөр K0Cd1 же K1Cd1 шартына өткөрүлгөн.
Өстүрүү бөлмөсүнүн шарттары:
- Фотопериод: 16 саат,
- күндүз/түнкү температура: 28/22°C,
- жарык күчү: 150 µmol·m−2·s−1,
- салыштырмалуу нымдуулук: %60–70,
- азыктандыруучу эритмени жаңыртуу жыштыгы: 3 күндө бир,
- эритменин pHы: 6,0.
Ядролорду бөлүп алуу
Бир жумалык колдонмодон кийин тамыр учунун 0,5–3,0 cm бөлүгү алынган. Ткань суюк азотто майдаланып, %5 Dextran T40, 0,4 M сахароза, 10 mM MgCl2, 1 mM DTT, 2 U/µL RNase ингибитору, %0,1 Triton X-100 жана 100 mM Tris-HCl камтыган ядро бөлүп алуу буфери менен иштетилген.
Биринчи центрифугалоо 300 ×gде 1 мүнөт, экинчи центрифугалоо 2.000 ×gде 5 мүнөт жүргүзүлгөн. Үлгүлөр 70 жана 40 µm клетка сүзгүлөрүнөн өткөрүлүп; ядролор PBS/BSA/RNaz ингибитору камтылган жуу буферинде суспензияланган. Баштапкы максат 1.000–2.000 ядро/µL, флуоресценция менен активдештирилген ядро сорттоодон кийин болжол менен 1.000 ядро/µL деп берилген.
SnRNA-seq китепканасы жана секвенирлөө
Жеке ядролор, штрих-коддолгон гель мончоктору жана ферменттер микротамчылардын ичинде GEM түзүлүштөрүнө алынган. Тескери транскрипция учурунда 10 базалык уникалдуу молекулалык идентификаторлор жана 16 базалык клетка штрих-коддору cDNAга кошулган. Китепкана Chromium Next GEM Single Cell 3' Reagent Kits v3.1 менен даярдалып, Illumina NovaSeq X Plus, PE150 колдонулуп секвенирленген.
Биоинформатикалык сапат контролу жана кластерлөө
Чийки SnRNA-seq маалыматтары Cell Ranger 8.0.0 менен иштетилип, I. trifida v3 референсине тегизделген. Экспрессия матрицасы R чөйрөсүндө Seurat 5.1.0 менен анализденген.
Төмөн сапаттагы ядролор төмөнкү критерийлер менен чыгарылган:
- штрих-коддун уникалдуу түрдө бир клеткага дал келбеши,
- ядро башына ген саны 410дон төмөн же 4.600дөн жогору болушу,
- ядро башына UMI саны 12.000ден жогору болушу.
Нормалдаштырылган экспрессия маалыматтарында негизги компоненттер анализи жүргүзүлгөн; партиялык эффект Harmony менен оңдолуп, кластерлер UMAP аркылуу эки өлчөмдүү түрдө көрсөтүлгөн.
Маркер ген жана DEG критерийлери
Клетка кластерлериндеги жогору жөнгө салынган маркер гендерди аныктоодо Wilcoxon рангдар суммасы тести колдонулган. Маркер талапкер ген үчүн максаттуу кластердеги ядролордун %25тен көбүндө экспрессия, fold change ≥ 1,28 жана p ≤ 0,01 шарттары талап кылынган.
Эки K колдонмосунун ортосундагы дифференциалдуу гендер үчүн:
- |log2 fold change| ≥ 0,58,
- p ≤ 0,05,
- min.pct > %25
чектери колдонулган. Функционалдык түшүндүрүү үчүн GO жана KEGG байытуу анализдери жүргүзүлгөн.
Pseudotime анализи
Кортекс клеткаларынын өнүгүү траекториялары Monocle 2 колдонулуп изилденген. Анализ эки негизги өнүгүү бутагын көрсөтүп, DIR23тү кошкондо маркер гендердин бутактар боюнча айырмаланган бөлүштүрүлүшү билдирилген.
WGCNA
Тогуз клетка тибинде аныкталган DEGдердин бирикмесинен WGCNA тармагы түзүлгөн. Колдонулган негизги параметрлер Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 жана unsigned TOM болгон. Модуль ичиндеги байланыш K.in жана module membership маанилери аркылуу hub ген талапкерлери бааланып, тармактар Cytoscape 3.10.3 менен визуалдаштырылган.
Лигнин гистохимиясы жана метаболит анализи
Бир жумалык колдонмонун аягында тамыр учунан 6,5–8,5 cm алыстыктагы кесиндилер %1 KMnO4, %36 HCl жана %29 NH4OH менен иштетилип, Olympus BX53 микроскобунда каралган.
Метаболит анализи үчүн колдонмонун 18-күнүндө алынган тамырлар лиофилизацияланып майдаланган; 50 mg порошок 1,2 mL муздак %70 метанол/суу аралашмасы менен экстракцияланган. Экстракттар ExionLC AD UPLC жана ESI-triple quadrupole-linear ion trap QTRAP MS системасы менен анализденген. Бөлүүдө Agilent SB-C18, 1,8 µm, 2,1 × 100 mm колонкасы колдонулуп; мобилдик фазанын агым ылдамдыгы 0,35 mL/мүнөт, инъекция көлөмү 2,0 µL деп берилген.
Каспари тилкеси жана суберин анализи
Тамыр учунан 4–5 mm жана 9–10 mm аралыктагы үлгүлөр %2,5 глутаральдегид менен фиксацияланып, эпоксид чайырына салынган жана Leica EM UC7 ультрамикротому менен 100 nm ультражука кесиндилер даярдалган. Кесиндилер уранил ацетат, коргошун цитрат жана %5 KMnO4 менен боёлуп; Hitachi H-7650 трансмиссиялык электрондук микроскопунда сүрөткө алынган.
Каспари тилкесиндеги лигнинди аныктоо үчүн 9–10 mm аймагындагы кесиндилерге %2 phloroglucinol-HCl колдонулган. Суберин %0,01 Fluorol Yellow 088 менен боёлуп, Olympus BX53 микроскобунда 0,5 секунддук экспозиция менен сүрөткө алынган. Сүрөттөрдү сандык баалоодо ImageJ 1.54k, эки дарылоонун ортосундагы айырмаларды текшерүүдө көз карандысыз үлгүлөрдүн t-тести колдонулган.
Негизги сандык жыйынтыктар
| Өлчөө | K0Cd1 / жалпы | K1Cd1 / жыйынтык | Түшүндүрүү чеги |
|---|---|---|---|
| Секвенирлөө окуулары | Ар бир үлгүдө >450 миллион | SnRNA-seq техникалык чыгышы. | |
| Референстик геномго картага түшүү | >%82 | Секвенирлөө сапатынын көрсөткүчү. | |
| Сапаттан кийинки ядролор | 13.598 | 10.175 | Клетка сандары түздөн-түз дарылоонун таасири катары чечмеленбеши керек. |
| Медианалык ген/ядро | 1.319 | 1.452 | Техникалык/транскриптомдук сапат метрикасы. |
| Транскрипциялык кластер | 19 | Тогуз клетка тибине бөлүнгөн. | |
| Жалпы DEG | 16.886 | K0Cd1–K1Cd1 салыштыруусу. | |
| WGCNA модулу | 11 | Кошо-экспрессия байланышын көрсөтөт; өзүнчө себептүүлүктү далилдебейт. | |
| L-фенилаланин | Референс | +%96,7 | K1Cd1/K0Cd1 метаболит айырмасы. |
| Ферул кислотасы | Референс | +%71,2 | K1Cd1/K0Cd1 метаболит айырмасы. |
| Синапил спирти | Референс | +%117,6 | S-лигнин прекурсорундагы өзгөрүү. |
| Жаш тамырдагы суберин флуоресценциясы | 1,00 | 1,53 эсе | p < 0,05; гистохимиялык интенсивдүүлүк салыштыруусу. |
Изилдөө түздөн-түз колдогон жыйынтыктар
- Калийдин болушу Cd стресси астындагы тамыр клеткаларында клетка-тибине мүнөздүү кеңири транскрипциялык өзгөрүүлөрдү жараткан.
- Эндодермисте лигнин жана суберин биосинтезине байланышкан ген тармактары K1Cd1 шартында күчөгөн.
- Каспари тилкеси жана суберин топтолушунун түзүмдүк/гистохимиялык көрсөткүчтөрү K колдонуу менен көбөйгөн.
- Лигнин биосинтези менен байланышкан метаболит профили K0Cd1 менен K1Cd1 ортосунда даана өзгөргөн.
- RPL жана RPS гендеринин Cd шартындагы жогорку экспрессиясы жетиштүү K болгондо жалпы түрдө азайган.
- Эпидермис, кортекс, эндодермис, флоэма жана ксилема бирдей молекулалык жооп берген эмес; ар башка транскрипция факторлорунун үй-бүлөлөрү жана клеткалык функциялар өзгөчөлөнгөн.
Изилдөө өз алдынча колдобогон жыйынтыктар
- Бул эксперимент K1Cd1 тобунда Cd концентрациясы так канча пайызга азайганын көрсөтпөйт; бул изилдөөнүн методдорунда ткандын Cd көлөмүн түздөн-түз сандык аныктоо билдирилген эмес.
- Ген экспрессиясынын өзгөрүүлөрү MYB же NAC факторлору тиешелүү максат гендерди түздөн-түз жана себептик түрдө көзөмөлдөй турганын өзүнчө далилдебейт.
- RPL/RPS басаңдашы ATP же энергия агымы коргонуу жолдоруна түздөн-түз багытталганын сандык өлчөө эмес.
- Контролдонуучу өстүрүү бөлмөсүндөгү жыйынтыктар талаа шартындагы натыйжалуулукту өзүнчө далилдебейт.
- Nan88 сортунда байкалган жооп бардык таттуу картошка генотиптеринде бирдей өлчөмдө жүрөрү көрсөтүлгөн эмес.
- Флоэмага мүнөздүү MYB3, MYB48 жана MYB108дин алыс аралыктагы Cd ташылышындагы механизмдик ролу бул изилдөөдө чечилген эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө:Potassium reinforces endodermal barriers and reprograms energy allocation to block cadmium uptake in sweet potato
Авторлор жана ирети: Huiling Fu; Baifei Huang; Yingying Huang; Zhipeng Chen; Chuang Shen; Pan Cao; Qiong Liao; Junliang Xin.
Жооптуу авторлор: Baifei Huang жана Junliang Xin.
Мекемелер: School of Chemical and Environmental Engineering, Hunan Institute of Technology, Hengyang 421002, China; Hunan Chemical Vocational Technology College, Zhuzhou 412000, China.
Платформа: SSRN.
SSRN жазуусу: abstract=7358620.
DOI: Жүктөлгөн preprintте DOI билдирилген эмес.
Журнал / том / номер: Жүктөлгөн версияда рецензияланган журнал, том же номер тууралуу маалымат берилген эмес.
Рецензия статусу: Preprint; документ рецензиядан өтпөгөнүн ачык билдирет.
Лицензия: Жүктөлгөн версияда ачык Creative Commons же ага окшош кайра колдонуу лицензиясы көрсөтүлгөн эмес.
Маалыматтардын жеткиликтүүлүгү: Чийки маалыматтар China National Center for Bioinformation, Chinese Academy of Sciences курамында GSA: CRA031773 коду менен сакталганы билдирилген.
Кызыкчылыктардын кагылышы: Авторлор изилдөөгө таасир эте турган белгилүү каржылык кызыкчылык же жеке мамиле жок экенин билдиришкен.
Каржылоо: Изилдөө National Natural Science Foundation of China (42577160), Scientific Research Foundation of Hunan Provincial Education Department (23B0824), Hunan Provincial Natural Science Foundation of China (2025JJ50189), College Students Research Learning and Innovative Experiment Project of Hunan Province (S202611528182) жана Hengyang Science and Technology Innovation Plan Project (202330046395) тарабынан колдоого алынган.
Автордук салымдар: Baifei Huang, Huiling Fu жана Junliang Xin изилдөөнү пландап жана долбоорлошкон. Zhipeng Chen, Pan Cao жана Qiong Liao маалыматтарды чогулткан. Huiling Fu, Yingying Huang жана Chuang Shen маалыматтарды анализдеп, сүрөттөрдү даярдашкан. Huiling Fu, Junliang Xin жана Baifei Huang макаланы жазып жана редакциялашкан.
Негизги методологиялык чектөөлөр: Изилдөө контролдонуучу өстүрүү шарттарындагы бир гана төмөн-Cd таттуу картошка сортуна негизделет. Учурдагы текстте SnRNA-seq үчүн биологиялык кайталоонун түзүлүшү кеңири түшүндүрүлгөн эмес. Молекулалык тармактардын маанилүү бөлүгү экспрессия корреляциясына жана адабиятта белгилүү ген функцияларына негизделет. Түз Cd концентрациясы же Cd агымы өлчөнбөгөндүктөн, эндодермалык тосмонун күчөшү менен Cd сиңирилишинин азайышынын ортосундагы механизмдик чынжырдын акыркы баскычы бул экспериментте түздөн-түз сандык аныкталган эмес. Ошол сыяктуу “энергияны кайра бөлүштүрүү” транскриптомдук түшүндүрмө болуп, түз энергия метаболизмин өлчөөгө негизделбейт.
Булак ичиндеги визуалдык эскертүү: 8-сүрөттүн K/L панели боюнча түшүндүрмөдө текст менен сүрөттүн ортосунда тескери дал келбестик көрүнөт; негизги жыйынтык тексти жана панелдин огу суберин флуоресценциясынын 1,53 эсе өсүшү L панели менен байланышта экенин колдойт. 1A-сүрөттөгү “Protoplasts Enzyme” белгиси да материал-ыкмада сүрөттөлгөн ядро бөлүп алуу/FANS протоколу менен терминологиялык жактан шайкеш эмес көрүнөт. Бул жагдайлар унчукпай оңдолгон жок, булактагы белгисиздик катары сакталды.
Формула абалы: Изилдөөнүн негизги ыкмасын же жыйынтыктарын алып жүргөн борбордук математикалык теңдеме жок; ошондуктан булакта жок формула Verianla макаласына кошулган эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген