

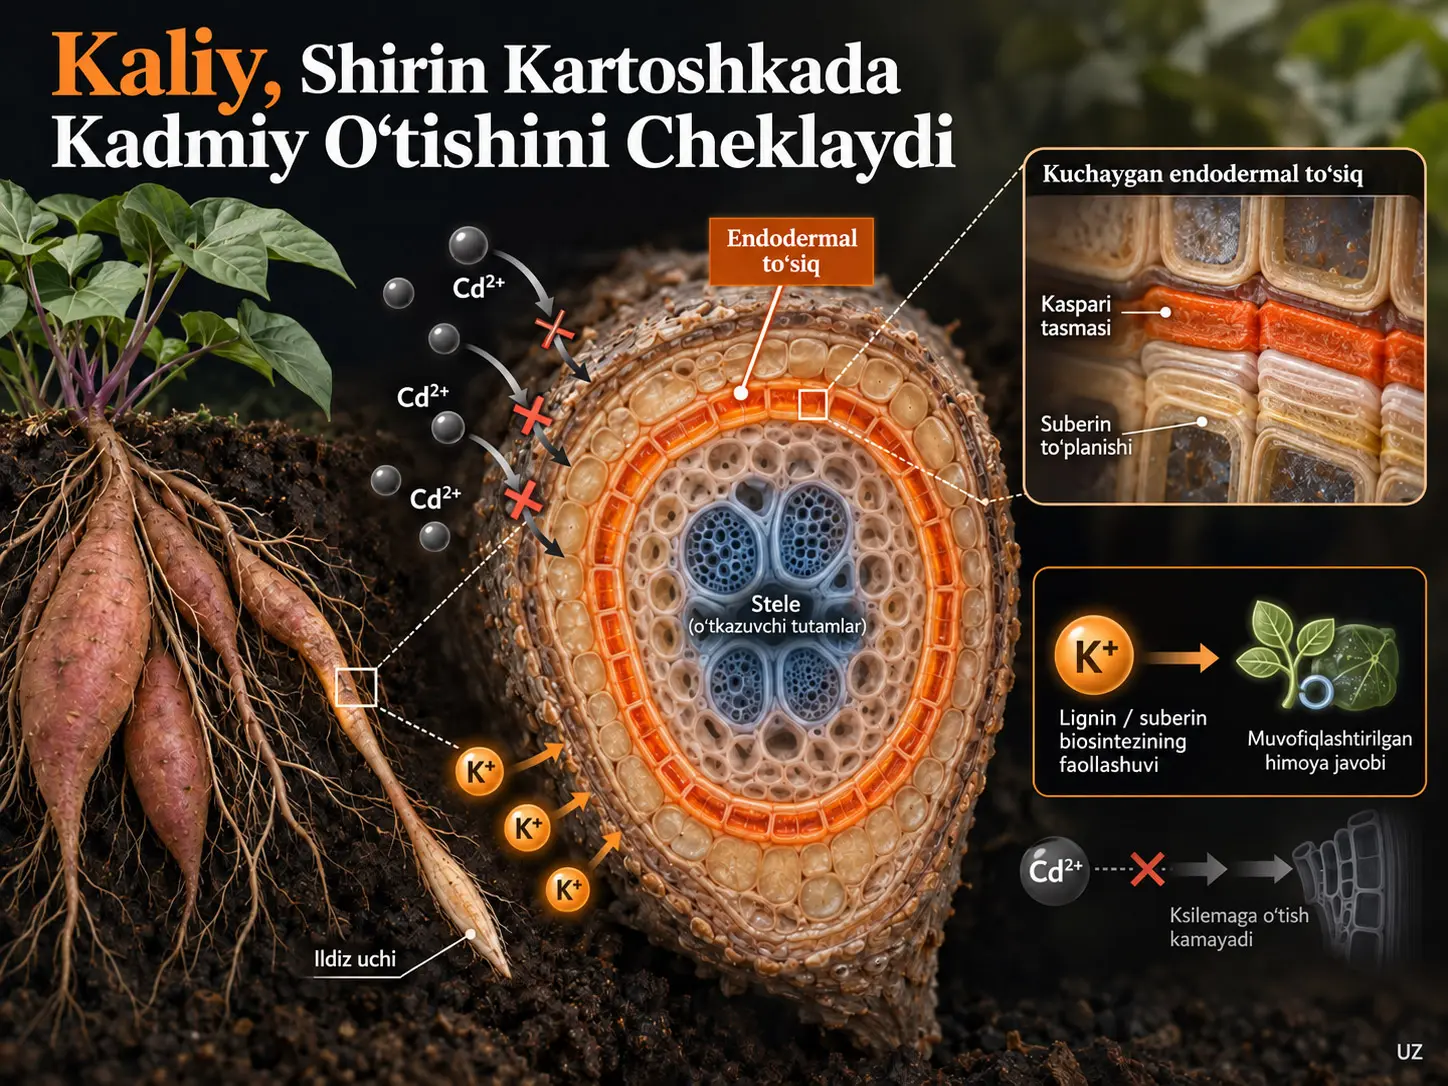
Shirin kartoshka ildizining endodermal to‘sig‘i tomir silindriga yetib boradigan suv va erigan moddalarning radial harakatini cheklaydigan Kaspari tasmasi hamda suberin lamellalaridan tashkil topgan tanlab o‘tkazuvchi ildiz himoya tizimidir. Ushbu tadqiqot kadmiyga duchor qilingan, Cd ni kam to‘playdigan shirin kartoshka navida yetarli kaliy bu to‘siqni va ildizning hujayra turiga xos himoya dasturlarini qanday o‘zgartirishini bir yadroli RNA sekvenslash, genlarning birgalikdagi ekspressiyasi tahlili, metabolit o‘lchovlari, gistokimyoviy bo‘yashlar va elektron mikroskopiya yordamida o‘rgangan. Tadqiqotchilar 3 mM K⁺ qo‘llanishi endodermisda lignin va suberin hosil bo‘lishi bilan bog‘liq genlarni faollashtirganini, Kaspari tasmasi va suberin to‘planishini kuchaytirganini hamda kadmiyning tomir to‘qimalariga siljishini cheklashi mumkin bo‘lgan ko‘p qatlamli ildiz javobini shakllantirganini xabar qiladilar. Biroq tadqiqotda to‘g‘ridan-to‘g‘ri Cd oqimi yoki to‘qimadagi Cd konsentratsiyasi miqdoriy baholanmagani sababli, kadmiy qabulining qanchalik kamaygani ushbu tajribadan mustaqil sonli qiymat sifatida chiqarib bo‘lmaydi.
Bir yadroli transkriptomda K0Cd1 sharoitidan 13.598 va K1Cd1 sharoitidan 10.175 yadro sifat nazoratidan o‘tgan; 19 transkripsion klaster to‘qqizta ildiz hujayra turiga biriktirilgan. Ikki kaliy sharoiti o‘rtasida jami 16.886 differensial ifodalangan gen aniqlangan. Endodermisda MYB1, MYB54 va MYB308 kabi transkripsiya omillari hamda lignin/suberin biosinteziga oid genlar ajralib turgan; epidermis va korteksda oksidlovchi stress javobi bilan bog‘langan WRKY/NAC/MYB tarmoqlari, ksilemada esa ikkilamchi hujayra devori shakllanishi bilan bog‘langan NAC omillari yaqqol namoyon bo‘lgan. K⁺ berilishi, shuningdek, ko‘plab RPL va RPS ribosomal oqsil genlarining Cd sharoitida kuzatilgan yuqori ekspressiyasini kamaytirgan. Mualliflarning “energiya taqsimotini qayta dasturlash” talqini ushbu transkripsion o‘zgarishga asoslanadi; hujayraning bevosita energiya sarfi o‘lchanmagan.
Tadqiqotning asosiy muammosi
Kadmiy o‘simliklar uchun zarur bo‘lmagan va hatto past konsentratsiyalarda ham oksidlovchi stress, oziqa moddalari muvozanatsizligi hamda fotosintetik buzilishlarni yuzaga keltirishi mumkin bo‘lgan zaharli metalldir. Tuproqdagi Cd²⁺ ildizlar orqali qabul qilinishi va o‘simlikning iste’mol qilinadigan qismlariga tashilishi mumkin. Shirin kartoshkada bu muammo ayniqsa muhim; chunki iste’mol qilinadigan zaxira ildiz bevosita tuproq-ildiz tizimining bir qismidir.
Kaliy esa fermentlarni faollashtirish, oqsil sintezi, fotosintez, og‘izchalar harakati va hujayra turgorini o‘z ichiga olgan ko‘plab o‘simlik funksiyalari uchun zarur makroelementdir. Shirin kartoshkaning kaliyga ehtiyoji yuqori bo‘lgani sababli, K tanqisligi bilan Cd ifloslanishining bir xil muhitda uchrashi ham ishlab chiqarish, ham mahsulot xavfsizligi nuqtai nazaridan ikki tomonlama stress keltirib chiqarishi mumkin.
Avvalgi tadqiqotlar yetarli K bilan oziqlantirish o‘simliklarda Cd to‘planishini kamaytirishi mumkinligini ko‘rsatgan bo‘lsa-da, ildizning turli hujayra turlari bu o‘zaro ta’sirda qanday qatnashishi yetarlicha aniqlashtirilmagan. Ushbu tadqiqotning asosiy savoli kaliyning Cd stressi ostidagi shirin kartoshka ildizida epidermis, korteks, endodermis va tomir to‘qimalarida bir xil javob hosil qilishi yoki qilmasligi emas; balki har bir hujayra qatlami himoyaga turli vazifa bilan qo‘shiladimi, degan masaladir.
Tajriba taqqoslashining mantiqi
Tadqiqotchilar Cd ni kam to‘playdigan Nan88 shirin kartoshka navidan foydalangan. Ko‘chatlar bir xil Cd darajasida ikki kaliy sharoitiga ajratilgan:
| Sharoit | Kaliy | Kadmiy | Ilmiy maqsad |
|---|---|---|---|
| K0Cd1 | 0 mM K+ | 0,1 mg/L Cd2+ | K tanqisligi sharoitidagi Cd javobini aniqlash |
| K1Cd1 | 3 mM K+ | 0,1 mg/L Cd2+ | Yetarli K mavjudligida ayni Cd ta’siriga javobni aniqlash |
Shu tariqa Cd darajasi o‘zgarmas saqlangan va asosiy tajriba taqqoslashi kaliy mavjudligiga qurilgan. K0Cd1 eritmasida KH2PO4 va KNO3 mos ravishda NaH2PO4 va NaNO3 tuzlari bilan almashtirilib, kaliydan boshqa oziqa kirimlarini imkon qadar saqlab qolish ko‘zlangan.
Bir Yadroli RNA Sekvenslash Ushbu Tadqiqotda Nimani Ko‘rsatdi?
Bir yadroli RNA sekvenslash (SnRNA-seq) shirin kartoshka ildizidagi turli hujayra turlari bir xil kadmiy ta’siri ostida kaliyga bir-biridan farqli transkripsion javob berishini ko‘rsatdi; tadqiqotchilar 19 transkripsion klasterni to‘qqizta hujayra turiga ajratdi va K0Cd1 bilan K1Cd1 sharoitlari o‘rtasida jami 16.886 differensial ifodalangan genni aniqladi.
Ildizning hujayraviy atlasi
Har ikki SnRNA-seq namunasi uchun 450 milliondan ortiq o‘qish olingan va o‘qishlarning %82 dan ko‘prog‘i foydalanilgan referens genomga moslashtirilgan. Sifat filtrlashidan so‘ng K0Cd1 namunasida 13.598, K1Cd1 namunasida 10.175 yadro tahlilga kiritilgan. Har bir yadroga to‘g‘ri keladigan median gen soni mos ravishda 1.319 va 1.452 ni tashkil etgan.
UMAP asosidagi klasterlash 19 transkripsion klaster hosil qilgan va 44 marker gen yordamida quyidagi to‘qqizta hujayra turi aniqlangan:
- epidermis,
- korteks,
- endodermis,
- floema,
- ksilema,
- stela,
- tinch markaz (quiescent center, QC),
- ildiz hujayra nishasi (stem cell niche, SCN),
- proksimal meristema (PM).
Epidermis klasterlarida XTH23 va ZIP1; korteksda EARLI1; endodermisda DIR10 va At4g17280; ksilemada At2g25060 va At3g51220 kabi markerlar hujayra identifikatsiyasini qo‘llab-quvvatlagan. Kaliyga javoban yuqori regulyatsiya qilingan genlarning hujayra turlari o‘rtasidagi Pearson korrelyatsiya koeffitsiyentlari 0,19 dan 0,88 gacha o‘zgarishi umumiy stress dasturlari bilan birga aniq hujayra-turiga xos javoblar ham mavjudligini ko‘rsatadi.
Differensial gen ifodasining hujayraviy taqsimoti
| Hujayra turi | DEG soni |
|---|---|
| Ksilema | 1.977 |
| Korteks | 1.310 |
| Endodermis | 1.129 |
| Epidermis | 1.078 |
| Stela | 971 |
| Floema | 846 |
Oltita asosiy hujayra turida ribosomaning strukturaviy tarkibiy qismlari, peptid biosintezi va translatsiya kabi funksiyalar umumiy tarzda boyigan. Ribosoma yo‘li barcha oltita asosiy hujayra turida yaqqol ko‘ringan bo‘lsa, nukleotsitoplazmatik transport ksilemadan tashqari hujayralarda; oksidlovchi fosforlanish epidermis, korteks, endodermis va floemada; Calvin sikli bilan uglerod fiksatsiyasi esa epidermis, korteks, floema va stelada boyigan.
WGCNA yordamida regulyator tarmoqlarni ajratish
Tadqiqotchilar to‘qqizta hujayra turidagi differensial genlardan og‘irliklangan gen birgalikdagi ekspressiya tarmog‘i tahlilini tuzgan. WGCNA uchun Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 va unsigned TOM qo‘llanilgan; genlar 11 ta birgalikdagi ekspressiya moduliga ajratilgan.
Eng katta modul 2.464 genni o‘z ichiga olgan greenyellow, eng kichik modul esa oltita genni o‘z ichiga olgan grey modulidir. Endodermis bilan bog‘liq qizil modulda MYB1 va MYB308 hamda lignin va suberin biosintezidagi ko‘plab genlar birga joylashgan. NAC075, NAC079 va NAC100 omillari ham ushbu endodermal regulyator tarmoq bilan yaqin bog‘liq ekani xabar qilingan.
Kaspari Tasmasi va Suberin Lamellalari Kadmiy Tashilishini Qanday Cheklaydi?
Kaspari tasmasi endodermal hujayra devoridagi ligninga boy radial diffuziya to‘sig‘i, suberin lamellalari esa endodermal hujayra devorini qoplaydigan gidrofob to‘siqdir; ular birgalikda ildizning tashqi qatlamlaridan tomir silindriga yetib boruvchi moddalarning nazoratsiz o‘tishini cheklaydi va ushbu tadqiqotda kaliy berilishi har ikki to‘siq hosil bo‘lishi bilan bog‘liq genetik hamda strukturaviy ko‘rsatkichlarni kuchaytirgan.
Endodermisda lignin va suberin dasturi
K1Cd1 sharoitida endodermal hujayralarda lignin va suberin hosil bo‘lishi bilan bog‘liq 17 gen/omil ajralib turgani xabar qilingan. Ularni to‘rtta funksional guruhga ajratish mumkin:
- Lignin biosintezi: 4CL, HCT4, CCoAOMT, CCoAOMT5, LAC5 va PER11.
- Suberin biosintezi: KCS1, KCS20, PAS2A, CYP86A1, CYP86B1, LACS4 va GPAT5.
- Tashuvchi oqsillar: ABCG31 va LTPG2.
- Transkripsiya omillari: MYB1 va MYB308.
Tadqiqot endodermisni ikki kichik turga ajratgan: endodermis 1 va endodermis 2. CCoAOMT5 va 4CL dan tashqari, lignin/suberin bilan bog‘liq differensial genlarning katta qismida ikki ishlov o‘rtasidagi o‘zgarish ayniqsa endodermis 1 hujayralarida kuzatilgani qayd etilgan.
Lignin prekursorlaridagi metabolik o‘zgarish
Kaliy berilgan K1Cd1 guruhida ayrim lignin prekursorlari sezilarli darajada oshgan:
| Metabolit | O‘zgarish | Talqin |
|---|---|---|
| L-fenilalanin | +%96,7 | Fenilpropanoid/lignin yo‘lining erta prekursoridir |
| Ferul kislotasi | +%71,2 | Lignin biosintezi bilan bog‘liq oraliq metabolit |
| Sinapil spirti | +%117,6 | S-lignin prekursoridir |
Aksincha, sinnamik kislota, p-kumarik kislota, koniferaldegid, koniferil spirti, p-kumaraldegid va p-kumaril spirti darajalarida K0Cd1 ga nisbatan %38,4–68,8 oralig‘ida kamayish xabar qilingan. Ushbu metabolit profili o‘z-o‘zicha umumiy lignin miqdorining bevosita o‘lchovi emas; u yo‘lning turli tarmoqlari o‘rtasidagi qayta taqsimlanishga ishora qiladi.
Mäule bo‘yashida K0Cd1 ildizlarining tomir hujayra devorlaridagi och to‘q sariq-qizil ko‘rinish K1Cd1 sharoitida to‘q bordo-qizil tusga o‘zgargani mualliflar tomonidan S-lignin to‘planishining ortishi bilan mos deb talqin qilingan.
Elektron mikroskopiya va suberin bo‘yash
Transmissiyali elektron mikroskopiya ildiz uchidan 4–5 mm masofadagi endodermal Kaspari tasmasida K1Cd1 guruhida aniqroq elektron-zich tuzilmani ko‘rsatgan. Ildiz uchidan 9–10 mm masofada ham lignin to‘planishi oshgani xabar qilingan.
Fluorol Yellow 088 bo‘yashi endodermal suberin to‘planishi ham yosh, ham yetukroq ildiz hududlarida K1Cd1 sharoitida ortganini ko‘rsatgan. Yosh ildiz hududidagi suberin fluoressensiya intensivligi K0Cd1 qiymatining 1,53 baravariga yetgan va farq p < 0,05 deb xabar qilingan.
Hujayra turiga xos transkripsiya omili qatlami
Ildiz yuzasiga yaqin epidermis va korteks hujayralarida WRKY6, WRKY27, WRKY40 va ERF109 kabi omillarning K1Cd1 sharoitida faollashuvi mualliflar tomonidan Cd sababli oksidlovchi stressga qarshi kurashuvchi himoya tizimlarining kuchayishi bilan bog‘langan. Ushbu tadqiqot tegishli omillarning ekspressiyasini ko‘rsatadi; ROS ni tozalash tezligi bevosita ushbu omillar tomonidan qanchalik oshirilgani alohida o‘lchanmagan.
Endodermisda MYB1, MYB54 va MYB308; ksilemada esa NAC007, NAC073 va NAC086 kabi omillarning ajralib turishi himoya hujayra qatlamlari o‘rtasida mehnat taqsimotiga ega ekanini ko‘rsatadi. Ksilemadagi NAC tarmoqlari ikkilamchi hujayra devori, lignin va sellüloza biosintezi bilan bog‘langan.
Floemada MYB3, MYB48 va MYB108 ning o‘ziga xos ko‘tarilishi ham xabar qilingan. Biroq mualliflar ushbu floemaga xos MYB omillari uzoq masofali Cd tashilishi yoki signalizatsiyasiga qanday ta’sir qilishi hali aniqlanmaganini va bu kelgusi tadqiqotlar uchun ochiq savol ekanini qayd etadilar.
Ribosomal stress javobi
Beshta differensiallashgan ildiz hujayra qatlamida 116 ta RPL va 87 ta RPS geni differensial ifodalangan. K0Cd1 sharoitida ushbu genlarning umumiy ekspressiyasi yuqoriroq; farq ayniqsa korteks va ksilemada yaqqol. Korteksda 108 ta RPL va 81 ta RPS genining ikki sharoit o‘rtasidagi mutlaq fold change qiymati 2 dan katta ekani xabar qilingan.
Korteks hujayralarining pseudotime tahlili ikkita rivojlanish tarmog‘ini aniqlagan. Jami 3.480 tarmoq-bog‘liq gen beshta klasterga ajratilgan; 1-klasterda 711, 2-klasterda 1.281 gen mavjud bo‘lgan. Ushbu ikki klaster birgalikda tarmoq-bog‘liq genlarning %57,2 qismini tashkil etgan. Barcha RPL va RPS genlari genetik axborotni qayta ishlash va hujayraviy jarayonlar bilan bog‘liq 2-klasterda joylashgan.
Kaliyning “Energiya Taqsimotini Qayta Dasturlashi” Bevosita O‘lchandimi?
Yo‘q. Tadqiqotda ATP ishlab chiqarilishi, nafas olish energiyasi, energiya budjeti yoki hujayraviy energiya oqimi bevosita o‘lchanmagan; “energiya taqsimotini qayta dasturlash” talqini K tanqisligida ko‘tarilgan ribosomal oqsil genlarining yetarli K ostida bostirilishi bilan hujayra devori va himoya dasturlarining kuchayishini birgalikda baholashga asoslangan transkripsion xulosadir.
Bu farq muhim. RPL/RPS ekspressiyasining kamayishi ribosoma biogeneziga ajratiladigan hujayraviy resurs talabining kamayishiga mos kelishi mumkin; biroq gen ekspressiyasi ma’lumoti o‘z-o‘zicha energiya sarfining miqdoriy jihatdan qanchasi boshqa metabolik yo‘lga o‘tkazilganini ko‘rsatmaydi. Shu sababli tadqiqot ishonchli qo‘llab-quvvatlaydigan ifoda kaliyning Cd stressi ostidagi transkripsion resurslardan foydalanish naqshini o‘zgartirishidir.
Tadqiqot taklif qilgan ko‘p qatlamli mexanizm
- Epidermis va korteks: Kaliy bilan birga stress va antioksidant javoblar bilan bog‘langan transkripsiya omili tarmoqlari faollashadi.
- Endodermis: MYB1, MYB54 va MYB308 hamda lignin/suberin biosintezi bilan bog‘liq genlarning ekspressiyasi oshadi.
- Kaspari tasmasi va suberin lamellalari: Gistokimyoviy va ultrastrukturaviy dalillar endodermal to‘siq kuchayganini ko‘rsatadi.
- Ksilema: NAC007/NAC073/NAC086 bilan bog‘liq ikkilamchi hujayra devori dasturlari ajralib turadi.
- Ribosomal dastur: K0Cd1 da yuqori bo‘lgan ko‘plab RPL/RPS genlari K1Cd1 sharoitida pastroq ekspressiya ko‘rsatadi.
- Umumiy talqin: Mualliflar ushbu qatlamlarni birgalikda Cd ning ildizdan tomir tizimiga va yuqori organlarga tashilishini cheklaydigan muvofiqlashtirilgan himoya modeli sifatida talqin qiladilar.
Tadqiqot Usuli va Natijalari
O‘simliklarni yetishtirish va ishlovlar
Tadqiqotda avvalgi izlanishlarda Cd ni kam to‘playdigan nav sifatida ta’riflangan Nan88 ishlatilgan. Bir xil ona o‘simlikdan olingan, ikki bo‘g‘im va bargga ega poya bo‘laklarining pastki bargi olib tashlangan va pastki bo‘g‘im deionizatsiyalangan suvga botirilgan. Uch kunlik ildizlanishdan keyin ko‘chatlar K0Cd1 yoki K1Cd1 sharoitiga o‘tkazilgan.
Yetishtirish xonasi sharoitlari:
- Fotoperiod: 16 soat,
- kunduz/tun harorati: 28/22°C,
- yorug‘lik intensivligi: 150 µmol·m−2·s−1,
- nisbiy namlik: %60–70,
- oziqa eritmasini yangilash tezligi: 3 kunda bir,
- eritma pH i: 6,0.
Yadrolarni ajratish
Bir haftalik ishlovdan so‘ng ildiz uchining 0,5–3,0 cm qismi olingan. To‘qima suyuq azotda maydalangan va %5 Dextran T40, 0,4 M saxaroza, 10 mM MgCl2, 1 mM DTT, 2 U/µL RNaz ingibitori, %0,1 Triton X-100 hamda 100 mM Tris-HCl saqlovchi yadro ajratish buferi bilan ishlov berilgan.
Birinchi sentrifugalash 300 ×g da 1 daqiqa, ikkinchi sentrifugalash 2.000 ×g da 5 daqiqa bajarilgan. Namunalar 70 va 40 µm hujayra filtrlaridan o‘tkazilgan; yadrolar PBS/BSA/RNaz ingibitori saqlovchi yuvish buferida suspenziyalangan. Boshlang‘ich maqsad 1.000–2.000 yadro/µL, fluoressensiya yordamida faollashtirilgan yadro saralashidan keyin esa taxminan 1.000 yadro/µL deb ko‘rsatilgan.
SnRNA-seq kutubxonasi va sekvenslash
Alohida yadrolar, shtrix-kodlangan gel donachalari va fermentlar mikro tomchilar ichida GEM tuzilmalariga joylashtirilgan. Teskari transkripsiya vaqtida 10 bazali noyob molekulyar identifikatorlar va 16 bazali hujayra shtrix-kodlari cDNA ga qo‘shilgan. Kutubxona Chromium Next GEM Single Cell 3' Reagent Kits v3.1 yordamida tayyorlangan va Illumina NovaSeq X Plus, PE150 bilan sekvenslangan.
Bioinformatik sifat nazorati va klasterlash
Xom SnRNA-seq ma’lumotlari Cell Ranger 8.0.0 yordamida qayta ishlangan va I. trifida v3 referensiga tekislangan. Ekspressiya matritsasi R muhitida Seurat 5.1.0 yordamida tahlil qilingan.
Past sifatli yadrolar quyidagi mezonlar asosida chiqarib tashlangan:
- shtrix-kodning noyob tarzda bitta hujayraga mos kelmasligi,
- har bir yadrodagi genlar soni 410 dan kam yoki 4.600 dan ko‘p bo‘lishi,
- har bir yadrodagi UMI soni 12.000 dan ko‘p bo‘lishi.
Normallashtirilgan ekspressiya ma’lumotlari ustida asosiy komponentlar tahlili o‘tkazilgan; batch ta’siri Harmony yordamida tuzatilgan va klasterlar UMAP yordamida ikki o‘lchamda ko‘rsatilgan.
Marker gen va DEG mezonlari
Hujayra klasterlarida yuqori regulyatsiya qilingan marker genlarni aniqlash uchun Wilcoxon rank-sum testi qo‘llanilgan. Marker nomzod gen uchun maqsad klasterdagi yadrolarning %25 dan ko‘prog‘ida ekspressiya, fold change ≥ 1,28 va p ≤ 0,01 shartlari talab qilingan.
Ikki K ishlovi o‘rtasidagi differensial genlar uchun:
- |log2 fold change| ≥ 0,58,
- p ≤ 0,05,
- min.pct > %25
chegaralari ishlatilgan. Funksional talqin uchun GO va KEGG boyitish tahlillari qo‘llanilgan.
Pseudotime tahlili
Korteks hujayralarining rivojlanish trayektoriyalari Monocle 2 yordamida o‘rganilgan. Tahlil ikkita asosiy rivojlanish tarmog‘ini ko‘rsatgan va DIR23 ni o‘z ichiga olgan marker genlarning tarmoqlar bo‘yicha turlicha taqsimlanishi xabar qilingan.
WGCNA
To‘qqizta hujayra turida aniqlangan DEG lar birikmasidan WGCNA tarmog‘i tuzilgan. Asosiy parametrlar Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 va unsigned TOM bo‘lgan. Modul ichidagi bog‘lanish K.in va module membership qiymatlari asosida hub gen nomzodlari baholangan, tarmoqlar Cytoscape 3.10.3 yordamida vizuallashtirilgan.
Lignin gistokimyosi va metabolit tahlili
Bir haftalik ishlov oxirida ildiz uchidan 6,5–8,5 cm masofadagi kesmalar %1 KMnO4, %36 HCl va %29 NH4OH yordamida ishlov berilib, Olympus BX53 mikroskopida tekshirilgan.
Metabolit tahlili uchun ishlovning 18. kunida olingan ildizlar liofilizatsiya qilingan va maydalangan; 50 mg kukun 1,2 mL sovuq %70 metanol/suv aralashmasi bilan ekstraksiya qilingan. Ekstraktlar ExionLC AD UPLC va ESI-triple quadrupole-linear ion trap QTRAP MS tizimi yordamida tahlil qilingan. Ajratishda Agilent SB-C18, 1,8 µm, 2,1 × 100 mm kolonkasidan foydalanilgan; mobil faza oqim tezligi 0,35 mL/daqiqa, inyeksiya hajmi 2,0 µL deb berilgan.
Kaspari tasmasi va suberin tahlili
Ildiz uchidan 4–5 mm va 9–10 mm masofadagi namunalar %2,5 glutaraldegid bilan fiksatsiya qilingan, epoksi smolaga joylashtirilgan va Leica EM UC7 ultramikrotomi yordamida 100 nm li ultrayupqa kesmalar tayyorlangan. Kesmalar uranil asetat, qo‘rg‘oshin sitrat va %5 KMnO4 bilan bo‘yalgan; Hitachi H-7650 transmissiyali elektron mikroskopida tasvirlangan.
Kaspari tasmasidagi ligninni aniqlash uchun 9–10 mm hududdagi kesmalarga %2 phloroglucinol-HCl qo‘llangan. Suberin %0,01 Fluorol Yellow 088 bilan bo‘yalgan va Olympus BX53 mikroskopida 0,5 soniyalik ekspozitsiya bilan tasvirlangan. Tasvirlarni miqdoriy baholashda ImageJ 1.54k, ikki ishlov o‘rtasidagi farqlarni tekshirishda mustaqil namunalar t-testi ishlatilgan.
Asosiy miqdoriy natijalar
| O‘lchov | K0Cd1 / umumiy | K1Cd1 / natija | Talqin chegarasi |
|---|---|---|---|
| Sekvenslash o‘qishlari | Har bir namunada >450 million | SnRNA-seq texnik chiqishidir. | |
| Referens genomga moslanish | >%82 | Sekvenslash sifati ko‘rsatkichidir. | |
| Sifat nazoratidan keyingi yadrolar | 13.598 | 10.175 | Hujayra sonlarini bevosita ishlov ta’siri sifatida talqin qilmaslik kerak. |
| Median gen/yadro | 1.319 | 1.452 | Texnik/transkriptomik sifat metrikasidir. |
| Transkripsion klaster | 19 | To‘qqizta hujayra turiga biriktirilgan. | |
| Jami DEG | 16.886 | K0Cd1–K1Cd1 taqqoslashidir. | |
| WGCNA moduli | 11 | Birgalikdagi ekspressiya munosabatini ko‘rsatadi; o‘z-o‘zicha sababiylikni isbotlamaydi. | |
| L-fenilalanin | Referens | +%96,7 | K1Cd1/K0Cd1 metabolit farqidir. |
| Ferul kislotasi | Referens | +%71,2 | K1Cd1/K0Cd1 metabolit farqidir. |
| Sinapil spirti | Referens | +%117,6 | S-lignin prekursoridagi o‘zgarishdir. |
| Yosh ildizdagi suberin fluoressensiyasi | 1,00 | 1,53 baravar | p < 0,05; gistokimyoviy intensivlik taqqoslashidir. |
Tadqiqot bevosita qo‘llab-quvvatlaydigan natijalar
- Kaliy mavjudligi Cd stressi ostidagi ildiz hujayralarida hujayra-turiga xos keng transkripsion o‘zgarishlar hosil qilgan.
- Endodermisda lignin va suberin biosinteziga bog‘liq gen tarmoqlari K1Cd1 sharoitida kuchaygan.
- Kaspari tasmasi va suberin to‘planishidagi strukturaviy/gistokimyoviy ko‘rsatkichlar K qo‘llanishi bilan ortgan.
- Lignin biosintezi bilan bog‘liq metabolit profili K0Cd1 bilan K1Cd1 o‘rtasida sezilarli darajada o‘zgargan.
- RPL va RPS genlarining Cd sharoitidagi yuqori ekspressiyasi yetarli K mavjudligida umumiy tarzda kamaygan.
- Epidermis, korteks, endodermis, floema va ksilema bir xil molekulyar javob bermagan; turli transkripsiya omili oilalari va hujayraviy funksiyalar ajralib turgan.
Tadqiqot o‘z-o‘zicha qo‘llab-quvvatlamaydigan natijalar
- Bu tajriba K1Cd1 guruhida Cd konsentratsiyasi aniq necha foiz kamayganini ko‘rsatmaydi; ushbu tadqiqot usullarida to‘qimadagi Cd ni bevosita miqdoriy aniqlash xabar qilinmagan.
- Gen ekspressiyasidagi o‘zgarishlar MYB yoki NAC omillari tegishli maqsad genlarni bevosita va sababiy ravishda boshqarishini o‘z-o‘zicha isbotlamaydi.
- RPL/RPS bostirilishi ATP yoki energiya oqimining himoya yo‘llariga bevosita o‘tkazilganini miqdoriy o‘lchash emas.
- Nazorat qilinadigan yetishtirish xonasi natijalari dala sharoitidagi samaradorlikni o‘z-o‘zicha isbotlamaydi.
- Nan88 navida kuzatilgan javob barcha shirin kartoshka genotiplarida bir xil kattalikda yuz berishi ko‘rsatilmagan.
- Floemaga xos MYB3, MYB48 va MYB108 ning uzoq masofali Cd tashilishidagi mexanistik roli ushbu tadqiqotda aniqlanmagan.
Manba va Usul Haqida Izoh
Asl tadqiqot:Potassium reinforces endodermal barriers and reprograms energy allocation to block cadmium uptake in sweet potato
Mualliflar va tartibi: Huiling Fu; Baifei Huang; Yingying Huang; Zhipeng Chen; Chuang Shen; Pan Cao; Qiong Liao; Junliang Xin.
Mas’ul mualliflar: Baifei Huang va Junliang Xin.
Muassasalar: School of Chemical and Environmental Engineering, Hunan Institute of Technology, Hengyang 421002, China; Hunan Chemical Vocational Technology College, Zhuzhou 412000, China.
Platforma: SSRN.
SSRN yozuvi: abstract=7358620.
DOI: Yuklangan preprintda DOI xabar qilinmagan.
Jurnal / jild / son: Yuklangan versiyada taqrizdan o‘tgan jurnal, jild yoki son haqida ma’lumot berilmagan.
Taqriz holati: Preprint; hujjatda taqrizdan o‘tmagani ochiq ko‘rsatilgan.
Litsenziya: Yuklangan versiyada ochiq Creative Commons yoki shunga o‘xshash qayta foydalanish litsenziyasi ko‘rsatilmagan.
Ma’lumotlarning mavjudligi: Xom ma’lumotlar China National Center for Bioinformation, Chinese Academy of Sciences tarkibida GSA: CRA031773 kodi bilan saqlangani bildirilgan.
Manfaatlar to‘qnashuvi: Mualliflar tadqiqotga ta’sir qilishi mumkin bo‘lgan ma’lum moliyaviy manfaat yoki shaxsiy munosabat yo‘qligini bildirgan.
Moliyalashtirish: Tadqiqot National Natural Science Foundation of China (42577160), Scientific Research Foundation of Hunan Provincial Education Department (23B0824), Hunan Provincial Natural Science Foundation of China (2025JJ50189), College Students Research Learning and Innovative Experiment Project of Hunan Province (S202611528182) va Hengyang Science and Technology Innovation Plan Project (202330046395) tomonidan qo‘llab-quvvatlangan.
Muallif hissalari: Baifei Huang, Huiling Fu va Junliang Xin tadqiqotni rejalashtirgan va loyihalagan. Zhipeng Chen, Pan Cao va Qiong Liao ma’lumot to‘plagan. Huiling Fu, Yingying Huang va Chuang Shen ma’lumotlarni tahlil qilgan va rasmlarni tayyorlagan. Huiling Fu, Junliang Xin va Baifei Huang maqolani yozgan va tahrir qilgan.
Asosiy uslubiy cheklovlar: Tadqiqot nazorat qilinadigan yetishtirish sharoitidagi bitta past-Cd shirin kartoshka naviga asoslangan. Mavjud matnda SnRNA-seq uchun biologik takrorlash tuzilishi batafsil tushuntirilmagan. Molekulyar tarmoqlarning muhim qismi ekspressiya korrelyatsiyasi va adabiyotlarda ma’lum gen funksiyalariga asoslanadi. Cd konsentratsiyasi yoki Cd oqimi bevosita o‘lchanmagani uchun endodermal to‘siqning kuchayishi bilan Cd qabulining kamayishi o‘rtasidagi mexanistik zanjirning so‘nggi bosqichi ushbu tajribada bevosita miqdoriy aniqlanmagan. Xuddi shuningdek, “energiyani qayta taqsimlash” transkriptomik talqin bo‘lib, bevosita energiya metabolizmi o‘lchoviga asoslanmaydi.
Manba ichidagi vizual izoh: 8-rasmning K/L panellari izohida matn bilan tasvir o‘rtasida teskari moslik ko‘rinadi; asosiy natija matni va panel o‘qlari suberin fluoressensiyasining 1,53 baravar ortishi L paneli bilan bog‘liqligini qo‘llab-quvvatlaydi. 1A-rasmdagi “Protoplasts Enzyme” yorlig‘i ham material-usul bo‘limida bayon qilingan yadro ajratish/FANS protokoli bilan terminologik jihatdan nomuvofiq ko‘rinadi. Bu nuqtalar yashirincha tuzatilmagan, manbadagi noaniqlik sifatida saqlangan.
Formula holati: Tadqiqotning asosiy usuli yoki natijalarini ifodalovchi markaziy matematik tenglama mavjud emas; shu sababli manbada bo‘lmagan formula Verianla maqolasiga qo‘shilmagan.
Izoh qoldiring
E-pochta manzilingiz chop etilmaydi. Majburiy maydonlar * bilan belgilangan