

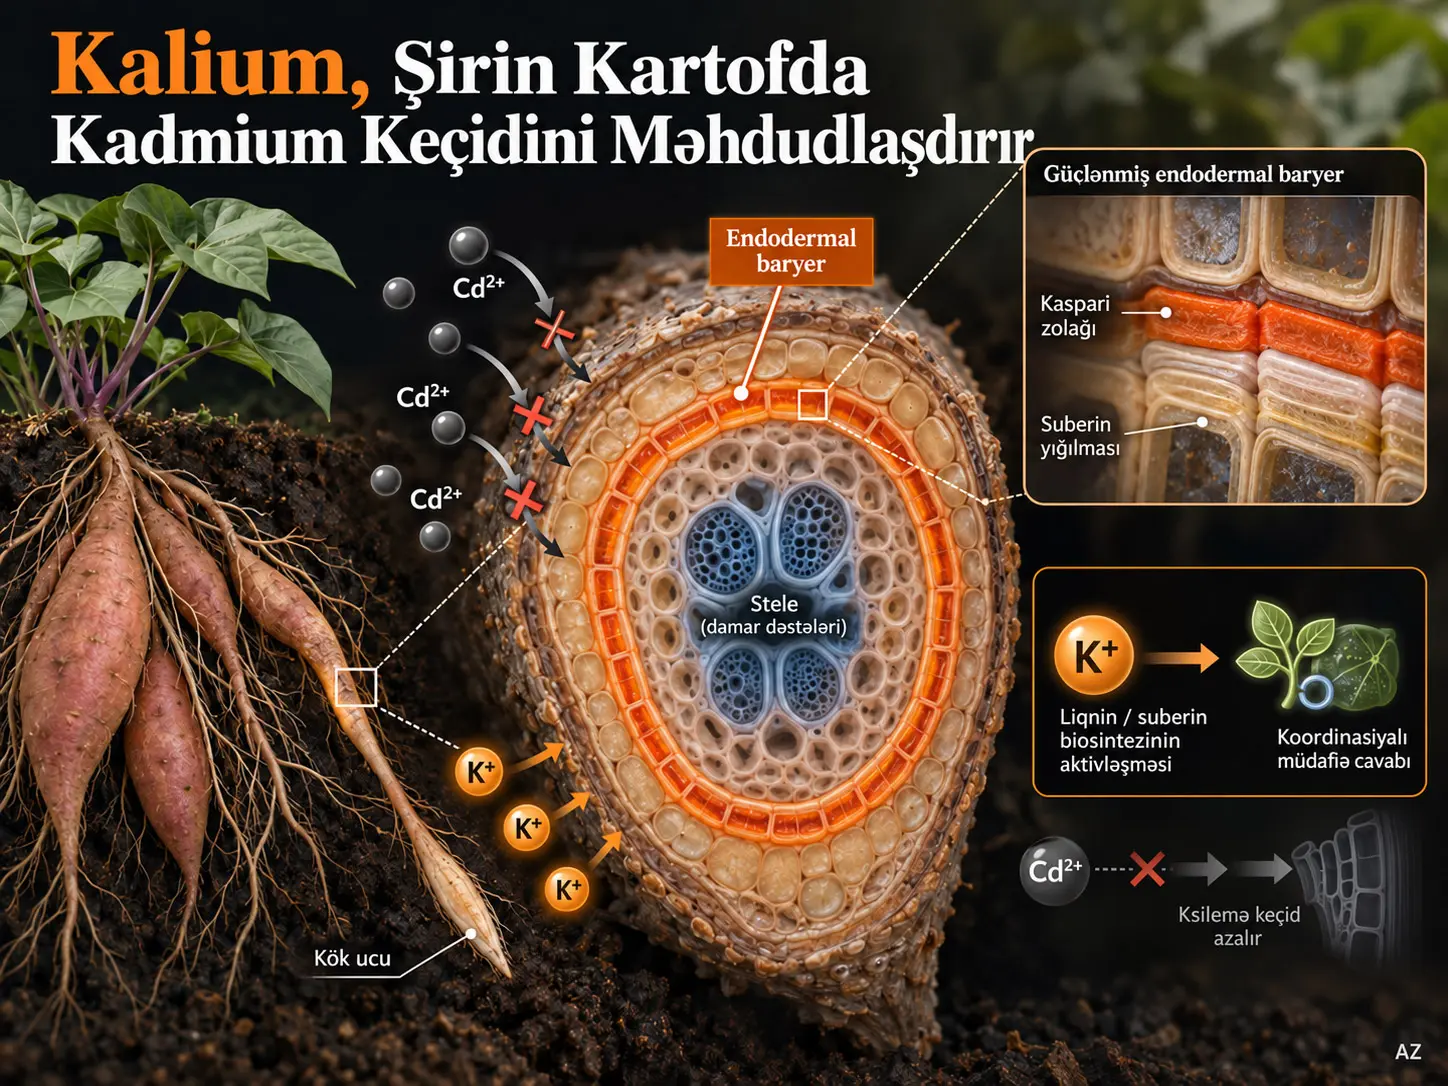
Şirin kartof kökünün endodermal baryeri, vaskulyar silindrə çatan su və həll olmuş maddələrin radial hərəkətini məhdudlaşdıran Kaspari zolağı və suberin lamellərindən ibarət seçici kök müdafiə sistemidir. Bu tədqiqat kadmiuma məruz qoyulmuş aşağı-Cd toplayan şirin kartof sortunda kifayət qədər kaliumun bu baryeri və kökün hüceyrə tipinə xas müdafiə proqramlarını necə dəyişdirdiyini tək nüvə RNA sekvensləşdirilməsi, gen birgə-ekspressiya analizi, metabolit ölçmələri, histokimyəvi boyamalar və elektron mikroskopiyası ilə araşdırmışdır. Tədqiqatçılar 3 mM K⁺ tətbiqinin endodermisdə lignin və suberin əmələ gəlməsi ilə əlaqəli genləri aktivləşdirdiyini, Kaspari zolağı ilə suberin yığılmasını gücləndirdiyini və kadmiumun vaskulyar toxumalara irəliləməsini məhdudlaşdıra biləcək çoxqatlı kök cavabı yaratdığını bildirirlər. Bununla belə, tədqiqatda birbaşa Cd axını və ya toxuma Cd konsentrasiyası kəmiyyətcə ölçülmədiyi üçün kadmium qəbulunun nə dərəcədə azaldığı bu təcrübədən müstəqil sayısal dəyər kimi çıxarıla bilməz.
Tək nüvə transkriptomunda K0Cd1 şərtindən 13.598 və K1Cd1 şərtindən 10.175 nüvə keyfiyyət nəzarətindən keçmiş; 19 transkripsion klaster doqquz kök hüceyrə tipinə təyin edilmişdir. İki kalium şərti arasında ümumilikdə 16.886 diferensial ifadə olunan gen müəyyən edilmişdir. Endodermisdə MYB1, MYB54 və MYB308 kimi transkripsiya faktorları ilə lignin/suberin biosintezinə aid genlər önə çıxarkən; epidermis və korteksdə oksidativ stress cavabı ilə əlaqələndirilən WRKY/NAC/MYB şəbəkələri, ksilemdə isə ikincili hüceyrə divarının formalaşması ilə əlaqələndirilən NAC faktorları seçilmişdir. K⁺ verilməsi həmçinin bir çox RPL və RPS ribosomal protein geninin Cd şəraitində müşahidə olunan yüksək ekspressiyasını azaltmışdır. Müəlliflərin “enerji paylanmasının yenidən proqramlaşdırılması” şərhi bu transkripsion dəyişikliklərə əsaslanır; birbaşa hüceyrə enerji sərfi ölçülməmişdir.
Tədqiqatın əsas problemi
Kadmium bitkilər üçün zəruri olmayan və aşağı konsentrasiyalarda belə oksidativ stress, qida maddələri balanssızlığı və fotosintetik pozuntu yarada bilən toksik metaldır. Torpaqda olan Cd²⁺ köklər tərəfindən qəbul edilə və bitkinin yeyilən hissələrinə daşına bilər. Şirin kartofda bu problem xüsusilə vacibdir; çünki istehlak olunan ehtiyat kökü birbaşa torpaq-kök sisteminin bir hissəsidir.
Kalium isə ferment aktivləşməsi, zülal sintezi, fotosintez, stoma hərəkətləri və hüceyrə turgoru daxil olmaqla çoxsaylı bitki funksiyaları üçün zəruri makro qida elementidir. Şirin kartofun kaliuma yüksək tələbatı olduğuna görə K çatışmazlığı ilə Cd çirklənməsinin eyni mühitdə olması həm istehsal, həm də məhsul təhlükəsizliyi baxımından ikitərəfli stress yarada bilər.
Əvvəlki tədqiqatlar kifayət qədər K ilə qidalanmanın bitkilərdə Cd yığılmasını azalda biləcəyini göstərsə də, kökün müxtəlif hüceyrə tiplərinin bu qarşılıqlı təsirdə necə iştirak etdiyi kifayət qədər aydınlaşdırılmamışdır. Bu tədqiqatın əsas sualı kaliumun Cd stressi altındakı şirin kartof kökündə epidermis, korteks, endodermis və vaskulyar toxumalarda eyni cavabı yaradıb-yaratmaması deyil; hər hüceyrə qatının müdafiəyə fərqli vəzifə ilə qatılıb-qatılmamasıdır.
Eksperimental müqayisənin məntiqi
Tədqiqatçılar aşağı Cd toplayan Nan88 şirin kartof sortundan istifadə etmişdir. Tinglər eyni Cd səviyyəsi altında iki kalium şərtinə ayrılmışdır:
| Şərt | Kalium | Kadmium | Elmi məqsəd |
|---|---|---|---|
| K0Cd1 | 0 mM K+ | 0,1 mg/L Cd2+ | K çatışmazlığı altında Cd cavabını müəyyən etmək |
| K1Cd1 | 3 mM K+ | 0,1 mg/L Cd2+ | Kifayət qədər K olduqda eyni Cd məruz qalmasına verilən cavabı müəyyən etmək |
Beləliklə Cd səviyyəsi sabit saxlanılmış və əsas eksperimental müqayisə kaliumun mövcudluğu üzərində qurulmuşdur. K0Cd1 məhlulunda KH2PO4 və KNO3, müvafiq NaH2PO4 və NaNO3 duzları ilə əvəz edilərək kaliumdan başqa qida girişlərinin mümkün qədər qorunması hədəflənmişdir.
Tək Nüvə RNA Sekvensləşdirilməsi Bu Tədqiqatda Nəyi Aşkar Etdi?
Tək nüvə RNA sekvensləşdirilməsi (SnRNA-seq), şirin kartof kökündəki müxtəlif hüceyrə tiplərinin eyni kadmium məruz qalması altında kaliuma bir-birindən fərqli transkripsion cavablar verdiyini ortaya çıxardı; tədqiqatçılar 19 transkripsion klasteri doqquz hüceyrə tipinə ayırdı və K0Cd1 ilə K1Cd1 şərtləri arasında ümumilikdə 16.886 diferensial ifadə olunan gen müəyyən etdi.
Kökün hüceyrə atlası
Hər iki SnRNA-seq nümunəsində 450 milyondan çox oxunuş əldə edilmiş və oxunuşların %82-dən çoxu istifadə olunan referens genoma xəritələnmişdir. Keyfiyyət filtrindən sonra K0Cd1 nümunəsində 13.598, K1Cd1 nümunəsində 10.175 nüvə analizə daxil edilmişdir. Nüvə başına median gen sayı müvafiq olaraq 1.319 və 1.452-dir.
UMAP əsaslı klasterləşdirmə 19 transkripsion klaster yaratmış və 44 marker genin köməyi ilə aşağıdakı doqquz hüceyrə tipi müəyyən edilmişdir:
- epidermis,
- korteks,
- endodermis,
- floem,
- ksilem,
- stel,
- sakit mərkəz (quiescent center, QC),
- kök hüceyrə nişi (stem cell niche, SCN),
- proksimal meristem (PM).
Epidermis klasterlərində XTH23 və ZIP1; korteksdə EARLI1; endodermisdə DIR10 və At4g17280; ksilemdə At2g25060 və At3g51220 kimi markerlər hüceyrə identifikasiyasını dəstəkləmişdir. Kaliuma cavab verən yuxarı tənzimlənmiş genlərin hüceyrə tipləri arasındakı Pearson korelyasiya əmsallarının 0,19 ilə 0,88 arasında dəyişməsi, ortaq stress proqramları ilə yanaşı nəzərəçarpacaq hüceyrə-tipinə xas cavabların da mövcud olduğunu göstərir.
Diferensial gen ifadəsinin hüceyrə üzrə paylanması
| Hüceyrə tipi | DEG sayı |
|---|---|
| Ksilem | 1.977 |
| Korteks | 1.310 |
| Endodermis | 1.129 |
| Epidermis | 1.078 |
| Stel | 971 |
| Floem | 846 |
Altı əsas hüceyrə tipində ribosomun struktur komponentləri, peptid biosintezi və translyasiya kimi funksiyalar ortaq şəkildə zənginləşmişdir. Ribosom yolu bütün altı əsas hüceyrə tipində önə çıxarkən, nukleositoplazmik daşınma ksilem xaricindəki hüceyrələrdə; oksidativ fosforlaşma epidermis, korteks, endodermis və floemdə; Calvin dövrü ilə karbon fiksasiyası isə epidermis, korteks, floem və steldə zənginləşmişdir.
WGCNA ilə tənzimləyici şəbəkələrin ayrılması
Tədqiqatçılar doqquz hüceyrə tipindəki diferensial genlərdən çəkili gen birgə-ekspressiya şəbəkəsi analizi qurmuşdur. WGCNA üçün Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 və unsigned TOM istifadə edilmiş; genlər 11 birgə-ekspressiya moduluna ayrılmışdır.
Ən böyük modul 2.464 gen ehtiva edən greenyellow, ən kiçik modul isə altı gen ehtiva edən grey moduludur. Endodermislə əlaqəli qırmızı modulda MYB1 və MYB308 ilə lignin və suberin biosintezində iştirak edən çoxsaylı gen birlikdə yer almışdır. NAC075, NAC079 və NAC100 faktorlarının da bu endodermal tənzimləyici şəbəkə ilə yaxın əlaqəli olduğu bildirilmişdir.
Kaspari Zolağı və Suberin Lamelləri Kadmium Daşınmasını Necə Məhdudlaşdırır?
Kaspari zolağı endodermal hüceyrə divarında ligninlə zəngin radial diffuziya baryeri, suberin lamelləri isə endodermal hüceyrə divarını örtən hidrofob baryerdir; birlikdə kökün xarici qatlarından vaskulyar silindrə çatan maddələrin nəzarətsiz keçidini məhdudlaşdırırlar və bu tədqiqatda kalium verilməsi hər iki baryerin formalaşması ilə əlaqəli genetik və struktur göstəriciləri gücləndirmişdir.
Endodermisdə lignin və suberin proqramı
K1Cd1 şərtində endodermal hüceyrələrdə lignin və suberin formalaşması ilə bağlı 17 gen/faktorun önə çıxdığı bildirilmişdir. Bunlar dörd funksional qrupa ayrılır:
- Lignin biosintezi: 4CL, HCT4, CCoAOMT, CCoAOMT5, LAC5 və PER11.
- Suberin biosintezi: KCS1, KCS20, PAS2A, CYP86A1, CYP86B1, LACS4 və GPAT5.
- Daşıyıcı zülallar: ABCG31 və LTPG2.
- Transkripsiya faktorları: MYB1 və MYB308.
Tədqiqat endodermisi iki alt tipə ayırmışdır: endodermis 1 və endodermis 2. CCoAOMT5 və 4CL xaricində lignin/suberinlə əlaqəli diferensial genlərin böyük hissəsində iki müalicə arasındakı dəyişimin xüsusilə endodermis 1 hüceyrələrində görüldüyü qeyd edilmişdir.
Lignin prekursorlarında metabolik dəyişiklik
Kalium verilən K1Cd1 qrupunda bəzi lignin prekursorları nəzərəçarpacaq dərəcədə artmışdır:
| Metabolit | Dəyişiklik | Şərh |
|---|---|---|
| L-fenilalanin | +%96,7 | Fenilpropanoid/lignin yolunun erkən prekursoru |
| Ferulik turşu | +%71,2 | Lignin biosintezi ilə əlaqəli aralıq metabolit |
| Sinapil spirt | +%117,6 | S-lignin prekursoru |
Bunun əksinə olaraq, sinnamik turşu, p-kumarik turşu, koniferaldehid, koniferil spirt, p-kumaraldehid və p-kumaril spirt səviyyələrində K0Cd1 ilə müqayisədə %38,4–68,8 arasında azalma bildirilmişdir. Bu metabolit profili təkbaşına ümumi lignin miqdarının birbaşa ölçülməsi deyil; yolun müxtəlif qolları arasındakı yenidən paylanmaya işarə edir.
Mäule boyamasında K0Cd1 köklərinin vaskulyar hüceyrə divarlarında açıq narıncı-qırmızı görünüşün K1Cd1 şəraitində tünd qırmızıya çevrilməsi müəlliflər tərəfindən S-lignin yığılmasının artması ilə uyğun şəkildə şərh edilmişdir.
Elektron mikroskopiyası və suberin boyaması
Transmissiya elektron mikroskopiyası kök ucundan 4–5 mm uzaqlıqdakı endodermal Kaspari zolağında K1Cd1 qrupunda daha nəzərəçarpacaq elektron-sıx struktur göstərmişdir. Kök ucundan 9–10 mm uzaqlıqda da lignin yığılmasının artdığı bildirilmişdir.
Fluorol Yellow 088 boyaması endodermal suberin yığılmasının həm gənc, həm də daha yetkin kök bölgələrində K1Cd1 şəraitində artdığını göstərmişdir. Gənc kök bölgəsində suberin flüoresans intensivliyi K0Cd1 dəyərinin 1,53 qatına çatmış və fərq p < 0,05 olaraq bildirilmişdir.
Hüceyrə tipinə xas transkripsiya faktoru qatı
Kök səthinə yaxın epidermis və korteks hüceyrələrində WRKY6, WRKY27, WRKY40 və ERF109 kimi faktorların K1Cd1 şəraitində aktivləşməsi müəlliflər tərəfindən Cd mənşəli oksidativ stresslə mübarizə aparan müdafiə sistemlərinin gücləndirilməsi ilə əlaqələndirilmişdir. Bu tədqiqat müvafiq faktorların ekspressiyasını göstərir; ROS təmizlənmə sürətinin birbaşa bu faktorlar tərəfindən nə qədər artırıldığı ayrıca ölçülməmişdir.
Endodermisdə MYB1, MYB54 və MYB308; ksilemdə isə NAC007, NAC073 və NAC086 kimi faktorların önə çıxması müdafiənin hüceyrə qatları arasında əmək bölgüsü göstərdiyini düşündürür. Ksilemdəki NAC şəbəkələri ikincili hüceyrə divarı, lignin və sellüloza biosintezi ilə əlaqələndirilmişdir.
Floemdə MYB3, MYB48 və MYB108-in spesifik yüksəlişi də bildirilmişdir. Lakin müəlliflər bu floem-spesifik MYB faktorlarının uzaq məsafəli Cd daşınmasına və ya siqnallaşmasına necə təsir etdiyinin hələ açıqlanmadığını və bunun gələcək tədqiqatlar üçün açıq sual olduğunu qeyd edirlər.
Ribosomal stress cavabı
Beş diferensiasiya olunmuş kök hüceyrə qatında 116 RPL və 87 RPS geni diferensial olaraq ifadə edilmişdir. K0Cd1 şəraitində bu genlərin ümumi ekspressiyası daha yüksəkdir; fərq xüsusilə korteks və ksilemdə nəzərəçarpandır. Korteksdə 108 RPL və 81 RPS geninin iki şərt arasındakı mütləq qat dəyişiminin 2-dən böyük olduğu bildirilmişdir.
Korteks hüceyrələrinin pseudotime analizi iki inkişaf qolunu ortaya çıxarmışdır. Ümumilikdə 3.480 qol-asılı gen beş klasterə ayrılmış; klaster 1-də 711, klaster 2-də 1.281 gen müəyyən edilmişdir. Bu iki klaster birlikdə qol-asılı genlərin %57,2-sini təşkil etmişdir. RPL və RPS genlərinin hamısı genetik informasiya emalı və hüceyrə prosesləri ilə əlaqəli klaster 2-də yerləşmişdir.
Kaliumun “Enerji Paylanmasını Yenidən Proqramlaşdırması” Birbaşa Ölçülübmü?
Xeyr. Tədqiqatda ATP istehsalı, tənəffüs enerjisi, enerji büdcəsi və ya hüceyrə enerji axını birbaşa ölçülməmişdir; “enerji paylanmasının yenidən proqramlaşdırılması” şərhi K çatışmazlığında yüksələn ribosomal protein genlərinin kifayət qədər K altında basqılanması ilə hüceyrə divarı və müdafiə proqramlarının güclənməsinin birlikdə qiymətləndirilməsinə əsaslanan transkripsion nəticədir.
Bu fərq vacibdir. RPL/RPS ekspressiyasının azalması ribosom biogenezisinə ayrılan hüceyrə resurs tələbinin azalması ilə uyğun ola bilər; lakin gen ekspressiyası məlumatı təkbaşına enerji sərfinin kəmiyyətcə nə qədər başqa metabolik yola yönəldildiyini göstərmir. Buna görə də tədqiqatın etibarlı şəkildə dəstəklədiyi ifadə kaliumun Cd stressi altındakı transkripsion resurs istifadəsi nümunəsini dəyişdirməsidir.
Tədqiqatın təklif etdiyi çoxqatlı mexanizm
- Epidermis və korteks: Kaliumla birlikdə stress və antioksidant cavablarla əlaqələndirilən transkripsiya faktoru şəbəkələri aktivləşir.
- Endodermis: MYB1, MYB54 və MYB308 ilə lignin/suberin biosintezi ilə əlaqəli genlərin ekspressiyası yüksəlir.
- Kaspari zolağı və suberin lamelləri: Histokimyəvi və ultrastruktur sübutlar endodermal baryerin gücləndiyini göstərir.
- Ksilem: NAC007/NAC073/NAC086 ilə əlaqəli ikincili hüceyrə divarı proqramları önə çıxır.
- Ribosomal proqram: K0Cd1-də yüksək olan bir çox RPL/RPS geni K1Cd1 şəraitində daha aşağı ekspressiya göstərir.
- Ümumi şərh: Müəlliflər bu qatları birlikdə Cd-nin kökdən vaskulyar sistemə və yuxarı orqanlara daşınmasını məhdudlaşdıran koordinasiyalı müdafiə modeli kimi şərh edirlər.
Tədqiqatın Metodu və Nəticələri
Bitkilərin yetişdirilməsi və tətbiqlər
Tədqiqatda əvvəlki araşdırmalarda aşağı Cd toplayan sort kimi müəyyən edilmiş Nan88 istifadə olunmuşdur. Eyni ana bitkidən götürülmüş, iki buğum və yarpaq daşıyan gövdə hissələrinin alt yarpağı çıxarılmış və alt buğum deionizə olunmuş suya batırılmışdır. Üç günlük köklənmədən sonra tinglər K0Cd1 və ya K1Cd1 şərtinə keçirilmişdir.
Yetişdirmə otağının şəraiti:
- Fotoperiod: 16 saat,
- gündüz/gecə temperaturu: 28/22°C,
- işıq intensivliyi: 150 µmol·m−2·s−1,
- nisbi rütubət: %60–70,
- qida məhlulunun yenilənmə tezliyi: 3 gündə bir,
- məhlulun pH-ı: 6,0.
Nüvələrin izolyasiyası
Bir həftəlik tətbiqdən sonra kök ucunun 0,5–3,0 cm-lik hissəsi götürülmüşdür. Toxuma maye azotda üyüdülmüş və %5 Dextran T40, 0,4 M saxaroza, 10 mM MgCl2, 1 mM DTT, 2 U/µL RNaz inhibitoru, %0,1 Triton X-100 və 100 mM Tris-HCl ehtiva edən nüvə izolyasiya tamponu ilə işlənmişdir.
Birinci sentrifuqalama 300 ×g-də 1 dəqiqə, ikinci sentrifuqalama 2.000 ×g-də 5 dəqiqə tətbiq edilmişdir. Nümunələr 70 və 40 µm hüceyrə süzgəclərindən keçirilmiş; nüvələr PBS/BSA/RNaz inhibitoru ehtiva edən yuma tamponunda suspenziya edilmişdir. Başlanğıc hədəfi 1.000–2.000 nüvə/µL, flüoresansla aktivləşdirilmiş nüvə çeşidlənməsindən sonra isə təxminən 1.000 nüvə/µL kimi göstərilmişdir.
SnRNA-seq kitabxanası və sekvensləşdirmə
Tək nüvələr, barkodlu gel muncuqları və fermentlər mikrodamcılar içində GEM strukturlarına daxil edilmişdir. Əks transkripsiya zamanı 10 bazlıq unikal molekulyar identifikatorlar və 16 bazlıq hüceyrə barkodları cDNA-ya əlavə edilmişdir. Kitabxana Chromium Next GEM Single Cell 3' Reagent Kits v3.1 ilə hazırlanmış və Illumina NovaSeq X Plus, PE150 istifadə olunaraq sekvensləşdirilmişdir.
Bioinformatik keyfiyyət nəzarəti və klasterləşdirmə
Xam SnRNA-seq məlumatları Cell Ranger 8.0.0 ilə işlənmiş və I. trifida v3 referensinə hizalanmışdır. Ekspressiya matrisi R mühitində Seurat 5.1.0 ilə analiz edilmişdir.
Aşağı keyfiyyətli nüvələr aşağıdakı meyarlarla çıxarılmışdır:
- barkodun unikal şəkildə bir hüceyrəyə xəritələnməməsi,
- nüvə başına gen sayının 410-dan az və ya 4.600-dən çox olması,
- nüvə başına UMI sayının 12.000-dən çox olması.
Normallaşdırılmış ekspressiya məlumatları üzərində əsas komponent analizi aparılmış; partiya effekti Harmony ilə düzəldilmiş və klasterlər UMAP istifadə edilərək ikiölçülü şəkildə göstərilmişdir.
Marker gen və DEG meyarları
Hüceyrə klasterlərində yuxarı tənzimlənmiş marker genlərin müəyyən edilməsində Wilcoxon sıra cəmi testi istifadə edilmişdir. Marker namizəd gen üçün hədəf klasterdəki nüvələrin %25-dən çoxunda ekspressiya, qat dəyişimi ≥ 1,28 və p ≤ 0,01 şərtləri tələb edilmişdir.
İki K tətbiqi arasındakı diferensial genlər üçün:
- |log2 fold change| ≥ 0,58,
- p ≤ 0,05,
- min.pct > %25
hədləri istifadə edilmişdir. Funksional şərh üçün GO və KEGG zənginləşdirmə analizləri tətbiq edilmişdir.
Pseudotime analizi
Korteks hüceyrələrinin inkişaf trayektoriyaları Monocle 2 istifadə edilərək araşdırılmışdır. Analiz iki əsas inkişaf qolunu göstərmiş və DIR23 daxil olmaqla marker genlərin qollara görə fərqli paylanması bildirilmişdir.
WGCNA
Doqquz hüceyrə tipində müəyyən edilən DEG-lərin birləşməsindən WGCNA şəbəkəsi qurulmuşdur. İstifadə olunan əsas parametrlər Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 və unsigned TOM-dur. Modul daxili əlaqə K.in və module membership dəyərlərindən istifadə edilərək hub gen namizədləri qiymətləndirilmiş, şəbəkələr Cytoscape 3.10.3 ilə vizuallaşdırılmışdır.
Lignin histokimyası və metabolit analizi
Bir həftəlik tətbiqin sonunda kök ucundan 6,5–8,5 cm uzaqlıqdakı kəsiklər %1 KMnO4, %36 HCl və %29 NH4OH istifadə edilərək işlənmiş və Olympus BX53 mikroskopu ilə tədqiq edilmişdir.
Metabolit analizi üçün tətbiqin 18. günündə götürülən köklər liyofilizə edilib üyüdülmüş; 50 mg toz 1,2 mL soyuq %70 metanol/su qarışığı ilə ekstraksiya edilmişdir. Ekstraktlar ExionLC AD UPLC və ESI-triple quadrupole-linear ion trap QTRAP MS sistemi ilə analiz edilmişdir. Ayırmada Agilent SB-C18, 1,8 µm, 2,1 × 100 mm kolon istifadə edilmiş; mobil fazanın axın sürəti 0,35 mL/dəqiqə, inyeksiya həcmi 2,0 µL kimi göstərilmişdir.
Kaspari zolağı və suberin analizi
Kök ucundan 4–5 mm və 9–10 mm uzaqlıqdakı nümunələr %2,5 qlutaraldehidlə fiksasiya edilmiş, epoksi qatranına yerləşdirilmiş və Leica EM UC7 ultramikrotomu ilə 100 nm-lik ultranazik kəsiklər hazırlanmışdır. Kəsiklər uranil asetat, qurğuşun sitrat və %5 KMnO4 ilə boyanmış; Hitachi H-7650 transmissiya elektron mikroskopunda görüntülənmişdir.
Kaspari zolağındakı lignini müəyyən etmək üçün 9–10 mm bölgəsindəki kəsiklərə %2 phloroglucinol-HCl tətbiq edilmişdir. Suberin %0,01 Fluorol Yellow 088 ilə boyanmış və Olympus BX53 mikroskopunda 0,5 saniyəlik ekspozisiya ilə görüntülənmişdir. Görüntülərin kəmiyyətcə qiymətləndirilməsində ImageJ 1.54k, iki müalicə arasındakı fərqlərin testində müstəqil nümunələr üçün t-testi istifadə edilmişdir.
Əsas kəmiyyət nəticələri
| Ölçmə | K0Cd1 / ümumi | K1Cd1 / nəticə | Şərh sərhədi |
|---|---|---|---|
| Sekvensləşdirmə oxunuşları | Hər nümunədə >450 milyon | SnRNA-seq texniki çıxışıdır. | |
| Referens genoma xəritələnmə | >%82 | Sekvensləşdirmə keyfiyyət göstəricisidir. | |
| Keyfiyyətdən sonra nüvə | 13.598 | 10.175 | Hüceyrə sayları birbaşa müalicə effekti kimi şərh edilməməlidir. |
| Median gen/nüvə | 1.319 | 1.452 | Texniki/transkriptomik keyfiyyət metrikasıdır. |
| Transkripsion klaster | 19 | Doqquz hüceyrə tipinə təyin edilmişdir. | |
| Ümumi DEG | 16.886 | K0Cd1–K1Cd1 müqayisəsidir. | |
| WGCNA modulu | 11 | Birgə-ekspressiya əlaqəsini göstərir; təkbaşına səbəbiyyət sübut etmir. | |
| L-fenilalanin | Referens | +%96,7 | K1Cd1/K0Cd1 metabolit fərqidir. |
| Ferulik turşu | Referens | +%71,2 | K1Cd1/K0Cd1 metabolit fərqidir. |
| Sinapil spirt | Referens | +%117,6 | S-lignin prekursorundakı dəyişiklikdir. |
| Gənc kökdə suberin flüoresansı | 1,00 | 1,53 qat | p < 0,05; histokimyəvi intensivlik müqayisəsidir. |
Tədqiqatın birbaşa dəstəklədiyi nəticələr
- Kaliumun mövcudluğu Cd stressi altındakı kök hüceyrələrində hüceyrə-tipinə xas geniş transkripsion dəyişikliklər yaratmışdır.
- Endodermisdə lignin və suberin biosintezinə bağlı gen şəbəkələri K1Cd1 şəraitində güclənmişdir.
- Kaspari zolağı və suberin yığılmasındakı struktur/histokimyəvi göstəricilər K tətbiqi ilə artmışdır.
- Lignin biosintezi ilə əlaqəli metabolit profili K0Cd1 ilə K1Cd1 arasında nəzərəçarpacaq şəkildə dəyişmişdir.
- RPL və RPS genlərinin Cd şəraitindəki yüksək ekspressiyası kifayət qədər K olduqda ümumilikdə azalmışdır.
- Epidermis, korteks, endodermis, floem və ksilem eyni molekulyar cavabı verməmişdir; müxtəlif transkripsiya faktoru ailələri və hüceyrə funksiyaları önə çıxmışdır.
Tədqiqatın təkbaşına dəstəkləmədiyi nəticələr
- Bu təcrübə K1Cd1 qrupunda Cd konsentrasiyasının dəqiq neçə faiz azaldığını göstərmir; bu tədqiqatın metodlarında birbaşa toxuma Cd kəmiyyətləndirilməsi bildirilməmişdir.
- Gen ekspressiyası dəyişiklikləri MYB və ya NAC faktorlarının müvafiq hədəf genləri birbaşa və səbəbli şəkildə idarə etdiyini təkbaşına sübut etmir.
- RPL/RPS basqılanması ATP və ya enerji axınının birbaşa müdafiə yollarına yönəldilməsinin kəmiyyət ölçümü deyil.
- Nəzarətli yetişdirmə otağı nəticələri tarla şəraitindəki performansı təkbaşına sübut etmir.
- Nan88 sortunda müşahidə olunan cavabın bütün şirin kartof genotiplərində eyni böyüklükdə baş verdiyi göstərilməmişdir.
- Floemə xas MYB3, MYB48 və MYB108-in uzaq məsafəli Cd daşınmasındakı mexanistik rolu bu tədqiqatla həll edilməmişdir.
Mənbə və Metod Qeydi
Orijinal tədqiqat:Potassium reinforces endodermal barriers and reprograms energy allocation to block cadmium uptake in sweet potato
Müəlliflər və sıra: Huiling Fu; Baifei Huang; Yingying Huang; Zhipeng Chen; Chuang Shen; Pan Cao; Qiong Liao; Junliang Xin.
Məsul müəlliflər: Baifei Huang və Junliang Xin.
Qurumlar: School of Chemical and Environmental Engineering, Hunan Institute of Technology, Hengyang 421002, China; Hunan Chemical Vocational Technology College, Zhuzhou 412000, China.
Platforma: SSRN.
SSRN qeydi: abstract=7358620.
DOI: Yüklənmiş preprintdə DOI bildirilməmişdir.
Jurnal / cild / nömrə: Yüklənmiş versiyada resenziyalı jurnal, cild və ya nömrə məlumatı verilməmişdir.
Resenziya statusu: Preprint; sənəd açıq şəkildə resenziyadan keçmədiyini bildirir.
Lisenziya: Yüklənmiş versiyada açıq Creative Commons və ya oxşar təkrar istifadə lisenziyası göstərilmir.
Məlumatların əlçatanlığı: Xam məlumatların China National Center for Bioinformation, Chinese Academy of Sciences daxilində GSA: CRA031773 kodu ilə saxlanıldığı bildirilmişdir.
Maraq toqquşması: Müəlliflər tədqiqata təsir edə biləcək məlum maliyyə marağının və ya şəxsi münasibətin olmadığını bəyan etmişdir.
Maliyyələşdirmə: Tədqiqat National Natural Science Foundation of China (42577160), Scientific Research Foundation of Hunan Provincial Education Department (23B0824), Hunan Provincial Natural Science Foundation of China (2025JJ50189), College Students Research Learning and Innovative Experiment Project of Hunan Province (S202611528182) və Hengyang Science and Technology Innovation Plan Project (202330046395) tərəfindən dəstəklənmişdir.
Müəllif töhfələri: Baifei Huang, Huiling Fu və Junliang Xin tədqiqatı planlaşdırmış və dizayn etmişdir. Zhipeng Chen, Pan Cao və Qiong Liao məlumat toplamışdır. Huiling Fu, Yingying Huang və Chuang Shen məlumatları analiz etmiş və şəkilləri hazırlamışdır. Huiling Fu, Junliang Xin və Baifei Huang məqaləni yazmış və redaktə etmişdir.
Əsas metodoloji məhdudiyyətlər: Tədqiqat nəzarətli yetişdirmə şəraitində bir aşağı-Cd şirin kartof sortuna əsaslanır. Mövcud mətndə SnRNA-seq üçün bioloji təkrar quruluşu ətraflı izah edilməmişdir. Molekulyar şəbəkələrin mühüm hissəsi ekspressiya korrelyasiyasına və ədəbiyyatda məlum gen funksiyalarına əsaslanır. Birbaşa Cd konsentrasiyası və ya Cd axını ölçümü təqdim edilmədiyi üçün endodermal baryerin güclənməsi ilə azalan Cd qəbulu arasındakı mexanistik zəncirin son mərhələsi bu təcrübədə birbaşa kəmiyyətləndirilməmişdir. Eyni şəkildə “enerjinin yenidən paylanması” transkriptomik şərhdir və birbaşa enerji metabolizması ölçümünə əsaslanmır.
Mənbədaxili vizual qeyd: Şəkil 8-in K/L panel izahında mətn-görsel arasında tərslik görünür; əsas nəticə mətni və panel oxları suberin flüoresansındakı 1,53 qat artımın panel L ilə əlaqəli olduğunu dəstəkləyir. Şəkil 1A-dakı “Protoplasts Enzyme” etiketi də material-metodda təsvir edilən nüvə izolyasiyası/FANS protokolu ilə terminoloji baxımdan uyğunsuz görünür. Bu məqamlar səssizcə düzəldilməmiş, mənbə qeyri-müəyyənliyi kimi qorunmuşdur.
Formul statusu: Tədqiqatın əsas metod və ya nəticələrini daşıyan mərkəzi riyazi tənlik yoxdur; buna görə mənbədə olmayan formul Verianla məqaləsinə əlavə edilməmişdir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib