

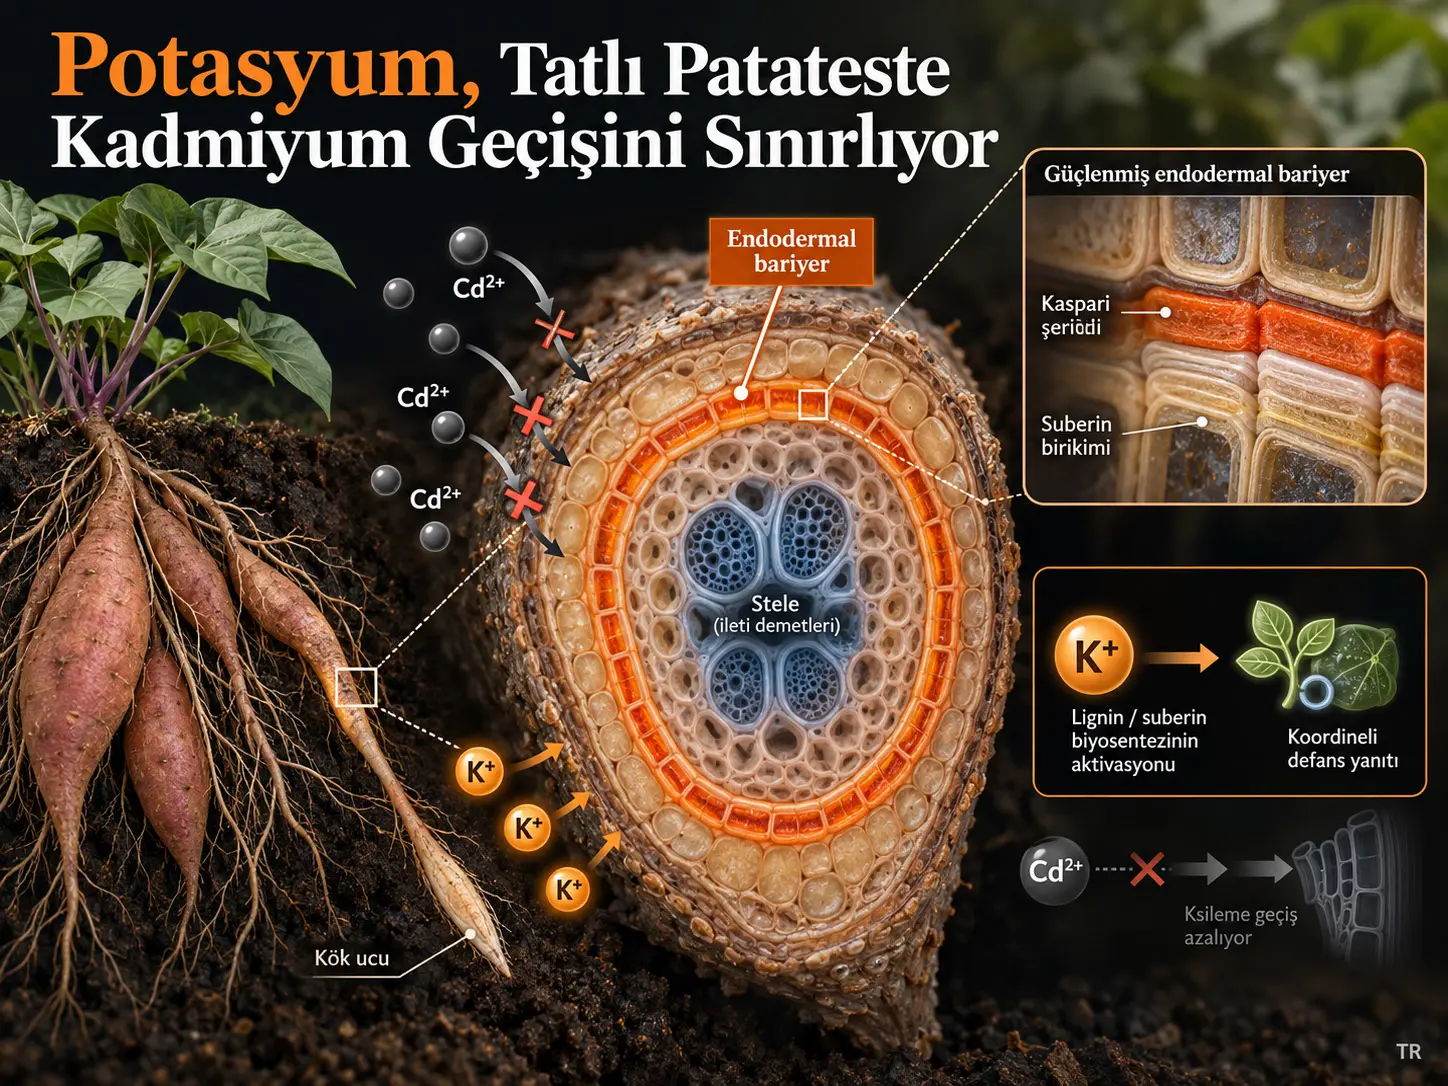
Tatlı patates kökünün endodermal bariyeri, vasküler silindire ulaşan su ve çözünmüş maddelerin radyal hareketini sınırlayan Kaspari şeridi ile suberin lamellerinin oluşturduğu seçici bir kök savunma sistemidir. Bu çalışma, kadmiyuma maruz bırakılmış düşük-Cd bir tatlı patates çeşidinde yeterli potasyumun bu bariyeri ve kökün hücre tipine özgü savunma programlarını nasıl değiştirdiğini tek çekirdek RNA dizilemesi, gen eş-ifade analizi, metabolit ölçümleri, histokimyasal boyamalar ve elektron mikroskopisiyle incelemiştir. Araştırmacılar, 3 mM K⁺ uygulamasının endodermiste lignin ve suberin oluşumuyla ilişkili genleri etkinleştirdiğini, Kaspari şeridi ile suberin birikimini güçlendirdiğini ve kadmiyumun vasküler dokulara ilerlemesini sınırlandırabilecek çok katmanlı bir kök yanıtı oluşturduğunu raporlamaktadır. Bununla birlikte çalışmada doğrudan Cd akısı veya doku Cd konsantrasyonu nicelleştirilmediğinden, kadmiyum alımının ne ölçüde azaldığı bu deneyden bağımsız bir sayısal değer olarak çıkarılamaz.
Tek çekirdek transkriptomunda K0Cd1 koşulundan 13.598 ve K1Cd1 koşulundan 10.175 çekirdek kalite kontrolden geçmiş; 19 transkripsiyonel küme dokuz kök hücre tipine atanmıştır. İki potasyum koşulu arasında toplam 16.886 diferansiyel ifade edilen gen belirlenmiştir. Endodermiste MYB1, MYB54 ve MYB308 gibi transkripsiyon faktörleri ile lignin/suberin biyosentezine ilişkin genler öne çıkarken; epidermis ve kortekste oksidatif stres yanıtıyla ilişkilendirilen WRKY/NAC/MYB ağları, ksilemde ise sekonder hücre duvarı oluşumuyla ilişkilendirilen NAC faktörleri belirginleşmiştir. K⁺ verilmesi ayrıca birçok RPL ve RPS ribozomal protein geninin Cd koşulunda görülen yüksek ekspresyonunu azaltmıştır. Yazarların “enerji dağılımının yeniden programlanması” yorumu bu transkripsiyonel değişime dayanmaktadır; doğrudan hücresel enerji tüketimi ölçülmemiştir.
Araştırmanın temel problemi
Kadmiyum, bitkiler için gerekli olmayan ve düşük konsantrasyonlarda bile oksidatif stres, besin dengesizliği ve fotosentetik bozulma oluşturabilen toksik bir metaldir. Toprakta bulunan Cd²⁺ köklerden alınabilir ve yenilebilir bitki kısımlarına taşınabilir. Tatlı patateste bu sorun özellikle önemlidir; çünkü tüketilen depo kökü doğrudan toprak-kök sisteminin parçasıdır.
Potasyum ise enzim aktivasyonu, protein sentezi, fotosentez, stoma hareketleri ve hücresel turgor dâhil çok sayıda bitki işlevi için gerekli bir makro besin elementidir. Tatlı patates yüksek potasyum gereksinimine sahip olduğundan K yetersizliği ile Cd kirliliğinin aynı ortamda bulunması hem üretim hem de ürün güvenliği açısından çift yönlü stres oluşturabilir.
Önceki çalışmalar yeterli K beslemesinin bitkilerde Cd birikimini azaltabileceğini göstermiş olsa da, kökün farklı hücre tiplerinin bu etkileşime nasıl katıldığı yeterince çözülmemiştir. Bu çalışmanın temel sorusu, potasyumun Cd stresi altındaki tatlı patates kökünde epidermis, korteks, endodermis ve vasküler dokularda aynı yanıtı oluşturup oluşturmadığı değil; her hücre tabakasının savunmaya farklı bir görevle katılıp katılmadığıdır.
Deneysel karşılaştırmanın mantığı
Araştırmacılar düşük Cd biriktiren Nan88 tatlı patates çeşidini kullanmıştır. Fideler aynı Cd düzeyi altında iki potasyum koşuluna ayrılmıştır:
| Koşul | Potasyum | Kadmiyum | Bilimsel amaç |
|---|---|---|---|
| K0Cd1 | 0 mM K+ | 0,1 mg/L Cd2+ | K yetersizliği altında Cd yanıtını belirlemek |
| K1Cd1 | 3 mM K+ | 0,1 mg/L Cd2+ | Yeterli K varlığında aynı Cd maruziyetine verilen yanıtı belirlemek |
Böylece Cd düzeyi sabit tutulmuş ve temel deneysel karşılaştırma potasyum varlığı üzerine kurulmuştur. K0Cd1 çözeltisinde KH2PO4 ve KNO3, karşılık gelen NaH2PO4 ve NaNO3 tuzlarıyla değiştirilerek potasyum dışındaki besin girdilerinin mümkün olduğunca korunması hedeflenmiştir.
Tek Çekirdek RNA Dizilemesi Bu Çalışmada Neyi Ortaya Çıkardı?
Tek çekirdek RNA dizilemesi (SnRNA-seq), tatlı patates kökündeki farklı hücre tiplerinin aynı kadmiyum maruziyeti altında potasyuma birbirinden farklı transkripsiyonel yanıtlar verdiğini ortaya çıkardı; araştırmacılar 19 transkripsiyonel kümeyi dokuz hücre tipine ayırdı ve K0Cd1 ile K1Cd1 koşulları arasında toplam 16.886 diferansiyel ifade edilen gen tanımladı.
Kökün hücresel atlası
Her iki SnRNA-seq örneğinde 450 milyonun üzerinde okuma elde edilmiş ve okumaların %82'den fazlası kullanılan referans genoma eşlenmiştir. Kalite filtresinden sonra K0Cd1 örneğinde 13.598, K1Cd1 örneğinde 10.175 çekirdek analize dâhil edilmiştir. Çekirdek başına medyan gen sayısı sırasıyla 1.319 ve 1.452'dir.
UMAP tabanlı kümeleme 19 transkripsiyonel küme üretmiş ve 44 belirteç gen yardımıyla şu dokuz hücre tipi tanımlanmıştır:
- epidermis,
- korteks,
- endodermis,
- floem,
- ksilem,
- stel,
- sessiz merkez (quiescent center, QC),
- kök hücre nişi (stem cell niche, SCN),
- proksimal meristem (PM).
Epidermis kümelerinde XTH23 ve ZIP1; kortekste EARLI1; endodermiste DIR10 ve At4g17280; ksilemde At2g25060 ve At3g51220 gibi belirteçler hücre kimliklendirmesini desteklemiştir. Potasyuma yanıt veren yukarı düzenlenmiş genlerin hücre tipleri arasındaki Pearson korelasyon katsayılarının 0,19 ile 0,88 arasında değişmesi, ortak stres programlarının yanında belirgin hücre-tipine özgü yanıtların da bulunduğunu göstermektedir.
Diferansiyel gen ifadesinin hücresel dağılımı
| Hücre tipi | DEG sayısı |
|---|---|
| Ksilem | 1.977 |
| Korteks | 1.310 |
| Endodermis | 1.129 |
| Epidermis | 1.078 |
| Stel | 971 |
| Floem | 846 |
Altı ana hücre tipinde ribozomun yapısal bileşenleri, peptit biyosentezi ve translasyon gibi işlevler ortak biçimde zenginleşmiştir. Ribozom yolu tüm altı ana hücre tipinde belirginleşirken nükleositoplazmik taşıma ksilem dışındaki hücrelerde; oksidatif fosforilasyon epidermis, korteks, endodermis ve floemde; Calvin döngüsüyle karbon fiksasyonu ise epidermis, korteks, floem ve stelde zenginleşmiştir.
WGCNA ile düzenleyici ağların ayrılması
Araştırmacılar dokuz hücre tipindeki diferansiyel genlerden ağırlıklı gen eş-ifade ağı analizi oluşturmuştur. WGCNA için Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 ve unsigned TOM kullanılmış; genler 11 eş-ifade modülüne ayrılmıştır.
En büyük modül 2.464 gen içeren greenyellow, en küçük modül ise altı gen içeren grey modülüdür. Endodermisle ilişkili kırmızı modülde MYB1 ve MYB308 ile lignin ve suberin biyosentezindeki çok sayıda gen birlikte yer almıştır. NAC075, NAC079 ve NAC100 faktörlerinin de bu endodermal düzenleyici ağla yakın ilişkili olduğu bildirilmiştir.
Kaspari Şeridi ve Suberin Lamelleri Kadmiyum Taşınmasını Nasıl Sınırlar?
Kaspari şeridi endodermal hücre duvarında lignince zengin bir radyal difüzyon bariyeri, suberin lamelleri ise endodermal hücre duvarını kaplayan hidrofobik bir bariyerdir; birlikte kökün dış katmanlarından vasküler silindire ulaşan maddelerin kontrolsüz geçişini sınırlandırırlar ve bu çalışmada potasyum verilmesi her iki bariyerin oluşumuyla ilişkili genetik ve yapısal göstergeleri güçlendirmiştir.
Endodermiste lignin ve suberin programı
K1Cd1 koşulunda endodermal hücrelerde lignin ve suberin oluşumuyla bağlantılı 17 gen/faktörün belirginleştiği raporlanmıştır. Bunlar dört işlevsel gruba ayrılabilir:
- Lignin biyosentezi: 4CL, HCT4, CCoAOMT, CCoAOMT5, LAC5 ve PER11.
- Suberin biyosentezi: KCS1, KCS20, PAS2A, CYP86A1, CYP86B1, LACS4 ve GPAT5.
- Taşıyıcı proteinler: ABCG31 ve LTPG2.
- Transkripsiyon faktörleri: MYB1 ve MYB308.
Çalışma endodermisi iki alt tipe ayırmıştır: endodermis 1 ve endodermis 2. CCoAOMT5 ve 4CL dışındaki lignin/suberin ilişkili diferansiyel genlerin büyük kısmındaki iki tedavi arasındaki değişimin özellikle endodermis 1 hücrelerinde görüldüğü belirtilmiştir.
Lignin öncüllerindeki metabolik değişim
Potasyum verilen K1Cd1 grubunda bazı lignin öncülleri belirgin biçimde artmıştır:
| Metabolit | Değişim | Yorum |
|---|---|---|
| L-fenilalanin | +%96,7 | Fenilpropanoid/lignin yolunun erken öncülü |
| Ferulik asit | +%71,2 | Lignin biyosenteziyle ilişkili ara metabolit |
| Sinapil alkol | +%117,6 | S-lignin öncülü |
Buna karşılık sinnamik asit, p-kumarik asit, koniferaldehit, koniferil alkol, p-kumaraldehit ve p-kumaril alkol düzeylerinde K0Cd1'e göre %38,4–68,8 arasında azalma raporlanmıştır. Bu metabolit profili tek başına toplam lignin miktarının doğrudan ölçümü değildir; yolun farklı dalları arasındaki yeniden dağılıma işaret etmektedir.
Mäule boyamasında K0Cd1 köklerinin vasküler hücre duvarlarındaki açık turuncu-kırmızı görünümün K1Cd1 koşulunda bordo-kırmızıya dönmesi, yazarlar tarafından S-lignin birikiminin artışıyla uyumlu olarak yorumlanmıştır.
Elektron mikroskopisi ve suberin boyaması
Transmisyon elektron mikroskopisi, kök ucundan 4–5 mm uzaklıktaki endodermal Kaspari şeridinde K1Cd1 grubunda daha belirgin elektron-yoğun yapı göstermiştir. Kök ucundan 9–10 mm uzaklıkta da lignin birikiminin arttığı raporlanmıştır.
Fluorol Yellow 088 boyaması endodermal suberin birikiminin hem genç hem daha olgun kök bölgelerinde K1Cd1 koşulunda arttığını göstermiştir. Genç kök bölgesindeki suberin floresans yoğunluğu K0Cd1 değerinin 1,53 katına ulaşmış ve fark p < 0,05 olarak bildirilmiştir.
Hücre tipine özgü transkripsiyon faktörü katmanı
Kök yüzeyine yakın epidermis ve korteks hücrelerinde WRKY6, WRKY27, WRKY40 ve ERF109 gibi faktörlerin K1Cd1 koşulunda etkinleşmesi, yazarlar tarafından Cd kaynaklı oksidatif stresle mücadele eden savunma sistemlerinin güçlendirilmesiyle ilişkilendirilmiştir. Bu çalışma ilgili faktörlerin ekspresyonunu göstermektedir; ROS temizleme hızının doğrudan bu faktörler tarafından ne kadar artırıldığı ayrıca ölçülmemiştir.
Endodermiste MYB1, MYB54 ve MYB308; ksilemde ise NAC007, NAC073 ve NAC086 gibi faktörlerin öne çıkması, savunmanın hücre tabakaları arasında iş bölümü gösterdiğini düşündürmektedir. Ksilemdeki NAC ağları sekonder hücre duvarı, lignin ve selüloz biyosenteziyle ilişkilendirilmiştir.
Floemde MYB3, MYB48 ve MYB108'in özgül yükselişi de raporlanmıştır. Ancak yazarlar bu floem-spesifik MYB faktörlerinin uzun mesafeli Cd taşınımına veya sinyalizasyonuna nasıl etki ettiğinin henüz açıklanmadığını ve bunun gelecek araştırmalar için açık bir soru olduğunu belirtmektedir.
Ribozomal stres yanıtı
Beş farklılaşmış kök hücre katmanında 116 adet RPL ve 87 adet RPS geni diferansiyel olarak ifade edilmiştir. K0Cd1 koşulunda bu genlerin genel ekspresyonu daha yüksektir; fark özellikle korteks ve ksilemde belirgindir. Kortekste 108 RPL ve 81 RPS geninin iki koşul arasında mutlak kat değişiminin 2'den büyük olduğu bildirilmiştir.
Korteks hücrelerinin pseudotime analizi iki gelişim kolu ortaya çıkarmıştır. Toplam 3.480 dal-bağımlı gen beş kümeye ayrılmış; küme 1'de 711, küme 2'de 1.281 gen bulunmuştur. Bu iki küme birlikte dal-bağımlı genlerin %57,2'sini oluşturmuştur. RPL ve RPS genlerinin tamamı, genetik bilgi işleme ve hücresel süreçlerle ilişkili küme 2'de yer almıştır.
Potasyumun “Enerji Dağılımını Yeniden Programlaması” Doğrudan mı Ölçüldü?
Hayır. Çalışmada ATP üretimi, solunum enerjisi, enerji bütçesi veya hücresel enerji akısı doğrudan ölçülmemiştir; “enerji dağılımının yeniden programlanması” yorumu, K yetersizliğinde yükselen ribozomal protein genlerinin yeterli K altında baskılanması ile hücre duvarı ve savunma programlarının güçlenmesinin birlikte değerlendirilmesine dayanan transkripsiyonel bir çıkarımdır.
Bu ayrım önemlidir. RPL/RPS ekspresyonunun azalması, ribozom biyogenezine ayrılan hücresel kaynak talebinin azalmasıyla uyumlu olabilir; ancak gen ekspresyon verisi tek başına enerji tüketiminin nicel olarak hangi büyüklükte başka bir metabolik yola aktarıldığını göstermez. Dolayısıyla çalışmanın güvenilir biçimde desteklediği ifade, potasyumun Cd stresi altındaki transkripsiyonel kaynak kullanım örüntüsünü değiştirdiğidir.
Çalışmanın önerdiği çok katmanlı mekanizma
- Epidermis ve korteks: Potasyumla birlikte stres ve antioksidan yanıtlarla ilişkilendirilen transkripsiyon faktörü ağları etkinleşir.
- Endodermis: MYB1, MYB54 ve MYB308 ile lignin/suberin biyosenteziyle ilişkili genlerin ekspresyonu yükselir.
- Kaspari şeridi ve suberin lamelleri: Histokimyasal ve ultrastrüktürel kanıtlar endodermal bariyerin güçlendiğini gösterir.
- Ksilem: NAC007/NAC073/NAC086 ile ilişkili sekonder hücre duvarı programları öne çıkar.
- Ribozomal program: K0Cd1'de yüksek bulunan birçok RPL/RPS geni K1Cd1 koşulunda daha düşük ekspresyon gösterir.
- Genel yorum: Yazarlar bu katmanları birlikte, Cd'nin kökten vasküler sisteme ve üst organlara taşınmasını sınırlayan koordineli bir savunma modeli olarak yorumlamaktadır.
Çalışmanın Yöntemi ve Bulguları
Bitki yetiştirme ve uygulamalar
Çalışmada önceki araştırmalarda düşük Cd biriktiren bir çeşit olarak tanımlanan Nan88 kullanılmıştır. Aynı ana bitkiden alınan, iki boğum ve yaprak taşıyan gövde parçalarının alt yaprağı uzaklaştırılmış ve alt boğum deiyonize suya batırılmıştır. Üç günlük köklenmenin ardından fideler K0Cd1 veya K1Cd1 koşuluna aktarılmıştır.
Yetiştirme odası koşulları:
- Fotoperiyot: 16 saat,
- gündüz/gece sıcaklığı: 28/22°C,
- ışık şiddeti: 150 µmol·m−2·s−1,
- bağıl nem: %60–70,
- besin çözeltisi yenileme sıklığı: 3 günde bir,
- çözelti pH'ı: 6,0.
Çekirdek izolasyonu
Bir haftalık uygulamadan sonra kök ucunun 0,5–3,0 cm'lik bölgesi alınmıştır. Doku sıvı azotta öğütülmüş ve %5 Dextran T40, 0,4 M sakkaroz, 10 mM MgCl2, 1 mM DTT, 2 U/µL RNaz inhibitörü, %0,1 Triton X-100 ve 100 mM Tris-HCl içeren çekirdek izolasyon tamponuyla işlenmiştir.
İlk santrifüj 300 ×g'de 1 dakika, ikinci santrifüj 2.000 ×g'de 5 dakika uygulanmıştır. Numuneler 70 ve 40 µm hücre süzgeçlerinden geçirilmiş; çekirdekler PBS/BSA/RNaz inhibitörü içeren yıkama tamponunda süspanse edilmiştir. Başlangıç hedefi 1.000–2.000 çekirdek/µL, floresansla etkinleştirilen çekirdek ayırma sonrasında yaklaşık 1.000 çekirdek/µL olarak verilmiştir.
SnRNA-seq kitaplığı ve dizileme
Tek çekirdekler, barkodlu jel boncuklar ve enzimler mikrodamlacıklar içinde GEM yapılarına alınmıştır. Ters transkripsiyon sırasında 10 bazlık benzersiz moleküler tanımlayıcılar ve 16 bazlık hücre barkodları cDNA'ya eklenmiştir. Kitaplık Chromium Next GEM Single Cell 3' Reagent Kits v3.1 ile hazırlanmış ve Illumina NovaSeq X Plus, PE150 kullanılarak dizilenmiştir.
Biyoinformatik kalite kontrolü ve kümeleme
Ham SnRNA-seq verileri Cell Ranger 8.0.0 ile işlenmiş ve I. trifida v3 referansına hizalanmıştır. İfade matrisi R ortamında Seurat 5.1.0 ile analiz edilmiştir.
Düşük kaliteli çekirdekler şu kriterlerle çıkarılmıştır:
- barkodun benzersiz biçimde bir hücreye eşlenmemesi,
- çekirdek başına gen sayısının 410'dan düşük veya 4.600'den yüksek olması,
- çekirdek başına UMI sayısının 12.000'den yüksek olması.
Normalize edilmiş ifade verileri üzerinde temel bileşen analizi yapılmış; parti etkisi Harmony ile düzeltilmiş ve kümeler UMAP kullanılarak iki boyutlu olarak gösterilmiştir.
Marker gen ve DEG kriterleri
Hücre kümelerindeki yukarı düzenlenmiş marker genlerin belirlenmesinde Wilcoxon sıra toplam testi kullanılmıştır. Marker adayı gen için hedef kümedeki çekirdeklerin %25'inden fazlasında ifade, kat değişimi ≥ 1,28 ve p ≤ 0,01 koşulları aranmıştır.
İki K uygulaması arasındaki diferansiyel genler için:
- |log2 fold change| ≥ 0,58,
- p ≤ 0,05,
- min.pct > %25
eşikleri kullanılmıştır. Fonksiyonel yorum için GO ve KEGG zenginleştirme analizleri uygulanmıştır.
Pseudotime analizi
Korteks hücrelerinin gelişimsel yörüngeleri Monocle 2 kullanılarak incelenmiştir. Analiz iki temel gelişim kolu göstermiştir ve DIR23 dâhil marker genlerin kollara göre farklı dağılımı raporlanmıştır.
WGCNA
Dokuz hücre tipinde belirlenen DEG'lerin birleşiminden WGCNA ağı kurulmuştur. Kullanılan temel parametreler Power = 8, minModuleSize = 50, mergeCutHeight = 0,2 ve unsigned TOM'dur. Modül içi bağlantı K.in ve module membership değerleri kullanılarak hub gen adayları değerlendirilmiş, ağlar Cytoscape 3.10.3 ile görselleştirilmiştir.
Lignin histokimyası ve metabolit analizi
Bir haftalık uygulama sonunda kök ucundan 6,5–8,5 cm uzaklıktaki kesitler %1 KMnO4, %36 HCl ve %29 NH4OH kullanılarak işlenmiş ve Olympus BX53 mikroskopla incelenmiştir.
Metabolit analizi için uygulamanın 18. gününde alınan kökler liyofilize edilip öğütülmüş; 50 mg toz, 1,2 mL soğuk %70 metanol/su karışımıyla ekstrakte edilmiştir. Ekstraktlar ExionLC AD UPLC ve ESI-triple quadrupole-linear ion trap QTRAP MS sistemiyle analiz edilmiştir. Ayırımda Agilent SB-C18, 1,8 µm, 2,1 × 100 mm kolon kullanılmış; mobil faz akış hızı 0,35 mL/dakika, enjeksiyon hacmi 2,0 µL olarak verilmiştir.
Kaspari şeridi ve suberin analizi
Kök ucundan 4–5 mm ve 9–10 mm uzaklıktaki örnekler %2,5 glutaraldehit ile fikse edilmiş, epoksi reçineye gömülmüş ve Leica EM UC7 ultramikrotomla 100 nm'lik ultratın kesitler hazırlanmıştır. Kesitler uranil asetat, kurşun sitrat ve %5 KMnO4 ile boyanmış; Hitachi H-7650 transmisyon elektron mikroskobunda görüntülenmiştir.
Kaspari şeridindeki lignini belirlemek için 9–10 mm bölgesindeki kesitlere %2 phloroglucinol-HCl uygulanmıştır. Suberin, %0,01 Fluorol Yellow 088 ile boyanmış ve Olympus BX53 mikroskopta 0,5 saniyelik pozlamayla görüntülenmiştir. Görüntü nicelleştirmesinde ImageJ 1.54k, iki tedavi arasındaki farkların testinde bağımsız örneklem t-testi kullanılmıştır.
Başlıca nicel sonuçlar
| Ölçüm | K0Cd1 / genel | K1Cd1 / sonuç | Yorum sınırı |
|---|---|---|---|
| Dizileme okumaları | Her örnekte >450 milyon | SnRNA-seq teknik çıktısıdır. | |
| Referans genoma eşlenme | >%82 | Dizileme kalite göstergesidir. | |
| Kalite sonrası çekirdek | 13.598 | 10.175 | Hücre sayıları tedavi etkisi olarak doğrudan yorumlanmamalıdır. |
| Medyan gen/çekirdek | 1.319 | 1.452 | Teknik/transkriptomik kalite metriğidir. |
| Transkripsiyonel küme | 19 | Dokuz hücre tipine atanmıştır. | |
| Toplam DEG | 16.886 | K0Cd1–K1Cd1 karşılaştırmasıdır. | |
| WGCNA modülü | 11 | Eş-ifade ilişkisini gösterir; tek başına nedensellik kanıtlamaz. | |
| L-fenilalanin | Referans | +%96,7 | K1Cd1/K0Cd1 metabolit farkıdır. |
| Ferulik asit | Referans | +%71,2 | K1Cd1/K0Cd1 metabolit farkıdır. |
| Sinapil alkol | Referans | +%117,6 | S-lignin öncülündeki değişimdir. |
| Genç kökte suberin floresansı | 1,00 | 1,53 kat | p < 0,05; histokimyasal yoğunluk karşılaştırmasıdır. |
Çalışmanın doğrudan desteklediği sonuçlar
- Potasyum varlığı Cd stresi altındaki kök hücrelerinde hücre-tipine özgü geniş transkripsiyonel değişiklikler oluşturmuştur.
- Endodermiste lignin ve suberin biyosentezine bağlı gen ağları K1Cd1 koşulunda güçlenmiştir.
- Kaspari şeridi ve suberin birikimindeki yapısal/histokimyasal göstergeler K uygulamasıyla artmıştır.
- Lignin biyosenteziyle ilişkili metabolit profili K0Cd1 ile K1Cd1 arasında belirgin biçimde değişmiştir.
- RPL ve RPS genlerinin Cd koşulundaki yüksek ekspresyonu yeterli K varlığında genel olarak azalmıştır.
- Epidermis, korteks, endodermis, floem ve ksilem aynı moleküler yanıtı vermemiştir; farklı transkripsiyon faktörü aileleri ve hücresel işlevler öne çıkmıştır.
Çalışmanın tek başına desteklemediği sonuçlar
- Bu deney, K1Cd1 grubunda Cd konsantrasyonunun kesin olarak yüzde kaç azaldığını göstermez; bu çalışmanın yöntemlerinde doğrudan doku Cd nicelleştirmesi raporlanmamıştır.
- Gen ekspresyon değişimleri, MYB veya NAC faktörlerinin ilgili hedef genleri doğrudan ve nedensel biçimde kontrol ettiğini tek başına kanıtlamaz.
- RPL/RPS baskılanması doğrudan ATP veya enerji akısının savunma yollarına aktarıldığının nicel ölçümü değildir.
- Kontrollü büyüme odası sonuçları tarla koşullarındaki performansı tek başına kanıtlamaz.
- Nan88 çeşidinde görülen yanıtın tüm tatlı patates genotiplerinde aynı büyüklükte gerçekleştiği gösterilmemiştir.
- Floeme özgü MYB3, MYB48 ve MYB108'in uzun mesafeli Cd taşınmasındaki mekanistik görevi bu çalışma tarafından çözülmemiştir.
Kaynak ve Yöntem Notu
Özgün çalışma:Potassium reinforces endodermal barriers and reprograms energy allocation to block cadmium uptake in sweet potato
Yazarlar ve sıra: Huiling Fu; Baifei Huang; Yingying Huang; Zhipeng Chen; Chuang Shen; Pan Cao; Qiong Liao; Junliang Xin.
Sorumlu yazarlar: Baifei Huang ve Junliang Xin.
Kurumlar: School of Chemical and Environmental Engineering, Hunan Institute of Technology, Hengyang 421002, China; Hunan Chemical Vocational Technology College, Zhuzhou 412000, China.
Platform: SSRN.
SSRN kaydı: abstract=7358620.
DOI: Yüklenen preprintte DOI raporlanmamıştır.
Dergi / cilt / sayı: Yüklenen sürümde hakemli bir dergi, cilt veya sayı bilgisi verilmemiştir.
Hakemlik durumu: Preprint; belge açık biçimde hakem değerlendirmesinden geçmediğini belirtmektedir.
Lisans: Yüklenen sürümde açık bir Creative Commons veya benzeri yeniden kullanım lisansı belirtilmemektedir.
Veri erişilebilirliği: Ham verilerin China National Center for Bioinformation, Chinese Academy of Sciences bünyesinde GSA: CRA031773 koduyla depolandığı belirtilmiştir.
Çıkar çatışması: Yazarlar çalışmayı etkileyebilecek bilinen finansal çıkar veya kişisel ilişki bulunmadığını beyan etmiştir.
Finansman: Çalışma National Natural Science Foundation of China (42577160), Scientific Research Foundation of Hunan Provincial Education Department (23B0824), Hunan Provincial Natural Science Foundation of China (2025JJ50189), College Students Research Learning and Innovative Experiment Project of Hunan Province (S202611528182) ve Hengyang Science and Technology Innovation Plan Project (202330046395) tarafından desteklenmiştir.
Yazar katkıları: Baifei Huang, Huiling Fu ve Junliang Xin araştırmayı planlamış ve tasarlamıştır. Zhipeng Chen, Pan Cao ve Qiong Liao veri toplamıştır. Huiling Fu, Yingying Huang ve Chuang Shen verileri analiz etmiş ve şekilleri hazırlamıştır. Huiling Fu, Junliang Xin ve Baifei Huang makaleyi yazmış ve düzenlemiştir.
Temel yöntemsel sınırlar: Çalışma kontrollü yetiştirme koşullarındaki tek bir düşük-Cd tatlı patates çeşidine dayanmaktadır. Mevcut metinde SnRNA-seq için biyolojik tekrar yapısı ayrıntılı biçimde açıklanmamıştır. Moleküler ağların önemli bölümü ekspresyon korelasyonuna ve literatürde bilinen gen işlevlerine dayalıdır. Doğrudan Cd konsantrasyonu veya Cd akısı ölçümü sunulmadığı için endodermal bariyer güçlenmesi ile azalan Cd alımı arasındaki mekanistik zincirin son basamağı bu deneyde doğrudan nicelleştirilmemiştir. Benzer biçimde “enerji yeniden dağılımı” transkriptomik bir yorumdur ve doğrudan enerji metabolizması ölçümüne dayanmamaktadır.
Kaynak içi görsel notu: Şekil 8'in panel K/L açıklamasında metin-görsel arasında terslik görünmektedir; ana sonuç metni ve panel eksenleri suberin floresansındaki 1,53 kat artışın panel L ile ilişkili olduğunu desteklemektedir. Şekil 1A'daki “Protoplasts Enzyme” etiketi de materyal-yöntemde tarif edilen çekirdek izolasyonu/FANS protokolüyle terminolojik olarak uyumsuz görünmektedir. Bu noktalar sessizce düzeltilmemiş, kaynak belirsizliği olarak korunmuştur.
Formül durumu: Çalışmanın ana yöntem veya sonuçlarını taşıyan merkezî matematiksel denklem bulunmamaktadır; bu nedenle kaynakta olmayan bir formül Verianla makalesine eklenmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir