

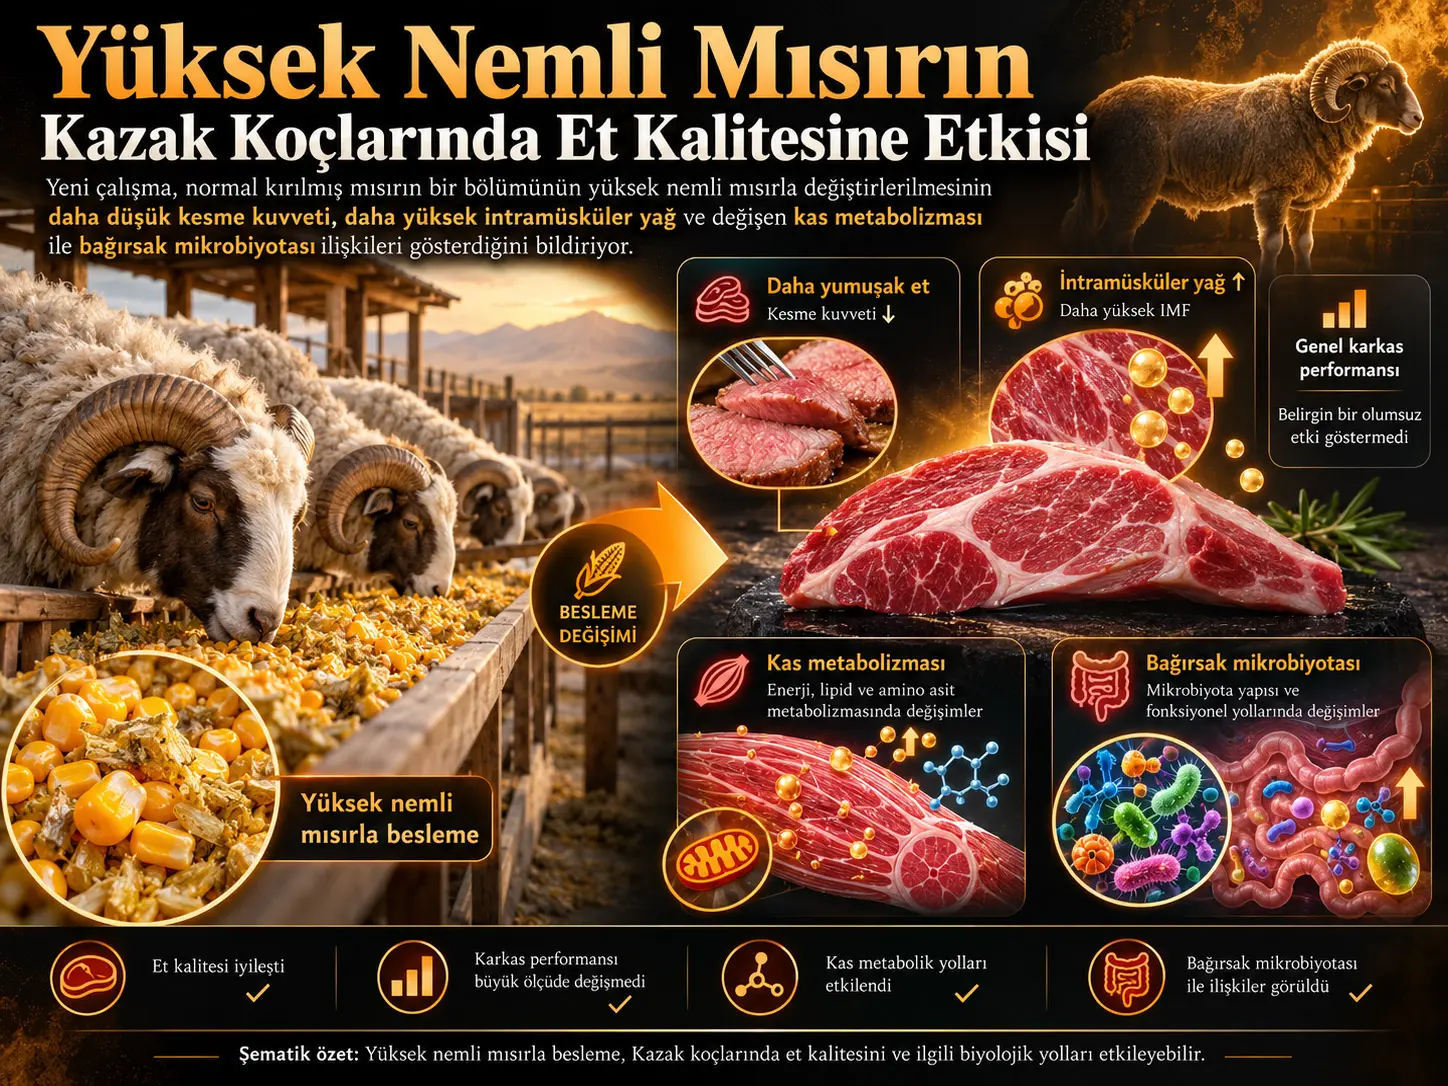
Yüksek nemli mısır (High-Moisture Corn, HMC), mısır tanelerinin klasik kuru dane mısıra göre daha yüksek nem düzeyinde hasat edilip kırıldıktan sonra anaerobik olarak fermente edilmesiyle hazırlanan yüksek enerjili bir yemdir. Bu çalışma, Kazak koçlarının diyetindeki normal kırılmış mısırın yarısının HMC ile değiştirilmesinin kesim performansı, kuzu eti kalitesi, kas aminoasit ve yağ asidi bileşimi, kas metabolomikleri ve jejunal bağırsak mikrobiyotası üzerindeki etkilerini araştırmıştır. Yaklaşık altı aylık 32 koç CT ve GS gruplarına ayrılmış; CT diyetinde kuru madde temelinde %24 normal kırılmış mısır bulunurken GS diyetinde %12 normal kırılmış mısır + %12 HMC kullanılmıştır. Deneme 120 gün sürmüştür.
HMC beslemesi genel karkas ağırlığını veya randımanı anlamlı biçimde değiştirmemiş, ancak sırt yağı kalınlığını artırmıştır. Et kalitesinde daha belirgin farklar görülmüştür: Longissimus lumborum kasının kesme kuvveti 40,34 ± 7,69'dan 17,95 ± 2,81 N/cm²'ye düşmüş ve intramüsküler yağ oranı %6,23 ± 0,21'den %9,74 ± 0,12'ye yükselmiştir. Buna karşılık pH24, et rengi ve damlama kaybında anlamlı değişiklik saptanmamıştır.
Kas metabolomiğinde toplam 668 metabolit tespit edilmiş, bunların 20'si çok aşamalı istatistiksel filtreyi geçerek anlamlı diferansiyel metabolit olarak sınıflandırılmıştır; 15 metabolit GS grubunda artmış, 5 metabolit azalmıştır. Diferansiyel metabolitler özellikle valin-lösin-izolösin biyosentezi, taurin ve hipotaurin metabolizması, pantotenat ve koenzim A biyosentezi ile TCA döngüsünde zenginleşmiştir.
Jejunal mikrobiyota analizinde alfa çeşitliliği anlamlı değişmezken mikrobiyal topluluk yapısı, yani beta çeşitliliği, gruplar arasında ayrışmıştır. Proteobacteria ve Acidobacteriota GS grubunda daha yüksek, Firmicutes_A ise daha düşük bulunmuştur. Bununla birlikte mikrobiyota ile kas yağ asitleri arasındaki sonuçlar korelasyona dayanmaktadır; çalışma belirli bakterilerin et yağ asidi bileşimini doğrudan oluşturduğunu kanıtlamamaktadır.
Çalışmanın temel yorum sınırı, toplam 32 hayvan bulunmasına rağmen performans ve et kalite analizlerinin deney birimi olarak ağıl ortalamalarını kullanması ve böylece grup başına istatistiksel tekrar sayısının n=4 olmasıdır. Metabolomik ve mikrobiyota alt çalışmalarında da farklı ve daha küçük örneklem düzenleri kullanılmıştır. Bu nedenle sonuçlar güçlü biyolojik sinyaller sunsa da daha büyük ve bağımsız besleme denemeleriyle doğrulanmalıdır.
Yüksek Nemli Mısır Nedir ve Kuru Mısırdan Nasıl Farklıdır?
Yüksek nemli mısır, tane nemi yaklaşık %25–38 düzeyindeyken hasat edilen, tane yapısı kırıldıktan sonra organik asitler veya laktik asit bakterileri gibi silaj inokulantlarıyla anaerobik olarak fermente edilip kapalı ortamda depolanan bir mısır yemidir. Amaç, kurutma için gereken enerjiyi azaltırken nişasta sindirilebilirliğini, yem lezzetliliğini ve besin maddelerinin korunmasını artırmaktır; ancak bu çalışmanın ekonomik maliyet avantajını doğrudan ölçmediği unutulmamalıdır.
Bu deneyde kullanılan HMC yaklaşık 4–6 mm partikül büyüklüğüne kadar kırılmıştır. Fermantasyon katkısının mikrobiyal bileşeni Lactococcus lactis ve Lactobacillus brevis dahil Lactobacillus grubu mikroorganizmaları içermiş ve bildirilen toplam yoğunluk 1,3 × 10¹¹ CFU/g olmuştur.
HMC sıkıştırılıp silaj torbalarında kapatılmış ve 64 gün fermente edilmiştir. Açılmadan önce pH 3,83 ± 0,21 olarak ölçülmüştür. Besleme sırasında HMC sıcaklığı 4–8 °C aralığında kalmış ve gözle görünür küf bildirilmemiştir.
Deney grupları arasındaki gerçek yem farkı neydi?
| Bileşen | CT (%) | GS (%) |
|---|---|---|
| Bütün bitki mısır silajı | 30,00 | 30,00 |
| Pamuk artığı | 30,00 | 30,00 |
| Normal kırılmış mısır | 24,00 | 12,00 |
| Yüksek nemli mısır | 0,00 | 12,00 |
| Pamuk tohumu küspesi | 5,00 | 5,00 |
| Soya küspesi | 5,00 | 5,00 |
| Buğday kepeği | 3,20 | 3,20 |
| Premiks | 2,00 | 2,00 |
| NaCl | 0,40 | 0,40 |
| NaHCO3 | 0,40 | 0,40 |
İki diyetin hesaplanan kaba enerji düzeyleri birbirine çok yakındır: CT için 15,81 MJ/kg, GS için 15,83 MJ/kg. Ham protein sırasıyla %13,05 ve %13,07'dir. Dolayısıyla deney, büyük bir toplam enerji veya protein farkından çok mısırın işlenme/fermantasyon biçiminin değiştirilmesini incelemektedir.
HMC Et Kalitesini Nasıl Değiştirdi?
Bu deneyde HMC'nin en güçlü etkisi toplam karkas çıktısından çok etin fiziksel özellikleri ve yağ birikimi üzerinde görülmüştür: sırt yağı kalınlığı artmış, kas kesme kuvveti yaklaşık yarıdan fazla azalmış ve intramüsküler yağ yaklaşık %56 artmıştır; buna karşılık karkas ağırlığı, randıman, et rengi, pH24 ve damlama kaybı anlamlı değişmemiştir.
Kesim performansı
| Ölçüt | CT | GS | p |
|---|---|---|---|
| Kesim öncesi canlı ağırlık (kg) | 59,23 ± 9,21 | 61,94 ± 9,99 | 0,636 |
| Karkas ağırlığı (kg) | 26,44 ± 3,57 | 28,56 ± 5,27 | 0,433 |
| Net et ağırlığı (kg) | 22,23 ± 3,41 | 23,93 ± 4,21 | 0,461 |
| Randıman (%) | 44,63 ± 2,26 | 46,11 ± 1,89 | 0,347 |
| Göz kası alanı (cm²) | 15,89 ± 0,97 | 16,48 ± 0,25 | 0,471 |
| Sırt yağı kalınlığı (cm) | 0,77 ± 0,06 | 0,92 ± 0,30 | 0,021 |
Bu sonuçların anlamı, HMC'nin bu deney koşullarında hayvanı genel olarak daha ağır bir karkasa dönüştürdüğünün gösterilmemiş olmasıdır. İstatistiksel olarak açık değişim yağ depolanmasının bir göstergesi olan sırt yağı kalınlığında görülmüştür.
Etin fizikokimyasal özellikleri
| Ölçüt | CT | GS | p |
|---|---|---|---|
| pH24 | 5,55 ± 0,04 | 5,65 ± 0,07 | 0,12 |
| L*24 | 34,01 ± 1,66 | 32,63 ± 0,76 | 0,27 |
| a*24 | 17,10 ± 2,26 | 15,80 ± 0,36 | 0,38 |
| b*24 | 5,77 ± 0,51 | 5,13 ± 0,06 | 0,11 |
| Kesme kuvveti (N/cm²) | 40,34 ± 7,69 | 17,95 ± 2,81 | <0,01 |
| Damlama kaybı (%) | 0,52 ± 0,18 | 0,48 ± 0,17 | 0,77 |
| Kas içi protein (%) | 22,58 ± 0,94 | 21,67 ± 0,99 | 0,06 |
| Intramüsküler yağ (%) | 6,23 ± 0,21 | 9,74 ± 0,12 | <0,01 |
Kesme kuvveti, pişirilmiş kas örneğinin lif yönüne dik kesilmesi için gereken mekanik direnci ölçer. Daha düşük değer genel olarak daha yüksek mekanik yumuşaklıkla uyumludur. Burada yaklaşık %55'lik azalma HMC grubundaki en büyük fiziksel değişimlerden biridir.
Intramüsküler yağ kas lifleri arasındaki lipid depolanmasını ifade eder. HMC grubunda %56,34 artmıştır. Kaynağın H&E boyalı kesitleri de GS örneklerinde daha fazla adiposit görünümü bulunduğunu nitel olarak düşündürmektedir; ancak yazarlar bu histolojik gözlemin nicel doğrulama olmadığını açıkça belirtmektedir.
Kesme kuvveti nasıl ölçüldü?
Longissimus lumborum örnekleri 80 °C kontrollü su banyosunda iç sıcaklık 70 °C'ye ulaşana kadar ısıtılmış, daha sonra 20 °C'ye soğutulmuştur. Her kastan yaklaşık 3–4 cm uzunluğunda ve 1 × 1 cm kesitli dört paralel örnek hazırlanmıştır. C-LM3B tenderness tester ile lif yönüne dik ve 25 cm/dak ilerleme hızında kesme kuvveti ölçülmüş; her alt örnekte dört ölçümün ortalaması kullanılmıştır.
Intramüsküler yağ nasıl ölçüldü?
Öğütülmüş kas örnekleri 65 °C'de kurutulduktan sonra susuz petrol eteri kullanılarak Soxhlet ekstraksiyonuna alınmıştır. Intramüsküler yağ yüzdesi, ekstrakte edilen yağ kütlesinin başlangıç kuru örnek kütlesine oranı üzerinden hesaplanmıştır.
Kas proteini nasıl ölçüldü?
Ham protein Kjeldahl yöntemiyle ölçülmüş ve azot miktarı 6,25 dönüşüm faktörü kullanılarak protein miktarına çevrilmiştir.
Aminoasit profili ne kadar değişti?
Toplam 21 aminoasit ölçülmüştür. Bunların 17'sinde anlamlı fark bulunmamıştır. GS grubunda aspartik asit, arginin ve glutamin daha düşük; glisin daha yüksek bulunmuştur.
| Aminoasit | CT (ng/mg) | GS (ng/mg) | p |
|---|---|---|---|
| Arginin | 78,48 ± 15,15 | 59,12 ± 7,98 | 0,02 |
| Aspartik asit | 114,80 ± 19,01 | 85,92 ± 7,90 | <0,01 |
| Glutamin | 4803,03 ± 1033,84 | 3596,33 ± 594,80 | 0,03 |
| Glisin | 60,20 ± 8,37 | 79,11 ± 13,14 | 0,01 |
Bu sonuç, HMC'nin bütün aminoasit profilini genel olarak yükselttiği veya düşürdüğü anlamına gelmez. Değişim birkaç aminoasitle sınırlıdır.
Yağ asidi profili nasıl değişti?
Kas yağ asitleri önce yağ asidi metil esterlerine dönüştürülmüş ve Agilent 8890B-7000D GC-MS sistemiyle analiz edilmiştir. Kaynak birçok FAME türünün GS grubunda daha yüksek olduğunu bildirmektedir.
Örneğin methyl myristate 51,85 ± 8,06'dan 130,28 ± 18,77 µg/mg'a; methyl palmitate 884,90 ± 189,32'den 1621,25 ± 354,04 µg/mg'a; methyl oleate 1364,07 ± 104,43'ten 2757,68 ± 278,16 µg/mg'a; methyl alpha-linolenate 35,13 ± 5,39'dan 52,48 ± 8,51 µg/mg'a yükselmiştir.
Ancak Table 5'in “Total Fatty Acid” satırı özel dikkat gerektirir. Kaynak CT için 4035,70 ± 56,81 ve GS için 7039,91 ± 107,16 µg/mg değerlerini verirken p=0,78 raporlamaktadır. Kaynak bu görünür sayısal uyumsuzluğu açıklamadığı için toplam yağ asidi için bağımsız yeni bir istatistik üretilmemelidir.
Kas Metabolomiği Et Kalitesindeki Değişimi Açıklıyor mu?
Kas metabolomiği, HMC grubunda enerji ve lipid metabolizmasıyla ilişkili çok sayıda moleküler farklılık bulunduğunu göstermektedir; ancak metabolit zenginleşmesi ile et kalitesindeki değişiklikler aynı deneyde birlikte görülmüş olsa da metabolomik sonuçlar tek başına belirli bir yolun daha düşük kesme kuvvetine veya daha yüksek intramüsküler yağa doğrudan neden olduğunu kanıtlamaz.
Metabolomik örneklem
Metabolomik analiz için CT grubundan dört hayvan, her ağıldan bir hayvan; GS grubundan sekiz hayvan, her ağıldan iki hayvan seçilmiştir. Bu nedenle metabolomik veri seti dengeli değildir.
Yazarlar GS grubundan daha fazla örnek seçmelerini, GS grubundaki diferansiyel metabolitleri tespit etme gücünü artırmak istemeleriyle açıklamaktadır. Metabolomik çalışma keşifsel olarak tanımlanmış ve çoklu karşılaştırma hatasını sınırlamak için FDR düzeltmesi uygulanmıştır.
Analitik platform
100 mg Longissimus kas dokusu 400 µL metanol ile ekstrakte edilmiş, ultrasonik işlemin ve santrifüjün ardından süpernatant liyofilize edilmiştir. Analiz Thermo Vanquish UHPLC ve Thermo QE HF-X yüksek çözünürlüklü kütle spektrometresiyle gerçekleştirilmiştir.
Pozitif ve negatif iyonizasyon modları kullanılmış; full-MS tarama m/z 150–2000 aralığında ve 30.000 çözünürlükte yapılmıştır. Xcalibur 4.5 ve Compound Discoverer 3.3 yazılımları pik hizalama, metabolit kimliği ve veri işleme için kullanılmıştır.
Anlamlı diferansiyel metabolit nasıl tanımlandı?
Bir metabolitin anlamlı olarak sınıflandırılması için dört koşul birlikte aranmıştır:
- OPLS-DA modelinden VIP > 1,0,
- |log2FC| > 0,5,
- ham Student t-testi p değeri < 0,05,
- Benjamini–Hochberg düzeltmesinden sonra FDR q < 0,05.
Bu filtre sonunda 668 tespit edilmiş metabolitten 20'si anlamlı diferansiyel metabolit olarak tutulmuştur. Bunların 15'i GS grubunda yukarı, 5'i aşağı yönlü değişmiştir.
PCA ve OPLS-DA ne gösterdi?
PDF'nin 14. sayfasındaki üç boyutlu PCA grafiği CT ve GS kas örneklerinin metabolik dağılımlarının farklı bölgelerde toplandığını göstermektedir. PC1 toplam varyansın %28,6'sını, PC2 %23,9'unu ve PC3 %14,8'ini açıklamaktadır.
OPLS-DA modelinde R²Y=0,963 ve Q²=0,706 raporlanmıştır. Kaynak ayrıca 200 rastgele permütasyonla model doğrulaması yapmıştır. Bununla birlikte Figure 2 açıklamasındaki p-değeri anlatımı ile ana metindeki “overfitting yok” yorumu bütünüyle aynı açıklıkta değildir; bu nedenle OPLS-DA modeli yararlı bir grup ayrımı göstergesi olarak değerlendirilse de kendi başına biyolojik nedensellik kanıtı değildir.
Hangi metabolik yollar öne çıktı?
| Metabolik yol | Kaynakta tartışılan biyolojik bağlam |
|---|---|
| Valin, lösin ve izolösin biyosentezi | Dallı zincirli aminoasit metabolizması ve enerji/lipid süreçleri |
| Taurin ve hipotaurin metabolizması | Antioksidan ve lipid metabolizması bağlantıları |
| Pantotenat ve CoA biyosentezi | Yağ asidi aktivasyonu ve enerji metabolizması |
| Sitrat/TCA döngüsü | Oksidatif enerji metabolizması ve asetil-CoA üretimi |
Yazarların mekanistik modeli, daha fermente edilebilir HMC'nin enerji kullanımını ve kas metabolizmasını yağ senteziyle daha uyumlu bir yöne kaydırabileceğidir. Ancak bu zincirde rumen propiyonatı, asetil-CoA akışı veya de novo lipogenez hızları doğrudan izotop veya flux analiziyle ölçülmemiştir. Dolayısıyla yol zenginleşmeleri mekanistik olarak destekleyici fakat nihai nedensel doğrulama değildir.
Bağırsak Mikrobiyotası Sonuçları Ne Anlama Geliyor?
HMC beslemesi jejunal mikrobiyotadaki toplam zenginlik ve eşitlik ölçütlerini anlamlı biçimde değiştirmemiş, ancak bakteriyel topluluğun hangi taksonlardan oluştuğunu değiştirmiştir; yani alfa çeşitlilik korunurken beta çeşitlilik ve belirli bakteriyel soyların göreli bollukları farklılaşmıştır.
16S rRNA analizi nasıl yapıldı?
Kesim sırasında jejunum içeriği örnekleri alınmış ve bakteriyel 16S rRNA geninin V3–V4 bölgesi 338F ve 806R primerleriyle çoğaltılmıştır. Kütüphaneler Illumina TruSeq Nano DNA LT kitiyle hazırlanmış ve NovaSeq 6000 platformunda 2 × 250 bp paired-end dizilenmiştir.
Ham sekanslar QIIME 2 sürüm 2022.2 ile kalite filtresi, denoising ve sonraki topluluk analizlerinden geçirilmiştir.
Alfa çeşitliliği
| İndeks | CT | GS | p |
|---|---|---|---|
| ACE | 468,43 ± 79,33 | 414,67 ± 116,17 | 0,33 |
| Chao1 | 469,33 ± 80,59 | 415,86 ± 117,53 | 0,34 |
| Shannon | 6,72 ± 0,62 | 6,19 ± 0,82 | 0,19 |
| Simpson | 0,96 ± 0,03 | 0,93 ± 0,05 | 0,29 |
Hiçbir alfa çeşitlilik ölçütünde p<0,05 bulunmamıştır. Dolayısıyla HMC'nin bağırsak mikrobiyotasını “daha çeşitli” hale getirdiği söylenemez.
Beta çeşitliliği
PCoA analizinde Bray–Curtis uzaklığına göre CT ve GS örnekleri arasında anlamlı topluluk ayrımı görülmüş ve PERMANOVA p<0,01 bildirilmiştir. NMDS analizi de farklılaşmayı desteklemiştir.
Kaynak toplam 5121 OTU bildirmektedir. GS grubunda 2467, CT grubunda 2042 gruba özgü OTU ve iki grup arasında 612 ortak OTU vardır. Ortak bölüm toplamın yaklaşık %12'sidir; Jaccard indeksi 0,12 olarak raporlanmıştır.
Filum düzeyinde hangi değişiklikler görüldü?
GS grubunda Acidobacteriota ve Proteobacteria göreli bollukları CT'den anlamlı biçimde yüksek, Firmicutes_A ise anlamlı biçimde düşüktür.
Kaynak bu değişimleri yağ sentezi ve bağırsak sağlığıyla ilişkilendiren literatür üzerinden tartışmaktadır. Ancak mevcut deney mikrobiyota transplantasyonu, antibiyotik müdahalesi veya kontrollü kolonizasyon deneyi içermediği için bu bakterilerin et yağlanmasındaki nedensel rolleri belirlenmemiştir.
Cins düzeyindeki değişiklikler
GS grubunda Comamonas_F_589250 ve Achromobacter daha yüksek; Ureaplasma, Anaerobutyricum ve Bifidobacterium_388775 daha düşük bolluk göstermiştir.
Yazarlar bazı bu taksonların potansiyel sağlık etkilerini literatürle ilişkilendirmektedir. Bu çalışma doğrudan enfeksiyon sıklığı, bağırsak bariyer fonksiyonu veya klinik bağırsak sağlığı sonucu ölçmediği için “HMC bağırsak sağlığını iyileştirdi” sonucu yalnızca mikrobiyota takson değişimlerinden kesin olarak çıkarılamaz.
LEfSe ne gösterdi?
LEfSe analizi LDA skoru >2 eşiğiyle gruplar arasında farklı bolluk gösteren bakteriyel soyları belirlemiştir. GS grubunda Proteobacteria, Gammaproteobacteria, Burkholderiaceae_A592522, Burkholderiales_592522 ve Comamonas_589250 daha yüksek bolluk göstermiştir. Firmicutes_A, Clostridia_258483, Lachnospirales ve Lachnospiraceae ise GS grubunda daha düşük bildirilmiştir.
Metin “10 bacterial taxa” ifadesini kullanmasına rağmen isimlendirilmiş GS-artmış beş ve GS-azalmış dört takson toplam dokuz etmektedir. Kaynak bu sayısal ayrımı metin içinde açıklamamaktadır.
Mikrobiyota ile yağ asitleri arasında nasıl bir ilişki bulundu?
Spearman korelasyonları FDR düzeltmesiyle değerlendirilmiştir. Firmicutes_A çok sayıda kas yağ asidiyle negatif; Proteobacteria ise birden fazla yağ asidiyle pozitif korelasyon göstermiştir.
Örneğin Proteobacteria methyl docosatetraenoate, methyl vaccenate ve methyl palmitoleate ile q<0,01 düzeyinde pozitif ilişki göstermiştir. Bacteroidota methyl linoleate ve methyl arachidonate ile; Chloroflexota methyl myristoleate, methyl palmitoleate, methyl oleate ve methyl 11-14 eicosadienoate ile pozitif ilişkilidir.
Buradaki “ilişki” sözcüğü önemlidir. Korelasyon ısı haritası, bir bakteri grubunun ilgili yağ asidini üretip kas dokusuna taşıdığını veya yağ depolanmasını doğrudan yönettiğini göstermez. Diyet her iki değişkeni birlikte etkiliyor olabilir veya ilişkide başka metabolik aracılar bulunabilir.
Çalışmanın Yöntemi ve Bulguları
Hayvanlar ve deneysel düzen
Deneme Ekim 2024 ile Mart 2025 arasında Çin'in Xinjiang bölgesinde Hutubi County, Wigington Town'daki bir koyun çiftliğinde yürütülmüştür.
Otuz iki sağlıklı Kazak koçu, yaklaşık altı aylıkken ve 35,4 ± 1,46 kg başlangıç ağırlığıyla seçilmiştir. Hayvanlar rastgele CT ve GS gruplarına atanmıştır. Her grupta 16 hayvan, dört ağıl ve ağıl başına dört hayvan bulunmuştur.
Hayvanlar 07:00 ve 19:00'da günde iki kez beslenmiş, suya serbest erişim sağlanmıştır. Deney ortamı −10 ile 15 °C arasında değişmiştir.
Neden n=32 hayvan olmasına rağmen istatistiksel n=4?
Bir ağıldaki dört koyun aynı yemi, aynı barınak koşullarını ve aynı çevreyi paylaştığından birbirinden tamamen bağımsız deneysel birimler olarak kabul edilmemiştir. Bu nedenle dört hayvanın ölçümleri ağıl ortalamasına çevrilmiş ve her tedavi için dört ağıl ortalaması istatistiksel tekrar olarak kullanılmıştır.
Bu tasarım pseudoreplication riskini azaltır; ancak aynı zamanda performans ve et kalite karşılaştırmalarında etkin örneklem büyüklüğünün grup başına dört olduğunu gösterir.
Güç analizi
A priori güç analizi birincil sonuç olan kas kesme kuvvetine göre yapılmıştır. Ön verilerde beklenen grup farkı 22,4 N/cm², pooled standart sapma 5,3 N/cm² ve Cohen's d yaklaşık 4,2 olarak hesaplanmıştır.
İki taraflı bağımsız örneklem t-testi, α=0,05 ve %80 güç altında grup başına iki ağıl gerektiği hesaplanmış; çalışma dört ağıl/grup kullanmış ve birincil sonuç için güç >0,95 olarak raporlanmıştır.
Kesim ve örnek toplama
120. günde koçlar sabah yemlemesinden önce tartılmıştır. Kesim öncesinde 24 saat yem kesilmiş, su serbest bırakılmıştır. Nakliye bir saat içinde tutulmuş, kaymaz taban ve havalandırma sağlanmış, kesim öncesi sağlık kontrolü yapılmıştır.
Karkaslar kanatma sonrası 4 °C'de 24 saat soğutulmuştur. Longissimus lumborum kasından 300 g örnek aminoasit, yağ asidi ve metabolomik analizler için alınarak sıvı azotta dondurulmuş; ayrıca 50 g kas et kalite analizleri için ayrılmıştır.
Kesim performansı formülleri
Randıman (%) = (karkas ağırlığı / kesim öncesi canlı ağırlık) × 100
Bu oran, canlı hayvan kütlesinin ne kadarının karkas olarak kaldığını gösterir.
Net et oranı (%) = (net et ağırlığı / kesim öncesi canlı ağırlık) × 100
Net et ağırlığı, kemiklerden ayrıldıktan sonra elde edilen toplam kemiksiz et miktarıdır.
Aminoasit analitiği
Yirmi standart protein aminoasidine hidroksiprolin eklenerek toplam 21 analit incelenmiştir. SCIEX QTRAP 6500+ kütle spektrometresi scheduled multiple reaction monitoring modunda kullanılmıştır. Kolon sıcaklığı 40 °C'dir ve iç standart tabanlı kalibrasyon yapılmıştır.
Yağ asidi analitiği
Toplam 51 yağ asidi metil ester standardı hazırlanmıştır. Kas lipidleri diklorometan/metanol ile ekstrakte edilmiş, türevlendirmeden sonra Agilent 8890B-7000D GC-MS ve 100 m × 0,25 mm × 0,2 µm CP-Sil 88 kapiler kolonla analiz edilmiştir.
Helyum akışı 1,0 mL/dak, enjeksiyon sıcaklığı 260 °C ve split oranı 50:1'dir. Fırın 80 °C'den başlayarak 8 °C/dak ile 180 °C'ye, 4 °C/dak ile 220 °C'ye ve 2 °C/dak ile 230 °C'ye çıkarılmış; son sıcaklıkta 13,5 dakika tutulmuştur.
Kas histolojisi
Longissimus lumborum kasından yaklaşık 1 cm³ örnekler %10 nötral tamponlu formalinde 48 saat fikse edilmiş, parafine gömülmüş ve kas liflerine dik 5 µm kesitler alınmıştır. Hematoksilen-eozin boyaması sonrasında dijital whole-slide tarama yapılmıştır.
Şekil 1'deki H&E görüntüleri GS grubunda daha fazla adiposit birikimini görsel olarak düşündürmektedir. Ancak görüntü analiziyle nicel adiposit alanı veya hücre yoğunluğu raporlanmadığı için bu bulgu nitel destek olarak değerlendirilmelidir.
Metabolomik ve FDR kontrolü
Metabolomik analizlerde PCA ve OPLS-DA grup yapısını incelemek için kullanılmıştır. Diferansiyel metabolit taramasında VIP, fold-change, ham p ve FDR q kriterlerinin tamamı uygulanmıştır. Bu çok aşamalı filtre, yalnız ham p<0,05 kullanmaya göre yanlış pozitifleri azaltmayı amaçlar.
Mikrobiyota istatistiği
Mikrobiyota için grup başına sekiz hayvan, her ağıldan iki hayvan kullanılmıştır. Bray–Curtis mesafeli PCoA, NMDS ve 999 permütasyonlu PERMANOVA uygulanmıştır. Diferansiyel taksonlar LEfSe ile LDA >2 ve p<0,05 kriteri kullanılarak araştırılmıştır.
Mikrobiyota–yağ asidi korelasyonu
Filum düzeyindeki bakteriyel göreli bolluklarla tek tek kas yağ asitleri arasındaki ilişkiler Spearman sıra korelasyonu ile hesaplanmıştır. Çok sayıda korelasyon testinden kaynaklanan Tip I hata riskini azaltmak için Benjamini–Hochberg FDR düzeltmesi kullanılmış ve q<0,05 anlamlı kabul edilmiştir.
Çalışmanın desteklediği sonuçlar
- %12 HMC ile %12 normal kırılmış mısır içeren GS diyeti, bu deneyde sırt yağı kalınlığını artırmıştır.
- HMC grubunda Longissimus lumborum kesme kuvveti belirgin biçimde düşmüştür.
- Intramüsküler yağ oranı HMC grubunda anlamlı biçimde yükselmiştir.
- Bir dizi kas yağ asidi/FAME içeriği GS grubunda daha yüksektir.
- Kas metabolomik profilleri CT ve GS arasında farklılık göstermiştir.
- 668 tespit edilen metabolitten 20'si sıkı filtrelerden sonra anlamlı diferansiyel olarak sınıflandırılmıştır.
- Jejunal mikrobiyota alfa çeşitliliği değişmemiş, beta çeşitlilik/topluluk kompozisyonu değişmiştir.
- Belirli mikrobiyal filumların göreli bolluğu belirli kas yağ asitleriyle korelasyon göstermiştir.
Çalışmanın desteklemediği sonuçlar
- HMC'nin bütün karkas performansını artırdığı gösterilmemiştir.
- HMC'nin bütün et kalite özelliklerini iyileştirdiği gösterilmemiştir; pH, renk ve damlama kaybı anlamlı değişmemiştir.
- Proteobacteria artışının doğrudan yağ asidi sentezine neden olduğu kanıtlanmamıştır.
- Firmicutes_A azalmasının kas yağlanmasını doğrudan oluşturduğu gösterilmemiştir.
- Metabolik yol zenginleşmesi doğrudan metabolik akış ölçümü değildir.
- H&E görüntülerindeki adiposit görünümü nicel histomorfometri değildir.
- Bu sonuçlardan HMC'nin her ırkta ve her besleme sisteminde aynı etkiyi göstereceği çıkarılamaz.
- Çalışma gerçek ekonomik yem maliyetini ölçmediği için HMC'nin bu koşullarda kesin olarak daha ucuz üretim sağladığı gösterilmemiştir.
Temel sınırlılıklar
Toplam hayvan sayısı 32 olmakla birlikte ana performans ve et kalite testleri grup başına dört bağımsız ağıl ortalamasına dayanır. Birincil kesme kuvveti sonucu için güç hesabı yüksek görünse de daha küçük etki büyüklüklerine sahip ikincil sonuçlar için n=4 sınırlayıcı olabilir.
Metabolomik örneklem dengesizdir: CT n=4, GS n=8. Bu analiz keşifsel niteliktedir ve ayrı bir bağımsız doğrulama kohortu yoktur.
Mikrobiyota n=8/grup düzeyinde incelenmiştir ve sonuçlar tek bir bağırsak bölgesinden, jejunum içeriğinden elde edilmiştir. “Bağırsak mikrobiyotası” ifadesi bütün gastrointestinal sistemin aynı biçimde değiştiği anlamına gelmemelidir.
Mikrobiyota ile yağ asidi profili arasındaki ilişkiler korelasyoneldir. Mikrobiyota transferi, antibiyotik müdahalesi veya metabolik tracer deneyi yapılmamıştır.
Deneme 120 gün sürmüş ve sonbahar/kış koşullarında gerçekleştirilmiştir. Ortam sıcaklığının −10 ile 15 °C arasında değişmesi enerji kullanımını etkileyebilecek çevresel bir bağlamdır.
Kaynakta bazı iç tutarsızlıklar bulunmaktadır: tartışmada 668 metabolit “differential” olarak adlandırılırken sonuçlarda yalnız 20'si anlamlı diferansiyeldir; toplam yağ asidi satırındaki ortalama/SD ile p=0,78 görünür biçimde uyumsuzdur; LEfSe metni 10 takson derken isimlendirilmiş artmış ve azalmış gruplar toplam dokuz takson etmektedir.
Genel bilimsel anlam
Bu çalışma, yüksek nemli mısırın Kazak koçlarında yalnız “daha fazla büyüme” üzerinden değerlendirilmemesi gerektiğini göstermektedir. En belirgin sonuç, karkas miktarındaki büyük bir artış değil; kasın mekanik yumuşaklığı, intramüsküler yağ depolanması, belirli yağ asitleri, metabolik profil ve mikrobiyal topluluk yapısındaki eş zamanlı değişimlerdir.
Çalışmanın çok-omikli yapısı, yem işleme biçimi ile nihai et kalitesi arasındaki biyolojik zinciri araştırmak için önemli bir çerçeve sağlar. Bununla birlikte metabolomik ve mikrobiyota katmanlarının çoğu ilişki düzeyinde olduğundan, “HMC → belirli bakteri → belirli metabolik yol → artmış IMF → daha yumuşak et” zincirinin tamamı deneysel olarak nedensel biçimde doğrulanmış değildir.
Kaynak ve Yöntem Notu
Özgün başlık: Effects of Feeding High-Moisture Corn on Meat Performance, Meat Quality, Muscle Metabolism, and Gut Microbiota in Kazakh Rams
Yazarlar: Buweiaizhaer Maimaitimin; Linhai Song; Kadeliya Abudureyimu; Subinuer Abuduli; Tong Li; Yuxin Zhou; Liang Yang; Wei Shao; Zhijun Zhang; Wanping Ren.
Sorumlu yazar: Wanping Ren.
Kurum 1: College of Animal Science, Xinjiang Agricultural University, Urumqi, China.
Kurum 2: Institute of Feed, Xinjiang Academy of Animal Husbandry Sciences, Urumqi, China.
Dergi: Animals.
Yayınevi: MDPI.
Bibliyografik kayıt: Animals 2026, 16(9), 1387.
DOI: 10.3390/ani16091387.
Gönderim: 28 Mart 2026. Revizyon: 26 Nisan 2026. Kabul: 28 Nisan 2026. Yayın: 1 Mayıs 2026.
Kaynak türü: Hakemli kontrollü hayvan besleme çalışması; et kalite analizi, kas metabolomikleri ve 16S rRNA mikrobiyota analizi içermektedir.
Lisans: Creative Commons Attribution (CC BY).
Deneme: 32 Kazak koçu; CT n=16 ve GS n=16; dört ağıl/grup; dört hayvan/ağıl; 7 günlük ön dönem + 120 günlük besleme.
Temel diyet müdahalesi: CT %24 normal kırılmış mısır; GS %12 normal kırılmış mısır + %12 HMC, kuru madde temelinde.
Deneysel birim: Ana performans, et kalite ve kompozisyon istatistiklerinde ağıl; n=4 bağımsız tekrar/grup.
Metabolomik alt örneklem: CT n=4, GS n=8.
Mikrobiyota alt örneklem: CT n=8, GS n=8.
Etik onay: Xinjiang Agricultural University Animal Welfare and Ethics Committee; Approval No. 20240806.
Hayvan sahibi onamı: Yazılı bilgilendirilmiş onam alınmıştır.
Finansman: Xinjiang Tianchi Talent Introduction Program (2225ZZQR-CXM); Xinjiang Dairy Industry Technology System (XJARS-11-07); Technical Service Project for Wenquan Cattle Farm (2523HXKT1); Animal Husbandry Production Development Project of Xinjiang Uygur Autonomous Region (2225XMYSC).
Veri erişilebilirliği: Veriler sorumlu yazardan talep üzerine edinilebilir.
Çıkar çatışması: Yazarlar çıkar çatışması bildirmemiştir; fon sağlayıcıların araştırma tasarımı, veri analizi, yorum, yazım veya yayımlama kararında rolü olmadığı belirtilmiştir.
Yazar katkıları: Kavramsallaştırma W.R.; yöntem L.S., K.A., S.A., Y.Z., Z.Z. ve W.R.; formal analiz B.M. ve W.S.; araştırma B.M., L.S., K.A., T.L. ve L.Y.; veri kürasyonu L.Y.; görselleştirme B.M.; ilk taslak B.M.; gözden geçirme/düzenleme L.S., S.A., T.L., L.Y., W.S., Z.Z. ve W.R.; denetim L.S. ve W.R.; proje yönetimi W.R.; finansman edinimi W.S., L.Y. ve W.R.
İlişkili yayın uyarısı: Aynı araştırma grubunun Animals 2026, 16(7), 1030 makalesi aynı büyüklükte 32 Kazak koçu, aynı CT/GS HMC müdahalesi ve 120 günlük tasarımı raporlamaktadır. Mevcut çalışma farklı biyolojik sonlanımlara odaklanmaktadır ancak deney kohortlarının bağımsız olduğu varsayılmamalıdır.
Kaynak-içi veri uyarısı 1: Results bölümü 668 tespit edilen metabolit ve 20 anlamlı diferansiyel metabolit bildirirken Discussion 4.4 içinde “668 differential metabolites” ifadesi kullanılmaktadır. Ana veri olarak 668 toplam tespit / 20 anlamlı diferansiyel ayrımı korunmuştur.
Kaynak-içi veri uyarısı 2: Table 5'te toplam yağ asidi ortalamaları CT 4035,70 ± 56,81 ve GS 7039,91 ± 107,16 µg/mg iken p=0,78 raporlanmıştır. Kaynak açıklama vermediğinden değer düzeltilmemiştir.
Temel yorum sınırı: Kas metabolitleri, bağırsak mikrobiyotası ve yağ asitleri arasındaki ilişkiler biyolojik mekanizma için aday bağlantılar sağlamaktadır; nedensel aracılık doğrudan kanıtlanmamıştır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir