

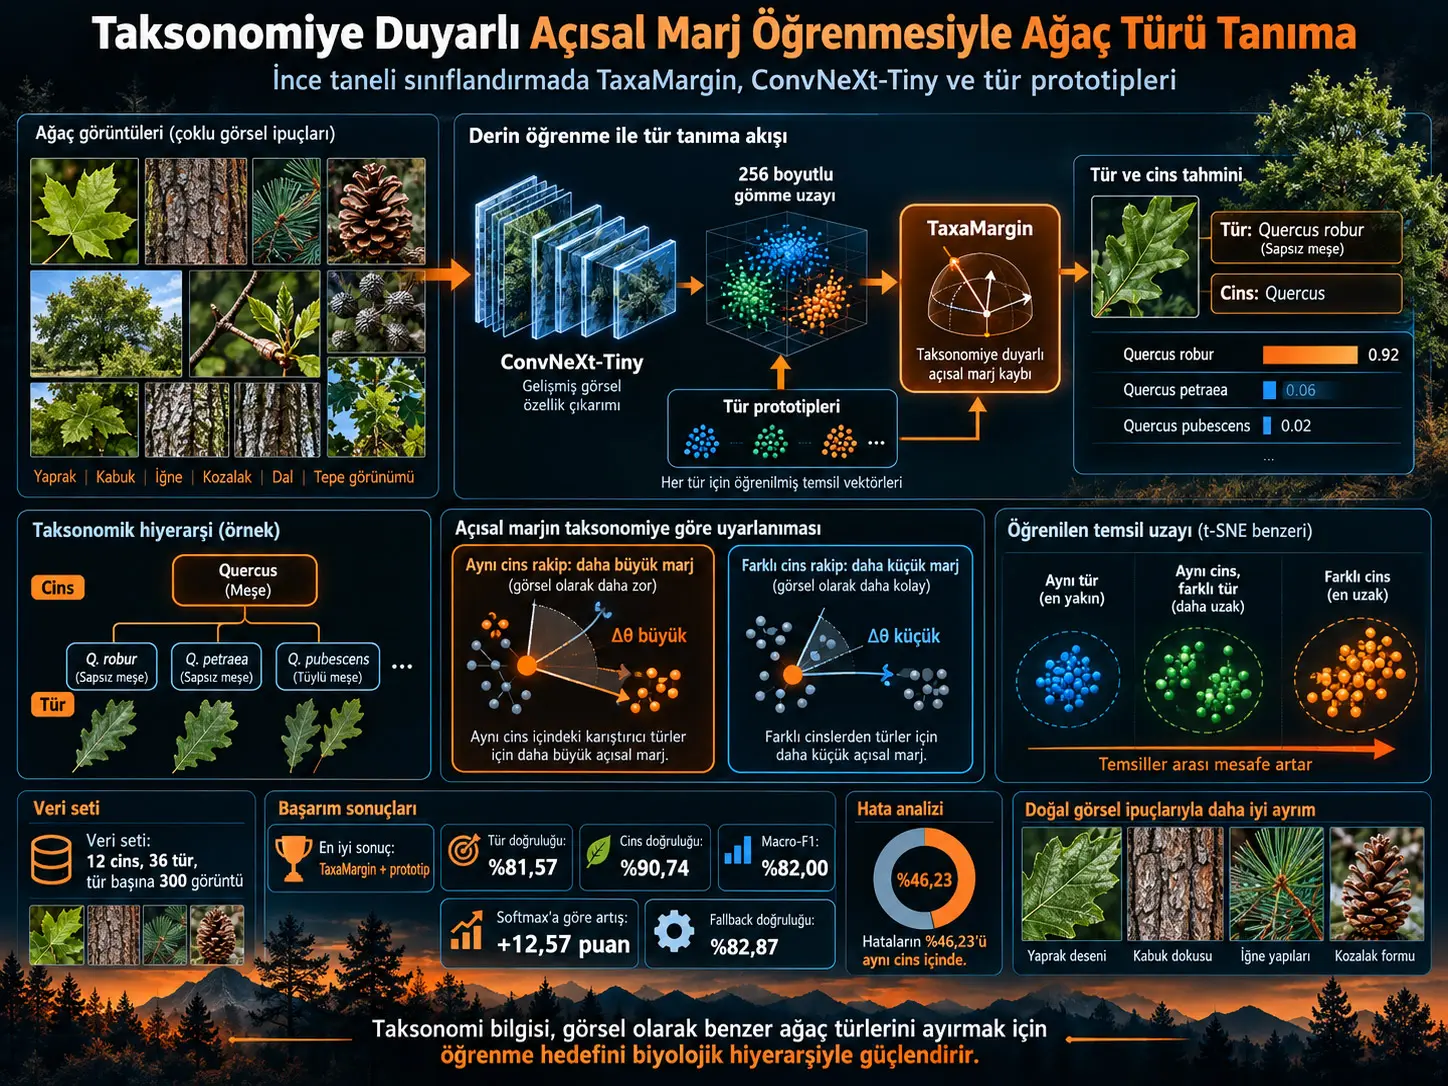
TaxaMargin, görsel olarak birbirine benzeyen ağaç türlerini ayırırken biyolojik taksonomiyi doğrudan öğrenme hedefinin içine yerleştiren, ArcFace tarzı açısal marj sınıflandırmasını taksonomik ilişkiye göre uyarlayan bir derin öğrenme sınıflandırma yaklaşımıdır. Çalışmada GBIF ve iNaturalist kaynaklarından 12 cinse ait 36 ağaç türü için dengeli RGB görüntü veri seti oluşturulmuş; ImageNet ile önceden eğitilmiş ConvNeXt-Tiny omurgası 256 boyutlu L2-normalize edilmiş temsil vektörleri üretmek üzere ince ayarlanmıştır. TaxaMargin, görüntünün en güçlü yanlış rakibi doğru türle aynı cinse ait olduğunda daha büyük açısal marj uygulamış; tür düzeyindeki hareketli ortalama prototipleri ise temsil uzayını ek olarak düzenlemiştir. Tam TaxaMargin + prototip sistemi %81,57 tür doğruluğu, %90,74 cins doğruluğu ve %82,00 macro-F1 elde etmiş; standart softmax yapılandırmasına göre bu metrikleri sırasıyla 12,57, 11,74 ve 15,20 yüzde puanı artırmıştır.
Çalışmanın temel fikri, biyolojik sınıflandırmadaki bütün yanlışların aynı anlamı taşımadığıdır. Bir meşe türünün başka bir meşe türüyle karıştırılması, bütünüyle farklı bir cinsten türle karıştırılmasına göre taksonomik olarak daha yakın bir hatadır. TaxaMargin bu hiyerarşik bilgiyi eğitim sırasında kullanarak özellikle aynı cinse ait ve görsel olarak birbirine benzeyen türlerin temsil uzayında daha güçlü ayrılmasını hedefler.
Sonuçlar, yaklaşımın incelenen veri setinde hem tür hem cins düzeyindeki sınıflandırmayı geliştirdiğini göstermektedir. Bununla birlikte çalışma tek bir dengeli veri setinin eğitim/doğrulama/test bölünmesine dayanmaktadır; sonuçlar bütün ağaç türleri, bütün coğrafyalar veya gerçek saha uygulamalarında aynı performansın garanti edildiği anlamına gelmez. Ayrıca model güveni her zaman doğruluğa karşılık gelmemektedir ve kaynakta yüksek güvenle yapılmış yanlış sınıflandırmalar da raporlanmıştır.
Neden ağaç türlerini görüntüden ayırmak zor?
Ağaç türü tanıma; biyoçeşitlilik izleme, ekolojik araştırma, orman yönetimi, koruma planlaması ve kent ağaçlarının değerlendirilmesi açısından önemlidir. Ancak arazide elde edilen tek bir RGB görüntüsü, botanik teşhis için gerekli bütün yapıları aynı anda göstermeyebilir. Görüntü yalnız bir yaprağı, gövde kabuğunu, dalı, çiçeği, meyveyi, kozalağı veya taç görünümünü içerebilir.
Aynı tür; yaş, mevsim, büyüme evresi, sağlık durumu, ışık, kamera açısı ve çevresel koşullara bağlı olarak oldukça farklı görünebilir. Buna karşılık aynı cinse ait yakın türler yaprak biçimi, kabuk dokusu veya dallanma yapısı açısından birbirine çok benzeyebilir. Böylece problemde iki güçlük aynı anda ortaya çıkar: tür içi görsel değişkenlik yüksek olabilirken türler arası fark çok küçük olabilir.
Taksonomiye Duyarlı Öğrenme Neden Kullanılıyor?
Taksonomiye duyarlı öğrenme, türleri birbirinden tamamen bağımsız sınıflar olarak görmek yerine tür–cins ilişkisini öğrenme problemine dahil eder; bu çalışmada aynı cinsten zor rakip türler için daha büyük açısal marj uygulanarak modelin en ince biyolojik ayrımlara daha fazla ayırma baskısı yöneltmesi sağlanmıştır.
Veri setinin oluşturulması
Görüntüler başlıca GBIF ve iNaturalist platformlarından toplanmıştır. Bozuk dosyalar, yinelenen görüntüler ve yeterli görsel bilgi taşımayan örnekler temizlenmiştir. Ardından her tür için sabit olarak 300 görüntü seçilmiş ve sınıf sayılarının dengeli olması sağlanmıştır.
Son veri seti 12 cins × her cinste 3 tür = 36 tür yapısındadır.
| Cins | Çalışmaya dahil edilen türler |
|---|---|
| Abies | Abies alba, Abies concolor, Abies nordmanniana |
| Acer | Acer campestre, Acer platanoides, Acer pseudoplatanus |
| Betula | Betula nana, Betula pendula, Betula pubescens |
| Fraxinus | Fraxinus angustifolia, Fraxinus excelsior, Fraxinus ornus |
| Juniperus | Juniperus communis, Juniperus oxycedrus, Juniperus sabina |
| Picea | Picea abies, Picea pungens, Picea sitchensis |
| Pinus | Pinus mugo, Pinus nigra, Pinus sylvestris |
| Populus | Populus alba, Populus nigra, Populus tremula |
| Quercus | Quercus cerris, Quercus petraea, Quercus robur |
| Salix | Salix alba, Salix caprea, Salix fragilis |
| Tilia | Tilia cordata, Tilia platyphyllos, Tilia tomentosa |
| Ulmus | Ulmus glabra, Ulmus laevis, Ulmus minor |
Her görüntü hem tür etiketi hem cins etiketi taşımaktadır. Ana hedef tür sınıflandırmasıdır; cins etiketi ise taksonomik marjın kurulması ve cins düzeyindeki performansın ölçülmesi için kullanılır. Veri rastgele olarak %70 eğitim, %20 doğrulama ve %10 test alt kümelerine ayrılmıştır.
Görüntü ön işleme ve veri artırma
Bütün görüntüler modele verilmeden önce 320 × 320 piksel boyutuna getirilmiştir. Eğitim aşamasında modelin saha görüntülerindeki değişkenliğe daha dayanıklı olması için rastgele veri artırma işlemleri uygulanmıştır.
| İşlem | Kaynakta verilen ayar |
|---|---|
| Random resized crop | Ölçek 0,65–1,0 |
| Yatay çevirme | Olasılık 0,5 |
| Dikey çevirme | Olasılık 0,15 |
| Döndürme | ±20 dereceye kadar |
| Renk değişimi | Parlaklık, kontrast, doygunluk ve ton değişimi |
| Gri tonlama | Düşük olasılıkla |
| Random erasing | Düşük olasılıkla |
| Normalizasyon | ImageNet ön-eğitim değerleriyle |
Doğrulama ve test aşamasında rastgele veri artırma kullanılmamış, deterministik ön işleme uygulanmıştır. Böylece değerlendirme sonucunun rastgele görüntü dönüşümlerinden etkilenmesi önlenmiştir.
ConvNeXt-Tiny özellik çıkarıcı
Görüntü özelliklerinin çıkarılması için ImageNet ile önceden eğitilmiş ConvNeXt-Tiny kullanılmıştır. Model, timm PyTorch kütüphanesi üzerinden uygulanmış ve ağaç türü veri seti üzerinde yeniden eğitilmiştir.
ConvNeXt-Tiny'nin özgün sınıflandırma katmanı kaldırılmış ve yerine tam bağlantılı katmanlar, GELU aktivasyonu ve dropout içeren yeni bir projeksiyon başlığı yerleştirilmiştir. Bu başlık her görüntüyü 256 boyutlu bir özellik vektörüne dönüştürmektedir.
Özellik vektörü daha sonra L2 normuyla normalize edilerek birim hiperküre üzerinde temsil edilir.
Denklem (1):
\[ z_i=\frac{u_i}{\|u_i\|_2}, \qquad \bar{w}_k=\frac{w_k}{\|w_k\|_2}, \qquad c_{ik}=z_i^{\top}\bar{w}_k=\cos(\theta_{ik}) \]
Burada \(u_i\), görüntü \(i\) için 256 boyutlu ham özellik vektörünü; \(z_i\), normalize edilmiş görüntü temsilini; \(w_k\), tür \(k\) için sınıflandırıcı ağırlığını; \(c_{ik}\) ise görüntü ile sınıf temsilinin kosinüs benzerliğini gösterir. Sınıflandırma logitlerinin ölçek katsayısı kaynakta \(s=30,0\) olarak verilmiştir.
TaxaMargin Nedir ve ArcFace'ten Nasıl Ayrılır?
TaxaMargin, ArcFace'in normalize edilmiş temsil uzayındaki açısal marj ilkesini koruyan ancak marjı sabit tutmak yerine en güçlü yanlış rakibin doğru türle aynı cinste olup olmadığına göre değiştiren bir sınıflandırma başlığıdır; aynı cinsten rakip için 0,30, farklı cinsten rakip için 0,18 marj kullanılır.
En zor yanlış sınıfın bulunması
Her eğitim örneğinde önce doğru sınıf dışındaki türler arasında görüntü temsiline en çok benzeyen rakip aranır. Kaynak metni bunu “en yüksek kosinüs benzerliğine sahip yanlış tür” olarak tanımlar.
Kaynak Denklem (2) notu: PDF'deki matematiksel dizgide seçim operatörü eksik görünmektedir. Bu nedenle burada eksik sembol kaynak adına tamamlanmamaktadır. Kullanılan algoritmik tanım, doğru tür dışındaki en yüksek kosinüs benzerliğine sahip türün en zor negatif olarak seçilmesidir.
Bu seçim eğitimde gradyan taşımayan bir işlem olarak uygulanmıştır.
Taksonomik marjın seçilmesi
Denklem (3):
\[ m_i= \begin{cases} m_{\mathrm{intra}}, & g(h_i)=g(y_i)\\ m_{\mathrm{inter}}, & g(h_i)\neq g(y_i) \end{cases} \]
Burada \(g(\cdot)\) türün ait olduğu cinsi; \(h_i\) en zor yanlış rakibi; \(y_i\) doğru türü gösterir.
Kaynakta kullanılan değerler:
\[ m_{\mathrm{intra}}=0,30, \qquad m_{\mathrm{inter}}=0,18 \]
Yani modelin en güçlü rakibi doğru türle aynı cinse aitse daha büyük marj uygulanır. Amaç, örneğin iki yakın Salix veya iki yakın Ulmus türü arasında daha güçlü ayrım öğrenmektir.
Marjın ilk üç epoch boyunca kademeli açılması
Denklem (4):
\[ m_i^{(e)}=\alpha_e m_i, \qquad \alpha_e=\min\left(1,\frac{e}{E_m}\right), \qquad E_m=3 \]
İlk epoch'ta hedef marjın üçte biri, ikinci epoch'ta üçte ikisi ve üçüncü epoch'tan itibaren tamamı kullanılır. Bu warm-up, eğitimin ilk aşamalarında optimizasyonun daha kararlı ilerlemesi için uygulanmıştır.
Doğru sınıfın açısal dönüşümü
Denklem (5):
\[ \phi_i= \cos\left(\theta_{iy_i}+m_i^{(e)}\right) = c_{iy_i}\cos\left(m_i^{(e)}\right) - \sqrt{1-c_{iy_i}^{2}} \sin\left(m_i^{(e)}\right) \]
Bu işlem yalnız doğru sınıfa ait kosinüs değerini değiştirir. Doğru sınıfın karar bölgesine daha zor ulaşılması sağlanarak temsilin kendi sınıf merkezine daha güçlü hizalanması ve rakiplerden daha belirgin ayrılması teşvik edilir.
Denklem (6):
\[ \ell_{ik}^{TM}= \begin{cases} s\phi_i, & k=y_i\\ s c_{ik}, & k\neq y_i \end{cases}, \qquad s=30,0 \]
TaxaMargin dönüşümü yalnız eğitim sırasında uygulanır; çünkü marjın hesaplanması gerçek tür etiketini gerektirir. Doğrulama ve test sırasında normalleştirilmiş kosinüs logitleri kullanılır. Dolayısıyla TaxaMargin'in görevi çıkarım zamanında yeni bir karar kuralı uygulamak değil, eğitim sırasında temsil uzayının geometrisini şekillendirmektir.
Tür prototipi öğrenmesi
Çalışma her tür için ayrıca bir prototip vektörü tutar. Prototip, ilgili türün öğrenilmiş temsil uzayındaki hareketli referans merkezidir. Amaç aynı türün farklı yaprak, kabuk, dal veya çevresel görünüşlerinden gelen temsillerini daha tutarlı bir sınıf yapısı etrafında organize etmektir.
Prototip güncellemesinde üstel hareketli ortalama momentumu:
\[ \mu=0,90 \]
olarak kullanılmıştır.
Güven kapılı prototip güncellemesi
Her görüntünün prototipi güncellemesine izin verilmez. Optimizasyon adımından sonra açısal marj uygulanmadan ikinci bir ileri geçiş yapılır ve doğru türe atanmış olasılık hesaplanır.
Denklem (7):
\[ q_i= \left[ \operatorname{softmax} \left(\ell_i^{F,0}\right) \right]_{y_i} \]
Güncelleme yalnız:
\[ q_i\ge\tau_p, \qquad \tau_p=0,35 \]
koşulunda yapılır. Buradaki \(q_i\), modelin herhangi bir sınıfa verdiği maksimum olasılık değil, özellikle gerçek türe verdiği olasılıktır.
Denklem (8):
\[ p_c^{new}= \begin{cases} z_i, & \text{prototip henüz başlatılmamışsa}\\[4pt] \dfrac{\mu p_c^{old}+(1-\mu)z_i} {\|\mu p_c^{old}+(1-\mu)z_i\|_2}, & \text{diğer durumda} \end{cases} \]
\[ \mu=0,90 \]
Normalizasyon sayesinde prototip de görüntü temsilleri ve sınıflandırıcı ağırlıklarıyla aynı birim hiperküre üzerinde kalır.
Prototip benzerlik logitleri
Denklem (9):
\[ \ell_{ik}^{P} = s z_i^{\top}\bar{p}_k, \qquad \bar{p}_k= \frac{p_k}{\|p_k\|_2}, \qquad s=30,0 \]
Prototip dalı böylece görüntünün her tür prototipine olan açısal/kosinüs benzerliğinden ikinci bir tahmin sinyali üretir.
Doğrulama, test ve prototip güven hesabında sınıflandırıcı ve prototip logitleri birleştirilir:
Denklem (10):
\[ \ell_{ik}^{F} = \ell_{ik}^{C} + \lambda_p\ell_{ik}^{P}, \qquad \lambda_p=0,10 \]
Burada \(\ell_{ik}^{C}=s c_{ik}\), marjsız kosinüs sınıflandırıcı logitidir.
Prototip kaybının warm-up işlemi
Denklem (11):
\[ \beta_e= \min\left(1,\frac{e}{E_p}\right), \qquad E_p=3 \]
Denklem (12):
\[ \mathcal{L} = \mathcal{L}_{TM} + \beta_e\lambda_p\mathcal{L}_{P}, \qquad \lambda_p=0,10 \]
\(\mathcal{L}_{TM}\), TaxaMargin logitleri üzerinden hesaplanan çapraz entropi kaybını; \(\mathcal{L}_{P}\) ise tür prototipi logitlerinden hesaplanan yardımcı çapraz entropi kaybını ifade eder.
Bu iki mekanizma farklı görevler üstlenir: TaxaMargin farklı türler, özellikle de aynı cinsten zor rakipler arasındaki sınıflar arası ayrımı büyütürken; prototip öğrenmesi aynı türün farklı görüntülerinin sınıf içi düzenini ve kompaktlığını destekler.
Eğitim stratejisi
| Ayar | Kaynak değeri |
|---|---|
| Optimizer | AdamW |
| Weight decay | 0,05 |
| ConvNeXt-Tiny öğrenme oranı | 1,5 × 10⁻⁴ |
| Projeksiyon + sınıflandırıcı öğrenme oranı | 1,5 × 10⁻³ |
| Öğrenme oranı çizelgesi | Cosine annealing |
| Maksimum epoch | 30 |
| Early stopping | Doğrulama doğruluğu 7 epoch gelişmezse |
| Gradient clipping | Maksimum norm 1,0 |
| Zor sınıf oversampling faktörü | 1,8 |
| Prototip momentumu | 0,90 |
| Prototip güven eşiği | 0,35 |
| Angular logit ölçeği | 30,0 |
| TaxaMargin intra-genus marjı | 0,30 |
| TaxaMargin inter-genus marjı | 0,18 |
Eğitim mini-batch'lerinde türlerin düzenli temsilini artırmak için weighted random sampler kullanılmıştır. Ön incelemelerde zor olduğu belirlenen türlere yalnız eğitim setinde 1,8 faktörlü hedefli oversampling uygulanmıştır. Doğrulama ve test setleri bu örnekleme stratejisinden etkilenmemiştir.
Değerlendirme protokolü
Performans yalnız genel doğrulukla ölçülmemiştir. Tür doğruluğu, cins doğruluğu, macro precision, macro recall, macro-F1, ağırlıklı precision/recall/F1, tür bazlı skorlar ve cins bazlı ortalama F1 hesaplanmıştır.
Ayrıca beş kontrollü yapılandırma karşılaştırılmıştır:
- Standart softmax
- ArcFace
- ArcFace + tür prototipi
- TaxaMargin
- TaxaMargin + tür prototipi
Bütün yapılandırmalar aynı veri bölünmesi, omurga, eğitim protokolü ve değerlendirme metriklerini kullanmıştır; bu nedenle ablasyon karşılaştırması ana bileşenlerin katkısını doğrudan incelemek üzere tasarlanmıştır.
Temsil uzayının taksonomik analizi
Test görüntülerinin 256 boyutlu normalize temsilleri arasındaki kosinüs uzaklıkları üç gruba ayrılmıştır:
- Aynı türden iki görüntü
- Aynı cins içinde farklı iki tür
- Farklı cinslere ait görüntüler
Ayrıca 36 tür için centroid hesaplanmış ve centroidler arasındaki kosinüs uzaklıklarından iki boyutlu Multidimensional Scaling (MDS) görselleştirmesi oluşturulmuştur. MDS yalnız görsel inceleme için kullanılmış; nicel uzaklık karşılaştırmaları özgün yüksek boyutlu temsil uzayında yapılmıştır.
Çalışmanın Yöntemi ve Bulguları
Ablasyon sonuçları
| Yapılandırma | Tür doğruluğu (%) | Cins doğruluğu (%) | Macro-F1 (%) |
|---|---|---|---|
| Softmax | 69,00 | 79,00 | 66,80 |
| ArcFace | 74,36 | 83,15 | 73,12 |
| ArcFace + prototip | 74,94 | 84,83 | 74,05 |
| TaxaMargin | 78,89 | 87,96 | 78,71 |
| TaxaMargin + prototip | 81,57 | 90,74 | 82,00 |
Bu tablo iki ayrı noktayı gösterir. Birincisi, standart ArcFace softmax'a göre belirgin iyileşme sağlamıştır. İkincisi, taksonomik marjın eklenmesi ArcFace'in üzerine ilave kazanç getirmiştir. Prototip öğrenmesinin ArcFace'e eklendiğinde sağladığı artış sınırlı kalırken, TaxaMargin ile birleştirildiğinde daha büyük tamamlayıcı yarar görülmüştür.
Tam yapılandırmanın softmax'a göre farkı:
| Metrik | Softmax | TaxaMargin + prototip | Artış |
|---|---|---|---|
| Tür doğruluğu | %69,00 | %81,57 | +12,57 yüzde puanı |
| Cins doğruluğu | %79,00 | %90,74 | +11,74 yüzde puanı |
| Macro-F1 | %66,80 | %82,00 | +15,20 yüzde puanı |
Tür ve cins düzeyindeki performans
Macro ve weighted precision, recall ve F1 değerlerinin tümü yaklaşık 0,82 düzeyindedir. Bazı türlerde performans çok yüksektir: Abies concolor için F1 1,00; Tilia tomentosa ve Juniperus sabina için 0,95 olarak raporlanmıştır.
Cins bazında en yüksek ortalama F1 değeri Juniperus: 0,89; ardından Pinus: 0,85, Quercus: 0,84 ve Abies: 0,83 gelmektedir. Daha düşük ortalamalar Tilia: 0,78 ve Ulmus: 0,78 için gözlenmiştir.
Kaynak, Populus tremula, Betula pubescens ve Tilia cordata gibi bazı türlerin daha zor sınıflandırıldığını belirtmektedir.
Öğrenilen Temsil Uzayı Gerçekten Taksonomik Bir Yapı Gösteriyor Mu?
Evet, incelenen test verisinde ortalama kosinüs uzaklığı aynı tür görüntülerinde 0,214, aynı cinse ait farklı türlerde 0,645 ve farklı cinslerde 0,763 olarak artmaktadır; ancak MDS görselleştirmesinde bazı cinslerin kısmen örtüşmesi, taksonomik ayrımın bütün gruplarda kusursuz olmadığını göstermektedir.
| Taksonomik ilişki | Ortalama kosinüs uzaklığı | Medyan |
|---|---|---|
| Aynı tür | 0,214 | 0,048 |
| Aynı cins, farklı tür | 0,645 | 0,694 |
| Farklı cins | 0,763 | 0,755 |
Bu düzen, aynı türün temsillerinin birbirine en yakın; aynı cins içindeki türlerin orta düzeyde ayrılmış; farklı cinslerin ise ortalamada daha uzak konumlandığını gösterir. Bununla birlikte MDS haritasının merkezinde bazı cinslerin örtüşmesi, temsil uzayının biyolojik taksonomiyi eksiksiz ve kusursuz biçimde yeniden oluşturduğu şeklinde yorumlanmamalıdır.
Hatalar rastgele mi, taksonomik olarak yapılandırılmış mı?
Tür düzeyindeki yanlışların %46,23'ü aynı cinsten başka bir türe, %53,77'si farklı cinsten bir türe yapılmıştır. Böylece bütün tür hatalarının yaklaşık yarısı yakın taksonomik akrabalar arasında yoğunlaşmaktadır.
Kaynağın nitel analizinde tekrar eden bazı karışıklık çiftleri şunlardır:
- Salix alba ↔ Salix fragilis
- Ulmus glabra ↔ Ulmus laevis
- Abies alba ↔ Abies nordmanniana
Bu örnekler, bazı yanlışların modelin tamamen ilgisiz bir türe sıçramasından çok, görsel olarak benzer ve biyolojik olarak yakın türler arasında oluştuğunu göstermektedir.
Model Emin Değilse Neden Cins Düzeyine Geri Dönüyor?
Confidence-based fallback mekanizması, tür düzeyindeki en yüksek tahmin güveni belirli bir eşikten düşükse kesin bir tür adı vermek yerine daha geniş cins bilgisini döndürür; kaynakta 0,95 eşik değerinde bu yaklaşım %82,87 fallback doğruluğu sağlamış ve tahminlerin %6,67'sini cins düzeyine çekmiştir.
Bu yaklaşımın amacı “daha fazla tahmin yapmak” değil, görsel kanıt tür düzeyinde yeterli olmadığında gereğinden fazla kesinlik üretmemektir. Ekolojik saha kullanımında cins düzeyindeki doğru bilgi, yanlış bir tür isminden daha yararlı olabilir.
Bununla birlikte kaynak, güven puanını gerçek istatistiksel belirsizlikle eşitlememektedir. Yüksek güvenle yanlış sınıflandırmalar da gözlenmiştir. Dolayısıyla fallback eşiği pratik bir operasyon kuralıdır; kalibrasyonlu belirsizlik ölçüsü değildir.
Prototip öğrenmesinin sınırı
Her tür yalnız tek bir prototip vektörüyle temsil edilmektedir. Oysa aynı ağaç türü yaprak, kabuk, kozalak, çiçek, genç birey, yetişkin birey, farklı mevsim ve farklı kamera perspektiflerinde çok farklı görsel modlara sahip olabilir. Kaynak bu nedenle gelecekte her tür için birden çok alt-prototip kullanılmasını olası geliştirme yönü olarak tartışmaktadır.
Benzer biçimde TaxaMargin taksonomiyi yalnız aynı cins / farklı cins ikiliği üzerinden kullanmaktadır. Aile üyeliği, filogenetik uzaklık veya tür özelliklerinin dereceli benzerliği doğrudan marja dahil edilmemiştir.
Çalışmanın desteklediği sonuçlar
- Taksonomiye duyarlı açısal marj, incelenen veri setinde standart ArcFace'e göre daha yüksek tür, cins ve macro-F1 performansı sağlamıştır.
- Tür prototipi öğrenmesi TaxaMargin ile birlikte kullanıldığında ek performans artışı sağlamıştır.
- Öğrenilen gömme uzayında aynı tür, aynı cins ve farklı cins çiftleri arasında artan kosinüs uzaklığı gözlenmiştir.
- Yanlış sınıflandırmaların önemli bölümü taksonomik olarak yakın türler arasında gerçekleşmiştir.
- Tür tahmininden cins tahminine geri dönüş mekanizması düşük güvenli örneklerde daha ihtiyatlı çıktı üretebilmektedir.
Çalışmanın desteklemediği sonuçlar
- Modelin dünya üzerindeki bütün ağaç türlerinde %81,57 doğruluk sağlayacağı gösterilmemiştir.
- Sonuçlar bağımsız bir kıta, ülke, botanik bahçe veya yeni saha veri setinde dış doğrulama olarak sunulmamıştır.
- Yüksek model güveni biyolojik doğruluğun garantisi değildir.
- MDS grafiğindeki görsel kümelenme, filogenetik ilişkinin doğrudan ölçümü değildir.
- Model yalnız görüntüden öğrenmektedir; DNA, coğrafi dağılım, fenoloji kayıtları veya uzman botanik incelemesiyle birleşik bir teşhis sistemi test edilmemiştir.
- Tek prototipli tür temsili bütün mevsimsel ve organ düzeyindeki görsel çeşitliliği eksiksiz temsil ettiğini kanıtlamaz.
- Cins seviyesindeki hiyerarşi, biyolojik taksonominin aile ve daha üst düzeylerini modellememektedir.
Bilimsel anlamı
Çalışmanın temel katkısı yalnız daha yüksek bir sınıflandırma doğruluğu elde etmek değildir. Araştırma, biyolojik sınıflandırmanın hiyerarşik yapısını yapay zekâ modelinin eğitim geometrisine taşıyan bir yaklaşım önermektedir.
Standart bir sınıflandırıcı açısından iki yanlış sınıf yalnız iki ayrı etikettir. TaxaMargin açısından ise “aynı cinsten rakip” ile “farklı cinsten rakip” aynı zorlukta kabul edilmez. Model, biyolojik olarak birbirine yakın ve görsel olarak daha kolay karışan türler arasında daha büyük açısal ayrım öğrenmeye zorlanır.
Bu yaklaşım özellikle biyoçeşitlilik görüntülerinde önemlidir; çünkü gerçek saha fotoğraflarında bir türün ayırt edici organları her zaman görünmeyebilir. Modelin hatalarının hangi taksonomik düzeyde gerçekleştiğini bilmek, yalnız doğru/yanlış ikili metriğinden daha açıklayıcı olabilir.
Ancak bu çalışma aynı zamanda taksonomik bilgi eklemenin bütün belirsizliği ortadan kaldırmadığını göstermektedir. Aynı cinsten türler hâlâ önemli ölçüde karışmakta, bazı yanlış tahminler yüksek güvenle yapılmakta ve görsel kanıtın niteliği görüntüler arasında değişmektedir. Bu nedenle TaxaMargin, uzman botanik teşhisinin yerini aldığı gösterilmiş bir sistem değil; görüntü tabanlı tür tanıma modellerinin öğrenme hedefini biyolojik yapıyla daha uyumlu hale getirmeyi amaçlayan bir yöntemdir.
Kaynak ve Yöntem Notu
Özgün çalışma: Improving Fine-Grained Tree Species Recognition with Taxonomy-Aware Angular-Margin Learning
Yazarlar: Mohamed Islam KESKES, Mihai Daniel Niţă
Sorumlu yazar: Kaynak başlık sayfasında Mihai Daniel Niţă yıldızla işaretlenmiştir.
Kurum: Department of Forest Engineering, Forest Management Planning and Terrestrial Measurements, Faculty of Silviculture and Forest Engineering, Transilvania University of Brasov, Brașov, Romania.
Kaynak türü: Preprint araştırma makalesi.
Platform: SSRN.
SSRN Abstract ID: 7317101.
Hakemlik durumu: Hakem değerlendirmesinden geçmemiştir; PDF bunu her sayfada “Preprint not peer reviewed” olarak belirtmektedir.
DOI: Kaynak PDF'de açık DOI bilgisi bulunmamaktadır ve mevcut bibliyografik doğrulama sırasında resmî SSRN kayıt sayfası güvenilir biçimde alınamadığı için DOI tahmin edilmemiştir.
Kesin yayın/yükleme tarihi: Kaynak PDF'de açık bibliyografik tarih bulunmamaktadır; doğrulanamayan tarih eklenmemiştir.
Lisans: Kaynak PDF'de açık Creative Commons veya başka bir yeniden kullanım lisansı görünmemektedir. Bu nedenle kaynak görsel, fotoğraf ve özgün figür tasarımları açık lisanslı kabul edilmemiştir.
Veri kaynağı: Başlıca GBIF ve iNaturalist üzerinde yayımlanmış RGB biyoçeşitlilik görüntüleri.
Veri seti: 12 cins, 36 tür, tür başına 300 görüntü; %70 eğitim, %20 doğrulama, %10 test.
Model: ImageNet-pretrained ConvNeXt-Tiny + 256 boyutlu L2-normalize temsil + TaxaMargin sınıflandırıcı + güven kapılı EMA tür prototipleri.
Temel eğitim parametreleri: AdamW, weight decay 0,05; omurga öğrenme oranı 1,5 × 10⁻⁴; yeni başlıklar 1,5 × 10⁻³; cosine annealing; maksimum 30 epoch; 7 epoch patience ile early stopping; gradient clipping normu 1,0.
Temel sınırlılıklar: Tek tür prototipi, yalnız aynı-cins/farklı-cins taksonomik ayrımı, heterojen kamu görüntülerine bağlı görsel kanıt farklılığı ve model güveninin doğruluğu garanti etmemesi.
Kaynak-içi teknik not: Denklem (2)'nin yayımlanmış matematiksel dizgisinde en zor negatif sınıfı seçme operatörü eksik görünmektedir; metinsel tarif “doğru sınıf dışındaki en yüksek kosinüs benzerliğine sahip tür” biçiminde açıktır. Ayrıca yöntem bölümünün numaralandırması 2.5'ten 2.7'ye geçmektedir. Verianla bu noktaları kaynak adına sessizce yeniden yazmamıştır.
Görsel kullanım notu: Kaynağın pipeline, tür fotoğrafları, performans tabloları, MDS haritası ve karışıklık matrisleri doğrudan kopyalanmamalıdır. Verianla için gerekirse yalnız raporlanan olgusal değerler ve yöntem ilişkileri kullanılarak bağımsız grafik ve şemalar sıfırdan hazırlanmalıdır.
Izoh qoldiring
E-pochta manzilingiz chop etilmaydi. Majburiy maydonlar * bilan belgilangan