


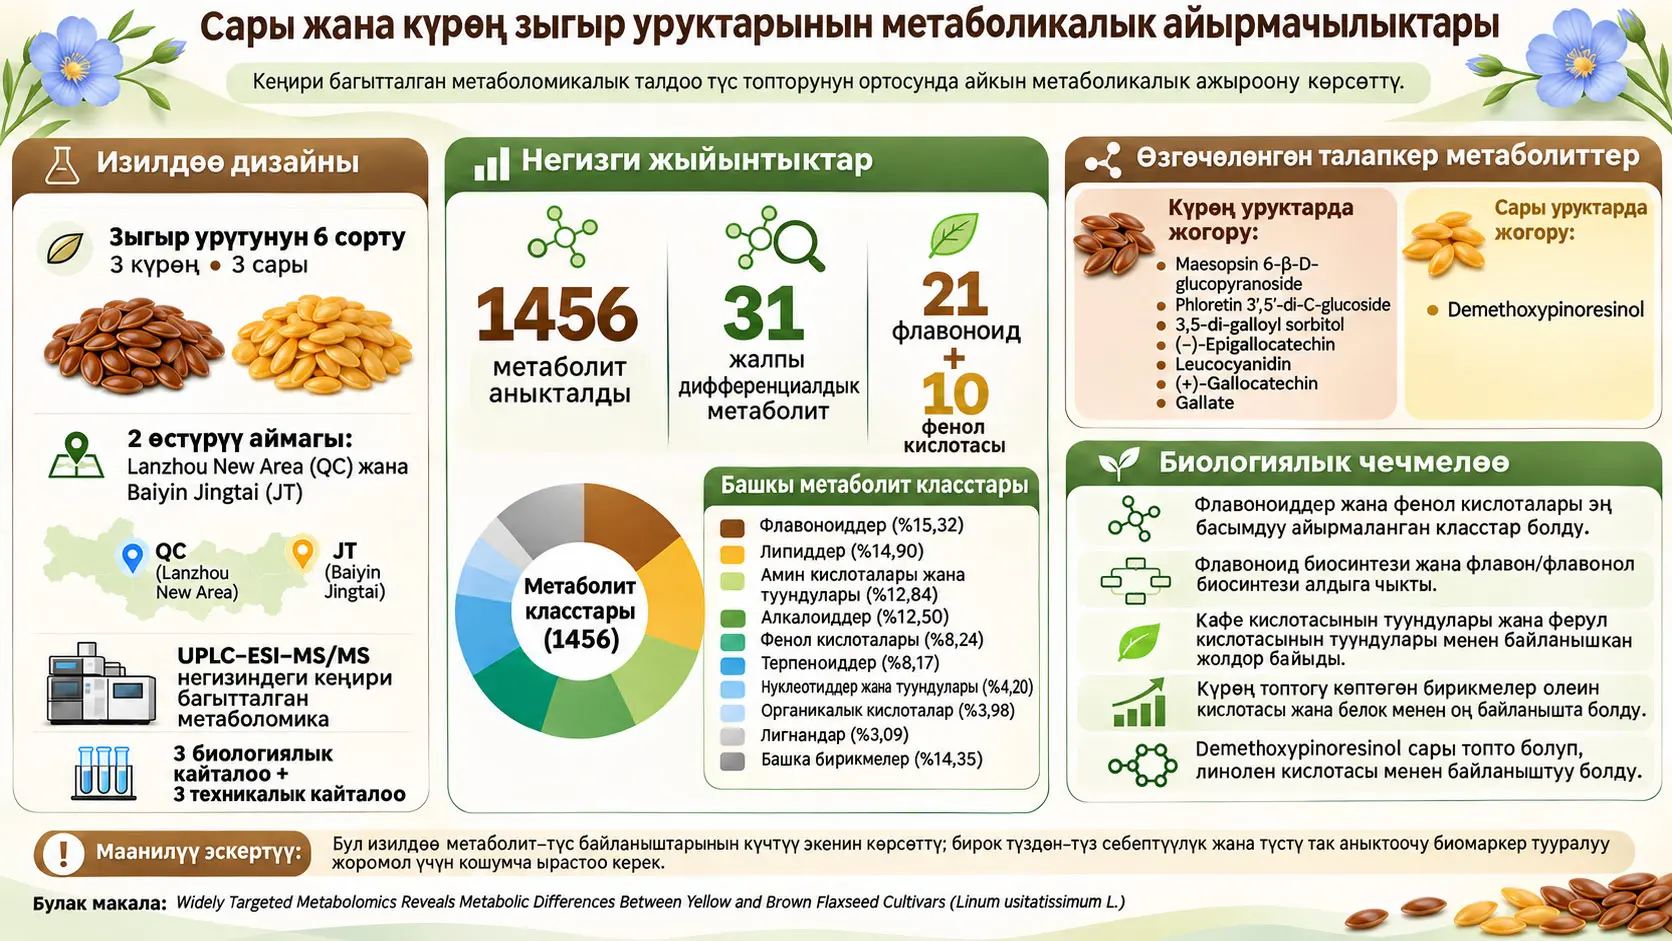
Кеңири максаттуу метаболомика, көп сандагы кичине молекулалуу метаболиттерди бир эле тажрыйбанын ичинде скринингден өткөрүүгө жана алдын ала аныкталган масс-спектрометрия өтүүлөрү аркылуу алардын салыштырмалуу молдугун салыштырууга мүмкүндүк берген кеңири камтуучу аналитикалык ыкма. Бул изилдөөдө үч күрөң жана үч сары зыгыр уругунун сорту Lanzhou New Area жана Baiyin Jingtai деген эки башка өстүрүү аймагында бааланган; бүтүн уруктардан даярдалган экстракттар UPLC-ESI-MS/MS жана көп реакциялуу мониторинг (Multiple Reaction Monitoring, MRM) ыкмасы менен талданган. Жалпысынан 1456 метаболит аныкталып, сары–күрөң топтордун ортосундагы эң айкын айырмачылыктар өзгөчө флавоноиддерде жана фенол кислоталарында топтолгону табылган.
Изилдөө үч күрөң сортту — Russian-3 (227), Longya 15 (141) жана Shuangya 15 (175) — үч сары сорт менен — Baya 21 (YJ2435), zh554 (YJ2414) жана zh232 (YJ2408) — салыштырган. Алты сорттун баары 2024-жылы Lanzhou New Areaда да, Baiyin Jingtaiде да өстүрүлгөн. Ошентип, бир гана күрөң жана бир гана сары сортту салыштыруунун ордуна, эки башка чөйрөдө жалпы алты генотип аркылуу түс топторунун ортосундагы метаболикалык үлгүнүн канчалык туруктуу экени изилденген.
1456 метаболиттин 223ү флавоноид (%15,32), 217си липид (%14,90), 187си аминокислота жана алардын туундулары (%12,84), 182си алкалоид (%12,50), 120сы фенол кислотасы (%8,24), 119у терпеноид (%8,17), 61и нуклеотид жана алардын туундулары (%4,20), 58и органикалык кислота (%3,98), 45и лигнан (%3,09), 22си кумарин (%1,51), 9у хинон (%0,62), 2си таннин (%0,14), 2си стероид (%0,14) жана 209у башка бирикмелер (%14,35) катары классификацияланган. Флавоноиддер, фенол кислоталары, лигнандар, кумариндер жана танниндер бирге жалпы метаболиттердин болжол менен %28,3ын түзгөн.
Ар бир өстүрүү аймагында үч сары–күрөң жуп салыштырылган. Lanzhou тобунда тиешелүүлүгүнө жараша 376, 401 жана 429; Jingtai тобунда болсо 356, 417 жана 390 дифференциалдык метаболит аныкталган. Алты салыштырууда тең жалпы айырмаланган полифенолдук бирикмелер каралганда 21 флавоноид жана 10 фенол кислотасынан турган 31 жалпы дифференциалдык метаболит аныкталган.
Бул жалпы түзүлүш жана кошумча талдоолордун натыйжасында сегиз метаболит түс топтору менен өзгөчө күчтүү жана кайталануучу байланыш көрсөткөн талапкерлер катары алдыга чыккан. Maesopsin 6-β-D-glucopyranoside, phloretin 3′,5′-di-C-glucoside, 3,5-di-galloyl sorbitol, (−)-epigallocatechin, leucocyanidin, (+)-gallocatechin жана gallate күрөң топто жогору; лигнан класстагы demethoxypinoresinol болсо сары топто жогору табылган.
Аралаш таасирдүү ANOVA урук кабыгынын түсүнүн таасири бул сегиз метаболиттин баарында FDR түзөтүүсүнөн кийин маанилүү экенин көрсөткөн. Ошол эле учурда ушул талдоодо “түс тобунун ичиндеги генотип” таасиринин да сегиз метаболиттин баарында p < 0,05 болушу метаболит молдугун бир гана түс белгиси менен түшүндүрүүгө болбой турганын көрсөткөн маанилүү деталь. Ошондуктан сегиз бирикме “түстү так аныктаган молекулалар” эмес, генетикалык жактан көзөмөлдөнгөн популяцияларда өзүнчө ырасталышы керек болгон түс менен байланышкан талапкер метаболиттер.
KEGG жол талдоолорунда флавоноид биосинтези, флавон/флавонол биосинтези, кофе кислотасынын туундуларынын биосинтези жана ферул кислотасынын туундуларынын биосинтези салыштыруулардын маанилүү бөлүгүндө байыган. Авторлор өзгөчө фенилпропаноид жана флавоноид метаболизми күрөң жана сары зыгыр уругу топторунун айырмаланышында борбордук роль ойношу мүмкүн экенин талкуулашат. Бирок изилдөө ген экспрессиясын же фермент активдүүлүгүн түз өлчөбөгөндүктөн, метаболикалык агым кайсы фермент аркылуу өзгөрөрү так көрсөтүлгөн эмес.
Корреляциялык талдоодо күрөң топто көбүрөөк болгон фенолдук бирикмелердин маанилүү бөлүгү олеин кислотасы жана кээ бир учурларда белок курамы менен оң байланыш көрсөткөн, ал эми сары топто жогору болгон demethoxypinoresinol линолен кислотасы менен оң байланыш көрсөткөн. Булар статистикалык байланыштар; бир метаболит май кислотасынын же белоктун деңгээлин түздөн-түз жогорулатарын далилдебейт.
Негизги чечмелөө чеги: Изилдөө “күрөң зыгыр уругу адамдын ден соолугу үчүн сары зыгыр уругунан жакшыраак” деген жыйынтыкты сынаган эмес. Бул иш тамактануу же клиникалык кийлигишүү тажрыйбасы эмес, урук метаболиттери салыштырылган өсүмдүк метаболомикасынын изилдөөсү. Мындан тышкары, алты сорттун жалпы генетикалык негиздери ар башка, изилдөө бир гана өстүрүү мезгилин камтыйт жана урук кабыгынын түсү сандык колориметриянын ордуна визуалдык категория менен классификацияланган. Ошондуктан метаболит–түс байланыштары күчтүү болгону менен, түстүн пайда болушунун себептик механизми азырынча далилдене элек.
Изилдөө чечүүнү көздөгөн көйгөй эмне?
Зыгыр уругу (Linum usitatissimum L.) май кислоталарын, белокту, клетчатканы, лигнандарды жана көп сандагы фенолдук бирикмелерди камтыган айыл чарба продуктусу. Күрөң жана сары уруктуу сорттор көрүнгөн түсү боюнча оңой айырмаланса да, бул фенотиптик айырманын бүтүндөй метаболом деңгээлиндеги эквиваленти жетиштүү түшүндүрүлгөн эмес.
Мурунку изилдөөлөр зыгыр уругунда өзгөчө α-линолен кислотасы жана лигнандар сыяктуу айрым компоненттерге көңүл бурган. Ал эми жүздөгөн же миңдеген метаболиттерди бир убакта изилдеп, ар башка түс топторунун метаболикалык кол тамгасын салыштырган иштер кыйла чектелүү. Бул изилдөөнүн максаты сары жана күрөң сорттордо кайсы метаболит класстары системалуу түрдө айырмаланарын жана бул айырма эки башка өстүрүү чөйрөсүндө сакталабы-жокпу аныктоо.
Кеңири Максаттуу Метаболомика Деген Эмне?
Бул изилдөөдө колдонулган кеңири максаттуу метаболомика ыкмасы миңдеген мүмкүн болгон сигналдардын ичинен жалпы гана скрининг жүргүзүүнүн ордуна, кеңири метаболит маалымат базасын жана аныкталган масс-спектрометрия өтүүлөрүн колдонуп көп сандагы метаболиттерди бир платформада көзөмөлдөгөн ыкма; бул жерде өлчөө UPLC менен хроматографиялык ажыратуу, ESI менен иондоштуруу жана QTRAP 6500+ аппаратында MRM негизиндеги масс-спектрометрия аркылуу жүргүзүлүп, молдук салыштыруулары негизинен хроматографиялык пик аянттары боюнча жасалган.
Ошондуктан макаладагы “метаболит концентрациясы жогору” деген сөздөрдү mg/g сыяктуу калибрленген абсолюттук химиялык концентрациялар менен чаташтырбоо керек. Ыкма бөлүмүндө метаболит молдугу негизинен оңдолгон хроматографиялык пик аянттары аркылуу салыштырылат жана 5-сүрөттүн y огу да салыштырмалуу курам/пик аянты катары аныкталган.
Изилдөөдө кайсы зыгыр уругунун сорттору колдонулган?
| Урук кабыгынын түсү | Сорт | Изилдөө коду |
|---|---|---|
| Күрөң | Russian-3 | 227 |
| Күрөң | Longya 15 | 141 |
| Күрөң | Shuangya 15 | 175 |
| Сары | Baya 21 | YJ2435 |
| Сары | zh554 | YJ2414 |
| Сары | zh232 | YJ2408 |
Эки өстүрүү аймагынын ролу кандай?
Алты сорттун баары эки аймакта өстүрүлгөн:
- Lanzhou New Area: 103°57′ E, 36°16′ N.
- Baiyin Jingtai: 104°07′ E, 37°18′ N.
Булак Lanzhou New Area үчүн үлгү аттарында QC, Jingtai үчүн JT кодун колдонот. Бул жерде көңүл буруучу терминологиялык чаташуу бар: метаболомикалык сапатты көзөмөлдөө үлгүлөрү да англисче “quality control” дегенден улам QC деп аталат. Үлгүнүн атындагы QC227 сыяктуу “QC” жайгашуу кодун аналитикалык сапатты көзөмөлдөө маанисиндеги “QC sample” менен чаташтырбоо керек.
Талаа шарттары жасалма түрдө көзөмөлдөнгөн эмес. Ар бир аймакта сугаруу, жер семирткич берүү жана зыянкечтерди башкаруу стандарттуу агрономиялык тажрыйбалар менен жүргүзүлгөн. Булак узак мөөнөттүү климаттык жазууларга таянып, Jingtai жылдык орточо температурасы болжол менен 8,5 °C жана жылдык жаан-чачыны 185 mm болуп, Lanzhouнун болжол менен 10,5 °C жана 320 mm көрсөткүчтөрүнө караганда салкыныраак жана кургак экенин билдирет. Бул көрсөткүчтөр изилдөө жылындагы толук ачык прибор жазуулары эмес, аймактардын узак мөөнөттүү климаттык мүнөзүн түшүндүрүү үчүн берилген болжолдуу маанилер.
Изилдөөчүлөр чөйрөдөгү айырманы жоюуга аракет кылган эмес; ошол эле түс менен байланышкан метаболиттер эки карама-каршы чөйрөдө кайра пайда болобу-жокпу баалоо үчүн бул айырманы изилдөөнүн бир бөлүгү катары колдонушкан.
Эмне үчүн бүтүн урук талданган?
Түс байкоолору жана метаболомикалык талдоолор бүтүн, бузулбаган урук боюнча жүргүзүлгөн. Булак муну көрүнгөн түс айырмасы үчүн негизинен урук кабыгы жооптуу болушу жана кабыкты эндоспермден метаболит профилин өзгөртпөстөн оңой ажыратууга мүмкүн эместиги менен түшүндүрөт.
Үлгү кантип даярдалган?
Бузулган уруктар жана бөтөн материалдар алынып салынгандан кийин үлгүлөр кургатылып, 63 саат лиофилизацияланган Лиофилизация — тоңдурулган үлгүдөн сууну төмөн басым астында алып салуу аркылуу иштетүү учурунда метаболиттердин өзгөрүшүн азайтууга багытталган кургатуу ыкмасы.
Кургатылган үлгүлөр MM 400 майдалагычында 30 Hz, 1,5 мүнөт майдаланган. Ар бир метаболомикалык экстракцияда 50 mg үлгү порошогу колдонулуп, ага алдын ала муздатылган 1200 µL %70 метанол–суу аралашмасы кошулган.
Экстракция эритмеси ошондой эле ички стандартты камтыйт. Булак стандарттык эритме 1 mg/mL даярдалып, %70 метанол менен 250 µg/mLге чейин суюлтулганын билдирет; бирок негизги ыкма текстинде ички стандарттын химиялык кимдигин ачык бербейт. Ошондуктан Verianla тарабынан бирикменин аты кошулган эмес.
Аралашма алты жолу, ар биринде 30 секунддан вортекстелип, бул процесс ар 30 мүнөт сайын кайталанган. Андан кийин Eppendorf 5810 R аппараты менен центрифугалоо жүргүзүлүп, үстүңкү фаза алынып, 0,22 µm мембраналык фильтрден өткөрүлүп UPLC-MS/MS виалына көчүрүлгөн.
Кайра өндүрүлүүчүлүк боюнча эскертүү: Негизги ыкма тексти бул экстракция центрифугасынын айлануу/g күчүн, убактысын жана температурасын ачык билдирбейт. Бул жетишпеген параметр Verianla тарабынан толукталган эмес.
UPLC кандай кызмат аткарат?
Ультра жогорку натыйжалуу суюк хроматография (UPLC), экстракттагы көп сандагы молекулаларды колонка менен өз ара аракеттенүүсүнө жараша убакыт ичинде бири-биринен ажыратат. Бул изилдөөдө ExionLC AD системасы жана Agilent SB-C18 колонкасы колдонулган. Колонканын бөлүкчө өлчөмү 1,8 µm, ички диаметри 2,1 mm жана узундугу 100 mm.
Мобилдик фаза A — ультратаза сууда %0,1 кумурска кислотасы; мобилдик фаза B болсо %0,1 кумурска кислотасын камтыган ацетонитрил. Башында B үлүшү %5 болгон. Алгачкы 9 мүнөттө %95ке көтөрүлүп, 1 мүнөт %95те кармалган, 10,00–11,10 мүнөт аралыгында кайра %5ке түшүрүлүп, 14-мүнөткө чейин %5те тең салмакташтырылган.
| Параметр | Маани |
|---|---|
| UPLC системасы | ExionLC AD |
| Колонка | Agilent SB-C18, 1,8 µm, 2,1 × 100 mm |
| Мобилдик фаза A | %0,1 кумурска кислотасы / ультратаза суу |
| Мобилдик фаза B | %0,1 кумурска кислотасы / ацетонитрил |
| Агым ылдамдыгы | 0,35 mL/мүнөт |
| Колонканын температурасы | 40 °C |
| Инъекция көлөмү | 2 µL |
| Жалпы программа | 14 мүнөт |
ESI-QTRAP-MS жана MRM эмне кылат?
Хроматографиядан чыккан молекулалар электроспрей иондоштуруу (Electrospray Ionization, ESI) аркылуу заряддалган иондорго айландырылат. Изилдөөдө ион булагынын температурасы 500 °C, оң ион режиминдеги чачыратуу чыңалуусу +5500 V жана терс ион режиминде −4500 V болуп коюлган.
Ион булагынын газ I, газ II жана curtain gas маанилери тиешелүүлүгүнө жараша 50, 60 жана 25 psi. Кагылышууга негизделген иондоштуруу жогорку жөндөөдө колдонулуп, кагылышуу газы азот болгон.
MRM, белгилүү бир прекурсор иону менен андан пайда болгон мүнөздүү продукт ионун бирге көзөмөлдөөгө негизделген максаттуу масс-спектрометрия ыкмасы. Q1 квадруполу тандалган прекурсор ионун өткөрөт. Бул ион кагылышуу камерасында бөлүнөт; Q3 болсо тандалган продукт ионун өткөрөт. Ошентип, бир убакта көптөгөн белгилүү же маалымат базасында аныкталган метаболиттер үчүн тандалма сигнал көзөмөлдөнөт.
Rt, Q1, Q3 жана негизги фрагменттер эмнени билдирет?
Булак Table 1де 31 жалпы дифференциалдык метаболит үчүн төмөнкү аналитикалык идентификация маалыматтарын берет:
| Талаа | Мааниси |
|---|---|
| Rt | Retention time; метаболиттин хроматография колонкасынан чыгуу убактысы, мүнөт |
| Q1 | Биринчи квадруполдо тандалган прекурсор иондун масса/заряд менен байланышкан мааниси |
| Q3 | Бөлүнгөндөн кийин көзөмөлдөнгөн мүнөздүү продукт иону |
| Main Fragments | MS/MS учурунда көрүнгөн маанилүү фрагмент иондору |
| Molecular Weight | Молекулалык масса |
| Ionization Model | Оң же терс иондошууда көзөмөлдөнгөн ион түрү; мисалы [M+H]+ же [M−H]− |
| Formula | Химиялык молекулалык формула |
| Class II | Метаболиттин төмөнкү химиялык классы |
Булак Table 1де жылдызча белгиси бар айрым бирикмелерди MS/MS бөлүнүү үлгүлөрүнө жана референстик салыштырууларга негиздеп путативдүү аныкталган деп белгилейт. Демек, 31 жазуунун баары үчүн түзүмдүк идентификациянын бирдей тактык деңгээли кабыл алынбашы керек.
Метаболиттер кантип сандык бааланган?
Q1 максаттуу прекурсор иондорду тандап, максаттан тыш ион кийлигишүүсүн азайткан; прекурсор иондор кагылышуу менен бөлүнүп, мүнөздүү продукт иондору Q3 аркылуу көзөмөлдөнгөн. Ар бир метаболит үчүн хроматографиялык пик аянты интеграцияланып, ар башка үлгүлөрдүн пик аянттары оңдолгон.
Бул ыкма изилдөөнүн ичиндеги салыштырмалуу метаболит молдугун салыштыруу үчүн колдонулган. Макалада бардык 1456 метаболит үчүн сертификатталган стандарттарга негизделген абсолюттук mg/g калибрлөө ийри сызыктары билдирилген эмес.
Бул Изилдөөгө Караганда Күрөң Зыгыр Уругу Ден Соолукка Пайдалуураакпы?
Жок; бул изилдөө сары жана күрөң зыгыр уруктарынын адамдардагы ден соолук жыйынтыгын, оорунун тобокелдигин же азыктануу артыкчылыгын салыштырган эмес. Изилдөө ар башка түс топторундагы метаболит молдугун караган; күрөң топто айрым фенолдук бирикмелердин жогору болушу өзүнөн-өзү “ден соолукка пайдалуураак” же “азыктуураак” деген жыйынтыкты бербейт.
1456 метаболиттин класстары
| Метаболит классы | Саны | Жалпыдагы үлүшү (%) |
|---|---|---|
| Флавоноиддер | 223 | 15,32 |
| Липиддер | 217 | 14,90 |
| Аминокислоталар жана туундулары | 187 | 12,84 |
| Алкалоиддер | 182 | 12,50 |
| Фенол кислоталары | 120 | 8,24 |
| Терпеноиддер | 119 | 8,17 |
| Нуклеотиддер жана туундулары | 61 | 4,20 |
| Органикалык кислоталар | 58 | 3,98 |
| Лигнандар | 45 | 3,09 |
| Кумариндер | 22 | 1,51 |
| Хинондор | 9 | 0,62 |
| Танниндер | 2 | 0,14 |
| Стероиддер | 2 | 0,14 |
| Башка бирикмелер | 209 | 14,35 |
Ар бир үлгү тобунда канча метаболит аныкталган?
| Топ | Метаболиттердин саны |
|---|---|
| QC227 | 1329 |
| QC175 | 1348 |
| QC141 | 1341 |
| QC YJ2408 | 1338 |
| QC YJ2414 | 1313 |
| QC YJ2435 | 1288 |
| JT227 | 1348 |
| JT175 | 1355 |
| JT141 | 1346 |
| JT YJ2408 | 1352 |
| JT YJ2414 | 1307 |
| JT YJ2435 | 1323 |
PCA эмнени көрсөтөт?
Негизги Компоненттер Талдоосу (Principal Component Analysis, PCA), топ белгилерин жыйынтык түзүү үчүн колдонбостон, көп өлчөмдүү метаболит маалыматындагы негизги вариация багыттарын жыйынтыктаган көзөмөлсүз ыкма. Ар бир метаболит өзүнчө өлчөм катары каралганда, PCA бул өтө жогорку өлчөмдүү түзүлүштү бир нече компонентке кыскартып, үлгүлөрдүн жалпы окшоштуктарын жана айырмачылыктарын көрүүнү жеңилдетет.
Lanzhou үлгүлөрүндө PC1 жалпы вариациянын %24,48ин, PC2 %14,27син; экөө бирге %38,75ин түшүндүргөн. Jingtai үлгүлөрүндө PC1 %24,10, PC2 %15,05 жана жалпы %39,15 вариацияны түшүндүргөн. Үч биологиялык кайталоонун ошол эле сорттун ичинде жакын топтолушу булак тарабынан жакшы кайталануучулук менен байланыштырылған.
HCA эмнени көрсөтөт?
Иерархиялык Кластерлөө Талдоосу (Hierarchical Clustering Analysis, HCA), метаболит профилдери бири-бирине окшош үлгүлөрдү кадам сайын топтойт. Булак бардык 1456 метаболитке негизделген жылуулук картасында алты сорт бөлүнгөнүн жана күрөң/сары топтор ачык классификация көрсөткөнүн билдирет.
Бир түс тобундагы айрым сорттордун ар башка жайларда да бирге топтолушу авторлор тарабынан генетикалык таасир айлана-чөйрөлүк таасирден басымдуу болушу мүмкүн экенин көрсөткөн байкоо катары чечмеленген. Бирок изилдөө бир гана сезон жана алты генотипти камтыгандыктан, бул чечмелөөнү зыгырдын бүт генетикалык ар түрдүүлүгүнө жалпылоого болбойт.
OPLS-DA эмне үчүн PCAдан айырмаланат?
Ортогоналдык Жарым-жартылай Эң Кичине Квадраттар Дискриминанттык Талдоосу (Orthogonal Partial Least Squares Discriminant Analysis, OPLS-DA), PCAдан айырмаланып салыштырылган класс белгилерин колдонот жана эки топтун ажырашын эң жакшы түшүндүргөн метаболикалык өзгөрмөлөрдү аныктоого аракет кылат. Ошондуктан бул көзөмөлдөнгөн ыкма.
Булак алты өзүнчө сары–күрөң жуп үчүн OPLS-DA моделин түзгөн:
| Салыштыруу | R²X | R²Y | Q² |
|---|---|---|---|
| QC YJ2435 vs. QC227 | 0,712 | 1,000 | 0,956 |
| QC YJ2414 vs. QC141 | 0,671 | 1,000 | 0,943 |
| QC YJ2408 vs. QC175 | 0,660 | 1,000 | 0,965 |
| JT YJ2435 vs. JT227 | 0,675 | 1,000 | 0,953 |
| JT YJ2414 vs. JT141 | 0,648 | 1,000 | 0,960 |
| JT YJ2408 vs. JT175 | 0,767 | 0,997 | 0,936 |
R²X, метаболит маалымат матрицасындагы X вариациясынын модель түшүндүргөн бөлүгү менен; R²Y, класстык жооптун түшүндүрүлүшү менен; Q² болсо моделдин кросс-валидацияга негизделген болжолдоо көрсөткүчү менен байланыштуу. Булак бардык моделдерде R²Y жана Q² маанилери 0,9дан жогору болушун күчтүү модель көрсөткүчү катары чечмелеп, кошумча материалда OPLS-DA permutation plotтарын берген.
Дифференциалдык метаболит тандоо кантип жүргүзүлгөн?
Бул туюнтма макаладагы дифференциалдык метаболит скрининг критерийлеринин бирге жазылган түрү; булак муну өзүнчө номерленген теңдеме катары бербейт.
VIP (Variable Importance in Projection), OPLS-DA моделинде метаболиттин топторду ажыратууга кошкон салымынын маанилүүлүк өлчөмү. Булак VIP ≥ 1 болгон метаболиттерди гана талапкер скринингине алган.
FC (fold change), эки топтун метаболит молдугунун катышын билдирет. \(|\log_2(FC)| \geq 1\) шарты математикалык жактан молдук катышы бир багытта кеминде 2 эсе же тескери багытта эң көп жарымына барабар болушун билдирет. Өсүш кайсы топко карата аныкталары салыштыруунун багытына жараша болот.
FDR (False Discovery Rate), жүздөгөн же миңдеген метаболиттер бир убакта сыналган талдоолордо көп жолку салыштыруулардан улам пайда болушу мүмкүн болгон жалган оң жыйынтыктарды көзөмөлдөөнү көздөйт. Изилдөө Benjamini–Hochberg ыкмасын колдонуп, оңдолгон p мааниси үчүн 0,05 чегин колдонгон.
Алты салыштырууда канча дифференциалдык метаболит табылган?
| Салыштыруу | Жалпы | Жогору багытта | Төмөн багытта |
|---|---|---|---|
| QC YJ2435 vs. QC227 | 376 | 202 | 174 |
| QC YJ2414 vs. QC141 | 401 | 144 | 257 |
| QC YJ2408 vs. QC175 | 429 | 229 | 200 |
| JT YJ2435 vs. JT227 | 356 | 170 | 186 |
| JT YJ2414 vs. JT141 | 417 | 152 | 265 |
| JT YJ2408 vs. JT175 | 390 | 185 | 205 |
Бул жыйынтыктардын жалпы өзгөчөлүгү эң айкын айырмаланган класстар өзгөчө флавоноиддер жана фенол кислоталары болгонунда. Ошондуктан кийинки кеңири талапкер скрининги полифенолдук бирикмелерге багытталган.
Полифенолдук метаболиттердеги fold-change аралыктары
| Салыштыруу | Дифференциалдык полифенолдордун саны | FC аралыгы |
|---|---|---|
| QC YJ2435 vs. QC227 | 153 | 0,002–35,38 |
| QC YJ2414 vs. QC141 | 177 | 0,002–203,61 |
| QC YJ2408 vs. QC175 | 171 | 0,004–61,51 |
| JT YJ2435 vs. JT227 | 153 | 0,002–514,83 |
| JT YJ2414 vs. JT141 | 214 | 0,001–115,82 |
| JT YJ2408 vs. JT175 | 159 | 0,005–1032,57 |
Сегиз Метаболит Зыгыр Уругунун Түсүн Так Аныктоочуларбы?
Жок. Сегиз бирикме эки жайда сары жана күрөң топторду күчтүү ажыраткан жана аралаш таасирдүү ANOVAда түс таасири маанилүү бойдон калган талапкер метаболиттер; бирок сорттордун генетикалык негиздери ар башка болгондуктан, түс сандык өлчөнбөгөндүктөн жана функционалдык себептүүлүк тажрыйбасы жүргүзүлбөгөндүктөн, бул бирикмелер урук кабыгынын түсүн түздөн-түз жаратары азырынча далилденген эмес.
Күрөң топто өзгөчөлөнгөн жети метаболит
| Метаболит | Булакта билдирилген күрөң/сары айырма аралыгы | ANOVA багыты |
|---|---|---|
| Maesopsin 6-β-D-glucopyranoside | 10,68–36,40 эсе | Күрөң ↑ |
| Phloretin 3′,5′-di-C-glucoside | 63,74–207,74 эсе | Күрөң ↑ |
| 3,5-di-galloyl sorbitol | 52,08–180,09 эсе | Күрөң ↑ |
| (−)-Epigallocatechin | 4,97–217,17 эсе | Күрөң ↑ |
| Leucocyanidin | 14,31–518,81 эсе | Күрөң ↑ |
| (+)-Gallocatechin | 12,45–823,46 эсе | Күрөң ↑ |
| Gallate | 42,24–510,98 эсе | Күрөң ↑ |
Булак maesopsin 6-β-D-glucopyranoside, phloretin 3′,5′-di-C-glucoside жана 3,5-di-galloyl sorbitol үчүн “күрөң уруктарда гана аныкталды” деген сөздү колдонгону менен, ошол эле бөлүмдө сары топко карата чектелген fold-change аралыктарын да билдирет. Verianla бул эки булак билдирүүсүн өз божомолу менен шайкештештирген эмес; чечмелөө чегин булакта кандай берилсе, ошондой сактаган.
Сары топто өзгөчөлөнгөн метаболит
Demethoxypinoresinol лигнан класстагы бирикме. Булак күрөң урукту контролдук деп алган салыштырууларда бул метаболит сары топто 13,87–28,95 эсе жогору экенин билдирген. Авторлор мунун сары кабык түсү менен байланыштуу болушу мүмкүн экенин сунуштап, бирок гипотеза өзүнчө эксперименттик түрдө ырасталышы керек экенин ачык белгилешет.
Сегиз талапкер метаболиттин аралаш таасирдүү ANOVA менен ырасталышы
| Метаболит | Түс F | Түс p | FDR q | Локация p | Түс × локация p | Генотип (түс) p | Багыт |
|---|---|---|---|---|---|---|---|
| Demethoxypinoresinol | 18,27 | <0,001 | <0,001 | 0,056 | 0,213 | 0,047 | Сары ↑ |
| Phloretin 3′,5′-di-C-glucoside | 19,48 | <0,001 | <0,001 | 0,234 | 0,067 | 0,042 | Күрөң ↑ |
| (−)-Epigallocatechin | 15,43 | <0,001 | 0,002 | 0,201 | 0,076 | 0,031 | Күрөң ↑ |
| Maesopsin 6-β-D-glucopyranoside | 13,75 | 0,001 | 0,003 | 0,152 | 0,089 | 0,035 | Күрөң ↑ |
| (+)-Gallocatechin | 12,81 | 0,001 | 0,003 | 0,143 | 0,095 | 0,039 | Күрөң ↑ |
| 3,5-di-galloyl sorbitol | 11,96 | 0,002 | 0,004 | 0,078 | 0,112 | 0,028 | Күрөң ↑ |
| Leucocyanidin | 10,67 | 0,003 | 0,005 | 0,167 | 0,084 | 0,044 | Күрөң ↑ |
| Gallate | 9,84 | 0,004 | 0,006 | 0,189 | 0,102 | 0,038 | Күрөң ↑ |
Бул таблица бир эле учурда үч башка билдирүүнү берет. Биринчиден, түс таасири сегиз метаболиттин баарында q < 0,05. Экинчиден, локация жана түс × локация таасирлери көпчүлүк метаболиттерде маанилүү эмес. Үчүнчү жана оңой көз жаздымда кала турган жагдай — генотиптин түс тобунун ичиндеги кокустук таасири сегиз метаболиттин баарында p < 0,05. Демек, түс топтору ачык ажыраганы менен, бир түстүн ичиндеги сорттор метаболикалык жактан толук бирдей эмес.
KEGG талдоосу эмнени көрсөтөт?
KEGG жолдорунун байышын талдоо, дифференциалдык метаболиттер кайсы биохимиялык жолдордо күтүлгөндөн көбүрөөк кездешерин баалоо үчүн колдонулган. Бир жолдо байыш байкалышы ошол жолдогу бардык ферменттердин активдүүлүгү түз өлчөнгөнүн билдирбейт; бул изилдөө метаболит молдугуна таянып жол деңгээлинде байланыш түзөт.
| Салыштыруу | Байыган жолдордун саны | Булакта өзгөчө көрсөтүлгөн маанилүү жолдор |
|---|---|---|
| QC YJ2435 vs. QC227 | 61 | Кофеин кислотасынын туундулары; флавон/флавонол; ферул кислотасынын туундуларынын биосинтези |
| QC YJ2414 vs. QC141 | 66 | Фенилпропаноид; кофеин кислотасынын туундулары; өсүмдүктөрдүн ар кандай экинчилик метаболиттери |
| QC YJ2408 vs. QC175 | 71 | Ферул кислотасынын туундулары; кофеин кислотасынын туундулары; флавоноид; аргинин биосинтези |
| JT YJ2435 vs. JT227 | 65 | Флавоноид; флавон/флавонол; ферул кислотасынын туундуларынын биосинтези |
| JT YJ2414 vs. JT141 | 65 | Флавоноид; кофеин жана ферул кислоталарынын туундулары; изофлавоноид; ар кандай экинчилик метаболиттер |
| JT YJ2408 vs. JT175 | 63 | Флавоноид жана флавон/флавонол биосинтези |
Флавоноид биосинтези жана флавон/флавонол биосинтези көптөгөн салыштырууларда кайталанган. Булак флавоноид жолун фенилпропаноид метаболизми менен байланыштырат; chalcone synthase (CHS), chalcone isomerase (CHI), flavanone 3-hydroxylase (F3H) жана flavonol synthase (FLS) сыяктуу ферменттерди биохимиялык контекст катары талкуулайт.
Бирок бул изилдөөдө CHS, CHI, F3H же FLSтин ген экспрессиясы же ферменттик активдүүлүгү түздөн-түз өлчөнгөн эмес. Ошондуктан булакта «күрөң уруктарда CHS активдүүлүгү жогорулады» сыяктуу жыйынтык көрсөтүлгөн эмес.
6-сүрөттөгү Rich Factor кантип окулушу керек?
Булактагы 6-сүрөттүн чыныгы график огунда x огу “Rich Factor” катары көрсөтүлгөн жана көбүктүн өлчөмү «Count» менен масштабдалган. Ал эми булактын сүрөт түшүндүрмөсү горизонталдык окту «impact factor (bubble size)» деп сүрөттөйт. Бул эки көрсөтмө бирдей болбогондуктан, Verianla алардын бирин экинчисине унчукпай өзгөрткөн эмес. KEGG жыйынтыктарынын коопсуз илимий кыскача баяны булак текстинде ачык берилген байыган жолдордун аттары жана p < 0,05 чеги аркылуу жасалган.
Корреляциялык талдоо эмнени көрсөттү?
Изилдөө сегиз талапкер метаболитти урук кабыгынын түсү менен бирге пальмитин, стеарин, олеин, линол жана линолен кислоталары; майдын курамы; белоктун курамы жана лигнандардын курамы сыяктуу сапат белгилери менен салыштырган.
Булактын коддошуусунда demethoxypinoresinol урук кабыгынын түсү менен күчтүү оң жана линолен кислотасы менен маанилүү оң корреляция көрсөткөн. Калган жети метаболит урук кабыгынын түсү менен күчтүү терс корреляция көрсөткөн. Бул белгилерди чечмелөө колдонулган түс коддошуна көз каранды экенин унутпоо керек; булак бул байланыштарды сары/күрөң метаболикалык айырмалануу контекстинде чечмелейт.
(+)-Gallocatechin олеин кислотасы жана белоктун курамы менен күчтүү оң байланыштарды көрсөткөн. (−)-Epigallocatechin жана leucocyanidin да олеин кислотасы жана белок менен күчтүү оң байланышта болгон. Phloretin 3′,5′-di-C-glucoside, maesopsin 6-β-D-glucopyranoside, 3,5-di-galloyl sorbitol жана gallate болсо олеин кислотасы менен абдан күчтүү оң корреляцияларды көрсөткөн.
Метаболит–Түс Корреляциясы Себептүүлүктү Билдиреби?
Жок. Бир эле метаболиттин күрөң же сары уруктарда дайыма жогору болушу ал метаболит урук кабыгынын түсүн түзөрүн өзүнөн-өзү далилдебейт; изилдөөнүн өзү түз себептүүлүктү көрсөтүү үчүн генетикалык жактан көзөмөлдөнгөн материалдар, генетикалык трансформация же in vitro пигментти кайра түзүү сыяктуу функционалдык тажрыйбалар керек экенин белгилейт.
Полифенолдор күрөң түскө кандайча таасир этиши мүмкүн?
Булак өсүмдүк пигментациясы боюнча учурдагы адабияттарга таянып, флавоноиддер жана фенолдук бирикмелер биргелешкен пигментация же ко-пигментация процесстерине салым кошушу мүмкүн экенин талкуулайт. Айрыкча күрөң түс менен байланышкан жети флавоноид/фенолдук бирикме маанилүү ко-пигменттер катары бирге таасир этиши мүмкүн деген гипотеза сунушталган.
Бул түшүндүрмө изилдөөдө пигментти түздөн-түз кайра түзүү тажрыйбасы менен текшерилген эмес. Ошондуктан «бул жети метаболит күрөң түстү түзөт» дегендин ордуна «бул жети метаболит күрөң түс менен күчтүү байланышта жана ко-пигментация механизмине салым кошо турган талапкерлер» деген билдирүү булактын чегине көбүрөөк ылайык келет.
Сары уруктарда лигнан метаболизми эмнени билдириши мүмкүн?
Demethoxypinoresinol сары топто жогору табылган. Авторлор муну лигнан биосинтезине карай мүмкүн болгон метаболикалык багытталуу жана флавоноид биосинтези менен жалпы прекурсорлордун бөлүшүлүшү контекстинде талкуулашат. Бирок көмүртек агымы чындап ушундай өзгөргөнүн көрсөтүү үчүн транскриптомика, ферменттик активдүүлүк же изотоптук агым талдоосу жүргүзүлгөн эмес.
Эмне үчүн 5-сүрөттө Duncan, ал эми Table 2де Tukey көрсөтүлгөн?
Булактагы 5-сүрөттүн түшүндүрмөсү 31 фенолдук метаболиттин ар башка сорт–локация топторундагы салыштырма курамын салыштырууда Duncan тести колдонулганын көрсөтөт. Ал эми ыкмалар бөлүмүндөгү аралаш эффекттүү талапкерди ырастоо талдоосу түс таасири маанилүү болгон метаболиттерде Tukey HSD post hoc тестин аныктайт. Булар статистикалык талдоонун ар башка катмарлары; бирок негизги ыкмалар бөлүмүндө Duncan тестинин деталдуу протоколу өзүнчө түшүндүрүлгөн эмес.
Изилдөө колдогон жыйынтыктар
- Алты зыгыр сортунда жалпысынан 1456 метаболит аныкталган.
- Күрөң жана сары топтор метаболомдук профилдери боюнча айырмаланган.
- Флавоноиддер жана фенолдук кислоталар дифференциалдык метаболиттер арасында өзгөчө маанилүү.
- Эки локациядагы алты жуп салыштырууда 31 жалпы дифференциалдык полифенолдук метаболит аныкталган.
- Сегиз метаболит түс топторунун ортосунда туруктуу жана статистикалык жактан ырасталган айырмачылыктарды көрсөткөн.
- Жети талапкер күрөң топто, demethoxypinoresinol болсо сары топто жогору болгон.
- Урук кабыгынын түсүнүн таасири сегиз талапкердин баарында FDR түзөтүүсүнөн кийин маанилүү.
- Флавоноид, флавон/флавонол, кофеин кислотасынын туундулары жана ферул кислотасынын туундулары менен байланышкан жолдор маанилүү байыштарды көрсөткөн.
- Айрым метаболиттер олеин кислотасы, линолен кислотасы жана белоктун курамы сыяктуу сапат көрсөткүчтөрү менен корреляция көрсөткөн.
Изилдөө колдобогон жыйынтыктар
- Күрөң зыгыр уругу адамдар үчүн сары зыгыр уругунан пайдалуураак экени көрсөтүлгөн эмес.
- Сегиз метаболит урук кабыгынын түсүнүн түздөн-түз себеби экени далилденген эмес.
- Метаболит–май кислотасы же метаболит–белок корреляциялары себептик таасирдин далили эмес.
- Эки түс тобу түс гени боюнча гана айырмаланат деп айтууга болбойт; алардын генетикалык фондору ар башка.
- Изилдөө көп жылдык экологиялык туруктуулукту ырастаган эмес.
- Урук кабыгынын түсү CIE Lab сыяктуу сандык түс өлчөөсү менен фенотиптелген эмес.
- KEGG байышы тиешелүү ферменттердин активдүүлүгү түздөн-түз өлчөнгөнүн билдирбейт.
- Салыштырма пик аянттарынын айырмасы бардык метаболиттер үчүн абсолюттук химиялык концентрацияны билдирбейт.
- Сегиз талапкер учурда ырасталган marker-assisted breeding белгилери деп айтууга болбойт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
1. Эксперименттик материал жана өстүрүү тартиби
Алты генотип эки локацияда табигый талаа шарттарында өстүрүлүп, 2024-жылы бышкан кезде жыйналган. Булак үч биологиялык кайталоо жана үч техникалык кайталоо колдонулганын билдирет. Негизги текст талаа тилкесинин өлчөмү, блоктордун жайгашуусу жана биологиялык кайталоолордун так талаалык жайгашуусу сыяктуу деталдарды билдирбейт.
2. Аналитикалык сапатты көзөмөлдөө
UPLC-MS/MS маалыматтарында quality-control үлгүлөрүнүн total ion chromatogram (TIC) жана extracted ion chromatogram (XIC) дал келүүсү Supplementary Figure S1де бааланган. TIC талдоо учурунда жалпы ион сигналынын туруктуулугун; XIC болсо белгилүү иондордун хроматографиялык жүрүм-турумун көзөмөлдөө үчүн колдонулат.
Үч биологиялык кайталоонун арасында Lanzhou топторунда R² = 0,965–0,995, Jingtai топторунда R² = 0,890–0,994 корреляция коэффициенттери билдирилген. Булак бул жыйынтыктарды үлгүлөрдүн бир тектүүлүгү жана аналитикалык кайталануучулуктун жогору болушу менен байланыштырган.
3. Метаболиттерди идентификациялоо
Метаболиттер Metware Biotechnology компаниясынын өзүнүн MWDB маалымат базасы жана ачык метаболит маалымат базалары менен идентификацияланган. Изотоп сигналдары жана K+, Na+ жана NH4+ сыяктуу аддукт сигналдары бир эле бирикменин бир нече метаболит катары эсептелишин азайтуу максатында талдоо учурунда ажыратылган.
4. Дифференциалдык метаболиттерди тандоонун үч баскычтуу чыпкасы
Метаболит дифференциалдык деп кабыл алынышы үчүн бир эле критерий жетиштүү эмес. Булак бир эле учурда үч шартты талап кылат: OPLS-DAда VIP ≥ 1, абсолюттук log2 fold-change ≥ 1 жана Benjamini–Hochberg FDR түзөтүүсүнөн кийин p < 0,05.
Ошентип, чоң көрүнгөн, бирок статистикалык жактан ишенимдүү эмес айырмачылыктар менен статистикалык жактан маанилүү, бирок биологиялык өлчөмү кичине айырмачылыктардын бир бөлүгүн четтетүү максат кылынган.
5. PCA жыйынтыктары
Lanzhouда алгачкы эки негизги компонент жалпы вариациянын %38,75ин, Jingtaiде %39,15ин түшүндүргөн. Алты сорттун кластерлери бөлүнгөн жана ар бир сорттун үч биологиялык кайталоосу жакын кластерленген.
6. HCA жыйынтыктары
1456 метаболиттин баарына негизделген жылуулук картасы сорттордун ортосунда метаболикалык айырмачылык бар экенин жана күрөң менен сары топтор жалпы алганда бөлүнөрүн көрсөткөн. Булак бир эле түс тобундагы ар башка локация үлгүлөрүнүн бири-бирине жакындыгын генетикалык таасир маанилүү экенине колдоо катары чечмелейт.
7. OPLS-DA жыйынтыктары
Алты жуп OPLS-DA салыштыруусунун баарында күрөң жана сары топтор балл графиктеринде бири-биринен бөлүнгөн. R²Y маанилери 0,997–1,000, Q² маанилери 0,936–0,965 аралыгында. Булак бул жыйынтыктарды моделдин жогорку туруктуулугу жана божомолдоо күчү менен бирге чечмелеген.
8. Жалпы полифенолдук айырмачылык
Алты салыштыруу бирге бааланганда 31 жалпы дифференциалдык полифенолдук метаболит аныкталган. Алардын 21и флавоноид, 10у фенолдук кислота. Булактагы Table 1 бул бирикмелердин хроматографиялык кармалуу убакыттарын, Q1/Q3 иондорун, маанилүү фрагменттерин, молекулалык массаларын, иондошуу формаларын, молекулалык формулаларын жана төмөнкү класстарын берет.
9. Сегиз талапкер метаболитти тандоо
Жети бирикме күрөң уруктарда бардык салыштыруу топторунда жогору тенденция көрсөткөн; demethoxypinoresinol сары уруктарда ачык жогорулаган. Андан соң бул сегиз бирикме урук кабыгынын түсү жана башка сапат белгилери менен корреляциялык талдоого киргизилип, аралаш эффекттүү ANOVA менен кайра ырасталган.
10. Эмне үчүн аралаш эффекттүү ANOVA маанилүү?
Сары жана күрөң сорттордун ар башка генотиптерден турушу жөнөкөй эки топтук тест менен «түс таасирин» генотип айырмачылыгынан толук ажыратууну кыйындатат. Ошондуктан изилдөө урук кабыгынын түсүн жана локацияны туруктуу эффект, түс × локация өз ара аракеттенүүсүн туруктуу эффект, ал эми генотипти түс ичинде уяланган кокустук эффект катары моделге кошкон.
Метаболиттердин молчулугу талдоонун алдында log2 өзгөртүүсүнө алынган; нормалдуу бөлүштүрүү Shapiro–Wilk, дисперсиянын бир тектүүлүгү Levene тести менен текшерилген. Түс таасири маанилүү метаболиттерде Tukey HSD салыштыруусу колдонулуп, көптөгөн тесттер Benjamini–Hochberg FDR менен түзөтүлгөн. Маанилүүлүк деңгээли α = 0,05, FDR үчүн q < 0,05.
11. Аралаш модел көрсөткөн майда, бирок маанилүү деталь
Түс таасиринин бардык сегиз талапкерде маанилүү болушу маанилүү болгону менен, Table 2деги генотип(түс) p маанилери 0,028–0,047 аралыгында жана баары 0,05тен төмөн. Бул ошол эле түс тобундагы үч сорт да бири-биринин метаболикалык көчүрмөсү эмес экенин көрсөтөт.
Ал эми локациянын негизги таасиринин p маанилери 0,056–0,234, түс × локация өз ара аракеттенүүсүнүн p маанилери 0,067–0,213 аралыгында. Бул жыйынтыктар сегиз талапкердин түс багыты эки локацияда салыштырмалуу туруктуу экенин колдойт; бирок болгону эки талаа жана бир жыл болгондуктан узак мөөнөттүү экологиялык туруктуулук азырынча ырасталган эмес.
12. Корреляция жыйынтыктарынын туура чеги
Корреляция графигинде кызыл оң, көк терс байланышты; эллипстин узарышы байланыштын чоңдугун; жылдызчалар статистикалык маанилүүлүктү көрсөтөт. Булак боюнча * белгиси 0,01 < p < 0,05, ** белгиси 0,001 < p < 0,01, *** болсо p < 0,001 деңгээлин билдирет.
Бул талдоо сегиз метаболит менен түс жана сапат белгилеринин бирге өзгөрүү багытын көрсөтөт. Метаболиттин олеин кислотасы менен оң корреляциясы ал метаболит олеин кислотасынын синтезин көбөйтөрүн далилдебейт.
13. Изилдөөнүн күчтүү жактары
- Бир сорттун ордуна үч сары жана үч күрөң генотип колдонулган.
- Ошол эле генотиптер эки ар башка өстүрүү чөйрөсүндө изилденген.
- 1456 метаболитти камтыган кеңири метаболомдук скрининг жүргүзүлгөн.
- Дифференциалдык метаболиттерди тандоодо эффект өлчөмү, моделдеги маанилүүлүк жана FDR бирге колдонулган.
- Сегиз талапкер метаболит жуптук салыштырууларга гана эмес, аралаш эффекттүү моделге да киргизилген.
- Түс менен башка сапат белгилеринин ортосундагы байланыштар кошумча түрдө корреляция деңгээлинде изилденген.
14. Изилдөөнүн негизги чектөөлөрү
- Изилдөө 2024-жылдагы бир гана өстүрүү сезонун камтыйт.
- Эки гана өстүрүү локациясы бар.
- Алты сорттун жалпы генетикалык фондору бири-биринен айырмаланат.
- Жакын изогендик линиялар же урук кабыгынын түсү боюнча гана айырмаланган мутант жуптар колдонулган эмес.
- Урук кабыгынын түсү сандык CIE Lab өлчөөсүнүн ордуна категориялык визуалдык баалоо менен классификацияланган.
- Үлгүлөр метаболомдук экстракцияда толугу менен колдонулгандыктан, кийин сандык түс өлчөөсүн жүргүзүүгө мүмкүн болгон эмес.
- Изилдөө жылына таандык толук ачык метеорологиялык аспаптык жазуулар жок.
- Экстракциялык центрифугалоонун g күчү, узактыгы жана температурасы негизги ыкма текстинде берилген эмес.
- Ички стандарттын химиялык идентификациясы негизги текстте ачык көрсөтүлгөн эмес.
- MRM пик аянттары негизинен салыштырма молчулукту берет; бардык метаболиттер үчүн абсолюттук mg/g сандык аныктоо билдирилген эмес.
- Корреляциялык талдоолор түз биохимиялык себептүүлүктүн далили эмес.
- KEGG жыйынтыктары ген экспрессиясын же ферменттик активдүүлүктү өлчөө эмес.
- Талапкер метаболиттер генетикалык жактан көзөмөлдөнгөн популяцияларда функционалдык жактан али ырасталган эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпкү изилдөө: Widely Targeted Metabolomics Reveals Metabolic Differences Between Yellow and Brown Flaxseed Cultivars (Linum usitatissimum L.)
Авторлор: Wenjuan Li; Jing Sun; Yang Yang; Wei Zhao; Zhao Dang; Yaping Xie; Yanni Qi; Xingrong Wang; Yanjun Zhang; Gang Wang; Nan Lu; Yaming Niu; Zuyu Hu; Limin Wang; Jianping Zhang.
Авторлордун ирети: Булак PDFдеги ирет өзгөртүлбөй сакталган.
Тең салым: Булак PDFде тең биринчи автордук/тең салым тууралуу билдирүү көрүнбөйт.
Жооптуу авторлор: Limin Wang жана Jianping Zhang.
Аффилиация 1: Institute of Crop Research, Gansu Academy of Agricultural Sciences, Lanzhou 730070, China.
Аффилиация 2: Institute of Food Science and Technology, Chinese Academy of Agricultural Sciences, Key Laboratory of Agro-Products Processing, Ministry of Agriculture and Rural Affairs, Beijing 100193, China.
Аффилиация 3: Institute of Western Agriculture, Chinese Academy of Agricultural Sciences, Changji 831100, China.
Аффилиация 4: Key Laboratory of Crop Gene Resources and Germplasm Innovation in Northwest Cold and Arid Regions, Ministry of Agriculture and Rural Affairs, Lanzhou 730070, China.
Журнал: Foods.
Басма: MDPI.
Том / саны / макала номери: 15 / 15 / 2690.
DOI: 10.3390/foods15152690.
Расмий жарыялоо жазуусу: Foods 2026, 15(15), 2690; DOI жазуусу аркылуу жеткиликтүү.
Тапшыруу: 17-июнь 2026.
Кайра кароо: 25-июль 2026.
Кабыл алуу: 28-июль 2026.
Жарыялоо: 30-июль 2026.
Булактын түрү: Талаа материалына негизделген эксперименттик өсүмдүк метаболомикасы жана аналитикалык химия изилдөөсү.
Рецензиялоо абалы: Рецензияланган илимий журналда жарыяланган version of record.
Preprint абалы: Жүктөлгөн булак жарыяланган журналдык версия; PDF өзүнчө preprint идентификаторун билдирбейт.
Лицензия: Creative Commons Attribution (CC BY).
Академиялык редактор: Mehdi Rahimmalek.
Каржылоо: National Natural Science Foundation of China (32560491, 32460541, 32360502); Gansu Provincial Science and Technology Programs (24YFNA003, 26CXNA017, 26CXNA016); China Agriculture Research System (CARS-14-1-05); Gansu Provincial Oil Crops Industrial Technology System (GSARS09); Lanzhou Municipal Science and Technology Program (2024-8-48); Research Program of Gansu Academy of Agricultural Sciences (2025GAAS25).
Этика комитети: Колдонулбайт; адам же жаныбар менен тажрыйба жүргүзүлгөн эмес.
Маалымдалган макулдук: Колдонулбайт.
Маалыматтардын жеткиликтүүлүгү: Булак түпкү салымдар макалада жана Supplementary Material ичинде экенин жана кошумча суроолор жооптуу авторлорго жөнөтүлүшү мүмкүн экенин билдирет.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Ыраазычылык: Institute of Crop Research, Gansu Academy of Agricultural Sciences кызматкерлерине талааны башкаруу жана үлгү чогултуу боюнча колдоосу үчүн; Metware Biotechnology Co., Ltd. компаниясына метаболомика боюнча техникалык колдоосу үчүн ыраазычылык билдирилген.
Авторлордун салымдары: Wenjuan Li: изилдөө, маалыматтарды куроо, алгачкы долбоор; Limin Wang: изилдөө, формалдык талдоо, каржылоону алуу; Jing Sun: концептуалдаштыруу, формалдык талдоо; Yang Yang: концептуалдаштыруу, кеңеш берүү; Wei Zhao: текшерүү; Zhao Dang: формалдык талдоо; Yaping Xie: концептуалдаштыруу, формалдык талдоо; Yanni Qi: формалдык талдоо; Xingrong Wang: каржылоону алуу жана ресурстар; Yanjun Zhang: концептуалдаштыруу жана кеңеш берүү; Gang Wang: формалдык талдоо; Nan Lu, Yaming Niu жана Zuyu Hu: изилдөө; Jianping Zhang: концептуалдаштыруу, кеңеш берүү жана каржылоону алуу.
Кошумча материалдар: Supplementary Figure S1 сапатты көзөмөлдөөчү TIC/XIC графиктерин; Figure S2 үлгүлөрдүн корреляцияларын; Figure S3 PCAны; Figure S4 OPLS-DA permutation plotтарын; Figure S5 дифференциалдык метаболит класстарынын сандарын; Figure S6 жалпы жана уникалдуу метаболиттердин Venn диаграммасын камтыйт. Supplementary Tables S1–S4 тиешелүүлүгүнө жараша метаболит маалыматтарын, дифференциалдык метаболиттерди, дифференциалдык полифенолдорду жана күрөң–сары багыттагы метаболит айырмачылыктарын камтыйт.
Булактагы терминология боюнча эскертүү: «QC» кыскартмасы үлгү аттарында Lanzhou New Area локация коду катары колдонулса, аналитикалык контекстте «quality control» үлгүсүн да билдирет. Маани сүйлөмдүн контекстинен айырмаланышы керек.
Булактагы 5-сүрөт боюнча статистикалык эскертүү: 5-сүрөттүн түшүндүрмөсү Duncan тестин көрсөтөт. Негизги ыкмалар бөлүмүндөгү аралаш эффекттүү талапкер метаболитти ырастоо болсо Tukey HSD колдонгон. Duncan тестинин деталдуу ыкма протоколу негизги ыкмалар бөлүмүндө өзүнчө түшүндүрүлгөн эмес.
Булактагы 6-сүрөттүн көрсөтүлүшү боюнча эскертүү: 6-сүрөттүн графиктеринде горизонталдык ок «Rich Factor» деп белгиленсе, түшүндүрмө текст «impact factor» дегенди колдонот жана көбүктүн өлчөмү визуалдык легендада «Count» катары көрсөтүлөт. Verianla булактын ичиндеги бул көрсөтмө айырмасын унчукпай оңдогон эмес.
Идентификациянын тактык деңгээли боюнча эскертүү: Table 1де жылдызча менен белгиленген айрым метаболиттер булак тарабынан путативдик идентификация катары белгиленген. Бардык метаболит аттары үчүн бирдей түзүмдүк ырастоо деңгээли кабыл алынбашы керек.
Түс өлчөөсү боюнча эскертүү: Урук кабыгынын түсү категориялык визуалдык классификация менен аныкталган; CIE Lab же башка сандык колориметрия колдонулган эмес.
Генетикалык чектөө: Сары жана күрөң сорттор жакын изогендик линиялар эмес. Аралаш эффекттүү модель түс таасирин генотиптен статистикалык түрдө ажыратууга аракет кылганы менен, түс менен метаболиттин ортосундагы түз себептүүлүктү так ырастоо үчүн түсү боюнча ажыраган генетикалык жактан көзөмөлдөнгөн популяциялар керек.
Экологиялык чектөө: Изилдөө эки локацияда, бирок бир гана өстүрүү сезонунда жүргүзүлгөн. Көп жылдык жана көбүрөөк локациялуу ырастоо жүргүзүлгөн эмес.
Себептүүлүк чеги: Метаболит–түс жана метаболит–сапат корреляциялары байланышты көрсөтөт; метаболиттер пигментацияны же азык курамын түздөн-түз түзөрүн далилдебейт. Булак да түз себептүүлүк үчүн генетикалык трансформация же in vitro пигментти кайра түзүү сыяктуу функционалдык тажрыйбалар зарыл экенин белгилейт.
Ден соолукка байланыштуу түшүндүрмөнүн чеги: Изилдөө адамдын тамактануусун, клиникалык натыйжаны, антиоксиданттык мүмкүнчүлүктүн адам организминдеги таасирин же күрөң/сары зыгыр уругунун ден соолук жагынан артыкчылыгын түздөн-түз текшерген эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген