

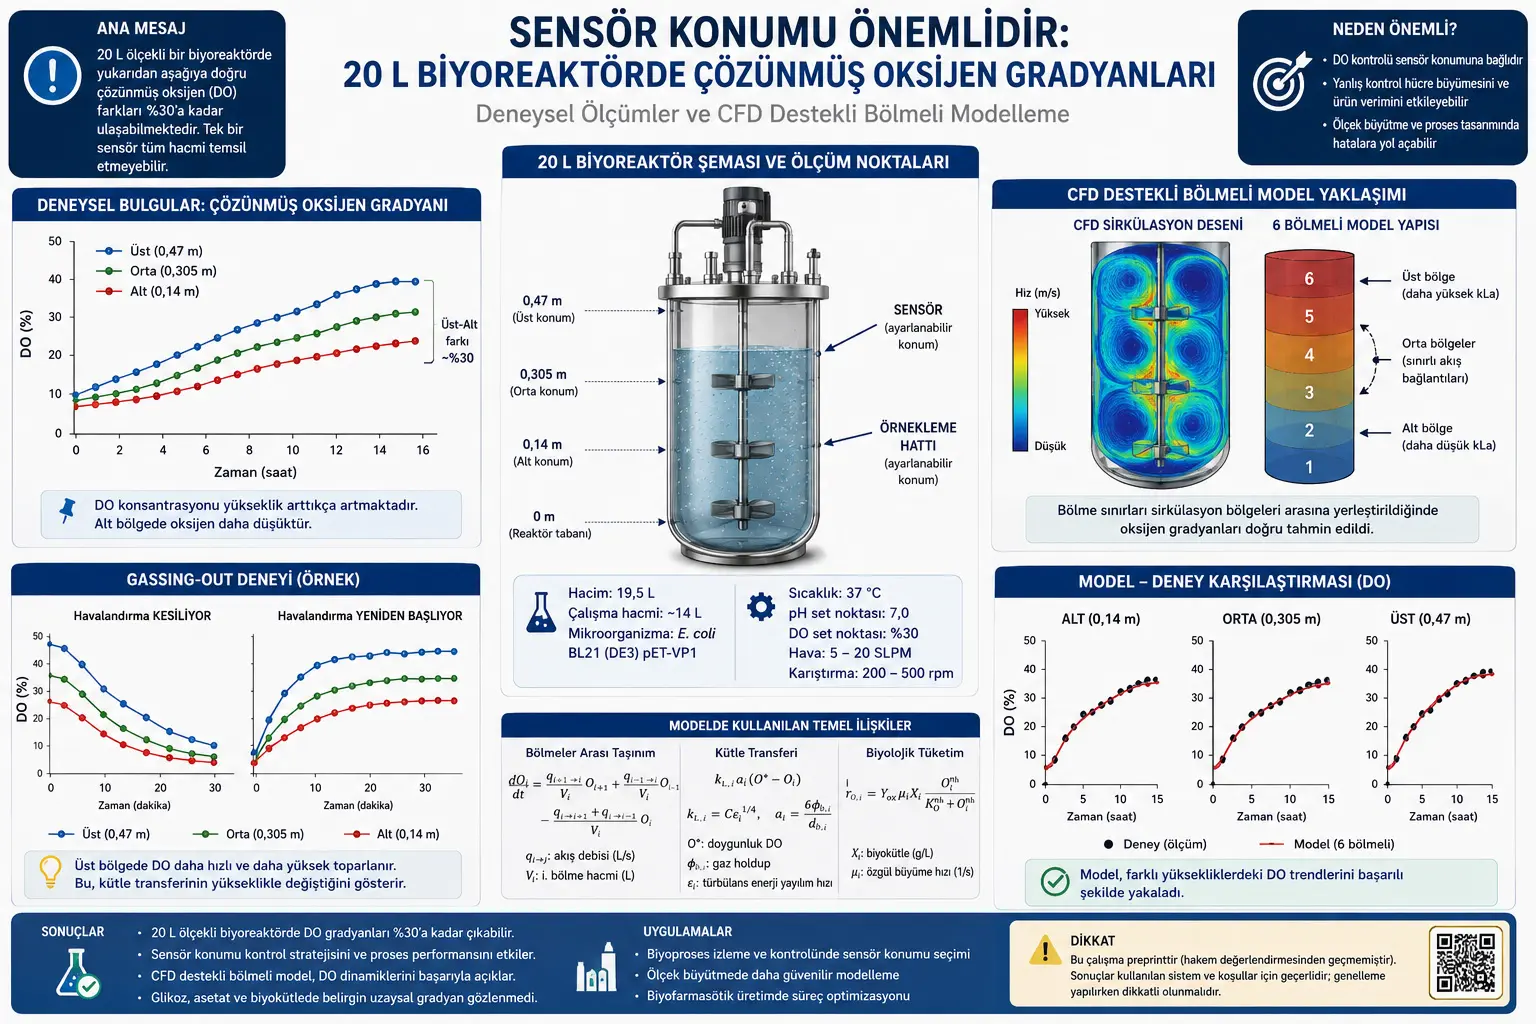
Бул изилдөө чакан жана орто масштабдагы биореакторлор көп учурда болжолдонгондой толук “жакшы аралашкан” болбой калышы мүмкүн экенин көрсөтөт. Изилдөөчүлөр 15–20 L класстагы биореактордо жүргүзүлгөн E. coli fed-batch ферментацияларында эриген кычкылтек реактордун бийиктиги боюнча олуттуу өзгөрүшү мүмкүн экенин өлчөшкөн. Жыйынтыктарга ылайык төмөнкү зонадагы эриген кычкылтек жогорку зонага караганда төмөн калып, айрым шарттарда үстү-асты айырмасы болжол менен %30 деңгээлине жеткен.
Бул жыйынтык маанилүү; анткени биореакторлордо эриген кычкылтек сенсору адатта бир гана чекиттен өлчөйт жана башкаруу системасы ушул өлчөөгө жараша аэрация менен аралаштырууну жөнгө салат. Эгер сенсор төмөнкү зонада турса, башкаруу системасы ошол чекиттеги кычкылтекти максаттуу мааниде кармай алат; бирок бул бүт реактордо ошол эле кычкылтек деңгээли түзүлөт дегенди билдирбейт. Изилдөө сенсордун жайгашуусу процессти мониторингдөө, башкаруу, моделдөө жана масштабды чоңойтуу чечимдерине түз таасир этерин көрсөтөт.
Изилдөөдө глюкоза, ацетат жана биомасса өлчөөлөрүндө ачык мейкиндиктик градиенттер байкалбаса, эриген кычкылтек боюнча бийиктикке жараша маанилүү айырмалар табылган. Бул айырмаларды түшүндүрүү үчүн CFD эсептөөлөрүнөн алынган алты бөлүмдүү динамикалык биореактор модели иштелип чыккан. Модель реактордун ичиндеги циркуляция зоналарын эске алып, бөлүмдөр арасындагы агым катыштарын аныктаган жана кычкылтек өткөрүү, клетка өсүшү, кычкылтек керектөө жана бөлүмдөр аралык ташууну бирге эсептеген.
Изилдөөнүн негизги билдирүүсү мындай: 20 L сыяктуу чакан деп эсептелген биореакторлордо да эриген кычкылтекти бир сенсор менен өлчөө бүт көлөмдү коопсуз түрдө өкүлдүк кылат деген божомол дайыма туура эмес. Бул жагдай өзгөчө биофармацевтикалык өндүрүш, вакцина өндүрүшү, рекомбинанттык белок өндүрүшү жана өнөр жай биопроцесстерин масштабдоо үчүн критикалык. Бирок изилдөө preprint мүнөзүндө жана pH градиенттери сыяктуу айрым байкоолор бул макалада моделденген эмес; ошондуктан жыйынтыктар контекст менен кылдат окулушу керек.
Биореакторлор — микроорганизмдер, клеткалар же биологиялык системалар көзөмөлдөнгөн шарттарда өстүрүлүүчү жабык процесс жабдуулары. Алар вакцина өндүрүшүндө, рекомбинанттык белок өндүрүшүндө, фермент өндүрүшүндө, биофармацевтикалык өндүрүштө жана өнөр жай ферментациясында маанилүү ролду ойнойт. Бул системаларда температура, pH, азык заттары, аралаштыруу, аэрация жана эриген кычкылтек сыяктуу өзгөрмөлөр клетканын өсүшүнө, продукт түшүмдүүлүгүнө жана продукт сапатына түз таасир этет.
Изилдөөнүн баштапкы чекити биореакторлордо абдан көп колдонулган бир божомолду суроо астына алуу: чакан масштабдагы биореакторлор жакшы аралашат жана реактордун ичиндеги концентрациялар бардык чекиттерде болжол менен бирдей болот деген божомол. Бул божомол практикада абдан ыңгайлуу; анткени бир сенсор менен өлчөнгөн pH же эриген кычкылтек бүт реакторду көрсөтөт деп кабыл алынат. Ошентип башкаруу системасы бир чекиттен алган маалыматка таянып чечим чыгарат. Бирок чыныгы суюктук жүрүмү, өзгөчө газ-суюк аралашмасы, impeller таасири, көбүкчө таралышы жана клеткалардын кычкылтек керектөөсү кошулганда, кыйла татаал болушу мүмкүн.
Ири өнөр жай биореакторлорунда аралашма толук бир тектүү болбой турганы көптөн бери белгилүү көйгөй. Чоң көлөмдөрдө аралашуу убактысы узарат, азык заттары жана кычкылтек ар бир чекитке бирдей ылдамдыкта жетпейт, клеткалар ар башка микро-чөйрөлөрдөн өтөт. Ал эми 15–20 L сыяктуу лабораториялык/стенддик масштабга жакын биореакторлордо бул гетерогендүүлүк көп учурда анча маанилүү эмес деп эсептелет. Бул изилдөө дал ушул түшүнүктү суроо астына алып, 20 L класста да эриген кычкылтек градиенттери пайда болушу мүмкүн экенин эксперимент жана моделдөө аркылуу көрсөтөт.
Изилдөөдө колдонулган биореактор New Brunswick Scientific BioFlo 415 SIP Fermentation System деп аталган 19,5 L сыйымдуулуктагы система. Fed-batch эксперименттеринде иштөө көлөмү болжол менен 13,5–14 L диапазонунда кармалган. Микроорганизм катары E. coli BL21 (DE3) pET-VP1 колдонулган. E. coli биотехнологияда жана фармацевтикалык өндүрүштө кеңири колдонулган модель жана өндүрүш организми болгондуктан тандалган. Бул тандоо изилдөөнү жөн гана фундаменталдык суюктук механикасы эмес, реалдуу биопроцесс өндүрүшү үчүн да маанилүү кылат.
Эксперименттерде эриген кычкылтек сенсорунун жана үлгү алуу системасынын бийиктиги өзгөртүлө алган. Өлчөөлөр үч негизги бийиктик зонасында жасалган: төмөнкү зона болжол менен 0,14 m, орто зона болжол менен 0,305 m жана жогорку зона болжол менен 0,47 m бийиктикке туура келет. Реактордо impellerлер болжол менен 0,09 m, 0,29 m жана 0,51 m бийиктиктерге жайгаштырылган. Бул жайгашуу эриген кычкылтектеги айырмалар тик аралыкка гана эмес, impellerлер түзгөн циркуляция зоналарына да байланыштуу болушу мүмкүн экенин көрсөтөт.
Изилдөөнүн биринчи маанилүү эксперименттик жыйынтыгы — глюкоза, ацетат жана биомасса боюнча ачык мейкиндиктик айырмалар өтө аз болгон. Fed-batch эксперименттеринде ар башка бийиктиктерден алынган үлгүлөрдө глюкоза жана ацетат концентрациялары негизинен окшош болгон. Биомасса өлчөөлөрүндө жогорку зонада болжол менен %10 жогору оптикалык тыгыздык тенденциясы байкалган; бирок бул айырма өлчөө ызы-чуусунун чегинде болушу мүмкүн экени жана клеткалардын көтөрүлүү/тыгыздык таасиринен жогорку зонада бир аз көбүрөөк болушу мүмкүн экени этияттык менен чечмеленген. Ошондуктан моделдөөдө биомасса, глюкоза жана ацетат мейкиндик боюнча бир тектүү деп кабыл алынган.
Эриген кычкылтек болсо башкача жүрүм көрсөткөн. Эксперименттерде эриген кычкылтек реактордун бийиктиги боюнча жогорулап, эң төмөн кычкылтек төмөнкү зонада, эң жогорку кычкылтек жогорку зонада өлчөнгөн. Биринчи fed-batch экспериментинде 8,98–9,05 саат аралыгында төмөнкү-орто айырма болжол менен %16, орто-жогорку айырма болжол менен %14 болгон. Ошол эле эксперименттин 11,07–11,12 саат аралыгында төмөнкү-орто айырма болжол менен %17, орто-жогорку айырма болжол менен %21 деңгээлине жеткен. Экинчи fed-batch экспериментинде болсо сенсор бийиктиги 11 башка убакта өзгөртүлүп, орточо төмөнкү-орто айырма болжол менен %12, орто-жогорку айырма болжол менен %15 деп табылган. Жалпы тенденция эки экспериментте тең бирдей: эриген кычкылтек жогору жакта көбүрөөк, ылдый жакта азыраак.
Бул жыйынтыкты күнүмдүк мисал менен мындай түшүнүүгө болот: бөлмөнүн бир гана чекитиндеги температураны өлчөп, бүт бөлмө ошол эле температурада деп кабыл алуу дайыма туура эмес. Радиатор, кондиционер же аба агымы себептүү бөлмөнүн айрым жерлери жылуураак же муздагыраак болушу мүмкүн. Биореактордо да бир эриген кычкылтек сенсору турган жериндеги кычкылтекти гана өлчөйт. Эгер реактордо үстү-асты кычкылтек айырмасы бар болсо, сенсордун жайгашуусу бүт башкаруу стратегиясынын чечмеленишин өзгөртөт.
Изилдөөнүн биопроцесс үчүн критикалык жагы мындай: эриген кычкылтекти башкаруу системасы адатта сенсор турган чекиттеги маанини максаттуу set pointке алып келет. Бул изилдөөдө башкаруу set pointи 30% DO деп аныкталган жана моделде сенсор турган бөлүм үчүн эриген кычкылтек set мааниси төмөнкүдөй берилген:
\[ O_2(t) = O^{set}_2 = 0.0018 \, g/L \]
Бул жерде \(O_2(t)\) сенсор турган экинчи бөлүмдөгү убакытка көз каранды эриген кычкылтек концентрациясын, \(O^{set}_2\) болсо башкаруу set pointин көрсөтөт. Бул туюнтма башкаруу цикли активдүү болгондо сенсор зонасындагы кычкылтек максаттуу мааниде кармаларын билдирет. Бирок изилдөө башка бөлүмдөрдөгү кычкылтек бул мааниден айырмаланып калышы мүмкүн экенин көрсөтөт.
Эксперименттерде мындан тышкары “gassing-out” тесттери жүргүзүлгөн. Бул тесттерде аэрация кыска убакытка токтотулуп, эриген кычкылтек %10 дон төмөн түшкөндө аэрация кайра башталган. Адатта мындай тесттер kLa, башкача айтканда көлөмдүк кычкылтек өткөрүү коэффициентин баалоо үчүн колдонулат. kLa газ фазасынан суюк фазага кычкылтек өтүшү канчалык натыйжалуу экенин көрсөткөн негизги биореактор параметри. kLa жогору болсо, реактор суюктугуна кычкылтек тезирээк өтөт; төмөн болсо клеткалардын кычкылтек талабын канааттандыруу кыйындайт.
Изилдөөдө gassing-out эксперименттери жалпы бир kLa маанисин баалоо үчүн гана эмес, ар башка бийиктиктердеги динамикалык кычкылтек жоопторун түшүнүү үчүн да колдонулган. Аэрация токтогондо эриген кычкылтек клеткалардын кычкылтек керектөөсү жана бөлүмдөр аралык кайра бөлүштүрүү себептүү төмөндөйт. Аэрация кайра башталганда кычкылтек кайра өсөт. Бул өсүү ылдамдыгы ошол зонадагы газ-суюк масса өткөрүү, көбүкчө таралышы, аралашуу жана биологиялык кычкылтек керектөөсү тууралуу маалымат берет.
Gassing-out жыйынтыктары kLa маанилери көбүнчө реактордун төмөнкү зонасында төмөн экенин көрсөттү. Бул төмөнкү зонада эриген кычкылтек аз өлчөнгөнү менен шайкеш. Жогорку зонада газ көбүкчөлөрү, gas holdup же кычкылтек өткөрүү аянты натыйжалуураак болушу мүмкүн жана бул жогорку зонадагы эриген кычкылтектин көбүрөөк болушуна салым кошушу мүмкүн. Изилдөөнүн модели да бийиктикке жараша кычкылтек өткөрүү айырмаларын эске алып, бул чечмелөөнү колдойт.
Моделдөө бөлүгү эки негизги катмардан турат. Биринчи катмар — E. coli культурасынын биомасса, глюкоза жана ацетат динамикасын түшүндүргөн кинетикалык модель. Экинчи катмар болсо эриген кычкылтектин реактордун ичинде бөлүмдөн бөлүмгө кандай өзгөрөрүн түшүндүргөн CFD колдогон бөлүмдүү модель. Ошентип биологиялык өсүү жана кычкылтек керектөө менен гидродинамикалык ташуу бирге каралган.
Классикалык Monod кинетикасы микроорганизмдердин субстратка көз каранды өсүшүн түшүндүрүү үчүн көп колдонулат. Бирок изилдөөдө жөнөкөй Monod туюнтмасы гана глюкоза, ацетат жана биомасса динамикасын жетиштүү түшүндүрбөгөнү айтылат. Себеби E. coli өсүшүндө lag/адаптация жүрүмү, жогорку биомассада өсүү ингибициясы жана глюкоза-ацетат ортосунда метаболикалык өтүү сыяктуу кошумча механизмдер иштейт.
Ошондуктан моделде адегенде биомассага байланыштуу ингибиция термини аныкталган:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Бул жерде \(f_{inh}\) өсүү ингибиция факторун, \(X\) биомасса концентрациясын, \(k_x\) ингибиция байкала баштаган биомасса деңгээлин, \(n_x\) болсо ингибициянын курчтугун аныктаган көрсөткүчтү билдирет. Биомасса көбөйгөн сайын клеткалардын өсүшүн чектеген чөйрөлүк шарттар пайда болушу мүмкүн; бул термин ушул таасирди моделге кошот.
Lag/адаптация жүрүмү үчүн адегенде төмөнкү ортомчу функция аныкталган:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
Андан кийин lag фактору төмөнкүдөй берилген:
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Бул жерде \(f_{lag}\) клеткалардын баштапкы көнүү/адаптация таасирин, \(A_1\) төмөнкү асимптоталык маанини, \(w\) форма параметрин, \(X_\beta\) жылдыруу параметрин билдирет. Бул туюнтма клеткалар чөйрөгө дароо максималдуу ылдамдыкта ыңгайлашпастыгын, белгилүү бир биомасса жана убакыт таасири менен өсүү жүрүмү акырындап өзгөрүшү мүмкүн экенин көрсөтөт.
Ацетатты пайдаланууну глюкоза деңгээлине жараша жөнгө салуу үчүн субстрат өтүү функциясы аныкталган:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Бул жерде \(S\) глюкоза концентрациясын, \(k_h\) глюкозадан ацетатты пайдаланууга өтүүнү аныктаган туруктууну, \(n_h\) болсо өтүүнүн курчтугун билдирет. Глюкоза жогору болгондо E. coli адатта глюкозаны биринчи пайдаланат; ацетатты пайдалануу басылышы мүмкүн. Глюкоза азайганда ацетатты кайра пайдалануу ишке кирет. Бул жүрүм diauxic growth, башкача айтканда эки субстратты ырааттуу пайдалануу/метаболикалык өтүү деп аталат.
Глюкоза жана ацетат боюнча өзгөчө өсүү ылдамдыктары изилдөөдө төмөнкүдөй берилген:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Бул жерде \(\mu_g\) глюкозага байланыштуу өзгөчө өсүү ылдамдыгын, \(\mu_a\) ацетатка байланыштуу өзгөчө өсүү ылдамдыгын, \(\mu_{max,G}\) глюкоза үчүн максималдуу өзгөчө өсүү ылдамдыгын, \(\mu_{max,A}\) ацетат үчүн максималдуу өзгөчө өсүү ылдамдыгын, \(K_s\) глюкозанын Monod туруктуусун, \(A\) ацетат концентрациясын, \(K_a\) ацетат ингибиция туруктуусун жана \(K_{a2}\) ацетат сиңирүү үчүн Monod туруктуусун билдирет.
Жалпы натыйжалуу өзгөчө өсүү ылдамдыгы төмөнкүдөй аныкталган:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Бул теңдеме жалпы өсүү глюкоза жана ацетат салымдарынан түзүлөрүн, бирок клеткалардын адаптация абалы бул жалпы өсүүгө кошумча таасир этерин көрсөтөт.
Биомасса түзүлүшү, глюкоза керектөөсү жана ацетат өндүрүү/керектөө үчүн көлөмдүк реакция ылдамдыктары төмөнкүдөй берилген:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Бул жерде \(r_X\) биомасса пайда болуу ылдамдыгын, \(r_S\) глюкоза керектөө ылдамдыгын, \(r_A\) ацетат өндүрүү/керектөө ылдамдыгын, \(Y_{xs}\) глюкозадан биомасса түшүмүн, \(Y_{xa}\) глюкоза өсүшү менен байланышкан ацетат түзүлүү коэффициентин, \(Y_{xa2}\) ацетат керектөөсү менен байланышкан биомасса түшүмүн, \(m_x\) болсо тейлөө коэффициентин билдирет.
Fed-batch шарттарында реакторго азыктандыруу кошулуп, көлөм өзгөргөндүктөн динамикалык масса баланстары көлөм өзгөрүү терминин камтыйт:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Бул жерде \(V\) реактор көлөмүн, \(dV/dt\) көлөмдүн убакыт боюнча өзгөрүшүн, \(F_S(t)\) глюкоза азыктандыруу агымын, \(S_0\) болсо азыктандыруу эритмесиндеги глюкоза концентрациясын билдирет. Бул теңдемелер fed-batch процесстеринде реакциялардан тышкары системага кошулган көлөмдүн суюлтуу таасири да эске алынышы керек экенин көрсөтөт.
Кычкылтек градиентин моделдөө үчүн реактор алты горизонталдуу бөлүмгө бөлүнгөн. Ар бир бөлүм өз ичинде жакшы аралашкан CSTR сыяктуу кабыл алынган; бирок бөлүмдөр арасында чектелүү агым бар. Бул ыкма толук CFDдей оор эсептөөнү талап кылбайт, бирок бир гана көлөмдөн турган “well-mixed” моделге караганда кыйла реалдуу. Эң маанилүүсү, бөлүмдөрдүн чек аралары туш келди тандалган эмес. Чек аралар CFD симуляцияларынан алынган циркуляция зоналарынын арасына жайгаштырылган.
Изилдөөдө эки башка бөлүмдөө стратегиясы салыштырылган. Биринчисинде чек аралар циркуляция зоналарынын арасына коюлган. Экинчисинде чек аралар циркуляция зоналарынын борборлоруна жакын жайгаштырылган. Жыйынтыктар туура кычкылтек градиенттерин кармоо үчүн чек аралар циркуляция зоналарынын ортосунда болушу керек экенин көрсөткөн. Анткени бул зоналардын ортосундагы агым катыштары төмөн жана толук эмес аралашуу түзүлгөн жерлерди физикалык жактан жакшыраак көрсөтөт. Туура эмес бөлүмдөө үстү-асты кычкылтек айырмасын так баалай алган эмес.
Бөлүмдөр аралык агым ылдамдыктары CFDден алынган. Мисалы, 1-бөлүмдөн 2-бөлүмгө агым 7132 L/саат, 2-бөлүмдөн 3-бөлүмгө 3018 L/саат, 3-бөлүмдөн 4-бөлүмгө 905 L/саат деп берилген. Бөлүм көлөмдөрү да ар башка: биринчи бөлүм 2,103 L, экинчи 1,648 L, үчүнчү 3,650 L, төртүнчү 2,451 L, бешинчи 3,386 L жана жогорку бөлүм башында 0,8095 L деп көрсөтүлгөн. Жогорку бөлүмдүн көлөмү fed-batch азыктандыруусу себептүү убакыт менен өсөт.
Кычкылтек керектөөсү бөлүм боюнча төмөнкүдөй берилген:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Бул жерде \(r_{O,i}\) i-бөлүмдөгү кычкылтек керектөө ылдамдыгын, \(Y_{ox}\) биомасса пайда болушуна карата кычкылтек керектөө коэффициентин, \(\mu_i\) жергиликтүү өзгөчө өсүү ылдамдыгын, \(X_i\) жергиликтүү биомасса концентрациясын, \(O_i\) жергиликтүү эриген кычкылтек концентрациясын, \(K_O\) кычкылтектин жарым каныгуу туруктуусун, \(n_h\) болсо Hill коэффициентин билдирет. Бул теңдеме кычкылтек клетка өсүшү менен байланыштуу керектелерин жана төмөн кычкылтек деңгээлдеринде керектөө жүрүмү кычкылтектин жеткиликтүүлүгүнө сезгич болорун көрсөтөт.
i-бөлүм үчүн эриген кычкылтек балансы төмөнкү түзүлүштө берилген:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Бул теңдемеде \(q_{i\rightarrow j}\) i-бөлүмдөн j-бөлүмгө көлөмдүк агым ылдамдыгын, \(V_i\) i-бөлүмдүн суюк көлөмүн, \(k_{L,i}a_i\) i-бөлүмдөгү көлөмдүк кычкылтек масса өткөрүү коэффициентин, \(O^*\) каныккан эриген кычкылтек концентрациясын, \(O_i\) жергиликтүү эриген кычкылтек концентрациясын билдирет. Теңдемедеги алгачкы мүчөлөр бөлүмдөр аралык ташууну, \(k_La\) мүчөсү газдан суюктукка кычкылтек өтүшүн, акыркы мүчө болсо клеткалардын кычкылтек керектөөсүн көрсөтөт.
Жогорку бөлүмдө көлөм убакыт менен өзгөргөндүктөн суюлтуу термини да кошулат:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Бул термин fed-batch азыктандыруусунан улам жогорку бөлүмгө көлөм кошулганда эриген кычкылтек концентрациясы суюлтуу таасиринен кантип өзгөрөрүн түшүндүрөт.
Кычкылтек масса өткөрүү коэффициенти CFDден алынган гидродинамикалык чоңдуктар менен масштабдалган. Суюк тараптагы масса өткөрүү коэффициенти төмөнкүдөй бааланган:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
Бул жерде \(\varepsilon_i\) i-бөлүмдөгү орточо турбуленттик энергиянын таралуу ылдамдыгын, \(C\) эксперименттик пропорционалдык туруктууну билдирет. Жогорку турбуленттүүлүк көбүнчө көбүкчө-суюктук өз ара аракетин күчөтүп, кычкылтек өткөрүүнү жакшыртышы мүмкүн.
Газ-суюк интерфейс аянты төмөнкүдөй жазылган:
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
Бул жерде \(\phi_{b,i}\) gas holdup маанисин, \(d_{b,i}\) көбүкчө диаметри билдирет. Gas holdup суюктуктун ичинде канча газ фазасы бар экенин көрсөтөт. Көбүрөөк көбүкчө аянты кычкылтек өткөрүү үчүн көбүрөөк интерфейс аянтын билдирет.
Көбүкчө диаметри бөлүмдөр арасында туруктуу деп кабыл алынганда көлөмдүк масса өткөрүү коэффициенти төмөнкүдөй жөнөкөйлөштүрүлгөн:
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Бул жерде \(\eta_i\) CFDден алынган бөлүмдүк гидродинамикалык масса өткөрүү көрсөткүчү. Изилдөөдө бул маанилер ар бир бөлүм үчүн эсептелип, кычкылтек өткөрүү коэффициенттерин бөлүмдөр арасында масштабдоо үчүн колдонулган.
Бул моделдин негизги артыкчылыгы CFDнин деталдуу агым маалыматын толугу менен кымбат жана жай CFD-биореакция симуляциясына айландырбастан пайдаланат. CFD бөлүмдөр кайда болушу керектигин жана алардын ортосундагы агымдар канча экенин аныктайт. Бөлүмдүү модель болсо биомасса, глюкоза, ацетат жана кычкылтек динамикасын тез чечет. Ошентип физикалык мааниси сакталат жана бир нече жолу симуляция жүргүзүүгө жетиштүү эсептөө натыйжалуулугу камсыз болот.
Изилдөөдө эки fed-batch эксперименти жүргүзүлгөн. Fed-Batch 1 де баштапкы иштөө көлөмү 13,5 L болгон. Set маанилер 37°C, 200 rpm, pH 7,0, DO %30 жана аба агымы 5 SLPM деп берилген. Эриген кычкылтек 200–500 rpm аралаштыруу жана 5–20 SLPM аба агымы диапазону менен каскаддык башкаруу стратегиясы аркылуу жөнгө салынган. Азыктандыруу биомасса болжол менен 0,15–0,25 g/Lге жеткенде башталып, кадам сайын көбөйтүлгөн.
Fed-Batch 2 де ыкма негизинен ушундай эле, бирок баштапкы көлөм 14 L болуп такыраак коюлган. Баштапкы OD мааниси Fed-Batch 1 де 0,037 болсо, Fed-Batch 2 де 0,06 болгон. Азыктандыруу стратегиясы да айырмаланган. Fed-Batch 2 болжол менен 1,7 саат кыска жүрүп, Fed-Batch 1 ге караганда %78 жогору максималдуу клетка тыгыздыгына жеткен. Бул айырма эки эксперименттин кычкылтек керектөөсүндө жана башкаруу жүрүмүндө айырмачылыктарды жаратышы мүмкүн болгондуктан моделде эске алынган.
Модель жыйынтыктары биомасса, глюкоза жана ацетат профилдерин жалпысынан жакшы түшүндүргөн. Айрыкча глюкоза керектөөсү жана ацетат өндүрүүдөн кийин ацетатты кайра пайдаланууга өтүү жүрүмү кармалган. Бул E. coli метаболизминде белгилүү overflow metabolism жана acetate cycling жүрүмдөрүнө шайкеш. Fed-Batch 1 де модель болжол менен 14 сааттан кийин ацетат өндүрүшүн төмөн баалаганы айтылган; бул ошол эле мезгилде глюкоза керектөөсүн да төмөн баалоо менен байланыштуу болгон. Ошого карабастан биомасса профилдери эки экспериментте тең жакшы көрсөтүлгөн.
Кычкылтек моделинде CFDден алынган бөлүмдөр аралык агым катыштары Fed-Batch 2 үчүн түз колдонулган. Fed-Batch 1 де аралаштыруу профили башка болгондуктан агым катыштары 0,7 түзөтүү коэффициенти менен көбөйтүлгөн. Бул коэффициент Fed-Batch 1 жана 2 ортосундагы RPM профилинин аянт катышына туура келет. Ошентип модель биринчи эксперименттеги төмөнүрөөк орточо аралаштыруу таасирин көрсөтүүгө аракет кылган.
Модель сенсор турган төмөнкү зонадагы үзгүлтүксүз кычкылтек өлчөөлөрүн, ар башка бийиктиктерге жылдырылган сенсор менен алынган үзгүлтүктүү өлчөөлөрдү жана gassing-out эксперименттериндеги динамикалык кычкылтек жоопторун салыштырган. Негизги жыйынтык — модель бийиктик менен өсүп жаткан кычкылтек тенденциясын туура кармаган. Башкача айтканда, эксперименттердегидей эле моделде төмөнкү зонада кычкылтек төмөн, жогорку зонада жогору болгон. Бул бир сенсор менен башкарылган DO мааниси реактордун бүт көлөмүн өкүлдүк кылбай калышы мүмкүн экенин ачык колдойт.
Изилдөөнүн эң критикалык моделдөө жыйынтыгы — бөлүмдөрдүн жайгашуусу жыйынтыкты олуттуу өзгөртөт. CFD колдогон туура бөлүмдөө экспериментте байкалган болжол менен %30 үстү-асты кычкылтек айырмасын түшүндүрө алган. Альтернативдүү жана физикалык жактан алсызыраак бөлүмдөө болсо болжол менен %10 гана кычкылтек өзгөрүшүн божомолдоп, өзгөчө жогорку сенсор абалындагы өлчөөлөрдү жакшы кармай алган эмес. Бул биореактор моделдөөсүндө “канча бөлүм бар?” деген суроодон маанилүүрөөк суроону чыгарат: “Бөлүм чек аралары агым физикасына ылайыктуу жердеби?”
Gassing-out динамикалык жоопторунун моделдениши да изилдөөнүн күчтүү тарабы. Аэрация кайра башталгандан кийин жогорку зонадагы кычкылтек төмөнкү зонага караганда тезирээк жана чоңураак жогорулашы модель тарабынан жалпысынан кармалган. Бул жогорку зонада кычкылтек өткөрүү жогору болушу мүмкүн экенин көрсөтөт. Айрым эксперименттерде модель орто же төмөнкү зонадагы кычкылтекти төмөн баалаган; изилдөөчүлөр бул айырманы жергиликтүү гидродинамикалык өзгөрмөлүүлүккө, пробанын жайгашуу белгисиздигине жана ар бир сенсор бийиктигин бир гана бөлүм менен көрсөтүүнүн жөнөкөйлөштүрүүчү таасирине байланыштырышат.
Бул изилдөөнүн практикалык жыйынтыгы чоң. Эгер биореактордо сенсор төмөнкү зонада жайгашып, башкаруу системасы бул жерде DO %30 деңгээлин кармаса, жогорку зонадагы клеткалар жогорку кычкылтек чөйрөсүндө болушу мүмкүн. Тескерисинче, ар башка сенсор жайгашуулары башкаруу системасынын аэрация жана аралаштыруу боюнча ар башка жооп беришине алып келиши мүмкүн. Бул клетканын өсүшүнө, метаболикалык кошумча продуктулардын пайда болушуна, белок өндүрүшүнө жана продукт сапатына кыйыр таасир бере алат. Изилдөө продукт сапатын түз өлчөгөн эмес; бирок процесс башкаруу үчүн сенсор жайгашуусу критикалык экенин көрсөтөт.
Масштабды чоңойтуу жагынан да жыйынтыктар маанилүү. Лабораториялык же пилоттук масштабдагы биореактордо да кычкылтек градиенти пайда болсо, чоң өнөр жай көлөмдөрүндө бул таасир андан да татаал болушу мүмкүн. Чоң биореакторлордо клеткалар реактордун ичинде ар башка кычкылтек, субстрат жана pH зоналарынан өтөт. Бул өткөөлдөр клетка метаболизмине таасир этиши мүмкүн. Ошондуктан чакан масштабда “жакшы аралашкан” деп кабыл алынып иштелген процесстер чоң масштабда эмне үчүн күтүлгөндөн башкача жүрөрүн түшүнүү үчүн мындай изилдөөлөр баалуу.
Тарыхый жактан биореактор моделдөөсү көбүнчө бир көлөмдүү же жөнөкөйлөштүрүлгөн аралашуу божомолуна таянган. Бүгүн биофармацевтикалык өндүрүштө сапат, натыйжалуулук жана чыгым басымы өскөн сайын реалдуураак моделдөө ыкмалары керек. CFD жалгыз өзү өтө деталдуу, бирок эсептөө жагынан кымбат болушу мүмкүн. Бөлүмдүү моделдер тез, бирок физикалык жактан туура эмес бөлүнсө адаштырышы мүмкүн. Бул изилдөө эки ыкманы бириктирген жол сунуштайт: CFD агым түзүлүшүн аныктайт, бөлүмдүү модель биологиялык жана кычкылтек динамикасын тез чечет.
Келечекте бул ыкма оптималдуу реактор дизайны, сенсор жайгашуусун тандоо, аралаштыруу жана аэрация стратегиясын оптималдаштыруу, модель негизиндеги башкаруу, масштабды чоңойтуу жана scale-down симулятор дизайны үчүн колдонулушу мүмкүн. Айрыкча биофармацевтикалык өндүрүштө процесстеги чакан айырмалар да продукт сапатына таасир эте алгандыктан, жергиликтүү кычкылтек өлчөөлөрү жана туура тандалган модель түзүлүштөрү дагы маанилүү болуп калат.
Изилдөөнүн күчтүү жактарына эриген кычкылтек градиенттерин ар башка проба бийиктиктеринде түз өлчөө, эки өзүнчө fed-batch экспериментин колдонуу, gassing-out динамикасын моделге кошуу, глюкоза-ацетат-биомасса кинетикасын кычкылтек балансы менен байланыштырууну жана CFD колдогон бөлүмдөө стратегиясын эксперименттик маалымат менен салыштырууну кошууга болот. Изилдөө “градиент бар” деп гана тим болбой, бул градиент эмнеден пайда болушу мүмкүн экенин агым зоналары, бөлүмдөр аралык төмөн дебилер жана бийиктик менен өзгөргөн кычкылтек өткөрүү аркылуу түшүндүрүүгө аракет кылат.
Чектөөлөр да кылдат белгилениши керек. Изилдөө рецензиядан өтпөгөн preprint. Эксперименттер эки fed-batch иши менен чектелген; башка биореактор геометриялары, башка impellerлер, башка микроорганизмдер, башка көлөмдөр жана башка башкаруу стратегиялары үчүн жыйынтыктар түз жалпыланбашы керек. pH градиенттери байкалганы айтылган, бирок бул макалада деталдуу берилген эмес жана моделденген эмес. Биомасса, глюкоза жана ацетат боюнча градиенттер аз деп кабыл алынган; бирок үлгү алуу бир убакта жүргүзүлбөгөндүктөн убактылуу айырмалар жашырылып калышы мүмкүн. Мындан тышкары kLaнын аралаштыруу жана аэрацияга ачык эмпирикалык байланышы моделге түз кошулган эмес, башкаруу мезгилинде натыйжалуу убакытка көз каранды параметр катары каралган.
Изилдөөнүн айтканы мындай: 20 L масштабдагы E. coli fed-batch биореакторлорунда эриген кычкылтек реактор бийиктиги боюнча олуттуу өзгөрүшү мүмкүн; бир чекиттен алынган DO өлчөөсү бүт реакторду көрсөтпөй калышы мүмкүн; CFD менен туура аныкталган бөлүмдүү моделдер бул градиенттерди түшүндүрүүдө пайдалуу. Изилдөөнүн айтпаганы болсо мындай: бардык 20 L биореакторлордо ошол эле деңгээлде кычкылтек градиенти пайда болот, бул градиенттер дайыма продукт сапатын начарлатат же сунушталган модель ар бир биопроцесс үчүн түз жарактуу экени далилденген эмес. Ошондуктан изилдөө жалпы кепилдик эмес, жакшы документтештирилген эксперименттик-моделдөө эскертүүсү катары бааланууга тийиш.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Изилдөөнүн ыкмасы E. coli fed-batch ферментацияларында ар башка бийиктиктерде эриген кычкылтекти өлчөө, глюкоза/ацетат/биомасса өлчөөлөрүн салыштыруу, gassing-out эксперименттери менен кычкылтек өткөрүү жүрүмүн изилдөө жана CFD колдогон алты бөлүмдүү динамикалык модель аркылуу байкоолорду түшүндүрүүгө негизделет.
Эксперименттик система:
| Өзгөчөлүк | Маани / Түшүндүрмө |
|---|---|
| Биореактор | New Brunswick Scientific BioFlo 415 SIP Fermentation System |
| Жалпы идиш көлөмү | 19,5 L |
| Fed-batch иштөө көлөмү | Болжол менен 13,5–14 L |
| Микроорганизм | E. coli BL21 (DE3) pET-VP1 |
| Температура | 37°C |
| pH set point | 7,0 |
| DO set point | %30 |
| Баштапкы аралаштыруу | 200 rpm |
| Башкаруу диапазону | 200–500 rpm аралаштыруу, 5–20 SLPM аба агымы |
Өлчөө жайгашуулары:
| Жайгашуу | Болжолдуу бийиктик | Мааниси |
|---|---|---|
| Төмөнкү | 0,14 m | Эң төмөн DO маанилери байкалган зона |
| Орто | 0,305 m | Орто өлчөө зонасы |
| Жогорку | 0,47 m | Эң жогорку DO маанилери байкалган зона |
Impeller жайгашуулары:
- Болжол менен 0,09 m
- Болжол менен 0,29 m
- Болжол менен 0,51 m
Бул impeller жайгашуусу реактордун ичинде ар башка циркуляция зоналарынын пайда болушуна алып келет. Изилдөөдөгү CFD колдогон модель бөлүм чек араларын ушул циркуляция зоналарынын арасына жайгаштырып, кычкылтек градиенттерин такыраак көрсөтүүгө аракет кылган.
Fed-batch эксперименттери:
| Эксперимент | Баштапкы көлөм | Баштапкы OD | Азыктандыруу стратегиясы | Маанилүү айырма |
|---|---|---|---|---|
| Fed-Batch 1 | 13,5 L | 0,037 | 0,036 → 0,072 → 0,108 → 0,144 L/саат | Узагыраак жүрдү, максималдуу клетка тыгыздыгы төмөн болду |
| Fed-Batch 2 | 14 L | 0,06 | 0,0216 → 0,036 → 0,0504 L/саат | Болжол менен 1,7 саат кыска жүрдү, %78 жогору максималдуу клетка тыгыздыгына жетти |
Метаболит жана биомасса өлчөөлөрү:
- Биомасса OD600 өлчөөсү менен көзөмөлдөнүп, кургак клетка салмагынын калибрлөөсү колдонулган.
- Глюкоза жана ацетат HPLC менен өлчөнгөн.
- Глюкоза рефракциялык индекс детекциясы менен, ацетат/уксус кислотасы UV 210 nm жана/же рефракциялык индекс детекциясы менен аныкталган.
- Төмөнкү жана жогорку үлгү алуу жайгашууларынын ортосунда глюкоза жана ацетат боюнча ачык градиент байкалган эмес.
- Биомасса жогору жакта болжол менен %10 көбүрөөк көрүнгөн, бирок бул айырма өлчөө ызы-чуусу жана мүмкүн болгон көтөрүлүү таасири менен этият чечмеленген.
Эксперименттик эриген кычкылтек градиенттери:
| Эксперимент / Убакыт аралыгы | Төмөнкү-Орто айырма | Орто-Жогорку айырма | Жалпы тенденция |
|---|---|---|---|
| Fed-Batch 1, 8,98–9,05 h | Болжол менен %16 | Болжол менен %14 | DO бийиктик менен жогорулады. |
| Fed-Batch 1, 11,07–11,12 h | Болжол менен %17 | Болжол менен %21 | Тик айырма дагы айкын болду. |
| Fed-Batch 2, 11 башка сенсор алмашуусу | Орточо болжол менен %12 | Орточо болжол менен %15 | Жогорку зона эң жогорку, төмөнкү зона эң төмөн DO маанисин берди. |
Gassing-out эксперименттери:
- Аэрация кыска убакытка токтотулган.
- DO %10 дон төмөн түшкөндө аэрация кайра башталган.
- Бул тесттер төмөнкү, орто жана жогорку сенсор жайгашууларында kLa жана кычкылтек өткөрүү динамикасын баалоо үчүн колдонулган.
- kLa көбүнчө реактордун төмөнкү зонасында төмөн болгон.
- Аэрация кайра башталганда жогорку зонадагы кычкылтек көбүнчө тезирээк жана көбүрөөк жогорулаган.
Кинетикалык моделде колдонулган негизги туюнтмалар:
Биомасса ингибициясы:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Lag/адаптация термини:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Субстрат өтүү функциясы:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Глюкоза жана ацетат өсүү ылдамдыктары:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Жалпы өзгөчө өсүү:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Реакция ылдамдыктары:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Масса баланстары:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Кычкылтек керектөөсү:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Бөлүм боюнча кычкылтек балансы:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Жогорку бөлүм үчүн кошумча көлөм өзгөрүү термини:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Масса өткөрүүнү масштабдоо байланыштары:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Бул туюнтмаларда \(\varepsilon_i\) турбуленттик энергиянын таралуу ылдамдыгын, \(\phi_{b,i}\) gas holdup маанисин, \(d_{b,i}\) көбүкчө диаметрин жана \(\eta_i\) CFDден алынган бөлүмдүк кычкылтек өткөрүү көрсөткүчүн билдирет.
Модель параметрлеринин айрымдары:
| Параметр | Маани | Мааниси |
|---|---|---|
| \(\mu_{max,G}\) | 0,595 h-1 | Глюкозадагы максималдуу өзгөчө өсүү ылдамдыгы |
| \(\mu_{max,A}\) | 0,595 h-1 | Ацетаттагы максималдуу өзгөчө өсүү ылдамдыгы |
| \(K_s\) | 0,038 g/L | Глюкоза Monod туруктуусу |
| \(K_a\) | 0,693 g/L | Ацетат ингибиция туруктуусу |
| \(Y_{xs}\) | 0,361 gX/gS | Глюкозадан биомасса түшүмү |
| \(Y_{ox}\) | 0,352 gO/gX | Биомасса түзүлүшүнө байланышкан кычкылтек керектөө коэффициенти |
| \(K_O\) | 6,000 × 10-4 g/L | Кычкылтек жарым каныгуу туруктуусу |
| \(n_O\) | 10,400 | Кычкылтек сиңирүүдөгү Hill коэффициенти |
CFD колдогон бөлүмдөр аралык агымдар:
| Бөлүм | Жогору агым \(q_{i\rightarrow i+1}\) | Төмөн агым \(q_{i\rightarrow i-1}\) | Көлөм |
|---|---|---|---|
| 1 | 7132 L/саат | – | 2,103 L |
| 2 | 3018 L/саат | 7132 L/саат | 1,648 L |
| 3 | 905 L/саат | 3018 L/саат | 3,650 L |
| 4 | 1544 L/саат | 905 L/саат | 2,451 L |
| 5 | 2118 L/саат | 1544 L/саат | 3,386 L |
| 6 | – | 2118 L/саат | 0,8095 L жана убакыт менен көбөйгөн көлөм |
Негизги моделдөө жыйынтыктары:
- Биомасса, глюкоза жана ацетат профилдери модель тарабынан жалпы жакшы көрсөтүлгөн.
- Модель глюкоза керектөөсү жана ацетат өндүрүүдөн ацетатты кайра пайдаланууга өтүүнү кармаган.
- Эриген кычкылтекти бир чекиттен башкаруу башка бийиктиктерде ошол эле кычкылтек деңгээлин кепилдеген эмес.
- CFD колдогон туура бөлүмдөө эксперименттик кычкылтек градиенттерин сапаттык жактан туура божомолдогон.
- Туура эмес бөлүмдөө стратегиясы өзгөчө жогорку зонадагы кычкылтек өлчөөлөрүн жакшы түшүндүрө алган эмес.
- Gassing-out эксперименттери жогорку зонада кычкылтек өткөрүү ылдамыраак болушу мүмкүн экенин колдогон.
Сүрөттөр жана графиктер эмнени көрсөтөт:
- Биореактор схемасы сенсор жана үлгү алуу чекиттери төмөнкү, орто жана жогорку жайгашууларга кантип коюлганын көрсөтөт. Бул сүрөт изилдөөнүн негизги “сенсор жайгашуусу маанилүү” деген билдирүүсүн түз түшүндүрөт.
- Fed-batch өсүү ийри сызыктары эки эксперимент бирдей жүрбөгөнүн; экинчи эксперимент кыскараак болуп, жогорку клетка тыгыздыгына жеткенин көрсөтөт.
- CFD бөлүмдөө сүрөттөрү циркуляция зоналарынын арасына коюлган бөлүм чек аралары эмне үчүн жакшыраак модель берерин көрсөтөт. Альтернативдүү чек ара тандоосу кычкылтек градиентин алсыз баалайт.
- Глюкоза жана ацетат салыштыруу графиктери бул метаболиттерде үстү-асты айырмалар аз экенин жана моделде бир тектүү деп кабыл алуу негиздүү экенин колдойт.
- Биомасса графиги жогорку зонада бир аз жогору OD тенденциясын көрсөтөт, бирок бул этият чечмелениши керек.
- Кычкылтек градиенти графиктери эриген кычкылтек реактор бийиктиги менен жогорулап, төмөнкү зонада аз каларын ачык көрсөтөт.
- Gassing-out графиктери аэрация токтогондо DO төмөндөп, кайра башталганда калыбына келерин жана бул калыбына келүү ылдамдыгы жайгашууга жараша өзгөрөрүн көрсөтөт.
- Модель-эксперимент салыштыруу графиктери сунушталган бөлүмдүү модель үзгүлтүксүз DO өлчөөлөрүн да, бийиктик өзгөрүшүнө байланышкан кычкылтек градиенттерин да жалпысынан кармай алганын көрсөтөт.
Жалпы техникалык жыйынтык: Изилдөө 20 L масштабдагы E. coli fed-batch биореакторунда глюкоза, ацетат жана биомасса негизинен бир тектүү көрүнгөнү менен эриген кычкылтек бир тектүү болбой калышы мүмкүн экенин көрсөтөт. Ошондуктан биореакторлордо бир гана DO сенсорунун жайгашуусу процесс башкарууда критикалык өзгөрмө катары каралышы керек.
Булак жана Ыкма Жөнүндө Эскертүү
Бул макала Ittisak Promma, Danny Kang, Zahra Negahban, Valerie Ward, Nasser Mohieddin Abukhdeir, Marc G. Aucoin жана Hector Budman даярдаган “Probe Location Matters: Oxygen Gradient Measurements and CFD-Informed Modeling Challenge the Well-Mixed Assumption in Bench-Scale Bioreactors” аттуу изилдөөнүн негизинде даярдалды. Изилдөө University of Waterloo Химиялык инженерия бөлүмүнүн контекстинде жүргүзүлгөн.
Булак түрү — SSRNде жеткиликтүү preprint изилдөө макаласы. Текстте ачык түрдө “This preprint research paper has not been peer reviewed” деп жазылгандыктан, изилдөө рецензиядан өтпөгөн. Ошондуктан жыйынтыктар рецензияланган акыркы басылма катары эмес, эксперименттик өлчөө жана моделдөөгө негизделген preprint изилдөө катары бааланышы керек.
Бул мазмун изилдөөдө берилген биореактор эксперименттерине, E. coli fed-batch шарттарына, эриген кычкылтек өлчөөлөрүнө, gassing-out тесттерине, кинетикалык модель теңдемелерине, CFD колдогон бөлүмдүү модель түзүлүшүнө, сүрөт жана таблица жыйынтыктарына негизделип даярдалды. PDFде жок продукт сапаты, клиникалык өндүрүш ийгилиги, өнөр жай кепилдиги, бардык биореакторлордо ошол эле жыйынтык болот же коммерциялык колдонууга даяр деген сыяктуу дооматтар кошулган жок.
Изилдөө эриген кычкылтек градиенттерин эксперимент жана моделдөө аркылуу деталдуу карап, pH градиенттери да байкалганын, бирок бул макалада деталдуу берилбегенин жана моделденбегенин белгилейт. Ошондуктан pH менен кычкылтектин байланышы келечекте өзүнчө изилдениши керек болгон тема.
Жыйынтыктар колдонулган биореактор геометриясы, impeller жайгашуулары, E. coli штаммы, fed-batch шарттары, сенсор жайгашуулары жана модель божомолдору алкагында жарактуу. Башка масштабдарда, башка реактор дизайнында же башка организмдерде дал ошол градиент маанилери болот деп кабыл алынбашы керек. Бирок изилдөө биопроцессти мониторингдөө жана башкарууда сенсордун жайгашуусун көз жаздымда калтырбоо керектиги жөнүндө күчтүү техникалык эскертүү берет.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген