

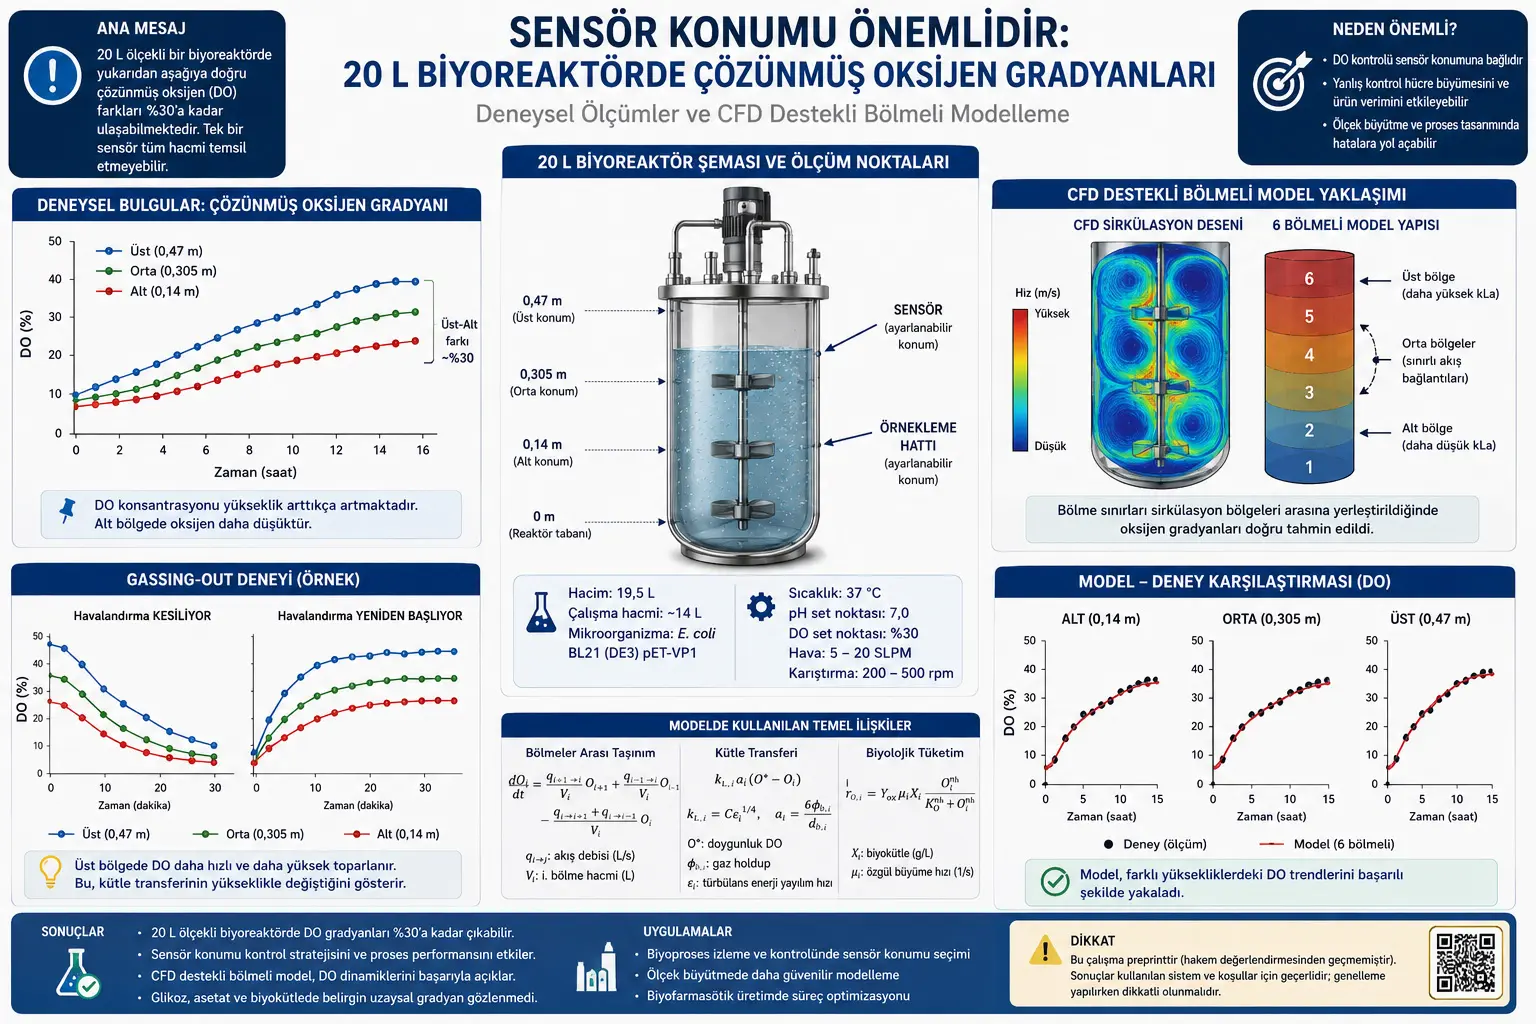
Ushbu tadqiqot kichik va o‘rta hajmdagi bioreaktorlar ko‘pincha taxmin qilinadigan darajada to‘liq aralashmagan bo‘lishi mumkinligini ko‘rsatadi. Tadqiqotchilar 15–20 L sinfidagi bioreaktorda o‘tkazilgan E. coli fed-batch fermentatsiyalarida erigan kislorod reaktor balandligi bo‘ylab sezilarli darajada o‘zgarishi mumkinligini o‘lchagan. Natijalarga ko‘ra, quyi qismdagi erigan kislorod yuqori qismdagiga nisbatan pastroq bo‘lib, ayrim sharoitlarda yuqori-pastki farq taxminan 30% ga yetishi mumkin.
Bu natija muhim, chunki bioreaktorlarda erigan kislorod sensori odatda faqat bitta nuqtadan o‘lchov oladi va boshqaruv tizimi aynan shu o‘lchovga qarab aeratsiya hamda aralashtirishni sozlaydi. Agar sensor quyi zonada joylashgan bo‘lsa, boshqaruv tizimi o‘sha nuqtadagi kislorodni maqsad darajada ushlab turishi mumkin; biroq bu reaktorning butun hajmida bir xil kislorod darajasi mavjud degani emas. Tadqiqot sensor joylashuvi jarayon monitoringi, boshqaruv, modellashtirish va masshtabni oshirish qarorlariga bevosita ta’sir qilishini ko‘rsatadi.
Tadqiqotda glyukoza, atsetat va biomassa o‘lchovlarida sezilarli fazoviy gradientlar kuzatilmagan, biroq erigan kislorod uchun balandlik bo‘ylab muhim farqlar topilgan. Bu farqlarni tushuntirish uchun CFD hisoblaridan olingan olti bo‘linmali dinamik bioreaktor modeli ishlab chiqilgan. Model reaktor ichidagi sirkulyatsiya zonalarini inobatga olib, bo‘linmalar orasidagi oqim nisbatlarini belgilagan va kislorod transferi, hujayra o‘sishi, kislorod iste’moli hamda bo‘linmalararo tashilishni birgalikda hisoblagan.
Tadqiqotning asosiy xulosasi shundan iboratki, 20 L kabi nisbatan kichik bioreaktorlarda ham erigan kislorodning bitta sensor orqali butun hajmni ifodalaydi degan taxmin har doim ham xavfsiz emas. Bu holat ayniqsa biopharmasevtik ishlab chiqarish, vaksina tayyorlash, rekombinant oqsil ishlab chiqarish va sanoat bioprotsesslarni masshtablash jarayonlari uchun juda muhim. Biroq bu ish preprint bo‘lib, pH gradientlari kabi ayrim kuzatuvlar bu maqolada modellashtirilmagan; shu sababli natijalarni ehtiyotkorlik bilan va kontekst bilan birga o‘qish kerak.
Bioreaktorlar — mikroorganizmlar, hujayralar yoki biologik tizimlar boshqariladigan sharoitlarda o‘stiriladigan yopiq jarayon uskunalaridir. Ular vaksina ishlab chiqarish, rekombinant oqsil tayyorlash, ferment ishlab chiqarish, biopharmasevtik mahsulotlar va sanoat fermentatsiyasi kabi sohalarda markaziy rol o‘ynaydi. Bu tizimlarda harorat, pH, oziqa moddalari, aralashtirish, aeratsiya va erigan kislorod kabi o‘zgaruvchilar hujayra o‘sishi, mahsulot chiqishi va mahsulot sifatiga bevosita ta’sir qiladi.
Tadqiqotning chiqish nuqtasi bioreaktorlarda juda ko‘p qo‘llanadigan bir taxminni savol ostiga qo‘yishdir: kichik hajmli bioreaktorlar yaxshi aralashadi va shu sababli reaktor ichidagi konsentratsiyalar har nuqtada taxminan bir xil bo‘ladi degan qarash. Amaliyotda bu taxmin juda foydali bo‘ladi; chunki bitta sensor bilan o‘lchangan pH yoki erigan kislorod qiymati butun reaktorni ifodalaydi degan fikrga asoslanib boshqaruv tizimi qaror qabul qilishi mumkin. Ammo suyuqlikning haqiqiy oqim xatti-harakati, ayniqsa gaz-suyuqlik aralashmasi, impeller ta’siri, pufakchalar taqsimoti va hujayralarning kislorod iste’moli ishtirok etganda, ancha murakkab bo‘lishi mumkin.
Katta sanoat bioreaktorlarda aralashishning to‘liq gomogen emasligi uzoq vaqtdan beri ma’lum muammo hisoblanadi. Katta hajmlarda aralashtirish vaqti cho‘ziladi, oziqa moddalari hamda kislorod har nuqtaga bir xil tezlikda yetib bormaydi, hujayralar turli mikro-muhitlardan o‘tadi. Bunga qarama-qarshi ravishda 15–20 L kabi laboratoriya yoki pilot miqyosiga yaqin bioreaktorlarda bu notekisliklar odatda e’tibordan chetda qoladi. Ushbu tadqiqot aynan shu qarashni savol ostiga qo‘yadi va 20 L sinfida ham erigan kislorod gradientlari hosil bo‘lishi mumkinligini eksperimental va modellashtirish asosida ko‘rsatadi.
Tadqiqotda qo‘llangan bioreaktor New Brunswick Scientific BioFlo 415 SIP Fermentation System bo‘lib, 19,5 L sig‘imli tizim sifatida berilgan. Fed-batch tajribalarda ishchi hajm taxminan 13,5–14 L oralig‘ida saqlangan. Mikroorganizmlar sifatida E. coli BL21 (DE3) pET-VP1 ishlatilgan. E. coli biotexnologiya va farmasevtik ishlab chiqarishda keng qo‘llanadigan model hamda ishlab chiqaruvchi organizm bo‘lgani uchun tanlangan. Bu tanlov tadqiqotni faqat asosiy oqim mexanikasi emas, balki real bioprotsess ishlab chiqarish nuqtayi nazaridan ham mazmunli qiladi.
Tajribalarda erigan kislorod sensori va namuna olish moslamasining balandligini o‘zgartirish mumkin bo‘lgan. O‘lchovlar uch asosiy balandlik zonasida amalga oshirilgan: pastki zona taxminan 0,14 m, o‘rta zona taxminan 0,305 m va yuqori zona taxminan 0,47 m balandlikka to‘g‘ri keladi. Reaktorda impellerlar taxminan 0,09 m, 0,29 m va 0,51 m balandliklarga joylashtirilgan. Bu joylashuv erigan kislorod farqlari faqat vertikal masofaga emas, balki impellerlar hosil qilgan sirkulyatsiya zonalariga ham bog‘liqligini ko‘rsatadi.
Tadqiqotning birinchi muhim eksperimental natijasi glyukoza, atsetat va biomassa uchun aniq fazoviy farqlar juda kichik bo‘lganidir. Fed-batch tajribalarda turli balandliklardan olingan namunalar bo‘yicha glyukoza va atsetat konsentratsiyalari katta darajada o‘xshash bo‘lgan. Biomassa o‘lchovlarida yuqori zonada taxminan 10% ga yuqoriroq optik zichlik tendensiyasi kuzatilgan; biroq bu farq o‘lchov shovqini doirasida bo‘lishi va hujayralarning ko‘tarilish/ zichlik ta’siri bilan yuqori qismda biroz ko‘proq to‘planishi mumkinligi ehtiyotkorlik bilan talqin qilingan. Shu sababli modellashda biomassa, glyukoza va atsetatning fazoviy jihatdan gomogen ekanligi qabul qilingan.
Erigan kislorod esa boshqacha xatti-harakat ko‘rsatgan. Tajribalarda erigan kislorod reaktor balandligi bo‘ylab oshib borgani, ya’ni eng past kislorod pastki zonada, eng yuqori kislorod esa yuqori zonada o‘lchangani aniqlangan. Birinchi fed-batch ishida 8,98–9,05 soat oralig‘ida pastki-o‘rta farq taxminan 16%, o‘rta-yuqori farq esa taxminan 14% bo‘lgan. Shu ishdagi 11,07–11,12 soat oralig‘ida pastki-o‘rta farq taxminan 17%, o‘rta-yuqori farq esa taxminan 21% ga chiqqan. Ikkinchi fed-batch ishida sensor balandligi 11 marta o‘zgartirilgan; o‘rtacha pastki-o‘rta farq taxminan 12%, o‘rta-yuqori farq esa taxminan 15% bo‘lgan. Ikkala tajribada ham umumiy tendensiya bir xil: erigan kislorod yuqorida ko‘proq, pastda esa kamroq.
Bu natijani oddiy bir qiyos bilan tushunish mumkin: xonadagi faqat bitta nuqtadagi haroratni o‘lchab, butun xona bir xil issiqlikda degan xulosaga kelish har doim ham to‘g‘ri bo‘lavermaydi. Isitkich, konditsioner yoki havo oqimi tufayli xonaning ayrim qismlari issiqroq yoki sovuqroq bo‘lishi mumkin. Bioreaktorda ham bitta erigan kislorod sensori faqat o‘rnatilgan nuqtadagi kislorodni o‘lchaydi. Agar reaktorda yuqoridan pastga kislorod farqi bo‘lsa, sensor joylashuvi butun boshqaruv strategiyasining talqinini o‘zgartiradi.
Tadqiqotning bioprotsess nuqtayi nazaridan eng muhim jihati shundaki, erigan kislorod boshqaruv tizimi odatda sensor joylashgan nuqtadagi qiymatni maqsad set nuqtaga olib kelishga urinadi. Ushbu ishda boshqaruv set nuqtasi 30% DO qilib belgilangan va modelda sensor joylashgan bo‘linmadagi erigan kislorod set qiymati quyidagicha ifodalangan:
\[ O_2(t) = O^{set}_2 = 0.0018 \, g/L \]
Bu yerda \(O_2(t)\) sensor joylashgan ikkinchi bo‘linmadagi vaqtga bog‘liq erigan kislorod konsentratsiyasini, \(O^{set}_2\) esa boshqaruv set nuqtasini bildiradi. Bu ifoda boshqaruv tizimi faol bo‘lganda sensor joylashgan bo‘linmadagi kislorod maqsad qiymatda ushlab turilganini anglatadi. Ammo tadqiqot boshqa bo‘linmalarda kislorod bu qiymatdan farq qilishi mumkinligini ko‘rsatadi.
Tajribalar davomida “gassing-out” sinovlari ham o‘tkazilgan. Bu sinovlarda aeratsiya qisqa muddatga to‘xtatilgan, erigan kislorod 10% dan pastga tushgach, aeratsiya qayta yoqilgan. Odatda bunday sinovlar kLa, ya’ni hajmiy kislorod transfer koeffitsientini baholash uchun ishlatiladi. kLa gaz fazadan suyuqlikka kislorod o‘tish samaradorligini bildiruvchi asosiy bioreaktor parametri hisoblanadi. kLa yuqori bo‘lsa, kislorod reaktor suyuqligiga tezroq o‘tadi; past bo‘lsa, hujayralarning kislorod talabi qondirilmay qolishi mumkin.
Tadqiqotda gassing-out tajribalari nafaqat bitta umumiy kLa qiymatini baholash, balki turli balandliklardagi dinamik kislorod javobini tushunish uchun ham ishlatilgan. Aeratsiya to‘xtaganda erigan kislorod hujayralar kislorod iste’moli va bo‘linmalararo qayta taqsimlanish sababli pasayadi. Aeratsiya qayta boshlanganida esa kislorod yana ko‘tarila boshlaydi. Bu ko‘tarilish tezligi o‘sha zonadagi gaz-suyuqlik massa almashinuvi, pufakchalar taqsimoti, aralashish va biologik kislorod iste’moli haqida ma’lumot beradi.
Gassing-out natijalari kLa qiymatlari odatda reaktorning pastki qismida kamroq bo‘lishini ko‘rsatgan. Bu holat pastki zonada erigan kislorodning kamroq o‘lchanishi bilan mos keladi. Yuqori zonada gaz pufakchalari, gaz hold-up yoki kislorod transfer maydoni samaraliroq bo‘lishi yuqoridagi erigan kislorodning yuqoriroq qolishiga hissa qo‘shgan bo‘lishi mumkin. Tadqiqot modeli ham shu talqinni qo‘llab-quvvatlaydigan tarzda balandlikka bog‘liq kislorod transfer farqlarini inobatga olgan.
Modellash qismi ikki asosiy qatlamdan iborat. Birinchi qatlam E. coli kulturasining biomassa, glyukoza va atsetat dinamikasini tushuntiruvchi kinetik modeldir. Ikkinchi qatlam esa erigan kislorodning reaktor ichida bo‘linmadan bo‘linmaga qanday o‘zgarishini tushuntiruvchi CFD asosidagi bo‘linmali modeldir. Shu tariqa biologik o‘sish va kislorod iste’moli gidrodinamik tashilish bilan birgalikda ko‘rib chiqilgan.
Klassik Monod kinetikasi mikroorganizmlarning substratga bog‘liq o‘sishini tushuntirish uchun keng qo‘llanadigan modeldir. Biroq tadqiqotda faqat oddiy Monod ifodasi glyukoza, atsetat va biomassa dinamikalarini yetarli darajada tushuntirmasligi qayd etilgan. Buning sababi E. coli o‘sishida lag/adaptatsiya xatti-harakati, yuqori biomassada o‘sish inhibisiyasi va glyukoza-atsetat o‘rtasidagi metabolik o‘tish kabi qo‘shimcha mexanizmlarning mavjudligidir.
Shu sababli modelda avval biomassa bilan bog‘liq inhibisiya hadi kiritilgan:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Bu yerda \(f_{inh}\) o‘sish inhibisiyasi omilini, \(X\) biomassa konsentratsiyasini, \(k_x\) inhibisiya yaqqollashadigan biomassa darajasini, \(n_x\) esa inhibisiyaning keskinligini belgilovchi darajani ifodalaydi. Biomassa oshgani sari hujayra o‘sishini cheklovchi muhit sharoitlari yuzaga kelishi mumkin; bu had shu ta’sirni modelga qo‘shadi.
Lag/adaptatsiya xatti-harakati uchun avval quyidagi yordamchi funksiya ta’riflangan:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
So‘ng lag omili quyidagicha berilgan:
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Bu yerda \(f_{lag}\) hujayralarning dastlabki moslashuv ta’sirini, \(A_1\) past asimptotik qiymatni, \(w\) shakl parametrini, \(X_\beta\) esa siljitish parametrini bildiradi. Bu ifoda hujayralar muhitga darhol maksimal tezlikda moslashmasligini, balki muayyan biomassa va vaqt ta’siri bilan o‘sish xatti-harakati bosqichma-bosqich o‘zgarishini anglatadi.
Atsetat iste’molini glyukoza darajasiga qarab tartibga solish uchun substrat almashish funksiyasi kiritilgan:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Bu yerda \(S\) glyukoza konsentratsiyasini, \(k_h\) glyukozadan atsetat iste’moliga o‘tishni belgilovchi konstantani, \(n_h\) esa o‘tishning keskinligini ifodalaydi. Glyukoza yuqori bo‘lganda E. coli odatda glyukozani ustuvor ravishda ishlatadi; atsetat iste’moli bostirilishi mumkin. Glyukoza kamayganda atsetatni qayta ishlatish faollashadi. Bu xatti-harakat diauxic growth, ya’ni ikki substratning ketma-ket ishlatilishi va metabolik o‘tish sifatida ma’lum.
Glyukoza va atsetat bo‘yicha xos o‘sish tezliklari tadqiqotda quyidagicha ifodalangan:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Bu yerda \(\mu_g\) glyukozaga bog‘liq xos o‘sish tezligini, \(\mu_a\) atsetatga bog‘liq xos o‘sish tezligini, \(\mu_{max,G}\) glyukoza uchun maksimal xos o‘sish tezligini, \(\mu_{max,A}\) atsetat uchun maksimal xos o‘sish tezligini, \(K_s\) glyukozaning Monod konstantasini, \(A\) atsetat konsentratsiyasini, \(K_a\) atsetat inhibisiya konstantasini va \(K_{a2}\) atsetat qabul qilish uchun Monod konstantasini bildiradi.
Umumiy samarali xos o‘sish tezligi quyidagicha ta’riflangan:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Bu tenglama umumiy o‘sish glyukoza va atsetat hissalaridan tashkil topishini, biroq hujayralarning adaptatsiya holati bu umumiy o‘sishga qo‘shimcha ta’sir qilishini ko‘rsatadi.
Biomassa hosil bo‘lishi, glyukoza iste’moli va atsetat ishlab chiqilishi/ iste’moli uchun hajmiy reaksion tezliklar quyidagicha berilgan:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Bu yerda \(r_X\) biomassa hosil bo‘lish tezligini, \(r_S\) glyukoza iste’mol tezligini, \(r_A\) atsetat ishlab chiqilishi/iste’mol tezligini, \(Y_{xs}\) glyukozadan biomassaga o‘tish samaradorligini, \(Y_{xa}\) glyukoza o‘sishi bilan bog‘liq atsetat hosil bo‘lish koeffitsientini, \(Y_{xa2}\) atsetat iste’moli bilan bog‘liq biomassaga o‘tish samaradorligini, \(m_x\) esa parvarish (maintenance) koeffitsientini bildiradi.
Fed-batch sharoitida reaktorga oziqlantirish qo‘shilgani va hajm o‘zgargani sababli dinamik massa balanslari hajm o‘zgarish hadi bilan yoziladi:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Bu yerda \(V\) reaktor hajmini, \(dV/dt\) hajmning vaqt bo‘yicha o‘zgarishini, \(F_S(t)\) glyukoza oziqlantirish oqimini, \(S_0\) esa oziqlantirish eritmasidagi glyukoza konsentratsiyasini bildiradi. Bu tenglamalar fed-batch jarayonlarda faqat reaksiyalar emas, balki tizimga qo‘shilayotgan hajmning suyultirish ta’siri ham hisobga olinishi kerakligini ko‘rsatadi.
Kislorod gradientini modellashtirish uchun reaktor olti gorizontal bo‘linmaga ajratilgan. Har bir bo‘linma o‘z ichida yaxshi aralashgan CSTR sifatida qabul qilingan; ammo bo‘linmalar orasida cheklangan oqim mavjud. Bu yondashuv to‘liq CFD kabi og‘ir hisoblash talab qilmaydi, biroq faqat bitta hajmli “well-mixed” modeldan ancha realistikdir. Eng muhim nuqta shundaki, bo‘linma chegaralari tasodifiy tanlanmagan. Chegaralar CFD simulyatsiyalaridan olingan sirkulyatsiya zonalari orasiga joylashtirilgan.
Tadqiqotda ikkita turli bo‘linmalash strategiyasi solishtirilgan. Birinchisida chegaralar sirkulyatsiya zonalari orasiga qo‘yilgan. Ikkinchisida chegaralar sirkulyatsiya zonalarining markazlariga yaqin joylashtirilgan. Natijalar to‘g‘ri kislorod gradientlarini ushlash uchun chegaralar sirkulyatsiya zonalari orasida bo‘lishi kerakligini ko‘rsatgan. Chunki bu zonalar orasidagi oqim nisbatlari past bo‘lib, yetarli aralashmaslik aynan shu joylarda shakllanadi. Noto‘g‘ri bo‘linmalash yuqori-pastki kislorod farqini to‘g‘ri baholay olmagan.
Bo‘linmalararo oqim nisbatlari CFD orqali olingan. Masalan, 1-bo‘linmadan 2-bo‘linmaga oqim 7132 L/soat, 2-bo‘linmadan 3-bo‘linmaga 3018 L/soat, 3-bo‘linmadan 4-bo‘linmaga 905 L/soat deb berilgan. Bo‘linma hajmlari ham turlicha: birinchi bo‘linma 2,103 L, ikkinchi 1,648 L, uchinchi 3,650 L, to‘rtinchi 2,451 L, beshinchi 3,386 L va yuqori bo‘linma dastlab 0,8095 L sifatida berilgan. Yuqori bo‘linma hajmi fed-batch oziqlantirish sababli vaqt o‘tishi bilan ortib boradi.
Kislorod iste’moli bo‘linma asosida quyidagicha ifodalangan:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Bu yerda \(r_{O,i}\) i-bo‘linmadagi kislorod iste’moli tezligini, \(Y_{ox}\) biomassa hosil bo‘lishiga nisbatan kislorod iste’mol koeffitsientini, \(\mu_i\) mahalliy xos o‘sish tezligini, \(X_i\) mahalliy biomassa konsentratsiyasini, \(O_i\) mahalliy erigan kislorod konsentratsiyasini, \(K_O\) kislorod yarim to‘yinganlik konstantasini, \(n_h\) esa Hill koeffitsientini bildiradi. Bu tenglama kislorodning hujayra o‘sishi bilan bog‘liq iste’mol qilinishini va past kislorod darajalarida iste’mol xatti-harakati kislorod mavjudligiga sezgir bo‘lishini ko‘rsatadi.
i-bo‘linma uchun erigan kislorod balansi quyidagi tuzilmaga ega:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Bu tenglamada \(q_{i\rightarrow j}\) i-bo‘linmadan j-bo‘linmaga hajmiy oqim nisbatini, \(V_i\) i-bo‘linmaning suyuqlik hajmini, \(k_{L,i}a_i\) i-bo‘linmadagi hajmiy kislorod massa almashinuvi koeffitsientini, \(O^*\) to‘yinganlikdagi erigan kislorod konsentratsiyasini, \(O_i\) esa mahalliy erigan kislorod konsentratsiyasini bildiradi. Tenglamadagi dastlabki hadlar bo‘linmalararo tashilishni, \(k_La\) hadi gazdan suyuqlikka kislorod transferini, oxirgi had esa hujayralarning kislorod iste’molini ifodalaydi.
Yuqori bo‘linmada hajm vaqt o‘tishi bilan o‘zgargani uchun suyultirish hadi ham qo‘shiladi:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Bu had fed-batch oziqlantirish sababli yuqori bo‘linmaga hajm qo‘shilganda erigan kislorod konsentratsiyasining suyultirish ta’siridan qanday o‘zgarishini tushuntiradi.
Kislorod massa almashinuvi koeffitsienti CFD’dan olingan gidrodinamik kattaliklar asosida masshtablangan. Suyuqlik tomoni massa almashinuvi koeffitsienti quyidagicha baholangan:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
Bu yerda \(\varepsilon_i\) i-bo‘linmadagi o‘rtacha turbulent energiya tarqalish tezligini, \(C\) esa tajribaviy proporsionallik konstantasini bildiradi. Ko‘proq turbulentlik, odatda pufakcha-suyuqlik o‘zaro ta’sirini kuchaytirib, kislorod transferini oshirishi mumkin.
Gaz-suyuqlik interfeys maydoni quyidagicha yozilgan:
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
Bu yerda \(\phi_{b,i}\) gaz hold-up darajasini, \(d_{b,i}\) esa pufakcha diametrini ifodalaydi. Gaz hold-up — suyuqlik ichida qancha gaz faza mavjudligini ko‘rsatadi. Ko‘proq pufakcha maydoni kislorod transferi uchun ko‘proq interfeys deganidir.
Pufakcha diametri bo‘linmalar orasida doimiy deb qabul qilinganda, hajmiy massa almashinuvi koeffitsienti quyidagicha soddalashtirilgan:
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Bu yerda \(\eta_i\) CFD’dan olingan bo‘linma asosidagi gidrodinamik massa almashinuvi ko‘rsatkichini bildiradi. Tadqiqotda bu qiymatlar har bir bo‘linma uchun hisoblab chiqilgan va kislorod transfer koeffitsientlarini bo‘linmalar bo‘yicha masshtablashda ishlatilgan.
Ushbu modelning asosiy afzalligi CFD’ning batafsil oqim ma’lumotlarini to‘liq qimmat va sekin CFD-bioreaksiya simulyatsiyasiga aylantirmasdan foydalanishidadir. CFD bo‘linmalar qayerda bo‘lishi kerakligini va ular orasidagi oqimlar qanchalik katta ekanini aniqlaydi. Bo‘linmali model esa biomassa, glyukoza, atsetat va kislorod dinamikalarini tezroq yechadi. Shunday qilib, fizik ma’no saqlanadi va takroriy simulyatsiyalar uchun hisoblash samaradorligi ta’minlanadi.
Tadqiqotda ikkita fed-batch tajriba olib borilgan. Fed-Batch 1 da boshlang‘ich ishchi hajm 13,5 L bo‘lgan. Set qiymatlar 37°C, 200 rpm, pH 7,0, DO 30% va havo oqimi 5 SLPM sifatida berilgan. Erigan kislorod 200–500 rpm aralashtirish va 5–20 SLPM havo oqimi oralig‘idagi bosqichma-bosqich boshqaruv strategiyasi bilan tartibga solingan. Oziqlantirish biomassa taxminan 0,15–0,25 g/L ga yetganda boshlangan va bosqichma-bosqich oshirilgan.
Fed-Batch 2 da usul asosan o‘xshash bo‘lgan, biroq boshlang‘ich hajm 14 L qilib aniqroq ushlangan. Boshlang‘ich OD qiymati Fed-Batch 1 da 0,037 bo‘lgan bo‘lsa, Fed-Batch 2 da 0,06 bo‘lgan. Oziqlantirish strategiyasi ham boshqacha. Fed-Batch 2 taxminan 1,7 soatga qisqaroq davom etgan va Fed-Batch 1 ga nisbatan 78% yuqoriroq maksimal hujayra zichligiga yetgan. Bu farq ikki tajribaning kislorod iste’moli va boshqaruv xatti-harakatida turlicha natijalar berishi mumkinligi sababli modelda hisobga olingan.
Model natijalari biomassa, glyukoza va atsetat profillarini umuman olganda yaxshi tushuntirgan. Ayniqsa glyukoza iste’moli va atsetat ishlab chiqilishidan keyingi atsetatni qayta ishlatishga o‘tish xatti-harakati ushlangan. Bu E. coli metabolizmidagi overflow metabolism va atsetat cycling deb ataladigan hodisalar bilan mos keladi. Fed-Batch 1 da model taxminan 14 soatdan keyin atsetat ishlab chiqarishni past baholagani aytilgan; bu holat o‘sha davrda glyukoza iste’molini ham past baholash bilan bog‘langan. Shunga qaramay, biomassa profillari ikkala tajribada ham yaxshi ifodalangan.
Kislorod modelida CFD’dan olingan bo‘linmalararo oqim nisbatlari Fed-Batch 2 uchun bevosita ishlatilgan. Fed-Batch 1 da esa aralashtirish profili boshqacha bo‘lgani sababli oqim nisbatlari 0,7 tuzatish koeffitsienti bilan ko‘paytirilgan. Bu koeffitsient Fed-Batch 1 va 2 o‘rtasidagi RPM profil maydoni nisbatiga mos keladi. Shu orqali model birinchi tajribada o‘rtacha aralashtirish ta’siri pastroq bo‘lganini ifodalashga uringan.
Model sensor joylashgan pastki bo‘linmadagi uzluksiz kislorod o‘lchovlarini, turli balandliklarga ko‘chirilgan sensor bilan olingan oraliqli o‘lchovlarni va gassing-out tajribalaridagi dinamik kislorod javoblarini solishtirgan. Asosiy natija modelning balandlik bilan oshuvchi kislorod tendensiyasini to‘g‘ri ushlaganidir. Ya’ni tajribalarda bo‘lgani kabi modelda ham pastki zonada kislorod past, yuqori zonada esa yuqori bo‘lgan. Bu bitta sensor bilan boshqariladigan DO qiymati reaktorning butun hajmini ifodalamay qolishi mumkinligini ravshan ko‘rsatadi.
Tadqiqotning eng muhim modellashtirish xulosasi bo‘linmalash joylashuvi natijani sezilarli o‘zgartirishi bo‘lganidir. CFD asosidagi to‘g‘ri bo‘linmalash eksperimental ravishda kuzatilgan taxminan 30% yuqori-pastki kislorod farqini tushuntira olgan. Muqobil va fizik jihatdan sustroq bo‘linmalash esa faqat taxminan 10% atrofida kislorod o‘zgarishini bashorat qilgan va ayniqsa yuqori sensorga oid o‘lchovlarni yaxshi ushlamagan. Bu bioreaktor modellashtirishda “qancha bo‘linma bor?” degan savoldan ko‘ra muhimroq savolni ko‘ndalang qo‘yadi: “Bo‘linma chegaralari oqim fizikasi bo‘yicha to‘g‘ri joydami?”
Gassing-out dinamik javoblarini modellashtirish ham tadqiqotning kuchli tomonlaridan biridir. Aeratsiya qayta boshlanganidan so‘ng yuqori bo‘linmadagi kislorod pastki bo‘linmaga nisbatan tezroq va kattaroq oshish ko‘rsatishi model tomonidan umumiy tarzda ushlangan. Bu yuqori zonada kislorod transferi yuqoriroq ekanligini anglatadi. Ayrim tajribalarda model o‘rta yoki pastki zonada kislorodni pastroq baholagan; tadqiqotchilar bu farqni lokal gidrodinamik tebranishlar, prob joylashuvi noaniqligi va har bir sensor balandligini bitta bo‘linma bilan ifodalashning soddalashtiruvchi ta’siri bilan izohlaydi.
Ushbu tadqiqotning amaliy natijasi katta. Agar bioreaktorda sensor pastki zonada bo‘lsa va boshqaruv tizimi shu yerda DO 30% ni ushlab tursa, yuqori zonada hujayralar yuqoriroq kislorod muhitida bo‘lishi mumkin. Aksincha, turli sensor joylashuvlari boshqaruv tizimining turlicha aeratsiya va aralashtirish javoblarini yuzaga keltirishi mumkin. Bu hujayra o‘sishi, metabolik yon mahsulotlar hosil bo‘lishi, oqsil ishlab chiqarish va mahsulot sifatiga bilvosita ta’sir qilishi mumkin. Tadqiqot mahsulot sifatini bevosita o‘lchamagan; biroq jarayonni boshqarish nuqtayi nazaridan sensor joylashuvi muhim ekanini ko‘rsatadi.
Masshtabni oshirish nuqtayi nazaridan ham natijalar muhim. Agar laboratoriya yoki pilot miqyosdagi bioreaktorda ham kislorod gradienti hosil bo‘lsa, bundan kattaroq sanoat hajmlarida bu ta’sir yanada murakkab bo‘lishi kutiladi. Katta bioreaktorlarda hujayralar reaktor ichida turli kislorod, substrat va pH zonalaridan o‘tishi mumkin. Bu o‘tishlar hujayra metabolizmini o‘zgartiradi. Shuning uchun kichik miqyosda “yaxshi aralashgan” deb qabul qilingan jarayonlar nega katta miqyosda kutilganidek ishlamasligini tushunish uchun bunday tadqiqotlar juda qimmatli.
Ilgari bioreaktor modellashtirish ko‘pincha bitta hajmli yoki soddalashtirilgan aralashish taxminlariga asoslangan edi. Bugungi kunda esa biopharmasevtik ishlab chiqarishda sifat, samaradorlik va xarajat bosimi oshgani sari yanada realistik modellashtirish usullariga ehtiyoj ortmoqda. CFD o‘zi juda batafsil, biroq hisoblash jihatidan juda qimmat bo‘lishi mumkin. Bo‘linmali modellar esa tez ishlaydi, ammo fizik jihatdan noto‘g‘ri bo‘linmalash qilinsa, chalg‘itishi mumkin. Ushbu tadqiqot ikkala yondashuvni birlashtirgan yo‘lni taklif qiladi: CFD oqim tuzilmasini belgilaydi, bo‘linmali model esa biologik va kislorod dinamikalarini tez hisoblaydi.
Kelajak nuqtayi nazaridan bu yondashuv optimal reaktor dizayni, sensor joylashuvini tanlash, aralashtirish va aeratsiya strategiyasini optimallashtirish, modelga asoslangan boshqaruv, masshtablash va scale-down simulyatorlarini loyihalash uchun ishlatilishi mumkin. Ayniqsa biopharmasevtik ishlab chiqarishda jarayonning kichik farqlari ham mahsulot sifatiga ta’sir qilishi mumkinligi sababli, lokal kislorod o‘lchovlari va yaxshi tanlangan model tuzilmalari yanada muhim bo‘lib boradi.
Tadqiqotning kuchli tomonlari orasida erigan kislorod gradientlarini bevosita turli prob balandliklarida o‘lchash, ikki alohida fed-batch tajriba foydalanish, gassing-out dinamikalarini modelga kiritish, glyukoza-atsetat-biomassa kinetikasini kislorod balansi bilan bog‘lash va CFD asosidagi bo‘linmalash strategiyasini eksperimental ma’lumotlar bilan solishtirish bor. Ish faqat “gradient bor” demaydi, balki u qanday qilib oqim zonalari, bo‘linmalararo past oqimlar va balandlikka qarab o‘zgaruvchi kislorod transferi orqali yuzaga kelishi mumkinligini tushuntirishga urinadi.
Cheklovlar ham ehtiyotkorlik bilan qayd etilishi kerak. Tadqiqot hakamlikdan o‘tmagan preprintdir. Tajribalar ikki fed-batch ish asosida olib borilgan; turli bioreaktor geometriyalari, turli impellerlar, turli mikroorganizmlar, turli hajmlar va turli boshqaruv strategiyalari uchun natijalar bevosita umumlashtirilmasligi kerak. pH gradientlari kuzatilgani aytilgan, biroq bu maqolada batafsil ko‘rsatilmagan va modellashtirilmagan. Biomassa, glyukoza va atsetat uchun gradientlar kichik deb qabul qilingan; ammo namuna olish bir vaqtda amalga oshirilmagani vaqtinchalik farqlarni yashirgan bo‘lishi mumkin. Shuningdek, kLa aralashtirish va aeratsiyaga ochiq empirik bog‘lanish sifatida modelga bevosita kiritilmagan, balki boshqaruv davrida vaqtga bog‘liq samarali parametr sifatida ko‘rib chiqilgan.
Tadqiqotning aytgan gapi shuki: 20 L miqyosdagi E. coli fed-batch bioreaktorlarida erigan kislorod reaktor balandligi bo‘ylab sezilarli darajada o‘zgarishi mumkin; bitta nuqtadan olingan DO o‘lchovi butun reaktorni ifodalamay qolishi mumkin; CFD bilan to‘g‘ri aniqlangan bo‘linmali modellar bu gradientlarni tushuntirishda foydalidir. Tadqiqotning aytmagan gapi esa shuki: barcha 20 L bioreaktorlarda aynan bir xil nisbatlarda kislorod gradienti hosil bo‘ladi, bu gradientlar har doim mahsulot sifatini buzadi yoki tavsiya etilgan model har qanday bioprotsess uchun bevosita amal qiladi, degan xulosa isbotlangan emas. Shu sababli bu ish umumlashtirilgan kafolat emas, balki puxta hujjatlashtirilgan eksperimental-modellashtirish ogohlantirishi sifatida baholanishi kerak.
Tadqiqot usuli va natijalari
Tadqiqot usuli E. coli fed-batch fermentatsiyalarida turli balandliklarda erigan kislorodni o‘lchash, glyukoza/atsetat/biomassani solishtirish, gassing-out tajribalari orqali kislorod transfer xatti-harakatini o‘rganish va CFD asosidagi olti bo‘linmali dinamik model yordamida bu kuzatuvlarni tushuntirishga qurilgan.
Tajriba tizimi:
| Xususiyat | Qiymat / Izoh |
|---|---|
| Bioreaktor | New Brunswick Scientific BioFlo 415 SIP Fermentation System |
| Umumiy hajm | 19,5 L |
| Fed-batch ishchi hajm | Taxminan 13,5–14 L |
| Mikroorganizmlar | E. coli BL21 (DE3) pET-VP1 |
| Harorat | 37°C |
| pH set nuqtasi | 7,0 |
| DO set nuqtasi | 30% |
| Boshlang‘ich aralashtirish | 200 rpm |
| Boshqaruv oralig‘i | 200–500 rpm aralashtirish, 5–20 SLPM havo oqimi |
O‘lchov joylari:
| Joylashuv | Taxminiy balandlik | Ma’nosi |
|---|---|---|
| Pastki | 0,14 m | Eng past DO qiymatlari kuzatilgan zona |
| O‘rta | 0,305 m | Oraliq o‘lchov zonasi |
| Yuqori | 0,47 m | Eng yuqori DO qiymatlari kuzatilgan zona |
Impeller joylashuvi:
- Taxminan 0,09 m
- Taxminan 0,29 m
- Taxminan 0,51 m
Bu impeller joylashuvi reaktor ichida turli sirkulyatsiya zonalari paydo bo‘lishiga olib keladi. Tadqiqotdagi CFD asosidagi model bo‘linma chegaralarini ana shu sirkulyatsiya zonalari orasiga joylashtirib, kislorod gradientlarini aniqroq ifodalashga urinadi.
Fed-batch tajribalari:
| Tajriba | Boshlang‘ich hajm | Boshlang‘ich OD | Oziqlantirish strategiyasi | Muhim farq |
|---|---|---|---|---|
| Fed-Batch 1 | 13,5 L | 0,037 | 0,036 → 0,072 → 0,108 → 0,144 L/soat | Ko‘proq davom etdi, maksimal hujayra zichligi pastroq bo‘ldi |
| Fed-Batch 2 | 14 L | 0,06 | 0,0216 → 0,036 → 0,0504 L/soat | Taxminan 1,7 soat qisqaroq, maksimal hujayra zichligi 78% yuqori |
Metabolit va biomassa o‘lchovlari:
- Biomassa OD600 o‘lchovi orqali kuzatilgan va quruq hujayra og‘irligi kalibrlashi ishlatilgan.
- Glyukoza va atsetat HPLC bilan o‘lchangan.
- Glyukoza refraktiv indeks deteksiyasi orqali, atsetat / sirka kislota esa UV 210 nm va/yoki refraktiv indeks deteksiyasi orqali aniqlangan.
- Pastki va yuqori namuna olish nuqtalari orasida glyukoza va atsetat uchun aniq gradient kuzatilmagan.
- Biomassa yuqori zonada taxminan 10% ko‘proq ko‘ringan, ammo bu farq o‘lchov shovqini va ehtimoliy ko‘tarilish ta’siri bilan ehtiyotkorlik bilan talqin qilingan.
Eksperimental erigan kislorod gradientlari:
| Tajriba / vaqt oralig‘i | Pastki-O‘rta farq | O‘rta-Yuqori farq | Umumiy tendensiya |
|---|---|---|---|
| Fed-Batch 1, 8,98–9,05 soat | Taxminan 16% | Taxminan 14% | DO balandlik bilan oshdi. |
| Fed-Batch 1, 11,07–11,12 soat | Taxminan 17% | Taxminan 21% | Vertikal farq yanada kuchaydi. |
| Fed-Batch 2, 11 ta sensor o‘zgarishi | O‘rtacha taxminan 12% | O‘rtacha taxminan 15% | Yuqori zona eng yuqori, pastki zona eng past DO qiymatini berdi. |
Gassing-out tajribalari:
- Aeratsiya qisqa muddatga to‘xtatilgan.
- DO 10% dan pastga tushganda aeratsiya qayta ishga tushirilgan.
- Ushbu sinovlar pastki, o‘rta va yuqori sensor joylashuvlarida kLa va kislorod transfer dinamikasini baholash uchun ishlatilgan.
- kLa odatda reaktorning pastki qismida kamroq bo‘lgan.
- Aeratsiya qayta boshlanganida yuqori zonadagi kislorod oshishi ko‘pincha tezroq va kattaroq bo‘lgan.
Kinetik modelda qo‘llangan asosiy ifodalar:
Biomassa inhibisiyasi:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Lag/adaptatsiya hadi:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_beta)] \]
Substrat almashish funksiyasi:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Glyukoza va atsetat o‘sish tezliklari:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Umumiy xos o‘sish:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Reaksion tezliklar:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Massa balanslari:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Kislorod iste’moli:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Bo‘linma asosidagi kislorod balansi:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Yuqori bo‘linma uchun qo‘shimcha hajm o‘zgarishi hadi:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Massa almashinuvi masshtablash munosabatlari:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Bu ifodalarda \(\varepsilon_i\) turbulent energiya tarqalish tezligini, \(\phi_{b,i}\) gaz hold-up qiymatini, \(d_{b,i}\) pufakcha diametrini va \(\eta_i\) CFD’dan olingan bo‘linma asosidagi kislorod transfer ko‘rsatkichini ifodalaydi.
Model parametrlaridan ba’zilari:
| Parametr | Qiymat | Ma’nosi |
|---|---|---|
| \(\mu_{max,G}\) | 0,595 h-1 | Glyukozada maksimal xos o‘sish tezligi |
| \(\mu_{max,A}\) | 0,595 h-1 | Atsetatda maksimal xos o‘sish tezligi |
| \(K_s\) | 0,038 g/L | Glyukoza Monod konstantasi |
| \(K_a\) | 0,693 g/L | Atsetat inhibisiya konstantasi |
| \(Y_{xs}\) | 0,361 gX/gS | Glyukozadan biomassaga o‘tish samaradorligi |
| \(Y_{ox}\) | 0,352 gO/gX | Biomassa hosil bo‘lishiga bog‘liq kislorod iste’moli koeffitsienti |
| \(K_O\) | 6,000 × 10-4 g/L | Kislorod yarim to‘yinganlik konstantasi |
| \(n_O\) | 10,400 | Kislorod qabul qilishdagi Hill koeffitsienti |
CFD asosidagi bo‘linmalararo oqimlar:
| Bo‘linma | Yuqoriga oqim \(q_{i\rightarrow i+1}\) | Pastga oqim \(q_{i\rightarrow i-1}\) | Hajm |
|---|---|---|---|
| 1 | 7132 L/soat | – | 2,103 L |
| 2 | 3018 L/soat | 7132 L/soat | 1,648 L |
| 3 | 905 L/soat | 3018 L/soat | 3,650 L |
| 4 | 1544 L/soat | 905 L/soat | 2,451 L |
| 5 | 2118 L/soat | 1544 L/soat | 3,386 L |
| 6 | – | 2118 L/soat | 0,8095 L va vaqt o‘tishi bilan ortuvchi hajm |
Asosiy modellashtirish natijalari:
- Biomassa, glyukoza va atsetat profillari model tomonidan umumiy holda yaxshi ifodalangan.
- Model glyukoza iste’moli va atsetat ishlab chiqilishidan atsetatning qayta ishlatilishiga o‘tishni ushlagan.
- Erigan kislorod uchun bitta nuqtali boshqaruv boshqa balandliklarda bir xil kislorod darajasini kafolatlamagan.
- CFD asosidagi to‘g‘ri bo‘linmalash eksperimental kislorod gradientlarini sifat jihatdan to‘g‘ri bashorat qilgan.
- Noto‘g‘ri bo‘linmalash strategiyasi, ayniqsa yuqori zona o‘lchovlarini yaxshi tushuntira olmagan.
- Gassing-out tajribalari yuqori zonada kislorod transferi tezroq bo‘lishi mumkinligini qo‘llab-quvvatlagan.
Rasm va grafiklarning ma’nosi:
- Bioreaktor sxemasi sensor va namuna olish nuqtalarining pastki, o‘rta va yuqori joylashuvlarini ko‘rsatadi. Bu vizual tadqiqotning asosiy g‘oyasi — “sensor joylashuvi muhim” degan fikrni bevosita tushuntiradi.
- Fed-batch o‘sish egri chiziqlari ikki tajriba bir xil kechmaganini; ikkinchi ish qisqaroq bo‘lgani va yuqoriroq hujayra zichligiga yetganini ko‘rsatadi.
- CFD bo‘linmalash tasvirlari sirkulyatsiya zonalari orasiga joylashtirilgan bo‘linma chegaralari nega aniqroq model berishini ko‘rsatadi. Muqobil chegaralar kislorod gradientini sust baholaydi.
- Glyukoza va atsetat solishtirma grafiklari bu metabolitlarda yuqori-pastki farqlar kichik ekanini va modellashda gomogen qabul qilish ma’qul ekanini tasdiqlaydi.
- Biomassa grafigi yuqori zonada OD biroz kattaroq bo‘lish tendensiyasini ko‘rsatadi, biroq bu ehtiyotkor talqin qilinishi kerakligini bildiradi.
- Kislorod gradienti grafiklari erigan kislorodning reaktor balandligi bilan oshishini va pastki qismda pastroq qolishini aniq ko‘rsatadi.
- Gassing-out grafiklari aeratsiya to‘xtaganda DO pasayishini, aeratsiya qayta yoqilganda tiklanishini va bu tiklanish tezligi joylashuvga ko‘ra farq qilishini ko‘rsatadi.
- Model-tajriba taqqoslash grafiklari tavsiya etilgan bo‘linmali model uzluksiz DO o‘lchovlarini ham, balandlikka bog‘liq kislorod gradientlarini ham umumiy ravishda ushlaganini ko‘rsatadi.
Umumiy texnik xulosa: 20 L o‘lchamdagi E. coli fed-batch bioreaktorida glukoza, atsetat va biomassa asosan gomogen ko‘rinsa ham, erigan kislorod gomogen bo‘lmasligi mumkin. Shu sababli bioreaktorlarda bitta DO sensorining joylashuvi jarayon boshqaruvida muhim o‘zgaruvchi sifatida ko‘rilishi kerak.
Manba va usul izohi
Ushbu maqola Ittisak Promma, Danny Kang, Zahra Negahban, Valerie Ward, Nasser Mohieddin Abukhdeir, Marc G. Aucoin va Hector Budman tomonidan tayyorlangan “Probe Location Matters: Oxygen Gradient Measurements and CFD-Informed Modeling Challenge the Well-Mixed Assumption in Bench-Scale Bioreactors” nomli ishga tayangan holda tayyorlangan. Tadqiqot University of Waterloo Kimyo muhandisligi bo‘limi kontekstida olib borilgan.
Manba turi SSRN’da e’lon qilingan preprint tadqiqot maqolasi hisoblanadi. Matnda ochiq ravishda “This preprint research paper has not been peer reviewed” degan jumla borligi uchun ish hakamlik bahosidan o‘tmagan. Shu sababli natijalar hakamlangan yakuniy nashr sifatida emas, balki eksperimental va modellashtirishga asoslangan preprint tadqiqot sifatida baholanishi kerak.
Ushbu kontentda tadqiqotda berilgan bioreaktor tajribalari, E. coli fed-batch sharoitlari, erigan kislorod o‘lchovlari, gassing-out sinovlari, kinetik model tenglamalari, CFD asosidagi bo‘linmali model tuzilmasi, shakl va jadval natijalari asos qilib olindi. PDF’da mavjud bo‘lmagan mahsulot sifati, klinik ishlab chiqarish muvaffaqiyati, sanoat kafolati, barcha bioreaktorlarda aynan bir xil natijalar kuzatilishi yoki tijoriy qo‘llanish haqidagi da’volar kiritilmadi.
Tadqiqot erigan kislorod gradientlarini eksperimental va modellashtirish asosida batafsil ko‘rib chiqadi, biroq pH gradientlarining kuzatilganini aytib, bu maqolada ularni batafsil yoritmaydi va modellashtirmaydi. Shu sababli pH bilan kislorod o‘rtasidagi bog‘liqlik kelajakda alohida o‘rganilishi kerak bo‘lgan mavzu sifatida ko‘riladi.
Natijalar qo‘llangan bioreaktor geometriyasi, impeller joylashuvi, E. coli shtammi, fed-batch sharoitlari, sensor joylashuvlari va model taxminlari doirasida amal qiladi. Turli masshtablarda, turli reaktor dizaynlarida yoki turli organizmlarda aynan shu gradient qiymatlari takrorlanadi deb taxmin qilmaslik kerak. Biroq tadqiqot bioprotsess monitoringi va boshqaruvida sensor joylashuvini e’tiborsiz qoldirmaslik kerakligi haqida kuchli texnik ogohlantirish beradi.
Izoh qoldiring
E-pochta manzilingiz chop etilmaydi. Majburiy maydonlar * bilan belgilangan