

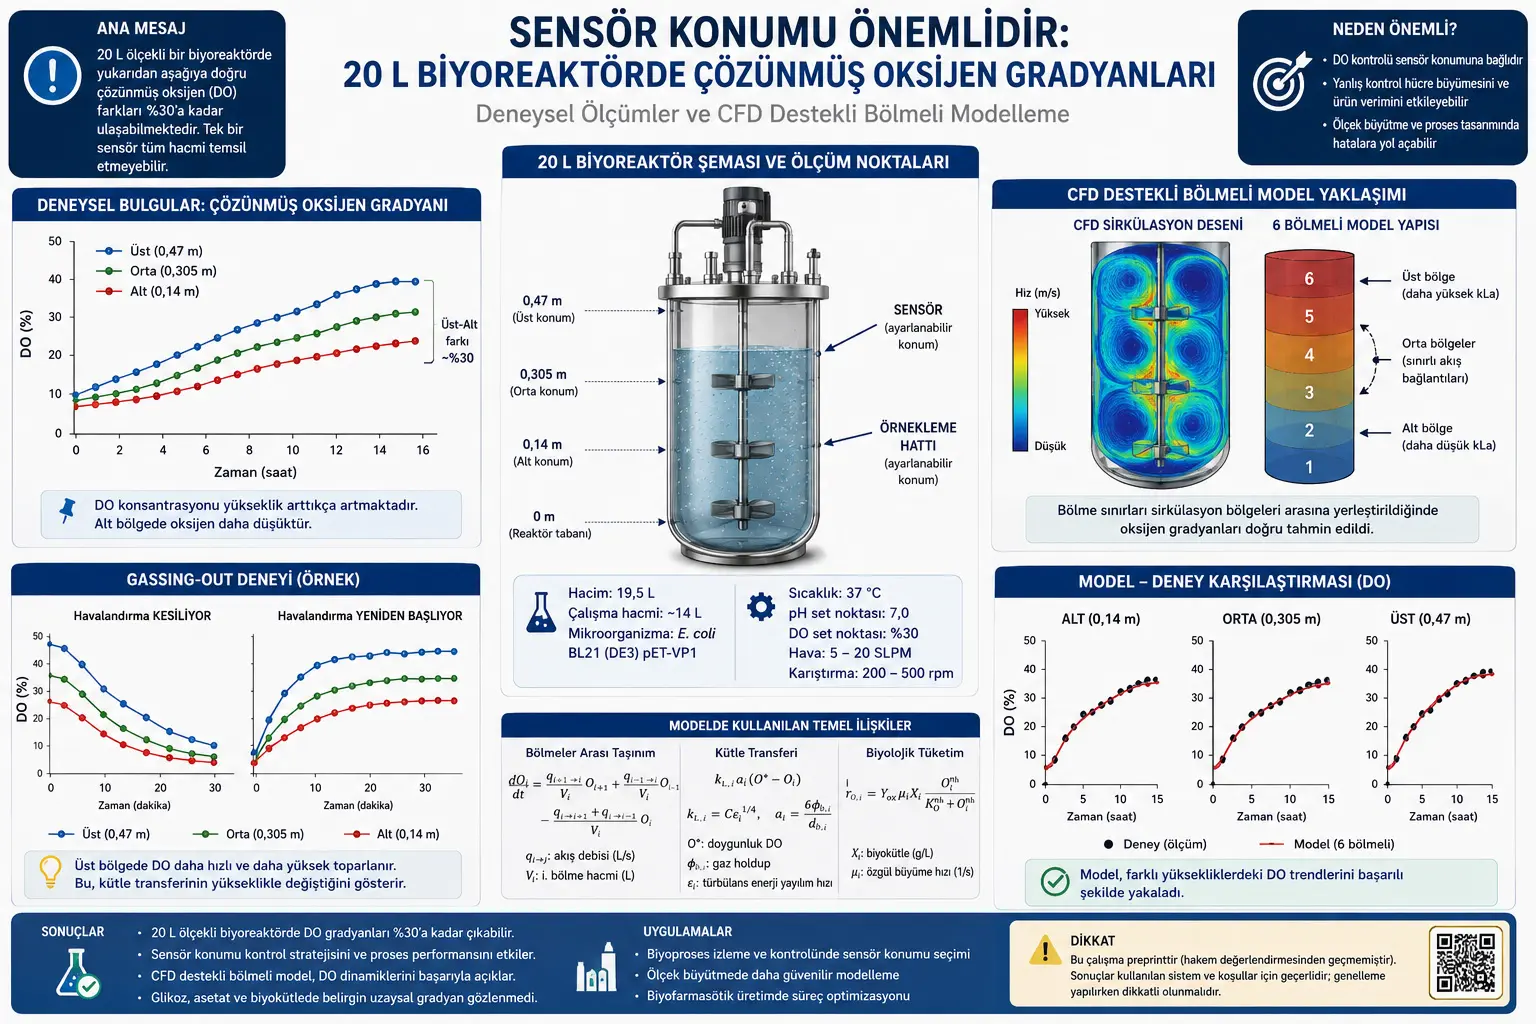
Bu çalışma, küçük ve orta ölçekli biyoreaktörlerin çoğu zaman varsayıldığı kadar “tam karışmış” olmayabileceğini göstermektedir. Araştırmacılar, 15–20 L sınıfındaki bir biyoreaktörde yürütülen E. coli fed-batch fermantasyonlarında, çözünmüş oksijenin reaktör yüksekliği boyunca belirgin biçimde değişebildiğini ölçmüştür. Bulgulara göre alt bölgedeki çözünmüş oksijen, üst bölgeye göre daha düşük kalmakta ve bazı koşullarda üst-alt farkı yaklaşık %30 düzeyine ulaşabilmektedir.
Bu sonuç önemlidir; çünkü biyoreaktörlerde çözünmüş oksijen sensörü genellikle tek bir noktadan ölçüm yapar ve kontrol sistemi bu ölçüme göre havalandırma ile karıştırmayı ayarlar. Eğer sensör alt bölgede bulunuyorsa, kontrol sistemi o noktadaki oksijeni hedef değerde tutabilir; ancak bu, reaktörün tamamında aynı oksijen seviyesinin oluştuğu anlamına gelmez. Çalışma, sensör konumunun proses izleme, kontrol, modelleme ve ölçek büyütme kararlarını doğrudan etkileyebileceğini göstermektedir.
Araştırmada glikoz, asetat ve biyokütle ölçümlerinde belirgin konumsal gradyanlar gözlenmezken, çözünmüş oksijen için yükseklik boyunca anlamlı farklar bulunmuştur. Bu farkları açıklamak için CFD hesaplarından türetilen altı bölmeli dinamik bir biyoreaktör modeli geliştirilmiştir. Model, reaktör içindeki sirkülasyon bölgelerini dikkate alarak bölmeler arasındaki akış oranlarını belirlemiş ve oksijen transferi, hücre büyümesi, oksijen tüketimi ve bölmeler arası taşınımı birlikte hesaplamıştır.
Çalışmanın temel mesajı şudur: 20 L gibi küçük sayılabilecek biyoreaktörlerde bile çözünmüş oksijenin tek bir sensörle tüm hacmi temsil ettiği varsayımı her zaman güvenli değildir. Bu durum özellikle biyofarmasötik üretim, aşı üretimi, rekombinant protein üretimi ve endüstriyel biyoproses ölçek büyütme süreçleri için kritiktir. Ancak çalışma preprint niteliğindedir ve pH gradyanları gibi bazı gözlemler bu makalede modellenmemiştir; bu nedenle sonuçlar dikkatli ve bağlamıyla birlikte okunmalıdır.
Biyoreaktörler; mikroorganizmaların, hücrelerin veya biyolojik sistemlerin kontrollü koşullar altında büyütüldüğü kapalı proses ekipmanlarıdır. Aşı üretimi, rekombinant protein üretimi, enzim üretimi, biyofarmasötik üretim ve endüstriyel fermantasyon gibi alanlarda kritik rol oynarlar. Bu sistemlerde sıcaklık, pH, besin maddeleri, karıştırma, havalandırma ve çözünmüş oksijen gibi değişkenler hücre büyümesini, ürün verimini ve ürün kalitesini doğrudan etkiler.
Çalışmanın çıkış noktası, biyoreaktörlerde çok sık kullanılan bir varsayımı sorgulamaktır: küçük ölçekli biyoreaktörlerin iyi karıştığı ve dolayısıyla reaktör içindeki konsantrasyonların her noktada yaklaşık aynı olduğu varsayımı. Bu varsayım pratikte çok işe yarar; çünkü tek bir sensörle ölçülen pH veya çözünmüş oksijen değerinin tüm reaktörü temsil ettiği kabul edilir. Böylece kontrol sistemi tek noktadan aldığı veriye göre karar verebilir. Ancak gerçek akışkan davranışı, özellikle gaz-sıvı karışımı, impeller etkisi, kabarcık dağılımı ve hücrelerin oksijen tüketimi devreye girdiğinde daha karmaşık olabilir.
Büyük endüstriyel biyoreaktörlerde karışımın tam homojen olmadığı uzun süredir bilinen bir problemdir. Büyük hacimlerde karıştırma süresi uzar, besin maddeleri ve oksijen her noktaya aynı hızda ulaşmaz, hücreler farklı mikro-ortamlardan geçer. Buna karşılık 15–20 L gibi laboratuvar/tezgâh ölçeğine yakın biyoreaktörlerde genellikle bu heterojenliklerin ihmal edilebilir olduğu düşünülür. Bu çalışma tam da bu düşünceyi sorgular ve 20 L sınıfında bile çözünmüş oksijen gradyanlarının oluşabileceğini deneysel ve modelleme temelli olarak gösterir.
Çalışmada kullanılan biyoreaktör, New Brunswick Scientific BioFlo 415 SIP Fermentation System olarak verilen 19,5 L kapasiteli bir sistemdir. Fed-batch deneylerinde çalışma hacmi yaklaşık 13,5–14 L aralığında tutulmuştur. Mikroorganizma olarak E. coli BL21 (DE3) pET-VP1 kullanılmıştır. E. coli, biyoteknolojide ve farmasötik üretimde yaygın kullanılan bir model ve üretim organizması olduğu için seçilmiştir. Bu seçim, çalışmanın yalnızca temel akışkanlar mekaniği değil, gerçek biyoproses üretimi açısından da anlamlı olmasını sağlar.
Deneylerde çözünmüş oksijen sensörünün ve örnek alma düzeneğinin yüksekliği değiştirilebilmiştir. Ölçümler üç ana yükseklik bölgesinde yapılmıştır: alt bölge yaklaşık 0,14 m, orta bölge yaklaşık 0,305 m ve üst bölge yaklaşık 0,47 m yüksekliğe karşılık gelir. Reaktörde impellerler yaklaşık 0,09 m, 0,29 m ve 0,51 m yüksekliklerine yerleştirilmiştir. Bu yerleşim, çözünmüş oksijen farklarının yalnızca dikey mesafeden değil, aynı zamanda impellerlerin oluşturduğu sirkülasyon bölgelerinden de etkilenebileceğini gösterir.
Çalışmanın birinci önemli deneysel bulgusu, glikoz, asetat ve biyokütle için belirgin konumsal farkların çok küçük olmasıdır. Fed-batch çalışmalarda farklı yüksekliklerden alınan örneklerde glikoz ve asetat konsantrasyonları büyük ölçüde benzer bulunmuştur. Biyokütle ölçümlerinde üst bölgede yaklaşık %10 kadar daha yüksek optik yoğunluk eğilimi görülmüş; ancak bu farkın ölçüm gürültüsü aralığında olabileceği ve hücrelerin kaldırma/yoğunluk etkileriyle üst bölgede biraz daha fazla bulunabileceği şeklinde temkinli yorumlanmıştır. Bu yüzden modellemede biyokütle, glikoz ve asetatın uzaysal olarak homojen olduğu varsayılmıştır.
Çözünmüş oksijen ise farklı davranmıştır. Deneylerde çözünmüş oksijenin reaktör yüksekliği boyunca arttığı, yani en düşük oksijenin alt bölgede, en yüksek oksijenin üst bölgede ölçüldüğü görülmüştür. İlk fed-batch çalışmada 8,98–9,05 saat aralığında alt-orta farkı yaklaşık %16, orta-üst farkı yaklaşık %14 olarak verilmiştir. Aynı çalışmadaki 11,07–11,12 saat aralığında alt-orta farkı yaklaşık %17, orta-üst farkı yaklaşık %21’e çıkmıştır. İkinci fed-batch çalışmada ise sensör yüksekliği 11 farklı zamanda değiştirilmiş; ortalama alt-orta farkı yaklaşık %12, orta-üst farkı yaklaşık %15 olarak bulunmuştur. Genel eğilim iki deneyde de aynıdır: çözünmüş oksijen üstte daha yüksek, altta daha düşüktür.
Bu sonuç gündelik bir benzetmeyle şöyle anlaşılabilir: Bir odanın tek bir noktasındaki sıcaklığı ölçüp tüm odanın aynı sıcaklıkta olduğunu varsaymak her zaman doğru değildir. Kalorifer, klima veya hava akımı nedeniyle odanın bazı bölgeleri daha sıcak veya daha soğuk olabilir. Biyoreaktörde de tek bir çözünmüş oksijen sensörü, yalnızca bulunduğu noktanın oksijenini ölçer. Eğer reaktörde yukarıdan aşağıya oksijen farkı varsa, sensörün konumu tüm kontrol stratejisinin yorumunu değiştirir.
Çalışmanın biyoproses açısından kritik noktası şudur: Çözünmüş oksijen kontrol sistemi genellikle sensörün bulunduğu noktadaki değeri hedef set noktasına getirir. Bu çalışmada kontrol set noktası 30% DO olarak belirlenmiştir ve modelde sensörün bulunduğu bölme için çözünmüş oksijen set değeri şu şekilde ifade edilmiştir:
\[ O_2(t) = O^{set}_2 = 0.0018 \, g/L \]
Burada \(O_2(t)\) sensörün bulunduğu ikinci bölmedeki zamana bağlı çözünmüş oksijen konsantrasyonunu, \(O^{set}_2\) ise kontrol set noktasını temsil eder. Bu ifade, kontrol devresi aktif olduğunda sensör bölgesindeki oksijenin hedef değerde tutulduğunu anlatır. Fakat çalışma, diğer bölmelerdeki oksijenin bu değerden farklı kalabildiğini göstermektedir.
Deneylerde ayrıca “gassing-out” testleri yapılmıştır. Bu testlerde havalandırma kısa süreliğine durdurulmuş, çözünmüş oksijen %10’un altına düştüğünde havalandırma yeniden başlatılmıştır. Normalde bu tür testler kLa yani hacimsel oksijen transfer katsayısını tahmin etmek için kullanılır. kLa, gaz fazından sıvıya oksijen geçişinin ne kadar etkin olduğunu ifade eden temel bir biyoreaktör parametresidir. kLa yüksekse, reaktör sıvısına oksijen daha hızlı taşınır; düşükse hücrelerin oksijen talebi karşılanmakta zorlanabilir.
Çalışmada gassing-out deneyleri yalnızca tek bir genel kLa değeri tahmin etmek için değil, farklı yüksekliklerdeki dinamik oksijen yanıtlarını anlamak için de kullanılmıştır. Havalandırma durduğunda çözünmüş oksijen, hücrelerin oksijen tüketimi ve bölmeler arası yeniden dağılım nedeniyle düşer. Havalandırma yeniden başladığında ise oksijen tekrar yükselir. Bu yükselme hızı, o bölgedeki gaz-sıvı kütle transferi, kabarcık dağılımı, karışım ve biyolojik oksijen tüketimi hakkında bilgi verir.
Gassing-out sonuçları, kLa değerlerinin genellikle reaktörün alt bölgesinde daha düşük olduğunu göstermiştir. Bu durum, alt bölgede daha düşük çözünmüş oksijen ölçülmesiyle uyumludur. Üst bölgede gaz kabarcıklarının, gaz holdup değerinin veya oksijen transfer alanının daha etkili olması, üstteki çözünmüş oksijenin daha yüksek kalmasına katkı sağlamış olabilir. Çalışmanın modeli de bu yorumu destekleyecek şekilde, yüksekliğe bağlı oksijen transfer farklarını dikkate almaktadır.
Modelleme tarafında çalışma iki ana katmandan oluşur. İlk katman, E. coli kültürünün biyokütle, glikoz ve asetat dinamiklerini açıklayan kinetik modeldir. İkinci katman ise çözünmüş oksijenin reaktör içinde bölmeden bölmeye nasıl değiştiğini açıklayan CFD destekli bölmeli modeldir. Böylece biyolojik büyüme ve oksijen tüketimi ile hidrodinamik taşınım birlikte ele alınmıştır.
Klasik Monod kinetiği, mikroorganizmaların bir substrata bağlı büyümesini açıklamak için sık kullanılan bir modeldir. Ancak çalışmada yalnızca basit Monod ifadesinin glikoz, asetat ve biyokütle dinamiklerini yeterince açıklamadığı belirtilmiştir. Bunun nedeni, E. coli büyümesinde lag/adaptasyon davranışı, yüksek biyokütlede büyüme inhibisyonu ve glikoz-asetat arasında metabolik geçiş gibi ek mekanizmaların devreye girmesidir.
Bu yüzden modelde önce biyokütleye bağlı inhibisyon terimi tanımlanmıştır:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Burada \(f_{inh}\) büyüme inhibisyon faktörünü, \(X\) biyokütle konsantrasyonunu, \(k_x\) inhibisyonun belirginleştiği biyokütle düzeyini, \(n_x\) ise inhibisyonun keskinliğini belirleyen üssü ifade eder. Biyokütle arttıkça hücrelerin büyümesini sınırlayan ortam koşulları oluşabilir; bu terim bu etkiyi modele ekler.
Lag/adaptasyon davranışı için önce şu ara fonksiyon tanımlanmıştır:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
Ardından lag faktörü şu şekilde verilmiştir:
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Burada \(f_{lag}\) hücrelerin başlangıç uyum/adaptasyon etkisini, \(A_1\) alt asimptotik değeri, \(w\) şekil parametresini, \(X_\beta\) kaydırma parametresini temsil eder. Bu ifade, hücrelerin ortama hemen maksimum hızda uyum sağlamadığını, belirli bir biyokütle ve zaman etkisiyle büyüme davranışının kademeli değişebileceğini anlatır.
Asetat kullanımını glikoz düzeyine bağlı olarak düzenlemek için substrat geçiş fonksiyonu tanımlanmıştır:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Burada \(S\) glikoz konsantrasyonunu, \(k_h\) glikozdan asetat kullanımına geçişi belirleyen sabiti, \(n_h\) ise geçişin keskinliğini ifade eder. Glikoz yüksekken E. coli genellikle glikozu öncelikli kullanır; asetat kullanımı baskılanabilir. Glikoz azaldıkça asetatın yeniden kullanımı devreye girer. Bu davranış diauxic growth yani ikili substrat kullanımı/ardışık metabolik geçiş olarak bilinir.
Glikoz ve asetat üzerindeki özgül büyüme hızları çalışmada şu şekilde ifade edilmiştir:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Burada \(\mu_g\) glikoza bağlı özgül büyüme hızını, \(\mu_a\) asetata bağlı özgül büyüme hızını, \(\mu_{max,G}\) glikoz için maksimum özgül büyüme hızını, \(\mu_{max,A}\) asetat için maksimum özgül büyüme hızını, \(K_s\) glikoz Monod sabitini, \(A\) asetat konsantrasyonunu, \(K_a\) asetat inhibisyon sabitini ve \(K_{a2}\) asetat alımı için Monod sabitini gösterir.
Toplam etkin özgül büyüme hızı şu şekilde tanımlanmıştır:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Bu denklem, toplam büyümenin glikoz ve asetat katkılarından oluştuğunu, fakat hücrelerin adaptasyon durumunun bu toplam büyümeyi ayrıca etkilediğini anlatır.
Biyokütle oluşumu, glikoz tüketimi ve asetat üretimi/tüketimi için hacimsel reaksiyon hızları şu şekilde verilmiştir:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Burada \(r_X\) biyokütle oluşum hızını, \(r_S\) glikoz tüketim hızını, \(r_A\) asetat üretim/tüketim hızını, \(Y_{xs}\) glikozdan biyokütle verimini, \(Y_{xa}\) glikoz büyümesiyle ilişkili asetat oluşum katsayısını, \(Y_{xa2}\) asetat tüketimiyle ilişkili biyokütle verimini, \(m_x\) ise bakım katsayısını ifade eder.
Fed-batch koşullarında reaktöre besleme eklendiği ve hacim değiştiği için dinamik kütle denklikleri hacim değişim terimi içerir:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Burada \(V\) reaktör hacmini, \(dV/dt\) hacmin zamana göre değişimini, \(F_S(t)\) glikoz besleme debisini, \(S_0\) besleme çözeltisindeki glikoz konsantrasyonunu temsil eder. Bu denklemler, fed-batch proseslerde yalnızca reaksiyonların değil, sisteme eklenen hacmin seyreltme etkisinin de dikkate alınması gerektiğini gösterir.
Oksijen gradyanını modellemek için reaktör altı yatay bölmeye ayrılmıştır. Her bölme kendi içinde iyi karışmış CSTR gibi kabul edilmiştir; ancak bölmeler arasında sınırlı akış vardır. Bu yaklaşım, tam CFD kadar ağır hesaplama gerektirmez; fakat tamamen tek hacimli “well-mixed” modelden çok daha gerçekçidir. En önemli nokta, bölme sınırlarının keyfi seçilmemesidir. Sınırlar, CFD simülasyonlarından elde edilen sirkülasyon bölgeleri arasına yerleştirilmiştir.
Çalışmada iki farklı bölmelendirme stratejisi karşılaştırılmıştır. Birincisinde sınırlar sirkülasyon bölgeleri arasına konmuştur. İkincisinde sınırlar sirkülasyon bölgelerinin merkezlerine yakın yerleştirilmiştir. Sonuçlar, doğru oksijen gradyanlarını yakalamak için sınırların sirkülasyon bölgeleri arasında olması gerektiğini göstermiştir. Çünkü bu bölgeler arasındaki akış oranları düşüktür ve eksik karışımın oluştuğu yerleri fiziksel olarak daha iyi temsil eder. Yanlış bölmelendirme, üst-alt oksijen farkını doğru tahmin edememiştir.
Bölmeler arası akış oranları CFD’den türetilmiştir. Örneğin bölme 1’den 2’ye akış 7132 L/saat, bölme 2’den 3’e akış 3018 L/saat, bölme 3’ten 4’e akış 905 L/saat olarak verilmiştir. Bölme hacimleri de farklıdır; ilk bölme 2,103 L, ikinci 1,648 L, üçüncü 3,650 L, dördüncü 2,451 L, beşinci 3,386 L ve üst bölme başlangıçta 0,8095 L olarak belirtilmiştir. Üst bölmenin hacmi fed-batch besleme nedeniyle zamanla artmaktadır.
Oksijen tüketimi bölme bazında şu şekilde ifade edilmiştir:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Burada \(r_{O,i}\) i’nci bölmedeki oksijen tüketim hızını, \(Y_{ox}\) biyokütle oluşumu başına oksijen tüketim katsayısını, \(\mu_i\) yerel özgül büyüme hızını, \(X_i\) yerel biyokütle konsantrasyonunu, \(O_i\) yerel çözünmüş oksijen konsantrasyonunu, \(K_O\) oksijen yarı doygunluk sabitini, \(n_h\) ise Hill katsayısını ifade eder. Bu denklem, oksijenin hücre büyümesiyle ilişkili tüketildiğini ve düşük oksijen seviyelerinde tüketim davranışının oksijen bulunabilirliğine duyarlı hale geldiğini anlatır.
Bölme i için çözünmüş oksijen dengesi şu yapıdadır:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Bu denklemde \(q_{i\rightarrow j}\) i bölmesinden j bölmesine hacimsel akış oranını, \(V_i\) i’nci bölmenin sıvı hacmini, \(k_{L,i}a_i\) i’nci bölmedeki hacimsel oksijen kütle transfer katsayısını, \(O^*\) doygunluk çözünmüş oksijen konsantrasyonunu, \(O_i\) yerel çözünmüş oksijen konsantrasyonunu ifade eder. Denklemde ilk terimler bölmeler arası taşınımı, \(k_La\) terimi gazdan sıvıya oksijen transferini, son terim ise hücrelerin oksijen tüketimini temsil eder.
Üst bölmede hacim zamanla değiştiği için seyreltme terimi de eklenir:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Bu terim, üst bölmeye fed-batch besleme nedeniyle hacim eklendiğinde çözünmüş oksijen konsantrasyonunun seyreltme etkisinden nasıl etkileneceğini açıklar.
Oksijen kütle transfer katsayısı CFD’den gelen hidrodinamik büyüklüklerle ölçeklenmiştir. Sıvı tarafı kütle transfer katsayısı şu şekilde tahmin edilmiştir:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
Burada \(\varepsilon_i\) i’nci bölmedeki ortalama türbülans enerji yayılım hızını, \(C\) deneysel orantı sabitini ifade eder. Daha yüksek türbülans, genellikle kabarcık-sıvı etkileşimini artırarak oksijen transferini güçlendirebilir.
Gaz-sıvı ara yüzey alanı şu şekilde yazılmıştır:
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
Burada \(\phi_{b,i}\) gaz holdup değerini, \(d_{b,i}\) kabarcık çapını ifade eder. Gaz holdup, sıvı içinde ne kadar gaz fazı bulunduğunu gösterir. Daha fazla kabarcık alanı, oksijen transferi için daha fazla ara yüzey anlamına gelir.
Kabarcık çapının bölmeler arasında sabit kabul edilmesiyle hacimsel kütle transfer katsayısı şu şekilde sadeleştirilmiştir:
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Burada \(\eta_i\) CFD’den türetilen bölme bazlı hidrodinamik kütle transfer göstergesidir. Çalışmada bu değerler her bölme için hesaplanmış ve oksijen transfer katsayılarının bölmeler arasında ölçeklenmesinde kullanılmıştır.
Bu modelin temel üstünlüğü, CFD’nin ayrıntılı akış bilgisini tamamen pahalı ve yavaş bir CFD-biyoreaksiyon simülasyonuna dönüştürmeden kullanmasıdır. CFD, bölmelerin nerede olması gerektiğini ve aralarındaki akışların ne kadar olduğunu belirler. Bölmeli model ise biyokütle, glikoz, asetat ve oksijen dinamiklerini daha hızlı çözer. Böylece hem fiziksel anlam korunur hem de tekrar tekrar simülasyon yapılabilecek kadar hesaplama verimliliği sağlanır.
Çalışmada iki fed-batch deneyi yürütülmüştür. Fed-Batch 1’de başlangıç çalışma hacmi 13,5 L’dir. Set değerleri 37°C, 200 rpm, pH 7,0, DO %30 ve hava debisi 5 SLPM olarak verilmiştir. Çözünmüş oksijen, 200–500 rpm karıştırma ve 5–20 SLPM hava akış aralığıyla kademeli kontrol stratejisi üzerinden düzenlenmiştir. Besleme, biyokütle yaklaşık 0,15–0,25 g/L’ye ulaştığında başlatılmış ve adım adım artırılmıştır.
Fed-Batch 2’de yöntem büyük ölçüde aynıdır; ancak başlangıç hacmi 14 L olarak daha doğru tutturulmuştur. Başlangıç OD değeri Fed-Batch 1’de 0,037 iken Fed-Batch 2’de 0,06’dır. Besleme stratejisi de farklıdır. Fed-Batch 2 yaklaşık 1,7 saat daha kısa sürmüş ve Fed-Batch 1’e göre %78 daha yüksek maksimum hücre yoğunluğuna ulaşmıştır. Bu fark, iki deneyin oksijen tüketimi ve kontrol davranışında farklılıklar oluşturabileceği için modelde dikkate alınmıştır.
Model sonuçları biyokütle, glikoz ve asetat profillerini genel olarak iyi açıklamıştır. Özellikle glikoz tüketimi ve asetat üretiminden, daha sonra asetatın yeniden kullanılmasına geçiş davranışı yakalanmıştır. Bu, E. coli metabolizmasında bilinen overflow metabolism ve asetat cycling davranışlarıyla uyumludur. Fed-Batch 1’de modelin yaklaşık 14 saat sonrasında asetat üretimini düşük tahmin ettiği belirtilmiştir; bu durum aynı dönemde glikoz tüketiminin de düşük tahmin edilmesiyle ilişkilendirilmiştir. Buna rağmen biyokütle profilleri iki deneyde de iyi temsil edilmiştir.
Oksijen modelinde, CFD’den gelen bölmeler arası akış oranları Fed-Batch 2 için doğrudan kullanılmıştır. Fed-Batch 1’de ise karıştırma profili farklı olduğu için akış oranları 0,7 düzeltme faktörüyle çarpılmıştır. Bu faktör, Fed-Batch 1 ve 2 arasındaki RPM profil alanı oranına karşılık gelir. Böylece model, birinci deneyde daha düşük ortalama karıştırma etkisini temsil etmeye çalışmıştır.
Model, sensörün bulunduğu alt bölgedeki sürekli oksijen ölçümlerini, farklı yüksekliklere taşınan sensörle alınan aralıklı ölçümleri ve gassing-out deneylerindeki dinamik oksijen yanıtlarını karşılaştırmıştır. Ana sonuç, modelin yükseklikle artan oksijen trendini doğru yakalamasıdır. Yani deneylerde olduğu gibi modelde de alt bölgede oksijen daha düşük, üst bölgede daha yüksek bulunmuştur. Bu, tek bir sensörle kontrol edilen DO değerinin reaktörün tüm hacmini temsil etmeyebileceğini net biçimde destekler.
Çalışmanın en kritik modelleme bulgusu, bölmelendirme konumunun sonucu ciddi biçimde değiştirmesidir. CFD destekli doğru bölmelendirme, deneysel olarak gözlenen yaklaşık %30 üst-alt oksijen farkını açıklayabilmiştir. Alternatif ve fiziksel olarak daha zayıf bölmelendirme ise yalnızca yaklaşık %10 civarında oksijen değişimi öngörmüş ve özellikle üst sensör konumundaki ölçümleri iyi yakalayamamıştır. Bu, biyoreaktör modellemesinde “kaç bölme var?” sorusundan daha önemli bir soruyu gündeme getirir: “Bölme sınırları akış fiziğine uygun yerde mi?”
Gassing-out dinamik yanıtlarının modellenmesi de çalışmanın güçlü taraflarından biridir. Aerasyon yeniden başlatıldıktan sonra üst bölgedeki oksijenin alt bölgeye göre daha hızlı ve daha büyük artış gösterebildiği model tarafından genel olarak yakalanmıştır. Bu durum, üst bölgede oksijen transferinin daha yüksek olduğunu düşündürmektedir. Bazı deneylerde model orta veya alt bölgede oksijeni düşük tahmin etmiştir; araştırmacılar bu farkı yerel hidrodinamik dalgalanmalara, prob konumu belirsizliğine ve her sensör yüksekliğini tek bir bölmeyle temsil etmenin basitleştirici etkisine bağlamaktadır.
Bu çalışmanın pratik sonucu büyüktür. Eğer bir biyoreaktörde sensör alt bölgede bulunuyorsa ve kontrol sistemi burada DO %30’u tutuyorsa, üst bölgede hücreler daha yüksek oksijen ortamında bulunabilir. Tersi şekilde farklı sensör konumları, kontrol sisteminin farklı havalandırma ve karıştırma tepkileri vermesine neden olabilir. Bu, hücre büyümesi, metabolik yan ürün oluşumu, protein üretimi ve ürün kalitesi üzerinde dolaylı etkiler yaratabilir. Çalışma doğrudan ürün kalitesi ölçmemiştir; ancak proses kontrol açısından sensör konumunun kritik olduğunu göstermektedir.
Ölçek büyütme açısından da bulgular önemlidir. Laboratuvar veya pilot ölçekli bir biyoreaktörde bile oksijen gradyanı oluşuyorsa, daha büyük endüstriyel hacimlerde bu etkinin daha karmaşık hale gelmesi beklenebilir. Büyük biyoreaktörlerde hücreler reaktör içinde farklı oksijen, substrat ve pH bölgelerinden geçebilir. Bu geçişler hücre metabolizmasını etkileyebilir. Bu nedenle küçük ölçekte “iyi karışmış” kabul edilerek geliştirilen proseslerin büyük ölçekte neden beklenenden farklı davrandığını anlamak için bu tür çalışmalar değerlidir.
Geçmişte biyoreaktör modellemesi çoğu zaman tek hacimli veya basitleştirilmiş karışım varsayımlarına dayanmıştır. Bugün ise biyofarmasötik üretimde kalite, verimlilik ve maliyet baskısı arttıkça daha gerçekçi modelleme yöntemlerine ihtiyaç duyulmaktadır. CFD tek başına çok ayrıntılıdır ancak çok pahalı hesaplama gerektirebilir. Bölmeli modeller ise hızlıdır ancak fiziksel olarak yanlış bölmelendirilirse yanıltıcı olabilir. Bu çalışma, iki yaklaşımı birleştiren bir yol önerir: CFD akış yapısını belirler, bölmeli model biyolojik ve oksijen dinamiklerini hızlı şekilde çözer.
Gelecek açısından bu yaklaşım; optimal reaktör tasarımı, sensör konumu seçimi, karıştırma ve havalandırma stratejisi optimizasyonu, model tabanlı kontrol, ölçek büyütme ve scale-down simülatör tasarımı için kullanılabilir. Özellikle biyofarmasötik üretimde, prosesin küçük farklılıkları bile ürün kalitesine etki edebileceğinden, yerel oksijen ölçümleri ve iyi seçilmiş model yapıları daha kritik hale gelebilir.
Çalışmanın güçlü yönleri arasında çözünmüş oksijen gradyanlarının doğrudan farklı prob yüksekliklerinde ölçülmesi, iki ayrı fed-batch deneyinin kullanılması, gassing-out dinamiklerinin modele dahil edilmesi, glikoz-asetat-biyokütle kinetiğinin oksijen dengesiyle bağlanması ve CFD destekli bölmelendirme stratejisinin deneysel verilerle karşılaştırılması yer alır. Çalışma yalnızca “gradyan var” demekle kalmamakta, bu gradyanın neden oluşabileceğini akış bölgeleri, bölmeler arası düşük debiler ve yükseklikle değişen oksijen transferi üzerinden açıklamaya çalışmaktadır.
Sınırlılıklar da dikkatle belirtilmelidir. Çalışma hakem değerlendirmesinden geçmemiş bir preprinttir. Deneyler iki fed-batch çalışma üzerinden yapılmıştır; farklı biyoreaktör geometrileri, farklı impellerler, farklı mikroorganizmalar, farklı hacimler ve farklı kontrol stratejileri için sonuçlar doğrudan genellenmemelidir. pH gradyanları gözlendiği belirtilmiş ancak bu makalede ayrıntılı sunulmamış ve modellenmemiştir. Biyokütle, glikoz ve asetat için gradyanların küçük olduğu kabul edilmiştir; ancak örnek alma işleminin aynı anda yapılamaması geçici farkları maskelemiş olabilir. Ayrıca kLa’nın karıştırma ve havalandırmaya açık bir ampirik bağıntısı modele doğrudan eklenmemiş, kontrol döneminde etkin bir zaman bağımlı parametre olarak ele alınmıştır.
Çalışmanın söylediği şey şudur: 20 L ölçekli E. coli fed-batch biyoreaktörlerinde, çözünmüş oksijen reaktör yüksekliği boyunca anlamlı şekilde değişebilir; tek noktadan yapılan DO ölçümü tüm reaktörü temsil etmeyebilir; CFD ile doğru belirlenen bölmeli modeller bu gradyanları açıklamakta yararlıdır. Çalışmanın söylemediği şey ise şudur: Tüm 20 L biyoreaktörlerde aynı oranlarda oksijen gradyanı oluşacağı, bu gradyanların her zaman ürün kalitesini bozacağı veya önerilen modelin her biyoproses için doğrudan geçerli olduğu kanıtlanmış değildir. Bu nedenle çalışma, genelleştirilmiş bir garanti değil, iyi belgelenmiş bir deneysel-modelleme uyarısı olarak değerlendirilmelidir.
Çalışmanın Yöntemi ve Bulguları
Çalışmanın yöntemi, E. coli fed-batch fermantasyonlarında farklı yüksekliklerde çözünmüş oksijen ölçümü yapmak, glikoz/asetat/biyokütle ölçümlerini karşılaştırmak, gassing-out deneyleriyle oksijen transfer davranışını incelemek ve CFD destekli altı bölmeli dinamik bir modelle bu gözlemleri açıklamak üzerine kuruludur.
Deney sistemi:
| Özellik | Değer / Açıklama |
|---|---|
| Biyoreaktör | New Brunswick Scientific BioFlo 415 SIP Fermentation System |
| Toplam kap | 19,5 L |
| Fed-batch çalışma hacmi | Yaklaşık 13,5–14 L |
| Mikroorganizma | E. coli BL21 (DE3) pET-VP1 |
| Sıcaklık | 37°C |
| pH set noktası | 7,0 |
| DO set noktası | %30 |
| Başlangıç karıştırma | 200 rpm |
| Kontrol aralığı | 200–500 rpm karıştırma, 5–20 SLPM hava akışı |
Ölçüm konumları:
| Konum | Yaklaşık yükseklik | Anlamı |
|---|---|---|
| Alt | 0,14 m | En düşük DO değerlerinin görüldüğü bölge |
| Orta | 0,305 m | Ara ölçüm bölgesi |
| Üst | 0,47 m | En yüksek DO değerlerinin görüldüğü bölge |
İmpeller konumları:
- Yaklaşık 0,09 m
- Yaklaşık 0,29 m
- Yaklaşık 0,51 m
Bu impeller yerleşimi, reaktör içinde farklı sirkülasyon bölgeleri oluşmasına neden olur. Çalışmadaki CFD destekli model, bölme sınırlarını bu sirkülasyon bölgeleri arasına yerleştirerek oksijen gradyanlarını daha doğru temsil etmeye çalışmıştır.
Fed-batch deneyleri:
| Deney | Başlangıç hacmi | Başlangıç OD | Besleme stratejisi | Önemli fark |
|---|---|---|---|---|
| Fed-Batch 1 | 13,5 L | 0,037 | 0,036 → 0,072 → 0,108 → 0,144 L/saat | Daha uzun sürdü, daha düşük maksimum hücre yoğunluğu |
| Fed-Batch 2 | 14 L | 0,06 | 0,0216 → 0,036 → 0,0504 L/saat | Yaklaşık 1,7 saat daha kısa sürdü, %78 daha yüksek maksimum hücre yoğunluğu |
Metabolit ve biyokütle ölçümleri:
- Biyokütle OD600 ölçümüyle takip edilmiş ve kuru hücre ağırlığı kalibrasyonu kullanılmıştır.
- Glikoz ve asetat HPLC ile ölçülmüştür.
- Glikoz refraktif indeks dedeksiyonu ile, asetat/asetik asit UV 210 nm ve/veya refraktif indeks dedeksiyonu ile belirlenmiştir.
- Alt ve üst örnekleme konumları arasında glikoz ve asetat için belirgin gradyan gözlenmemiştir.
- Biyokütle üstte yaklaşık %10 daha yüksek görünmüş, ancak bu fark ölçüm gürültüsü ve olası kaldırma etkileriyle temkinli yorumlanmıştır.
Deneysel çözünmüş oksijen gradyanları:
| Deney / Zaman aralığı | Alt-Orta fark | Orta-Üst fark | Genel eğilim |
|---|---|---|---|
| Fed-Batch 1, 8,98–9,05 h | Yaklaşık %16 | Yaklaşık %14 | DO yükseklikle arttı. |
| Fed-Batch 1, 11,07–11,12 h | Yaklaşık %17 | Yaklaşık %21 | Daha belirgin dikey fark oluştu. |
| Fed-Batch 2, 11 farklı sensör değişimi | Ortalama yaklaşık %12 | Ortalama yaklaşık %15 | Üst bölge en yüksek, alt bölge en düşük DO değerini verdi. |
Gassing-out deneyleri:
- Havalandırma kısa süreli olarak durdurulmuştur.
- DO %10’un altına düştüğünde havalandırma yeniden başlatılmıştır.
- Bu testler alt, orta ve üst sensör konumlarında kLa ve oksijen transfer dinamiklerini değerlendirmek için kullanılmıştır.
- kLa genellikle reaktörün alt bölgesinde daha düşük bulunmuştur.
- Havalandırma yeniden başladığında üst bölgedeki oksijen artışı genellikle daha hızlı ve daha yüksek olmuştur.
Kinetik modelde kullanılan temel ifadeler:
Biyokütle inhibisyonu:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Lag/adaptasyon terimi:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Substrat geçiş fonksiyonu:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Glikoz ve asetat büyüme hızları:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Toplam özgül büyüme:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Reaksiyon hızları:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Kütle denklikleri:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Oksijen tüketimi:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Bölme bazlı oksijen dengesi:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Üst bölme için ek hacim değişimi terimi:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Kütle transferi ölçekleme ilişkileri:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Bu ifadelerde \(\varepsilon_i\) türbülans enerji yayılım hızını, \(\phi_{b,i}\) gaz holdup değerini, \(d_{b,i}\) kabarcık çapını ve \(\eta_i\) CFD’den türetilen bölme bazlı oksijen transfer göstergesini temsil eder.
Model parametrelerinden bazıları:
| Parametre | Değer | Anlamı |
|---|---|---|
| \(\mu_{max,G}\) | 0,595 h-1 | Glikoz üzerinde maksimum özgül büyüme hızı |
| \(\mu_{max,A}\) | 0,595 h-1 | Asetat üzerinde maksimum özgül büyüme hızı |
| \(K_s\) | 0,038 g/L | Glikoz Monod sabiti |
| \(K_a\) | 0,693 g/L | Asetat inhibisyon sabiti |
| \(Y_{xs}\) | 0,361 gX/gS | Glikozdan biyokütle verimi |
| \(Y_{ox}\) | 0,352 gO/gX | Biyokütle oluşumuna bağlı oksijen tüketim katsayısı |
| \(K_O\) | 6,000 × 10-4 g/L | Oksijen yarı doygunluk sabiti |
| \(n_O\) | 10,400 | Oksijen alımındaki Hill katsayısı |
CFD destekli bölmeler arası akışlar:
| Bölme | Yukarı akış \(q_{i\rightarrow i+1}\) | Aşağı akış \(q_{i\rightarrow i-1}\) | Hacim |
|---|---|---|---|
| 1 | 7132 L/saat | – | 2,103 L |
| 2 | 3018 L/saat | 7132 L/saat | 1,648 L |
| 3 | 905 L/saat | 3018 L/saat | 3,650 L |
| 4 | 1544 L/saat | 905 L/saat | 2,451 L |
| 5 | 2118 L/saat | 1544 L/saat | 3,386 L |
| 6 | – | 2118 L/saat | 0,8095 L ve zamanla artan hacim |
Temel modelleme bulguları:
- Biyokütle, glikoz ve asetat profilleri model tarafından genel olarak iyi temsil edilmiştir.
- Model, glikoz tüketimi ve asetat üretiminden asetatın yeniden kullanımına geçişi yakalamıştır.
- Çözünmüş oksijen için tek nokta kontrolü, diğer yüksekliklerde aynı oksijen düzeyini garanti etmemiştir.
- CFD destekli doğru bölmelendirme, deneysel oksijen gradyanlarını niteliksel olarak doğru tahmin etmiştir.
- Yanlış bölmelendirme stratejisi, özellikle üst bölgedeki oksijen ölçümlerini iyi açıklayamamıştır.
- Gassing-out deneyleri, üst bölgede oksijen transferinin daha hızlı olabileceğini desteklemiştir.
Şekil ve grafiklerin anlamı:
- Biyoreaktör şeması, sensör ve örnekleme noktalarının alt, orta ve üst konumlara nasıl yerleştirildiğini gösterir. Bu görsel, çalışmanın ana mesajı olan “sensör konumu önemlidir” fikrini doğrudan açıklar.
- Fed-batch büyüme eğrileri, iki deneyin aynı şekilde ilerlemediğini; ikinci çalışmanın daha kısa sürdüğünü ve daha yüksek hücre yoğunluğuna ulaştığını gösterir.
- CFD bölmelendirme görselleri, sirkülasyon bölgeleri arasına yerleştirilen bölme sınırlarının neden daha doğru model verdiğini gösterir. Alternatif sınır seçimi oksijen gradyanını zayıf tahmin eder.
- Glikoz ve asetat karşılaştırma grafikleri, bu metabolitlerde üst-alt farkların küçük olduğunu ve modellemede homojen kabulün makul olduğunu destekler.
- Biyokütle grafiği, üst bölgede hafif daha yüksek OD eğilimi olduğunu ancak bunun temkinli yorumlanması gerektiğini gösterir.
- Oksijen gradyanı grafikleri, çözünmüş oksijenin reaktör yüksekliğiyle arttığını ve alt bölgede daha düşük kaldığını açıkça gösterir.
- Gassing-out grafikleri, havalandırma kesildiğinde DO’nun düştüğünü, havalandırma yeniden başladığında toparlandığını ve bu toparlanma hızının konuma göre değiştiğini gösterir.
- Model-deney karşılaştırma grafikleri, önerilen bölmeli modelin hem sürekli DO ölçümlerini hem de yükseklik değişimlerine bağlı oksijen gradyanlarını genel olarak yakaladığını gösterir.
Genel teknik sonuç: Çalışma, 20 L ölçekli E. coli fed-batch biyoreaktöründe glikoz, asetat ve biyokütle büyük ölçüde homojen görünse bile çözünmüş oksijenin homojen olmayabileceğini göstermektedir. Bu nedenle biyoreaktörlerde tek bir DO sensörünün konumu proses kontrolünde kritik bir değişken olarak ele alınmalıdır.
Kaynak ve Yöntem Notu
Bu makale, Ittisak Promma, Danny Kang, Zahra Negahban, Valerie Ward, Nasser Mohieddin Abukhdeir, Marc G. Aucoin ve Hector Budman tarafından hazırlanan “Probe Location Matters: Oxygen Gradient Measurements and CFD-Informed Modeling Challenge the Well-Mixed Assumption in Bench-Scale Bioreactors” başlıklı çalışmaya dayanarak hazırlanmıştır. Çalışma, University of Waterloo Kimya Mühendisliği Bölümü bağlamında yürütülmüştür.
Kaynak türü, SSRN üzerinde erişime açılmış bir preprint araştırma makalesidir. Metinde açıkça “This preprint research paper has not been peer reviewed” ifadesi yer aldığı için çalışma hakem değerlendirmesinden geçmemiştir. Bu nedenle bulgular, hakemli nihai yayın olarak değil, deneysel ölçüm ve modelleme temelli bir preprint çalışma olarak değerlendirilmelidir.
Bu içerik, çalışmada verilen biyoreaktör deneyleri, E. coli fed-batch koşulları, çözünmüş oksijen ölçümleri, gassing-out testleri, kinetik model denklemleri, CFD destekli bölmeli model yapısı, şekil ve tablo sonuçları temel alınarak hazırlanmıştır. PDF’de yer almayan ürün kalitesi, klinik üretim başarısı, endüstriyel garanti, tüm biyoreaktörlerde aynı sonuçların görüleceği veya ticari uygulanabilirlik gibi iddialar eklenmemiştir.
Çalışma çözünmüş oksijen gradyanlarını ayrıntılı olarak deneysel ve modelleme temelli biçimde ele alırken, pH gradyanlarının gözlendiğini ancak bu makalede ayrıntılı sunulmadığını ve modellenmediğini belirtmektedir. Bu nedenle pH ile oksijen arasındaki bağlantı gelecekte ayrıca araştırılması gereken bir konu olarak görülmelidir.
Sonuçlar, kullanılan biyoreaktör geometrisi, impeller konumları, E. coli suşu, fed-batch koşulları, sensör konumları ve model varsayımları kapsamında geçerlidir. Farklı ölçeklerde, farklı reaktör tasarımlarında veya farklı organizmalarda doğrudan aynı gradyan değerlerinin oluşacağı varsayılmamalıdır. Ancak çalışma, biyoproses izleme ve kontrolünde sensör konumunun ihmal edilmemesi gerektiğine dair güçlü bir teknik uyarı sunmaktadır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir