


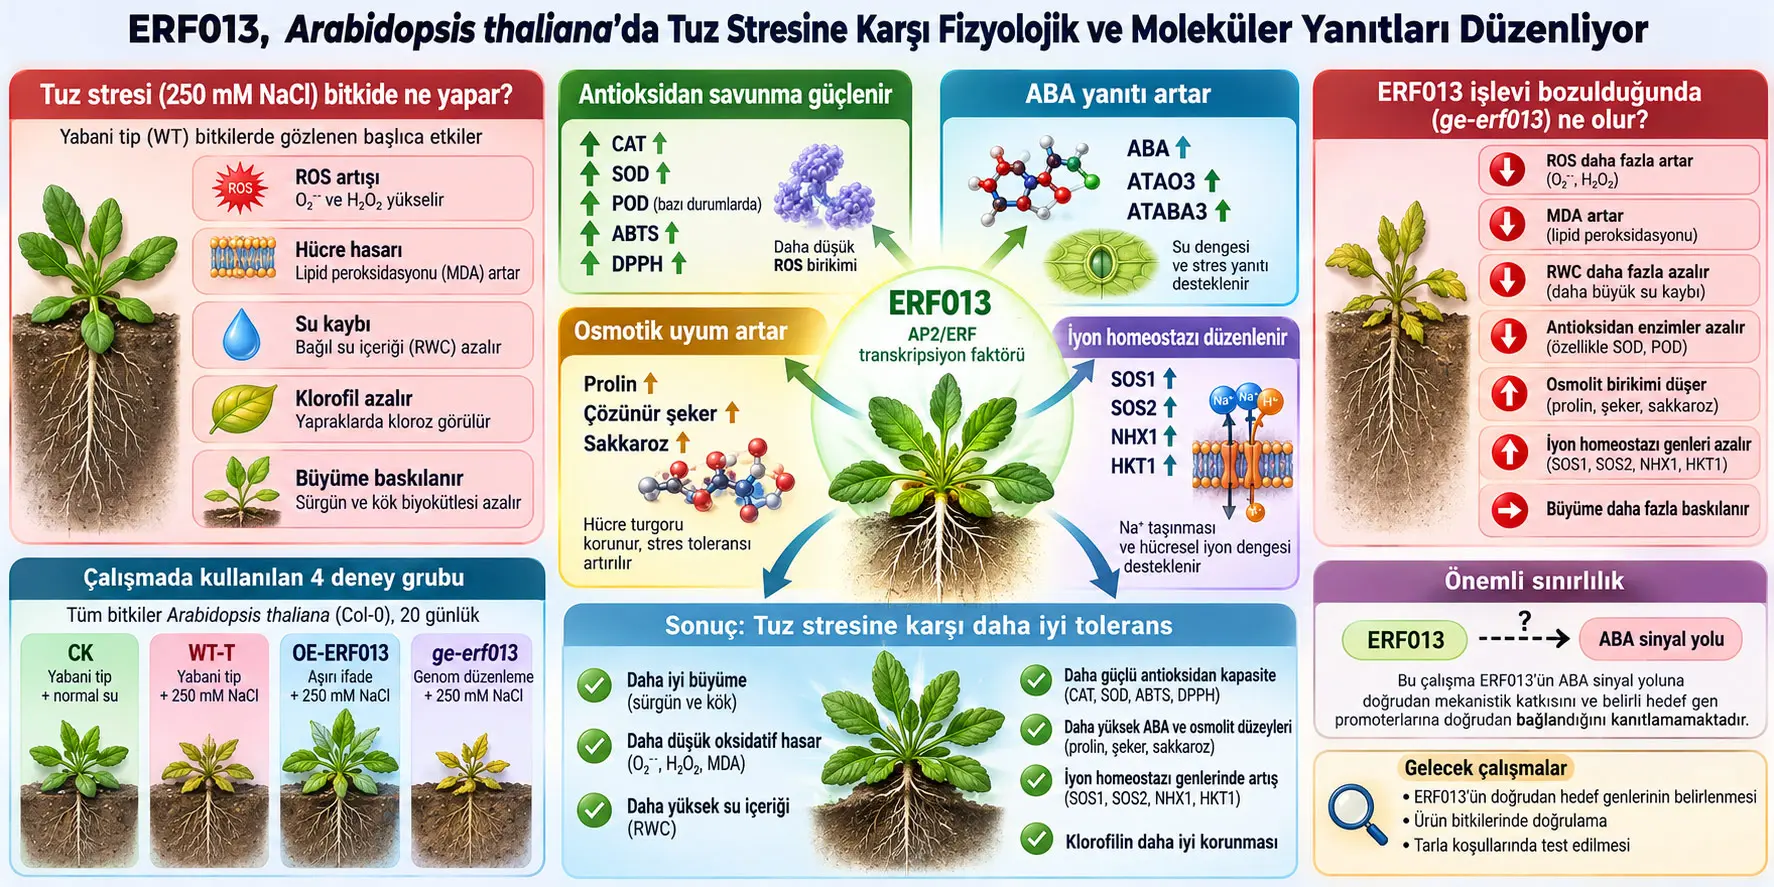
ERF013, APETALA2/Ethylene Responsive Factor (AP2/ERF) transkripsiyon faktörü ailesi içinde yer alan ve bu çalışmada Arabidopsis thaliana'nın tuz stresine verdiği fizyolojik, biyokimyasal ve moleküler yanıtları düzenleyen bir faktör olarak incelenen proteindir. Araştırmacılar, normal yabani tip kontrolünü (CK), 250 mM NaCl uygulanmış yabani tipi (WT-T), ERF013'ü aşırı ifade eden tuz uygulanmış hattı (OE-ERF013) ve ERF013'ü genom düzenlemesiyle bozulan tuz uygulanmış hattı (ge-erf013) karşılaştırmıştır. Bulgular, ERF013 aşırı ifadesinin tuz altında büyümenin korunması, reaktif oksijen türlerinin azaltılması, antioksidan savunmanın güçlendirilmesi, bağıl su içeriğinin korunması, ABA birikiminin artması, osmolit birikimi ve iyon homeostazıyla ilişkili genlerin daha yüksek ekspresyonuyla ilişkili olduğunu göstermektedir. Buna karşılık ge-erf013 bitkileri birçok ölçütte daha ağır tuz-stresi hasarı göstermiştir. Bununla birlikte çalışma, ERF013'ün ABA sinyallemesini veya belirli hedef gen promoterlarını doğrudan bağlanarak düzenlediğini mekanistik olarak kanıtlamamaktadır.
Çalışmada kullanılan bütün bitkiler Arabidopsis thaliana Col-0 ekotipindendir. Bitkiler 16 saat ışık/8 saat karanlık fotoperiyotta, 25 °C ve %60 bağıl nem altında yetiştirilmiştir. Ekimden 20 gün sonra tuz stresi başlatılmış; CK grubu normal su almaya devam ederken WT-T, OE-ERF013 ve ge-erf013 gruplarına 250 mM tuz çözeltisi uygulanmıştır. Birçok fizyolojik, biyokimyasal ve moleküler analiz için tam gelişmiş rozet yaprakları tuz uygulamasından iki gün sonra, yaklaşık saat 10.00'da toplanmış, sıvı azotta dondurulmuş ve −80 °C'de saklanmıştır.
Büyüme sonuçlarında OE-ERF013 bitkilerinin sürgün taze ağırlığı WT-T'ye göre yaklaşık %17, kök taze ağırlığı yaklaşık %100 daha yüksekti. OE-ERF013 kök uzunluğu WT-T'ye göre yaklaşık %6 daha yüksekken, ge-erf013 kök uzunluğu WT-T'ye göre %21 daha düşüktü. İlginç biçimde WT-T kök uzunluğu CK'dan yaklaşık %15 daha yüksek ölçülmüştür. Yazarlar bunu “tuz büyümeyi artırdı” şeklinde yorumlamamakta; tuz uygulamasının çimlenmeden 20 gün sonra, kök sisteminin önemli ölçüde oluşmasından sonra başlaması nedeniyle ölçülen uzunluğun stres öncesi ve sonrası büyümeyi birlikte yansıtması ve olası kök-mimarisi uyumuyla ilişkili olabileceğini belirtmektedir.
Oksidatif stres ölçümlerinde WT-T bitkilerinde süperoksit (O2−) CK'ya göre %62, hidrojen peroksit (H2O2) %134 yükselmiştir. ge-erf013 bitkilerinde artışlar sırasıyla %122 ve %193'tür. OE-ERF013 bitkilerinde ise O2− WT-T'ye göre %34, H2O2 %64 daha düşük bulunmuştur. NBT boyamasında da OE-ERF013 yapraklarındaki daha zayıf mavi renk, daha düşük süperoksit birikimiyle uyumludur.
ERF013 aşırı ifadesi hücresel bütünlüğün korunmasıyla da ilişkiliydi. Tuz stresinde bağıl yaprak su içeriği CK'ya göre WT-T'de %27, ge-erf013'te %39 azalırken OE-ERF013'te düşüş yalnız %15 düzeyindeydi. OE-ERF013 bağıl su içeriği WT-T'den %16 daha yüksekti. Elektrolit sızıntısı WT-T'de CK'ya göre %101, ge-erf013'te %126 yükselirken OE-ERF013'te daha düşük kaldı.
Antioksidan sistemde OE-ERF013 bitkilerinin katalaz (CAT) aktivitesi WT-T'den yaklaşık %55, süperoksit dismutaz (SOD) aktivitesi %44 daha yüksekti. ABTS ile değerlendirilen toplam antioksidan aktivite WT-T'ye göre %67, DPPH radikal temizleme aktivitesi %62 daha yüksekti. ge-erf013 hattında ise malondialdehit (MDA), WT-T'ye göre %47 yükselerek daha fazla lipid peroksidasyonuna işaret etti.
Moleküler düzeyde OE-ERF013 bitkileri iyon homeostazıyla ilişkili SOS1, SOS2, NHX1 ve HKT1 genlerinde güçlü ekspresyon artışı gösterdi. Örneğin NHX1 transkript düzeyi WT-T'de CK'ya göre %260 artarken OE-ERF013'te CK'nın yaklaşık %765 üzerinde raporlandı. SOS2 ekspresyonu OE-ERF013'te WT-T'ye göre %172 yükselirken ge-erf013'te WT-T'ye göre %85 azaldı.
ABA yanıtında OE-ERF013 bitkilerinin endojen absisik asit düzeyi CK düzeyinin %386'sına ulaştı. Buradaki ifade “%386 artış” değil, CK düzeyinin %386'sı anlamındadır. Ayrıca ATAO3 ve ATABA3 genleri OE-ERF013 bitkilerinde güçlü biçimde yükseldi. Bununla birlikte yazarlar ERF013'ün ABA sinyal yoluna doğrudan mekanistik katkısını bu deneyde doğrulamadıklarını açıkça belirtmektedir.
Osmotik uyum bakımından OE-ERF013 bitkileri WT-T'ye göre %54 daha fazla prolin, %54 daha fazla toplam çözünür şeker ve %33 daha fazla sakkaroz biriktirdi. ge-erf013 hattında aynı karşılaştırmalar sırasıyla %38, %23 ve %44 azalma gösterdi. Tuz altında klorofil bütün genotiplerde azaldı; WT-T'de %24, ge-erf013'te %37 düşerken OE-ERF013 daha sınırlı bir azalma gösterdi.
Araştırma problemi nedir?
Tuzluluk bitkilerde iki temel baskıyı aynı anda oluşturabilir: osmotik stres ve iyon toksisitesi. Dış ortamın tuz konsantrasyonu yükseldiğinde bitkinin su alması zorlaşır; aynı zamanda hücre içinde özellikle Na+ birikimi metabolik süreçleri bozabilir. Bu durum reaktif oksijen türlerinin oluşmasını, membran hasarını, protein ve nükleik asit hasarını, su kaybını ve büyüme baskılanmasını artırabilir.
AP2/ERF ailesindeki birçok transkripsiyon faktörünün kuraklık, tuzluluk ve oksidatif stres yanıtlarında görev yaptığı biliniyordu. Buna karşılık ERF013'ün tuz stresindeki özel görevi yeterince açıklanmamıştı. Araştırmacılar daha önce ERF013'ün büyüme ve gelişimde rol oynadığını göstermişti; mevcut çalışma ise ERF013'ün antioksidan savunma, ABA, osmolit birikimi ve iyon homeostazını bir araya getirerek tuz-stresi yanıtına katkıda bulunup bulunmadığını test etmektedir.
ERF013 nedir ve bu çalışmada neyi düzenledi?
ERF013, AP2/ERF ailesine ait bir transkripsiyon faktörüdür; bu çalışmada ERF013'ün yüksek ekspresyonu tuz stresinde daha düşük ROS birikimi, daha güçlü antioksidan kapasite, daha iyi su durumu, artmış ABA ve osmolit düzeyleri, yükselmiş iyon-homeostaz geni ekspresyonu ve daha iyi büyüme performansıyla birlikte görülmüştür. ERF013 işlevinin bozulduğu ge-erf013 hattı ise genel olarak karşıt yönde bir stres fenotipi göstermiştir.
Transkripsiyon faktörü ne demektir?
Transkripsiyon faktörü, hücrede belirli genlerin ne kadar RNA üreteceğini düzenlemeye katkıda bulunan proteindir. AP2/ERF ailesinin üyeleri çeşitli hedef promoter bölgelerindeki cis-düzenleyici dizilerle etkileşebilir. Ancak bu genel ERF biyolojisi ile mevcut çalışmada ERF013 için doğrudan gösterilen mekanizma birbirinden ayrılmalıdır: mevcut deney ERF013'ün hangi promoterlara doğrudan bağlandığını ölçmemiştir.
ERF013 doğrudan SOS1, SOS2, NHX1 veya HKT1 genlerine bağlandı mı?
Bu çalışma bunu göstermemiştir. qRT-PCR yalnız bu genlerin transkript düzeylerinin OE-ERF013 ve ge-erf013 arka planlarında nasıl değiştiğini göstermektedir. Bir genin ekspresyonunun ERF013 varlığında yükselmesi, tek başına ERF013'ün o genin promoterına fiziksel olarak doğrudan bağlandığını kanıtlamaz.
Dört deney grubu neyi temsil ediyor?
| Grup | Genetik yapı | Tuz uygulaması | Bilimsel rol |
|---|---|---|---|
| CK | Yabani tip Col-0 | Normal su | Stressiz temel kontrol |
| WT-T | Yabani tip Col-0 | 250 mM NaCl | Tuz stresinin yabani tipteki etkisini gösteren karşılaştırma |
| OE-ERF013 | ERF013 aşırı ifade hattı | 250 mM NaCl | ERF013 ekspresyon artışının tuz altındaki etkisini test eder |
| ge-erf013 | ERF013 genom-düzenlenmiş hat | 250 mM NaCl | ERF013 işlev kaybının tuz altındaki etkisini test eder |
OE-ERF013 ve ge-erf013 için ayrı tuzsuz eşlenik gruplar bu deney tasarımında raporlanmamıştır. Dolayısıyla mevcut deneyin en güçlü karşılaştırması, genotiplerin tuz stresi altındaki davranışlarıdır.
Reaktif oksijen türleri neden önemlidir?
Reaktif oksijen türleri (ROS), özellikle O2− ve H2O2, tuz stresinde artabilen oksidatif moleküllerdir. Kontrollü düzeylerde hücresel sinyal işlevleri bulunabilir; fakat aşırı birikim lipidleri, proteinleri ve nükleik asitleri okside ederek membran bütünlüğünü ve metabolizmayı bozabilir.
SOD, CAT ve POD neyi gösteriyor?
SOD süperoksit kaynaklı oksidatif yükün kontrolünde, CAT hidrojen peroksitin uzaklaştırılmasında ve POD peroksitlerin detoksifikasyonuyla ilişkili reaksiyonlarda görev alan antioksidan enzimlerdir. Bu çalışma bu enzimlerin aktivitesini doğrudan ölçmüş ve ERF013 genotipleri arasında karşılaştırmıştır.
OE-ERF013'te CAT aktivitesi WT-T'den yaklaşık %55, SOD aktivitesi %44 daha yüksektir. POD'da WT-T ve OE-ERF013 ile CK arasında anlamlı fark saptanmamış; ge-erf013 hattında ise CK'ya göre yaklaşık %60 azalma görülmüştür. Bu sonuç POD'un bütün antioksidan yanıt boyunca diğer enzimlerle aynı büyüklükte değişmediğini de göstermektedir.
NBT boyaması ne gösterir?
Nitro blue tetrazolium (NBT) boyaması, dokudaki süperoksit birikiminin görsel olarak değerlendirilmesinde kullanılan bir yöntemdir. Çalışmada yapraklar %0.1 NBT içinde 25 °C'de karanlıkta 16 saat tutulmuştur. Klorofil daha sonra alkol-laktofenol ile uzaklaştırılmıştır. Daha yoğun mavi renk daha yüksek süperoksit birikimiyle uyumludur. NBT görüntüsü bu nedenle nicel O2− ölçümünü destekleyen görsel kanıttır; tek başına mutlak konsantrasyon ölçümü değildir.
Bağıl Yaprak Su İçeriği Formülü Neyi Ölçer?
Bağıl yaprak su içeriği (RWC), bir yaprağın ölçüm anındaki su durumunu tamamen suya doygun hale getirildiğindeki potansiyel su içeriğine göre yüzde olarak ifade eder; bu nedenle tuz stresinde bitkinin dokuda suyu ne ölçüde koruyabildiğini değerlendiren fizyolojik göstergedir.
RWC formülü
\(\displaystyle RWC(\%)=\frac{FW-DW}{TW-DW}\times100\)
1. Formül neyi hesaplar? Yaprağın mevcut su içeriğinin, dokunun tam turgor durumunda taşıyabileceği kullanılabilir su miktarına oranını.
2. Değişkenler: \(FW\) taze ağırlık; \(TW\) tam turgor sonrası ağırlık; \(DW\) kurutulduktan sonraki kuru ağırlıktır.
3. Birimler: Üç ağırlık aynı birimde ölçülür. Oran boyutsuzdur ve yüzdeye çevrilir.
4. Matematiksel rol: \(FW-DW\) dokuda ölçüm sırasında bulunan suyu; \(TW-DW\) ise tam turgorda bulunabilecek suyu temsil eder.
5. Biyolojik anlam: RWC yüksekse yaprak su durumunu daha iyi koruyor demektir.
6. Çalışmadaki koşul: 5 mm yaprak disklerinin FW'si ölçülmüş; diskler 10 mL saf suda 3 saat bekletilerek TW, ardından 70 °C'de 24 saat kurutularak DW belirlenmiştir.
7. Sonuç: OE-ERF013 tuz altında CK'ya göre yalnız %15 RWC kaybederken WT-T %27, ge-erf013 %39 kaybetmiştir.
MDA neyi ölçüyor?
Malondialdehit (MDA), lipid peroksidasyonunun yaygın göstergelerinden biridir. Hücre membranındaki lipidlerin oksidatif hasarı arttığında MDA düzeyi yükselebilir. Bu nedenle MDA, burada membran lipitlerinin oksidatif zararına ilişkin biyokimyasal gösterge olarak kullanılmıştır.
MDA hesaplama formülü
\(\displaystyle C=\frac{S_a}{S_v}\times D\)
\(C\) hesaplanan MDA içeriğini/konsantrasyonunu, \(S_a\) numunede saptanan MDA miktarını, \(S_v\) numune hacmini ve \(D\) seyreltme faktörünü ifade eder.
10 mg yaprak dokusu 300 µL lysis buffer içinde hazırlanmış, 3 µL BHT eklenmiş, 13.000 rpm'de 10 dakika santrifüjlenmiş ve 200 µL süpernatant 600 µL TBA reaktifiyle 95 °C'de bir saat inkübe edilmiştir. Absorbans 532 nm'de ölçülmüştür.
Elektrolit sızıntısı nasıl hesaplandı?
\(\displaystyle Elektrolit\ Sızıntısı(\%)=\frac{EC_1}{EC_2}\times100\)
\(EC_1\), yaklaşık 100 mg taze yaprak dokusunun 10 mL deiyonize suda 32 °C'de iki saat bekletilmesinden sonra çözeltinin başlangıç elektriksel iletkenliğidir. \(EC_2\), aynı dokular 120 °C'de 20 dakika otoklavlanarak hücrelerde kalan elektrolitler tamamen serbest bırakıldıktan sonraki toplam iletkenliktir.
EC1/EC2 oranının yükselmesi, toplam hücresel iyonların daha büyük bölümünün başlangıçta dış ortama sızdığı anlamına gelir ve membran bütünlüğünün daha fazla bozulmasıyla uyumludur.
ABTS radikal temizleme formülü
\(\displaystyle ABTS\ Temizleme(\%)=\frac{A_c-A_s}{A_c}\times100\)
\(A_c\) kontrol absorbansı, \(A_s\) numune absorbansıdır. Numune ABTS radikalini daha güçlü etkisizleştirirse absorbans düşer ve hesaplanan temizleme yüzdesi yükselir. ABTS•+ radikali 7 mM ABTS ile 2.4 mM potasyum persülfatın eşit hacimlerde karıştırılıp karanlıkta 12 saat bekletilmesiyle hazırlanmış; ölçüm 734 nm'de yapılmıştır.
DPPH radikal temizleme formülü
\(\displaystyle DPPH\ Temizleme(\%)=\left[1-\frac{A-A_0}{B-B_0}\right]\times100\)
\(A\) DPPH–numune karışımının absorbansı; \(A_0\) numune içeren metanol blank'ı; \(B\) DPPH kontrol absorbansı ve \(B_0\) yalnız metanol absorbansıdır. Çıkarma terimleri numunenin kendi optik katkısı ile çözücü arka planını ayırmaya yarar. DPPH ölçümü 517 nm'de, 25 °C'de ve karanlıkta 30 dakikalık inkübasyon sonrasında yapılmıştır.
2^-ΔΔCt Yöntemi Gen Ekspresyonunda Ne Anlama Gelir?
\(2^{-\Delta\Delta Ct}\) yöntemi, qRT-PCR'da hedef gen transkriptini önce referans gene, ardından kontrol grubuna göre normalize ederek göreli ekspresyon değişimini “fold change” olarak ifade eder; bu çalışmada referans gen actin'dir ve istatistiksel analizler üç bağımsız biyolojik tekrardan elde edilen ΔCt değerleri üzerinde yapılmıştır.
qRT-PCR nasıl yapıldı?
Toplam RNA, RNeasy Plant Mini Kit ile izole edilmiştir. 2 µg saflaştırılmış RNA cDNA'ya çevrilmiş; StepOne Plus Real-Time PCR sistemi ve SYBR Green tabanlı 2× Real-Time PCR Master Mix kullanılmıştır. Hedef transkriptler actin referans genine göre normalize edilmiştir.
Kaynağın kullandığı \(2^{-\Delta\Delta Ct}\) yönteminin standart matematiksel açılımı öğretici olarak şu şekilde ifade edilebilir:
\(\displaystyle \Delta Ct=Ct_{hedef}-Ct_{referans}\)
\(\displaystyle \Delta\Delta Ct=\Delta Ct_{örnek}-\Delta Ct_{kontrol}\)
\(\displaystyle Göreli\ ekspresyon=2^{-\Delta\Delta Ct}\)
Bu ara denklemler çalışmanın yeni bulgusu değildir; kaynakta adı verilen \(2^{-\Delta\Delta Ct}\) yönteminin matematiksel açılımıdır.
Ct, floresans sinyalinin belirlenen eşiği geçtiği PCR siklus sayısıdır. Daha düşük Ct, diğer koşullar eşitken başlangıçta daha fazla hedef nükleik asit bulunduğuyla uyumludur. Referans gen normalizasyonu numuneler arasındaki RNA/cDNA miktarı gibi teknik farklılıkları azaltmaya yardımcı olur.
İyon homeostazı genleri ne yapıyor?
SOS1, hücre zarındaki Na+/H+ değişim sistemleriyle ilişkili Na+ uzaklaştırma mekanizmalarının; SOS2, SOS sinyal yolunun düzenleyici bileşenlerinin; NHX1, vakuoler Na+/H+ antiportu ve Na+ sekestrasyonunun; HKT1 ise Na+ taşınmasının düzenlenmesiyle ilişkili genlerden biridir. Bu çalışmada bunların transkript düzeyleri ölçülmüştür; gerçek hücresel Na+ akısı veya transporter protein aktivitesi doğrudan ölçülmemiştir.
| Gen | Karşılaştırma | Kaynak bulgusu | Yorum sınırı |
|---|---|---|---|
| SOS1 | OE-ERF013 vs CK | %195 artış | Transkript düzeyi |
| SOS1 | ge-erf013 vs CK | %56 azalma | Transkript düzeyi |
| SOS1 | OE-ERF013 vs WT-T | %73 artış; istatistiksel olarak anlamlı değil | Doğrudan promoter bağlanması göstermez |
| SOS2 | OE-ERF013 vs WT-T | %172 artış | Transkript düzeyi |
| SOS2 | ge-erf013 vs WT-T | %85 azalma | Transkript düzeyi |
| NHX1 | WT-T vs CK | %260 artış | Transkript düzeyi |
| NHX1 | OE-ERF013 vs CK | %765 artış | Transkript düzeyi |
| HKT1 | OE-ERF013 | WT-T ve CK'ya göre belirgin yükselme | Kaynak metni burada kesin yüzde vermemektedir |
ABA nedir?
Absisik asit (ABA), bitkilerde kuraklık ve tuzluluk gibi su/osmotik stres koşullarında önemli görevleri bulunan fitohormondur. Stomatal davranış, stres genleri, iyon dengesi ve osmolit metabolizması gibi birçok süreçle ilişkilidir.
Çalışmada ABA, tuz uygulamasından iki gün sonra taze yapraklarda ticari Plant Abscisic Acid ELISA Kit ile ölçülmüştür. OE-ERF013 grubundaki ABA düzeyi CK'nın %386'sına ulaşmış; ge-erf013 ise CK'dan %32 daha düşük bulunmuştur.
ATAO3 ve ATABA3 neyi gösteriyor?
Çalışma ATAO3'ü ABA ile ilişkili/ABA-responsive gen, ATABA3'ü ABA biyosenteziyle ilişkili gen olarak değerlendirmektedir. OE-ERF013'te ATAO3 WT-T'ye göre %520 yükselmiştir. ge-erf013'te WT-T'ye göre %76 azalma görülmüş ancak bu karşılaştırma istatistiksel olarak anlamlı değildir.
ATABA3, OE-ERF013'te CK'ya göre %459 artmıştır. WT-T'de CK'ya göre yaklaşık %100 artış raporlanmış ancak bu artış anlamlı değildir. OE-ERF013, WT-T'den %179 daha yüksek; ge-erf013 ise WT-T'den %84 daha düşük ATABA3 ekspresyonu göstermiştir.
Bu veriler ERF013 ile ABA sistemi arasında güçlü ilişkiyi destekler; fakat yazarların kendi sınırlılık bölümünde vurguladığı gibi ERF013'ün ABA sinyaline doğrudan mekanistik katkısı bu deneyde doğrulanmamıştır.
Prolin ve çözünür şekerler neden ölçüldü?
Prolin, çözünür şekerler ve sakkaroz, hücrenin osmotik dengesine katkıda bulunabilen uyumlu çözünen maddelerdir. Tuz stresi dış ortamın su potansiyelini düşürdüğünde bu tür metabolitlerin birikmesi hücresel turgorun, proteinlerin ve membranların korunmasına katkıda bulunabilir.
Prolin için 300 mg taze yaprak dokusu %3 sülfosalisilik asit içinde ekstrakte edilmiş, ninhidrin reaksiyonu uygulanmış ve kromofor 520 nm'de ölçülmüştür. Sonuçlar µg g−1 taze ağırlık olarak ifade edilmiştir.
Toplam çözünür şeker ve sakkaroz, freeze-dried yaprak dokusundan %80 etanol ile ekstrakte edilip HPLC ile ölçülmüştür. Bio-Rad Aminex 87C kolon (300 × 7.8 mm) kullanılmış; mobil faz saf su, akış hızı 0.6 mL dakika−1 olarak belirlenmiştir.
Klorofil nasıl değerlendirildi?
Klorofil içeriği SPAD-502 Plus klorofil ölçerle değerlendirilmiştir. Her tedavi grubunda beş yaprağın apikal, orta ve bazal kısımlarından okumalar alınmış ve ortalama SPAD değeri istatistiksel analize dahil edilmiştir.
Çalışmanın Yöntemi ve Bulguları
Deney düzeni
| Öğe | Kaynakta uygulanan yöntem |
|---|---|
| Bitki | Arabidopsis thaliana Col-0 |
| Yetiştirme | 16 saat ışık / 8 saat karanlık, 25 °C, %60 bağıl nem |
| Tuz uygulama zamanı | Ekimden 20 gün sonra |
| Tuz koşulu | 250 mM NaCl |
| Ana biyokimyasal örnekleme | Tuz uygulamasından iki gün sonra, yaklaşık 10.00 |
| Örnek saklama | Sıvı azotta dondurma, −80 °C |
| Biyolojik tekrar | 3 bağımsız biyolojik tekrar |
| İstatistik | Tek yönlü ANOVA + Tukey çoklu karşılaştırma |
| Raporlama | Ortalama ± standart sapma |
| Grafik yazılımı | GraphPad Prism 10 |
Büyüme ve kök sonuçları
| Ölçüm | OE-ERF013 | ge-erf013 | Referans |
|---|---|---|---|
| Kök uzunluğu | %6 artış | %21 azalma | WT-T'ye göre |
| Sürgün taze ağırlığı | yaklaşık %17 artış | yaklaşık %10 azalma | WT-T'ye göre |
| Kök taze ağırlığı | yaklaşık %100 artış | Düşük | WT-T'ye göre |
Kaynağın rozet fotoğrafları ve kök görüntülerinde WT-T ve ge-erf013 bitkilerinde daha küçük rozet, kloroz ve büyüme baskılanması görülürken OE-ERF013 bitkileri daha iyi yeşil renk ve bitki canlılığını korumuştur. Köklerde OE-ERF013 daha güçlü lateral kök gelişimi göstermiştir.
Oksidatif stres ve hücresel bütünlük
| Ölçüm | WT-T | OE-ERF013 | ge-erf013 |
|---|---|---|---|
| O₂⁻ | CK'ya göre %62 artış | WT-T'ye göre %34 azalış | CK'ya göre %122 artış |
| H₂O₂ | CK'ya göre %134 artış | WT-T'ye göre %64 azalış | CK'ya göre %193 artış |
| Elektrolit sızıntısı | CK'ya göre %101 artış | WT-T'den anlamlı derecede düşük | CK'ya göre %126 artış |
| RWC | CK'ya göre %27 düşüş | CK'ya göre yalnız %15 düşüş; WT-T'den %16 yüksek | CK'ya göre %39 düşüş |
Antioksidan savunma sonuçları
| Gösterge | OE-ERF013 bulgusu | ge-erf013 bulgusu |
|---|---|---|
| CAT | WT-T'den yaklaşık %55 yüksek | CK'dan %23 düşük |
| POD | CK ile anlamlı fark yok | CK'dan yaklaşık %60 düşük |
| SOD | WT-T'den %44 yüksek | WT-T'den %26 düşük; CK'dan %54 düşük |
| ABTS | WT-T'den %67 yüksek; CK ile anlamlı fark yok | Tuz altında azalmış |
| DPPH | WT-T'den %62 yüksek; CK'dan %23 yüksek | WT-T'den %16 düşük |
| MDA | CK'ya yakın ve WT-T'den daha düşük | WT-T'den %47 yüksek |
ABA ve osmolit sonuçları
| Ölçüm | OE-ERF013 | ge-erf013 | Referans |
|---|---|---|---|
| ABA | CK düzeyinin %386'sı | CK'dan %32 düşük | CK |
| ATAO3 | %520 artış | %76 azalış; anlamlı değil | WT-T |
| ATABA3 | %179 artış | %84 azalış | WT-T |
| Prolin | %54 artış | %38 azalış | WT-T |
| Çözünür şeker | %54 artış | %23 azalış | WT-T |
| Sakkaroz | %33 artış | %44 azalış | WT-T |
Pearson korelasyon analizi ne gösterdi?
Büyümeyle ilişkili sürgün taze ağırlığı, kök taze ağırlığı, RWC ve klorofil; CAT, POD ve SOD aktiviteleri ile prolin, çözünür şeker ve sakkaroz gibi osmolitlerle güçlü pozitif korelasyon göstermiştir. Aynı büyüme göstergeleri ROS, elektrolit sızıntısı ve MDA ile negatif korelasyon göstermiştir.
SOS1, SOS2, NHX1 ve HKT1 ekspresyonları; ABA, ATAO3, ATABA3 ve antioksidan kapasiteyle pozitif, oksidatif hasar göstergeleriyle negatif korelasyon göstermiştir. ABA özellikle NHX1 ve HKT1 ekspresyonuyla yakın ilişki göstermiştir.
Kritik yorum sınırı: Pearson korelasyonu iki değişkenin birlikte artıp azalmasını gösterir; bir değişkenin diğerinin doğrudan nedeni olduğunu kanıtlamaz. Dolayısıyla korelasyon matrisi, örneğin ABA'nın doğrudan NHX1'i aktive ettiğini veya ERF013'ün bütün ölçülen genleri doğrudan kontrol ettiğini tek başına göstermez.
İstatistiksel analiz nasıl yapıldı?
Bütün deneyler tamamen rastgele tasarım altında üç bağımsız biyolojik tekrarla gerçekleştirilmiştir. Gruplar arası farklar tek yönlü varyans analizi (one-way ANOVA) ile değerlendirilmiş, grup ortalamalarının ikili karşılaştırılması Tukey çoklu karşılaştırma testiyle yapılmıştır. Sonuçlar ortalama ± standart sapma olarak sunulmuştur.
Şekillerde istatistiksel işaretleme * p<0.05, ** p<0.01, *** p<0.001 ve ns = anlamlı değil biçimindedir. Kaynak metni her karşılaştırmanın kesin p-değerini ayrı ayrı listelemediğinden Verianla yıldız kategorilerinden sahte hassasiyetle kesin p-değeri üretmemektedir.
Çalışmanın desteklediği sonuçlar
- ERF013 aşırı ifadesi, 250 mM NaCl altında daha iyi sürgün ve kök performansıyla ilişkilidir.
- OE-ERF013 bitkileri WT-T ve ge-erf013'e göre daha düşük ROS birikimi göstermektedir.
- ERF013 aşırı ifadesi antioksidan savunma kapasitesinin daha iyi korunmasıyla ilişkilidir.
- OE-ERF013 bitkilerinde bağıl su içeriği daha iyi korunmuş ve membran hasarı daha düşük olmuştur.
- SOS1, SOS2, NHX1 ve HKT1 ekspresyonları OE-ERF013'te artarken ge-erf013'te genel olarak baskılanmıştır.
- ERF013 aşırı ifadesi daha yüksek ABA birikimi ve ATAO3/ATABA3 ekspresyonuyla ilişkilidir.
- OE-ERF013 bitkilerinde prolin, çözünür şeker ve sakkaroz birikimi daha yüksektir.
- ge-erf013 hattı oksidatif hasar, su kaybı ve büyüme baskılanması bakımından daha duyarlı fenotip göstermektedir.
Çalışmanın desteklemediği sonuçlar
- ERF013'ün ABA sinyal yolunu doğrudan aktive ettiği mekanistik olarak kanıtlanmamıştır.
- ERF013'ün SOS1, SOS2, NHX1, HKT1, ATAO3 veya ATABA3 promoterlarına doğrudan bağlandığı gösterilmemiştir.
- ERF013'ün antioksidan genlerini doğrudan GCC-box bağlanmasıyla düzenlediği mevcut deney tarafından gösterilmemiştir.
- Pearson korelasyonları nedensellik kanıtı değildir.
- Arabidopsis'te elde edilen sonuçlar doğrudan tarla bitkilerine genellenemez.
- 250 mM NaCl altında kontrollü laboratuvar/sera koşullarındaki performans gerçek tarla tuzluluğunda aynı etkinliği garanti etmez.
- Çalışma ERF013 tabanlı ticari tuza dayanıklı ürün geliştirilmiş olduğunu göstermez.
- OE-ERF013 ve ge-erf013 için tuzsuz eşlenik gruplar bu deneyde raporlanmadığından bütün bazal genotip etkileri mevcut deney içinde ayrılamaz.
Çalışmanın güçlü yönleri
Çalışmanın başlıca güçlü yönü tek bir fenotip ölçümüne dayanmamasıdır. Büyüme, ROS, membran hasarı, su durumu, enzimatik antioksidanlar, kimyasal radikal temizleme, lipid peroksidasyonu, ABA, osmolitler, klorofil ve gen ekspresyonu aynı deneysel çerçevede değerlendirilmiştir.
İkinci güçlü yön, yalnız ERF013 aşırı ifade hattının değil, genom-düzenlenmiş erf013 hattının da kullanılmasıdır. Aşırı ifade ve işlev kaybının büyük ölçüde karşıt fenotipler oluşturması, ERF013 ile tuz-stresi yanıtı arasındaki ilişkiyi tek yönlü aşırı ifade deneyine kıyasla daha kapsamlı desteklemektedir.
Üçüncü güçlü yön, fizyolojik sonuçların moleküler gen-ekspresyon verileriyle birlikte değerlendirilmesi ve Pearson korelasyon matrisiyle farklı stres yanıt katmanlarının ilişkisinin araştırılmasıdır.
Temel sınırlılıklar
ABA mekanizması: Yazarların açıkça belirttiği en önemli sınırlılık, ERF013'ün ABA sinyallemesine doğrudan katkısının deneysel olarak doğrulanmamış olmasıdır.
Doğrudan hedef genler: ERF013 için genom çapında hedef belirleme veya doğrudan promoter bağlanma deneyi yapılmamıştır. Bu nedenle gen ekspresyonundaki değişimlerin doğrudan mı yoksa dolaylı düzenleyici ağlar üzerinden mi gerçekleştiği bilinmemektedir.
Model bitki: Deney Arabidopsis thaliana ile yapılmıştır. Tarımsal ürün türlerinde aynı etkinin büyüklüğü veya yönü doğrudan gösterilmemiştir.
Tarla koşulları: 250 mM NaCl ile kontrollü ortamda uygulanan stres, gerçek tarla tuzluluğunun zamansal ve mekânsal karmaşıklığını tam olarak temsil etmez. Kaynak gelecekte tarla açısından gerçekçi tuzluluk koşullarında ürün bitkilerinde doğrulamayı açıkça önermektedir.
Deneysel grup yapısı: Mevcut çalışmada OE-ERF013 ve ge-erf013 için ayrı tuzsuz kontrol grupları raporlanmamıştır. Çalışmanın tasarımı özellikle tuz koşulundaki ERF013 fonksiyonunu değerlendirmeye odaklanmıştır.
Biyolojik tekrar sayısı: Ana deneyler üç bağımsız biyolojik tekrarla yürütülmüştür. Bu, kontrollü moleküler bitki deneylerinde kullanılan bir tasarım olmakla birlikte geniş çevresel/genetik çeşitliliği temsil eden saha popülasyonu değildir.
Gelecek çalışmalar
Yazarlar ERF013'ün gerçek hedef genlerinin ve düzenleyici mekanizmalarının genom çapında yöntemlerle belirlenmesini önermektedir. Böylece hangi genlerin ERF013 tarafından doğrudan, hangilerinin ikincil sinyal ağları üzerinden değiştirildiği ayrıştırılabilir.
İkinci önemli gelecek adımı, ERF013 işlevinin ürün bitkilerinde ve gerçek tarımsal tuzluluk koşullarına daha yakın ortamlarda doğrulanmasıdır. Ancak mevcut çalışma bu tarımsal uygulamanın başarıyla tamamlandığını göstermemektedir.
Kaynak ve Yöntem Notu
Özgün başlık: Ethylene-Responsive Transcription Factor 013 Regulates Physiological and Molecular Responses to Salt Stress in Arabidopsis thaliana.
Yazarlar ve sıra: Rahmatullah Jan, Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki, Mohammad Alfredan, Sajjad Asaf, Kyung-Min Kim.
Eş katkı: Rahmatullah Jan ve Shahzad Iqbal eşit katkı sağlamıştır.
Sorumlu yazarlar: Sajjad Asaf ve Kyung-Min Kim.
Kurum 1: Coastal Agriculture Research Institute, Kyungpook National University, Daegu 41566, Republic of Korea.
Kurum 2: Department of Semiconductor Engineering, Gachon University, Seongnamdaero, Sujeong-gu, Seongnam-si 13120, Republic of Korea.
Kurum 3: Department of Biological Sciences, College of Science, King Faisal University, Al-Ahsa 31982, Saudi Arabia.
Kurum 4: Natural and Medical Science Research Center, University of Nizwa, Nizwa 616, Oman.
Kurum 5: Department of Applied Biosciences, Graduate School, Kyungpook National University, Daegu 41566, Republic of Korea.
Dergi: Antioxidants.
Yayınevi: MDPI, Basel, Switzerland.
Cilt / sayı / makale numarası: 15(7), 834.
DOI: 10.3390/antiox15070834.
Received: 12 Mayıs 2026.
Revised: 25 Haziran 2026.
Accepted: 29 Haziran 2026.
Published: 1 Temmuz 2026.
Kaynak türü: Özgün deneysel bitki fizyolojisi ve moleküler biyoloji araştırma makalesi.
Hakemlik durumu: Yayımlanmış dergi makalesidir ve Received–Revised–Accepted yayın süreci raporlanmaktadır. PDF ayrı bir “peer-reviewed” etiketi sunmamaktadır.
Preprint durumu: Sağlanan PDF yayımlanmış dergi makalesidir; preprint değildir.
Lisans: PDF, Creative Commons Attribution (CC BY) lisansını açıkça belirtmektedir. PDF üzerinde lisans sürüm numarası açık biçimde yazılmadığından burada sürüm numarası tahmin edilmemiştir.
Akademik editör: Alessandra Napolitano.
Model organizma: Arabidopsis thaliana ecotype Col-0.
Deney grupları: CK, WT-T, OE-ERF013 ve ge-erf013.
Tuz stresi: 250 mM NaCl.
Stres başlangıcı: Ekimden 20 gün sonra.
Yetiştirme: 16 saat ışık / 8 saat karanlık, 25 °C, %60 bağıl nem.
Ana örnekleme: Tuz uygulamasından iki gün sonra, yaklaşık 10.00.
Saklama: Sıvı azotta hızlı dondurma ve −80 °C.
Biyolojik tekrar: Üç bağımsız biyolojik tekrar.
NBT: %0.1 NBT, 25 °C, 16 saat karanlık inkübasyon.
RWC: 5 mm yaprak diskleri; 10 mL saf suda 3 saat turgor; 70 °C'de 24 saat kurutma.
MDA: Sigma MDA Assay Kit; 10 mg yaprak, 300 µL lysis buffer + 3 µL BHT; 13.000 rpm 10 dakika; TBA reaksiyonu 95 °C 1 saat; 532 nm.
Elektrolit sızıntısı: Yaklaşık 100 mg yaprak; 10 mL su; 32 °C 2 saat; ardından 120 °C'de 20 dakika otoklav.
ABTS: 7 mM ABTS + 2.4 mM potasyum persülfat; 12 saat karanlık; 734 nm.
DPPH: %0.1 DPPH; 100 µL ekstrakt + 100 µL DPPH; 25 °C'de 30 dakika karanlık; 517 nm.
qRT-PCR: RNeasy Plant Mini Kit; 2 µg RNA; qPCR-Bio cDNA Synthesis Kit; StepOne Plus Real-Time PCR System; SYBR Green tabanlı 2× Real-Time PCR Master Mix; actin referans geni; \(2^{-\Delta\Delta Ct}\) göreli ekspresyon yöntemi.
ABA: Plant Abscisic Acid ELISA Kit.
Prolin: 300 mg taze yaprak; %3 sülfosalisilik asit; ninhidrin reaksiyonu; 520 nm; µg g−1 FW.
Çözünür şeker ve sakkaroz: Freeze-dried doku; %80 etanol ekstraksiyonu; HPLC; Bio-Rad Aminex 87C, 300 × 7.8 mm; saf su mobil faz; 0.6 mL dakika−1.
Klorofil: SPAD-502 Plus; her grupta beş yaprağın apikal, orta ve bazal bölgeleri.
İstatistik: Tamamen rastgele tasarım; tek yönlü ANOVA; Tukey çoklu karşılaştırma testi; ortalama ± SD.
Grafik yazılımı: GraphPad Prism 10.
Anlamlılık gösterimi: * p<0.05; ** p<0.01; *** p<0.001; ns = anlamlı değil.
Korelasyon: Pearson korelasyon analizi.
Supplementary Material: Table S1; qRT-PCR için kullanılan genler, primer dizileri ve accession numaraları.
Yazar katkıları: Rahmatullah Jan ve Sajjad Asaf deney tasarımı, araştırma ve ilk taslak yazımına; Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki ve Mohammad Alfredan veri hazırlamaya; Kyung-Min Kim ilk taslak yazımı, süpervizyon ve finansman teminine katkı sağlamıştır. Tüm yazarlar yayımlanan sürümü okuyup onaylamıştır.
Finansman: Cooperative Research Program for Agriculture Science and Technology Development, Rural Development Administration, Republic of Korea, Project No. RS-2026-25516544; ayrıca King Faisal University Deanship of Scientific Research tarafından KFU263553 numaralı destek.
Institutional Review Board: Uygulanabilir değil.
Informed Consent: Uygulanabilir değil.
Veri erişilebilirliği: Yazarlar çalışmanın bulgularını destekleyen bütün verilerin makale içinde bulunduğunu bildirmektedir.
Çıkar çatışması: Yazarlar çıkar çatışması olmadığını bildirmiştir.
Temel bilimsel sınırlılık: ERF013'ün ABA sinyallemesine doğrudan katkısı deneysel olarak doğrulanmamıştır. ERF013'ün doğrudan hedef genlerinin ve düzenleyici bağlanma mekanizmalarının genom çapında yöntemlerle belirlenmesi gerekmektedir.
Uygulama sınırı: Sonuçlar Arabidopsis ve kontrollü 250 mM NaCl stres koşuluna aittir. Ürün bitkilerinde ve tarla açısından gerçekçi tuzluluk koşullarında doğrulama henüz gereklidir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir