


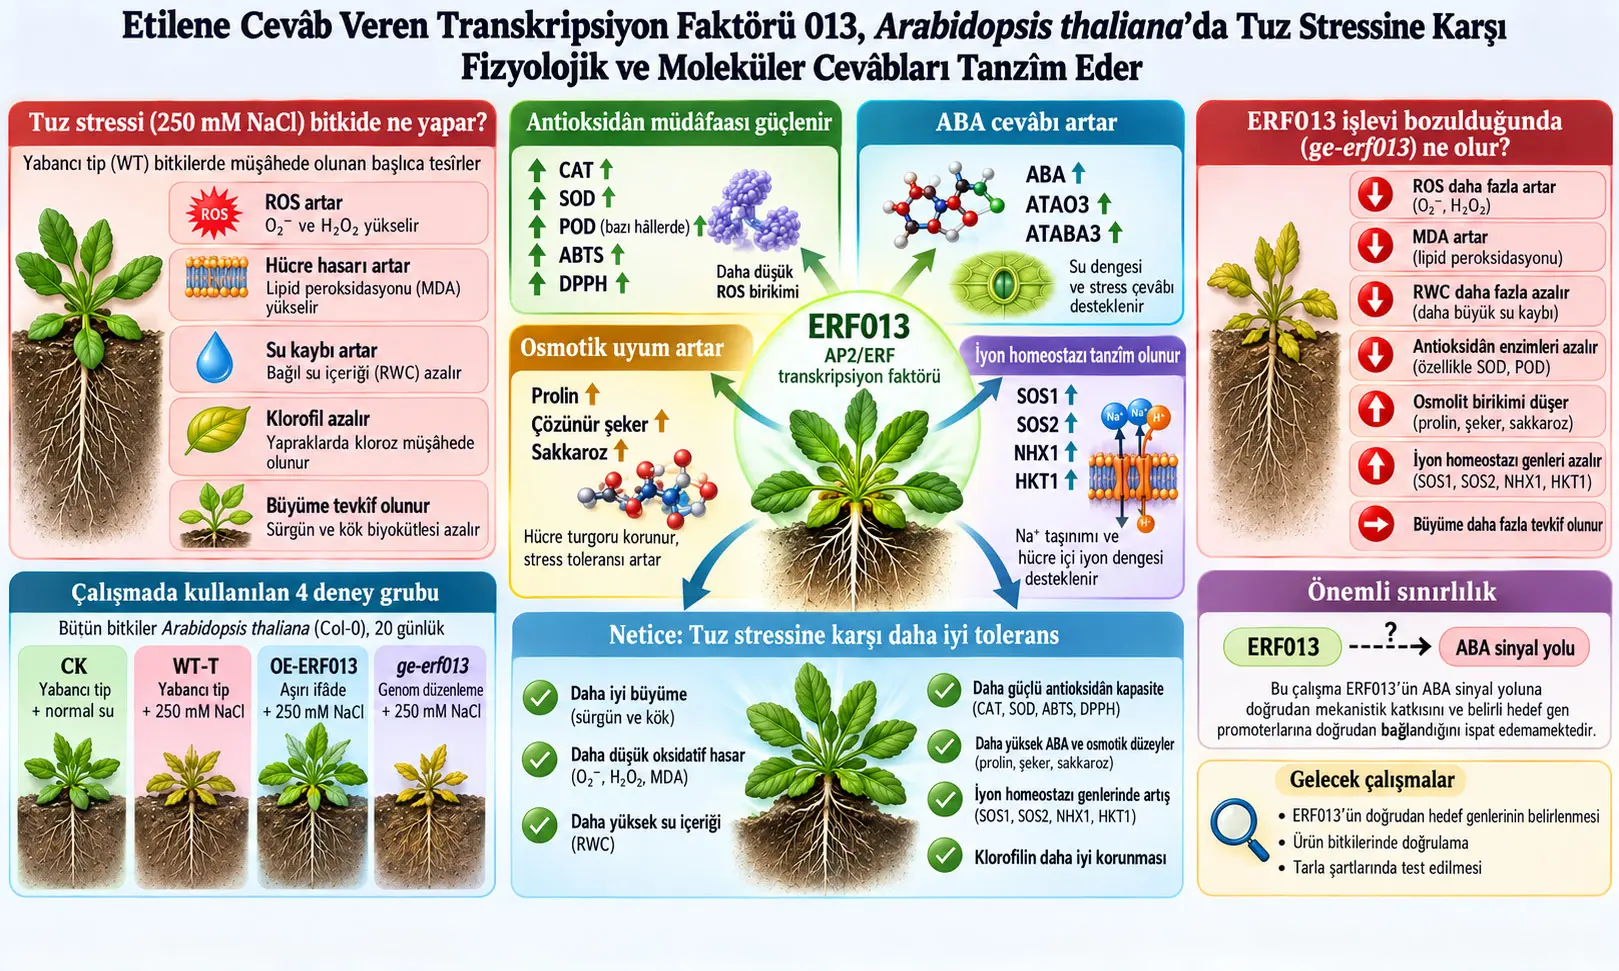
ERF013, APETALA2/Ethylene Responsive Factor (AP2/ERF) transkripsiyon faktörü ʿâʾilesi dâḫilinde bulunan ve bu taḥḳîḳda Arabidopsis thaliananın tuz stressine verdiği fizyolojik, biyokimyâvî ve moleküler cevâbları tanzîm eden bir ʿâmil ṣıfatıyla tedḳîḳ olunan proteindir. Muḥaḳḳiḳler normal yabânî tip ḳontrolünü (CK), 250 mM NaCl tatbîḳ olunmuş yabânî tipi (WT-T), ERF013ü aşırı ekspresyon eden tuz tatbîḳ olunmuş ḫattı (OE-ERF013) ve ERF013 fonksiyonu genom düzenlemesiyle bozulan tuz tatbîḳ olunmuş ḫattı (ge-erf013) muḳâyese etmişlerdir. Netîceler ERF013 aşırı ekspresyonunun tuz altında neşv ü nemânın muḥâfazası, reaktif oksijen türlerinin tenâḳuṣu, antioksidan müdâfaʿanın taḳviyesi, nisbî su muḥtevâsının muḥâfazası, ABA terâkümünün tezâyüdü, osmolit terâkümü ve iyon homeostazı ile alâḳalı genlerin daha yüksek ekspresyonu ile münâsebetdâr olduğunu göstermektedir. Buna muḳâbil ge-erf013 nebâtları birçok miʿyârda daha şedîd tuz-stress zararı göstermiştir. Bununla berâber taḥḳîḳ ERF013ün ABA sinyallemesini yâḫud muʿayyen hedef gen promoterlarını doğrudan bağlanma yoluyla tanzîm ettiğini mekanistik sûrette isbât etmemektedir.
Taḥḳîḳda kullanılan bütün nebâtlar Arabidopsis thaliana Col-0 ekotipindendir. Nebâtlar 16 sâʿat ziyâ/8 sâʿat zulmet fotoperiyodunda, 25 °C ve %60 nisbî rutûbet altında yetişdirilmiştir. Ekimden 20 gün sonra tuz stressi başlatılmış; CK grubu normal su almağa devâm ederken WT-T, OE-ERF013 ve ge-erf013 grublarına 250 mM tuz maḥlûlü tatbîḳ olunmuştur. Birçok fizyolojik, biyokimyâvî ve moleküler taḥlîl için tam inkişâf etmiş rozet yaprakları tuz tatbîḳinden iki gün sonra, taḳrîben sâʿat 10.00'da cemʿ edilmiş, mâyiʿ azotda dondurulmuş ve −80 °Cde muḥâfaza olunmuştur.
Neşv ü nemâ netîcelerinde OE-ERF013 nebâtlarının sürgün tâze vezni WT-Tye nisbetle taḳrîben %17, kök tâze vezni taḳrîben %100 daha yüksek idi. OE-ERF013 kök uzunluğu WT-Tye nisbetle taḳrîben %6 daha yüksek iken, ge-erf013 kök uzunluğu WT-Tye nisbetle %21 daha düşüktü. Şâyân-ı dikkat sûrette WT-T kök uzunluğu CKdan taḳrîben %15 daha yüksek ölçülmüştür. Müʾellifler bunu “tuz neşv ü nemâyı artırdı” şeklinde tefsîr etmemekte; tuz tatbîḳinin çimlenmeden 20 gün sonra, kök sisteminin mühim mikdârda teşekkülünden sonra başlaması sebebiyle ölçülen uzunluğun stressden evvelki ve sonraki neşv ü nemâyı bir arada aksettirmesi ve muhtemel kök-mîmârîsi uyumuyla alâḳalı olabileceğini beyân etmektedir.
Oksidatif stress ölçmelerinde WT-T nebâtlarında süperoksit (O2−) CKya nisbetle %62, hidrojen peroksit (H2O2) %134 yükselmiştir. ge-erf013 nebâtlarında artışlar sırasıyla %122 ve %193'dür. OE-ERF013 nebâtlarında ise O2− WT-Tye nisbetle %34, H2O2 %64 daha düşük bulunmuştur. NBT boyamasında da OE-ERF013 yapraklarındaki daha zayıf mâvî renk, daha az süperoksit terâkümüyle muvâfıḳdır.
ERF013 aşırı ekspresyonu hücrevî bütünlüğün muḥâfazasıyla da münâsebetdâr idi. Tuz stressinde nisbî yaprak su muḥtevâsı CKya nisbetle WT-Tde %27, ge-erf013de %39 azalırken OE-ERF013de tenâḳuṣ yalnız %15 seviyesinde idi. OE-ERF013 nisbî su muḥtevâsı WT-Tden %16 daha yüksek idi. Elektrolit sızıntısı WT-Tde CKya nisbetle %101, ge-erf013de %126 yükselirken OE-ERF013de daha düşük kaldı.
Antioksidan sistemde OE-ERF013 nebâtlarının katalaz (CAT) faʿâliyeti WT-Tden taḳrîben %55, süperoksit dismutaz (SOD) faʿâliyeti %44 daha yüksek idi. ABTS ile taḳdîr olunan mecmûʿ antioksidan faʿâliyeti WT-Tye nisbetle %67, DPPH radikal temizleme faʿâliyeti %62 daha yüksek idi. ge-erf013 ḫattında ise malondialdehit (MDA), WT-Tye nisbetle %47 yükselerek daha ziyâde lipid peroksidasyonuna işâret etti.
Moleküler seviyede OE-ERF013 nebâtları iyon homeostazıyla alâḳalı SOS1, SOS2, NHX1 ve HKT1 genlerinde kuvvetli ekspresyon tezâyüdü gösterdi. Meselâ NHX1 transkript seviyesi WT-Tde CKya nisbetle %260 artarken OE-ERF013de CKnın taḳrîben %765 fevḳinde rapor edildi. SOS2 ekspresyonu OE-ERF013de WT-Tye nisbetle %172 yükselirken ge-erf013de WT-Tye nisbetle %85 azaldı.
ABA cevâbında OE-ERF013 nebâtlarının endojen absisik asit seviyesi CK seviyesinin %386'sına ulaştı. Buradaki ifâde “%386 artış” değil, CK seviyesinin %386'sı maʿnâsındadır. Ayrıca ATAO3 ve ATABA3 genleri OE-ERF013 nebâtlarında kuvvetle yükseldi. Bununla berâber müʾellifler ERF013ün ABA sinyal yoluna doğrudan mekanistik katkısını bu tecrübede tasdîḳ etmediklerini açıkça beyân etmektedir.
Osmotik uyum bakımından OE-ERF013 nebâtları WT-Tye nisbetle %54 daha ziyâde prolin, %54 daha ziyâde mecmûʿ çözünür şeker ve %33 daha ziyâde sakkaroz terâküm etdirdi. ge-erf013 ḫattında aynı muḳâyeseler sırasıyla %38, %23 ve %44 tenâḳuṣ gösterdi. Tuz altında klorofil bütün genotiplerde azaldı; WT-Tde %24, ge-erf013de %37 düşerken OE-ERF013 daha maḥdûd bir azalma gösterdi.
Taḥḳîḳ mesʾelesi nedir?
Tuzluluk nebâtlarda aynı zamanda iki esâs baskı tevlîd edebilir: osmotik stress ve iyon toksisitesi. Ḫâricî muḥîtin tuz konsantrasyonu yükseldiğinde nebâtın su alması güçleşir; aynı zamanda hücre içinde ḫuṣûsen Na+ terâkümü metabolik süreçleri bozabilir. Bu ḥâl reaktif oksijen türlerinin teşekkülünü, membran hasarını, protein ve nükleik asit hasarını, su kaybını ve neşv ü nemânın baskılanmasını artırabilir.
AP2/ERF ʿâʾilesindeki birçok transkripsiyon faktörünün ḳuraklık, tuzluluk ve oksidatif stress cevâblarında vazîfe gördüğü maʿlûm idi. Buna muḳâbil ERF013ün tuz stressindeki ḫuṣûṣî vazîfesi kâfî derecede îzâḥ olunmamıştı. Muḥaḳḳiḳler evvelce ERF013ün neşv ü nemâ ve inkişâfda rol oynadığını göstermişti; mevcûd taḥḳîḳ ise ERF013ün antioksidan müdâfaʿa, ABA, osmolit terâkümü ve iyon homeostazını bir araya getirerek tuz-stress cevâbına katkıda bulunup bulunmadığını imtiḥân etmektedir.
ERF013 nedir ve bu taḥḳîḳda neyi tanzîm etdi?
ERF013, AP2/ERF ʿâʾilesine mensûb bir transkripsiyon faktörüdür; bu taḥḳîḳda ERF013ün yüksek ekspresyonu tuz stressinde daha düşük ROS terâkümü, daha kuvvetli antioksidan kapasite, daha iyi su vazʿiyeti, artmış ABA ve osmolit seviyeleri, yükselmiş iyon-homeostaz geni ekspresyonu ve daha iyi neşv ü nemâ performansıyla beraber müşâhede olunmuştur. ERF013 fonksiyonu bozulan ge-erf013 ḫattı ise umûmen aksi istikāmette bir stress fenotipi göstermiştir.
Transkripsiyon faktörü ne demektir?
Transkripsiyon faktörü, hücrede muʿayyen genlerin ne mikdâr RNA hâsıl edeceğinin tanzîmine yardım eden proteindir. AP2/ERF ʿâʾilesi aʿżâları muhtelif hedef promoter mıntıkalarındaki cis-düzenleyici dizilerle teʿâmül edebilir. Lâkin bu umûmî ERF biyolojisi ile mevcûd taḥḳîḳda ERF013 için doğrudan gösterilen mekanizma birbirinden tefrîḳ olunmalıdır: mevcûd tecrübe ERF013ün hangi promoterlara doğrudan bağlandığını ölçmemiştir.
ERF013 doğrudan SOS1, SOS2, NHX1 yâḫud HKT1 genlerine bağlandı mı?
Bu taḥḳîḳ bunu göstermemiştir. qRT-PCR yalnız bu genlerin transkript seviyelerinin OE-ERF013 ve ge-erf013 zemînlerinde nasıl tebeddül etdiğini göstermektedir. Bir genin ekspresyonunun ERF013 mevcûdiyetinde yükselmesi, tek başına ERF013ün o genin promoterına fizikî sûrette doğrudan bağlandığını isbât etmez.
Dört tecrübe grubu neyi temsîl ediyor?
| Grub | Genetik bünye | Tuz tatbîḳi | ʿİlmî rol |
|---|---|---|---|
| CK | Yabânî tip Col-0 | Normal su | Stressiz esâs ḳontrol |
| WT-T | Yabânî tip Col-0 | 250 mM NaCl | Tuz stressinin yabânî tipdeki teʾsîrini gösteren muḳâyese |
| OE-ERF013 | ERF013 aşırı ekspresyon ḫattı | 250 mM NaCl | ERF013 ekspresyon artışının tuz altındaki teʾsîrini imtiḥân eder |
| ge-erf013 | ERF013 genom-düzenlenmiş ḫattı | 250 mM NaCl | ERF013 fonksiyon kaybının tuz altındaki teʾsîrini imtiḥân eder |
OE-ERF013 ve ge-erf013 için ayrı tuzsuz eşlenik grublar bu tecrübe tertîbinde rapor edilmemiştir. Binâʾenaleyh mevcûd tecrübenin en kuvvetli muḳâyesesi genotiplerin tuz stressi altındaki tavırlarıdır.
Reaktif oksijen türleri niçin mühimdir?
Reaktif oksijen türleri (ROS), ḫuṣûsen O2− ve H2O2, tuz stressinde artabilen oksidatif moleküllerdir. Kontrollü seviyelerde hücrevî sinyal vazîfeleri bulunabilir; lâkin aşırı terâküm lipidleri, proteinleri ve nükleik asitleri okside ederek membran bütünlüğünü ve metabolizmayı bozabilir.
SOD, CAT ve POD neyi gösteriyor?
SOD süperoksit kaynaklı oksidatif yükün ḳontrolünde, CAT hidrojen peroksidin izâlesinde ve POD peroksitlerin detoksifikasyonuyla alâḳalı reaksiyonlarda vazîfe gören antioksidan enzimlerdir. Bu taḥḳîḳ bu enzimlerin faʿâliyetini doğrudan ölçmüş ve ERF013 genotipleri arasında muḳâyese etmiştir.
OE-ERF013de CAT faʿâliyeti WT-Tden taḳrîben %55, SOD faʿâliyeti %44 daha yüksektir. PODda WT-T ve OE-ERF013 ile CK arasında maʿnen mühim fark tesbît edilmemiş; ge-erf013 ḫattında ise CKya nisbetle taḳrîben %60 azalma görülmüştür. Bu netîce PODun bütün antioksidan cevâb müddetince diğer enzimlerle aynı mikdârda tebeddül etmediğini de göstermektedir.
NBT boyaması ne gösterir?
Nitro blue tetrazolium (NBT) boyaması, dokudaki süperoksit terâkümünün görsel sûrette taḳdîrinde kullanılan bir usûldür. Taḥḳîḳda yapraklar %0.1 NBT içinde 25 °Cde karanlıkda 16 sâʿat tutulmuştur. Klorofil daha sonra alkol-laktofenol ile izâle edilmiştir. Daha kesîf mâvî renk daha yüksek süperoksit terâkümüyle muvâfıḳdır. NBT sûreti bu sebeple kemmî O2− ölçümünü destekleyen görsel delîldir; tek başına mutlak konsantrasyon ölçümü değildir.
Nisbî Yaprak Su Muḥtevâsı Formülü Neyi Ölçer?
Nisbî yaprak su muḥtevâsı (RWC), bir yaprağın ölçüm ânındaki su vazʿiyetini tam suya doymuş ḥâldeki potansiyel su muḥtevâsına nisbetle yüzde olarak ifâde eder; bu sebeple tuz stressinde nebâtın dokuda suyu ne mikdâr muḥâfaza edebildiğini taḳdîr eden fizyolojik göstergedir.
RWC formülü
\(\displaystyle RWC(\%)=\frac{FW-DW}{TW-DW}\times100\)
1. Formül neyi ḥisâb eder? Yaprağın mevcûd su muḥtevâsının, dokunun tam turgor ḥâlinde taşıyabileceği kullanılabilir su mikdârına nisbetini.
2. Müteġayyirler: \(FW\) tâze vezin; \(TW\) tam turgordan sonraki vezin; \(DW\) kurutulduktan sonraki kuru vezindir.
3. Birimler: Üç vezin aynı birimde ölçülür. Nisbet boyutsuzdur ve yüzdeye çevrilir.
4. Riyâżî rol: \(FW-DW\) ölçüm zamânında dokuda bulunan suyu; \(TW-DW\) ise tam turgorda bulunabilecek suyu temsîl eder.
5. Biyolojik maʿnâ: RWC yüksek ise yaprak su vazʿiyetini daha iyi muḥâfaza ediyor demektir.
6. Taḥḳîḳdaki şart: 5 mm yaprak disklerinin FWsi ölçülmüş; diskler 10 mL saf suda 3 sâʿat bekletilerek TW, ardından 70 °Cde 24 sâʿat kurutularak DW taʿyîn edilmiştir.
7. Netîce: OE-ERF013 tuz altında CKya nisbetle yalnız %15 RWC kaybederken WT-T %27, ge-erf013 %39 kaybetmiştir.
MDA neyi ölçüyor?
Malondialdehit (MDA), lipid peroksidasyonunun yaygın göstergelerinden biridir. Hücre membranındaki lipidlerin oksidatif hasarı arttığında MDA seviyesi yükselebilir. Bu sebeple MDA burada membran lipidlerinin oksidatif zararına dâʾir biyokimyâvî gösterge olarak kullanılmıştır.
MDA ḥisâb formülü
\(\displaystyle C=\frac{S_a}{S_v}\times D\)
\(C\) ḥisâb olunan MDA muḥtevâsını/konsantrasyonunu, \(S_a\) numûnede tesbît edilen MDA mikdârını, \(S_v\) numûne hacmini ve \(D\) seyreltme faktörünü ifâde eder.
10 mg yaprak dokusu 300 µL lysis buffer içinde hazırlanmış, 3 µL BHT ilâve edilmiş, 13.000 rpmde 10 dakika santrifüj edilmiş ve 200 µL süpernatant 600 µL TBA reaktifiyle 95 °Cde bir sâʿat inkübe edilmiştir. Absorbans 532 nmde ölçülmüştür.
Elektrolit sızıntısı nasıl ḥisâb edildi?
\(\displaystyle Elektrolit\ Sızıntısı(\%)=\frac{EC_1}{EC_2}\times100\)
\(EC_1\), taḳrîben 100 mg tâze yaprak dokusunun 10 mL deiyonize suda 32 °Cde iki sâʿat bekletilmesinden sonra maḥlûlün ibtidâʾî elektriksel iletkenliğidir. \(EC_2\), aynı dokular 120 °Cde 20 dakika otoklavlanarak hücrelerde kalan elektrolitler tamâmen serbest bırakıldıktan sonraki mecmûʿ iletkenlikdir.
EC1/EC2 nisbetinin yükselmesi, mecmûʿ hücrevî iyonların daha büyük kısmının ibtidâen ḫâricî muḥîte sızdığı maʿnâsına gelir ve membran bütünlüğünün daha ziyâde bozulmasıyla muvâfıḳdır.
ABTS radikal temizleme formülü
\(\displaystyle ABTS\ Temizleme(\%)=\frac{A_c-A_s}{A_c}\times100\)
\(A_c\) ḳontrol absorbansı, \(A_s\) numûne absorbansıdır. Numûne ABTS radikalini daha kuvvetli etkisizleştirirse absorbans düşer ve ḥisâb olunan temizleme yüzdesi yükselir. ABTS•+ radikali 7 mM ABTS ile 2.4 mM potasyum persülfatın müsâvî hacimlerde ḫalt olunup karanlıkda 12 sâʿat bekletilmesiyle hazırlanmış; ölçüm 734 nmde yapılmıştır.
DPPH radikal temizleme formülü
\(\displaystyle DPPH\ Temizleme(\%)=\left[1-\frac{A-A_0}{B-B_0}\right]\times100\)
\(A\) DPPH–numûne maḫlûṭunun absorbansı; \(A_0\) numûne ihtivâ eden metanol blankı; \(B\) DPPH ḳontrol absorbansı ve \(B_0\) yalnız metanol absorbansıdır. Çıkarma terimleri numûnenin kendi optik katkısıyla çözücü arka planını tefrîḳ etmeğe yarar. DPPH ölçümü 517 nmde, 25 °Cde ve karanlıkda 30 dakikalık inkübasyondan sonra yapılmıştır.
2^-ΔΔCt Usûlü Gen Ekspresyonunda Ne Maʿnâya Gelir?
\(2^{-\Delta\Delta Ct}\) usûlü, qRT-PCRda hedef gen transkriptini evvelâ referans gene, ardından ḳontrol grubuna göre normalize ederek nisbî ekspresyon tebeddülünü “fold change” olarak ifâde eder; bu taḥḳîḳda referans gen actindir ve iḥṣâʾî taḥlîller üç müstaḳil biyolojik tekrardan elde olunan ΔCt kıymetleri üzerinde yapılmıştır.
qRT-PCR nasıl yapıldı?
Mecmûʿ RNA, RNeasy Plant Mini Kit ile izole edilmiştir. 2 µg saflaşdırılmış RNA cDNAya çevrilmiş; StepOne Plus Real-Time PCR sistemi ve SYBR Green esâslı 2× Real-Time PCR Master Mix kullanılmıştır. Hedef transkriptler actin referans genine göre normalize edilmiştir.
Kaynağın kullandığı \(2^{-\Delta\Delta Ct}\) usûlünün standart riyâżî açılımı taʿlîmî olarak şu sûrette ifâde olunabilir:
\(\displaystyle \Delta Ct=Ct_{hedef}-Ct_{referans}\)
\(\displaystyle \Delta\Delta Ct=\Delta Ct_{örnek}-\Delta Ct_{kontrol}\)
\(\displaystyle Göreli\ ekspresyon=2^{-\Delta\Delta Ct}\)
Bu ara denklemler taḥḳîḳın yeni bulgusu değildir; kaynakta adı verilen \(2^{-\Delta\Delta Ct}\) usûlünün riyâżî açılımıdır.
Ct, floresans sinyalinin taʿyîn olunan eşiği geçtiği PCR siklus ʿadedidir. Daha düşük Ct, diğer şerâʾit müsâvî iken ibtidâen daha ziyâde hedef nükleik asit bulunduğuyla muvâfıḳdır. Referans gen normalizasyonu numûneler arasındaki RNA/cDNA mikdârı gibi teknik iḫtilâfları azaltmağa yardım eder.
İyon homeostazı genleri ne yapıyor?
SOS1, hücre zarı üzerindeki Na+/H+ mübâdele sistemleriyle alâḳalı Na+ uzaklaştırma mekanizmalarının; SOS2, SOS sinyal yolunun tanzîm edici unsurlarının; NHX1, vakuoler Na+/H+ antiportu ve Na+ sekestrasyonunun; HKT1 ise Na+ naklinin tanzîmiyle alâḳalı genlerden biridir. Bu taḥḳîḳda bunların transkript seviyeleri ölçülmüştür; hakîḳî hücrevî Na+ akışı yâḫud transporter protein faʿâliyeti doğrudan ölçülmemiştir.
| Gen | Muḳâyese | Kaynak bulgusu | Tefsîr sınırı |
|---|---|---|---|
| SOS1 | OE-ERF013 vs CK | %195 artış | Transkript seviyesi |
| SOS1 | ge-erf013 vs CK | %56 azalma | Transkript seviyesi |
| SOS1 | OE-ERF013 vs WT-T | %73 artış; iḥṣâʾen maʿnâlı değil | Doğrudan promoter bağlanmasını göstermez |
| SOS2 | OE-ERF013 vs WT-T | %172 artış | Transkript seviyesi |
| SOS2 | ge-erf013 vs WT-T | %85 azalma | Transkript seviyesi |
| NHX1 | WT-T vs CK | %260 artış | Transkript seviyesi |
| NHX1 | OE-ERF013 vs CK | %765 artış | Transkript seviyesi |
| HKT1 | OE-ERF013 | WT-T ve CKya göre bâriz yükselme | Kaynak metni burada katʿî yüzde vermemektedir |
ABA nedir?
Absisik asit (ABA), nebâtlarda ḳuraklık ve tuzluluk gibi su/osmotik stress şerâʾitinde mühim vazîfeleri bulunan fitohormondur. Stomatal tavır, stress genleri, iyon muvâzenesi ve osmolit metabolizması gibi birçok süreçle münâsebetdârdır.
Taḥḳîḳda ABA, tuz tatbîḳinden iki gün sonra tâze yapraklarda ticârî Plant Abscisic Acid ELISA Kit ile ölçülmüştür. OE-ERF013 grubundaki ABA seviyesi CKnın %386'sına ulaşmış; ge-erf013 ise CKdan %32 daha düşük bulunmuştur.
ATAO3 ve ATABA3 neyi gösteriyor?
Taḥḳîḳ ATAO3ü ABA ile alâḳalı/ABA-responsive gen, ATABA3ü ABA biyosenteziyle alâḳalı gen olarak taḳdîr etmektedir. OE-ERF013de ATAO3 WT-Tye nisbetle %520 yükselmiştir. ge-erf013de WT-Tye nisbetle %76 azalma görülmüş lâkin bu muḳâyese iḥṣâʾen maʿnâlı değildir.
ATABA3, OE-ERF013de CKya nisbetle %459 artmıştır. WT-Tde CKya nisbetle taḳrîben %100 artış rapor edilmiş lâkin bu artış maʿnâlı değildir. OE-ERF013, WT-Tden %179 daha yüksek; ge-erf013 ise WT-Tden %84 daha düşük ATABA3 ekspresyonu göstermiştir.
Bu veriler ERF013 ile ABA sistemi arasında kuvvetli münâsebeti destekler; lâkin müʾelliflerin kendi taḥdîdât kısmında vurguladığı gibi ERF013ün ABA sinyaline doğrudan mekanistik katkısı bu tecrübede tasdîḳ olunmamıştır.
Prolin ve çözünür şekerler niçin ölçüldü?
Prolin, çözünür şekerler ve sakkaroz, hücrenin osmotik muvâzenesine katkı sağlayabilen uyumlu çözünmüş maddelerdir. Tuz stressi ḫâricî muḥîtin su potansiyelini düşürdüğünde bu gibi metabolitlerin terâkümü hücrevî turgorun, proteinlerin ve membranların muḥâfazasına yardım edebilir.
Prolin için 300 mg tâze yaprak dokusu %3 sülfosalisilik asit içinde ekstrakte edilmiş, ninhidrin reaksiyonu tatbîḳ olunmuş ve kromofor 520 nmde ölçülmüştür. Netîceler µg g−1 tâze ağırlık olarak ifâde edilmiştir.
Mecmûʿ çözünür şeker ve sakkaroz, freeze-dried yaprak dokusundan %80 etanol ile ekstrakte edilip HPLC ile ölçülmüştür. Bio-Rad Aminex 87C kolon (300 × 7.8 mm) kullanılmış; mobil faz saf su, akış sürʿati 0.6 mL dakika−1 olarak taʿyîn edilmiştir.
Klorofil nasıl taḳdîr edildi?
Klorofil muḥtevâsı SPAD-502 Plus klorofil ölçerle taḳdîr edilmiştir. Her tedâvî grubunda beş yaprağın apikal, orta ve bazal kısımlarından okumalar alınmış ve orta SPAD kıymeti iḥṣâʾî taḥlîle dâḫil edilmiştir.
Taḥḳîḳın Usûlü ve Bulguları
Tecrübe tertîbi
| Unsur | Kaynakda tatbîḳ olunan usûl |
|---|---|
| Nebât | Arabidopsis thaliana Col-0 |
| Yetiştirme | 16 sâʿat ziyâ / 8 sâʿat zulmet, 25 °C, %60 nisbî rutûbet |
| Tuz tatbîḳ zamânı | Ekimden 20 gün sonra |
| Tuz şartı | 250 mM NaCl |
| Esâs biyokimyâvî numûne alma | Tuz tatbîḳinden iki gün sonra, taḳrîben 10.00 |
| Numûne muḥâfazası | Mâyiʿ azotda dondurma, −80 °C |
| Biyolojik tekrar | 3 müstaḳil biyolojik tekrar |
| İḥṣâʾ | Tek yönlü ANOVA + Tukey çoklu muḳâyese |
| Raporlama | Vasat ± standart inḥirâf |
| Grafik yazılımı | GraphPad Prism 10 |
Neşv ü nemâ ve kök netîceleri
| Ölçüm | OE-ERF013 | ge-erf013 | Referans |
|---|---|---|---|
| Kök uzunluğu | %6 artış | %21 azalma | WT-Tye göre |
| Sürgün tâze vezni | taḳrîben %17 artış | taḳrîben %10 azalma | WT-Tye göre |
| Kök tâze vezni | taḳrîben %100 artış | Düşük | WT-Tye göre |
Kaynağın rozet fotoğrafları ve kök görüntülerinde WT-T ve ge-erf013 nebâtlarında daha küçük rozet, kloroz ve neşv ü nemâ baskılanması görülürken OE-ERF013 nebâtları daha iyi yeşil renk ve nebât canlılığını muḥâfaza etmişdir. Köklerde OE-ERF013 daha kuvvetli lateral kök inkişâfı göstermiştir.
Oksidatif stress ve hücrevî bütünlük
| Ölçüm | WT-T | OE-ERF013 | ge-erf013 |
|---|---|---|---|
| O₂⁻ | CKya göre %62 artış | WT-Tye göre %34 azalış | CKya göre %122 artış |
| H₂O₂ | CKya göre %134 artış | WT-Tye göre %64 azalış | CKya göre %193 artış |
| Elektrolit sızıntısı | CKya göre %101 artış | WT-Tden maʿnen mühim derecede düşük | CKya göre %126 artış |
| RWC | CKya göre %27 düşüş | CKya göre yalnız %15 düşüş; WT-Tden %16 yüksek | CKya göre %39 düşüş |
Antioksidan müdâfaʿa netîceleri
| Gösterge | OE-ERF013 bulgusu | ge-erf013 bulgusu |
|---|---|---|
| CAT | WT-Tden taḳrîben %55 yüksek | CKdan %23 düşük |
| POD | CK ile maʿnen mühim fark yok | CKdan taḳrîben %60 düşük |
| SOD | WT-Tden %44 yüksek | WT-Tden %26 düşük; CKdan %54 düşük |
| ABTS | WT-Tden %67 yüksek; CK ile maʿnen mühim fark yok | Tuz altında azalmış |
| DPPH | WT-Tden %62 yüksek; CKdan %23 yüksek | WT-Tden %16 düşük |
| MDA | CKya yakın ve WT-Tden daha düşük | WT-Tden %47 yüksek |
ABA ve osmolit netîceleri
| Ölçüm | OE-ERF013 | ge-erf013 | Referans |
|---|---|---|---|
| ABA | CK seviyesinin %386'sı | CKdan %32 düşük | CK |
| ATAO3 | %520 artış | %76 azalış; maʿnâlı değil | WT-T |
| ATABA3 | %179 artış | %84 azalış | WT-T |
| Prolin | %54 artış | %38 azalış | WT-T |
| Çözünür şeker | %54 artış | %23 azalış | WT-T |
| Sakkaroz | %33 artış | %44 azalış | WT-T |
Pearson korelasyon taḥlîli ne gösterdi?
Neşv ü nemâ ile alâḳalı sürgün tâze vezni, kök tâze vezni, RWC ve klorofil; CAT, POD ve SOD faʿâliyetleri ile prolin, çözünür şeker ve sakkaroz gibi osmolitlerle kuvvetli müsbet korelasyon göstermiştir. Aynı neşv ü nemâ göstergeleri ROS, elektrolit sızıntısı ve MDA ile menfî korelasyon göstermiştir.
SOS1, SOS2, NHX1 ve HKT1 ekspresyonları; ABA, ATAO3, ATABA3 ve antioksidan kapasiteyle müsbet, oksidatif hasar göstergeleriyle menfî korelasyon göstermiştir. ABA ḫuṣûsen NHX1 ve HKT1 ekspresyonuyla yakın münâsebet göstermiştir.
Kritik tefsîr sınırı: Pearson korelasyonu iki müteġayyirin beraber artıp azalmasını gösterir; bir müteġayyirin diğerinin doğrudan sebebi olduğunu isbât etmez. Binâʾenaleyh korelasyon matrisi, meselâ ABAnın doğrudan NHX1i aktive etdiğini yâḫud ERF013ün bütün ölçülen genleri doğrudan ḳontrol etdiğini tek başına göstermez.
İḥṣâʾî taḥlîl nasıl yapıldı?
Bütün tecrübeler tamâmen tesâdüfî tertîb altında üç müstaḳil biyolojik tekrarla icrâ edilmiştir. Grublar arası farklar tek yönlü varyans taḥlîli (one-way ANOVA) ile taḳdîr olunmuş, grub vasatlarının ikili muḳâyesesi Tukey çoklu muḳâyese imtiḥânıyla yapılmıştır. Netîceler vasat ± standart inḥirâf olarak arz olunmuştur.
Şekillerde iḥṣâʾî işâretleme * p<0.05, ** p<0.01, *** p<0.001 ve ns = maʿnâlı değil sûretindedir. Kaynak metni her muḳâyesenin katʿî p-kıymetini ayrı ayrı listelemediğinden Verianla yıldız kategorilerinden sahte hassâsiyetle katʿî p-kıymeti üretmemektedir.
Taḥḳîḳın desteklediği netîceler
- ERF013 aşırı ekspresyonu, 250 mM NaCl altında daha iyi sürgün ve kök performansıyla münâsebetdârdır.
- OE-ERF013 nebâtları WT-T ve ge-erf013e nisbetle daha düşük ROS terâkümü göstermektedir.
- ERF013 aşırı ekspresyonu antioksidan müdâfaʿa kapasitesinin daha iyi muḥâfazasıyla münâsebetdârdır.
- OE-ERF013 nebâtlarında nisbî su muḥtevâsı daha iyi muḥâfaza olunmuş ve membran hasarı daha düşük olmuştur.
- SOS1, SOS2, NHX1 ve HKT1 ekspresyonları OE-ERF013de artarken ge-erf013de umûmen baskılanmıştır.
- ERF013 aşırı ekspresyonu daha yüksek ABA terâkümü ve ATAO3/ATABA3 ekspresyonuyla münâsebetdârdır.
- OE-ERF013 nebâtlarında prolin, çözünür şeker ve sakkaroz terâkümü daha yüksektir.
- ge-erf013 ḫattı oksidatif hasar, su kaybı ve neşv ü nemâ baskılanması bakımından daha hassas fenotip göstermektedir.
Taḥḳîḳın desteklemediği netîceler
- ERF013ün ABA sinyal yolunu doğrudan aktive ettiği mekanistik sûrette isbât olunmamıştır.
- ERF013ün SOS1, SOS2, NHX1, HKT1, ATAO3 yâḫud ATABA3 promoterlarına doğrudan bağlandığı gösterilmemiştir.
- ERF013ün antioksidan genlerini doğrudan GCC-box bağlanmasıyla tanzîm ettiği mevcûd tecrübe tarafından gösterilmemiştir.
- Pearson korelasyonları sebebiyet delîli değildir.
- Arabidopsisde elde olunan netîceler doğrudan tarla nebâtlarına teşmîl olunamaz.
- 250 mM NaCl altında kontrollü laboratuvar/sera şerâʾitindeki performans hakîḳî tarla tuzluluğunda aynı teʾsîri żamân etmez.
- Taḥḳîḳ ERF013 esâslı ticârî tuza dayanıklı maḥsûl geliştirilmiş olduğunu göstermez.
- OE-ERF013 ve ge-erf013 için tuzsuz eşlenik grublar bu tecrübede rapor edilmediğinden bütün bazal genotip teʾsîrleri mevcûd tecrübe dâḫilinde tefrîḳ olunamaz.
Taḥḳîḳın kuvvetli cihetleri
Taḥḳîḳın başlıca kuvvetli ciheti tek bir fenotip ölçümüne istinâd etmemesidir. Neşv ü nemâ, ROS, membran hasarı, su vazʿiyeti, enzimatik antioksidanlar, kimyevî radikal temizleme, lipid peroksidasyonu, ABA, osmolitler, klorofil ve gen ekspresyonu aynı tecrübî çerçevede taḳdîr edilmiştir.
İkinci kuvvetli cihet, yalnız ERF013 aşırı ekspresyon ḫattının değil, genom-düzenlenmiş erf013 ḫattının da kullanılmasıdır. Aşırı ekspresyon ve fonksiyon kaybının büyük mikdârda zıd fenotipler teşkîl etmesi, ERF013 ile tuz-stress cevâbı arasındaki münâsebeti tek yönlü aşırı ekspresyon tecrübesine nisbetle daha câmiʿ sûrette desteklemektedir.
Üçüncü kuvvetli cihet, fizyolojik netîcelerin moleküler gen-ekspresyon verileriyle beraber taḳdîr edilmesi ve Pearson korelasyon matrisiyle muhtelif stress cevâb tabakalarının münâsebetinin tedḳîḳidir.
Esâs taḥdîdât
ABA mekanizması: Müʾelliflerin açıkça beyân etdiği en mühim taḥdîd, ERF013ün ABA sinyallemesine doğrudan katkısının tecrübî sûrette tasdîḳ olunmamış olmasıdır.
Doğrudan hedef genler: ERF013 için genom çapında hedef taʿyîni yâḫud doğrudan promoter bağlanma tecrübesi yapılmamıştır. Bu sebeple gen ekspresyonundaki tebeddülâtın doğrudan mı yoksa dolaylı tanzîm edici şebekeler vâsıtasıyla mı vukûʿ bulduğu maʿlûm değildir.
Model nebât: Tecrübe Arabidopsis thaliana ile yapılmıştır. Zirâʿî maḥsûl nevʿlerinde aynı teʾsîrin mikdârı yâḫud istikāmeti doğrudan gösterilmemiştir.
Tarla şerâʾiti: 250 mM NaCl ile kontrollü muḥîtde tatbîḳ olunan stress, hakîḳî tarla tuzluluğunun zamânî ve mekânî giriftliğini tamâmen temsîl etmez. Kaynak, gelecekte tarla bakımından hakîḳate yakın tuzluluk şerâʾitinde maḥsûl nebâtlarında tasdîḳi açıkça tavsiye etmektedir.
Tecrübî grub bünyesi: Mevcûd taḥḳîḳda OE-ERF013 ve ge-erf013 için ayrı tuzsuz ḳontrol grubları rapor edilmemiştir. Taḥḳîḳın tertîbi bilḫassa tuz şartındaki ERF013 fonksiyonunu taḳdîr etmeğe müteveccihdir.
Biyolojik tekrar ʿadedi: Esâs tecrübeler üç müstaḳil biyolojik tekrarla yürütülmüştür. Bu, kontrollü moleküler nebât tecrübelerinde kullanılan bir tertîb olmakla beraber, geniş çevresel/genetik tenevvüʿü temsîl eden tarla popülasyonu değildir.
Gelecek taḥḳîḳlar
Müʾellifler ERF013ün hakîḳî hedef genlerinin ve tanzîm edici mekanizmalarının genom çapında usûllerle taʿyînini tavsiye etmektedir. Böylece hangi genlerin ERF013 tarafından doğrudan, hangilerinin ikincil sinyal şebekeleri vâsıtasıyla değiştirildiği tefrîḳ olunabilir.
İkinci mühim gelecek adımı, ERF013 fonksiyonunun maḥsûl nebâtlarında ve hakîḳî zirâʿî tuzluluğa daha yakın muḥîtlerde tasdîḳidir. Lâkin mevcûd taḥḳîḳ bu zirâʿî tatbîḳin muvaffakıyetle ikmâl edildiğini göstermemektedir.
Menbaʿ ve Usûl Ḳaydı
Özgün başlık: Ethylene-Responsive Transcription Factor 013 Regulates Physiological and Molecular Responses to Salt Stress in Arabidopsis thaliana.
Müʾellifler ve sıra: Rahmatullah Jan, Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki, Mohammad Alfredan, Sajjad Asaf, Kyung-Min Kim.
Müsâvî katkı: Rahmatullah Jan ve Shahzad Iqbal müsâvî katkı sağlamıştır.
Mesʾûl müʾellifler: Sajjad Asaf ve Kyung-Min Kim.
Müʾessese 1: Coastal Agriculture Research Institute, Kyungpook National University, Daegu 41566, Republic of Korea.
Müʾessese 2: Department of Semiconductor Engineering, Gachon University, Seongnamdaero, Sujeong-gu, Seongnam-si 13120, Republic of Korea.
Müʾessese 3: Department of Biological Sciences, College of Science, King Faisal University, Al-Ahsa 31982, Saudi Arabia.
Müʾessese 4: Natural and Medical Science Research Center, University of Nizwa, Nizwa 616, Oman.
Müʾessese 5: Department of Applied Biosciences, Graduate School, Kyungpook National University, Daegu 41566, Republic of Korea.
Mecmûʿa: Antioxidants.
Nâşir: MDPI, Basel, Switzerland.
Cild / sayı / makāle numarası: 15(7), 834.
DOI: 10.3390/antiox15070834.
Received: 12 Mayıs 2026.
Revised: 25 Haziran 2026.
Accepted: 29 Haziran 2026.
Published: 1 Temmuz 2026.
Menbaʿ nevʿi: Özgün tecrübî nebât fizyolojisi ve moleküler biyoloji taḥḳîḳ makālesi.
Hakemlik vazʿiyeti: Neşr olunmuş mecmûʿa makālesidir ve Received–Revised–Accepted neşr süreci rapor olunmaktadır. PDF ayrıca “peer-reviewed” etiketi arz etmemektedir.
Preprint vazʿiyeti: Verilen PDF neşr olunmuş mecmûʿa makālesidir; preprint değildir.
Lisâns: PDF Creative Commons Attribution (CC BY) lisânsını açıkça beyân etmektedir. PDF üzerinde lisâns sürüm numarası açık sûrette yazılmadığından burada sürüm numarası taḫmîn edilmemiştir.
Akademik editör: Alessandra Napolitano.
Model organizma: Arabidopsis thaliana ecotype Col-0.
Tecrübe grubları: CK, WT-T, OE-ERF013 ve ge-erf013.
Tuz stressi: 250 mM NaCl.
Stress ibtidâsı: Ekimden 20 gün sonra.
Yetiştirme: 16 sâʿat ziyâ / 8 sâʿat zulmet, 25 °C, %60 nisbî rutûbet.
Esâs numûne alma: Tuz tatbîḳinden iki gün sonra, taḳrîben 10.00.
Muḥâfaza: Mâyiʿ azotda sürʿatle dondurma ve −80 °C.
Biyolojik tekrar: Üç müstaḳil biyolojik tekrar.
NBT: %0.1 NBT, 25 °C, 16 sâʿat karanlık inkübasyon.
RWC: 5 mm yaprak diskleri; 10 mL saf suda 3 sâʿat turgor; 70 °Cde 24 sâʿat kurutma.
MDA: Sigma MDA Assay Kit; 10 mg yaprak, 300 µL lysis buffer + 3 µL BHT; 13.000 rpm 10 dakika; TBA reaksiyonu 95 °C 1 sâʿat; 532 nm.
Elektrolit sızıntısı: Taḳrîben 100 mg yaprak; 10 mL su; 32 °C 2 sâʿat; ardından 120 °Cde 20 dakika otoklav.
ABTS: 7 mM ABTS + 2.4 mM potasyum persülfat; 12 sâʿat karanlık; 734 nm.
DPPH: %0.1 DPPH; 100 µL ekstrakt + 100 µL DPPH; 25 °Cde 30 dakika karanlık; 517 nm.
qRT-PCR: RNeasy Plant Mini Kit; 2 µg RNA; qPCR-Bio cDNA Synthesis Kit; StepOne Plus Real-Time PCR System; SYBR Green esâslı 2× Real-Time PCR Master Mix; actin referans geni; \(2^{-\Delta\Delta Ct}\) nisbî ekspresyon usûlü.
ABA: Plant Abscisic Acid ELISA Kit.
Prolin: 300 mg tâze yaprak; %3 sülfosalisilik asit; ninhidrin reaksiyonu; 520 nm; µg g−1 FW.
Çözünür şeker ve sakkaroz: Freeze-dried doku; %80 etanol ekstraksiyonu; HPLC; Bio-Rad Aminex 87C, 300 × 7.8 mm; saf su mobil faz; 0.6 mL dakika−1.
Klorofil: SPAD-502 Plus; her grubda beş yaprağın apikal, orta ve bazal mıntıkaları.
İḥṣâʾ: Tamâmen tesâdüfî tertîb; tek yönlü ANOVA; Tukey çoklu muḳâyese imtiḥânı; vasat ± SD.
Grafik yazılımı: GraphPad Prism 10.
Maʿnâlılık gösterimi: * p<0.05; ** p<0.01; *** p<0.001; ns = maʿnâlı değil.
Korelasyon: Pearson korelasyon taḥlîli.
Supplementary Material: Table S1; qRT-PCR için kullanılan genler, primer dizileri ve accession numaraları.
Müʾellif katkıları: Rahmatullah Jan ve Sajjad Asaf tecrübe tertîbi, taḥḳîḳ ve ilk müsvedde yazımına; Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki ve Mohammad Alfredan veri hazırlamağa; Kyung-Min Kim ilk müsvedde yazımı, nezâret ve mâlî destek temînine katkı sağlamıştır. Bütün müʾellifler neşr olunan sürümü okuyup tasdîḳ etmiştir.
Mâlî destek: Cooperative Research Program for Agriculture Science and Technology Development, Rural Development Administration, Republic of Korea, Project No. RS-2026-25516544; ayrıca King Faisal University Deanship of Scientific Research tarafından KFU263553 numaralı destek.
Institutional Review Board: Tatbîḳ olunamaz.
Informed Consent: Tatbîḳ olunamaz.
Veri erişilebilirliği: Müʾellifler taḥḳîḳın bulgularını destekleyen bütün verilerin makāle içinde bulunduğunu beyân etmektedir.
Menfaat çatışması: Müʾellifler menfaat çatışması olmadığını beyân etmiştir.
Esâs ʿilmî taḥdîd: ERF013ün ABA sinyallemesine doğrudan katkısı tecrübî sûrette tasdîḳ olunmamıştır. ERF013ün doğrudan hedef genlerinin ve tanzîm edici bağlanma mekanizmalarının genom çapında usûllerle taʿyîni lâzımdır.
Tatbîḳ sınırı: Netîceler Arabidopsis ve kontrollü 250 mM NaCl stress şerâʾitine âʾiddir. Maḥsûl nebâtlarında ve tarla bakımından hakîḳate yakın tuzluluk şerâʾitinde tasdîḳ henüz lâzımdır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir