


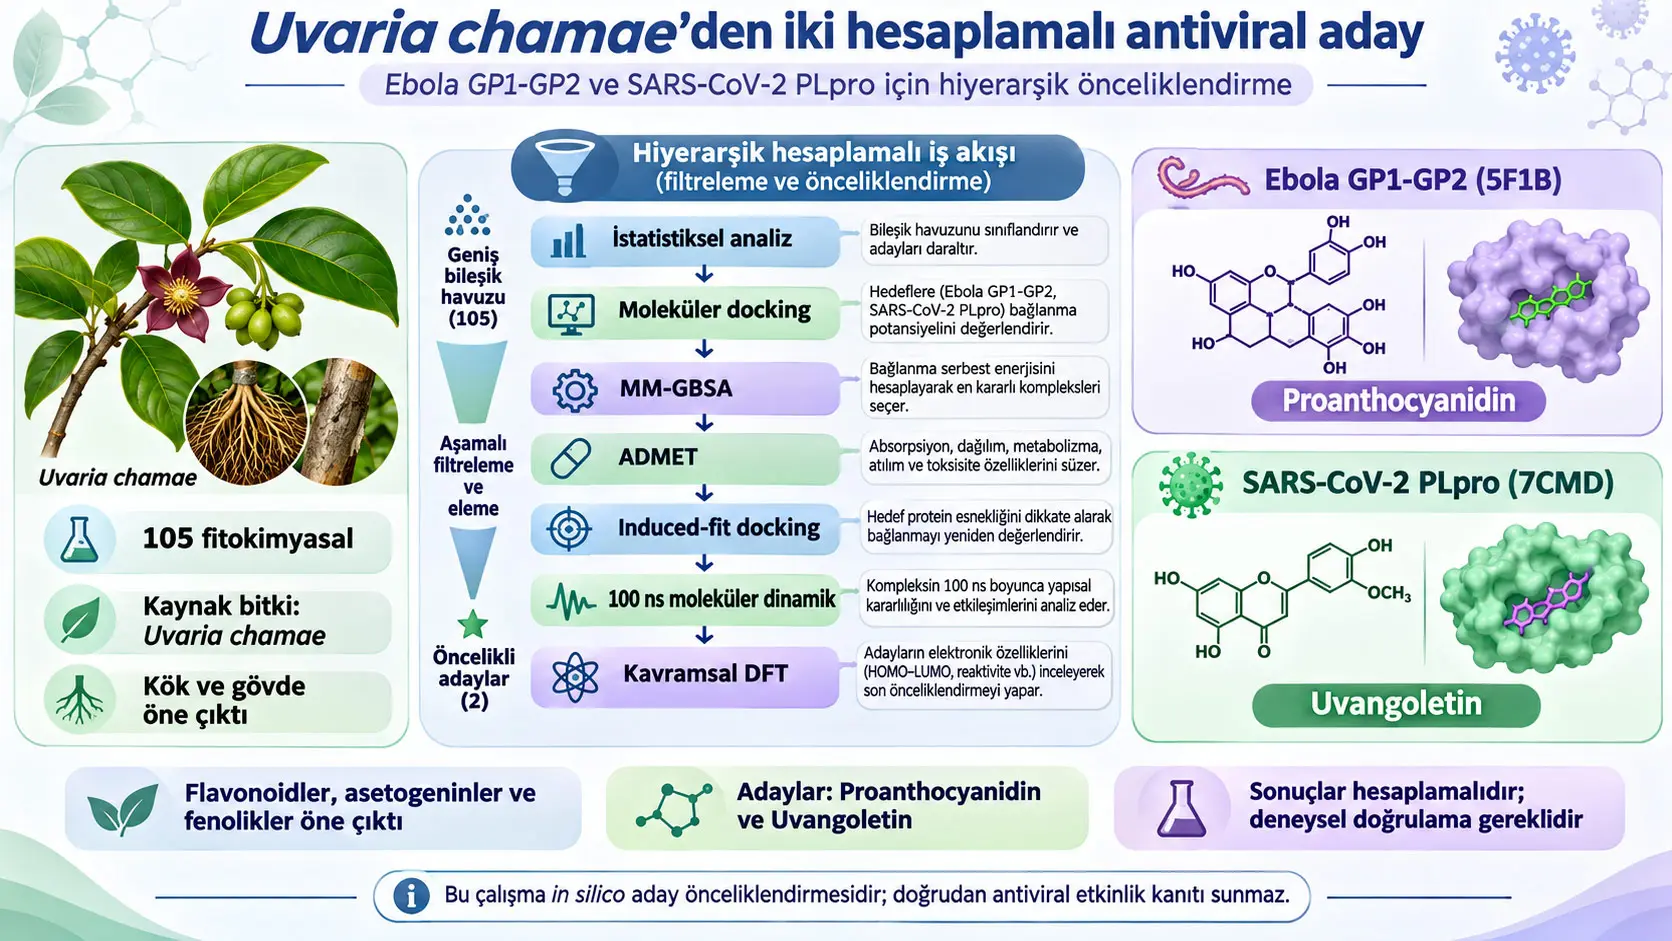
Hiyerarşik hesaplamalı fitokimyasal önceliklendirme, çok sayıda doğal bileşiği tek bir docking skoruna göre sıralamak yerine istatistik, moleküler docking, bağlanma-enerjisi tahmini, farmakokinetik ve toksisite tahminleri, reseptör esnekliği, moleküler dinamik ve kuantum-kimyasal tanımlayıcılar gibi birbirini tamamlayan hesaplamalı filtrelerle aşamalı olarak daraltan bir aday seçme yaklaşımıdır. Bu çalışma, Uvaria chamae bitkisinden daha önce yapısal olarak tanımlanmış 105 fitokimyasalı Ebola virüsü glikoprotein sistemi GP1-GP2 ve SARS-CoV-2 papain-benzeri proteazı PLpro karşısında değerlendirmiş; Proanthocyanidin'i Ebola hedefi, Uvangoletin'i ise PLpro için ileri deneysel incelemeye taşınabilecek hesaplamalı adaylar olarak önceliklendirmiştir. Çalışma hücre, hayvan veya insan üzerinde antiviral etkinlik göstermemiştir.
Başlangıç veri seti 106 Uvaria chamae metabolitinden oluşmaktadır. Ancak joolanin adlı bileşiğin kimyasal yapısı mevcut literatürdeki tutarsız yapısal tanımlar nedeniyle kesin biçimde atanamadığı için çalışma dışı bırakılmış ve hesaplamalar 105 yapısal olarak karakterize bileşik üzerinde yürütülmüştür. Bu bileşikler kök, gövde, yaprak ve tohumlardan bildirilmiş flavonoidler, asetogeninler, fenolik bileşikler, alkaloidler, steroller, terpenler, uçucu yağ bileşenleri ve diğer fitokimyasal sınıfları kapsamaktadır.
Ebola virüsü için PDB ID 5F1B kullanılmıştır. Bu yapı, işlenmiş Ebola glikoproteininin endozomal reseptör Niemann–Pick C1 (NPC1) ile etkileşimini temsil ettiği için virüsün membran füzyonundan önceki giriş aşamasını incelemek açısından seçilmiştir. SARS-CoV-2 için PDB ID 7CMD'deki papain-benzeri proteaz PLpro kullanılmıştır. PLpro hem viral poliproteinlerin işlenmesinde hem de deubiquitination ve deISGylation aktiviteleri yoluyla konak doğuştan bağışıklığının baskılanmasında rol alan bir viral enzimdir. 7CMD yapısında non-kovalent inhibitör GRL0617 bulunduğundan docking ve dinamik karşılaştırmalar için deneysel olarak tanımlanmış bir referans bağlanma bölgesi sağlamaktadır.
İstatistiksel analizde bitkinin organı genel docking performansının güçlü bir belirleyicisi olarak ortaya çıkmamıştır. Ebola hedefi 5F1B için organlar arasında anlamlı fark bulunmamış; 7CMD için Kruskal–Wallis testi genel olarak \(p=0.0316\) vermiş olmasına rağmen Dunn çoklu karşılaştırma düzeltmesinden sonra hiçbir organ çifti anlamlı kalmamıştır. Buna karşılık fitokimyasal sınıfın etkisi daha belirgindir: flavonoidler her iki hedefte de en düşük, yani en elverişli ortalama sıralara sahip olmuş ve flavonoidler ile asetogeninler arasındaki fark 5F1B için \(p=0.0002\), 7CMD için \(p=0.0018\) bulunmuştur.
Bununla birlikte çalışma “kök ve gövde diğer organlardan antiviral olarak üstündür” sonucuna ulaşmamaktadır. En yüksek sıralı bireysel adayların önemli bir bölümü kök ve gövdeden bildirilmiştir; ancak organ düzeyindeki dağılımlar istatistiksel olarak yeterince ayrışmamıştır. Ayrıca bazı metabolitler birden fazla bitki organında bulunduğundan aynı bileşiğin birden fazla gruba katkıda bulunabilmesi grup bağımsızlığı varsayımını sınırlandırmaktadır.
Ebola GP hedefinde Proanthocyanidin, GP1 zincirindeki ilk docking analizinde XP skoru −6,17 kcal/mol ve Prime MM-GBSA değeri −45,66 kcal/mol ile güçlü bir profil göstermiştir. Ancak Proanthocyanidin, bütün Ebola adayları arasında tek başına “en negatif enerjiye sahip molekül” değildir. Örneğin Squamocin GP2 zincirinde −54,86 kcal/mol, Neoannonin tam GP1-GP2 analizinde −58,35 kcal/mol Prime MM-GBSA değeri göstermiştir. Proanthocyanidin'in finale seçilmesinin nedeni, tam kompleks ile ayrı GP1 ve GP2 analizlerinde daha tutarlı bir profil göstermesi, reseptör-esnekliği analizine aktarılabilmesi ve moleküler dinamik sırasında kararlı bir bağlanma pozu sürdürmesidir.
SARS-CoV-2 PLpro için Uvangoletin'in başlangıç XP docking skoru −6,20 kcal/mol, Prime MM-GBSA tahmini −41,69 kcal/mol'dur. Induced-fit docking sonrasında docking skoru −9,43 kcal/mol'a iyileşmiştir. Diuvaretin'in IFD skoru daha düşük, yani daha elverişli −11,57 kcal/mol olmasına rağmen Uvangoletin docking, bağlanma enerjisi, ADMET, medicinal-chemistry özellikleri ve kritik PLpro kalıntılarıyla sürdürülen etkileşimlerin genel dengesi nedeniyle moleküler dinamik için seçilmiştir.
100 ns moleküler dinamik simülasyonları, Proanthocyanidin'i Ebola GP1-GP2 üzerinde Toremifene ile; Uvangoletin'i PLpro üzerinde GRL0617 ile aynı reseptör koşulları altında karşılaştırmıştır. Protein omurga RMSD'leri dört ana sistemde hızla plato yapmış ve büyük yapısal sürüklenme görülmemiştir. Bununla birlikte trajektori tabanlı MM-GBSA, referans inhibitörlerin her iki hedefte de daha elverişli enerji tahminleri verdiğini göstermiştir: Toremifene −49,7 ± 0,3 kcal/mol iken Proanthocyanidin −37,2 ± 0,3 kcal/mol; GRL0617 −33,7 ± 0,2 kcal/mol iken Uvangoletin −26,8 ± 0,2 kcal/mol'dur. Dolayısıyla adayların önceliklendirilmesi “referans inhibitörden daha güçlü bağlandıkları” iddiasına dayanmamaktadır.
Kavramsal yoğunluk fonksiyoneli teorisi (DFT) analizinde Proanthocyanidin için HOMO-LUMO boşluğu 5,37 eV, Uvangoletin için 4,81 eV olarak hesaplanmıştır. Kaynak bu değerleri daha düşük frontier-orbital reaktivitesi ve görece yüksek intrinsik elektronik kararlılıkla ilişkilendirmektedir. Ancak DFT tanımlayıcıları izole ligandın çözeltideki elektronik özelliklerini temsil etmektedir; protein-ligand bağlanma afinitesini ölçmez ve MM-GBSA'nın yerine kullanılamaz.
Çalışmanın temel sonucu bir antiviral ilaç keşfinin tamamlandığı değil, büyük ve kimyasal olarak heterojen bir doğal ürün kütüphanesinin deneysel testlere geçmeden önce üç düzeyde — bitki organı, fitokimyasal sınıf ve bireysel metabolit — sistematik olarak önceliklendirilebileceğinin gösterilmesidir. Proanthocyanidin ve Uvangoletin bu nedenle “doğrulanmış antiviral ajanlar” değil, deneysel doğrulamaya götürülmesi önerilen hesaplamalı adaylardır.
Bu çalışma neden antiviral ilaç etkinliği çalışması değil, aday önceliklendirme çalışmasıdır?
Çünkü araştırmada Ebola veya SARS-CoV-2 ile enfekte hücrelerde antiviral etkinlik, viral yük, IC50/EC50, sitotoksisite, hayvan tedavisi veya klinik sonuç ölçülmemiştir; araştırmacılar 105 doğal ürünü hesaplamalı modeller kullanarak deneysel test için daraltmış ve kendi sonuçlarında Proanthocyanidin ile Uvangoletin'i “prioritized computational candidates” olarak tanımlamıştır.
105 bileşiğe nasıl ulaşıldı?
Çalışmanın kimyasal veri seti, yazar grubunun daha önce yayımladığı kapsamlı Uvaria chamae fitokimya veri setinden alınmıştır. Bu veri seti PubMed, Scopus, ScienceDirect ve Google Scholar taramalarından derlenmiş ve yalnız Uvaria chamae'den izolasyonu veya güvenilir yapısal karakterizasyonu raporlanmış bileşikler tutulmuştur.
Başlangıçta:
\[ N_{\mathrm{başlangıç}}=106 \]
fitokimyasal bulunuyordu. Joolanin'in yapısı literatürde tutarlı biçimde belirlenemediği için:
\[ N_{\mathrm{analiz}}=105 \]
fitokimyasal hesaplamaya alınmıştır.
Bu 105 sayısı yeni bir laboratuvar ekstraksiyonunun sonucu değildir; önceki fitokimyasal literatürde yapısı karakterize edilmiş moleküllerin hesaplamalı kütüphanesidir.
Ligandlar nasıl hazırlandı?
Üç boyutlu ligand yapıları mümkün olduğunda PubChem'den alınmış ve Schrödinger Suite v2025-1 içindeki LigPrep ile hazırlanmıştır. Hazırlık aşaması enerji minimizasyonunu, stereokimyanın kontrolünü, fizyolojik koşulu temsil etmek üzere pH 7,4 ± 2,0 aralığında iyonizasyon durumlarının oluşturulmasını ve OPLS4 kuvvet alanıyla geometri optimizasyonunu içermektedir.
Bu işlem önemlidir; çünkü docking algoritması bir molekülün yalnız iki boyutlu kimyasal formülünü değil, belirli protonasyon, stereokimya ve üç boyutlu konformasyon durumunu kullanır. Dolayısıyla ligand hazırlığı sonraki enerji skorlarını doğrudan etkileyen yöntemsel bir adımdır.
Ebola GP1-GP2 ve SARS-CoV-2 PLpro neden iki farklı hedef olarak seçildi?
İki hedef viral yaşam döngüsünün farklı basamaklarını temsil eder: 5F1B Ebola glikoproteininin NPC1 ile ilişkili endozomal giriş ve füzyon aşamasına, 7CMD'deki PLpro ise SARS-CoV-2'nin viral protein işleme ve bağışıklık kaçış mekanizmalarına karşı hesaplamalı bağlanma adaylarını değerlendirmek için seçilmiştir.
Ebola hedefi: PDB 5F1B
5F1B, primed Ebola virüsü glikoproteininin endozomal Niemann-Pick C1 reseptörüyle etkileştiği yapısal bağlamı temsil etmektedir. Bu etkileşim membran füzyonu ve viral genomun hücre içine bırakılmasından önce gerçekleşen kritik bir aşamadır.
5F1B yapısında docking doğrulaması için uygun bir birlikte-kristallenmiş küçük molekül bulunmadığından araştırmacılar bağlanma cebini SiteMap ile tahmin etmiştir. En yüksek sıralı cepten oluşturulan grid merkez koordinatları:
| Parametre | Değer |
|---|---|
| X | 41,59 |
| Y | −26,42 |
| Z | −296,34 |
| DScore | 1,092 |
| SiteScore | 1,027 |
| Cep hacmi | 338,198 ų |
Aynı grid koordinatları karşılaştırılabilirlik amacıyla ilgili 5F1B yapısal analizlerinde korunmuştur.
SARS-CoV-2 hedefi: PLpro, PDB 7CMD
7CMD kristal yapısında non-kovalent inhibitör GRL0617 bulunduğu için docking grid'i doğrudan bu ligandın bağlanma bölgesine merkezlenmiştir:
\[ X=-34.22,\qquad Y=-11.63,\qquad Z=-30.06 \]
Docking protokolünün kendi kristal yapısını yeniden üretip üretemediğini sınamak için co-crystallized ligand yeniden dock edilmiştir. Kristal poz ile tahmin edilen poz arasındaki RMSD:
\[ \mathrm{RMSD}=0.24~\text{\AA} \]
bulunmuştur. Çalışma bu küçük sapmayı 7CMD docking protokolünün bağlanma pozunu yeniden oluşturabildiğine dair doğrulama olarak kullanmaktadır.
Docking, MM-GBSA, IFD, ADMET, moleküler dinamik ve DFT birbirinden ne farkla bilgi verir?
Docking olası bağlanma pozu ve başlangıç skorunu, Prime MM-GBSA statik kompleksin enerji tahminini, ADMET geliştirilebilirlik ve farmakokinetik tahminleri, induced-fit docking lokal reseptör esnekliğini, moleküler dinamik bağlanma pozunun zaman içindeki davranışını, trajektori MM-GBSA aynı reseptördeki aday–referans enerji karşılaştırmasını ve DFT izole ligandın elektronik reaktivite özelliklerini değerlendirir; bu ölçümler birbirinin yerine geçmez.
1. İstatistiksel filtreleme ne yaptı?
XP docking skorları önce bileşiklerin elde edildiği bitki organına ve fitokimyasal sınıfa göre gruplandırılmıştır. Verilerin tamamı normal dağılıma uymadığı için Shapiro-Wilk normalite kontrolünden sonra non-parametrik Kruskal-Wallis testi ve anlamlılık bulunduğunda Dunn çoklu karşılaştırma testi kullanılmıştır.
İstatistiksel anlamlılık sınırı:
\[ p<0.05 \]
olarak belirlenmiştir.
| Hedef | Organ | N | Ortalama sıra | Genel test |
|---|---|---|---|---|
| 5F1B | Kök | 32 | 62,73 | p > 0,05 |
| 5F1B | Yaprak | 64 | 59,98 | |
| 5F1B | Gövde | 17 | 46,56 | |
| 5F1B | Tohum | 6 | 83,75 | |
| 7CMD | Kök | 28 | 47,34 | p = 0,0316; Dunn sonrası anlamlı organ çifti yok |
| 7CMD | Yaprak | 64 | 64,27 | |
| 7CMD | Gövde | 17 | 43,38 | |
| 7CMD | Tohum | 4 | 66,13 |
Daha düşük ortalama sıra, genel olarak daha elverişli docking skorlarına karşılık gelmektedir. Buna rağmen organ sonuçlarının yorumu sınırlıdır. Bazı metabolitler birden fazla organda bildirildiğinden aynı molekül birden fazla gruba girebilir; bu da grupların tam istatistiksel bağımsızlığını sınırlar.
Fitokimyasal sınıf sonuçları
| Hedef | Karşılaştırma | Düzeltilmiş p | Sonuç |
|---|---|---|---|
| 5F1B | Flavonoidler – Asetogeninler | 0,0002 | Flavonoidler daha elverişli sıralandı |
| 5F1B | Flavonoidler – uçucu yağlar/steroller/terpenler grubu | 0,0262 | Flavonoidler daha elverişli sıralandı |
| 7CMD | Flavonoidler – Asetogeninler | 0,0018 | Flavonoidler daha elverişli sıralandı |
| 7CMD | Flavonoidler – uçucu yağlar/steroller/terpenler grubu | <0,0001 | Flavonoidler daha elverişli sıralandı |
Flavonoidlerin ortalama sırası 5F1B için 20,82, 7CMD için 13,09'dur. Kaynak, flavonoid iskeletindeki aromatik sistem ve çoklu hidroksil gruplarının hidrojen bağları, π-etkileşimleri ve hidrofobik temaslara elverişli olabileceğini tartışmaktadır. Ancak yazarlar docking scoring functions'ın polihidroksillenmiş aromatik yapılara sistematik avantaj verebileceğini de sınırlılık olarak belirtmektedir. Dolayısıyla sınıf farkı gerçek antiviral etkinliğin deneysel kanıtı değildir.
2. Glide XP docking neyi ölçüyor?
Docking, ligandın hedef proteinin seçilmiş bağlanma cebinde hangi geometrik pozları alabileceğini ve bu pozların kullanılan scoring function altında ne kadar elverişli olduğunu tahmin eder. Daha negatif XP docking skoru kullanılan modelde daha elverişli tahmini etkileşimi temsil eder; fakat docking skoru deneysel bağlanma sabiti değildir.
3. Prime MM-GBSA neden docking'ten sonra kullanıldı?
Docking'in basitleştirilmiş scoring function'ına ek olarak Prime MM-GBSA, OPLS4 kuvvet alanı ve VSGB 2.0 implicit-solvation modeliyle protein-ligand komplekslerinin enerji tahminini yeniden değerlendirmiştir. Bu adım docking skoru yüksek görünen fakat daha ayrıntılı enerji hesabında zayıflayan adayları ayırmaya yardımcı olur.
| Hedef / yapı | Aday | Kaynak organ | Sınıf | XP skoru (kcal/mol) | Prime MM-GBSA (kcal/mol) |
|---|---|---|---|---|---|
| 5F1B GP1 | Proanthocyanidin | Kök | Fenolik | −6,17 | −45,66 |
| 5F1B GP2 | Squamocin | Kök, tohum | Asetogenin | −4,94 | −54,86 |
| 5F1B GP1-GP2 | Neoannonin | Kök | Asetogenin | −5,84 | −58,35 |
| 5F1B GP1-GP2 | Chametin/Chamanetin | Gövde, kök | Flavonoid | −7,53 | −45,43 |
| 7CMD | O,O-Dimethylcoclaurine | Yaprak | Alkaloid | −4,68 | −55,42 |
| 7CMD | Diuvaretin | Gövde, kök | Flavonoid | −5,97 | −48,04 |
| 7CMD | Uvaretin | Gövde, kök | Flavonoid | −5,46 | −47,52 |
| 7CMD | Uvangoletin | Kök | Flavonoid | −6,20 | −41,69 |
Tablo açıkça gösterir ki “en negatif MM-GBSA değeri = final aday” biçiminde tek basamaklı bir seçim yapılmamıştır. Neoannonin ve O,O-Dimethylcoclaurine belirli enerji ölçütlerinde daha elverişli görünürken, final MD adayları bütün filtrelerin toplam tutarlılığına göre seçilmiştir.
4. ADMET tahmini neyi değerlendiriyor?
ADMET; absorption, distribution, metabolism, excretion ve toxicity sözcüklerinin baş harflerinden oluşur. Çalışmada ADMETlab 3.0'ın derin çok-görevli DMPNN modeli kullanılarak altı öncelikli adayın geçirgenlik, plazma protein bağlanması, dağılım, kan-beyin bariyeri, CYP etkileşimleri, klirens, yarı ömür ve çeşitli toksisite endpoint'leri hesaplamalı olarak tahmin edilmiştir.
Kaynağın sonuçlarına göre flavonoidler genel olarak yüksek plasma-protein binding ve sınırlı blood-brain-barrier penetration tahmini göstermiştir. Neoannonin en yüksek predicted volume of distribution değerini, Proanthocyanidin ise en düşük membrane permeability'yi göstermiştir. Birkaç aday için cytochrome P450 etkileşimleri tahmin edilmiştir.
Yazarlar altı adaydan hiçbirinin bu hesaplamalı aşamada doğrudan elenmeyi gerektiren “prohibitive toxicity profile” göstermediğini belirtmektedir. Bu ifade altı bileşiğin toksik olmadığı veya güvenli olduğunun deneysel olarak gösterildiği anlamına gelmez. ADMETlab sonuçları model tahminidir; kaynak Tablo 5'te birçok sınıflandırma endpoint'i yalnız model olasılığı olarak verilmektedir.
Medicinal-chemistry profilleri
| Aday | Molekül ağırlığı | TPSA | QED | Lipinski | Golden Triangle | PAINS uyarısı |
|---|---|---|---|---|---|---|
| Uvangoletin | 272,10 | 66,76 | 0,821 | Kabul | Kabul | 0 |
| Diuvaretin | 484,19 | 107,22 | 0,233 | Kabul | Kabul | 0 |
| O,O-Dimethylcoclaurine | 313,17 | 39,72 | 0,920 | Kabul | Kabul | 0 |
| Neoannonin | 578,45 | 85,22 | 0,094 | Red | Red | 0 |
| Chametin/Chamanetin | 362,12 | 86,99 | 0,653 | Kabul | Kabul | 0 |
| Proanthocyanidin | 592,16 | 209,76 | 0,167 | Red | Red | 0 |
Kaynak özellikle Proanthocyanidin'in yüksek moleküler ağırlığı, yüksek polar yüzey alanı, çok sayıdaki hidrojen bağı verici/alıcı grubu ve düşük predicted permeability nedeniyle doğrudan oral geliştirilebilirlik bakımından sınırlı olduğunu tartışmaktadır. Bu nedenle molekülü doğrudan “ilaç adayı” demektense biyolojik aktif iskelet, mekanistik prob veya farmasötik optimizasyon gerektiren aday şeklinde yorumlamak daha uygundur.
5. Induced-fit docking ne ekledi?
Standart docking çoğunlukla reseptörün nispeten sabit bir yapısını kullanırken induced-fit docking, ligandın yanı sıra bağlanma cebindeki yakın protein yan zincirlerinin de yeniden düzenlenmesine izin verir. Böylece ligandın lokal protein esnekliği altında cebine sığıp sığmadığı tekrar değerlendirilir.
| Hedef | Aday | İlk docking skoru | IFD skoru | Hidrojen bağı sayısı |
|---|---|---|---|---|
| 5F1B GP1 | Proanthocyanidin | −6,17 | −7,43 | 8 |
| 7CMD | O,O-Dimethylcoclaurine | −4,68 | −7,98 | 3 |
| 7CMD | Diuvaretin | −5,97 | −11,57 | 5 |
| 7CMD | Uvangoletin | −6,20 | −9,43 | 4 |
Proanthocyanidin IFD sonrasında GLU71, ASN69, GLU103, TRP104, ARG136 ve GLU106 gibi kalıntıları içeren sekiz hidrojen bağından oluşan yoğun bir ağ kurmuştur. Uvangoletin ise LEU162, TYR264, GLY163 ve GLN269 ile dört hidrojen bağı göstermiştir.
5F1B IFD sınırı: Kaynak IFD protokolünü tam multichain GP1-GP2 kompleksine uygulayamadığını açıkça belirtmektedir. Neoannonin ve Chametin/Chamanetin özellikle iki zincir arasındaki interface bölgesinden seçildiği için bu ligandları tek bir izole zincire taşımak bağlanma ortamını değiştirecekti. Proanthocyanidin ise tam kompleks ve ayrı zincir analizlerinde daha tutarlı davrandığı için reseptör-esnekliği incelemesine aktarılmıştır.
Kaynak-içi Tablo 7 işaret farkı: Uvangoletin için Tablo 7'nin \(\Delta G_{\rm IFD}\) hücresinde \(+41.69\) yazmaktadır. Buna karşılık özet, Tablo 4 ve ilgili sonuç metni Prime MM-GBSA değerini \(-41.69~\mathrm{kcal/mol}\) olarak vermektedir. Verianla bu iki kaydı tek bir sessiz düzeltmeye dönüştürmemektedir.
100 ns moleküler dinamik simülasyonu neyi gösterir ve neyi göstermez?
Bu çalışmadaki 100 ns moleküler dinamik, hesaplamalı bağlanma pozlarının explicit-water ortamında zaman boyunca yapısal olarak korunup korunmadığını ve adayların aynı reseptördeki referans inhibitörlere kıyasla nasıl davrandığını gösterir; antiviral etkinliği, biyoyararlanımı veya tedavi başarısını doğrudan göstermez.
Moleküler dinamik sistemi nasıl kuruldu?
| Parametre | Kaynakta kullanılan değer |
|---|---|
| MD motoru | GROMACS 2025.4, ScientiFlow pipeline |
| Protein kuvvet alanı | AMBER99SB-ILDN |
| Ligand kuvvet alanı | GAFF2, ACPYPE |
| Ligand kısmi yükleri | GFN2-xTB |
| Su modeli | TIP3P explicit water |
| Kutu | Rhombic dodecahedral, solute–boundary en az 1,0 nm |
| Enerji minimizasyonu | En fazla 50.000 steepest-descent adımı veya \(F_{\max}<1000\) kJ·mol−1·nm−1 |
| NVT | 100 ps, 300 K, V-rescale, \(\tau_T=0.1\) ps |
| NPT | 100 ps, 300 K, 1 bar, Parrinello-Rahman, \(\tau_P=2.0\) ps |
| Sıkıştırılabilirlik | \(4.5\times10^{-5}\) bar−1 |
| Zaman adımı | 2 fs |
| Hidrojen bağ kısıtlaması | LINCS |
| Uzun menzilli elektrostatik | Particle Mesh Ewald, 4. derece interpolation, grid 0,16 nm |
| Coulomb/vdW cutoff | 1,2 nm |
| vdW force-switch | 1,0–1,2 nm |
| Production süresi | 100 ns |
| Trajektori kayıt aralığı | 50 ps |
| Toplam kare | 2001 frame/trajectory |
Beş solvated sistem simüle edilmiştir. Ana karşılaştırmalar dört komplekstir: Uvangoletin–PLpro, GRL0617–PLpro, Proanthocyanidin–GP1-GP2 ve Toremifene–GP1-GP2. Beşinci sistem Proanthocyanidin'in izole GP1 alt birimine bağlandığı kontrol sistemidir ve ayrıntıları Supplementary Material'de raporlanmıştır.
RMSD nedir?
Root mean square deviation (RMSD), simülasyon boyunca bir atom grubunun referans yapıya göre ortalama uzamsal sapmasını izler. Protein-backbone RMSD'nin belirli bir bölgeye ulaşıp kontrolsüz biçimde yükselmemesi, yapının büyük ölçekli olarak sürüklenmediğini değerlendirmek için kullanılır. Bu çalışma bütün dört ana kompleksin ilk yaklaşık 10 ns içinde plato bölgesine geçtiğini bildirmektedir.
| Kompleks | Protein backbone RMSD (nm) | Ligand RMSD — düzeltilmiş (nm) | Rg (nm) | Ortalama H-bağı |
|---|---|---|---|---|
| Uvangoletin–PLpro | 0,25 ± 0,04 | 0,278 ± 0,111 | 2,36 ± 0,02 | 1,6 |
| GRL0617–PLpro | 0,19 ± 0,03 | 0,176 ± 0,066 | 2,39 ± 0,02 | 1,1 |
| Proanthocyanidin–GP1-GP2 | 0,30 ± 0,04 | 0,175 ± 0,042 | 1,90 ± 0,02 | 1,4 |
| Toremifene–GP1-GP2 | 0,34 ± 0,04 | 0,467 ± 0,156 | 1,87 ± 0,02 | 1,3 |
Uvangoletin ligand RMSD'si neden yeniden hesaplandı?
Kaynak automated ligand-RMSD analizinde Uvangoletin'in periyodik sınır koşullarında komşu simulation box'a görüntülenmesi nedeniyle ilk kareden itibaren yapay biçimde yüksek ve hemen hemen sabit RMSD oluştuğunu belirlemiştir. Araştırmacılar trajektori snapshot'larından proteini ve ligandı yeniden bütünleştirmiş, her kareyi protein backbone'u üzerinden Kabsch fit ile ilk kareye hizalamış ve ligand heavy-atom RMSD'sini yeniden hesaplamıştır.
Düzeltilmiş Uvangoletin ligand RMSD'si:
\[ 0.278\pm0.111~\mathrm{nm} \]
olarak elde edilmiştir. GRL0617 için:
\[ 0.176\pm0.066~\mathrm{nm} \]
bulunmuştur.
Uvangoletin yaklaşık 45–65 ns arasında daha hareketli olmuş, 64 ns'de yaklaşık 0,58 nm maksimuma ulaşmıştır. Ancak bu hareket ligandın cepten ayrılması şeklinde yorumlanmamıştır; GLN269 hidrojen bağı analiz edilen karelerin yüzde 92'sinde korunmuştur.
RMSF ve radius of gyration ne anlatıyor?
RMSF tek tek protein kalıntılarının zaman içindeki hareketliliğini değerlendirir. Kaynak dört sistemde ortalama RMSF'nin yaklaşık 0,11–0,15 nm aralığında olduğunu ve bağlanma cebi kalıntılarının yüzeye açık loop bölgelerinden daha az dalgalandığını raporlamaktadır.
Radius of gyration, protein atomlarının kütle merkezine göre dağılımının kompaktlığını izler. Dört kompleksin Rg değerlerinin simülasyon boyunca kararlı kalması proteinlerin büyük ölçekli açılma veya çökme göstermediği şeklinde yorumlanmıştır.
SASA neydi?
Solvent-accessible surface area, protein kompleksinin çözücüye erişilebilir yüzey alanını izler. Kaynak SASA'nın bütün sistemlerde yaklaşık sabit kaldığını ve ligand bağlanmasının proteinlerde büyük bir yüzey açılması veya yapısal yeniden düzenlenme oluşturmadığını bildirmektedir.
DSSP neyi kontrol etti?
DSSP analizi proteinlerin α-heliks, β-sheet ve diğer ikincil yapı öğelerinin trajektori boyunca korunup korunmadığını takip etmiştir. Dört sistemde de α-heliks ve β-sheet yapılar genel olarak korunmuş; yalnız sınırlı sayıdaki loop bölgesinde küçük geçişler görülmüştür.
Trajektori MM-GBSA nasıl uygulandı?
MM-GBSA hesapları üretim trajektorilerinin son 20 ns'inden eşit aralıklarla seçilen:
\[ N=201 \]
kare üzerinde yapılmıştır.
Kullanılan başlıca koşullar:
- gmx_MMPBSA v1.6.4 ve MMPBSA.py v16.0,
- OBC2 Generalized Born modeli, \(igb=5\),
- mbondi2 intrinsic radii,
- 0,150 M implicit salt concentration,
- 298,15 K,
- nonpolar solvation için LCPO tabanlı solvent-accessible surface area.
Konfigürasyonel entropi hesaplanmamıştır. Bu nedenle kaynak toplam değerleri mutlak deneysel bağlanma serbest enerjileri değil, aynı reseptöre bağlanan aday ile referansı göreli karşılaştırmak için kullanılan entalpi-ağırlıklı etkili MM-GBSA tahminleri olarak yorumlamaktadır.
| Hedef | Ligand | MM-GBSA (kcal/mol) | Yorum sınırı |
|---|---|---|---|
| Ebola GP1-GP2 | Proanthocyanidin | −37,2 ± 0,3 | Aynı reseptörde Toremifene ile karşılaştırılır |
| Ebola GP1-GP2 | Toremifene | −49,7 ± 0,3 | Referans daha negatif enerji tahmini verdi |
| SARS-CoV-2 PLpro | Uvangoletin | −26,8 ± 0,2 | Aynı reseptörde GRL0617 ile karşılaştırılır |
| SARS-CoV-2 PLpro | GRL0617 | −33,7 ± 0,2 | Referans daha negatif enerji tahmini verdi |
Ebola çiftinde Toremifene çok güçlü elverişli elektrostatik bileşen:
\[ -142.9~\mathrm{kcal/mol} \]
göstermiş, ancak bu avantaj büyük bir elverişsiz polar desolvation bileşeniyle:
\[ +150.9~\mathrm{kcal/mol} \]
önemli ölçüde dengelenmiştir. Proanthocyanidin'in elektrostatik katkısı −15,1 kcal/mol, polar desolvation cezası +31,1 kcal/mol ve van der Waals katkısı −46,6 kcal/mol olarak raporlanmıştır.
PLpro çiftinde 6,9 kcal/mol'lük GRL0617–Uvangoletin farkının temel kaynağı van der Waals bileşenidir:
\[ -38.0~\mathrm{kcal/mol} \quad\text{ve}\quad -30.7~\mathrm{kcal/mol}. \]
Elektrostatik katkı Uvangoletin için biraz daha elverişlidir:
\[ -20.6~\mathrm{kcal/mol} \]
ve GRL0617 için:
\[ -16.1~\mathrm{kcal/mol}. \]
Kalıcı protein-ligand etkileşimleri
| Ligand | Kalıntı / etkileşim | Trajektori işgali |
|---|---|---|
| Uvangoletin | GLN269 hidrojen bağı | %92 |
| Uvangoletin | TYR264 hidrofobik temas | %76 |
| Uvangoletin | PRO248 hidrofobik temas | %52 |
| Uvangoletin | TYR268 hidrofobik temas | %44 |
| Uvangoletin | ASP164 hidrojen bağı | %44 |
| Proanthocyanidin | GLN551, GP2 hidrojen bağı | %88 |
| Proanthocyanidin | ASN40, GP1 hidrojen bağı | %76 |
| Proanthocyanidin | TYR517 hidrofobik temas | %80 |
| Proanthocyanidin | VAL66 hidrofobik temas | %72 |
| Proanthocyanidin | PRO187 hidrofobik temas | %68 |
Uvangoletin'in TYR264, TYR268, GLN269 ve PRO247/248 çevresinde sürdürdüğü etkileşimler, kaynakta GRL0617'nin bağlandığı BL2 alt cebinin bilinen yapısıyla ilişkilendirilmektedir. Araştırmacılar bu benzerliği mekanistik olarak anlamlı bir yapısal hipotez şeklinde yorumlamaktadır. Ancak kaynak açıkça bunun enzim inhibisyonunun deneysel kanıtı olmadığını belirtir.
Proanthocyanidin GP1-GP2 interface bölgesinde Toremifene'den farklı bir kimyasal strateji kullanmıştır. Proanthocyanidin birden fazla hidrofobik ve hidrojen-bağı temasına dağılan ağ gösterirken, Toremifene protonlanmış tersiyer amini üzerinden GP2 GLU523 ile karelerin yüzde 60'ında tuz köprüsü kurmuştur.
DCCM neyi ölçüyor?
Dynamic cross-correlation matrix (DCCM), protein kalıntılarının hareketlerinin birlikte aynı yönde mi, ters yönde mi yoksa birbirinden bağımsız mı gerçekleştiğini değerlendirir. Kaynak 3 × 3 Cartesian covariance bloklarını:
\[ \frac{C_{ij}} {\sqrt{C_{ii}C_{jj}}} \]
biçiminde normalize etmiştir.
PLpro'da Uvangoletin ile GRL0617 arasındaki kolektif hareket farkı küçüktür: off-diagonal kalıntı çiftlerindeki mean absolute deviation 0,107 ve çiftlerin yalnız yüzde 2,4'ü 0,3'ün üzerindedir.
Ebola GP1-GP2 sisteminde aday–referans dinamik farkı daha büyüktür: mean absolute deviation 0,178; çiftlerin yüzde 18,7'si 0,3'ün, yüzde 3,9'u 0,5'in üzerindedir. Farklar özellikle GP2 ve GP1-GP2 interface çevresinde yoğunlaşmıştır. Kaynak bunu ikincil yapı kaybı değil, segmentler arasındaki dinamik coupling'in yeniden dağılımı şeklinde yorumlamaktadır.
Serbest enerji manzarası nasıl hesaplandı?
Kaynak ilk iki backbone principal component üzerindeki probability density'den serbest enerji manzarasını:
\[ \Delta G = -k_B T \ln \left( \frac{P}{P_{\max}} \right) \]
bağıntısıyla hesaplamıştır.
Burada \(k_B\) Boltzmann sabiti, \(T=298.15\) K sıcaklık, \(P\) belirli PC1-PC2 bölgesindeki olasılık yoğunluğu ve \(P_{\max}\) maksimum olasılık yoğunluğudur. En düşük \(\Delta G\) bölgeleri trajektorinin daha sık örneklediği düşük-serbest-enerjili konformasyon havzalarını temsil eder.
2 kJ/mol contour'da PLpro–GRL0617 trajektorisinin yüzde 71'i, Uvangoletin trajektorisinin yüzde 50'si tek baskın havzada bulunmuştur. Uvangoletin için ikincil minimum ana minimumun 3,12 kJ/mol üzerindedir ve yalnız ilk 23 ns'ye ait karelerden oluşur; kaynak bunu equilibration sırasında terk edilen başlangıç durumu olarak yorumlamaktadır.
Ebola sisteminde iki kompleks de iki havza göstermiştir. Toremifene'in ikincil havzası global minimumdan 1,35 kJ/mol yukarıda ve 16–42 ns arasında görülmüştür. Proanthocyanidin'in iki havzası yalnız 0,76 kJ/mol farkla neredeyse eşenerjili olup geçiş yaklaşık 51 ns civarında gerçekleşmiştir. Proanthocyanidin ligand RMSD'sinin aynı sırada düşük kalması, proteinin ligandın terk etmediği bağlanma pozu çevresinde yeniden düzenlendiği şeklinde yorumlanmıştır.
Kaynak bu serbest enerji manzaralarının entalpi bileşenlerine ayrılmasını yapmamıştır. Solvated simulation box potansiyel enerjisi PC1/PC2 ile neredeyse ilişkisizdir:
\[ R^2=0.0004. \]
Bu nedenle kaynak böyle bir ayrıştırmanın konformasyon serbest enerjisinden çok çözücü dalgalanmasını yansıtacağını belirtmektedir.
Residue-level MM-GBSA ne gösterdi?
| Ligand | Kalıntı | Enerji katkısı (kcal/mol) |
|---|---|---|
| Uvangoletin | TYR268 | −2,94 |
| Uvangoletin | TYR264 | −2,21 |
| Uvangoletin | GLN269 | −1,72 |
| GRL0617 | TYR268 | −4,19 |
| GRL0617 | GLN269 | −2,50 |
| Proanthocyanidin | PRO187 | −2,60 |
| Proanthocyanidin | MET548, GP2 | −2,30 |
| Proanthocyanidin | LEU186 | −2,01 |
| Toremifene | GLU100 | −6,24 |
| Toremifene | ASN98 | −2,69 |
Kaynağın özellikle vurguladığı öğretici nokta GLU100'dür: Toremifene–GLU100 teması karelerin yalnız yüzde 16'sında görülmesine rağmen residue-energy decomposition'da −6,24 kcal/mol ile en büyük katkıyı vermiştir. Bu durum bir etkileşimin ne kadar sık görüldüğü ile enerjetik katkısının ne kadar büyük olduğu kavramlarının aynı olmadığını gösterir.
Kavramsal DFT neden çalışmanın son aşamasında?
DFT analizi bağlanma skorlarını tekrar sıralamak için değil, final adayların elektronik yapılarını ve frontier-orbital reaktivitesini referans inhibitörlerle karşılaştırmak için kullanılmıştır. Başlangıç geometrileri MD trajektorilerinin son karesinden alınmıştır.
Geometri optimizasyonu:
\[ \mathrm{B3LYP-D3BJ/6-31G(d,p)} \]
seviyesinde CPCM implicit-aqueous solvation ile ORCA 6.1.1 kullanılarak yapılmıştır. Harmonik frekans analizinde sanal frekans bulunmaması optimize edilmiş yapıların potential-energy surface üzerinde lokal minimum olduğunu desteklemiştir.
6-31G(d,p) basis set diffuse functions içermediğinden özellikle LUMO'nun tanımı için daha büyük:
\[ \mathrm{B3LYP-D3BJ/6-311+G(d,p)} \]
single-point calculation uygulanmıştır.
Kaynak Koopmans yaklaşımından şu kavramsal-DFT tanımlayıcılarını üretmektedir:
\[ IP=-E_{\mathrm{HOMO}} \]
\[ EA=-E_{\mathrm{LUMO}} \]
\[ \chi= \frac{IP+EA}{2} \]
\[ \eta= \frac{IP-EA}{2} \]
\[ S= \frac{1}{2\eta} \]
\[ \omega= \frac{\chi^2}{2\eta} \]
Burada \(IP\) iyonlaşma potansiyeli, \(EA\) elektron afinitesi, \(\chi\) elektronegatiflik, \(\eta\) chemical hardness, \(S\) softness ve \(\omega\) electrophilicity index'tir.
DFT'deki diffuse functions neden önemliydi?
Basis set'e diffuse functions eklenmesi HOMO-LUMO boşluklarını en fazla yaklaşık 0,14 eV değiştirmiş, ancak electrophilicity index değerlerini bütün dört ligandda yüzde 22–39 artırmıştır. Proanthocyanidin'in 6-31G(d,p) seviyesindeki LUMO'su:
\[ -0.02~\mathrm{eV} \]
iken diffuse functions içeren hesapta:
\[ -0.55~\mathrm{eV} \]
olmuştur. Kaynak ilk değeri fiziksel olarak yeterince bağlı olmayan bir orbital gösterimi olarak değerlendirmiş ve bu nedenle frontier-orbital tanımlayıcıları için genişletilmiş basis set'i kullanmıştır.
| Hedef | Ligand | HOMO-LUMO boşluğu (eV) | Chemical hardness (eV) | Electrophilicity (eV) | Dipol momenti |
|---|---|---|---|---|---|
| PLpro | Uvangoletin | 4,81 | 2,41 | 2,97 | 7,64 D |
| PLpro | GRL0617 | 4,26 | 2,13 | 3,01 | 5,65 D |
| Ebola GP1-GP2 | Proanthocyanidin | 5,37 | 2,68 | 1,95 | 4,34 D |
| Ebola GP1-GP2 | Toremifene | 4,35 | 2,17 | Kaynak yalnız nitel kıyaslamayı uygun görüyor | Raporlanmadı |
Toremifene simülasyonda protonlanmış, net yükü +1 olan formda modellenmiştir. Yüklü bir türün dipol momenti koordinat başlangıç noktasına bağımlı olduğundan kaynak Toremifene için dipol momentini raporlamamıştır. Bu nedenle Proanthocyanidin–Toremifene karşılaştırması esas olarak HOMO-LUMO gap ve hardness gibi orbital-enerji farklarına dayandırılmıştır.
DFT sonuçlarının yorum sınırı özellikle önemlidir: bu tanımlayıcılar izole ligandların çözeltideki elektronik yapısını anlatır. Protein bağlanma afinitesini ölçmez, trajektori MM-GBSA'yı geçersiz kılmaz ve antiviral aktiviteyi göstermez.
Çalışmanın Yöntemi ve Bulguları
Hesaplamalı kaynaklar
| Öğe | Kaynak bilgisi |
|---|---|
| Bilgisayar | Dell Pro 16 Plus PB16250 |
| İşlemci | Intel Core Ultra 7 255U, 2,00 GHz |
| RAM | 16,0 GB |
| İşletim sistemi | 64-bit Windows 11 Education |
| Moleküler modelleme | Maestro v14.3; Schrödinger Suite v2025-1 modülleri |
| ADMET | ADMETlab 3.0 |
| MD | ScientiFlow + GROMACS 2025.4 |
| DFT | ORCA 6.1.1 |
Yöntemin adım adım özeti
- Daha önce raporlanmış 106 Uvaria chamae fitokimyasalı başlangıç veri seti olarak ele alındı.
- Yapısı güvenilir biçimde belirlenemeyen joolanin çıkarılarak 105 bileşik tutuldu.
- Ligandlar LigPrep ile hazırlandı; protonasyon/iyonizasyon durumları pH 7,4 ± 2,0 koşulunda üretildi ve OPLS4 ile optimize edildi.
- Ebola hedefi 5F1B ve SARS-CoV-2 hedefi 7CMD protein hazırlama protokolünden geçirildi.
- 7CMD docking protokolü co-crystallized ligandın redocking'iyle doğrulandı ve 0,24 Å RMSD elde edildi.
- 5F1B için uygun küçük molekül referansı bulunmadığından SiteMap ile bağlanma cebi belirlendi.
- 105 fitokimyasal Glide XP ile dock edildi.
- Docking skorları organ ve fitokimyasal sınıfa göre Shapiro-Wilk, Kruskal-Wallis ve Dunn testleriyle incelendi.
- Tüm dock edilmiş kompleksler Prime MM-GBSA ile yeniden skorlandı.
- Bağlanma skoru, enerji, etkileşim profili ve ADMET birlikte değerlendirilerek altı yüksek öncelikli fitokimyasal seçildi.
- Bu altı adayın ADMET, physicochemical ve medicinal-chemistry profilleri incelendi.
- Seçilmiş kompleksler induced-fit docking ile lokal reseptör esnekliği altında yeniden değerlendirildi.
- Ebola için Proanthocyanidin, PLpro için Uvangoletin ana MD adayları olarak seçildi.
- Adaylar aynı reseptörde Toremifene ve GRL0617 referanslarıyla 100 ns MD altında karşılaştırıldı.
- RMSD, RMSF, Rg, SASA, hidrojen bağları, DSSP, PLIP, PCA, DCCM, FEL ve residue-level energy decomposition analiz edildi.
- Son 20 ns'den 201 kare kullanılarak trajektori MM-GBSA hesaplandı.
- Final ligand geometrileri DFT ile optimize edildi ve conceptual-DFT descriptors hesaplandı.
- Bütün filtreler birlikte değerlendirilerek Proanthocyanidin ve Uvangoletin deneysel doğrulama için önceliklendirildi.
Proanthocyanidin neden Ebola adayı olarak seçildi?
Proanthocyanidin tam GP1-GP2 kompleksi ve ayrı GP zincirlerinde tekrarlanan biçimde yüksek sıralı davranmış, induced-fit docking sonrasında yoğun hidrojen-bağı ağı oluşturmuş ve 100 ns MD'de Toremifene'den daha düşük ligand RMSD ile bağlanma pozunu daha kalıcı korumuştur.
Ancak iki önemli sınır vardır:
- Toremifene'in trajektori MM-GBSA enerji tahmini Proanthocyanidin'den daha elverişlidir.
- Proanthocyanidin'in yüksek moleküler ağırlığı, yüksek TPSA değeri ve düşük predicted permeability'si doğrudan oral geliştirilebilirliğini sınırlar.
Bu nedenle çalışma Proanthocyanidin'i “en iyi antiviral ilaç” olarak değil, yapısal olarak sağlam bir hesaplamalı lead/scaffold ve deneysel inceleme adayı olarak konumlandırmaktadır.
Uvangoletin neden PLpro adayı olarak seçildi?
Diuvaretin IFD'de daha elverişli skor üretmesine rağmen Uvangoletin bütün filtrelerde daha dengeli profil göstermiştir. Molekül daha yüksek QED, Lipinski/Golden Triangle uyumu ve PLpro'nun BL2 bölgesindeki kritik kalıntılarla sürekli etkileşimleri nedeniyle final MD adayı olmuştur.
Uvangoletin 100 ns boyunca PLpro cebinde kalmış; GLN269 hidrojen bağını karelerin yüzde 92'sinde sürdürmüş ve aday–referans DCCM farkı düşük kalmıştır. Bununla birlikte ligand RMSD'si GRL0617'den daha yüksektir ve trajektori MM-GBSA enerjisi de GRL0617 kadar elverişli değildir. Bu nedenle sonuç “Uvangoletin GRL0617'den daha iyi inhibitördür” değildir.
Çalışmanın desteklediği sonuçlar
- 105 Uvaria chamae fitokimyasalının tek bir skor yerine çok basamaklı hesaplamalı filtrelerle önceliklendirilmesi mümkündür.
- Bitki organı global docking performansında güçlü ve tutarlı istatistiksel ayrım oluşturmamıştır.
- En yüksek sıralı adaylar ağırlıklı olarak kök ve gövdede raporlanan bileşikler arasında bulunmuştur.
- Flavonoidler incelenen iki hedefte de genel olarak daha elverişli docking sıraları göstermiştir.
- Proanthocyanidin Ebola GP sisteminde çoklu yapısal analizlerde tutarlı bir aday profili göstermiştir.
- Uvangoletin PLpro'nun GRL0617 ile ilişkili BL2 cebinde 100 ns MD boyunca kalıcı etkileşimler göstermiştir.
- Aday ve referans protein komplekslerinin backbone RMSD, Rg, SASA ve secondary-structure profilleri 100 ns sırasında genel olarak kararlı kalmıştır.
- Trajektori MM-GBSA'da referans inhibitörler her iki hedefte de adaylardan daha elverişli enerji tahminleri vermiştir.
- Kavramsal DFT Proanthocyanidin ve Uvangoletin'in referanslarına göre daha geniş HOMO-LUMO boşlukları ve daha yüksek hardness değerleri gösterdiğini ortaya koymuştur.
- İki final molekül sonraki deneysel doğrulama için yapısal ve elektronik açıdan makul hesaplamalı başlangıç noktalarıdır.
Çalışmanın desteklemediği sonuçlar
- Proanthocyanidin'in Ebola virüsünü hücrede veya canlı organizmada inhibe ettiği gösterilmemiştir.
- Uvangoletin'in SARS-CoV-2 replikasyonunu veya PLpro enzim aktivitesini deneysel olarak inhibe ettiği gösterilmemiştir.
- Hiçbir aday için IC50, EC50 veya viral-load azaltımı ölçülmemiştir.
- Hesaplamalı ADMET sonuçları gerçek insan farmakokinetiği veya güvenlik verisi değildir.
- 100 ns MD trajektorisi klinik veya biyolojik etkinlik kanıtı değildir.
- Docking skoru deneysel dissociation constant veya binding affinity değildir.
- Prime MM-GBSA ve trajektori MM-GBSA değerleri deneysel serbest enerji ölçümü değildir.
- DFT HOMO-LUMO boşluğu protein bağlanma gücünü doğrudan ölçmez.
- Kök ve gövdenin intrinsik olarak diğer organlardan daha antiviral olduğu gösterilmemiştir.
- Flavonoidlerin bu hedeflere karşı gerçek hücresel antiviral etkinliği bu çalışmada test edilmemiştir.
- İki farklı virüs hedefinde farklı moleküllerin önceliklendirilmesi tek bir bileşiğin iki virüsü aynı anda hedeflediğini göstermez.
Başlıca yöntemsel sınırlılıklar
- Tamamen in silico: Sonuçların tamamı hesaplamalıdır; biyokimyasal veya hücre-temelli doğrulama yoktur.
- Tek 100 ns trajektori: Her ana kompleks için tek bir üretim trajektorisi kullanılmıştır; trajektoriler arası varyasyon ölçülmemiştir.
- Tam konverjans garantisi yok: 100 ns yapısal kararlılık tam konformasyon uzayının örneklendiğini kanıtlamaz.
- Force-field bağımlılığı: Sonuçlar seçilen AMBER99SB-ILDN, GAFF2 ve TIP3P gibi model seçimlerinden etkilenebilir.
- Ebola GP modeli: MD sisteminde tam trimer, membran, NPC1 ve özellikle native glycosylation bulunmamaktadır.
- MM-GBSA sınırlılığı: Endpoint yaklaşımıdır ve konfigürasyonel entropi hesaplanmamıştır.
- ADMET model alanı: Doğal ürünlerin karmaşık kimyasal yapıları tahmin modellerinin applicability domain'inin dışında veya sınırında olabilir.
- Filtrelerin bağımsız olmaması: Docking, MM-GBSA, IFD ve MD'nin bazı aşamaları aynı başlangıç yapıları, protonasyon halleri ve kuvvet alanlarına dayanır.
- Sınıf örneklem büyüklükleri: Fitokimyasal sınıfların N değerleri eşit değildir ve rank tabanlı karşılaştırmaları etkileyebilir.
- Organ grupları bağımsız değil: Aynı metabolit birden çok organda bulunabildiğinden organ istatistiklerinde tam bağımsızlık varsayımı zayıflayabilir.
Kaynağın önerdiği deneysel devam adımları
Yazarlar hesaplamalı adayların gerçek antiviral potansiyelini belirlemek için PLpro enzymatic-inhibition assays, GP-NPC1 competition veya pseudovirus-entry assays, cell-based antiviral testing, cytotoxicity assessment, solubility, permeability, microsomal stability ve metabolite profiling yapılmasını önermektedir. Ayrıca replicated MD simulations, ensemble receptor conformations ve glycosylated GP modeliyle yapısal hipotezlerin sağlamlığının yeniden sınanması gerektiğini belirtmektedir.
Kaynak-içi sunum ve tutarlılık notları
- Uvangoletin Prime MM-GBSA değeri özet, Tablo 4 ve prose'da −41,69 kcal/mol iken Tablo 7'nin \(\Delta G_{\rm IFD}\) hücresinde +41,69 görünmektedir.
- Genel computational-resources bölümü RCSB PDB erişimini 7 Ekim 2026, protein-preparation bölümü 25 Mayıs 2026 olarak vermektedir.
- Tablo 4'te bazı kontrol docking-score hücrelerinin ondalık noktası görünmeden “−5429” veya “−6566” biçiminde basıldığı görülmektedir; bu hücreler Verianla'da hassas nicel karşılaştırmaya taşınmamıştır.
- Proanthocyanidin final Ebola adayı olsa da bütün 5F1B MM-GBSA ölçümlerinin en negatif değerini üretmemiştir; seçim çok-kriterli tutarlılığa dayanmaktadır.
- Uvangoletin final PLpro adayı olsa da en iyi IFD skoru Diuvaretin'e aittir; Uvangoletin genel geliştirilebilirlik dengesi nedeniyle seçilmiştir.
Kaynak ve Yöntem Notu
Özgün başlık: Hierarchical Computational Prioritization of Uvaria chamae Phytochemicals Targeting Ebola Virus Glycoprotein and SARS-CoV-2 PLpro
Yazarlar: Sèdami Medegan Fagla, Toussaint Sovegnon, Mélaine Bete, Mariette Sanvi, Boris Legba, Konei E. Hounsou, Jean-Robert Klotoe, Victorien Dougnon.
Yazar sırası: Sèdami Medegan Fagla → Toussaint Sovegnon → Mélaine Bete → Mariette Sanvi → Boris Legba → Konei E. Hounsou → Jean-Robert Klotoe → Victorien Dougnon.
Sorumlu yazar: Victorien Dougnon.
Eş katkı: Kaynakta eş birinci yazarlık veya eş katkı beyanı bulunmamaktadır.
Kurum 1: Medicinal and Organic Chemistry Laboratory, Faculty of Health Sciences, University of Abomey-Calavi, Cotonou, Benin.
Kurum 2: Research Unit in Applied Microbiology and Pharmacology of Natural Substances, Research Laboratory in Applied Biology, Polytechnic School of Abomey-Calavi, University of Abomey-Calavi, Abomey Calavi, Benin.
Kurum 3: Research Unit in Plant Physiology and Adaptation to Abiotic Stresses, Laboratory of Plant Science and Pharmacopoeia, University of Abomey-Calavi, Abomey Calavi, Benin.
Dergi: Compounds.
Yayınevi: MDPI, Basel, Switzerland.
Cilt / sayı / makale numarası: 6(4), 57.
DOI: 10.3390/compounds6040057.
Gönderim: 20 Temmuz 2026.
Revizyon: 17 Eylül 2026.
Kabul: 4 Ekim 2026.
Yayın: 9 Ekim 2026.
Kaynak türü: Hakemli hesaplamalı doğal ürün / moleküler modelleme / antiviral aday önceliklendirme araştırma makalesi.
Lisans: Creative Commons Attribution 4.0 International, CC BY 4.0.
Temel veri seti: Uvaria chamae'den literatürde yapısal olarak karakterize edilmiş 105 fitokimyasal; başlangıçtaki 106 bileşikten joolanin yapısal belirsizlik nedeniyle çıkarılmıştır.
Viral hedefler: Ebola virus glycoprotein GP1-GP2 / PDB 5F1B ve SARS-CoV-2 papain-like protease PLpro / PDB 7CMD.
Temel yöntem zinciri: Shapiro-Wilk → Kruskal-Wallis → Dunn multiple comparison → Glide XP docking → Prime MM-GBSA → ADMETlab 3.0 → medicinal-chemistry profiling → induced-fit docking → 100 ns GROMACS molecular dynamics → trajectory MM-GBSA → PLIP/PCA/DCCM/FEL → conceptual DFT.
Docking doğrulaması: 7CMD co-crystallized ligand redocking RMSD = 0,24 Å. 5F1B için uygun co-crystallized küçük-molekül ligand olmadığından SiteMap ile bağlanma cebi tahmin edilmiştir.
Final hesaplamalı adaylar: Ebola GP için Proanthocyanidin; SARS-CoV-2 PLpro için Uvangoletin.
Referans inhibitörler: Ebola GP1-GP2 MD karşılaştırmasında Toremifene; PLpro karşılaştırmasında GRL0617.
Finansman: Yazarlar çalışma için özel bir finansman almadıklarını belirtmiştir.
Veri erişilebilirliği: Çalışmanın özgün katkılarının makale ve Supplementary Materials içinde bulunduğu; ilave soruların sorumlu yazara yöneltilebileceği belirtilmiştir.
Çıkar çatışması: Yazarlar çıkar çatışması olmadığını beyan etmiştir.
Yazar katkıları: S.M.F. kavramsallaştırma ve makale gözden geçirme/düzenleme; T.S. kavramsallaştırma, yöntem geliştirme, hesaplamalar, veri analizi/yorumlama, şekiller ve ilk taslak; M.B. kavramsallaştırma, yöntem, sonuçların yorumu ve düzenleme; M.S. ve B.L. veri doğrulama ve düzenleme; K.E.H. yöntem, veri doğrulama ve düzenleme; J.-R.K. ve V.D. gözetim ile gözden geçirme/düzenleme görevlerini üstlenmiştir.
Yapay zekâ kullanım beyanı: Yazarlar graphical abstract tasarımı ve üretiminde Claude (Anthropic, 2026), İngilizce dil düzenleme ve çeviriye yardımcı olmak için ChatGPT (GPT-5.5 Instant; OpenAI) kullandıklarını; çıktıları kendilerinin gözden geçirip düzenlediklerini ve yayın içeriğinin sorumluluğunu üstlendiklerini açıklamıştır.
Temel bilimsel sonuç: Hiyerarşik hesaplamalı iş akışı 105 molekülü çoklu ölçütlerle daraltmış; Proanthocyanidin ve Uvangoletin'i deneysel doğrulamaya götürülebilecek öncelikli hesaplamalı adaylar olarak belirlemiştir.
En önemli yorum sınırı: Çalışmada doğrudan antiviral aktivite ölçülmemiştir. Docking, MD, MM-GBSA, ADMET veya DFT sonuçları klinik ya da hücresel antiviral etkinlik kanıtı değildir.
Moleküler dinamik sınırlılığı: Her kompleks için tek bir 100 ns production trajectory tam konverjansı veya trajektoriler arası değişkenliği kanıtlamaz.
Ebola yapısal model sınırlılığı: Ana GP1-GP2 MD modelinde tam trimer, membran, NPC1 ve özellikle doğal glikozilasyon bulunmamaktadır; bunlar gerçek bağlanma-cebi erişilebilirliğini ve dinamiğini değiştirebilir.
MM-GBSA sınırlılığı: Konfigürasyonel entropi hesaplanmamıştır; değerler aynı reseptördeki ligandları göreli karşılaştırmak için kullanılan etkili enerji tahminleridir.
DFT sınırlılığı: Conceptual-DFT descriptors izole ligandın elektronik yapısını tanımlar; protein-ligand binding affinity ölçümü değildir.
Kaynak-içi enerji işareti farkı: Uvangoletin için ana metin ve Tablo 4 −41,69 kcal/mol Prime MM-GBSA bildirirken Tablo 7 ilgili hücrede +41,69 göstermektedir.
Kaynak-içi erişim tarihi farkı: RCSB PDB erişim tarihi kaynak içinde hem 7 Ekim 2026 hem 25 Mayıs 2026 olarak geçmektedir.
Deneysel doğrulama gereksinimi: Kaynak PLpro enzim inhibisyonu, GP-NPC1 competition/pseudovirus-entry, cell-based antiviral assay, cytotoxicity, solubility, permeability, microsomal stability ve metabolite profiling gibi sonraki çalışmaların gerekli olduğunu açıkça belirtmektedir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir