

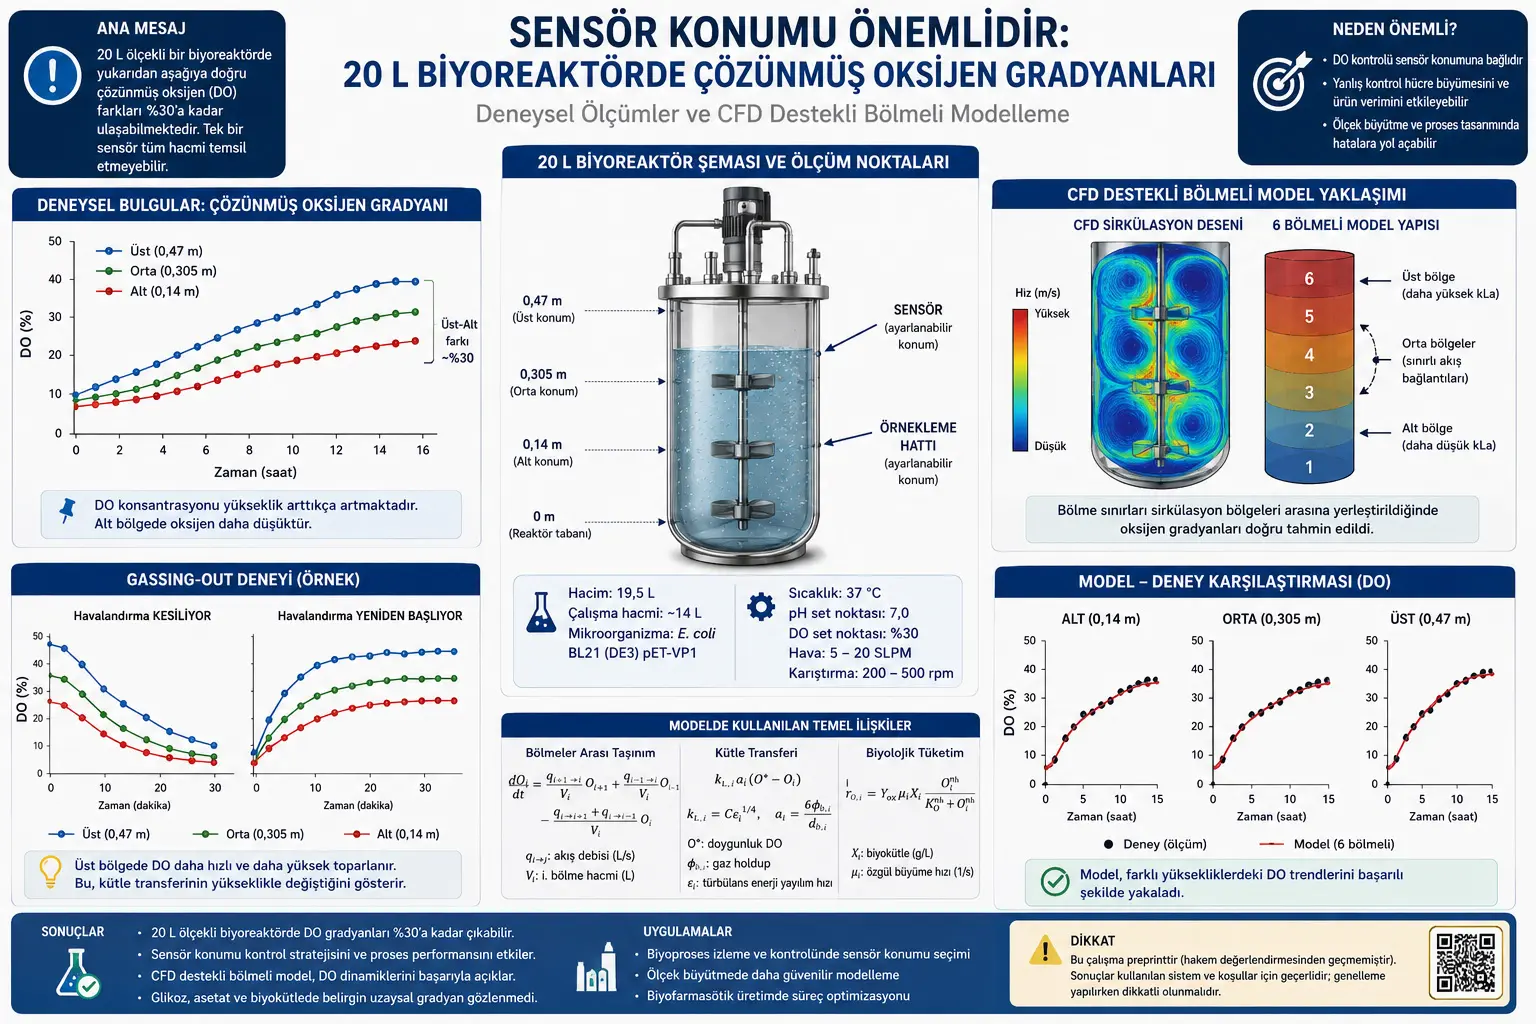
Bu tədqiqat, kiçik və orta miqyaslı bioreaktorların çox vaxt fərz edildiyi qədər “tam qarışmış” olmaya biləcəyini göstərir. Tədqiqatçılar, 15–20 L sinfində olan bir bioreaktorda aparılmış E. coli fed-batch fermentasiyalarında, həll olmuş oksigenin reaktor hündürlüyü boyunca aydın şəkildə dəyişə bildiyini ölçmüşlər. Nəticələrə görə aşağı zonadakı həll olmuş oksigen, yuxarı zonaya görə daha aşağı qalır və bəzi şəraitdə yuxarı-aşağı fərqi təxminən %30 səviyyəsinə çata bilər.
Bu nəticə vacibdir; çünki bioreaktorlarda həll olmuş oksigen sensoru adətən yalnız bir nöqtədə ölçmə aparır və nəzarət sistemi bu ölçməyə əsasən aerasiya ilə qarışdırmanı tənzimləyir. Əgər sensor aşağı zonada yerləşirsə, nəzarət sistemi o nöqtədəki oksigeni hədəf dəyərdə saxlaya bilər; lakin bu, reaktorun bütün həcmində eyni oksigen səviyyəsinin yarandığı mənasına gəlmir. Tədqiqat, sensor mövqeyinin prosesin monitorinqi, nəzarəti, modelləşdirilməsi və miqyaslandırılması ilə bağlı qərarlara birbaşa təsir edə biləcəyini göstərir.
Tədqiqatda qlükoza, asetat və biokütlə ölçmələrində aydın məkan qradiyentləri müşahidə edilmədiyi halda, həll olmuş oksigen üçün hündürlük boyunca əhəmiyyətli fərqlər müəyyən edilmişdir. Bu fərqləri izah etmək üçün CFD hesablamalarından əldə edilən altı bölməli dinamik bir bioreaktor modeli hazırlanmışdır. Model, reaktor daxilindəki dövriyyə zonalarını nəzərə alaraq bölmələr arasındakı axın sürətlərini müəyyən etmiş və oksigen ötürülməsini, hüceyrə böyüməsini, oksigen sərfini və bölmələrarası daşınmanı birlikdə hesablamışdır.
Tədqiqatın əsas mesajı budur: 20 L kimi kiçik sayılabilecek bioreaktorlarda belə həll olmuş oksigenin tək bir sensorla bütün həcmi təmsil etdiyi fərziyyəsi hər zaman etibarlı deyil. Bu vəziyyət xüsusilə biofarmasevtik istehsal, peyvənd istehsalı, rekombinant protein istehsalı və sənaye bioproses miqyaslandırma prosesləri üçün kritikdir. Lakin tədqiqat preprint xarakteri daşıyır və pH qradiyentləri kimi bəzi müşahidələr bu məqalədə modelləşdirilməyib; buna görə nəticələr diqqətlə və konteksti ilə birlikdə oxunmalıdır.
Bioreaktorler; mikroorqanizmlərin, hüceyrələrin ya bioloji sistemlərin idarə şərtlər altında büyütüldüğü qapalı proses ekipmanlarıdır. Aşı istehsalı, rekombinant protein istehsalı, ferment istehsalı, biofarmasevtik istehsal və sənaye fermentasiya kimi sahələrdə kritik rol oynarlar. Bu sistemlərdə temperatur, ph, qida maddələri, qarışdırma, aerasiya və həll olmuş oksigen kimi dəyişənlər hüceyrə böyüməsini, məhsul məhsuldarlığını və məhsul keyfiyyətini birbaşa təsirlər.
Tədqiqatın çıxış nöqtəsi bioreaktorlarda geniş istifadə olunan bir fərziyyəni sorğulamaqdır: kiçik miqyaslı bioreaktorların yaxşı qarışdığı və buna reaktor daxilindəki konsentrasiyaların hər nöqtədə təxminən eyni olduğu fərziyyəsi. Bu fərziyyə praktikada çox faydalıdır; çünki tək bir sensorla ölçülən ph ya həll olmuş oksigen qiymətinin bütün reaktoru təmsil etdiyi qəbul edilir. Beləliklə nəzarət sistemi tək nöqtədən aldığı məlumata görə qərar verə bilər. Lakin real axının davranışı, xüsusilə qaz-maye qarışığı, impeller təsiri, qabarcıq paylanması və hüceyrələrin oksigen sərfi işə daxil olduqda daha mürəkkəb ola bilər.
Böyük sənaye bioreaktorlarda qarışığın tam homogen olmadığı uzun müddətdir məlum bir problemdir. Böyük həcmlərdə qarışdırma müddəti uzar, qida maddələri və oksigen hər nöqtəyə eyni sürətlə çatmır, hüceyrələr fərqli mikro-mühitlərdən keçir. Buna qarşılıq 15–20 L kimi laboratoriya/benç miqyasına yaxın bioreaktorlarda adətən bu heterogenliklərin əhəmiyyətsiz sayıla biləcəyi düşünülür. Bu tədqiqat tam da bu düşüncəni sorğulayır və 20 L sinfində belə həll olmuş oksigen qradiyentlərinın yarana biləcəyini eksperimental və modelləşdirmə əsaslı olaraq göstərir.
Tədqiqatda istifadə bioreaktor, New Brunswick Scientific BioFlo 415 SIP Fermentation System olaraq verilən 19,5 L tutumlu bir sistemdir. Fed-batch deneylerinde işçi həcmi təxminən 13,5–14 L intervalında saxlanılmışdır. Mikroorqanizm olaraq E. coli BL21 (DE3) pET-VP1 istifadə edilmişdir. E. coli, biotexnologiyada və farmasevtik istehsalda geniş istifadə olunan bir model və istehsal organizması olduğu üçün seçilmişdir. Bu seçim, tədqiqatın yalnız əsas mayelər mexanikası deyil, real bioproses istehsalı baxımından da əhəmiyyətli olmasını təmin edir.
Təcrübələrdə həll olmuş oksigen sensorunun və nümunə götürmə qurğusunun hündürlüyü dəyişdirilə bilmişdir. Ölçmələr üç əsas hündürlük bölgəsində aparılmışdır: aşağı zona təxminən 0,14 m, orta zona təxminən 0,305 m və yuxarı zona təxminən 0,47 m hündürlüyə qarşılıq gəlir. Reaktorda impellerlər təxminən 0,09 m, 0,29 m və 0,51 m yüksekliklerine yerləşdirilmişdir. Bu yerləşmə, həll olmuş oksigen fərqlərinin yalnız şaquli mesafeden deyil, eyni zamanda impellerlerin yaratdığı dövriyyə bölgələrindən də təsirlənə biləcəyini göstərir.
Tədqiqatın birinci mühüm eksperimental nəticəsi, qlükoza, asetat və biokütlə üçün aydın məkan üzrə fərqlərin çox kiçik olmasıdır. Fed-batch tədqiqatlarda fərqli hündürlüklərdən götürülən nümunələrdə qlükoza və asetat konsantrasyonları böyük dərəcədə oxşar müəyyən edilmişdir. Biokütlə ölçmələrində yuxarı zonada təxminən %10 qədər daha yüksək optik sıxlıq meyli müşahidə; lakin bu fərqin ölçmə səs intervalında biləcəyi və hüceyrələrin qaldırma/sıxlıq təsirləri ilə yuxarı zonada bir qədər daha çox ola biləcəyi şəklində ehtiyatla edilmişdir. Buna görə modelləşdirmədə biokütlə, qlükoza və asetatın məkan olaraq homogen olduğu edilib.
Həll olmuş oksigen isə fərqli davranmışdır. Təcrübələrdə həll olmuş oksigenin reaktor hündürlüyü boyunca artdığı, yəni ən aşağı oksigenin aşağı zonada, ən yüksək oksigenin yuxarı zonada ölçüldüyü müşahidə edilmişdir. Birinci fed-batch təcrübədə 8,98–9,05 saat intervalında aşağı-orta fərqi təxminən %16, orta-yuxarı fərqi təxminən %14 olaraq verilmişdir. Eyni təcrübədəki 11,07–11,12 saat intervalında aşağı-orta fərqi təxminən %17, orta-yuxarı fərqi təxminən %21-ə yüksəlmişdir. İkinci fed-batch təcrübəsində isə sensor hündürlüyü 11 fərqli zamanda dəyişdirilmiş; orta hesabla aşağı-orta fərqi təxminən %12, orta-yuxarı fərqi təxminən %15 olaraq müəyyən edilmişdir. Ümumi meyl iki təcrübədə də eynidir: həll olmuş oksigen yuxarıda daha yüksək, altta daha aşağıdır.
Bu nəticə gündəlik bir bənzətmə belə izah edilə bilər: Bir otağın tək bir noktasındaki temperaturu ölçüp bütün otağın eyni temperaturda olduğunu varsaymak hər zaman doğru deyil. Kalorifer, klima ya hava akımı səbəbindən otağın bəzi zonaları daha isti ya daha soyuq ola bilər. Bioreaktorda də tək bir həll olmuş oksigen sensoru, yalnız yerləşdiyi noktanın oksigenini ölçür. Əgər reaktorda yukarıdan aşağıya oksigen fərqi varsa, sensorun mövqeyi bütün nəzarət strategiyasının şərhini dəyişir.
Tədqiqatın bioproses baxımından kritik nöqtəsi budur: Həll olmuş oksigen nəzarət sistemi adətən sensorun yerləşdiyi nöqtədəki dəyəri hədəf set nöqtəsinə gətirir. Bu tədqiqatda nəzarət set nöqtəsi 30% DO olaraq müəyyən edilmişdir və modeldə sensorun yerləşdiyi bölmə üçün həll olmuş oksigen set dəyəri bu şəkildə ifadə edilmişdir:
\[ O_2(t) = O^{set}_2 = 0.0018 \, g/L \]
Burada \(O_2(t)\) sensorun yerləşdiyi ikinci bölmədəki zamandan asılı həll olmuş oksigen konsentrasiyasını, \(O^{set}_2\) isə nəzarət set nöqtəsini təmsil edir. Bu ifadə, nəzarət devresi aktiv olduqda sensor bölgəsindəki oksigenin hədəf dəyərdə tutulduğunu edir. Lakin tədqiqat, digər bölmələrdəki oksigenin bu dəyərdən fərqli qala bildiyini göstərir.
Təcrübələrdə həmçinin “gassing-out” testləri aparılmışdır. Bu testlerde aerasiya qısa müddətəğine durdurulmuş, həll olmuş oksigen %10’un altına düşdükdə aerasiya yenidən başlanmışdır. Adətən bu növ testlər kla yəni həcmli oksigen ötürülmə əmsalını proqnoz etmək üçün olunur. kla, qaz fazından mayeyə oksigen keçidinin nə qədər effektiv olduğunu ifadə edən əsas bir bioreaktor parametridir. kla yüksəkdirsə, reaktor sıvısına oksigen daha sürətli taşınır; düşükse hüceyrələrin oksigen tələbi karşılanmakta çətinlik çəkə bilər.
Tədqiqatda gassing-out təcrübələri yalnız tək bir ümumi kla dəyəri proqnoz etmək üçün deyil, fərqli hündürlüklərdəki dinamik oksigen cavablarını anlamaq üçün də istifadə edilmişdir. Aerasiya dayandırıldıqda həll olmuş oksigen, hüceyrələrin oksigen sərfi və bölmələrarası yenidən paylanma səbəbindən azalır. Aerasiya yenidən başladıqda isə oksigen təkrar yüksəlir. Bu yüksəlmə sürəti, o bölgədəki qaz-maye kütlə ötürülməsi, qabarcıq paylanması, qarışıq və bioloji oksigen sərfi haqqında informasiya verir.
Gassing-out nəticələri, kla dəyərlərinin adətən reaktorun aşağı zonasinde daha aşağı olduğunu göstərmişdir. Bu vəziyyət, aşağı zonada daha aşağı həll olmuş oksigen ölçülməsi ilə uyğundur. Yuxarı bölgədə qaz qabarcıqlarının, qazın həcm payı qiymətinin ya oksigen ötürülmə sahəsinin daha effektiv olması, yuxarıdakı həll olmuş oksigenin daha yüksək qalmasına töhfə təmin etmiş ola bilər. Tədqiqatın modeli də bu şərhi dəstəkləyəcək şəkildə, hündürlüyə asılı oksigen ötürülmə fərqlərini nəzərə alır.
Modelləşdirmə tərəfində tədqiqat iki əsas hissədən ibarətdir. Birinci qat, E. coli mədəniyyətinin biokütlə, qlükoza və asetat dinamikalarını izah izah edən kinetik modeldir. İkinci qat isə həll olmuş oksigenin reaktor daxilində bölmədən bölməyə necə dəyişdiyini edən CFD dəstəkli bölməli modeldir. Beləliklə bioloji böyümə və oksigen sərfi ilə hidrodinamik daşınma birlikdə birlikdə nəzərə alınmışdır.
Klassik Monod kinetikası, mikroorqanizmlərin bir substratdan asılı böyüməni izah etmək üçün tez-tez istifadə olunan modeldir. Lakin tədqiqatda yalnız sadə Monod ifadəsinin qlükoza, asetat və biokütlə dinamikalarını kifayət qədər izah etmədiyi bildirilmişdir. Bunun səbəbi, E. coli böyüməsində lag/adaptasiya davranışı, yüksək biokütlədə böyümə inhibisiyası və qlükoza-asetat arasında metabolik keçid kimi əlavə mexanizmlərin işə düşməsidir.
Buna görə modeldə əvvəl biokütləyə asılı inhibisiya termini müəyyən edilmişdir:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Burada \(f_{inh}\) böyümə inhibisiya faktörünü, \(X\) biokütlə konsentrasiyasını, \(k_x\) inhibisiyanın belirginleştiği biokütlə səviyyəsini, \(n_x\) isə inhibisiyanın kəskinliyini müəyyən edən üssü ifadə edir. Biokütlə artdıqca hüceyrələrin böyüməsini məhdudlaşdıran mühit şəraiti yarana bilər; bu termin bu təsiri modelə əlavə.
Lag/adaptasiya davranışı üçün əvvəl bu aralıq funksiya edilmişdir:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
Sonra lag əmsalı bu şəkildə verilmişdir:
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Burada \(f_{lag}\) hüceyrələrin ilkin uyğunlaşma/adaptasiya təsirini, \(A_1\) aşağı asimptotik dəyəri, \(w\) şəkil parametrini, \(X_\beta\) sürüşdürmə parametrini təmsil edir. Bu ifadə, hüceyrələrin ortama dərhal maksimum sürətlə uyğunlaşmanın dərhal baş vermədiyini, müəyyən bir biokütlə və zamanın təsiri ilə böyümə davranışının mərhələli şəkildə dəyişə biləcəyini göstərir.
Asetat istifadəsini qlükoza səviyyəsinə asılı olaraq düzenlemek üçün substrat keçid funksiyası edilmişdir:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Burada \(S\) qlükoza konsentrasiyasını, \(k_h\) qlükozadan asetat istifadəsinə keçidi müəyyən edən sabiti, \(n_h\) isə keçidin kəskinliyini ifadə edir. Qlükoza yüksekken E. coli adətən qlükozanı üstün tutur; asetat istifadəsi məhdudlaşa bilər. Qlükoza azaldıqca asetatın yenidən istifadəsi işə olur. Bu davranış diauxic growth yəni ikili substrat istifadəsi/ardışık metabolik keçid olaraq bilinir.
Qlükoza və asetat üzərindəki xüsusi böyümə sürətləri tədqiqatda bu şəkildə ifadə edilmişdir:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Burada \(\mu_g\) qlükozaa asılı xüsusi böyümə sürətini, \(\mu_a\) asetata asılı xüsusi böyümə sürətini, \(\mu_{max,G}\) qlükoza üçün maksimum xüsusi böyümə sürətini, \(\mu_{max,A}\) asetat üçün maksimum xüsusi böyümə sürətini, \(K_s\) qlükoza Monod sabitini, \(A\) asetat konsentrasiyasını, \(K_a\) asetat inhibisiya sabitini və \(K_{a2}\) asetat qəbulu üçün Monod sabitini göstərir.
Ümumi effektiv xüsusi böyümə sürəti bu şəkildə edilmişdir:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Bu tənlik, ümumi böyümənin qlükoza və asetat katkılarından olduğunu, lakin hüceyrələrin adaptasiya durumunun bu ümumi böyüməni həmçinin təsir etdiyini edir.
Biokütlə gəlməsi, qlükoza sərfi və asetat istehsalı/sərfi üçün həcmli reaksiya sürətləri bu şəkildə verilmişdir:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Burada \(r_X\) biokütlə yaranma sürətini, \(r_S\) qlükoza sərf sürətini, \(r_A\) asetat istehsal/sərf sürətini, \(Y_{xs}\) qlükozadan biokütlə məhsuldarlığını, \(Y_{xa}\) qlükoza böyüməsi ilə əlaqəli asetat yaranma əmsalını, \(Y_{xa2}\) asetat tüketimiyle əlaqəli biokütlə məhsuldarlığını, \(m_x\) isə xidmət əmsalını ifadə edir.
Fed-batch şəraitində reaktore qidalandırma eklendiği və həcm dəyişdiyi üçün dinamik kütlə balans tənlikləri həcm mübadilə termini edir:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Burada \(V\) reaktor həcmini, \(dV/dt\) həcmin zamandan görə dəyişməsini, \(F_S(t)\) qlükoza qidalandırma debisini, \(S_0\) qidalandırma məhluldakı qlükoza konsentrasiyasını təmsil edir. Bu tənliklər, fed-batch proseslərində yalnız reaksiyaların deyil, sistemə əlavə edilən həcmin durulaşma təsirinin də nəzərə alınması lazım olduğunu göstərir.
Oksigen qradiyentini modelləşdirmək üçün reaktor altı üfüqi bölməyə ayrılmışdır. Hər bölmə öz daxilində yaxşı qarışmış CSTR kimi qəbul edilmişdir; lakin bölmələrarasında məhdud axın var. Bu yanaşma, tam CFD qədər ağır hesablama gerektirmez; lakin tamamilə tək həcmli “well-mixed” modeldən çox daha gerçekçidir. Ən mühüm məqam, bölmə sərhədlərinin keyfi seçilmemesidir. Sərhədlər, CFD simülasyonlarından əldə edilən dövriyyə zonaları arasına yerləşdirilmişdir.
Tədqiqatda iki fərqli bölmələndirmə strategiyası müqayisə edilmişdir. Birincisində sərhədlər dövriyyə zonaları arasına qoyulmuşdur. İkincisində sərhədlər dövriyyə bölgələrinin mərkəzlərinə yaxın yerləşdirilmişdir. Nəticələr, doğru oksigen qradiyentlərini əks etdirmək üçün sərhədlərin dövriyyə zonaları arasında olması lazım olduğunu göstərmişdir. Çünki bu bölgələr arasındakı axın sürətləri aşağıdır və natamam qarışığın yarandığı yerleri fiziki olaraq daha yaxşı təmsil edir. Səhv bölmələndirmə, yuxarı-aşağı oksigen fərqini doğru proqnoz edə bilməmişdir.
Bölmələr arası axın sürətləri CFD-dən əldə edilmişdir. Məsələn bölmə 1’dən 2’ye axın 7132 L/saat, bölmə 2’dən 3’e axın 3018 L/saat, bölmə 3’dən 4’e axın 905 L/saat olaraq verilmişdir. Bölmə hacimleri də fərqlidir; ilk bölmə 2,103 L, ikinci 1,648 L, üçüncü 3,650 L, dördüncü 2,451 L, beşinci 3,386 L və yuxarı bölmə başlanğıcda 0,8095 L olaraq bildirilmişdir. Yuxarı bölmənin həcmi fed-batch qidalandırma səbəbindən zamanla artmaktadır.
Oksigen sərfi bölmə bazında bu şəkildə ifadə edilmişdir:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Burada \(r_{O,i}\) i’nci bölmədəki oksigen sərf sürətini, \(Y_{ox}\) biokütlə gəlməsi başına oksigen sərf əmsalını, \(\mu_i\) yerli xüsusi böyümə sürətini, \(X_i\) yerli biokütlə konsentrasiyasını, \(O_i\) yerli həll olmuş oksigen konsentrasiyasını, \(K_O\) oksigen yarımkeçirici doyma sabitini, \(n_h\) isə Hill əmsalını ifadə edir. Bu tənlik, oksigenin hüceyrə böyüməsi ilə əlaqəli sərf edildiyini və aşağı oksigen səviyyələrində sərf davranışının oksigen mövcudluğuna həssas hala gəldiyini edir.
Bölmə i üçün həll olmuş oksigen tarazlığı bu quruluşdadır:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Bu tənlikdə \(q_{i\rightarrow j}\) i bölməsinden j bölməsine həcmli axın sürətinı, \(V_i\) i’nci bölmənin maye həcmini, \(k_{L,i}a_i\) i’nci bölmədəki həcmli oksigen kütlə ötürülməsi əmsalını, \(O^*\) doyma həll olmuş oksigen konsentrasiyasını, \(O_i\) yerli həll olmuş oksigen konsentrasiyasını ifadə edir. Tənlikdə ilk terminlər bölmələrarası daşınmanı, \(k_La\) termini qazdan mayeyə oksigen ötürülməsini, son termin isə hüceyrələrin oksigen sərfiyyatını təmsil edir.
Yuxarı bölmədə həcm zamanla dəyişdiyi üçün durulaşma termini də əlavə edilir:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Bu termin, yuxarı bölməyə fed-batch qidalandırma səbəbindən həcm əlavə edildikdə həll olmuş oksigen konsentrasiyasının durulaşma təsirindən necə təsirlənəcəyini izah edir.
Oksigen kütlə ötürülməsi əmsalı CFD-dən gələn hidrodinamik kəmiyyətlərlə miqyaslandırılmışdır. Maye tərəfi kütlə ötürülməsi əmsalı bu şəkildə proqnoz edilmişdir:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
Burada \(\varepsilon_i\) i’nci bölmədəki orta turbulent enerji dissipasiya sürətinı, \(C\) eksperimental orantı sabitini ifadə edir. Daha yüksək turbulentlik, adətən qabarcıq-maye təsirini artırarak oksigen ötürülməsini bilər.
Qaz-maye aralıq səth sahəsi bu şəkildə yazılmışdır:
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
Burada \(\phi_{b,i}\) qazın həcm payı dəyərini, \(d_{b,i}\) qabarcıq diametrinı ifadə edir. Qaz holdup, maye daxilində nə qədər qaz fazası olduğunu göstərir. Daha çox qabarcıq sahəsi, oksigen ötürülməsi üçün daha çox aralıq səth mənasına gəlir.
Qabarcıq diametrinin bölmələrarasında sabit qəbul edilməsi ilə həcmli kütlə ötürülməsi əmsalı bu şəkildə sadələşdirilmişdir:
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Burada \(\eta_i\) CFD-dən əldə edilən bölmə üzrə hidrodinamik kütlə ötürülməsi göstəricisidir. Tədqiqatda bu dəyərlər hər bölmə üçün hesaplanmış və oksigen ötürülmə katsayılarının bölmələrarasında ölçeklenmesinde istifadə edilmişdir.
Bu modelin əsas üstünlüyü, CFD-nin ətraflı axın məlumatını tamamilə bahalı və yavaş bir CFD-bioreaksiya simulyasiyasına çevirmədən istifadə etməsidir. CFD, bölmələrin harada olması lazım olduğunu və aralarındakı axınların nə qədər olduğunu müəyyən edir. Bölməli model isə biokütlə, qlükoza, asetat və oksigen dinamikalarını daha sürətli həll edir. Beləliklə həm fiziki məna qorunur həm də təkrar-təkrar simulyasiya aparıla biləcək qədər hesablama səmərəliliyi təmin olunur.
Tədqiqatda iki fed-batch təcrübəsi aparılmışdır. Fed-Batch 1’də ilkin işçi həcmi 13,5 L’dir. Set dəyərləri 37°C, 200 rpm, ph 7,0, DO %30 və hava axını 5 SLPM olaraq verilmişdir. Həll olmuş oksigen, 200–500 rpm qarışdırma və 5–20 SLPM hava axın aralığıyla mərhələli nəzarət strategiyası üzərindən tənzimlənmişdir. Qidalandırma, biokütlə təxminən 0,15–0,25 g/L-ə çatdıqda başlatılmış və addım addım artırılmışdır.
Fed-Batch 2’də metod böyük dərəcədə eynidir; lakin ilkin həcmi 14 L olaraq daha doğru dəqiq saxlanılmışdır. İlkin OD dəyəri Fed-Batch 1’də 0,037 olduğu Fed-Batch 2’də 0,06’dır. Qidalandırma strategiyası də fərqlidir. Fed-Batch 2 təxminən 1,7 saat daha qısa sürmüş və Fed-Batch 1’e görə %78 daha yüksək maksimum hüceyrə intensivliyinə çatmışdır. Bu fərq, iki təcrübənin oksigen sərfi və nəzarət davranışında fərqlər biləcəyi üçün modeldə nəzərə götürülmüşdür.
Model nəticələri biokütlə, qlükoza və asetat profillərini ümumi olaraq yaxşı izah etmişdir. Xüsusilə qlükoza sərfi və asetat istehsalından, daha sonra asetatın yenidən istifadəsinə keçid davranışı əks etdirilmişdir. Bu, E. coli metabolizmasında məlum overflow metabolism və asetat cycling davranışlarıyla uyğundur. Fed-Batch 1’də modelin təxminən 14 saat sonra asetat istehsalını aşağı proqnoz etdiyi bildirilmişdir; bu vəziyyət eyni dövrdə qlükoza sərfiyyatının də aşağı proqnoz edilməsi ilə əlaqələndirilmişdir. Buna baxmayaraq biokütlə profilləri iki təcrübədə də yaxşı təmsil edilmişdir.
Oksigen modelində, CFD-dən gələn bölmələrarası axın sürətləri Fed-Batch 2 üçün birbaşa istifadə edilmişdir. Fed-Batch 1’də isə qarışdırma profili fərqli olduğu üçün axın sürətləri 0,7 düzəliş əmsalı ilə vurulmuşdur. Bu amil, Fed-Batch 1 və 2 arasındakı RPM profil sahəsinin nisbətinə qarşılıq gəlir. Beləliklə model, birinci təcrübədə daha aşağı orta qarışdırma təsirini təmsil etməyə çalışıb.
Model, sensorun yerləşdiyi aşağı zonadakı davamlı oksigen ölçmələrini, fərqli yüksekliklere taşınan sensorla götürülən aralıklı ölçmələri və gassing-out deneylerindeki dinamik oksigen cavablarını müqayisə etmişdir. Əsas nəticə, modelin hündürlüklə artan oksigen trendini doğru yakalamasıdır. Yəni təcrübələrdə olduğu kimi modeldə də aşağı zonada oksigen daha aşağı, yuxarı zonada daha yüksək müəyyən edilmişdir. Bu, tək bir sensorla nəzarət edilən DO qiymətinin reaktorun bütün həcmini təmsil etmeyebileceğini aydın şəkildə dəstəkləyir.
Tədqiqatın ən kritik modelləşdirmə nəticəsi, bölmələndirmə mövqeyinin nəticəni ciddi şəkildə dəyişdirməsidir. CFD dəstəkli doğru bölmələndirmə, eksperimental olaraq müşahidə olunan təxminən %30 yuxarı-aşağı oksigen fərqini izah edə bilmişdir. Alternativ və fiziki olaraq daha zəif bölmələndirmə isə yalnız təxminən %10 ətrafında oksigen dəyişməsi proqnozlaşdırmış və xüsusilə yuxarı sensor mövqeyindəki ölçmələri yaxşı əks etdirə bilməmişdir. Bu, bioreaktor modelləşdirilməsində “neçə bölmə var?” sualından daha mühüm bir sualı gündəmə gətirir: “Bölmə sərhədləri axın fizikasına uyğun yerdədirmi?”
Gassing-out dinamik yanıtlarının modellenmesi də tədqiqatın güclü taraflarından biridir. Aerasyon yenidən başladıldıqdan sonra yuxarı zonadaki oksigenin aşağı zonaya görə daha sürətli və daha böyük artım göstərə bildiyi model tərəfindən ümumi olaraq əks etdirilmişdir. Bu vəziyyət, yuxarı zonada oksigen ötürülməsinin daha yüksək olduğunu düşündürür. Bəzi təcrübələrdə model orta ya aşağı zonada oksigeni aşağı proqnoz etmişdir; tədqiqatçılar bu fərqi yerli hidrodinamik dalgalanmalara, prob mövqeyi belirsizliğine və hər sensor hündürlüyünü tək bir bölməyle təmsil etmenin basitleştirici etkisine bağlamaktadır.
Bu tədqiqatnın praktik nəticəsi böyükdür. Əgər bir bioreaktorda sensor aşağı zonada yerləşirsə və nəzarət sistemi burada DO %30’u tutuyorsa, yuxarı zonada hüceyrələr daha yüksək oksigen mühitində bilər. Tersi şəkildə fərqli sensor mövqeləri, nəzarət sisteminin fərqli aerasiya və qarışdırma reaksiyaları vermesine niyə ola bilər. Bu, hüceyrə böyüməsi, metabolik yan məhsul gəlməsi, protein istehsalı və məhsul keyfiyyəti üzərində dolayı təsirlər yarada bilər. Tədqiqat birbaşa məhsul keyfiyyəti ölçməmişdir; lakin proses nəzarət baxımından sensor mövqeyinin kritik olduğunu göstərir.
Miqyas böyütmə baxımından da nəticələr vacibdir. Laboratoriya ya pilot miqyaslı bir bioreaktorda belə oksigen qradiyenti yaranırsa, daha böyük sənaye həcmlərdə bu təsirin daha mürəkkəbləşməsi gözlənilə bilər. Böyük bioreaktorlarda hüceyrələr reaktor daxilində fərqli oksigen, substrat və pH bölgələrindən keçə bilər. Bu keçidlər hüceyrə metabolizmasını təsir edə bilər. Buna görə kiçik miqyasda “yaxşı qarışmış” qəbul edilərək hazırlanan proseslərin böyük miqyasda niyə gözləniləndən fərqli davrandığını anlamaq üçün bu növ tədqiqatlar dəyərlidir.
Keçmişdə bioreaktorların modelləşdirilməsi çox vaxt tək həcmli ya sadələşdirilmiş qarışıq fərziyyələrinə əsaslanmışdır. Bu gün isə biofarmasevtik istehsalda keyfiyyət, səmərəlilik və xərc təzyiqi artdıqca daha real modelləşdirmə metodlarına ehtiyac yaranır. CFD tək başına çox ayrıntılıdır lakin çox bahalı hesablama bilər. Bölməli modellər isə hızlıdır lakin fiziki olaraq səhv bölməlendirilirse yanıltıcı ola bilər. Bu tədqiqat, iki yanaşması birləşdirən bir yol təklif edir: CFD axın quruluşunu edir, bölməli model bioloji və oksigen dinamikalarını sürətli şəkildə həll edir.
Gələcək baxımından bu yanaşma; optimal reaktor dizaynı, sensor mövqeyi seçimi, qarışdırma və aerasiya strategiyası optimallaşdırması, model əsaslı nəzarət, miqyaslandırma və scale-down simülatör dizaynı üçün bilər. Xüsusilə biofarmasevtik istehsalda, prosesin kiçik fərqləri belə məhsul keyfiyyətinə təsir edə biləcəyindən, yerli oksigen ölçmələri və yaxşı seçilmiş model strukturları daha kritik hala bilər.
Tədqiqatın güclü tərəfləri arasında həll olmuş oksigen qradiyentlərinın birbaşa fərqli prob yüksekliklerinde ölçülməsi, iki ayrı fed-batch deneyinin istifadəsi, gassing-out dinamiklerinin modelə daxil keçirilməsi, qlükoza-asetat-biokütlə kinetiğinin oksigen tarazlığı ilə bağlanması və CFD dəstəkli bölmələndirmə strategiyasının eksperimental məlumatlarla müqayisəsi yer alır. Tədqiqat yalnız “qradiyent var” demekle kalmamakta, bu qradiyentın niyə yarana biləcəyini axın zonaları, bölmələrarası aşağı debiler və hündürlüklə dəyişən oksigen ötürülməsi üzərindən izah etməyə çalışır.
Məhdudiyyətlər da diqqətlə qeyd edilməlidir. Tədqiqat resenziyadan keçməmiş bir preprintdir. Təcrübələr iki fed-batch tədqiqat üzərindən aparılmışdır; fərqli bioreaktor geometrileri, fərqli impellerlər, fərqli mikroorganizmalar, fərqli hacimler və fərqli nəzarət strategiyaları üçün nəticələr birbaşa genellenmemelidir. pH qradiyentləri gözlendiği belirtilmiş lakin bu məqalədə ətraflı sunulmamış və modelləşdirilməyib. Biokütlə, qlükoza və asetat üçün qradiyentlərin kiçik olduğu qəbul edilmişdir; lakin nümunə götürmə prosesinin eyni anda aparıla bilməməsi müvəqqəti fərqləri gizlətmiş ola bilər. Həmçinin kLa-nın qarışdırma və aerasiyaya açıq bir empirik əlaqəsi modelə birbaşa əlavə edilməmiş, nəzarət mərhələsində effektiv bir zaman asılı parametr olaraq birlikdə nəzərə alınmışdır.
Tədqiqatın dediyi şey budur: 20 L miqyaslı E. coli fed-batch bioreaktorlerinde, həll olmuş oksigen reaktor hündürlüyü boyunca əhəmiyyətli şəkildə dəyişə bilər; tək nöqtədə aparılan DO ölçülməsi bütün reaktoru təmsil etməyə bilər; CFD ilə doğru müəyyən bölməli modellər bu qradiyentləri izah etməkdə faydalıdır. Tədqiqatın demədiyi şey isə budur: Bütün 20 L bioreaktorlarda eyni nisbətlərdə oksigen qradiyenti yaranacağı, bu qradiyentlərin hər zaman məhsul keyfiyyətini bozacağı ya təklif olunan modelin hər bioproses üçün birbaşa keçərli olduğu sübut deyil. Buna görə tədqiqat, ümumiləşdirilmiş bir zəmanət deyil, yaxşı sənədləşdirilmiş bir eksperimental-modelləşdirmə xəbərdarlığı olaraq qiymətləndirilməlidir.
Tədqiqatın Metodu və Nəticələri
Tədqiqatın metodu, E. coli fed-batch fermentasiyalarında fərqli hündürlüklərdə həll olmuş oksigeni ölçmək, qlükoza/asetat/biokütlə ölçmələrini müqayisə etmək, gassing-out təcrübələri ilə oksigen ötürülmə davranışını araşdırmaq və CFD dəstəkli altı bölməli dinamik bir modellə bu müşahidələri izah etmək üzərində qurulub.
Təcrübə sistemi:
| Xüsusiyyət | Dəyər / Izah |
|---|---|
| Bioreaktor | New Brunswick Scientific BioFlo 415 SIP Fermentation System |
| Ümumi qab | 19,5 L |
| Fed-batch işçi həcmi | Təxminən 13,5–14 L |
| Mikroorqanizm | E. coli BL21 (DE3) pET-VP1 |
| Temperatur | 37°C |
| ph set nöqtəsi | 7,0 |
| DO set nöqtəsi | %30 |
| İlkin qarışdırma | 200 rpm |
| Nəzarət arası | 200–500 rpm qarışdırma, 5–20 SLPM hava axını |
Ölçmə mövqeləri:
| Mövqe | Təxminən hündürlük | Mənası |
|---|---|---|
| Aşağı | 0,14 m | Ən aşağı DO dəyərlərinin müşahidə edildiyi bölgə |
| Orta | 0,305 m | Aralıq ölçmə zonası |
| Yuxarı | 0,47 m | Ən yüksək DO dəyərlərinin müşahidə edildiyi bölgə |
İmpeller mövqeləri:
- Təxminən 0,09 m
- Təxminən 0,29 m
- Təxminən 0,51 m
Bu impeller yerləşimi, reaktor daxilində fərqli dövriyyə zonaları yaranmasına niyə olur. Tədqiqatdakı CFD dəstəkli model, bölmə sərhədlərini bu dövriyyə zonaları arasına yerləşdirərək oksigen qradiyentlərini daha doğru təmsil etməyə çalışıb.
Fed-batch təcrübələri:
| Təcrübə | İlkin həcmi | İlkin OD | Qidalandırma strategiyası | Mühüm fərq |
|---|---|---|---|---|
| Fed-Batch 1 | 13,5 L | 0,037 | 0,036 → 0,072 → 0,108 → 0,144 L/saat | Daha uzunmüddətli davam etdi, daha aşağı maksimum hüceyrə sıxlığı |
| Fed-Batch 2 | 14 L | 0,06 | 0,0216 → 0,036 → 0,0504 L/saat | Təxminən 1,7 saat daha qısa davam etdi, %78 daha yüksək maksimum hüceyrə sıxlığı |
Metabolit və biokütlə ölçmələri:
- Biokütlə OD600 ölçümüyle takip edilmiş və quru hüceyrə çəkisi kalibrasyonu istifadə edilmişdir.
- Qlükoza və asetat HPLC ilə ölçülmüşdür.
- Qlükoza refraktiv indeks deteksiyası ilə, asetat/asetik turşu UV 210 nm və/ya refraktiv indeks deteksiyası ilə müəyyən edilmişdir.
- Aşağı və yuxarı nümunə götürmə mövqeləri arasında qlükoza və asetat üçün aydın qradiyent müşahidə edilməmişdir.
- Biokütlə yuxarıda təxminən %10 daha yüksək görünmüş, lakin bu fərq ölçmə səs və mümkün qaldırma təsirləri ilə ehtiyatla edilmişdir.
Eksperimental həll olmuş oksigen qradiyentləri:
| Təcrübə / Zaman arası | Aşağı-Orta fərq | Orta-Yuxarı fərq | Ümumi meyl |
|---|---|---|---|
| Fed-Batch 1, 8,98–9,05 h | Təxminən %16 | Təxminən %14 | DO hündürlüklə arttı. |
| Fed-Batch 1, 11,07–11,12 h | Təxminən %17 | Təxminən %21 | Daha aydın şaquli fərq yarandı. |
| Fed-Batch 2, 11 fərqli sensor dəyişməsi | Orta təxminən %12 | Orta təxminən %15 | Yuxarı bölgə ən yüksək, aşağı zona ən aşağı DO dəyərini verdi. |
Gassing-out təcrübələri:
- Aerasiya qısa müddətə olaraq dayandırılmışdır.
- DO %10’un altına düşdükdə aerasiya yenidən başlanmışdır.
- Bu testlər aşağı, orta və yuxarı sensor mövqelərində kla və oksigen ötürülmə dinamikalarını qiymətləndirmək üçün istifadə edilmişdir.
- kla adətən reaktorun aşağı zonasinde daha aşağı müəyyən edilmişdir.
- Aerasiya yenidən başladıqda yuxarı zonadaki oksigen artımı adətən daha sürətli və daha yüksək olmuşdur.
Kinetik modeldə istifadə əsas ifadələr:
Biokütlə inhibisiyası:
\[ f_{inh} = \frac{1}{1 + \left(\frac{X}{k_x}\right)^{n_x}} \]
Lag/adaptasiya termini:
\[ \theta(X) = \frac{1}{1 + \left(\frac{K_{x2}}{X}\right)^{n_{x2}}} \]
\[ f_{lag} = A_1 + (1-A_1)\exp[-\exp(-w\theta + X_\beta)] \]
Substrat keçid funksiyası:
\[ f_{switch} = \frac{1}{1 + \left(\frac{S}{k_h}\right)^{n_h}} \]
Qlükoza və asetat böyümə sürətləri:
\[ \mu_g = \mu_{max,G}\left(\frac{S}{K_s+S}\right)\left(\frac{K_a}{K_a+A}\right)f_{inh} \]
\[ \mu_a = \mu_{max,A}\left(\frac{A}{K_{a2}+A}\right)f_{switch}f_{inh} \]
Ümumi xüsusi böyümə:
\[ \mu_{tot} = (\mu_g + \mu_a)f_{lag} \]
Reaksiya sürətləri:
\[ r_X = \mu_{tot}X \]
\[ r_S = -\left(\frac{\mu_g X}{Y_{xs}} + m_x X\right) \]
\[ r_A = \left(\frac{\mu_g X}{Y_{xa}}\right) - \left(\frac{\mu_a X}{Y_{xa2}}\right) \]
Kütlə balans tənlikləri:
\[ \frac{dX}{dt} = r_X - \frac{X}{V}\frac{dV}{dt} \]
\[ \frac{dS}{dt} = \frac{F_S(t)}{V}S_0 + r_S - \frac{S}{V}\frac{dV}{dt} \]
\[ \frac{dA}{dt} = r_A - \frac{A}{V}\frac{dV}{dt} \]
Oksigen sərfi:
\[ r_{O,i} = Y_{ox}\mu_i X_i \frac{O_i^{n_h}}{K_O^{n_h}+O_i^{n_h}} \]
Bölmə əsaslı oksigen tarazlığı:
\[ \frac{dO_i}{dt} = \frac{q_{i+1\rightarrow i}}{V_i}O_{i+1} + \frac{q_{i-1\rightarrow i}}{V_i}O_{i-1} - \frac{q_{i\rightarrow i+1}}{V_i}O_i - \frac{q_{i\rightarrow i-1}}{V_i}O_i + k_{L,i}a_i(O^* - O_i) - r_{O,i} \]
Yuxarı bölmə üçün əlavə həcm dəyişməsi termini:
\[ -\frac{O_6}{V_6}\frac{dV_6}{dt} \]
Kütlə transferi ölçekleme əlaqələri:
\[ k_{L,i} = C\varepsilon_i^{1/4} \]
\[ a_i = \frac{6\phi_{b,i}}{d_{b,i}} \]
\[ k_{L,i}a_i = C'\eta_i \]
\[ \eta_i = \varepsilon_i^{1/4}\phi_{b,i} \]
Bu ifadelerde \(\varepsilon_i\) turbulent enerji dissipasiya sürətinı, \(\phi_{b,i}\) qazın həcm payı dəyərini, \(d_{b,i}\) qabarcıq diametrinı və \(\eta_i\) CFD-dən əldə edilən bölmə üzrə oksigen ötürülmə göstəricisini təmsil edir.
Model parametrelerinden bəziləri:
| Parametr | Dəyər | Mənası |
|---|---|---|
| \(\mu_{max,G}\) | 0,595 h-1 | Qlükoza üzərində maksimum xüsusi böyümə sürəti |
| \(\mu_{max,A}\) | 0,595 h-1 | Asetat üzərində maksimum xüsusi böyümə sürəti |
| \(K_s\) | 0,038 g/L | Qlükoza Monod sabiti |
| \(K_a\) | 0,693 g/L | Asetat inhibisiya sabiti |
| \(Y_{xs}\) | 0,361 gX/gS | Qlükozadan biokütlə məhsuldarlığı |
| \(Y_{ox}\) | 0,352 gO/gX | Biokütlə yaranmasına asılı oksigen sərf əmsalı |
| \(K_O\) | 6,000 × 10-4 g/L | Oksigen yarımkeçirici doyma sabiti |
| \(n_O\) | 10,400 | Oksigen alımındaki Hill əmsalı |
CFD dəstəkli bölmələrarası axınlar:
| Bölmə | Yuxarı axın \(q_{i\rightarrow i+1}\) | Aşağı axın \(q_{i\rightarrow i-1}\) | Həcm |
|---|---|---|---|
| 1 | 7132 L/saat | – | 2,103 L |
| 2 | 3018 L/saat | 7132 L/saat | 1,648 L |
| 3 | 905 L/saat | 3018 L/saat | 3,650 L |
| 4 | 1544 L/saat | 905 L/saat | 2,451 L |
| 5 | 2118 L/saat | 1544 L/saat | 3,386 L |
| 6 | – | 2118 L/saat | 0,8095 L və zamanla artan həcm |
Əsas modelləşdirmə nəticələri:
- Biokütlə, qlükoza və asetat profilləri model tərəfindən ümumi olaraq yaxşı təmsil edilmişdir.
- Model, qlükoza sərfi və asetat istehsalından asetatın yenidən istifadəsinə keçidini əks etdirmişdir.
- Həll olmuş oksigen üçün tək məqam nəzarəti, digər hündürlüklərdə eyni oksigen səviyyəsini təmin etməmişdir.
- CFD dəstəkli doğru bölmələndirmə, eksperimental oksigen qradiyentlərini niteliksel olaraq doğru proqnoz etmişdir.
- Səhv bölmələndirmə strategiyası, xüsusilə yuxarı zonadaki oksigen ölçmələrini yaxşı izah edə bilməmişdir.
- Gassing-out təcrübələri, yuxarı zonada oksigen ötürülməsinin daha sürətli ola biləcəyini dəstəkləmişdir.
Şəkil və qrafiklərin mənası:
- Bioreaktor sxemi, sensor və nümunə götürmə noktalarının aşağı, orta və yuxarı konumlara necə yerləşdirildiyini göstərir. Bu vizual, tədqiqatın əsas mesajı olan “sensor mövqeyi vacibdir” ideyasını birbaşa edir.
- Fed-batch böyümə eğrileri, iki təcrübənin eyni şəkildə ilerlemediğini; ikinci tədqiqatın daha qısa sürdüğünü və daha yüksək hüceyrə intensivliyinə çatdığını göstərir.
- CFD bölmələndirmə vizualları, dövriyyə zonaları arasına yerləşdirilən bölmə sərhədlərinin niyə daha doğru model verdiyini göstərir. Alternativ sərhəd seçimi oksigen qradiyentını zəif proqnoz edir.
- Qlükoza və asetat müqayisə qrafikləri, bu metabolitlərde yuxarı-aşağı fərqlərin kiçik olduğunu və modelləşdirmədə homogen kabulün makul olduğunu dəstəkləyir.
- Biokütlə qrafiki, yuxarı zonada yüngül daha yüksək OD meyli olduğunu lakin bunun ehtiyatla şərh lazım olduğunu göstərir.
- Oksigen qradiyenti qrafikləri, həll olmuş oksigenin reaktor yüksekliğiyle artdığını və aşağı zonada daha aşağı qaldığını aydın şəkildə göstərir.
- Gassing-out qrafikləri, aerasiya kesildiğinde DO’nun düştüğünü, aerasiya yenidən başladıqda toparlandığını və bu bərpa sürətinin konuma görə dəyişdiyini göstərir.
- Model-təcrübə müqayisə qrafikləri, təklif olunan bölməli modelin həm davamlı DO ölçmələrini həm də hündürlük dəyişikliklərinə asılı oksigen qradiyentlərini ümumi olaraq yakaladığını göstərir.
Ümumi texniki nəticə: Tədqiqat, 20 L miqyaslı E. coli fed-batch bioreaktoründe qlükoza, asetat və biokütlə böyük dərəcədə homogen görünsə belə həll olmuş oksigenin homogen olmaya biləcəyini göstərir. Buna görə bioreaktorlarda tək bir DO sensorunun mövqeyi proses nəzarətində kritik bir dəyişən olaraq nəzərdən nəzərə alınmalıdır.
Mənbə və Metod Qeydi
Bu məqalə, Ittisak Promma, Danny Kang, Zahra Negahban, Valerie Ward, Nasser Mohieddin Abukhdeir, Marc G. Aucoin və Hector Budman tərəfindən hazırlanmış “Probe Location Matters: Oxygen Gradient Measurements and CFD-Informed Modeling Challenge the Well-Mixed Assumption in Bench-Scale Bioreactors” adlı tədqiqata əsaslanaraq hazırlanıb. Tədqiqat, University of Waterloo Kimya Mühendisliği Bölməsi kontekstində aparılmışdır.
Mənbə növü, SSRN üzərində əlçatanlığa açılmış bir preprint tədqiqat məqaləsidir. Mətndə aydın şəkildə “This preprint research paper has not been peer reviewed” ifadəsi yer aldığı üçün tədqiqat resenziyadan keçməmişdir. Buna görə nəticələr, resenziyalı yekun nəşr olaraq deyil, eksperimental ölçmə və modelləşdirmə əsaslı bir preprint tədqiqat olaraq qiymətləndirilməlidir.
Bu tərkib, tədqiqatda verilən bioreaktor təcrübələri, E. coli fed-batch şəraiti, həll olmuş oksigen ölçmələri, gassing-out testləri, kinetik model tənlikləri, CFD dəstəkli bölməli model strukturu, şəkil və cədvəl nəticələri əsas götürülərək hazırlanıb. PDF yer almayan məhsul keyfiyyəti, klinik istehsal uğuru, sənaye zəmanət, bütün bioreaktorlarda eyni nəticələrin görüleceği ya kommersiya tətbiqolunma qabiliyyəti kimi iddialar edilməmişdir.
Tədqiqat həll olmuş oksigen qradiyentlərini ətraflı olaraq eksperimental və modelləşdirmə əsaslı şəkildə nəzərdən alırken, pH qradiyentlərinın gözlendiğini lakin bu məqalədə ətraflı sunulmadığını və modellenmediğini bildirirlər. Buna görə ph ilə oksigen arasındakı birləşmə gələcəkdə həmçinin araşdırılması lazım olan bir mövzu olaraq nəzərdən keçirilməlidir.
Nəticələr, istifadə bioreaktor həndəsəsi, impeller mövqeləri, E. coli suşu, fed-batch şəraiti, sensor mövqeləri və model fərziyyələri çərçivəsində keçərlidir. Fərqli ölçeklerde, fərqli reaktor tasarımlarında ya fərqli organizmalarda birbaşa eyni qradiyent dəyərlərinin yaranacağı varsayılmamalıdır. Lakin tədqiqat, bioproses monitorinq və nəzarətində sensor mövqeyinin nəzərdən qaçırılmamalı gerektiğine dair güclü bir texniki xəbərdarlıq edir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib