

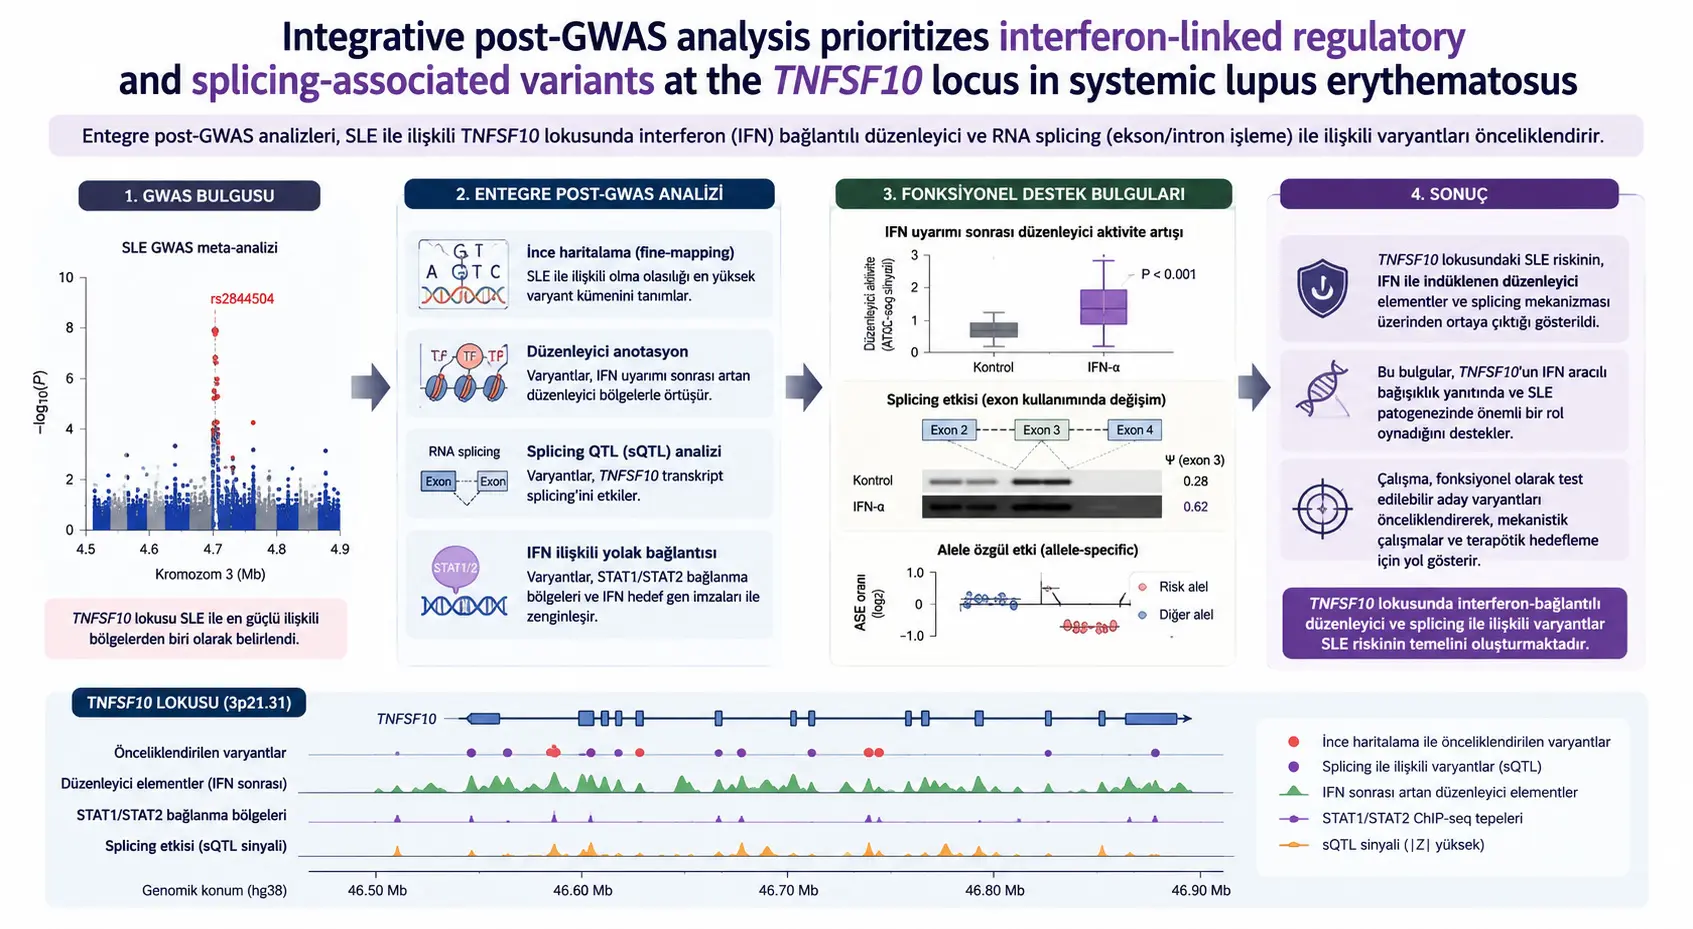
Sistemik lupus eritematozus, bağışıklık sisteminin kişinin kendi hücre ve dokularına karşı tepki geliştirdiği, genetik yatkınlık ile çevresel etkilerin birlikte rol oynadığı karmaşık bir otoimmün hastalıktır. Hastalığın moleküler özelliklerinden biri, tip I interferon sinyalinin birçok hastada aşırı etkinleşmesidir. Ancak genom çapında ilişkilendirme çalışmalarında lupusla bağlantılı bulunan genetik varyantların çoğu protein kodlayan bölgelerde değildir. Bu nedenle bir varyantın hastalıkla istatistiksel ilişki göstermesi, onun hangi geni, hangi hücrede ve hangi moleküler süreç üzerinden etkilediğini tek başına açıklamaz.
Bu çalışmada araştırmacılar, Tayvan Precision Medicine Initiative kapsamında elde edilen sistemik lupus GWAS özet istatistiklerini çeşitli işlevsel genomik kaynaklarla birleştirdi. Analiz 5.184 lupus olgusu ve 311.848 kontrolden türetilen GWAS sonuçlarına dayanıyordu. Genom çapında anlamlı varyantlardan 21 aday gen belirlendi. Bu genler içinde özellikle IRF5, IRF8 ve STAT4, interferon ve sitokin sinyallemesiyle bağlantılı olmaları ve TNFSF10 geninin düzenleyici bölgelerinde kendilerine ait öngörülen bağlanma motiflerinin bulunması nedeniyle önceliklendirildi.
TNFSF10, bağışıklık düzenlenmesi ve hücresel sinyal süreçleriyle ilişkilendirilen TRAIL proteinini kodlar. Araştırmanın önemli sonucu, TNFSF10 çevresindeki genetik varyantların çoğunun genin toplam ifade miktarından çok, üretilen RNA’nın nasıl kesilip birleştirildiğiyle ilişkili görünmesidir. Başka bir ifadeyle varyantlar TNFSF10’un yalnızca “ne kadar üretildiğini” değil, hangi RNA biçimlerinin veya izoformlarının üretildiğini etkiliyor olabilir.
GTEx verilerinde TNFSF10’un aşağı akımında ve 3′ uç bölgesine yakın konumlanan çok sayıda varyant, özellikle EBV ile dönüştürülmüş lenfositlerde ve tam kanda splicing QTL sinyalleri gösterdi. EBV ile dönüştürülmüş lenfositlerdeki ortalama sQTL etki büyüklüğü, tam kandaki ortalama etkinin yaklaşık 2,35 katıydı. Varyantların bir bölümü terminal intronlara, ekzonlara ve 3′UTR bölgesine yakınken bir bölümü genin birkaç bin baz çifti ötesindeydi.
Bağlantı dengesizliği analizleri, bu varyantların birbirinden bağımsız hareket etmediğini ve bazı popülasyonlarda güçlü genetik bloklar oluşturduğunu gösterdi. Tayvan ve Doğu Asya popülasyonlarında görülen bağlantı yapısı, Afrika, Amerika, Avrupa ve Güney Asya popülasyonlarındaki yapılardan farklıydı. Bu durum, aynı biyolojik bölgenin farklı topluluklarda farklı işaretleyici varyantlarla temsil edilebileceğini göstermektedir.
ENCODE, ORegAnno, ReMap, H3K27ac ve Micro-C verileri de bazı TNFSF10 aşağı akım varyantlarının düzenleyici bölgelerle ve üç boyutlu kromatin temaslarıyla örtüştüğünü gösterdi. Özellikle rs62282578, TNFSF10’un 3′ ucunun yaklaşık 1.924 baz çifti aşağısında bulunan ve artırıcı olarak işaretlenen bir düzenleyici bölgeyle örtüşüyordu. Bununla birlikte bu sonuçların hiçbiri varyantların TNFSF10’u doğrudan düzenlediğini veya lupusa neden olduğunu kanıtlamamaktadır. Çalışma, deneysel olarak doğrulanması gereken aday varyantları ve olası mekanizmaları önceliklendiren hesaplamalı bir araştırmadır.
Detaylı Açıklama
Sistemik lupusta genetik mekanizmayı anlamak neden zordur?
Sistemik lupus eritematozus; cilt, eklem, böbrek, kan hücreleri, sinir sistemi ve başka organları etkileyebilen, klinik görünümü kişiden kişiye büyük ölçüde değişen kronik bir otoimmün hastalıktır. Hastalığın ortaya çıkması tek bir genin bozulmasıyla açıklanamaz. Çok sayıda genetik varyant, çevresel tetikleyiciler ve bağışıklık sisteminin düzenleyici mekanizmaları birlikte rol oynar.
Çalışmada ultraviolet maruziyet ve viral enfeksiyonlar, genetik yatkınlıkla etkileşebilen çevresel etkenlere örnek olarak verilmektedir. Bu tür etkiler, doğuştan gelen ve kazanılmış bağışıklık hücrelerini harekete geçiren interferon sistemini etkileyebilir.
Tip I interferon sinyalinin aşırı çalışması sistemik lupusun belirgin moleküler özelliklerinden biridir. İnterferon sinyalleri monositleri, dendritik hücreleri, makrofajları, T hücrelerini ve B hücrelerini etkileyebilir. Bu nedenle interferon üretimini veya interferona verilen hücresel yanıtı değiştiren kalıtsal varyantlar, lupus yatkınlığının anlaşılmasında önemli adaylardır.
Bununla birlikte genom çapında ilişkilendirme çalışmalarının bulduğu sinyallerin çoğu genlerin protein kodlayan bölümlerinde değildir. Bir GWAS sinyali çoğu zaman aşağıdaki sorulardan hiçbirini doğrudan yanıtlamaz:
- İstatistiksel ilişkiyi oluşturan gerçek işlevsel varyant hangisidir?
- Varyant hangi geni düzenlemektedir?
- Genin toplam ifade düzeyini mi, RNA işlenmesini mi değiştirmektedir?
- Etki hangi bağışıklık hücresinde veya dokuda ortaya çıkmaktadır?
- Aynı varyant farklı kökenlerden gelen insanlarda aynı genetik yapının parçası mıdır?
- İlişki doğrudan mıdır, yoksa yakınındaki başka bir varyantı mı temsil etmektedir?
Bu nedenle GWAS sonrasında, bulunan istatistiksel sinyallerin işlevsel genomik verilerle açıklanması gerekir. Bu sürece genel olarak post-GWAS analizi denir.
Araştırmanın temel sorusu
Çalışmanın merkezinde TNFSF10 geni yer almaktadır. TNFSF10, tümör nekroz faktörüyle ilişkili apoptoz uyarıcı ligand olarak bilinen TRAIL proteinini kodlar. TRAIL yalnızca hücre ölümünü düzenleyen bir molekül değildir; T hücresi aktivasyonu, inflamasyon ve bağışıklık toleransıyla ilişkili bağlamlarda da rol oynayabilir.
Önceki araştırmalarda lupus hastalarında TNFSF10 ifadesinin ve dolaşımdaki TRAIL düzeylerinin değişebildiği, bazı sonuçların hastalık aktivitesi veya organ tutulumu ile ilişkili olduğu bildirilmiştir. İnterferon sinyalinin TNFSF10 ifadesini artırabildiğine ilişkin bulgular da bulunmaktadır.
Buna rağmen interferonla ilişkili lupus risk genlerinin TNFSF10’un düzenlenmesiyle nasıl bir genetik mimari içinde birleştiği açık değildir. Araştırmacılar bu nedenle üç katmanlı bir soru sordu:
- Lupus GWAS sinyalleri içinde hangi interferon genleri öne çıkmaktadır?
- Bu genler TNFSF10’un düzenleyici bölgeleriyle potansiyel bağlantı taşıyor mu?
- TNFSF10 çevresindeki varyantlar gen ifadesinden çok RNA kesilip-birleştirilmesini etkiliyor olabilir mi?
GWAS veri kaynağı ve çalışma büyüklüğü
GWAS özet istatistikleri, Tayvan’daki 16 tıp merkezinden katılımcıların yer aldığı Taiwan Precision Medicine Initiative veri kaynağından elde edildi. TPMI programında toplam 565.390 katılımcının bulunduğu bildirilmektedir.
Sistemik lupus özelliği için kullanılan GWAS veri kümesi:
- 5.184 sistemik lupus olgusundan,
- 311.848 kontrolden
oluşuyordu. Olgular, ICD-9 710.0 ve ICD-10 M32 kodları üzerinden tanımlandı. Kontrol grubunda lupusla birlikte seçilmiş otoimmün, inflamatuvar ve dermatolojik tanı kodlarına sahip kişiler dışlandı.
Genetik profiller, Taiwan Biobank tarafından geliştirilen TPMI’ye özgü SNP dizileriyle üretildi. Varyant-hastalık ilişkileri, büyük biyobanka çalışmalarında örneklem akrabalığını ve dengesiz olgu-kontrol oranlarını dikkate almak için kullanılan SAIGE yöntemiyle analiz edildi.
Genom çapında anlamlılık ne anlama gelir?
Araştırmacılar aday varyantları seçerken standart genom çapında anlamlılık sınırını kullandı:
\[ P < 5 \times 10^{-8} \]
Bu eşik, yüz binlerce veya milyonlarca genetik varyantın aynı anda sınandığı GWAS çalışmalarında rastlantısal pozitif sonuçların sayısını azaltmak için kullanılan çok katı bir istatistiksel sınırdır.
Bir varyantın bu eşiği geçmesi onun hastalığa doğrudan neden olduğunu göstermez. Varyant, gerçek işlevsel varyantla güçlü bağlantı dengesizliği içinde bulunan bir genetik işaretleyici olabilir. Post-GWAS analizinin amacı, bu geniş sinyali daha dar ve biyolojik olarak anlamlı adaylara dönüştürmektir.
Manhattan ve Q-Q grafiklerinin anlattığı
Genom çapındaki ilişki sonuçlarını gösteren Manhattan grafiğinde kromozomlar boyunca çeşitli yüksek sinyaller görülmektedir. IRF5, STAT4, IRF8, HLA-DQA1, TNFAIP3, TNFSF4, ATG5, BLK, CDKN1B ve başka bağışıklık genlerine yakın bölgeler öne çıkmaktadır.
Grafikte her nokta bir genetik varyantı, dikey eksen ise P değerinin negatif logaritmasını temsil eder. Nokta ne kadar yukarıdaysa hastalıkla istatistiksel ilişki o kadar güçlüdür. Ancak yüksek bir tepe, tek başına hangi varyantın işlevsel olduğunu göstermez; aynı bağlantı bloğundaki çok sayıda varyant birlikte yükselmiş olabilir.
Q-Q grafiğinde anlamlı varyantların beklenen sıfır dağılımından ayrıldığı, genomik enflasyon faktörünün ise 1’e yakın olduğu bildirildi. Araştırmacılar bunu, yaygın ve sistematik istatistiksel şişmenin sınırlı olduğu şeklinde yorumladı.
Yirmi bir aday genin ortak özelliği neydi?
Genom çapında anlamlı varyantlardan toplam 21 aday gen eşlendi. Bu genler DAVID kullanılarak Gene Ontology biyolojik süreçleri ve Reactome yolakları açısından incelendi.
Düzeltilmiş P değeri 0,05’in altında bulunan zenginleşmiş başlıklar arasında özellikle:
- Tip I interferon üretiminin düzenlenmesi,
- Bağışıklık sisteminde sitokin sinyallemesi,
- İnterferonla ilişkili doğuştan gelen bağışıklık yolları,
- DDX58 ve IFIH1 sinyalinin negatif düzenleyicileri
yer aldı.
Bu kümelere katkıda bulunan genler arasında IRF5, IRF8, ISG15, STAT4, SH2B3, HLA-DQA1, TNFSF4, CDKN1B, ATG5 ve TNFAIP3 bulunuyordu.
Enrichr-KG ile oluşturulan işlevsel ağ da benzer bir yapı gösterdi. Ağ düğümlerinin önemli bir bölümü interferon ve sitokin düzenlemesi etrafında birleşti. Bu uyum, aday genlerin rastgele ve birbiriyle ilgisiz bir liste oluşturmadığını; lupus biyolojisinin bilinen interferon ağına yoğunlaştığını düşündürdü.
Doku ifade haritası neden önemliydi?
GTEx RNA ifade profilleri incelendiğinde birçok aday genin ve TNFSF10’un bağışıklık açısından zengin örneklerde görece yüksek ifade düzeyine sahip olduğu görüldü. Özellikle:
- EBV ile dönüştürülmüş lenfositler,
- Tam kan,
- Dalak ve bazı bağışıklıkla ilişkili dokular
öne çıktı.
Bu gözlem, varyantların yalnızca genomik konum bakımından değil, lupus açısından ilgili olabilecek hücresel ortamlarda ifade edilen genlerle bağlantılı olduğunu desteklemektedir. Ancak doku düzeyindeki ifade haritası, belirli bir bağışıklık hücresi alt grubunda düzenleyici etki bulunduğunu kanıtlamaz.
IRF5, IRF8 ve STAT4 neden önceliklendirildi?
İşlevsel zenginleştirme sonuçlarından sonra araştırmacılar, interferonla bağlantılı aday genlerin TNFSF10’un düzenleyici mimarisine bağlanıp bağlanmadığını araştırdı.
Transkripsiyon faktörü motif analizinde:
- IRF5 için TNFSF10’un 5′ intronik bölgesinde,
- IRF8 için TNFSF10’un yukarı akım düzenleyici bölgesinde iki ayrı konumda,
- STAT4 için TNFSF10’un yukarı akım bölgesinde
öngörülen motifler bulundu.
Metinde verilen koordinatlar şöyledir:
- IRF5: chr3:172.520.205-172.520.249
- IRF8: chr3:172.523.606-172.523.619
- IRF8: chr3:172.524.863-172.524.876
- STAT4: chr3:172.527.465-172.527.474
Motif şeklinin IRF5 alt panelinde ise ilk aralığın son koordinatı 172.520.219 olarak yazılmıştır. Dolayısıyla preprintin ana metni ile şekil etiketi arasında IRF5 motif koordinatı bakımından bir farklılık bulunmaktadır. Bu durum motifin biyolojik varlığını tek başına geçersiz kılmaz; ancak kesin koordinatın orijinal analiz dosyaları veya sonraki sürüm üzerinden doğrulanması gerekir.
Motif bulunması, ilgili transkripsiyon faktörünün gerçekten o bölgeye bağlandığını göstermez. Motif, DNA dizisinin IRF5, IRF8 veya STAT4 tarafından tanınabilecek bir örüntüye benzediğini gösterir.
Doğrudan bağlanmayı göstermek için aşağıdaki türden deneyler gerekir:
- ChIP-seq veya ChIP-qPCR,
- DNA bağlanma deneyleri,
- Raporlayıcı gen deneyleri,
- CRISPR tabanlı bölge silme veya değiştirme,
- IRF5, IRF8 veya STAT4 baskılama ve artırma deneyleri.
Üç ana GWAS varyantı
IRF5, IRF8 ve STAT4 ile bağlantılı üç öncü varyant ayrıntılı olarak incelendi.
| Gen veya bölge | Varyant | Referans / alternatif alel | Beta ve standart hata | P değeri | Olgu / kontrol alternatif alel frekansı | Genomik konum |
|---|---|---|---|---|---|---|
| IRF5 | rs3757387 | T / C | 0,282 (0,031) | 2,78 × 10⁻²⁰ | 0,193 / 0,150 | IRF5 yukarı akım |
| IRF8-LINC01082 | rs35703946 | G / A | -0,235 (0,042) | 9,42 × 10⁻⁹ | 0,078 / 0,096 | Genler arası bölge |
| STAT4 | rs7568275 | G / C | -0,272 (0,023) | 2,29 × 10⁻³² | 0,575 / 0,644 | Üçüncü intron |
Beta işaretlerinin farklı olması, alternatif alellerin GWAS özelliğiyle aynı yönde ilişki göstermediğini ortaya koymaktadır. Pozitif beta, analizde alternatif alelin lupus özelliğiyle artış yönünde; negatif beta ise azalış yönünde ilişkili olduğunu gösterir. Ancak bu işaretler doğrudan biyolojik mekanizma, gen aktivasyonu veya klinik koruyuculuk anlamına gelmez.
Üç varyant arasında yalnızca rs3757387 için GTEx eQTL kayıtları bulundu. Etkiler güneşe maruz kalan cilt, EBV ile dönüştürülmüş lenfositler ve tam kan gibi lupus açısından ilgili örneklerde gözlendi.
rs35703946, IRF8 ile LINC01082 arasında bulunan genler arası bir varyanttır. Araştırmacılar bu konumun IRF8’den uzakta görünmesine rağmen uzun menzilli kromatin etkileşimleri üzerinden düzenleyici potansiyel taşıyabileceğini düşünmektedir. Bu olasılık doğrudan deneyle gösterilmemiştir.
rs7568275’in STAT4’ün üçüncü intronunda bulunması, gen ifadesi yanında RNA işlenmesiyle ilişkili bir işlev olasılığını gündeme getirmektedir. Ancak çalışma rs7568275’in STAT4 kesilip-birleştirilmesini doğrudan değiştirdiğini göstermemiştir.
Alel frekansları popülasyonlar arasında neden değişiyor?
Aynı varyantın frekansı farklı coğrafi ve genetik kökene sahip popülasyonlarda değişebilir. Bu durum, varyantın bir toplulukta önemli olup başka bir toplulukta önemsiz olduğu anlamına gelmek zorunda değildir. Bir hastalıkla ilişkili işlevsel bölge aynı kalırken, o bölgeyi temsil eden yaygın işaretleyici varyant değişebilir.
Çalışmada rs3757387’nin alternatif alel frekansı:
- TPMI’de 0,151,
- Taiwan Biobank’ta 0,143,
- 1000 Genomes Doğu Asya grubunda 0,107,
- Avrupa grubunda 0,454,
- Amerika grubunda 0,324
olarak bildirildi.
rs35703946’nın Tayvan frekansı yaklaşık 0,095-0,096’ydı. Araştırmacılar bunun Doğu Asya referansından çok bazı Amerika popülasyonu tahminlerine yakın göründüğünü belirtti.
rs7568275 ise Tayvan’da yaklaşık 0,643-0,645 frekansına sahipti; bazı Afrika ve Amerika kaynaklarında daha yüksek frekanslar görülüyordu.
Bu tür farklılıklar dört nedenden kaynaklanabilir:
- Popülasyonların tarihsel ayrışması,
- Genetik sürüklenme,
- Kurucu etkileri ve dar boğazlar,
- Aynı bölgede farklı haplotiplerin yaygınlaşması.
Bağlantı dengesizliği nedir?
Yakın genomik bölgelerdeki varyantlar kuşaklar boyunca birlikte aktarılabilir. İki varyantın birlikte kalıtılma derecesi bağlantı dengesizliği, yani linkage disequilibrium ile ifade edilir.
Çalışmada kullanılan temel ölçü r² değeridir:
\[ 0 \leq r^2 \leq 1 \]
- r² değeri 0’a yaklaştığında iki varyant büyük ölçüde bağımsızdır.
- r² değeri 1’e yaklaştığında varyantlar popülasyonda güçlü biçimde birlikte taşınmaktadır.
- Çalışmada r² > 0,8 değerleri yüksek bağlantı dengesizliği olarak yorumlanmıştır.
Yüksek bağlantı dengesizliği, ilişki gösteren bir SNP’nin işlevsel varyant olduğu anlamına gelmez. Aynı blok içinde çok sayıda varyant birbirine benzer istatistiksel sinyal gösterebilir. Gerçek işlevsel varyantı belirlemek için ek işlevsel kanıt gerekir.
IRF5, IRF8 ve STAT4 bölgelerinin LocusZoom sonuçları
LocusZoom grafiklerinde öncü varyantların çevresindeki diğer SNP’ler, ilişki gücü ve öncü varyantla bağlantı derecesine göre gösterildi.
rs3757387 ve rs7568275’in yakınındaki çeşitli varyantlarla birleşik popülasyon analizinde r² > 0,8 düzeyinde bağlantı gösterdiği bildirildi. Bununla birlikte aynı bölgelerin popülasyona özgü LD haritaları farklı desenler oluşturdu.
Bu durum iki önemli sonuç doğurur:
- Bir popülasyonda öncü varyant olarak görülen SNP, başka bir popülasyonda gerçek işlevsel varyantı daha zayıf temsil edebilir.
- Farklı popülasyonların birlikte incelenmesi, geniş bağlantı bloklarını parçalayarak aday nedensel varyantların daraltılmasına yardımcı olabilir.
Güç analizi neyi gösterdi, neyi göstermedi?
GAS Power Calculator’ın yüksek derecede dengesiz olgu-kontrol tasarımlarındaki giriş sınırlamaları nedeniyle araştırmacılar gerçek TPMI örneklem büyüklüğünü birebir yeniden hesaplamadı. Bunun yerine 1.662 olguyu sabit tutarak farklı kontrol sayılarıyla duyarlılık analizi yaptı:
- 1.662 olgu / 1.662 kontrol,
- 1.662 olgu / 3.324 kontrol,
- 1.662 olgu / 16.620 kontrol,
- 1.662 olgu / 100.000 kontrol.
Hastalık prevalansı 0,0007, genom çapında anlamlılık sınırı 5 × 10⁻⁸ ve çarpımsal hastalık modeli kullanıldı. En yüksek kontrol sayısına sahip senaryoda üç varyant için gücün yaklaşık yüzde 80 düzeyine ulaşabildiği bildirildi.
Bu hesaplama, TPMI GWAS’ının gerçek ve kesin istatistiksel gücü olarak okunmamalıdır. Araştırmacılar da analizi bir örneklem büyüklüğü replikasyonu değil, kontrol sayısındaki artışın olası etkisini gösteren bir duyarlılık değerlendirmesi olarak tanımlamaktadır.
eQTL ile sQTL arasındaki fark
Çalışmanın en önemli noktalarından biri, genetik varyantların gen ifadesini ve RNA işlenmesini farklı biçimlerde etkileyebilmesidir.
Çalışmanın mantığını açıklamak için temel ilişkiler şöyle gösterilebilir:
\[ \mathrm{eQTL}: \ Genetik\ varyant \rightarrow Toplam\ gen\ ifadesindeki\ değişim \]
\[ \mathrm{sQTL}: \ Genetik\ varyant \rightarrow RNA\ kesilip\ birleştirilmesindeki\ değişim \]
Bu gösterimler makalede yayımlanmış matematiksel denklemler değildir; eQTL ve sQTL kavramlarının farkını açıklamak amacıyla verilmiştir.
eQTL, belirli bir genetik varyantın bir genin toplam RNA miktarıyla ilişkisini gösterir. Örneğin bir alelin taşıyıcılarında TNFSF10 RNA’sı daha fazla veya daha az olabilir.
sQTL ise toplam RNA miktarından çok RNA’nın hangi parçalarının korunacağı, hangi intronların çıkarılacağı ve hangi ekzonların birleştirileceğiyle ilişkilidir. Aynı gen, farklı kesilip-birleştirme biçimleriyle farklı RNA izoformları üretebilir.
Bu ayrım, bir fabrikanın toplam üretimiyle ürün çeşidi arasındaki farka benzetilebilir. eQTL fabrikanın kaç ürün ürettiğini, sQTL ise aynı ham maddeden hangi ürün modelinin üretildiğini etkileyebilir.
TNFSF10 bölgesinde neden sQTL sinyalleri öne çıktı?
GTEx QTL verileri incelendiğinde TNFSF10 bölgesindeki sQTL sinyallerinin eQTL sinyallerinden daha fazla olduğu görüldü.
EBV ile dönüştürülmüş lenfositlerde yalnızca bazı varyantlar TNFSF10 toplam ifadesi üzerinde mütevazı negatif eQTL etkileri gösterdi. Bunlar:
- rs10936723,
- rs3136599,
- rs3181139,
- rs2241063,
- rs2270418,
- rs3136586
olarak listelendi. Etki büyüklükleri yaklaşık 0,2 düzeyindeydi.
Buna karşılık daha fazla sayıda varyant TNFSF10 kesilip-birleştirilmesi üzerinde pozitif sQTL etkileri gösterdi. Sinyaller özellikle:
- EBV ile dönüştürülmüş lenfositlerde,
- Tam kanda,
- Akciğerde,
- Kalpte,
- Cilt dokularında
gözlendi.
EBV ile dönüştürülmüş lenfositler ve tam kan arasında ortak sQTL varyant bloğu chr3:172.474.449 ile chr3:172.522.815 arasında yer alıyordu.
Bu varyantların önemli bir bölümü TNFSF10’un aşağı akımında, terminal intronlarında veya 3′UTR çevresinde bulunuyordu. EBV ile dönüştürülmüş lenfositlerdeki ortalama sQTL etkisi, tam kandaki ortalama etkinin yaklaşık 2,35 katıydı.
Bu fark, aynı DNA varyantının farklı hücresel ortamlarda aynı büyüklükte işlev göstermeyebileceğini düşündürmektedir. Lenfositlerde bulunan transkripsiyon faktörleri, RNA bağlayıcı proteinler ve kromatin durumu, TNFSF10 RNA işlenmesini tam kandaki karma hücre topluluğundan farklı etkileyebilir.
3′UTR ve terminal intronlar neden önemlidir?
Genlerin 3′ uç bölgesi, protein kodlama tamamlandıktan sonra işlevsiz bir uzantı değildir. 3′UTR:
- RNA kararlılığını,
- RNA’nın hücre içinde taşınmasını,
- MikroRNA bağlanmasını,
- Protein üretim hızını,
- Alternatif poliadenilasyonu
etkileyebilir.
Terminal intronlar ve son ekzon çevresi de RNA kesilip-birleştirilmesi açısından önemlidir. Bu bölgedeki bir varyant:
- Bir ekzonun atlanmasını,
- Bir intronun RNA içinde korunmasını,
- Alternatif kesim noktasının kullanılmasını,
- Farklı uzunlukta transkriptlerin oluşmasını
etkileyebilir.
Araştırmada TNFSF10 çevresindeki sQTL varyantları iki ana kümeye ayrıldı. Bir küme genin 3′ ucuna yakın intronik, ekzonik ve 3′UTR varyantlarından; diğer küme ise TNFSF10’dan 4.000 baz çiftinden daha uzakta bulunan aşağı akım varyantlarından oluşuyordu.
İki alt küme arasında r² > 0,8 düzeyinde güçlü bağlantı bulunması, farklı konumlardaki varyantların aynı kalıtsal haplotip bloğunun parçaları olabileceğini göstermektedir. Dolayısıyla sQTL sinyalini oluşturan gerçek işlevsel varyant, listelenen SNP’lerden biri veya bu SNP’lerle bağlantılı başka bir varyant olabilir.
Önceki TNFSF10 varyantlarıyla bağlantı
Araştırmacılar önceki Mısır ve İran lupus çalışmalarında bildirilen rs1131568 ve rs1131580 varyantlarını da tartıştı. Bu varyantlar TNFSF10’un 3′UTR bölgesinde yer almakta ve lupus yatkınlığı veya klinik özelliklerle ilişkilendirilmiş bulunmaktadır.
GTEx analizinde her iki varyant da EBV ile dönüştürülmüş lenfositlerde ve tam kanda güçlü TNFSF10 sQTL etkileri gösterdi. Bu durum, daha önce hastalıkla ilişkilendirilen 3′UTR varyantlarının toplam gen ifadesinden çok transkript işlenmesi üzerinden işlev gösterebileceği hipotezini desteklemektedir.
Ancak mevcut çalışma bu varyantların lupus riskini RNA kesilip-birleştirilmesi üzerinden artırdığını deneysel olarak göstermemiştir.
Popülasyona özgü TNFSF10 bağlantı blokları
Tayvan Biobank verileriyle oluşturulan TNFSF10 LD haritasında varyantların çoğu birbirleriyle yüksek bağlantı gösterdi. Bazı varyantlar bu genel bloktan daha bağımsız görünüyordu:
- rs2241063,
- rs3136594,
- rs3821821,
- rs3774313,
- rs3774315,
- rs1823227,
- rs2270417.
Doğu Asya popülasyonunda Tayvan’a benzer bir bağlantı bloğu görüldü. Afrika, Amerika, Avrupa ve Güney Asya popülasyonlarında ise blok sınırları ve varyantlar arasındaki bağlantı dereceleri değişiyordu.
Araştırmacılar, Doğu Asya ve Güney Asya gruplarında aşağı akım varyantlarla transkript bölgesindeki varyantlar arasında bazı diğer popülasyonlardan daha güçlü bağlantı bulunduğunu belirtti.
Bu farklılıklar, bir varyantın klinik test değerinin veya hastalıkla ilişkisinin tüm popülasyonlara aynı biçimde genellenemeyeceğini gösterir. Bununla birlikte çalışma, bu SNP’lerin herhangi birini klinik genetik belirteç olarak doğrulamamıştır.
Düzenleyici genom anotasyonları ne gösterdi?
TNFSF10 çevresindeki varyantlar UCSC Genome Browser üzerinden çeşitli düzenleyici veri katmanlarıyla karşılaştırıldı:
- ENCODE aday cis-düzenleyici elementleri,
- ORegAnno düzenleyici kayıtları,
- ReMap DNA bağlanma bölgeleri,
- H3K27ac işaretleri,
- Micro-C üç boyutlu kromatin etkileşimleri.
H3K27ac, aktif artırıcı ve promotör bölgeleriyle sık ilişkilendirilen bir histon işaretidir. Bir varyantın H3K27ac bölgesiyle örtüşmesi, o konumun düzenleyici olabileceğini düşündürür; ancak varyantın işlevini tek başına kanıtlamaz.
ReMap, birçok ChIP-seq deneyinden türetilen transkripsiyon faktörü ve düzenleyici protein bağlanma bölgelerini bir araya getirir.
ENCODE cCRE kayıtları, kromatin erişilebilirliği, histon işaretleri ve başka verileri birleştirerek muhtemel promotör veya artırıcı bölgeleri sınıflandırır.
TNFSF10’un aşağı akımındaki çok sayıda SNP’nin bu düzenleyici katmanlardan biri veya birkaçıyla örtüştüğü görüldü. Üç ana bölgede H3K27ac ve ReMap sinyallerinin yoğunlaşması, potansiyel artırıcı bölgelerin varlığını düşündürdü.
rs62282578 neden dikkat çekti?
rs62282578, TNFSF10’un 3′ ucunun yaklaşık 1.924 baz çifti aşağısında bulunan bir varyant olarak öne çıkarıldı. Varyant, ENCODE4 tarafından artırıcı özelliği taşıyan aday cis-düzenleyici element olarak anotasyonlanan bir bölgeyle örtüşüyordu.
Metindeki koordinat ifadesi “chr3:172.505.505 to 172.503.581” biçiminde verilmiştir ve başlangıç-son koordinatları ters sırada görünmektedir. Bu nedenle bölgenin kesin koordinat dizilimi preprintin sonraki sürümünde veya kaynak anotasyon dosyasında doğrulanmalıdır. Araştırmanın temel iddiası, rs62282578’in TNFSF10 3′ ucundan 1.924 baz çifti aşağıda bir artırıcı anotasyonuyla örtüştüğüdür.
Bu varyantın seçilmesinde üç kanıt katmanı birlikte rol oynamaktadır:
- TNFSF10’un aşağı akımında bulunması,
- Düzenleyici artırıcı anotasyonuyla örtüşmesi,
- Terminal intronik bölgelerle üç boyutlu kromatin temas sinyali göstermesi.
Bununla birlikte çalışma rs62282578’i nedensel varyant olarak tanımlamamaktadır. Varyant yalnızca deneysel inceleme için öncelikli adaylardan biridir.
Micro-C kromatin etkileşimi ne anlama gelir?
DNA, hücre çekirdeğinde düz bir çizgi hâlinde durmaz. Kromozomlar üç boyutlu olarak katlanır. Doğrusal DNA dizisinde birbirinden binlerce baz çifti uzakta olan iki bölge, çekirdekte fiziksel olarak birbirine yaklaşabilir.
Micro-C yöntemi, kromatin içindeki bu temasları yüksek çözünürlükte ölçmeye çalışır. Araştırmada TNFSF10’un 3′UTR bölgesine yakın aşağı akım SNP’lerle terminal intronlar arasında temas sinyalleri görüldü. Bazı uzak aşağı akım bölgelerin etkileşim skorları 50’nin üzerindeydi.
Bu gözlem aşağıdaki modeli destekleyebilir:
\[ Uzak\ düzenleyici\ bölge \rightarrow Üç\ boyutlu\ kromatin\ teması \rightarrow TNFSF10\ RNA\ işlenmesinde\ değişim \]
Bu ilişki, çalışmanın mekanizmasını açıklamak için verilmiş kavramsal bir gösterimdir; araştırmada doğrudan kanıtlanmış nedensel bir zincir değildir.
Önemli bir sınırlılık, kullanılan Micro-C verisinin H1 insan embriyonik kök hücrelerinden gelmesidir. Bu hücreler lupus hastalarının lenfositleri, monositleri veya başka bağışıklık hücreleri değildir. Dolayısıyla kromatin temas haritası bölgenin yapısal potansiyelini gösterebilir, fakat aynı temasların lupus bağışıklık hücrelerinde gerçekleştiği henüz gösterilmemiştir.
Şekiller birlikte nasıl okunmalı?
Çalışmanın görsel akışı tek bir kanıt yerine birbirini tamamlayan katmanlar sunmaktadır:
- Manhattan grafiği: Lupusla genom çapında ilişkili bölgeleri gösterir.
- Zenginleştirme ağı: Aday genlerin interferon ve sitokin yollarında kümelendiğini gösterir.
- Motif haritası: IRF5, IRF8 ve STAT4 için TNFSF10 çevresinde olası DNA bağlanma dizilerini gösterir.
- LocusZoom grafikleri: Öncü varyantlarla yakındaki SNP’lerin ilişki ve LD yapısını gösterir.
- QTL ve LD haritası: TNFSF10 çevresindeki sinyallerin özellikle kesilip-birleştirme ve bağlantı bloklarıyla ilişkili olduğunu gösterir.
- Popülasyon LD grafikleri: Aynı genomik bölgenin farklı köken gruplarında farklı haplotip yapıları oluşturduğunu gösterir.
- UCSC ve Micro-C haritası: Varyantların düzenleyici anotasyonlarla ve üç boyutlu kromatin temaslarıyla örtüşmesini gösterir.
- Son model şeması: Yukarı akım interferon genleri, TNFSF10 düzenlenmesi, aşağı akım sQTL varyantları ve popülasyona özgü etkileri tek kavramsal modelde birleştirir.
Bu şekillerden hiçbiri tek başına doğrudan mekanizma kanıtı değildir. Çalışmanın gücü, farklı veri katmanlarında aynı bölgenin tekrar tekrar öncelik kazanmasıdır.
Çalışmanın önerdiği bütünleşik model
Araştırmanın sonuç modeli üç ana düzeyden oluşmaktadır.
Birinci düzey: İnterferon risk genleri
IRF5, IRF8 ve STAT4 çevresindeki lupusla ilişkili varyantlar, bu genlerin ifadesini veya RNA işlenmesini etkileyebilir. Bu olasılık rs3757387 için eQTL verisiyle kısmen desteklenirken diğer varyantlar için daha çok genomik konum ve motif çıkarımına dayanmaktadır.
İkinci düzey: TNFSF10’un transkripsiyonel düzenlenmesi
IRF5, IRF8 ve STAT4 proteinlerinin tanıyabileceği öngörülen DNA motifleri TNFSF10’un yukarı akım veya 5′ intronik bölgelerinde bulunmaktadır. Bu, interferon sinyaliyle TNFSF10 arasında olası bir düzenleme hattı sunar.
Üçüncü düzey: TNFSF10 RNA izoformları
TNFSF10’un terminal intronları, 3′UTR bölgesi ve aşağı akımındaki SNP’ler özellikle bağışıklıkla ilgili dokularda sQTL sinyalleri göstermektedir. Düzenleyici anotasyonlar ve kromatin temasları, bazı uzak varyantların RNA işlenmesini etkileyebilecek bölgelerle fiziksel veya işlevsel bağlantı kurabileceğini düşündürmektedir.
Bu model şu biçimde özetlenebilir:
\[ Lupus\ ile\ ilişkili\ interferon\ varyantları \rightarrow IRF5/IRF8/STAT4\ düzenlenmesi \rightarrow TNFSF10\ düzenleyici\ mimarisi \]
\[ TNFSF10\ aşağı\ akım\ varyantları \rightarrow Alternatif\ RNA\ kesilip\ birleştirilmesi \rightarrow Farklı\ TNFSF10\ transkriptleri \]
Bu iki gösterim, çalışmanın bütünleştirici hipotezini açıklamaktadır. Çalışmada zincirin tüm adımları deneysel olarak doğrulanmamıştır.
Çalışmanın güçlü yönleri
- GWAS sinyalleri tek bir anotasyon kaynağıyla yorumlanmamış, birçok bağımsız veri katmanı birleştirilmiştir.
- 5.184 olgu ve 311.848 kontrol içeren büyük bir Tayvan GWAS veri kaynağı kullanılmıştır.
- İnterferonla ilişkili genler yalnızca biyolojik ön kabulle değil, işlevsel zenginleştirme analizleriyle önceliklendirilmiştir.
- Gen ifadesiyle RNA kesilip-birleştirilmesi birbirinden ayrılmıştır.
- GTEx verileri birçok doku üzerinden karşılaştırılmıştır.
- Tayvan ve Doğu Asya bağlantı yapısı diğer popülasyonlarla karşılaştırılmıştır.
- ENCODE, ORegAnno, ReMap, H3K27ac ve Micro-C gibi farklı düzenleyici veri kaynakları birlikte değerlendirilmiştir.
- Yazarlar motif, QTL ve kromatin sonuçlarını nedensel kanıt olarak sunmamış, deneysel doğrulama gereğini açıkça belirtmiştir.
Çalışmanın sınırlılıkları
GWAS özet verileri: Analiz esas olarak özet istatistiklere dayanmaktadır. Aynı bireylerde genotip, RNA izoformu, protein düzeyi ve klinik aktivite birlikte ölçülmemiştir.
Nedensel varyant belirlenmedi: Güçlü LD bloklarında birçok SNP benzer sinyal gösterebilir. Çalışma hangi varyantın gerçek işlevsel değişikliği oluşturduğunu kesinleştirememektedir.
Motifler yalnızca tahmindir: IRF5, IRF8 ve STAT4 motifleri doğrudan protein-DNA bağlanması kanıtı değildir.
GTEx sağlıklı doku ağırlıklıdır: GTEx QTL verileri lupus hastalığı sırasında etkinleşmiş bağışıklık hücrelerini tam olarak temsil etmeyebilir.
Hücre tipi çözünürlüğü sınırlıdır: Tam kan birçok hücre türünün karışımıdır. Gözlenen sQTL sinyalinin B hücresi, T hücresi, monosit veya başka bir alt gruptan geldiği belirlenememektedir.
EBV ile dönüştürülmüş hücreler doğal lenfosit değildir: EBV dönüşümü hücresel gen ifadesini ve RNA işleme programlarını değiştirebilir.
Micro-C hücre bağlamı farklıdır: Kromatin temas verisi H1 embriyonik kök hücrelerinden alınmıştır; lupus bağışıklık hücrelerinden değildir.
Bağımsız Tayvan replikasyonu yoktur: Popülasyona özgü varyant ve LD sonuçları bağımsız bir Tayvan lupus kohortunda yeniden sınanmamıştır.
İzoformlar doğrudan ölçülmedi: Çalışma sQTL sinyallerini raporlamakta, fakat hangi TNFSF10 izoformunun arttığını veya azaldığını işlevsel düzeyde göstermemektedir.
Protein ve hücresel sonuç ölçülmedi: TRAIL protein düzeyi, reseptör sinyali, T hücresi aktivasyonu veya lupusla ilgili hücresel fenotipler varyantlara göre deneysel olarak karşılaştırılmamıştır.
Klinik ilişki kurulmadı: Varyantlar lupus aktivitesi, böbrek tutulumu, tedavi yanıtı veya prognozla doğrudan test edilmemiştir.
Çalışma ne söylüyor, ne söylemiyor?
| Çalışmanın desteklediği ifade | Çalışmanın desteklemediği ifade |
|---|---|
| Tayvan lupus GWAS aday genleri interferon ve sitokin yollarında zenginleşmektedir. | Tek bir interferon geni sistemik lupusa tek başına neden olmaktadır. |
| IRF5, IRF8 ve STAT4 için TNFSF10 çevresinde öngörülen motifler bulunmaktadır. | IRF5, IRF8 ve STAT4’ün TNFSF10’a doğrudan bağlandığı deneysel olarak kanıtlanmıştır. |
| TNFSF10 çevresinde sQTL sinyalleri eQTL sinyallerinden daha belirgindir. | Belirli bir TNFSF10 izoformunun lupusa neden olduğu gösterilmiştir. |
| Bazı aşağı akım varyantlar düzenleyici anotasyonlarla örtüşmektedir. | Bu varyantlar kesin artırıcı veya kesin nedensel varyantlardır. |
| LD yapısı popülasyonlar arasında farklılık göstermektedir. | Bir varyantın etkisi yalnızca belirli bir etnik gruba özgüdür. |
| rs62282578 işlevsel doğrulama için öncelikli bir adaydır. | rs62282578 klinik tanı veya tedavi seçiminde kullanılabilir. |
| Micro-C verisi olası uzun menzilli kromatin temaslarını desteklemektedir. | Aynı kromatin temaslarının lupus bağışıklık hücrelerinde gerçekleştiği kanıtlanmıştır. |
| Çalışma gelecekteki deneyler için aday mekanizmaları daraltmaktadır. | Yeni bir lupus tedavisi, ilaç hedefi veya genetik test doğrulanmıştır. |
Geçmiş, bugün ve gelecek açısından önemi
Geçmiş açısından: Geleneksel GWAS yorumları çoğu zaman en yakın geni hastalık geni olarak kabul etmeye eğilimliydi. Bu çalışma, varyantların fiziksel olarak yakın oldukları gen dışında uzak düzenleyici bölgeler, RNA işlenmesi ve üç boyutlu kromatin temasları üzerinden etkili olabileceğini vurgulamaktadır.
Bugün açısından: Lupus genetiğinde yalnızca gen ifadesine odaklanmanın yetersiz olabileceğini göstermektedir. TNFSF10 bölgesindeki baskın sQTL sinyalleri, alternatif RNA izoformlarının lupus araştırmalarında daha fazla incelenmesi gerektiğini düşündürmektedir.
Gelecek açısından: Sonuçlar aşağıdaki deneylerin tasarlanmasına yardımcı olabilir:
- TNFSF10 izoformlarının uzun okuma RNA dizilemesiyle belirlenmesi,
- Lupus hastalarının saflaştırılmış B hücresi, T hücresi ve monositlerinde sQTL analizi,
- rs62282578 ve diğer aday varyantların CRISPR ile değiştirilmesi,
- IRF5, IRF8 ve STAT4 bağlanmasının ChIP yöntemleriyle test edilmesi,
- Alel özgül artırıcı raporlayıcı deneyleri,
- Lupus bağışıklık hücrelerinde kromatin temas haritalaması,
- Farklı TNFSF10 izoformlarının TRAIL üretimi ve bağışıklık hücresi işlevine etkisinin ölçülmesi,
- Sonuçların bağımsız Tayvan ve diğer Doğu Asya lupus kohortlarında doğrulanması.
Gündelik yaşam ve klinik uygulama açısından anlamı
Bu araştırma doğrudan hastalara uygulanabilecek bir test veya tedavi sunmamaktadır. Sistemik lupus tanısı mevcut klinik değerlendirmeler, otoantikorlar, organ tutulumları ve uzman hekim incelemesi üzerinden yapılır. Çalışmada öne çıkarılan SNP’ler mevcut durumda tanı koymak, hastalık şiddetini tahmin etmek veya ilaç seçmek için doğrulanmış değildir.
Çalışmanın gündelik yaşam açısından dolaylı önemi, aynı hastalık tanısına sahip insanların genetik ve moleküler mekanizmalarının farklı olabileceğini göstermesidir. Gelecekte interferon etkinliği, TNFSF10 izoformları ve popülasyona özgü varyantlar birlikte doğrulanabilirse lupus hastalarının moleküler alt gruplara ayrılmasına katkı sağlayabilir. Ancak mevcut çalışma bu kişiselleştirilmiş tıp uygulamasının klinik başarı kanıtını sunmamaktadır.
Çalışmanın Yöntemi ve Bulguları
Teknik araştırma tasarımı
| Çalışma türü | Bütünleştirici, hesaplamalı post-GWAS ve işlevsel genomik önceliklendirme çalışması |
|---|---|
| Birincil GWAS kaynağı | Taiwan Precision Medicine Initiative SLE PheWeb özet istatistikleri |
| SLE olgu sayısı | 5.184 |
| Kontrol sayısı | 311.848 |
| Toplam TPMI katılımcısı | 565.390 |
| GWAS yöntemi | SAIGE |
| Anlamlılık eşiği | P < 5 × 10⁻⁸ |
| Belirlenen aday gen sayısı | 21 |
| Merkezî hedef gen | TNFSF10 / TRAIL |
| Önceliklendirilen interferon genleri | IRF5, IRF8 ve STAT4 |
Analiz iş akışı
- TPMI lupus GWAS özet istatistiklerinden genom çapında anlamlı SNP’ler seçildi.
- Varyantların yakınındaki veya eşlenen aday genler belirlendi.
- DAVID ile Gene Ontology ve Reactome yolak zenginleştirmesi yapıldı.
- Benzer işlevsel terimler Kappa istatistiğine dayalı sınıflandırmayla gruplandırıldı.
- Enrichr-KG ile gen-yolak işlevsel ağı oluşturuldu.
- TNFSF10’un yukarı akım ve 5′ intronik bölgelerinde transkripsiyon faktörü motifleri tarandı.
- IRF5, IRF8 ve STAT4 öncü varyantlarının alel frekansları popülasyonlar arasında karşılaştırıldı.
- LocusZoom ve PLINK kullanılarak bağlantı dengesizliği yapıları değerlendirildi.
- GTEx üzerinden TNFSF10 çevresindeki eQTL ve sQTL sinyalleri incelendi.
- UCSC Genome Browser üzerinden ENCODE cCRE, ORegAnno, ReMap ve H3K27ac anotasyonları eklendi.
- Micro-C verileriyle uzun menzilli kromatin temasları değerlendirildi.
- Bütün kanıt katmanları TNFSF10 için aday düzenleyici ve splicing varyantlarını önceliklendirmek üzere birleştirildi.
Kullanılan veri kaynakları ve araçlar
| Kaynak veya araç | Çalışmadaki işlevi |
|---|---|
| TPMI PheWeb | Tayvan lupus GWAS özet istatistikleri |
| SAIGE | Dengesiz olgu-kontrol ve örneklem akrabalığını dikkate alan GWAS analizi |
| DAVID | GO ve Reactome işlevsel zenginleştirme |
| Enrichr-KG | Gen-yolak işlevsel ağ tahmini |
| Transcription Factor Target Gene Database | TNFSF10 çevresindeki motif tahminleri |
| 1000 Genomes ve gnomAD | Popülasyonlar arası alel frekansları |
| Taiwan Biobank ve TPMI SNPView | Tayvan alel frekansı ve LD yapısı |
| LocusZoom | Bölgesel GWAS ve LD görselleştirmesi |
| PLINK 1.9 | Tayvan bağlantı dengesizliği hesaplaması |
| LDlink | Diğer popülasyonların LD yapıları |
| GTEx | Dokuya özgü eQTL, sQTL ve RNA ifade profilleri |
| UCSC Genome Browser | Düzenleyici genom katmanlarının birlikte görüntülenmesi |
| ENCODE cCRE | Aday promotör ve artırıcı bölgeler |
| ORegAnno ve ReMap | Düzenleyici bölge ve DNA bağlanma anotasyonları |
| H3K27ac | Aktif düzenleyici kromatin bölgelerinin işaretlenmesi |
| Micro-C | Üç boyutlu kromatin temaslarının değerlendirilmesi |
Başlıca işlevsel zenginleştirme sonuçları
| Kanıt katmanı | Başlıca sonuç |
|---|---|
| Gene Ontology | Tip I interferon üretiminin düzenlenmesi anlamlı biçimde zenginleşti. |
| Reactome | Bağışıklık sisteminde sitokin sinyallemesi öne çıktı. |
| DDX58/IFIH1 yolu | TNFAIP3, ISG15 ve ATG5 gibi negatif düzenleyiciler bulundu. |
| Enrichr-KG | IRF5, IRF8, STAT4 ve diğer lupus adayları interferon merkezli bir ağda birleşti. |
| GTEx ifade haritası | Aday genlerin ve TNFSF10’un bir bölümü tam kan ve EBV-lenfosit örneklerinde görece yüksek ifade gösterdi. |
IRF5, IRF8 ve STAT4 sonuçlarının teknik özeti
| Gen | Öncü SNP | Temel genomik yorum | İşlevsel veri | Sınırlılık |
|---|---|---|---|---|
| IRF5 | rs3757387 | Genin yukarı akımında; pozitif GWAS beta değeri | GTEx eQTL kayıtları cilt, EBV-lenfosit ve tam kanda bulundu | TNFSF10 üzerindeki doğrudan etkisi gösterilmedi |
| IRF8 | rs35703946 | IRF8 ile LINC01082 arasında; negatif GWAS beta değeri | Uzun menzilli düzenleme olasılığı tartışıldı | Öncü SNP için doğrudan eQTL veya bağlanma doğrulaması yok |
| STAT4 | rs7568275 | Üçüncü intronda; negatif GWAS beta değeri | İntronik konum RNA işlenmesi olasılığını düşündürüyor | STAT4 splicing etkisi deneysel olarak gösterilmedi |
TNFSF10 QTL bulgularının teknik özeti
| Özellik | Bulgular |
|---|---|
| eQTL yoğunluğu | Görece az sayıda ve mütevazı etkili |
| sQTL yoğunluğu | TNFSF10 boyunca, özellikle aşağı akım ve 3′ uç çevresinde daha yaygın |
| Öne çıkan dokular | EBV ile dönüştürülmüş lenfositler ve tam kan |
| Diğer ilgili dokular | Kalp, akciğer ve cilt |
| Ortak sQTL bloğu | chr3:172.474.449-172.522.815 |
| EBV-lenfosit / tam kan ortalama etki oranı | Yaklaşık 2,35 kat |
| Varyant konumları | Terminal intron, ekzon, 3′UTR ve uzak aşağı akım bölgeler |
| Blok içi bağlantı | Bazı varyant gruplarında r² > 0,8 |
Düzenleyici ve kromatin bulgularının özeti
| Bulgular | Bilimsel anlamı | Kanıt sınırı |
|---|---|---|
| Birçok SNP ENCODE cCRE ile örtüştü. | Aday cis-düzenleyici bölgeler içinde bulunabilirler. | İşlevsel artırıcı etkinlik deneysel olarak sınanmadı. |
| H3K27ac ve ReMap üç yoğun bölgeyi işaretledi. | Aktif artırıcı adayları bulunabilir. | Hücre ve hastalık bağlamı değişebilir. |
| rs62282578 artırıcı cCRE ile örtüştü. | Öncelikli düzenleyici varyant adayıdır. | Nedensel olduğu gösterilmedi. |
| Aşağı akım bölgeler terminal intronlarla Micro-C teması gösterdi. | Uzak bölgeler TNFSF10 RNA işlenmesine fiziksel olarak yaklaşabilir. | Micro-C verisi H1 embriyonik kök hücresine aittir. |
| Bazı temas skorları 50’yi aştı. | Görece belirgin kromatin temas bölgelerini işaretler. | Temasın işlevsel sonucu ve lupus hücrelerinde varlığı doğrulanmadı. |
Araştırmanın nihai teknik yorumu
Çalışmada birbirini tamamlayan üç ana kanıt katmanı oluşturuldu:
- GWAS ve yolak katmanı: Tayvan lupus GWAS adayları interferon ve sitokin sinyallemesinde kümelendi.
- Transkripsiyonel düzenleme katmanı: IRF5, IRF8 ve STAT4 için TNFSF10 çevresinde öngörülen motifler bulundu.
- RNA işleme ve kromatin katmanı: TNFSF10’un aşağı akımındaki varyantlar sQTL sinyalleri, düzenleyici anotasyonlar, popülasyona özgü LD ve olası uzun menzilli kromatin temaslarıyla örtüştü.
Bu katmanların birleşimi, TNFSF10 bölgesindeki bazı varyantların lupus biyolojisi açısından daha ayrıntılı deneylere alınmasını desteklemektedir. Bununla birlikte çalışma herhangi bir varyantı nedensel, tanısal, prognostik veya tedavi belirleyici olarak doğrulamamıştır.
Kaynak ve Yöntem Notu
Bu içerik, Kuo-Sheng Hung, Shan-Wen Lui, Jia-Huei Lyu, Hsiang-Cheng Chen, Ya-Ting Yang, Yu-Tien Chang, Feng-Cheng Liu, Tzu-Sheng Hsu ve I-Tsu Chyuan tarafından hazırlanan “Integrative post-GWAS analysis prioritizes interferon-linked regulatory and splicing-associated variants at the TNFSF10 locus in systemic lupus erythematosus” başlıklı çalışmaya dayanmaktadır.
Çalışma SSRN üzerinde bulunan bir preprint araştırma makalesidir. Metinde açıkça “This preprint research paper has not been peer reviewed” ifadesi bulunmaktadır. Bu nedenle sonuçlar hakem değerlendirmesinden geçmemiştir. Metinde dergi kabulü veya makaleye ait bir DOI bildirilmemektedir.
Araştırma bir klinik çalışma, ilaç deneyi, hücre kültürü deneyi veya hayvan deneyi değildir. Tayvan Precision Medicine Initiative lupus GWAS özet istatistiklerinin kamuya açık ve kurumsal işlevsel genomik kaynaklarla birleştirildiği hesaplamalı post-GWAS analizidir.
Çalışma yeni hasta örneklerinde TNFSF10 RNA izoformu, TRAIL proteini, transkripsiyon faktörü bağlanması veya bağışıklık hücresi işlevi ölçmemiştir. IRF5, IRF8 ve STAT4 motifleri hesaplamalı tahmindir. GTEx eQTL ve sQTL sonuçları doku düzeyindeki ilişkilerdir. Micro-C verisi lupus hastalarının bağışıklık hücrelerinden değil, H1 insan embriyonik kök hücrelerinden elde edilmiştir.
Sonuçlar varyantların işlevsel ve nedensel olduğunu kanıtlamaz. Çalışma yalnızca gelecekteki ChIP, raporlayıcı gen, CRISPR, alel özgül ifade, kromatin profilleme ve transkript izoform deneyleri için aday bölgeleri önceliklendirmektedir.
Çalışmada öne çıkarılan rs3757387, rs35703946, rs7568275, rs62282578 veya diğer TNFSF10 varyantları mevcut durumda klinik lupus tanısı, hastalık aktivitesi, prognoz veya tedavi seçimi için doğrulanmış biyobelirteçler değildir. Araştırma yeni bir ilaç, tedavi garantisi veya klinik karar aracı sunmamaktadır.
TPMI çalışmasının ilgili etik kurullar tarafından onaylandığı ve katılımcıların genomik analiz ile elektronik sağlık kayıtlarının ilişkilendirilmesine onam verdiği belirtilmiştir. Mevcut analiz GWAS özet istatistiklerini kullanmıştır. Bireysel TPMI ve Taiwan Biobank verileri kurumsal veri yönetişimi ve mahremiyet kısıtlamaları nedeniyle kamuya açık değildir.
Yazarlar çıkar çatışması bildirmemiştir. Çalışma Tayvan’daki Ministry of Science and Technology ve National Science and Technology Council tarafından belirtilen projelerle desteklenmiştir; fon sağlayıcıların tasarım, analiz, yorum veya yayımlama kararında rol almadığı beyan edilmiştir.
Yazarların beyanına göre ChatGPT yalnızca dil düzenleme ve makale biçimlendirmesine yardımcı olmak amacıyla kullanılmış; içerik daha sonra yazarlar tarafından incelenmiş ve düzenlenmiştir. Yazarlar çalışmanın bütün bilimsel içeriğinin sorumluluğunu üstlendiklerini belirtmiştir.
Bu makale yalnızca yüklenen çalışmada sunulan metin, yöntem, tablolar, şekiller ve yazar yorumları temel alınarak hazırlanmıştır. PDF’de bulunmayan nedensel, klinik veya tedaviye yönelik iddialar eklenmemiştir. eQTL, sQTL ve kromatin düzenlemesini açıklamak için kullanılan ok gösterimleri, çalışmanın kavramsal mantığını sadeleştirmek amacıyla verilmiş; makalede yayımlanmış matematiksel denklemler olmadıkları açıkça belirtilmiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir