

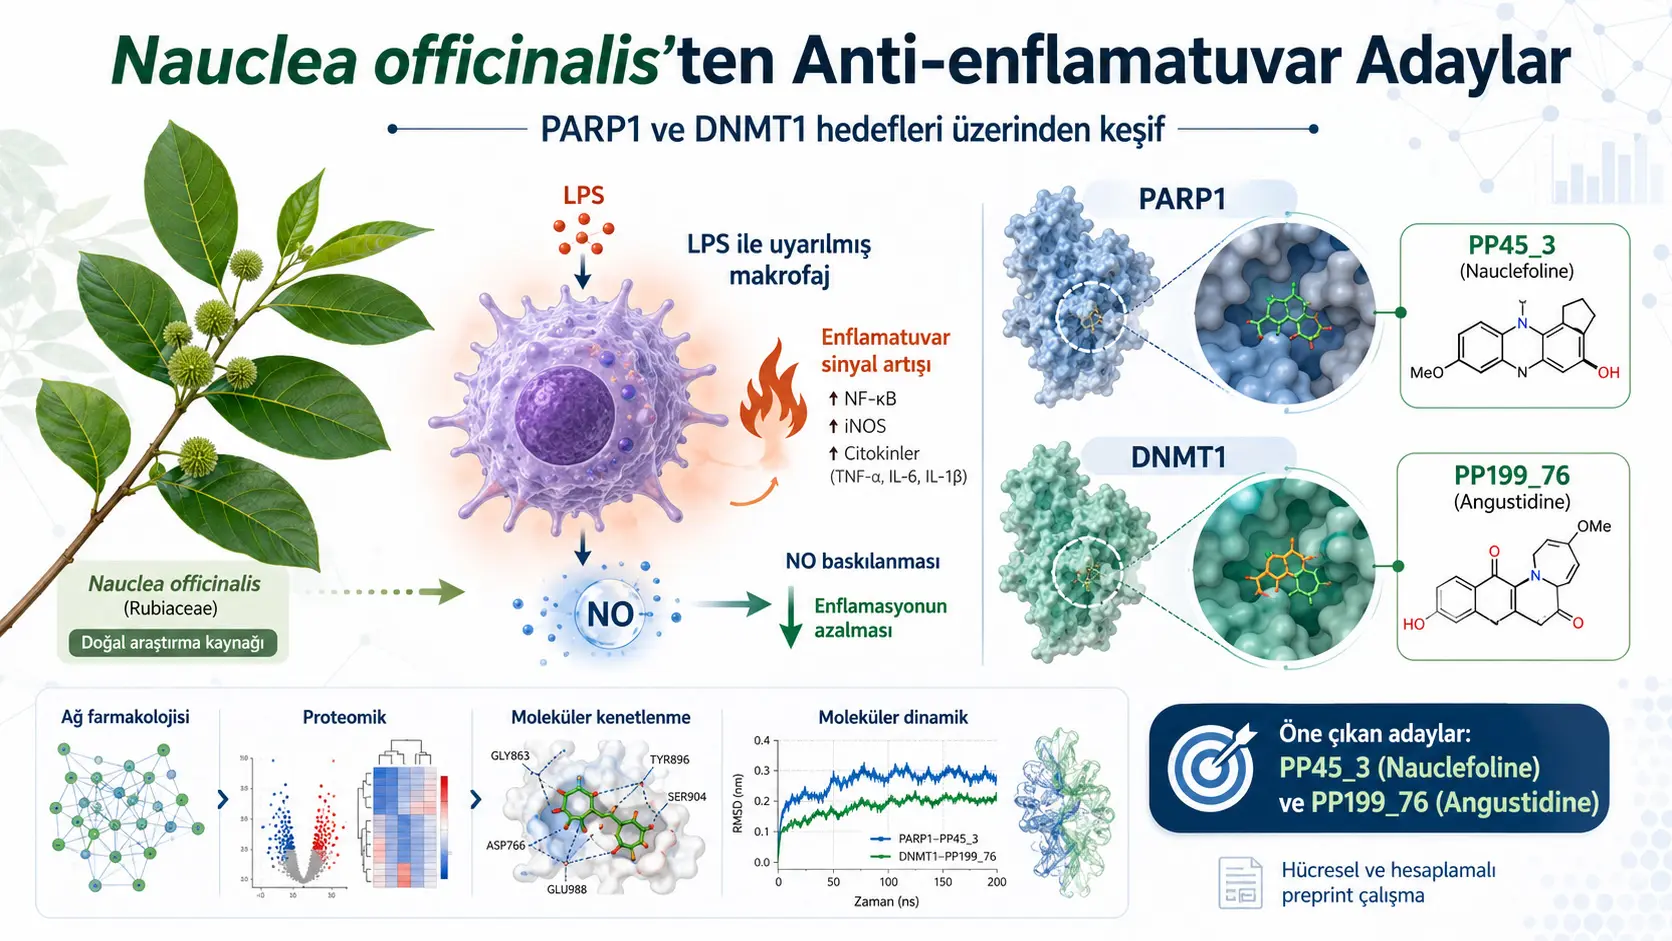
Utafiti huu unachunguza ni viambajengo gani vya kemikali vya mmea Nauclea officinalis, unaotumiwa katika tiba ya jadi ya Kichina, vinavyoweza kuwajibika kwa athari zake za kupambana na uchochezi na viambajengo hivyo vinaweza kuhusishwa na protini zipi ndani ya seli. Badala ya kutegemea mbinu moja ya uchanganuzi, watafiti waliunda mfumo wa uchunguzi wa hatua nyingi unaounganisha farmakolojia ya mtandao, proteomiki ya kiasi isiyotumia lebo, uchanganuzi wa mwingiliano wa protini–protini, uunganishaji wa molekuli, uigaji wa mienendo ya molekuli, hesabu za nishati huru ya kufungamana za MM/PBSA na majaribio ya utamaduni wa seli.
Kati ya viambajengo 279 vya N. officinalis vilivyokusanywa kutoka katika fasihi, malengo 980 yanayowezekana ya protini yalitabiriwa kwa viambajengo 210 vilivyokidhi vigezo vya kufanana na dawa. Katika kulinganisha na malengo 3.084 ya magonjwa yaliyohusishwa na uchochezi, malengo 331 ya pamoja yalipatikana. Uchambuzi wa mtandao ulionyesha protini kama PARP1, DNMT1, MAPK1, TNF, EGFR, STAT3 na TLR4 kuwa nodi zenye miunganisho mingi. Uchambuzi wa proteomiki uliofanywa katika makrofaji za panya RAW264.7 zilizochochewa kwa LPS ulionyesha kuwa dondoo la N. officinalis lilibadilisha viwango vya protini nyingi; kutokana na makutano ya matokeo ya farmakolojia ya mtandao na proteomiki, PARP1 na DNMT1 zilichaguliwa kama malengo mawili makuu yanayowezekana.
Katika uchunguzi pepe wa kimuundo, Nauclefoline yenye msimbo PP45_3 iliibuka kwa PARP1, huku Angustidine yenye msimbo PP199_76 ikiibuka kwa DNMT1. Utafiti uliripoti nishati huru ya kufungamana ya −23,65 ± 4,99 kcal/mol kwa kompleksi ya PP45_3–PARP1 na −24,23 ± 4,83 kcal/mol kwa kompleksi ya PP199_76–DNMT1. Katika majaribio yaliyotegemea kuzuia uzalishaji wa oksidi nitriki katika makrofaji zilizochochewa kwa LPS, IC50 ilihesabiwa kuwa 14,3 µM kwa PP45_3 na 9,3 µM kwa PP199_76.
Matokeo haya hayathibitishi molekuli hizo mbili kuwa dawa za kupambana na uchochezi. Utafiti ulitumia tu mstari mmoja wa seli za makrofaji za panya, modeli moja ya uchochezi na usomaji wa kibiolojia uliotegemea kwa kiasi kikubwa uzalishaji wa oksidi nitriki. Mwingiliano wa moja kwa moja wa kibayokemia na PARP1 na DNMT1, uzuiaji wa kimeng’enya, uthibitishaji wa kijeni, majaribio ya wanyama, usalama kwa binadamu au ufanisi wa kliniki haukuonyeshwa. Aidha, utafiti ni preprint ambayo haijapitiwa na wahakiki wenza.
Tatizo kuu la utafiti ni lipi?
Uchochezi ni mwitikio wa ulinzi unaotolewa na tishu dhidi ya maambukizi, sumu, jeraha au vichocheo vingine vyenye madhara. Unapokuwa wa muda mfupi na kudhibitiwa unaweza kuwa wa kinga; lakini unapokuwa mwingi kupita kiasi, usiotosha au wa muda mrefu unaweza kuwa sehemu ya uharibifu wa tishu na maendeleo ya ugonjwa. Hoja ya kuanzia ya utafiti ni kwamba dawa zinazotumiwa sana kupambana na uchochezi, ingawa zinaweza kuwa na ufanisi, zinaweza kuhusishwa na athari za pembeni za njia ya chakula, moyo na mishipa, figo na ini, hivyo kuibua hitaji la wagombea wapya kutoka vyanzo vya asili.
Nauclea officinalis ni mmea wa familia ya Rubiaceae unaojulikana nchini China kama “Dan Mu” na unaotumiwa kwa jadi. Tafiti za awali zimeripoti kuwa dondoo ghafi la mmea huu linaweza kupunguza uzalishaji wa wapatanishi wa uchochezi kama oksidi nitriki, TNF-α na IL-6 katika makrofaji zilizochochewa kwa LPS, na pia kupunguza fosforilesheni ya protini IκB-α na p65 katika njia ya ishara ya NF-κB. Hata hivyo, dondoo ghafi ni mchanganyiko tata wenye kemikali nyingi kwa pamoja. Kuonekana kwa athari katika dondoo ghafi pekee hakuonyeshi ni kiambajengo gani kinachofungamana na protini gani au ni utaratibu upi wa molekuli ulio msingi.
Kwa hiyo swali kuu ambalo utafiti unajaribu kujibu ni hili: N. officinalis Je, kati ya mamia ya viambajengo vya kemikali vilivyomo ndani yake, molekuli maalumu zinazoweza kuchangia athari ya kupambana na uchochezi na malengo yao ya protini yanayowezekana zinaweza kutambuliwa kwa utaratibu?
Pengo katika fasihi
Kulingana na utafiti, tafiti za kupambana na uchochezi zimewahi kufanywa kuhusu dondoo ghafi la N. officinalis na idadi ndogo ya viambajengo kama Strictosamide. Hata hivyo, hakuna ramani ya “kiambajengo–lengo” inayounganisha katika mfumo mmoja utofauti wa kemikali wa mmea, mitandao ya protini zinazohusishwa na ugonjwa, mabadiliko ya proteomu ya seli na modeli za kufungamana kwa molekuli.
Pengo hili linasababisha matatizo mawili muhimu:
- Haijulikani kwa uhakika ni molekuli zipi safi zinazowajibika kwa athari inayoonekana katika dondoo ghafi.
- Haijaonyeshwa ni protini zipi ndani ya seli zinahusishwa moja kwa moja au kwa njia isiyo ya moja kwa moja na molekuli zinazoonekana kuwa hai.
Ili kutatua masuala haya mawili, watafiti kwanza waliunda bwawa pana la wagombea na kisha wakaweka mpangilio wa uchujaji unaopunguza idadi ya wagombea katika kila hatua. Mtiririko wa kazi ulioonyeshwa katika Kielelezo 1 una hatua kuu tano: uthibitishaji wa seli wa dondoo ghafi, farmakolojia ya mtandao, proteomiki, uchunguzi pepe na majaribio ya seli ya viambajengo safi.
Uchunguzi wa kemikali ulioanza na viambajengo 279
Watafiti walitafuta tafiti za N. officinalis zilizochapishwa hadi Aprili 2025 katika PubMed, Web of Science, CNKI na VIP, na wakaunda maktaba ya viambajengo 279 vya kemikali. Kati ya viambajengo hivyo:
- 199 vilichukuliwa kutoka katika utafiti mmoja mkuu wa mapitio na kupewa kiambishi awali “PP199_”,
- 45 vilichukuliwa kutoka katika utafiti mwingine mpana na kupewa kiambishi awali “PP45_”,
- 35 vilichukuliwa kutoka machapisho mengine na kupewa kiambishi awali “PP35_”
kama misimbo. Misimbo hii si majina ya kemikali ya molekuli, bali ni vitambulisho vya maktaba vilivyotumiwa wakati wa utafiti.
Katika uchunguzi wa kufanana na dawa kwa kutumia SwissADME, watafiti walitafuta ufyonzwaji wa juu wa njia ya chakula uliotabiriwa, thamani ya upatikanaji hai iliyo zaidi ya 0,55 na kufuata vichujio vya Lipinski, Veber, Ghose, Muegge na Egan. Pia waliondoa miundo ya pan-assay interference compounds, yaani PAINS, inayoweza kutoa matokeo chanya ya uongo katika uchanganuzi mbalimbali. Baada ya kuondoa rekodi zilizojirudia, viambajengo 210 viliingizwa katika utabiri wa malengo.
Vichujio hivi havithibitishi kwamba molekuli ina ufanisi, ni salama kwa binadamu au inaweza kutumiwa kliniki. Vinasaidia tu kuweka mbele wagombea wanaoonekana kuwa na sifa za kemikali zinazofaa zaidi kwa maendeleo ya dawa.
Farmakolojia ya mtandao: Kutoka viambajengo vya mmea hadi mtandao wa protini
Kwa kutumia SwissTargetPrediction, malengo ya protini yanayowezekana yalitabiriwa kwa viambajengo 210 na malengo yenye uwezekano chini ya 0,1 yaliondolewa. Hatimaye malengo 980 ya protini yanayowezekana yalipatikana.
Malengo yanayohusishwa na ugonjwa yalikusanywa kutoka GeneCards, Therapeutic Target Database na OMIM. Sehemu ya mbinu inaeleza kwamba utafutaji wa ugonjwa ulifanywa kwa kutumia “pneumonia”, yaani nimonia kama hali wakilishi ya uchochezi badala ya neno la jumla “uchochezi”. Utafutaji huu ulitoa malengo 3.084 ya ugonjwa. Malengo ya viambajengo vya mmea yalipolinganishwa na malengo ya ugonjwa, protini 331 za pamoja zilipatikana.
Mchoro wa Venn katika Kielelezo 2 unaonyesha makutano haya. Katika kundi kubwa la ugonjwa kuna malengo 2.753 yanayopatikana tu katika data za ugonjwa; upande wa mmea kuna malengo 649 yanayohusishwa tu na viambajengo vya N. officinalis, na katikati kuna malengo 331 yanayoshirikiwa na makundi yote mawili. Ulinganifu huu hauthibitishi kwamba protini 331 ni malengo halisi ya tiba; unaonyesha tu wagombea wanaoonekana katika hifadhidata za magonjwa na pia katika utabiri wa malengo ya kemikali.
Uchambuzi wa uboreshaji ulieleza nini?
Uchambuzi wa uboreshaji wa Gene Ontology, KEGG na Reactome ulifanywa kwa malengo 331 ya pamoja. Katika uchambuzi wa Gene Ontology, makundi matatu makuu yalichunguzwa:
- Michakato ya kibiolojia: Uamilishaji wa makrofaji, ishara ya TNF, udhibiti chanya wa mwitikio wa uchochezi na mwitikio kwa LPS.
- Vipengele vya seli: Eneo la nje ya seli, kompleksi za vipokezi na miundo ya seli inayohusiana na kinga.
- Kazi za molekuli: Shughuli ya kipokezi cha kinga cha LPS, kufungamana kwa sitokini na mwingiliano na protini mbalimbali za ishara.
Uchambuzi wa KEGG na Reactome ulionyesha njia za TNF, NF-κB, vipokezi vinavyofanana na Toll, IL-17, kinga asilia na inflammasome kuwa miongoni mwa zilizoibuka zaidi. Matokeo haya yanaunga mkono dhana kwamba viambajengo vya N. officinalis vinaweza kuhusishwa si na protini moja pekee, bali na mtandao wa uchochezi uliounganishwa.
Katika mtandao wa mwingiliano wa protini–protini, protini MAPK1, TNF, PARP1, DNMT1, EGFR, STAT3 na TLR4 zilitambuliwa kama nodi kuu zenye kiwango cha miunganisho zaidi ya 30. Algoriti ya MCODE ilichagua mitandao midogo mitano yenye alama zaidi ya 3,5 na jumla ya malengo 112 ya msingi. Hata hivyo, kiwango cha juu cha miunganisho katika mtandao hakimaanishi kwamba protini lazima iwe lengo la moja kwa moja la dawa. Protini zenye miunganisho mingi zinaweza kuibuka kwa sababu zinahusishwa na michakato mingi ya kibiolojia.
Athari ya dondoo ghafi katika utamaduni wa seli
Katika modeli ya majaribio, makrofaji za panya RAW264.7 zilitumiwa. Seli ziliwekewa 1 µg/mL lipopolisakaridi, yaani LPS, na mwitikio wa uchochezi ulianzishwa kwa muda wa 24 saa. LPS ni sehemu ya utando wa nje wa bakteria Gram-hasi na hutumiwa sana maabara kuchochea njia za ishara za uchochezi katika makrofaji.
Athari ya dondoo ghafi katika uhai wa seli ilitathminiwa kwa kipimo cha CCK8. Kwa majaribio yaliyofuata, watafiti walichagua 100 µg/mL kama mkusanyiko wa kazi ili kusawazisha ukandamizaji mkubwa wa uchochezi na sitotoksisiti ndogo.
Katika Kielelezo 3A, uhai wa seli unaonyesha mwelekeo wa kupungua kadiri mkusanyiko unavyoongezeka. Hata hivyo, kuna kutolingana kati ya alama za takwimu kwenye kielelezo na maandishi ya matokeo. Maandishi yanaripoti kuwa uhai wa seli ulipungua hadi %91,47 katika 200 µg/mL na tofauti ilikuwa muhimu; lakini grafu inaonyesha 200 na 400 µg/mL kama “ns”, 600 µg/mL kama “*”, na 800 µg/mL kama “***”. Katika makala hii, mojawapo ya mawasilisho hayo mawili haijachaguliwa na kusahihishwa; kutolingana ndani ya utafiti kumeainishwa kama kilivyo.
Kwa nini oksidi nitriki ilipimwa?
Makrofaji zinapochochewa kwa LPS zinaweza kuongeza uzalishaji wa oksidi nitriki kupitia kimeng’enya inducible nitric oxide synthase. Katika utafiti huu, oksidi nitriki haikupimwa moja kwa moja; badala yake, bidhaa yake thabiti zaidi ya nitriti katika kiowevu cha utamaduni ilipimwa kwa mmenyuko wa Griess. Kwa hiyo kiwango cha “nitrite” katika grafu kilitumika kama kiashiria kisicho cha moja kwa moja cha uzalishaji wa oksidi nitriki na seli.
Kuanzia 12,5 µg/mL, dondoo ghafi lilipunguza kwa umuhimu wa kitakwimu kiwango cha nitriti kilichoongezeka kwa LPS. Viwango vya umuhimu vilivyoripotiwa ni:
- 12,5 µg/mL: p < 0,05
- 25 µg/mL: p < 0,05
- 50 µg/mL: p < 0,01
- 100 µg/mL: p < 0,0001
Kielelezo 3B kinaonyesha kwamba kiwango cha nitriti katika kundi la LPS kilipanda hadi karibu vitengo 20 na kisha kupungua hatua kwa hatua kadiri dozi ya dondoo ghafi ilivyoongezeka. Watafiti waliteua 100 µg/mL kuwa mkusanyiko wa kazi kwa majaribio yaliyofuata ya proteomiki.
Matokeo haya yanaonyesha tu kwamba uzalishaji wa nitriti ulipungua katika seli RAW264.7 zilizochochewa kwa LPS. Hayaonyeshi kwamba magonjwa ya uchochezi kwa binadamu yametibiwa, kwamba mfumo wa kinga umekandamizwa kwa ujumla au kwamba manufaa ya kliniki yamepatikana.
Uchambuzi wa proteomiki: Kufuatilia maelfu ya protini kwa pamoja
Ili kubainisha ni protini zipi ndani ya seli zilizobadilishwa na dondoo ghafi, makundi matatu yalilinganishwa:
- Kundi la udhibiti lisilotibiwa,
- Kundi la uchochezi lililopewa 1 µg/mL LPS,
- Kundi la matibabu lililopewa 1 µg/mL LPS na 100 µg/mL dondoo la N. officinalis.
Protini zilivunjwa kwa teknolojia ya pressure cycling, zikakatwa kuwa peptidi kwa Lys-C na trypsin, na kuchanganuliwa kwa mfumo wa UltiMate 3000–FAIMS–Orbitrap Exploris 480 LC–MS. Utafiti unasema kwamba kulikuwa na sampuli sita sambamba katika kila kundi na takribani protini 4.300–4.600 zilitambuliwa.
Katika uchakataji wa data ghafi, protini zenye zaidi ya %50 ya thamani zinazokosekana ziliondolewa; thamani zilizokosekana zilizobaki zilijazwa kwa mediani, urekebishaji wa quantile ulifanywa kwa kifurushi cha limma, na thamani za wingi wa protini zikabadilishwa kwa log2. Kwa protini tofauti, maandishi yanaweka kigezo cha p iliyorekebishwa kuwa chini ya 0,05 na thamani kamili ya mabadiliko ya log2 kuwa zaidi ya 1,2.
Ili kueleza mantiki ya fold change, uhusiano wa msingi unaotumiwa ni huu; mlinganyo huu haukuandikwa wazi katika utafiti, bali umeonyeshwa hapa kwa ufafanuzi wa mbinu:
\[ \log_2 FC = \log_2 \left( \frac{\text{Grup A ortalama protein bolluğu}}{\text{Grup B ortalama protein bolluğu}} \right) \]
Hapa FC ni “fold change”, yaani mabadiliko ya mara. log2FC chanya inaonyesha protini kuwa juu zaidi katika kundi la kwanza, na thamani hasi inaonyesha kuwa chini zaidi.
Maandishi ya mbinu yanatumia “|log2FC| > 1,2”, huku maelezo ya Kielelezo 4 yakisema “FC = 1,2”, na sehemu ya majadiliano ikitoa thamani za FC za moja kwa moja kama 1,4 na 1,24 kwa DNMT1. Hii inaleta utata wa istilahi kwa sababu log2FC na FC ya moja kwa moja si kipimo kimoja. Kwa hiyo kigezo halisi cha protini tofauti kinahitaji kufafanuliwa katika toleo lililopitiwa.
Grafu za proteomiki zinaonyesha nini?
Uchambuzi wa vipengele vikuu katika Kielelezo 4A unaonyesha kwamba wasifu wa proteomu wa sampuli za udhibiti, uchochezi na matibabu uliunda makundi yaliyotengana. PC1 inaeleza %25,6 ya tofauti yote na PC2 %15,7. Kutengana kwa makundi hayo matatu kunaunga mkono kwamba LPS na matibabu kwa dondoo ghafi yalihusishwa na mabadiliko yanayoweza kupimwa katika mifumo ya protini.
Kielelezo 4B kinaonyesha kwamba idadi inayofanana ya protini, takribani 4.300–4.600, ilitambuliwa katika makundi yote matatu. Hii inaashiria kuwa utengano wa makundi haukutokana tu na kundi moja kuwa na protini chache sana zilizopimwa.
Kundi la uchochezi lilipolinganishwa na kundi la udhibiti, protini 1.288 zilizoonyeshwa tofauti zilitambuliwa. Kundi la matibabu lilipolinganishwa na kundi la uchochezi, protini 712 zilibadilika. Mchoro wa Venn unaonyesha kwamba kulikuwa na protini 258 za pamoja katika ulinganisho huo. Pia kulikuwa na protini 1.030 maalumu kwa ulinganisho wa uchochezi–udhibiti na 454 maalumu kwa ulinganisho wa matibabu–uchochezi.
Katika grafu za volcano, mhimili mlalo unaonyesha mabadiliko ya wingi wa protini na mhimili wima unaonyesha umuhimu wa kitakwimu. Nukta upande wa kulia zinaonyesha protini zilizoongezeka na za kushoto protini zilizopungua. Grafu hizi hazithibitishi umuhimu wa kibiolojia wa kila protini; zinatoa tu muhtasari wa ukubwa wa mabadiliko na ushahidi wa kitakwimu.
Protini zilizotofautiana kati ya kundi la matibabu na kundi la uchochezi zilionekana kuwa nyingi katika michakato kama mwitikio wa LPS, ishara inayopatanishwa na sitokini, kinga asilia, ishara ya NF-κB, usanisi wa eicosanoid na mfumo wa komplemeti. Kati ya vipengele vya seli, matone ya lipid na matriksi ya mitochondria yaliibuka; kati ya kazi za molekuli, kufungamana kwa NADPH na NF-κB kulionekana zaidi.
PARP1 na DNMT1 zilichaguliwaje?
Katika mtandao wa mwingiliano wa protini–protini uliojengwa kutokana na protini tofauti za proteomiki, moduli yenye alama ya juu zaidi ya MCODE, 5,882, yenye protini 18 ilichaguliwa. Protini hizi 18 zililinganishwa na malengo 112 ya msingi kutoka farmakolojia ya mtandao. Ni PARP1 na DNMT1 pekee zilizosalia kwenye makutano ya orodha hizo mbili.
PARP1 ni protini poly(ADP-ribose) polymerase 1. Utafiti unaijadili katika muktadha wa mwitikio wa uharibifu wa DNA, usemi wa jeni za pro-uchochezi na michakato ya kifo cha seli inayohusiana na mitochondria.
DNMT1 ni protini DNA cytosine-5-methyltransferase 1. Ina jukumu katika kudumisha mifumo ya methylation ya DNA. Utafiti unarejea tafiti za awali zilizoripoti uhusiano kati ya mhimili wa DNMT1–PPAR-γ na kuelekezwa kwa makrofaji kuelekea fenotipu ya pro-uchochezi.
Kulingana na data za proteomiki, DNMT1 iliongezeka katika kundi la uchochezi ikilinganishwa na udhibiti na ikapungua baada ya matibabu ya N. officinalis. Katika sehemu ya majadiliano, mabadiliko haya yameandikwa kama FC = 1,4 na FC = 1,24. PARP1 iliripotiwa kupungua katika kundi la matibabu dhidi ya kundi la uchochezi kwa FC = 1,3. Hata hivyo, ishara za mwelekeo wa thamani hizi za FC na uhusiano wake na kigezo cha log2FC katika mbinu haujaelezwa vya kutosha.
Katika hatua hii, PARP1 na DNMT1 si “malengo ya moja kwa moja yaliyothibitishwa”, bali ni malengo yanayowezekana yaliyotambuliwa kutokana na makutano ya farmakolojia ya mtandao na data za proteomiki. Kubadilika kwa wingi wa protini baada ya matibabu hakuonyeshi kwamba kiambajengo cha mmea kinafungamana moja kwa moja na protini hiyo.
Kwa nini miundo ya protini za binadamu na panya ililinganishwa?
Farmakolojia ya mtandao ilitegemea malengo ya magonjwa ya binadamu, ilhali majaribio ya seli yalifanywa katika seli RAW264.7 za asili ya panya. Ingawa protini za binadamu na panya zinafanana, tofauti za kimuundo katika mifuko ya kufungamana zinaweza kuathiri matokeo ya uchunguzi pepe. Kwa hiyo watafiti walijaribu miundo waliyochagua kwa uunganishaji wa nyuma.
Kwa DNMT1, muundo wa binadamu PDB 6X9J na muundo wa panya PDB 4DA4 ulitumiwa. RMSD ya uti wa mgongo ilikuwa 2,71 Å, na ilielezwa kwamba kulikuwa na tofauti ya kijiometri inayostahili kuzingatiwa kati ya miundo hiyo miwili. Katika seti ya majaribio yenye viambajengo hai na decoys:
- Kwa muundo wa DNMT1 wa panya AUC 0,77 na logAUC 0,17,
- Kwa muundo wa DNMT1 wa binadamu AUC 0,72 na logAUC 0,03
zilipatikana. Muundo wa DNMT1 wa panya uliteuliwa hasa kwa sababu ya logAUC, kipimo kinachoonyesha uwezo wa kuimarisha viambajengo hai katika nafasi za awali za upangaji.
Kwa PARP1, muundo wa fuwele wa binadamu PDB 7AAC ulitumiwa. Kwa kuwa muundo wa majaribio wa PARP1 wa panya haukupatikana, modeli ya homolojia na utabiri wa AlphaFold2 zilitathminiwa. RMSD kati ya muundo wa binadamu na modeli ya AlphaFold2 ya panya ilikuwa 0,89 Å, huku RMSD kati ya muundo wa binadamu na modeli ya homolojia ikiwa 0,06 Å. Thamani za AUC za miundo yote mitatu zilikuwa karibu; kwa kuwa uthibitishaji wa majaribio ulifanywa katika seli za panya, modeli ya homolojia ya panya ilichaguliwa.
Grafu za RMSD na RMSF zinapaswa kusomwaje?
Katika uigaji wa mienendo ya molekuli, RMSD hutoa muhtasari wa jinsi protini au ligandi inavyohama kwa muda ikilinganishwa na muundo wa mwanzo au marejeo. Ili kueleza mantiki ya kipimo kilichotumiwa, uhusiano wa msingi wa RMSD unaweza kuonyeshwa kama ifuatavyo; mlinganyo huu haukuandikwa wazi katika makala:
\[ \mathrm{RMSD}(t) = \sqrt{\frac{1}{N}\sum_{i=1}^{N}\left\|\mathbf{r}_i(t)-\mathbf{r}_i^{ref}\right\|^2} \]
Hapa:
- N ni idadi ya atomi zinazolinganishwa,
- ri(t) ni nafasi ya atomi ya i katika muda t,
- riref ni nafasi ya marejeo ya atomi hiyo hiyo
. RMSD inapobadilika katika kiwango fulani na kufikia tambarare inaweza kuashiria kuwa mfumo unakaribia usawa. Hata hivyo, RMSD ndogo pekee si ushahidi wa kufungamana sahihi, afiniti kubwa au uzuiaji wa kibiolojia.
RMSF huonyesha ni kiasi gani kila mabaki ya amino asidi yanasogea katika kipindi cha uigaji. Thamani kubwa za RMSF huwakilisha maeneo yenye unyumbufu zaidi na thamani ndogo maeneo yaliyo thabiti zaidi. Uigaji wa apo wa 100 nanosani katika Kielelezo 5 ulionyesha kwamba miundo iliyochaguliwa ya DNMT1 ya panya na modeli ya homolojia ya PARP1 ya panya ilikuwa kwa ujumla thabiti, huku baadhi ya maeneo yakionyesha unyumbufu wa ndani.
PP45_3 ilichaguliwaje kwa PARP1?
Viambajengo 279 vilichunguzwa dhidi ya muundo wa PARP1 kwa QVina2. Molekuli 110 zenye alama ya kufungamana chini ya −11 kcal/mol, yaani zilizoonekana kuwa nzuri zaidi kwa hesabu, zilipitiwa kwa mkono. Mkao wa kufungamana usioonekana kuwa wa kweli uliondolewa na viambajengo 10 vilivyoonyesha vifungo vya hidrojeni vinavyofaa vilichaguliwa.
Uigaji wa mienendo ya molekuli wa 100 nanosani ulifanywa kwa kompleksi hizi 10 za protini–ligandi. Grafu za RMSD za uti wa mgongo wa protini zilionyesha kwamba kompleksi nyingi zilikuwa na uthabiti unaofanana na apo PARP1. Katika grafu za RMSD za ligandi kwa kulinganisha na uti wa mgongo wa protini, baadhi ya viambajengo kama PP45_3, PP199_188 na PP199_189 vilibaki thabiti zaidi karibu na 0,2 nm. Mifumo ilichukuliwa kuwa thabiti hasa katika 40 nanosani za mwisho, na nishati huru ya kufungamana ikahesabiwa kutoka sehemu hiyo.
Kanuni ya msingi ya MM/PBSA ni kulinganisha nishati ya hali ya kompleksi na hali za protini na ligandi zikiwa zimetenganishwa. Utafiti haukutoa mlinganyo wazi; kwa ufafanuzi wa mbinu uhusiano wa jumla unaweza kuonyeshwa hivi:
\[ \Delta G_{bağlanma} = G_{kompleks} - \left(G_{protein} + G_{ligand}\right) \]
Thamani ya ΔG iliyo hasi zaidi inawakilisha kufungamana kunakoonekana kufaa zaidi katika modeli ya hesabu iliyotumiwa. Hata hivyo, MM/PBSA ni mbinu ya makadirio na haiwezi kuchukua nafasi ya kipimo cha majaribio cha afiniti ya kufungamana.
Katika jedwali la PARP1, kwa PP45_3:
- Alama ya uunganishaji wa molekuli: −12,2 kcal/mol
- Nishati huru ya kufungamana: −23,65 ± 4,99 kcal/mol
iliripotiwa. Ingawa PP199_69 ilikuwa na wastani ulio hasi zaidi, −24,58 kcal/mol, iliondolewa kwa sababu mkengeuko wake wa kawaida ulikuwa mkubwa sana, ±19,07 kcal/mol. Hivyo watafiti walichagua PP45_3 kuwa mgombea mkuu wa PARP1.
Maandishi yanasema nishati huru ya kufungamana ilipangwa upya kwa “viambajengo 14”, lakini kielelezo na jedwali husika vinaonyesha wagombea 10 wa PARP1. Tofauti hii ya idadi ni mojawapo ya masuala ya uthabiti wa ndani yanayohitaji ufafanuzi.
PP199_76 ilichaguliwaje kwa DNMT1?
Katika uchunguzi wa DNMT1, viambajengo 23 bora vyenye alama ya uunganishaji chini ya −10 kcal/mol vilikaguliwa kwa mkono na wagombea saba wakachaguliwa. Kompleksi hizi pia ziliigizwa kwa 100 nanosani.
Ingawa RMSD za uti wa mgongo wa protini zilionekana kuwa chini kuliko apo protein kwa nyingi, uchanganuzi wa RMSD wa ligandi ulionyesha kwamba baadhi ya molekuli zilisogea mbali na mfuko wa lengo. Kwa PP199_21, PP199_40 na PP199_105, harakati zaidi ya 1 nm ilionekana. Watafiti walitafsiri hali hii kuwa ligandi kuondoka kwenye mfuko wa lengo, na hivyo kuonyesha kwamba uthabiti wa uti wa mgongo wa protini pekee hautoshi.
Katika hesabu ya nishati ya kufungamana kutoka katika njia ya 40 nanosani za mwisho, maandishi ya maelezo yanatoa:
- −24,23 ± 4,83 kcal/mol kwa PP199_76,
- −25,33 ± 7,38 kcal/mol kwa PP199_31
. PP199_31 iliondolewa kwa sababu ya mkengeuko mkubwa zaidi wa kawaida, na PP199_76 ikachaguliwa.
Hata hivyo, vitambulisho vya ligandi katika Jedwali 2 haviendani na maelezo na Kielelezo 7. Jedwali linaweka −24,23 ± 4,83 kcal/mol kwa PP45_3 na −25,33 ± 7,38 kcal/mol kwa PP199_32. Sehemu kubwa ya mistari ya jedwali inarudia vitambulisho vya ligandi kutoka jedwali la PARP1. Kinyume chake, kichwa, muhtasari, maandishi ya matokeo na sehemu ya uthibitishaji wa mwisho hutaja PP199_76 kuwa mgombea wa DNMT1 aliyechaguliwa. Katika makala hii, jedwali halijasahihishwa; kutolingana kwa vitambulisho katika preprint kumerekodiwa wazi.
Utambulisho wa viambajengo viwili vinavyoongoza
| Msimbo wa utafiti | Jina la kemikali | Nambari ya CAS | Fomula ya molekuli | Lengo lililopendekezwa |
|---|---|---|---|---|
| PP45_3 | Nauclefoline | 96400-51-0 | C19H16N2O3 | PARP1 |
| PP199_76 | Angustidine | 40217-50-3 | C19H15N3O | DNMT1 |
Katika kuandaa nyenzo ya mmea, 30 kg za mashina na majani yaliyokaushwa kwa hewa zilitumiwa. Nyenzo ilichujwa mara tatu kwa %85 ethanoli katika joto la kawaida, kila mara kwa wiki moja. Dondoo ghafi liliwekwa kwenye maji na kugawanywa kwa petroli etha na ethyl acetate. Baada ya hatua za silica gel, RP-18, Sephadex LH-20 na HPLC ya nusu maandalizi, 18,3 mg ya PP199_76 na 39,2 mg ya PP45_3 zilipatikana.
Utangulizi unafafanua dawa ya jadi kama shina kavu na mzizi, lakini sehemu ya majaribio inasema mashina na majani yalitumiwa. Kwa kuwa sehemu ya mmea inayotumiwa inaweza kuathiri wasifu wa kemikali, tofauti hii inahitaji kufafanuliwa.
Mifumo iliyotabiriwa ya kufungamana kwa protini–ligandi
Miundo wakilishi kutoka uigaji wa mwisho wa 100 nanosani ilipochunguzwa, iliripotiwa kwamba:
- PP45_3 huunda vifungo vitatu vya hidrojeni na mabaki E762, N766 na S863 katika eneo hai la PARP1,
- PP199_76 huunda vifungo viwili vya hidrojeni na mabaki E1269 na R1315 katika eneo hai la DNMT1.
Kielelezo 8B kinaonyesha vifungo hivi kwa mistari ya njano. Modeli hizi hutoa dhana ya kimuundo kuhusu jinsi molekuli zinavyoweza kujipanga katika mifuko ya malengo. Hata hivyo, kuona kifungo cha hidrojeni katika modeli hakuthibitishi kwamba kufungamana kwa moja kwa moja au uzuiaji wa kimeng’enya hutokea kweli katika mazingira ya kibiolojia.
Matokeo ya kupambana na uchochezi ya viambajengo safi katika seli
PP45_3 na PP199_76 zilitathminiwa katika makrofaji RAW264.7 zilizochochewa kwa LPS kwa kutumia kipimo cha Griess. Molekuli zote mbili zilipunguza uzalishaji wa nitriti kadiri dozi ilivyoongezeka. Viwango vya nusu upeo wa uzuiaji vilivyohesabiwa ni:
| Kiambajengo | Lengo lililopendekezwa | IC50 | Usomaji wa seli |
|---|---|---|---|
| PP45_3 / Nauclefoline | PARP1 | 14,3 µM | Kukandamizwa kwa uzalishaji wa nitriti uliopandishwa na LPS |
| PP199_76 / Angustidine | DNMT1 | 9,3 µM | Kukandamizwa kwa uzalishaji wa nitriti uliopandishwa na LPS |
| Dondoo ghafi la N. officinalis | Mchanganyiko wa viambajengo vingi | 112,02 µg/mL | Kukandamizwa kwa uzalishaji wa nitriti uliopandishwa na LPS |
IC50 ni mkusanyiko ambao mwitikio wa kibiolojia unafikia nusu ya njia kutoka hali ya mwanzo hadi uzuiaji wa kiwango cha juu. IC50 ya chini katika mfumo mmoja wa majaribio na kitengo kimoja cha mkusanyiko huashiria nguvu inayoonekana kuwa kubwa zaidi.
Hapa kuna tatizo muhimu la kulinganisha. IC50 za viambajengo safi zimetolewa kwa µM, ilhali dondoo ghafi limetolewa kwa µg/mL. Aidha, dondoo ghafi ni mchanganyiko wa molekuli nyingi. Kwa hiyo haiwezekani kuhesabu moja kwa moja kutoka thamani hizi kuwa viambajengo safi vina nguvu “mara ngapi” kuliko dondoo ghafi.
Katika sehemu ya mbinu na mihimili ya Kielelezo 8, mikusanyiko ya viambajengo safi imeonyeshwa kuwa 6,25–100 µg/mL, lakini matokeo yanatoa IC50 kwa µM. Inawezekana kubadilisha mkusanyiko wa wingi kwenda wa moli kulifanywa, lakini maelezo ya ubadilishaji na hesabu ya dozi–mwitikio hayajatolewa. Tofauti hii ya vitengo inahitaji kufafanuliwa katika toleo lililopitiwa.
Nguvu za utafiti
- Mbinu ya hatua nyingi: Utafiti haukutegemea uunganishaji wa molekuli pekee; uliunganisha farmakolojia ya mtandao, proteomiki, tathmini ya miundo ya nyuma, mienendo ya molekuli, nishati ya kufungamana na jaribio la seli.
- Maktaba kubwa ya kemikali: Viambajengo 279 vilivyoripotiwa katika fasihi vilikusanywa kwa utaratibu.
- Kuunganisha dondoo ghafi na molekuli safi: Kwanza athari ya dondoo katika seli ilionyeshwa, kisha viambajengo viwili safi vilitengwa na kupimwa.
- Kuzingatia tofauti ya muundo wa binadamu–panya: Kwa kuwa modeli ya seli ilikuwa ya panya, utendaji wa miundo ya protini katika uchunguzi pepe ulitathminiwa kando.
- Kuondoa wagombea wasio thabiti: Sio tu alama hasi zaidi za uunganishaji zilizochaguliwa; wagombea wenye RMSD kubwa au kutokuwa na uhakika mkubwa wa nishati waliondolewa.
- Kuripoti utambulisho wa kemikali na taarifa za utengaji: Majina, nambari za CAS, fomula za molekuli na michakato ya utengaji ya molekuli zinazoongoza ziliripotiwa.
Mapungufu ya utafiti
- Hakuna mapitio ya wenza: Makala ni preprint na haijapitiwa na wahakiki huru.
- Modeli moja tu ya seli ilitumiwa: Matokeo yanategemea tu makrofaji za panya RAW264.7 zilizochochewa kwa LPS.
- Kuna kiashiria kimoja kikuu cha uchochezi: Tathmini ya majaribio ya viambajengo safi ilitegemea zaidi uzalishaji wa nitriti.
- Sitotoksisiti ya viambajengo safi haijaonyeshwa wazi: CCK8 ilionyeshwa kwa dondoo ghafi, lakini matokeo ya uhai wa seli kwa PP45_3 na PP199_76 hayakutolewa kwa wakati mmoja. Inahitajika kuonyesha kando kwamba kupungua kwa nitriti hakutokani na kupungua kwa idadi ya seli.
- Hakuna uthibitishaji wa moja kwa moja wa lengo: Shughuli za vimeng’enya PARP1 na DNMT1, kufungamana kwa protini safi, thermal shift, surface plasmon resonance, isothermal titration calorimetry au mbinu zinazofanana hazikutumiwa.
- Hakuna uthibitishaji wa kijeni: Haijaonyeshwa kwa kunyamazisha, kuongeza usemi au majaribio ya rescue ya PARP1 au DNMT1 kwamba athari ya kiambajengo inategemea malengo haya.
- Hakuna jaribio la wanyama: Farmakokinetiki, upatikanaji hai, dozi, sumu na athari ya kupambana na uchochezi katika kiwango cha kiumbe hazikutathminiwa.
- Hakuna data za kliniki: Haiwezekani kutoa hitimisho kuhusu usalama au ufanisi kwa binadamu.
- Wigo wa malengo ya ugonjwa ni mdogo: Kutumia malengo ya nimonia kama seti wakilishi ya uchochezi badala ya uchochezi kwa ujumla kunaweza kupunguza uwezo wa kueneza matokeo kwa aina nyingine za uchochezi.
- Ushirikiano wa viambajengo vingi haujachunguzwa: Haijatathminiwa kama viambajengo katika dondoo ghafi vinaimarishana, kudhoofishana au kubadilisha kimetaboliki.
- Kuna kutolingana kati ya maandishi na majedwali: Vitambulisho vya wagombea wa DNMT1, ufafanuzi wa vigezo vya proteomiki, takwimu za sitotoksisiti na vitengo vya mkusanyiko vina tofauti zinazohitaji ufafanuzi.
Utafiti unasema nini?
- Dondoo ghafi la N. officinalis lilipunguza uzalishaji wa nitriti uliopandishwa na LPS katika modeli ya seli na kiwango cha dozi kilichotumika.
- Matibabu kwa dondoo ghafi yalihusishwa na mabadiliko makubwa katika wasifu wa proteomu wa seli RAW264.7.
- Makutano ya farmakolojia ya mtandao na proteomiki yaliweka PARP1 na DNMT1 mbele kama malengo yanayowezekana.
- Modeli za hesabu zilitabiri kwamba PP45_3 ina sifa za kimuundo zinazoweza kuruhusu kufungamana na PARP1, na PP199_76 na DNMT1.
- Viambajengo vyote viwili safi vilipunguza uzalishaji wa nitriti kwa kutegemea mkusanyiko katika makrofaji zilizochochewa kwa LPS.
Utafiti hausemi nini?
- Hauonyeshi kwamba PP45_3 au PP199_76 ni dawa za kupambana na uchochezi kwa binadamu.
- Hauthibitishi kwa majaribio kwamba viambajengo hivi huzuia moja kwa moja PARP1 na DNMT1.
- Hauamui ni magonjwa gani ya uchochezi ambamo vinaweza kuwa na ufanisi.
- Hautoi taarifa kuhusu dozi salama, dozi yenye sumu, kimetaboliki, usambazaji wa tishu au mwingiliano wa dawa.
- Hauonyeshi kwamba kutumia bidhaa ghafi za mmea kutasababisha athari hiyo hiyo.
- Hautoi ushahidi wa matibabu, kinga au kurudi nyuma kwa ugonjwa kwa wanyama au binadamu.
Umuhimu kwa zamani, sasa na siku zijazo
Hapo awali, utafiti wa bidhaa za asili mara nyingi ulizingatia kama dondoo ghafi linapunguza mwitikio fulani wa seli. Utafiti huu unajaribu kupeleka ugunduzi wa dondoo ghafi hadi kwenye viwango vya maktaba ya kemikali, mtandao wa protini, proteomu na muundo wa molekuli ili kubainisha ni viambajengo gani vinapaswa kuchunguzwa zaidi.
Kwa sasa, thamani ya utafiti ni kupunguza mamia ya viambajengo vya asili hadi kundi dogo la wagombea kwa kutumia mbinu za hesabu na omics badala ya kuvipima vyote moja kwa moja. Kwa njia hii, majaribio ghali na yanayotumia muda yanaweza kulenga molekuli zilizowekwa mbele.
Katika siku zijazo, PP45_3 na PP199_76 zinahitaji kwanza majaribio ya moja kwa moja ya kufungamana kwa protini na uzuiaji wa kimeng’enya. Baadaye utegemezi wa lengo unapaswa kuonyeshwa kwa mbinu za kijeni, kuthibitishwa katika seli tofauti za binadamu na wanyama, kupimwa kwa paneli pana za sitokini, majaribio ya sumu, uchanganuzi wa farmakokinetiki na modeli za uchochezi kwa wanyama. Kabla hatua hizi hazijafanikiwa, ni mapema kuzitathmini molekuli hizo kama wagombea wa dawa au chaguo la tiba.
Kwa maisha ya kila siku, utafiti haupendekezi kutumia dondoo la mmea moja kwa moja kama dawa; badala yake unaonyesha jinsi vyanzo vya asili vinavyoweza kuchunguzwa kwa utaratibu katika ugunduzi wa dawa za kisasa. Mamia ya viambajengo vya mmea vilichujwa kwanza kupitia hifadhidata, vikalinganishwa na mabadiliko ya protini za seli, vikaigwa katika kiwango cha atomu na hatimaye kupelekwa kwenye jaribio la seli. Mchakato huu ni jaribio la kujenga daraja la kisayansi kati ya maarifa ya matumizi ya jadi na utafiti wa kisasa wa molekuli.
Mbinu na Matokeo ya Utafiti
Mtiririko wa kazi wa utafiti
| Hatua | Mbinu iliyotumiwa | Matokeo makuu |
|---|---|---|
| 1. Maktaba ya kemikali | Utafutaji wa fasihi iliyochapishwa hadi Aprili 2025 | Viambajengo 279 vya N. officinalis |
| 2. Kufanana na dawa | SwissADME na kichujio cha PAINS | Viambajengo 210 vilivyopewa kipaumbele |
| 3. Utabiri wa lengo | SwissTargetPrediction | Malengo 980 yanayowezekana ya protini |
| 4. Malengo ya ugonjwa | GeneCards, TTD na OMIM; hoja wakilishi ya nimonia | Malengo 3.084 ya ugonjwa |
| 5. Makutano | Kulinganisha malengo ya mmea na ugonjwa | Malengo 331 ya pamoja |
| 6. Uchambuzi wa mtandao | DAVID, STRING, Cytoscape na MCODE | Mitandao midogo mitano na malengo 112 ya msingi |
| 7. Uthibitishaji wa dondoo ghafi | CCK8 na kipimo cha Griess | Mkusanyiko wa kazi 100 µg/mL |
| 8. Proteomiki | Proteomiki ya kiasi LC–MS/MS isiyotumia lebo | Malengo yanayowezekana PARP1 na DNMT1 |
| 9. Uchaguzi wa muundo | Uunganishaji wa nyuma, AUC na logAUC | DNMT1 ya panya na modeli ya homolojia ya PARP1 ya panya |
| 10. Uchunguzi pepe | QVina2, mienendo ya molekuli ya 100 ns na MM/PBSA | PP45_3 na PP199_76 |
| 11. Uthibitishaji wa seli | Kipimo cha Griess katika modeli LPS–RAW264.7 | IC50: 14,3 µM na 9,3 µM |
Utamaduni wa seli na vipimo vya kibiolojia
- Mstari wa seli: makrofaji ya panya RAW264.7
- Kiowevu cha utamaduni: DMEM yenye %10 fetal bovine serum na %1 penicillin–streptomycin
- Uatamiaji: 37 °C, %5 CO2
- Kichocheo cha uchochezi: 1 µg/mL LPS
- Muda wa kuchochea: 24 saa
- Uhai wa seli: CCK8, absorbansi 450 nm
- Uchambuzi wa nitriti: mmenyuko wa Griess, absorbansi 540 nm
- Kulingana na maelezo ya vielelezo, idadi ya sampuli kwa kundi: n = 6
Mbinu ya proteomiki
- Uvunjaji wa seli na reduksheni/alkylation: teknolojia ya pressure cycling ya Barocycler 2320EXT
- Usagaji wa protini: Lys-C, kisha trypsin
- Utenganishaji wa peptidi: safu ya C18, gradienti ya LC ya dakika 80
- Mass spectrometry: FAIMS–Orbitrap Exploris 480
- Masafa ya skani MS1: m/z 350–1.500
- Resolution ya MS1: 60.000
- Resolution ya MS/MS: 15.000
- Nishati ya mgongano HCD: %30
- Kichujio cha data pungufu: kuondoa protini zenye zaidi ya %50 ya data inayokosekana
- Data inayokosekana iliyobaki: kujazwa kwa mediani
- Urekebishaji: limma quantile normalization
- Takwimu: modeli za mstari na empirical Bayes
- Kigezo cha protini tofauti kilichotolewa katika maandishi: p iliyorekebishwa < 0,05 na |log2FC| > 1,2
Matokeo ya proteomiki
| Ulinganisho au kipimo | Matokeo |
|---|---|
| Idadi ya protini zilizotambuliwa katika kila kundi la sampuli | Takribani 4.300–4.600 |
| Kundi la uchochezi – Kundi la udhibiti | Protini 1.288 tofauti |
| Kundi la matibabu – Kundi la uchochezi | Protini 712 tofauti |
| Protini za pamoja za ulinganisho huo | Protini 258 |
| Moduli ya juu zaidi ya MCODE | Alama 5,882; protini 18 |
| Malengo yanayowezekana ya pamoja na farmakolojia ya mtandao | PARP1 na DNMT1 |
Vigezo vya uunganishaji wa molekuli na mienendo
- Programu ya docking: QVina2
- Thamani ya exhaustiveness ya PARP1: 12
- Thamani ya exhaustiveness ya DNMT1: 36
- Maandalizi ya protini: kuondoa molekuli za maji, kuongeza hidrojeni za polar na chaji za Kollman
- Jiometri ya ligandi: RDKit na MMFF94 force field
- Mienendo ya molekuli: GROMACS 2024.1
- Force field ya protini: CHARMM36m
- Force field ya ligandi: CGenFF
- Hali ya protonation: PROPKA, pH 7,4
- Sanduku la solvent: umbali wa 1,5 nm kati ya protini na mpaka wa sanduku
- Usawazishaji: 100 ps NVT na 100 ps NPT
- Uigaji wa uzalishaji: 100 ns
- Muda wa kurekodi nishati: 10 ps
- Nishati ya kufungamana: gmx_MMPBSA 1.6.3 kwa kutumia 40 ns za mwisho
Matokeo ya hesabu ya wagombea wa PARP1
| Ligandi | Nishati ya docking | Nishati huru ya kufungamana |
|---|---|---|
| PP45_3 | −12,2 kcal/mol | −23,65 ± 4,99 kcal/mol |
| PP199_7 | −12,0 kcal/mol | −23,38 ± 8,65 kcal/mol |
| PP199_69 | −12,8 kcal/mol | −24,58 ± 19,07 kcal/mol |
| PP199_83 | −12,2 kcal/mol | −17,86 ± 9,85 kcal/mol |
Ingawa wastani wa nishati wa PP199_69 ulikuwa hasi zaidi, PP45_3 ilichaguliwa kwa sababu kutokuwa na uhakika kwa PP199_69 kulikuwa juu sana.
Matokeo ya hesabu ya mgombea wa DNMT1
| Ligandi | Nishati ya kufungamana katika maelezo ya maandishi | Tathmini |
|---|---|---|
| PP199_76 | −24,23 ± 4,83 kcal/mol | Ilichaguliwa kuwa mgombea mkuu |
| PP199_31 | −25,33 ± 7,38 kcal/mol | Iliondolewa kwa sababu ya mkengeuko wa kawaida ulio juu zaidi |
Dokezo la data: Thamani zilizo juu zimetolewa kutoka maelezo ya matokeo na uteuzi wa wagombea. Jedwali 2 la preprint linaonyesha thamani hizi kwa vitambulisho PP45_3 na PP199_32. Kutolingana huku kati ya jedwali na maelezo kumeripotiwa bila kusahihishwa.
Muhtasari wa kiufundi wa matokeo
| Molekuli inayoongoza | Lengo lililopendekezwa | Mabaki ya vifungo vya hidrojeni | BFE | IC50 ya seli |
|---|---|---|---|---|
| Nauclefoline / PP45_3 | PARP1 | E762, N766, S863 | −23,65 ± 4,99 kcal/mol | 14,3 µM |
| Angustidine / PP199_76 | DNMT1 | E1269, R1315 | −24,23 ± 4,83 kcal/mol | 9,3 µM |
Jedwali hili linafupisha uteuzi wa wagombea katika utafiti. BFE na vifungo vya hidrojeni ni matokeo ya hesabu; IC50 zinategemea kukandamizwa kwa uzalishaji wa nitriti katika makrofaji za panya zilizochochewa kwa LPS. Kwa pamoja, aina hizi tatu za data zinaunda dhana ya ugombea, lakini hazithibitishi uzuiaji wa moja kwa moja wa lengo au ufanisi wa kliniki.
Maelezo ya Chanzo na Mbinu
Maudhui haya yanategemea utafiti “Discovery of Anti-inflammatory Constituents from Nauclea officinalis Targeting PARP1 and DNMT1” ulioandaliwa na Tong Wang, Junjie Tong, Jingying Chen, Cong Xie, Yanhui Fu na Changbin Yu.
Utafiti ni makala ya utafiti ya preprint iliyotolewa kwa nakala ya kielektroniki kupitia SSRN. Kila ukurasa wa maandishi una onyo “This preprint research paper has not been peer reviewed” na “Preprint not peer reviewed”. Utafiti haujapitiwa na wahakiki wenza. Hakuna DOI inayoweza kuthibitishwa, kukubaliwa na jarida lililopitiwa au taarifa ya uchapishaji wa mwisho iliyotolewa katika maandishi.
Utafiti unaunganisha majaribio ya utamaduni wa seli, proteomiki ya kiasi isiyotumia lebo, farmakolojia ya mtandao, uchanganuzi wa mwingiliano wa protini–protini, docking ya molekuli ya nyuma na mbele, uundaji wa homolojia, muundo wa AlphaFold2, uigaji wa mienendo ya molekuli wa 100 nanosani na hesabu za nishati huru ya kufungamana za MM/PBSA.
Utafiti si wa kliniki. Hautoi majaribio ya wanyama, majaribio ya binadamu, ufanisi wa kliniki, usalama wa binadamu, farmakokinetiki au dhamana ya matibabu. Matokeo ya kupambana na uchochezi ya PP45_3 na PP199_76 yanategemea kupungua kwa uzalishaji wa nitriti katika makrofaji za panya RAW264.7 zilizochochewa kwa LPS.
PARP1 na DNMT1 hazijathibitishwa kwa majaribio ya moja kwa moja ya kufungamana kwa kibayokemia au uzuiaji wa kimeng’enya. Protini hizi zilitambuliwa kama malengo yanayowezekana kutokana na farmakolojia ya mtandao, makutano ya proteomiki na modeli za kompyuta. Kwa hiyo haiwezekani kuhitimisha kwamba “PP45_3 huzuia PARP1 na PP199_76 huzuia DNMT1 kwa uhakika”.
Katika preprint kuna matatizo ya uthabiti wa ndani kati ya vitambulisho vya ligandi katika Jedwali 2 na maelezo ya matokeo, kati ya maandishi ya uhai wa seli na alama za takwimu katika Kielelezo 3, katika maneno ya FC na log2FC ya proteomiki, katika vitengo vya mkusanyiko vya viambajengo safi na katika maelezo ya sehemu za mmea zilizotumiwa. Katika maudhui haya, masuala hayo hayajasahihishwa, kubadilishwa au kufichwa; yameelezwa wazi ili data itathminiwe katika muktadha sahihi.
Makala hii imeandaliwa kwa kutegemea tu mbinu, vielelezo, majedwali, data za nambari na tafsiri za waandishi katika utafiti wa kisayansi uliopakiwa. Madai ya kliniki, kibiashara au ya matibabu yasiyopatikana katika utafiti hayajaongezwa.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *