

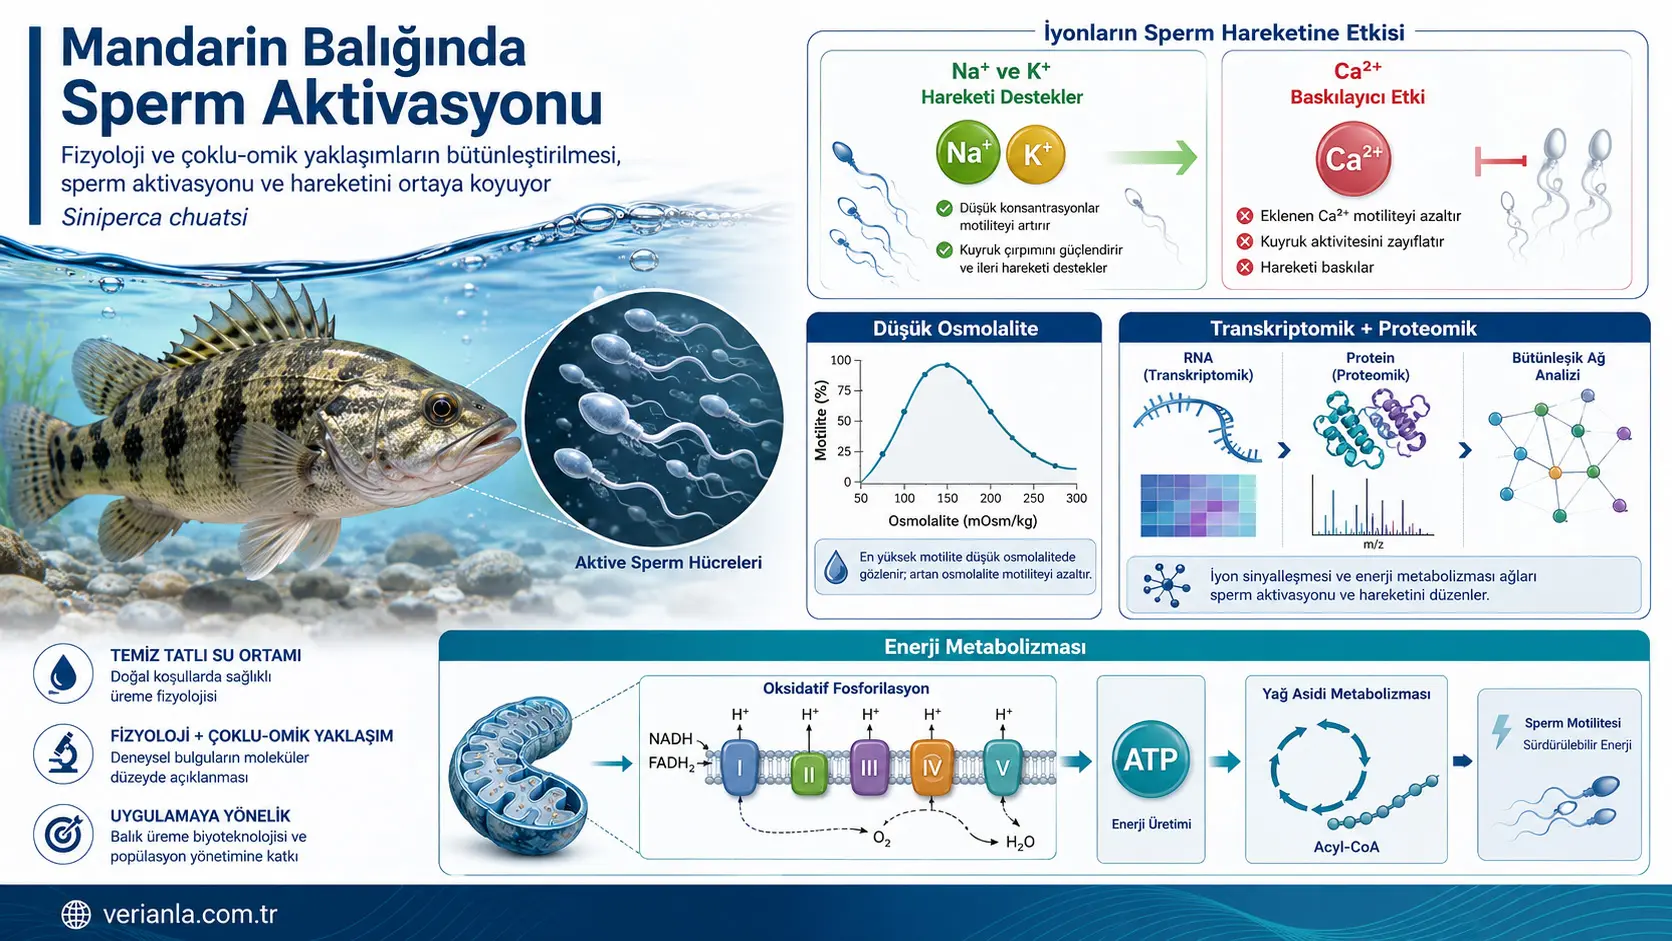
Katika samaki wa maji baridi, seli za mbegu za kiume huwekwa katika hali isiyo na mwendo ndani ya mfumo wa uzazi wa dume na zinapokutana na maji huingia katika kipindi kifupi sana cha mwendo kinachohitaji nishati nyingi. Katika muda huu mfupi, uwezo wa seli ya mbegu kufikia yai hutegemea osmolaliti ya mazingira, kiasi cha ioni kama sodiamu, potasiamu na kalsiamu, njia za ioni katika utando wa seli na akiba ya ATP inayoweza kutumiwa.
Qinghua Wang na wenzake walichunguza msingi wa kifiziolojia na kimolekuli wa uanzishaji wa mbegu za samaki mandarin Siniperca chuatsi, spishi ya maji baridi yenye umuhimu wa kiuchumi. Kwanza, sampuli za mbegu zilizokusanywa kutoka samaki dume 24 ziliamilishwa katika hali tofauti za osmolaliti, NaCl, KCl, CaCl2, mchanganyiko wa ioni na pH. Kisha sampuli za mbegu mpya zililinganishwa na sampuli za mbegu zilizoamilishwa kwa sekunde 60 katika maji baridi kwa kutumia mbinu za transcriptomiki na proteomiki.
Katika maji baridi yaliyochujwa, uhamaji wa mbegu ulikuwa %89,10 ± 2,83 sekunde 10 baada ya uanzishaji, ukashuka hadi %55,62 ± 5,27 katika sekunde ya 20 na hadi %6,54 ± 3,25 katika sekunde ya 30. Kupungua huku kwa haraka kunaonyesha kuwa akiba ya nishati inayoweza kutumiwa na mbegu za samaki mandarin kwa ajili ya mwendo, pamoja na muda wa ufanisi wa urutubishaji, ni mdogo.
Katika majaribio ya kifiziolojia, uhamaji wa zaidi ya %70 ulionekana katika kiwango cha 0–150 mOsm/kg, hasa katika sekunde 10 za kwanza za uanzishaji. Hata hivyo, osmolaliti ilipoongezeka uhamaji wa mwanzo ulipungua, na watafiti walichagua 50 mOsm/kg kama osmolaliti inayofaa ya uanzishaji kwa kulinganisha ioni na pH katika majaribio yaliyofuata kwa sababu ilitoa utendaji wa juu uliokuwa thabiti katika majaribio tofauti.
Miyeyusho ya NaCl na KCl yenye mkusanyiko mdogo iliunga mkono uanzishaji wa mbegu. Waandishi waliripoti kuwa mazingira ya Na⁺ na K⁺ yenye jumla ya mkusanyiko wa ioni usiozidi 25 mM yanaweza kutoa uhamaji wa juu. Uwiano tofauti wa NaCl na KCl haukusababisha mabadiliko makubwa katika uhamaji wa jumla, lakini uwiano wa 7:1, 1:5 na 1:7 wa NaCl:KCl uliongeza sehemu ya makundi ya mbegu zinazosonga kwa kasi.
CaCl2, kwa upande mwingine, ilikandamiza sana uhamaji wa mbegu. Uwiano wa CaCl2:NaCl au CaCl2:KCl ulipopunguzwa chini ya 1:500, viwango vya Ca²⁺ vilivyo chini ya takriban 0,06 mM havikuwa na athari yenye maana ya kitakwimu katika uhamaji. Ugunduzi huu unaonyesha kuwa katika urutubishaji wa bandia inaweza kuwa muhimu kwamba kiyeyusho cha uanzishaji kisiwe na kiasi kikubwa cha Ca²⁺.
Katika majaribio ya pH, uhamaji wa juu zaidi katika kiyeyusho cha NaCl cha 50 mOsm/kg ulionekana katika pH 8. Hata hivyo, matokeo haya yanategemea tu hali maalum ya NaCl na osmolaliti na kipimo cha sekunde 10 baada ya uanzishaji; hayapaswi kuhamishwa moja kwa moja kwa miundo mingine ya maji au mazingira halisi ya urutubishaji.
Katika uchambuzi wa mpangilio wa RNA, jeni 855 zenye utofauti wa uonyeshaji zilitambuliwa kati ya mbegu zilizoamilishwa na mbegu mpya. Kati ya hizo, 625 ziliongezeka na 230 zilipungua. Katika uchambuzi wa proteomiki, protini 4.037 zilitambuliwa na mabadiliko yenye maana yalionekana katika wingi wa protini 752; protini 297 ziliongezeka na 455 zilipungua.
Kwa kutathmini tabaka hizi mbili za data kwa pamoja, jeni sita na protini 35 zinazohusishwa na ishara za Na⁺, K⁺ na Ca²⁺ pamoja na kimetaboliki ya nishati ziliainishwa kuwa muhimu. Iliripotiwa kuwa jeni zinazohusiana na njia za ioni kama grin3bb, cacna1c na chrna7 ziliongezeka; protini kama ATP1B, ATP2A, ATP2B, CACNA1H na PRKCB zinazoshiriki katika usafirishaji wa ioni na usawazishaji wa kalsiamu ndani ya seli ziliongezeka.
Matokeo ya kimetaboliki ya nishati yalionyesha kuwa baada ya uanzishaji wa mbegu jeni na protini zinazohusiana na glikolisi zilipungua, huku vipengele vya uvunjaji wa asidi ya mafuta na fosforilesheni oksidativi ya mitokondria vikiongezeka. Watafiti walitafsiri muundo huu kama mabadiliko ya seli ya mbegu inayosonga kutoka utegemezi wa glikolisi kuelekea matumizi ya asidi ya mafuta na uzalishaji wa ATP wa mitokondria.
Hata hivyo, matokeo ya kimolekuli bado si ushahidi wa moja kwa moja wa utaratibu. Mtiririko wa Na⁺, K⁺ au Ca²⁺ ndani ya seli haukupimwa; uzalishaji wa ATP, upumuaji wa mitokondria, uwezo wa umeme wa utando au shughuli za njia za ioni hazikujaribiwa moja kwa moja. Zaidi ya hayo, utafiti haukutathmini kiwango halisi cha urutubishaji, ukuaji wa kiinitete au mafanikio ya kuanguliwa kwa vifaranga. Kwa hiyo, hali zilizopendekezwa za kiyeyusho cha uanzishaji hutoa msingi wa majaribio kwa matumizi ya urutubishaji wa bandia, lakini si itifaki kamili ya uwanjani wala dhamana ya mafanikio.
Maelezo ya Kina
Kwa nini mbegu za samaki wa maji baridi zinaweza kusonga kwa muda mfupi tu?
Seli za mbegu za samaki haziko katika mwendo endelevu ndani ya mfumo wa uzazi wa dume. Muundo wa ioni na osmotiki wa plasma ya mbegu huziweka kwa muda katika hali isiyo na mwendo. Mbegu zinapotolewa kwenye maji ya mazingira, mazingira ya nje ya seli hubadilika ghafla. Katika spishi za maji baridi, mabadiliko haya kwa kawaida huanza kwa kupungua kwa kiasi kikubwa kwa osmolaliti ya mazingira ya nje ikilinganishwa na plasma ya mbegu.
Osmolaliti inaeleza jumla ya chembe zilizoyeyushwa katika kilogramu moja ya kiyeyushi na zinazochangia shinikizo la kiosmotiki. Haiwakilishi mkusanyiko wa chumvi moja tu, bali athari ya pamoja ya kiosmotiki ya ioni na molekuli zote zilizopo katika mazingira.
Osmolaliti ya plasma ya mbegu za samaki mandarin ilipimwa kuwa 367–380 mOsm/kg. Kinyume chake, seli za mbegu ziliamilishwa sana katika osmolaliti zilizo chini mno, kama 0–150 mOsm/kg. Kupungua huku kwa kiasi kikubwa kunaweza kuchochea mwendo wa ioni katika utando wa seli, uwezo wa umeme wa utando, pH ya ndani ya seli na michakato ya ishara inayoanzisha mwendo wa mkia wa mbegu.
Uanzishaji unapoanza, protini za injini katika mkia wa mbegu hutumia kiasi kikubwa cha ATP. Seli za mbegu za samaki wa maji baridi kwa kawaida huwa na akiba ndogo zaidi ya nishati kuliko mbegu za samaki wa baharini. Kwa hiyo, mwendo huanza haraka lakini hupungua kwa muda mfupi.
Mfululizo wa muda katika kundi la udhibiti la maji baridi yaliyochujwa unaonyesha kikomo hiki wazi:
- Uhamaji sekunde 10 baada ya uanzishaji: %89,10 ± 2,83
- Uhamaji sekunde 20 baada ya uanzishaji: %55,62 ± 5,27
- Uhamaji sekunde 30 baada ya uanzishaji: %6,54 ± 3,25
Thamani hizi zinaonyesha kuwa mwendo hupotea kwa kiasi kikubwa ndani ya nusu dakika tu. Kwa urutubishaji wa bandia, hali hii inamaanisha kuwa inaweza kuwa muhimu sana kuleta mbegu na mayai pamoja kwa wakati sahihi na katika kiyeyusho sahihi.
Kwa nini samaki mandarin walichunguzwa?
Siniperca chuatsi ni samaki mla nyama wa maji baridi mwenye thamani kubwa kiuchumi anayeishi katika mifumo ya maji baridi ya Asia Mashariki. Utafiti unaeleza kuwa spishi hii inapatikana katika Asia Mashariki, ikiwemo China, Korea na Vietnam, na imepata umuhimu katika ufugaji kutokana na ubora wa nyama, thamani ya lishe na kutokuwepo kwa mifupa ya ndani ya misuli.
Kulingana na takwimu za uvuvi za China zilizotajwa katika utafiti, uzalishaji wa ufugaji wa spishi hii ulizidi tani 470.000 mwaka 2023. Ingawa mbinu za uzalishaji wa bandia zimeendelea tangu mwishoni mwa miaka ya 1980, osmolaliti, ioni na mitandao ya molekuli ya nishati inayodhibiti uanzishaji wa mbegu bado haijaelezwa vya kutosha.
Lengo la utafiti si tu kupata ni kiyeyusho gani kinachotoa uhamaji wa juu zaidi. Utafiti unaunganisha viwango vitatu:
- Kupima mwendo halisi wa mbegu katika hali tofauti za maji na ioni,
- Kulinganisha wingi wa RNA uliopo katika mbegu baada ya uanzishaji,
- Kutathmini wingi wa protini na njia za kibayolojia baada ya uanzishaji.
Kupitia mkabala huu shirikishi, watafiti walijaribu kujenga uhusiano unaowezekana kati ya hali za mazingira ya nje na ishara za ioni pamoja na kimetaboliki ya nishati ndani ya seli.
Samaki na sampuli za mbegu ziliandaliwa vipi?
Majaribio yalifanywa katika kipindi cha Aprili-Juni 2026, msimu wa uzazi wa samaki mandarin. Samaki dume waliotumiwa walielezwa kuwa:
- Urefu wa mwili zaidi ya 25 cm,
- Uzito wa mwili zaidi ya gramu 500,
- Umri zaidi ya mwaka mmoja.
Samaki waliwekwa katika tangi la zege lenye vipimo vya mita 5 × 5 × 2, lenye uingizaji hewa na mtiririko endelevu wa maji baridi. Joto la maji lilikuwa 23–28°C, oksijeni iliyoyeyushwa ilikuwa zaidi ya 6 mg/L na mpangilio wa mwanga ulikuwa saa 13 za mwanga na saa 11 za giza.
Baada ya samaki kuwekwa chini ya ganzi ya eugenol kwa dakika tano, mbegu zilikusanywa kwa masaji laini ya eneo la tumbo. Sampuli zilizochafuliwa kwa damu, mkojo au kinyesi hazikutumiwa. Ni sampuli za mbegu pekee zenye uhamaji wa awali zaidi ya %85 ndizo zilizoingizwa katika uchambuzi wa kifiziolojia na omiki.
Imeelezwa kuwa taratibu za majaribio ziliidhinishwa na Kamati ya Taasisi ya Utunzaji na Matumizi ya Wanyama ya Kitivo cha Sayansi ya Maisha cha Sun Yat-sen University. Nambari ya idhini ya kamati ya maadili haikutolewa katika PDF.
Uhamaji wa mbegu ulipimwaje?
Katika uchambuzi wa kifiziolojia, mbegu kutoka samaki dume 24 zilitumiwa. Kwa kila kipimo, 0,5 µL ya mbegu ilichanganywa na 50 µL ya kiyeyusho cha uanzishaji. Hivyo uwiano wa ujazo kati ya mbegu na kimiminika cha uanzishaji ulikuwa takriban 1:100.
Mchanganyiko ulichunguzwa mara moja kwa darubini ya macho na kamera ya rangi ya CCD, na uhamaji ukahesabiwa kwa mfumo wa uchambuzi wa mbegu unaosaidiwa na kompyuta wa ISAS v2.0. Vipimo vilitathminiwa kama:
- Sekunde ya 10: uanzishaji wa mapema,
- Sekunde ya 20: uhifadhi wa mwendo,
- Sekunde ya 30: kupungua kwa mwendo.
Mfumo wa ISAS pia uliainisha seli za mbegu katika makundi ya mwendo A, B, C na D. Hata hivyo, vizingiti vya kasi au mwelekeo wa makundi haya havijaelezwa katika PDF. Kwa hiyo, makundi A, B, C na D yanapaswa kusomwa kama makundi ya uhamaji wa kulinganisha ndani ya mfumo wa uchambuzi wa utafiti wenyewe.
Jaribio la osmolaliti lililenga kutenganisha nini?
Athari ya osmolaliti ilichunguzwa kwa kutumia miyeyusho miwili tofauti:
- Kiyeyusho cha sukrosi: Kilitumika kutathmini athari ya kiosmotiki pekee bila kuongeza ioni.
- Chumvi bandia ya bahari: Kilikuwa mazingira ya kulinganisha yenye ioni nyingi kama Na⁺, Mg²⁺, Ca²⁺, K⁺ na Sr²⁺.
Miyeyusho yote miwili iliandaliwa kati ya 0 na 300 mOsm/kg kwa vipindi vya 50 mOsm/kg. Hivyo, katika osmolaliti sawa, mazingira yasiyo na ioni yalilinganishwa na mazingira yenye ioni nyingi.
Sekunde 10 baada ya uanzishaji, uhamaji ulibaki zaidi ya %70 katika kiwango cha 0–150 mOsm/kg katika kiyeyusho cha sukrosi na pia katika chumvi bandia ya bahari. Uhamaji wa mwanzo ulikuwa wa juu hasa katika kiwango cha 0–50 mOsm/kg.
Osmolaliti ilipopanda zaidi ya 100 mOsm/kg, uhamaji ulipungua hatua kwa hatua. Katika viwango vya 250–300 mOsm/kg, uhamaji wa mwanzo ulikandamizwa kwa kiasi kikubwa. Thamani hizi zinaashiria kuwa hali ya kutosonga kwa mbegu huhifadhiwa zaidi osmolaliti inapokaribia 367–380 mOsm/kg ya plasma ya mbegu.
Katika sekunde ya 20, 0–50 mOsm/kg katika chumvi bandia ya bahari na hasa 50 mOsm/kg katika sukrosi ziliunga mkono uhamaji wa juu kiasi. Katika sekunde ya 30, uhamaji ulipungua sana katika hali zote, lakini karibu na 150–200 mOsm/kg mwendo zaidi kiasi ulihifadhiwa ikilinganishwa na hali nyingine za osmolaliti ya juu.
Hapa kuna uwiano muhimu:
- Osmolaliti ya chini sana huamilisha mbegu kwa haraka na kwa nguvu.
- Osmolaliti ya juu zaidi hupunguza uhamaji wa mwanzo.
- Hata hivyo, baadhi ya osmolaliti za kati hadi juu zinaweza kusaidia kuhifadhi mwendo kwa muda mfupi kidogo zaidi.
Hali hii inaashiria mabadilishano kati ya kutumia nishati kwa kasi kubwa katika sekunde za kwanza na kudumisha mwendo kwa kiwango cha chini zaidi. Hata hivyo, utafiti haukupima moja kwa moja kiasi cha ATP ndani ya seli.
Kwa nini 50 mOsm/kg ilichaguliwa?
Ingawa uhamaji wa juu ulionekana katika 0–150 mOsm/kg, 50 mOsm/kg ilichaguliwa kama osmolaliti ya kazi katika majaribio ya ioni zilizounganishwa na pH kwa sababu ilitoa matokeo thabiti ya uanzishaji wa mapema katika majaribio yote ya chumvi bandia ya bahari, sukrosi, NaCl na KCl.
Kwa hiyo, 50 mOsm/kg haimaanishi kuwa ni kizingiti pekee halali kibayolojia. Ni hali ya majaribio ya vitendo iliyotumiwa na watafiti kusawazisha majaribio yaliyofuata na inayotoa uhamaji mkubwa wa mwanzo.
Na⁺ na K⁺ ziliathirije mwendo wa mbegu?
Miyeyusho ya NaCl na KCl ilijaribiwa kivyake kati ya 0–300 mOsm/kg. Sekunde 10 baada ya uanzishaji, uhamaji wa juu ulihifadhiwa katika kiwango cha 0–50 mOsm/kg katika chumvi zote mbili.
Katika sekunde ya 20:
- NaCl iliunga mkono uhamaji wa juu katika kiwango cha 0–100 mOsm/kg.
- KCl ilitoa uhamaji wa juu kiasi katika 0–50 mOsm/kg na katika hali ya 150 mOsm/kg.
Katika sekunde ya 30, uhamaji ulipungua chini ya %40 katika mazingira ya NaCl na KCl. Hata hivyo, karibu na 150–200 mOsm/kg mwendo zaidi ulihifadhiwa kuliko katika hali nyingine za osmolaliti ya juu.
Katika kiwango sawa cha osmolaliti, tofauti ndogo zinazotegemea muda na mkusanyiko zilionekana kati ya ioni hizi mbili:
- Katika 250 mOsm/kg na sekunde ya 10, NaCl ilitoa uhamaji wa juu kuliko KCl.
- Katika 200 mOsm/kg na sekunde ya 20, KCl ilionyesha uhamaji wa juu kuliko NaCl.
- Katika 250 mOsm/kg na sekunde ya 30, tofauti iliripotiwa pia kwa faida ya KCl.
- Katika 50 mOsm/kg na sekunde ya 10, NaCl iliongeza sehemu ya mbegu za kundi A zenye mwendo wa haraka zaidi ikilinganishwa na KCl.
Matokeo yanaonyesha kuwa ioni za Na⁺ au K⁺ hazifanyi kazi pekee kama “swichi ya kuwasha” kabisa; athari zao hutegemea osmolaliti, muda na kundi la mwendo wa mbegu.
Kwa nini mkusanyiko mdogo wa ioni unaweza kuwa na manufaa?
Mbegu za samaki wa maji baridi zinapohama kutoka plasma ya mbegu kwenda maji yenye osmolaliti ya chini, usawa wa ioni ndani na nje ya seli hubadilika ghafla. Kulingana na mjadala wa utafiti, kiwango cha chini cha K⁺ nje ya seli kinaweza kusaidia kutoka kwa K⁺ kutoka ndani ya seli na hyperpolarization ya utando. Mabadiliko haya ya umeme yanaweza kuwa mojawapo ya ishara za kwanza za uanzishaji wa mbegu.
Na⁺ inaweza kuchangia udhibiti wa pH ya ndani ya seli kupitia vibadilishaji Na⁺/H⁺ na mifumo mingine ya usafirishaji wa ioni katika seli ya mbegu. Kuongezeka kwa hali ya alkali ndani ya seli kunaweza kusaidia shughuli ya ATPase ya injini za dynein kwenye mkia na mipigo ya mkia.
Pia inadhaniwa kuwa uingiaji wa K⁺ na shughuli ya Na⁺/K⁺-ATPase vinaweza kusaidia kudumisha uwezo wa umeme wa utando na usawa wa K⁺ ndani ya seli baada ya mwendo kuanza.
Hata hivyo, utafiti huu haukupima moja kwa moja kiasi cha Na⁺ au K⁺ ndani ya seli, shughuli ya kibadilishaji Na⁺/H⁺, uwezo wa umeme wa utando au shughuli ya dynein ATPase. Maelezo haya ni tafsiri za kimakanika zinazolingana na matokeo ya kifiziolojia na data za omiki.
Mchanganyiko wa NaCl na KCl ulitoa matokeo gani?
Katika osmolaliti isiyobadilika ya 50 mOsm/kg, uwiano wa moli wa NaCl:KCl wa 7:1, 5:1, 3:1, 1:1, 1:3, 1:5 na 1:7 ulilinganishwa. Sekunde 10 baada ya uanzishaji, hakuna tofauti yenye maana ya kitakwimu iliyopatikana kati ya uwiano kwa upande wa uhamaji wa jumla.
Hata hivyo, makundi ya mwendo yalipochunguzwa, uwiano wa 7:1, 1:5 na 1:7 uliongeza sehemu ya mbegu zinazotembea kwa kasi katika kundi A. Matokeo haya yanaashiria kuwa uwiano tofauti wa Na⁺ na K⁺ unaweza kuathiri mgawanyo wa ubora wa mwendo bila kubadilisha asilimia ya jumla ya mbegu zinazotembea.
Matokeo yasiyo ya ulinganifu ya uwiano pia yanaonyesha kuwa hakuna uwiano mmoja rahisi wa Na⁺:K⁺ ulio bora. Utafiti haukujaribu uwiano huu katika majaribio halisi ya urutubishaji wa mayai.
Kwa nini Ca²⁺ ilitenda tofauti?
Katika spishi nyingi za wanyama, ishara ya Ca²⁺ ya ndani ya seli inayodhibitiwa ni muhimu kwa mwendo wa mbegu. Hata hivyo, Ca²⁺ nyingi katika mazingira ya nje si lazima iwe na manufaa. Katika majaribio ya samaki mandarin, miyeyusho ya uanzishaji yenye CaCl2 ilipunguza kwa kiasi kikubwa uhamaji katika sekunde ya 10 na ya 20.
Osmolaliti ya kiyeyusho cha CaCl2 ilipoongezeka, uhamaji ulipungua zaidi; katika kiwango cha 200–300 mOsm/kg, hasa katika sekunde ya 20, mwendo karibu ulitoweka kabisa.
Kwa mtazamo wa kwanza, matokeo haya yanaweza kuonekana kupingana na ongezeko la baadhi ya njia za uingiaji wa Ca²⁺ na protini za ishara za kalsiamu katika uchambuzi wa omiki. Hata hivyo, kuwepo kwa Ca²⁺ nyingi katika mazingira ya nje si sawa na ishara fupi na inayodhibitiwa ya Ca²⁺ ndani ya seli.
Katika modeli iliyopendekezwa na utafiti:
- Uingiaji mdogo wa Ca²⁺ kupitia njia fulani unaweza kusaidia uhamishaji wa ishara na udhibiti wa mkia.
- Pampu kama ATP2A na ATP2B zinaweza kuhamisha Ca²⁺ ya ziada kutoka sitoplazimu kwenda hifadhi za ndani ya seli au nje ya seli ili kudumisha usawa.
- Uingiaji mkubwa kupita kiasi wa Ca²⁺ kutoka mazingira ya nje unaweza kuvuruga usawa huu.
- Ca²⁺ nyingi inaweza kukandamiza mwendo wa kuteleza wa mikrotubuli za mkia au kuamsha njia za uharibifu wa seli zinazohusiana na mitokondria.
Modeli hii haiungi mkono hitimisho kwamba “Ca²⁺ haihitajiki kabisa.” Hitimisho sahihi zaidi ni kwamba katika mbegu za samaki mandarin kuongeza Ca²⁺ nyingi katika mazingira ya nje ya uanzishaji hukandamiza uhamaji, huku ishara ya Ca²⁺ ndani ya seli ikihitaji kudhibitiwa kwa uangalifu.
Uwiano wa 1:500 kwa Ca²⁺ unamaanisha nini?
CaCl2 ilichanganywa na NaCl au KCl katika uwiano tofauti wa moli. Uwiano wa CaCl2:NaCl/KCl uliotumiwa ulianzia 1:10 hadi 1:1000.
Sehemu ya Ca²⁺ ilipopungua, uhamaji wa mbegu uliongezeka. Katika mazingira ya CaCl2:NaCl, uwiano wa 1:200, 1:500 na 1:1000; na katika mazingira ya CaCl2:KCl hasa uwiano wa 1:500 na 1:1000 ulitoa uhamaji wa juu.
Waandishi walibainisha kuwa sehemu ya Ca²⁺ iliyo chini ya 1:500, yaani viwango vya Ca²⁺ vilivyo chini ya takriban 0,06 mM, haikuonyesha athari hasi yenye maana katika uhamaji.
Kizingiti hiki ni cha osmolaliti, uwiano wa chumvi na muda maalum wa kipimo uliotumiwa katika jaribio. Hakipaswi kutafsiriwa kuwa kizingiti cha kibayolojia kisichobadilika kwa vyanzo vyote vya maji au mifumo yote ya urutubishaji.
Kwa nini pH ilikuwa muhimu?
Njia za ioni, vimeng’enya na injini za mkia zinazozalisha mwendo wa mbegu zinaweza kuathiriwa na pH ya mazingira. Katika utafiti, kiyeyusho cha uanzishaji cha NaCl cha 50 mOsm/kg kilijaribiwa kati ya pH 4 na 11.
Sekunde 10 baada ya uanzishaji, uhamaji wa jumla wa juu zaidi ulionekana katika pH 8. Kwa upande wa makundi ya mwendo pia, pH 8:
- Iliongeza sehemu ya mbegu zinazosonga kwa kasi katika makundi A na B,
- Iliongeza jumla ya makundi ya mwendo wa kasi A+B,
- Ilipunguza sehemu ya mbegu zenye mwendo dhaifu katika kundi D.
Matokeo yanaonyesha kuwa mazingira yenye alkali kidogo yanaweza kusaidia uanzishaji wa mbegu za samaki mandarin. Hata hivyo, jaribio la pH lilifanywa tu katika hali ya NaCl na 50 mOsm/kg; thamani hiyo hiyo bora haijathibitishwa katika KCl, ugumu tofauti wa maji au mazingira halisi ya yai.
Kielelezo 1: Ramani ya kiufundi ya utafiti
Kielelezo 1 kinaonyesha utafiti katika vitalu vitatu vikuu. Kitalu cha kwanza kina usimamizi wa samaki wazazi dume, ukusanyaji wa mbegu na uteuzi wa sampuli zenye uhamaji wa awali zaidi ya %85.
Kitalu cha pili kina uchambuzi wa kifiziolojia uliofanywa kwa sampuli kutoka samaki dume 24. Sehemu hii inajumuisha:
- Majaribio ya osmolaliti ya 0–300 mOsm/kg,
- Ulinganisho wa sukrosi na chumvi bandia ya bahari,
- Majaribio ya NaCl, KCl na CaCl2,
- Uwiano wa ioni zilizounganishwa,
- Ulinganisho wa pH 4–11.
Kitalu cha tatu kinaonyesha ulinganisho wa transcriptomiki na proteomiki kati ya mbegu mpya na mbegu zilizoamilishwa. RNA-seq, LC-MS/MS, uchambuzi wa uonyeshaji tofauti, uboreshaji wa KEGG na GO, mtandao wa mwingiliano wa protini na mtandao jumuishi wa mRNA-njia-protini vimeunganishwa katika kitalu hiki.
Ulinganisho wa omiki ulifanywaje?
Kwa uchambuzi wa omiki, sampuli za mbegu mpya zilifafanuliwa kama FS, yaani fresh sperm; sampuli zilizoamilishwa kwa sekunde 60 katika maji baridi yaliyochujwa zilifafanuliwa kama kundi la AS, yaani activated sperm.
Katika vielelezo na majedwali ya data, sampuli tatu za uchambuzi kwa kila kundi zinaonyeshwa kama FS_1, FS_2, FS_3 na AS_1, AS_2 na AS_3. Sehemu ya mbinu inaeleza kuwa sampuli zilitokana na jumla ya samaki dume sita.
Mbegu zilizoamilishwa ziliachwa katika maji baridi kwa sekunde 60. Muda huu unajumuisha uanzishaji wa mapema, uhifadhi wa mwendo na kupungua kwa kiasi kikubwa kwa mwendo. Kwa kuzingatia kwamba katika jaribio la kifiziolojia uhamaji ulikuwa umeshuka hadi kiwango cha chini sana katika sekunde ya 30, kundi la AS haliwakilishi tu hali ya mbegu zenye mwendo wa kasi, bali pia matumizi ya nishati baada ya uanzishaji na kupungua kwa mwendo.
Kwa hiyo, inapaswa kuzingatiwa kuwa matokeo ya omiki hayatenganishi kwa uhakika “mabadiliko yanayoanzisha mwendo” na “mabadiliko yanayotokea wakati wa mwendo au baada yake.”
Uchambuzi wa transcriptomiki ulifanywaje?
RNA ya jumla ilitolewa kwa mbinu ya TRIzol, ubora wa RNA ulitathminiwa kwa Agilent 2100 Bioanalyzer, na mRNA yenye polyadenylation ilitajirishwa kwa chembe sumaku za oligo(dT). Maktaba za cDNA zilipangwa kwenye jukwaa la Illumina NovaSeq 6000.
Usomaji ghafi ulisafishwa kwa programu ya fastp; adapta, mfuatano wa ubora wa chini na maeneo ya poly-N yaliondolewa. Usomaji safi ulipangwa kwenye jenomu rejea ya S. chuatsi kwa HISAT 2.2.1, na transcript zikaunganishwa kwa StringTie 3.0.1.
Wingi wa jeni ulihesabiwa kwa kutumia RSEM katika kipimo cha FPKM. Jeni zenye uonyeshaji tofauti zilitambuliwa kwa DESeq2 na vizingiti viwili vilitumika pamoja:
- Kiwango cha ugunduzi wa uongo, FDR < 0,05
- |log2(mabadiliko ya mara)| > 1
Formula haijaandikwa moja kwa moja katika utafiti. Ili kueleza maana ya mabadiliko ya log2 yaliyoripotiwa, uhusiano wa msingi unaweza kuonyeshwa hivi:
\[ \log_2(\mathrm{FC})= \log_2\left( \frac{\text{aktive spermdeki göreli bolluk}} {\text{taze spermdeki göreli bolluk}} \right) \]
Hapa FC ni fold change, yaani mabadiliko ya mara. Thamani chanya ya log2FC inaonyesha ongezeko katika mbegu zilizoamilishwa, na thamani hasi inaonyesha kupungua. Formula hii si modeli mpya inayobadilisha matokeo ya utafiti; ni uhusiano wa msingi unaoeleza maana ya kipimo kilichotumika.
Ubora wa data za RNA-seq ulikuwaje?
Jumla ya usomaji ghafi 264.432.676 ulipatikana kutoka sampuli sita. Baada ya uchujaji, usomaji safi 245.324.144 ulibaki na %92,77 ya usomaji ghafi ikatumika katika uchambuzi.
| Kipimo cha ubora wa RNA-seq | Matokeo yaliyoripotiwa |
|---|---|
| Jumla ya usomaji ghafi | 264.432.676 |
| Jumla ya usomaji safi | 245.324.144 |
| Asilimia ya usomaji safi | %92,77 |
| Kiasi cha besi safi kwa kila sampuli | 6,02–6,32 Gbp |
| Maudhui ya GC | %50,23–51,41 |
| Q20 | Zaidi ya %97 |
| Q30 | Zaidi ya %92 |
| Kiwango cha upangaji wa jumla kwenye jenomu | %66,97–78,92 |
| Kiwango cha upangaji wa kipekee | %56,88–70,95 |
Baada ya kuunganisha transcript, jumla ya jeni 23.673 zilitambuliwa, ambapo 22.630 zilikuwa jeni zinazojulikana na 1.043 ziliainishwa kuwa mpya.
Ni mabadiliko gani yalipatikana katika transcriptomu?
Jumla ya jeni 855 zenye uonyeshaji tofauti zilitambuliwa kati ya mbegu zilizoamilishwa na mbegu mpya:
- Wingi wa jeni 625 uliongezeka.
- Wingi wa jeni 230 ulipungua.
Jeni zinazohusishwa na njia za ioni kama cacna1c, grin3bb na chrna7 zilikuwa miongoni mwa jeni zilizoonyesha ongezeko kubwa.
Katika uchambuzi wa mtandao wa mwingiliano wa protini kwa protini, CYTB, COX1 na ATP6 zimeonyeshwa kwenye kielelezo kama nodi kuu za mitokondria. Katika sehemu moja ya maandishi makuu, jina CYTB limeandikwa kama “GYTB”; huu ni mmoja wa utofauti wa majina unaohitaji kufafanuliwa katika preprint.
Katika uchambuzi wa KEGG, njia 25 zenye maana zilitambuliwa. Jeni zilizoongezeka zilitajirika hasa katika fosforilesheni oksidativi; jeni zilizopungua zilitajirika katika njia ya ishara ya PPAR.
Katika uchambuzi wa GO, istilahi 60 zenye maana zilitambuliwa:
- Michakato 28 ya kibayolojia,
- Vipengele 8 vya seli,
- Istilahi 24 za kazi za kimolekuli.
Jeni zilizoongezeka zilitajirika katika kazi za kufunga ioni, kufunga ATP na kufunga lipid; jeni zilizopungua zilitajirika katika udhibiti wa michakato ya kimetaboliki na istilahi za ishara.
Kielelezo 3 kinaonyeshaje matokeo ya transcriptomu?
Matrix ya uhusiano wa Pearson katika Kielelezo 3A inaonyesha kufanana kati ya sampuli za kibayolojia. Ingawa thamani za uhusiano kati ya sampuli kwa ujumla ni kubwa, kuna pia ufanano mkubwa kati ya baadhi ya sampuli mpya na zilizoamilishwa.
Katika grafu ya volcano ya Kielelezo 3B, nukta nyekundu zinaonyesha jeni zilizoongezeka na nukta za bluu zinaonyesha jeni zilizopungua. grin3bb, chrna7 na cacna1c zimeangaziwa hasa kwa sababu ya kiwango kikubwa cha ongezeko na umuhimu wa kitakwimu.
Mtandao wa mwingiliano katika Kielelezo 3C unaonyesha nafasi iliyounganishwa ya nodi kama COX1, ATP6 na CYTB zinazohusishwa na uzalishaji wa nishati wa mitokondria.
Grafu za viputo za KEGG na GO katika Vielelezo 3D na 3E zinaonyesha kuwa mada kama fosforilesheni oksidativi, protini za injini, kufunga ioni, shughuli ya injini ya mikrotubuli na mwendo wa seli zinahusishwa na mabadiliko katika mbegu zilizoamilishwa.
Uchambuzi wa proteomiki ulifanywaje?
Protini za mbegu zilitolewa kwa bafa yenye 6 M urea, vifungo vya disulfidi vikapunguzwa kwa DTT na cysteine zikatiwa alkyl kwa iodoacetamide. Kiasi cha protini kilipimwa kwa mbinu ya Bradford, na sampuli zikakatwa kuwa peptidi kwa trypsin.
Peptidi zilisafishwa kwa koloni za C18 na kuchambuliwa katika spectrometer ya molekuli ya Orbitrap Astral iliyounganishwa na mfumo wa Vanquish Neo UHPLC. Kipimo kilifanywa kwa hali ya data-independent acquisition, yaani DIA.
Data zilichambuliwa kwa DIA-NN dhidi ya hifadhidata ya protini ya S. chuatsi. Q-value ya 0,01 ilitumika katika utambuzi wa peptidi na protini.
Kwa protini zenye wingi tofauti:
- P < 0,05,
- FC > 1,20 au FC < 0,83 vilitumika kama vizingiti.
Maana ya msingi ya mabadiliko ya mara katika proteomiki inaweza kuonyeshwa kwa madhumuni ya ufafanuzi kama ifuatavyo:
\[ \mathrm{FC}= \frac{\text{aktive spermdeki protein bolluğu}} {\text{taze spermdeki protein bolluğu}} \]
FC ikiwa kubwa kuliko 1, protini iliongezeka katika mbegu zilizoamilishwa; ikiwa chini ya 1, ilipungua. Ingawa thamani ya 0,83 imetolewa kwa PGM1 katika jedwali, protini imeonyeshwa katika kundi la zilizopungua. Hali hii inaweza kutokana na kuzungushwa kwa thamani iliyo karibu na kizingiti; hata hivyo, kwa kuwa PDF haitoi tarakimu zaidi za desimali, sababu halisi haiwezi kuthibitishwa.
Ni mabadiliko gani yalipatikana katika proteomu?
Katika uchambuzi wa proteomiki, protini 4.037 zilitambuliwa kutoka peptidi 39.611. Uchambuzi wa PCA ulitenganisha makundi ya mbegu mpya na zilizoamilishwa.
Jumla ya protini 752 zenye wingi tofauti zilitambuliwa:
- Protini 297 ziliongezeka.
- Protini 455 zilipungua.
ITPR1, ATP2A, ATP2B, VDAC1, VDAC2, VDAC3, CACNA1H, ATP1B na PRKCB zilikuwa miongoni mwa protini zinazohusishwa na njia na usafirishaji wa ioni zilizobadilika.
Katika uchambuzi wa mtandao wa mwingiliano wa protini, protini sita kuu zilitambuliwa:
- NDUFB9
- NDUFS3
- NDUFV2
- DDOST
- RPN1
- TKTB
Uhusiano wa protini kuu za familia ya NDUF na mnyororo wa usafirishaji wa elektroni wa mitokondria unaunga mkono umuhimu wa kimetaboliki ya nishati baada ya uanzishaji.
Matokeo ya KEGG na GO katika proteomiki
Katika uchambuzi wa KEGG, njia 62 zenye maana zilipatikana. Protini zilizoongezeka zilitajirika katika:
- Fosforilesheni oksidativi,
- Njia za jumla za kimetaboliki,
- Njia ya ishara ya cAMP,
- Njia ya ishara ya kalsiamu.
Protini zilizopungua zilitajirika katika:
- Glikolisi/glukoneojenesi,
- Njia za usanisi wa asidi amino.
Katika uchambuzi wa GO, istilahi 172 zenye maana zilitambuliwa:
- Michakato 112 ya kibayolojia,
- Vipengele 10 vya seli,
- Istilahi 50 za kazi za kimolekuli.
Protini zilizoongezeka zilitajirika katika fosforilesheni oksidativi, mchakato wa kimetaboliki ya ATP, usafirishaji wa ioni, usafirishaji wa cation na usafirishaji wa protoni; protini zilizopungua zilijikita katika glikolisi na kimetaboliki ya wanga.
Kielelezo 4 kinaonyeshaje matokeo ya proteomu?
Katika grafu ya PCA ya Kielelezo 4A, sampuli za mbegu mpya na zilizoamilishwa zinakusanyika katika maeneo tofauti. Utengano huu unaonyesha kuwa kuna mabadiliko ya jumla katika wasifu wa protini baada ya uanzishaji.
Katika grafu ya volcano ya Kielelezo 4B, protini zinazodhibiti ioni kama ATP2A, ATP2B, CACNA1H, ATP1B, PRKCB, VDAC1, VDAC3 na ITPR1 zimeangaziwa.
Mitandao ya mwingiliano katika Kielelezo 4C inaonyesha makundi tofauti yanayohusiana na mnyororo wa usafirishaji wa elektroni wa mitokondria, uchakataji wa protini na kimetaboliki ya glikolisi.
Katika Kielelezo 4D, fosforilesheni oksidativi, thermogenesis na njia za kimetaboliki; na katika Kielelezo 4E, mnyororo wa usafirishaji wa elektroni, usanisi wa ATP, upumuaji wa seli na shughuli za visafirishaji vya transmembrane vinaonekana kuwa muhimu.
Transcriptomu na proteomu ziliunganishwaje?
Watafiti walijenga mtandao wa mRNA-njia-protini unaojumuisha njia sita kuu za KEGG, jeni 64 zenye uonyeshaji tofauti na protini 185 zenye wingi tofauti.
Njia sita muhimu katika mtandao huu ni:
- Njia ya ishara ya cAMP,
- Njia ya ishara ya kalsiamu,
- Fosforilesheni oksidativi,
- Uvunjaji wa asidi ya mafuta,
- Glikolisi/glukoneojenesi,
- Njia za jumla za kimetaboliki.
Protini ATP2A, ATP1B na ATP2B zilihusishwa na ishara za cAMP na kalsiamu. pfkpa na LOC122879941 zilihusishwa na glikolisi/glukoneojenesi na njia za jumla za kimetaboliki.
Katika Kielelezo 5, poligoni za kijani zinaonyesha njia za kibayolojia, nodi nyeupe zenye mpaka mwekundu zinaonyesha mRNA zilizoongezeka, nodi nyeupe zenye mpaka wa bluu zinaonyesha mRNA zilizopungua, nodi za machungwa zinaonyesha protini zilizoongezeka na nodi za bluu zilizojazwa zinaonyesha protini zilizopungua.
Msongamano mkubwa wa mtandao unaonyesha kuwa njia nyingi hubadilika kwa wakati mmoja badala ya kuwepo kwa utaratibu mmoja wa mstari. Hata hivyo, miunganisho ya mtandao inategemea ulinganifu wa hifadhidata na uboreshaji wa kitakwimu; si miunganisho yote iliyothibitishwa kwa majaribio kuwa mwingiliano wa kimwili katika mbegu za samaki mandarin.
Jeni sita zilizoangaziwa
| Jeni | Log2FC | Mabadiliko | Mchakato unaohusishwa katika utafiti |
|---|---|---|---|
| grin3bb | 5,33 | Ongezeko | Kitengo kidogo cha NMDAR kinachohusishwa na uingiaji wa Na⁺ na Ca²⁺ kutoka nje ya seli |
| cacna1c | 1,37 | Ongezeko | Njia ya Ca²⁺ ya aina ya L inayotegemea voltage |
| chrna7 | 5,95 | Ongezeko | Kipokezi cha nikotini asetilikolini chenye upenyezaji wa Ca²⁺ |
| pfkpa | −1,04 | Kupungua | Glikolisi; 6-phosphofructokinase 1 |
| atp6 | 1,86 | Ongezeko | Fosforilesheni oksidativi ya mitokondria |
| atp6v1f | 1,04 | Ongezeko | Kitengo kidogo cha ATPase cha aina ya V kinachosafirisha protoni |
Modeli ya kimolekuli ya ishara za Na⁺ na K⁺
Jeni grin3bb husimba kitengo kidogo cha familia ya vipokezi vya NMDA. Kulingana na tafsiri ya utafiti, vipokezi hivi vinaweza kuchangia upitishaji wa Na⁺ na Ca²⁺.
Protini ATP1B ni vitengo vidogo vya beta vya Na⁺/K⁺-ATPase. Rekodi mbili za protini ATP1B ziliongezeka mara 1,42 na 1,59, mtawalia, katika mbegu zilizoamilishwa. Na⁺/K⁺-ATPase inaweza kuchangia kudumisha viwango vya Na⁺ na K⁺ katika utando wa seli.
Kulingana na modeli iliyopendekezwa na waandishi, kutoka kwa ioni na hyperpolarization ya utando inayosababishwa na mazingira yenye osmolaliti ya chini kunaweza kufanya kazi pamoja na mifumo ya usafirishaji wa Na⁺ na K⁺ ili kusaidia kuanza na kuhifadhi mwendo kwa muda mfupi.
Hata hivyo, mkondo wa pampu ya Na⁺/K⁺-ATPase, upitishaji wa njia za ioni au mkusanyiko wa ioni ndani ya seli haukupimwa moja kwa moja katika utafiti.
Modeli ya kimolekuli ya ishara za Ca²⁺
Mabadiliko makuu yanayohusishwa na udhibiti wa Ca²⁺ ni:
- Ongezeko la jeni cacna1c na chrna7,
- Ongezeko la mara 2,50 katika protini CACNA1H,
- Ongezeko la mara 1,57–1,64 katika protini ATP2A,
- Ongezeko la mara 1,40–1,45 katika protini ATP2B,
- Ongezeko la mara 1,60 katika protini PRKCB,
- Kupungua kwa protini ITPR1 hadi mara 0,20,
- Ongezeko la mara 1,36–1,40 katika protini VDAC1, VDAC2 na VDAC3.
CACNA1H ni sehemu ya njia ya Ca²⁺ ya aina ya T inayotegemea voltage. CHRNA7, kama kipokezi chenye upenyezaji mkubwa wa Ca²⁺, inaweza kuchangia uingiaji wa Ca²⁺ ndani ya seli.
Kuongezeka kwa Ca²⁺ ndani ya seli kunaweza kuathiri njia ya ishara ya PKC na fosforilesheni ya protini zinazohusiana na mkia kupitia PRKCB.
ATP2A husafirisha Ca²⁺ kwenda hifadhi za ndani ya seli zinazofanana na retikulamu ya endoplasma/sarcoplasma. ATP2B husukuma Ca²⁺ nje ya seli kupitia utando wa plasma. Kuongezeka kwa makundi haya mawili ya protini kunaonyesha kuwa wakati wa uanzishaji kiwango cha Ca²⁺ hakiongezwi tu, bali pia hujaribiwa kudhibitiwa haraka.
Kupungua kwa ITPR1 kumehusishwa na kukandamizwa kwa kutolewa kwa Ca²⁺ kutoka hifadhi za ndani ya seli. Ongezeko la protini za VDAC limetathminiwa na waandishi kama kiungo kinachowezekana kati ya Ca²⁺ nyingi na ishara za kifo cha seli za mitokondria.
Matokeo haya yanaunda modeli ya pande mbili inayoashiria kuwa ishara ya chini na inayodhibitiwa ya Ca²⁺ ndani ya seli inaweza kushiriki katika udhibiti wa mwendo, huku mzigo mkubwa wa Ca²⁺ kutoka mazingira ya nje ukiweza kukandamiza mwendo.
Ni nini kilibadilika katika kimetaboliki ya nishati?
Mwendo wa mkia wa mbegu unahitaji ATP. Utafiti uliripoti kuwa baada ya uanzishaji jeni moja na protini nyingi zinazohusiana na glikolisi zilipungua:
- pfkpa
- PGM1
- PGM2
- ALDOB
- GAPDHS
- PGK1
- ENO1B
- Isoformu za PKMA
Kinyume chake, protini ACSL, ACSL4 na CPT1A zinazohusiana na kimetaboliki ya asidi ya mafuta ziliongezeka. CPT1A ni mojawapo ya protini kuu zinazohusika katika kusafirisha asidi ya mafuta yenye minyororo mirefu kwenda mitokondria ili kuingia katika beta-oxidation.
Jeni mbili na protini kumi za vitengo vidogo vya ATPase zinazohusiana na fosforilesheni oksidativi pia ziliongezeka. Mabadiliko ya mara ya protini yaliyoripotiwa yalikuwa kati ya 1,34 na 4,98.
Watafiti walieleza muundo huu kwa mabadiliko yafuatayo ya kimetaboliki:
- Kabla ya uanzishaji, matumizi ya glycogen na glikolisi huwa dhahiri zaidi,
- Baada ya uanzishaji, glikolisi hupungua,
- Uvunjaji wa asidi ya mafuta huongezeka,
- Uzalishaji wa ATP kupitia fosforilesheni oksidativi ya mitokondria huimarika.
Ili kueleza mantiki ya utafiti, uhusiano wa msingi wa kibayokemia wa matumizi ya ATP unaweza kuonyeshwa hivi:
\[ \mathrm{ATP}+\mathrm{H_2O} \rightarrow \mathrm{ADP}+\mathrm{P_i}+\text{kullanılabilir enerji} \]
Hapa ATP ni molekuli inayobeba nishati katika seli, ADP ni bidhaa yenye nishati ya chini zaidi na Pi ni fosfati isokaboni. Injini za mkia hubadilisha nishati inayotolewa na hidrolisisi ya ATP kuwa mwendo wa kimekanika. Mlinganyo huu haukutolewa katika PDF kama formula ya matokeo; umeongezwa ili kueleza maana ya msingi ya kimetaboliki ya nishati.
Je, kupungua kwa glikolisi kunamaanisha mwendo unapungua?
Hapana. Kupungua kwa njia moja ya nishati hakumaanishi lazima uzalishaji wa jumla wa ATP umepungua. Katika utafiti, vipengele vya glikolisi vilipungua huku vipengele vya uvunjaji wa asidi ya mafuta na fosforilesheni oksidativi vikiongezeka.
Watafiti walitafsiri hali hii kama kuanza kwa usambazaji wa nishati kutoka chanzo tofauti cha kimetaboliki. Hata hivyo:
- Mkusanyiko wa ATP haukupimwa.
- Kasi ya matumizi ya oksijeni haikupimwa.
- Kasi ya oksidishaji wa asidi ya mafuta haikupimwa.
- Mtiririko wa glikolisi haukupimwa moja kwa moja.
- Hakuna uchambuzi wa metabolite au ufuatiliaji wa isotopu uliofanywa.
Kwa hiyo, “mabadiliko ya uhakika ya kimetaboliki kutoka glikolisi kwenda uvunjaji wa asidi ya mafuta” si ushahidi wa moja kwa moja wa mtiririko, bali ni tafsiri ya kimakanika inayotokana na muundo wa wingi wa jeni na protini.
Utaratibu jumuishi unaopendekezwa na Kielelezo 6
Kielelezo 6 kinaunganisha matokeo ya kifiziolojia na omiki ya utafiti katika mchoro mmoja. Sehemu ya juu ya mchoro inaonyesha ishara za Na⁺, K⁺ na Ca²⁺; sehemu ya chini inaonyesha kimetaboliki ya nishati.
Mchakato uliopendekezwa unaweza kusomwa kwa mpangilio huu:
- Osmolaliti ya chini hubadilisha usawa wa ioni katika utando wa mbegu.
- Harakati za Na⁺, K⁺ na kiasi kidogo cha Ca²⁺ hudhibitiwa na njia na pampu za ioni.
- Ishara ya Ca²⁺ inaweza kuunganishwa na njia ya PKC.
- ATP2A na ATP2B huchangia kudhibiti kiwango cha Ca²⁺ katika sitoplazimu.
- Ca²⁺ nyingi inaweza kuhusishwa na uharibifu wa mitokondria au apoptosis inayohusiana na VDAC.
- Vipengele vinavyohusiana na glikolisi hupungua.
- Uvunjaji wa asidi ya mafuta na utoaji wa acetyl-CoA kwa mzunguko wa TCA unaweza kuongezeka.
- Fosforilesheni oksidativi husaidia uzalishaji wa ATP na hivyo kudumisha mwendo wa mkia.
Katika kielelezo, baadhi ya miunganisho ina alama “???”. Alama hizi zinaonyesha wazi kuwa watafiti bado hawajatambua njia au utaratibu husika. Kwa hiyo, kielelezo si njia kamili iliyothibitishwa bali ni mtandao wa udhibiti wa kinadharia ulioundwa kutoka data zilizopo.
Hali zilizopendekezwa kwa urutubishaji wa bandia
Kwa kuzingatia majaribio ya kifiziolojia, waandishi wanapendekeza hali za kuanzia zifuatazo kwa urutubishaji wa bandia:
- %0,1–0,15, yaani 1–1,5‰ NaCl, KCl au mchanganyiko wake,
- Kuweka jumla ya mkusanyiko wa Na⁺/K⁺ chini ya 25 mM,
- Kuepuka mkusanyiko mkubwa wa Ca²⁺,
- Ikiwezekana kuweka kiwango cha Ca²⁺ chini ya 0,06 mM,
- Kutathmini mazingira yenye alkali kidogo, takriban pH 8.
Mapendekezo haya yametokana na vipimo vya uhamaji wa mbegu. Utafiti haukupima:
- Asilimia ya urutubishaji wa mayai,
- Kiwango cha kuishi kwa kiinitete,
- Kiwango cha kuanguliwa kwa vifaranga,
- Afya ya larva,
- Athari ya muundo wa maji katika hali za uwanjani.
Kwa hiyo, matokeo ni sehemu nzuri ya kuanzia ya majaribio kwa maendeleo ya itifaki ya urutubishaji wa bandia; si kiwango cha uzalishaji kilichothibitishwa moja kwa moja.
Umuhimu kwa mtazamo wa zamani
Tafiti za awali kuhusu uhamaji wa mbegu za samaki zimeonyesha kwa spishi tofauti athari za osmolaliti, Na⁺, K⁺ na Ca²⁺ kila moja kivyake. Kwa samaki mandarin, data zinazounganisha vigezo hivi vya mazingira ya nje na mitandao ya jeni na protini ndani ya utafiti mmoja zilikuwa chache.
Utafiti huu umeunganisha kipimo cha kifiziolojia cha mwendo na transcriptomiki pamoja na proteomiki, na hivyo kujenga mfumo jumuishi kati ya mazingira ya nje na mwitikio wa kimolekuli ndani ya seli.
Umuhimu kwa mtazamo wa sasa
Utafiti unaonyesha kuwa uhamaji wa mbegu hautegemei tu kama maji ni “baridi” au “yenye chumvi.” Miyeyusho ya sukrosi, chumvi bandia ya bahari, NaCl, KCl na CaCl2 yenye osmolaliti sawa inaweza kutoa matokeo tofauti.
Ugunduzi huu unaonyesha kuwa katika miyeyusho ya urutubishaji wa bandia, aina ya ioni, uwiano wa ioni, pH na muda wa kipimo vinapaswa kutathminiwa pamoja na osmolaliti ya jumla.
Zaidi ya hayo, ukweli kwamba Ca²⁺ inaweza kuwa ishara muhimu ndani ya seli lakini ikakandamiza mwendo inapokuwa nyingi katika mazingira ya nje unaonyesha kuwa ioni haziwezi kuainishwa kwa mwelekeo mmoja kuwa “zenye manufaa” au “zenye madhara.”
Umuhimu kwa mtazamo wa baadaye
Ili kuthibitisha mtandao wa kimolekuli uliopendekezwa na utafiti, kama watafiti wenyewe wanavyoeleza, mbinu zifuatazo zinahitajika:
- Kupima mikondo ya njia za ioni kwa electrophysiology,
- Upigaji picha wa Na⁺, K⁺ na Ca²⁺ ndani ya seli,
- Vipimo vya uwezo wa umeme wa utando,
- Uthibitishaji wa wingi wa protini kwa Western blot,
- Kutambua maeneo ya protini katika mbegu kwa immunocytochemistry,
- In situ hybridization,
- Vipimo vya ATP na upumuaji wa mitokondria,
- Uchambuzi wa oksidishaji wa asidi ya mafuta na mtiririko wa glikolisi,
- Majaribio ya vizuizi vya njia za ioni au utendaji wa jeni,
- Majaribio halisi ya urutubishaji wa bandia na kuanguliwa kwa vifaranga.
Kuchukua sampuli tofauti za omiki katika sekunde 5, 10, 20, 30 na 60 baada ya uanzishaji pia kunaweza kusaidia kutenganisha mabadiliko yanayotokea mwendo unapoanza na yale yanayotokea nishati inapopungua.
Athari inayowezekana kwa ufugaji wa viumbe vya majini
Kwa kuwa uhamaji wa mbegu za samaki mandarin hupotea kwa kiasi kikubwa ndani ya takriban sekunde 30, muda ni muhimu katika shughuli za hatchery. Kuandaa kiyeyusho cha uanzishaji mapema, kutochelewesha mchanganyiko wa mbegu na yai, na kudhibiti kiwango cha Ca²⁺ kunaweza kusaidia kusawazisha itifaki za urutubishaji.
Hata hivyo, ugumu wa vyanzo asilia vya maji, Mg²⁺ na ioni nyingine zenye valensi mbili, joto, msongamano wa mbegu, ubora wa mayai na tofauti kati ya samaki dume binafsi zinaweza pia kuathiri matokeo. Utafiti haukujaribu moja kwa moja ioni nyingine kama Mg²⁺, Mn²⁺, Sr²⁺, Cd²⁺ na Ba²⁺.
Nguvu za utafiti
- Data za kifiziolojia, transcriptomiki na proteomiki zimeunganishwa katika mfumo mmoja wa utafiti.
- Mbegu kutoka samaki dume 24 zilitumiwa katika majaribio ya kifiziolojia.
- Ni sampuli zisizochafuliwa zenye uhamaji wa awali zaidi ya %85 pekee zilizotathminiwa.
- Athari ya osmolaliti ililinganishwa katika sukrosi isiyo na ioni na chumvi bandia ya bahari yenye ioni nyingi.
- NaCl, KCl na CaCl2 zilichunguzwa kila moja kivyake.
- Uwiano wa Na⁺:K⁺ na Ca²⁺:Na⁺/K⁺ ulilinganishwa kwa utaratibu.
- Uhamaji ulipimwa tofauti katika sekunde 10, 20 na 30.
- Thamani za ubora Q20 na Q30 za data za RNA-seq zilikuwa kubwa.
- Uchambuzi wa proteomiki ulifanywa kwa Orbitrap Astral yenye azimio la juu na mkabala wa DIA.
- Matokeo ya jeni na protini yalitathminiwa kwa uchambuzi wa KEGG, GO na PPI.
- Data ghafi za transcriptomiki na proteomiki zimewekwa katika hifadhidata wazi.
- Maandishi yanaeleza wazi kuwa matokeo ni modeli ya kinadharia na yanahitaji uthibitishaji zaidi.
Mapungufu ya utafiti
- Utafiti ni preprint ambayo haijapitiwa na wahakiki wenzao.
- Urutubishaji halisi, ukuaji wa kiinitete na mafanikio ya kuanguliwa kwa vifaranga havikupimwa.
- Majaribio ya ioni yalikuwa na kikomo cha uhamaji wa mbegu; yai au mwingiliano wa mbegu na yai haukuchunguzwa.
- Ulinganisho wa omiki haukufanywa kwa makundi tofauti ya ioni, bali kati ya mbegu mpya na mbegu zilizoamilishwa kwa sekunde 60 katika maji baridi pekee.
- Kwa hiyo, haijaonyeshwa moja kwa moja kwamba mabadiliko fulani ya jeni na protini yalisababishwa pekee na Na⁺, K⁺ au Ca²⁺.
- Kundi la mbegu zilizoamilishwa kwa sekunde 60 linajumuisha kupungua kwa mwendo na uwezekano wa kuisha kwa nishati pamoja na uanzishaji wa mapema.
- Haijatenganishwa ikiwa mabadiliko ya omiki yanawakilisha transcription mpya, uthabiti wa RNA, mzunguko wa protini au tofauti ya uwezekano wa kuchambuliwa.
- Mkusanyiko wa ioni ndani ya seli haukupimwa moja kwa moja.
- Mikondo ya njia za ioni au uwezo wa umeme wa utando haukupimwa.
- Kiasi cha ATP, matumizi ya oksijeni na upumuaji wa mitokondria havikupimwa.
- Mabadiliko kutoka glikolisi kwenda uvunjaji wa asidi ya mafuta hayakuthibitishwa kwa uchambuzi wa mtiririko wa kimetaboliki.
- Jeni na protini zilizoangaziwa hazijathibitishwa kwa Western blot, immunocytochemistry au majaribio ya kupoteza utendaji.
- Vizingiti vya makundi ya mwendo A, B, C na D vya ISAS havijatolewa katika PDF.
- Jaribio la pH lilifanywa tu katika mazingira ya NaCl ya 50 mOsm/kg.
- Kizingiti cha 0,06 mM cha Ca²⁺ kinategemea uwiano maalum wa majaribio.
- Utofauti wa kijenetiki au kifiziolojia kati ya samaki dume haukuchunguzwa kwa kina.
- Kwa kuwa chumvi bandia ya bahari ina ioni nyingi, haiwakilishi athari ya ioni moja pekee.
- Katika maelezo ya Kielelezo 2D muda wa kipimo umetolewa kuwa sekunde 10, ilhali katika maandishi ya matokeo ulinganisho huohuo umeelezwa kuwa sekunde 20.
- Jeni kuu ya PPI imeonyeshwa kama GYTB katika sehemu moja ya maandishi makuu na kama CYTB kwenye kielelezo.
- Ingawa kizingiti cha protini kimetajwa kuwa FC < 0,83, PGM1 imeonyeshwa katika jedwali miongoni mwa protini zilizopungua ikiwa na thamani ya 0,83.
Utafiti unasema nini?
- Mbegu za samaki mandarin huamilishwa katika osmolaliti iliyo chini sana kuliko plasma ya mbegu.
- Kiwango cha 0–150 mOsm/kg kinaweza kusaidia uhamaji wa juu katika uanzishaji wa mapema.
- 50 mOsm/kg ni hali inayofaa na thabiti ya uanzishaji katika majaribio tofauti.
- Uhamaji wa mbegu hupungua kwa kiasi kikubwa ndani ya sekunde 30.
- NaCl na KCl zenye mkusanyiko mdogo husaidia mwendo wa mbegu.
- Uwiano wa NaCl na KCl unaweza kuathiri makundi ya ubora wa mwendo.
- Kuongezwa kwa CaCl2 hukandamiza uhamaji wa mbegu.
- Viwango vya Ca²⁺ chini ya takriban 0,06 mM havikuonyesha athari hasi yenye maana katika hali za utafiti.
- pH 8 ilitoa thamani bora zaidi ya uhamaji katika mazingira ya NaCl ya 50 mOsm/kg.
- Baada ya uanzishaji wa mbegu, wingi wa jeni na protini zinazohusiana na usafirishaji wa ioni na ishara za kalsiamu hubadilika.
- Vipengele vya glikolisi hupungua huku vipengele vya uvunjaji wa asidi ya mafuta na fosforilesheni oksidativi vikiongezeka.
- Jeni sita na protini 35 zimeangaziwa kama wadhibiti wakuu wanaowezekana.
Utafiti hausimi nini?
- Hauonyeshi kwamba kiyeyusho cha uanzishaji kilichopendekezwa huongeza kwa uhakika kiwango cha urutubishaji.
- Hauonyeshi kwamba pH 8 au 50 mOsm/kg ni optimum isiyobadilika kwa hatchery zote.
- Hauonyeshi kwamba Ca²⁺ haihitajiki kabisa katika seli ya mbegu.
- Hauthibitishi jukumu la moja kwa moja la kisababishi la kila njia ya ioni au protini.
- Hauonyeshi kwamba ongezeko la VDAC husababisha moja kwa moja apoptosis ya mbegu.
- Haukipimi moja kwa moja mabadiliko ya mtiririko wa kimetaboliki kutoka glikolisi kwenda uvunjaji wa asidi ya mafuta.
- Hauonyeshi kwamba mabadiliko yote ya omiki ndiyo sababu ya mwendo wa kwanza.
- Hautoi dhamana kuhusu usalama wa yai, kiinitete au kifaranga katika urutubishaji wa bandia.
- Hautathmini mafanikio ya hatchery ya kibiashara au faida ya kiuchumi.
Mbinu na Matokeo ya Utafiti
Muhtasari wa kiufundi wa muundo wa majaribio
| Hatua | Sampuli au hali | Mbinu iliyotumika | Lengo kuu |
|---|---|---|---|
| Usimamizi wa wazazi | Samaki mandarin dume waliokomaa | 23–28°C, oksijeni iliyoyeyushwa > 6 mg/L, fotoperiodi ya asili | Kupata sampuli ya mbegu yenye afya |
| Uteuzi wa mbegu | Uhamaji wa awali > %85 | Masaji ya tumbo, kuhifadhi katika 4°C | Kutumia sampuli zisizochafuliwa na zenye ubora wa juu |
| Uchambuzi wa kifiziolojia | Samaki dume 24 | Kipimo cha mwendo kwa ISAS v2.0 katika sekunde 10, 20 na 30 | Kutambua athari za osmolaliti, ioni na pH |
| Jaribio la osmolaliti | 0–300 mOsm/kg | Sukrosi na chumvi bandia ya bahari | Kulinganisha athari safi ya kiosmotiki na athari ya ioni nyingi |
| Jaribio la ioni moja | NaCl, KCl na CaCl2 | Viwango tofauti vya osmolaliti | Kutathmini athari za ioni moja moja |
| Jaribio la ioni zilizounganishwa | Uwiano wa NaCl:KCl na CaCl2:NaCl/KCl | 50 mOsm/kg, sekunde ya 10 | Kutambua uwiano wa ioni na kizingiti cha Ca²⁺ |
| Jaribio la pH | pH 4–11 | 50 mOsm/kg NaCl | Kutathmini pH inayofaa kwa mwendo |
| Transcriptomiki | Sampuli za FS na AS zilizoamilishwa kwa sekunde 60 | Illumina NovaSeq 6000 RNA-seq | Kutambua jeni zenye uonyeshaji tofauti |
| Proteomiki | Ulinganisho huo huo wa FS na AS | UHPLC-Orbitrap Astral DIA LC-MS/MS | Kutambua protini zenye wingi tofauti |
| Bioinformatiki | Orodha za DEG na DEP | KEGG, GO, STRING, Cytoscape | Kujenga mtandao wa udhibiti wa ioni na nishati |
Muhtasari wa pamoja wa matokeo ya kifiziolojia
| Kigezo | Matokeo kuu | Tafsiri ya kiufundi |
|---|---|---|
| Osmolaliti ya plasma ya mbegu | 367–380 mOsm/kg | Mbegu huwekwa bila mwendo katika mazingira ya plasma yenye osmolaliti ya juu. |
| 0–150 mOsm/kg | Uhamaji mara nyingi > %70 katika sekunde ya 10 | Osmolaliti ya chini hutoa uanzishaji wenye nguvu. |
| 50 mOsm/kg | Uanzishaji wa juu na thabiti katika miyeyusho tofauti | Ilichaguliwa kwa majaribio yaliyofuata ya ioni na pH. |
| 150–200 mOsm/kg | Mwanzo mdogo zaidi, lakini katika baadhi ya hali mwendo zaidi kiasi katika sekunde ya 30 | Kunaweza kuwa na uwiano kati ya nguvu ya mwanzo na uhifadhi wa mwendo kwa muda mfupi. |
| NaCl na KCl | Uhamaji wa juu katika mkusanyiko mdogo | Na⁺ na K⁺ zinaweza kuchangia homeostasis ya ioni. |
| CaCl2 | Kukandamiza sana katika sekunde 10 na 20 | Ca²⁺ nyingi katika mazingira ya nje huzuia mwendo. |
| CaCl2:NaCl/KCl ≤ 1:500 | Hakuna athari hasi yenye maana katika kiwango cha Ca²⁺ < 0,06 mM | Inapendekezwa kuweka mfiduo wa Ca²⁺ chini. |
| Uwiano wa NaCl:KCl | Uhamaji wa jumla unafanana; kundi A liliongezeka katika baadhi ya uwiano | Uwiano wa ioni unaweza kuathiri ubora wa mwendo. |
| pH 8 | Uhamaji wa juu zaidi na sehemu kubwa ya kundi la kasi | Mazingira yenye alkali kidogo yanaonekana kuwa na manufaa. |
Muhtasari wa nambari za data za omiki
| Uchambuzi | Matokeo |
|---|---|
| Usomaji ghafi wa RNA-seq | 264.432.676 |
| Usomaji safi wa RNA-seq | 245.324.144 |
| Asilimia ya usomaji safi | %92,77 |
| Jumla ya jeni zilizotambuliwa | 23.673 |
| Jeni zinazojulikana | 22.630 |
| Jeni zilizoainishwa kuwa mpya | 1.043 |
| Jeni zenye uonyeshaji tofauti | 855 |
| Jeni zilizoongezeka | 625 |
| Jeni zilizopungua | 230 |
| Peptidi zilizotambuliwa | 39.611 |
| Protini zilizotambuliwa | 4.037 |
| Protini zenye wingi tofauti | 752 |
| Protini zilizoongezeka | 297 |
| Protini zilizopungua | 455 |
| Njia kuu za KEGG katika mtandao jumuishi | 6 |
| DEG katika mtandao jumuishi | 64 |
| DEP katika mtandao jumuishi | 185 |
| Jeni kuu zilizoangaziwa | 6 |
| Protini kuu zilizoangaziwa | 35 |
Protini kuu zinazohusiana na ishara za ioni
| Protini | FC | Mabadiliko | Kazi inayohusishwa katika utafiti |
|---|---|---|---|
| ATP1B | 1,42 na 1,59 | Ongezeko | Na⁺/K⁺-ATPase, usawa wa K⁺ |
| CACNA1H | 2,50 | Ongezeko | Uingiaji wa Ca²⁺ kutoka nje ya seli |
| ATP2B | 1,40; 1,41; 1,45 | Ongezeko | Kusukuma Ca²⁺ nje ya seli |
| ATP2A | 1,57; 1,57; 1,64 | Ongezeko | Kusafirisha Ca²⁺ kwenda hifadhi za ndani ya seli |
| ITPR1 | 0,20 | Kupungua | Kutolewa kwa Ca²⁺ kutoka hifadhi za ndani ya seli |
| PRKCB | 1,60 | Ongezeko | Njia ya ishara ya PKC |
| VDAC1 | 1,40 | Ongezeko | Ca²⁺ ya mitokondria na ishara za kifo cha seli |
| VDAC2 | 1,36 | Ongezeko | Udhibiti wa ioni na apoptosis katika mitokondria |
| VDAC3 | 1,38 | Ongezeko | Udhibiti wa ioni katika mitokondria |
Protini kuu zinazohusiana na kimetaboliki ya nishati
| Sehemu ya kimetaboliki | Protini na thamani za FC | Mabadiliko ya jumla |
|---|---|---|
| Glikolisi | PGM1 0,83; PGM2 0,70; ALDOB 0,73; GAPDHS 0,72; PGK1 0,81; ENO1B 0,67; PKMA 0,51 na 0,81 | Kupungua |
| Uvunjaji wa asidi ya mafuta | ACSL 1,74; ACSL4 1,53; CPT1A 1,63 | Ongezeko |
| Fosforilesheni oksidativi | ATPeF0F6 1,34; ATPeF0D 1,44; ATPeF0O 1,46; ATPeFG 1,64 na 1,76; ATPeF08 3,23; ATPeV0D 2,12; ATPeVS1 3,30; ATPeV0A 3,48; ATPeV0C 4,98 | Ongezeko |
Ujumbe mkuu wa vielelezo
| Kielelezo | Uchambuzi unaoonyeshwa | Ujumbe mkuu |
|---|---|---|
| Kielelezo 1 | Usimamizi wa wazazi, fiziolojia na ramani ya multi-omics | Utafiti unaunganisha majaribio ya mazingira ya nje na uchambuzi wa RNA na protini. |
| Kielelezo 2 | Osmolaliti, NaCl, KCl, CaCl2 na mchanganyiko wa ioni | Osmolaliti ya chini pamoja na Na⁺/K⁺ husaidia mwendo, huku Ca²⁺ ikiukandamiza. |
| Kielelezo 3 | Uhusiano wa transcriptomu, grafu ya volcano, PPI, KEGG na GO | Jeni 855 hubadilika; kufunga ioni na fosforilesheni oksidativi vinaonekana kuwa muhimu. |
| Kielelezo 4 | PCA ya proteomu, grafu ya volcano, PPI, KEGG na GO | Protini 752 hubadilika; usafirishaji wa ioni na uzalishaji wa ATP wa mitokondria vinaonekana kuwa muhimu. |
| Kielelezo 5 | Mtandao wa mRNA-njia-protini | Unaonyesha kwamba ishara za ioni na kimetaboliki ya nishati zimeunganishwa kupitia jeni na protini nyingi. |
| Kielelezo 6 | Modeli ya kinadharia ya udhibiti wa ioni na nishati | Usawa wa ioni unaodhibitiwa, uvunjaji wa asidi ya mafuta na fosforilesheni oksidativi vinahusishwa na mwendo wa mbegu. |
Tathmini ya kitakwimu
Majaribio ya kifiziolojia yalifanywa kwa angalau marudio matatu. Makundi yalilinganishwa kwa Student t-test au uchambuzi wa njia moja wa variance, na baada ya ANOVA mtihani wa kulinganisha nyingi wa Duncan ulitumika. Data ziliwasilishwa kama wastani ± mkengeuko sanifu na P < 0,05 ilikubaliwa kuwa kizingiti cha umuhimu.
Katika uchambuzi wa transcriptomiki, vizingiti vya FDR < 0,05 na |log2FC| > 1; katika uchambuzi wa proteomiki, P < 0,05 na FC > 1,20 au FC < 0,83 vilitumika.
Upatikanaji wa data
Imeelezwa kuwa data ghafi za transcriptomiki zimepakiwa katika hifadhidata ya NCBI Sequence Read Archive kwa nambari ya ufikiaji PRJNA1472532; data za proteomiki zimepakiwa katika hifadhidata ya OMIX ya China National Genomics Data Center kwa nambari ya ufikiaji OMIX017197.
Dokezo la Chanzo na Mbinu
Maudhui haya yanategemea utafiti ulioandaliwa na Qinghua Wang, Yuxin Zhang, Weiwei Zhang, Yingxin Wu, Jiajie Li, Yizheng Zhang, Lu Li, Zhiming Zhu na Zining Meng wenye kichwa “Integrating physiology and multi-omics unveils sperm activation and movement in mandarin fish (Siniperca chuatsi)”.
Utafiti ni makala ya majaribio ya preprint inayounganisha majaribio ya kifiziolojia yanayotathmini athari za osmolaliti na ioni katika uhamaji wa mbegu za samaki mandarin na uchambuzi wa transcriptomiki na proteomiki.
Maandishi yana onyo wazi, “This preprint research paper has not been peer reviewed”. Kwa hiyo, utafiti haujapitiwa na wahakiki wenzao. PDF haina taarifa ya kukubaliwa na jarida, toleo la mwisho lililochapishwa au DOI ya uchapishaji iliyothibitishwa ya utafiti huu.
Utafiti si wa kimatibabu. Hautoi data kuhusu uzazi wa binadamu, utasa wa binadamu au matibabu ya kitabibu. Majaribio yalifanywa maabara kwa sampuli za mbegu zilizokusanywa kutoka samaki hai.
Matokeo ya kifiziolojia yanategemea uhamaji wa mbegu. Utafiti haukupima moja kwa moja kiwango cha urutubishaji wa yai, ukuaji wa kiinitete, kuanguliwa kwa vifaranga au utendaji wa hatchery katika hali za uwanjani.
Katika uchambuzi wa transcriptomiki na proteomiki, mbegu mpya zililinganishwa na mbegu zilizoamilishwa kwa sekunde 60 katika maji baridi. Kwa kuwa makundi ya omiki hayakuundwa kutoka hali tofauti za NaCl, KCl au CaCl2, haijaonyeshwa kwamba mabadiliko maalum ya kimolekuli yalisababishwa moja kwa moja na ioni moja moja.
Mtandao uliopendekezwa wa udhibiti wa Na⁺, K⁺ na Ca²⁺ ni modeli ya kinadharia. Mikondo ya njia za ioni, mkusanyiko wa ioni ndani ya seli, uwezo wa umeme wa utando, kiasi cha ATP, upumuaji wa mitokondria na mtiririko wa kimetaboliki havikupimwa moja kwa moja. Waandishi wameeleza wazi kuwa uthibitishaji zaidi kwa mbinu kama electrophysiology, immunocytochemistry, in situ hybridization na Western blot unahitajika.
Utafiti uliungwa mkono na Guangdong S&T Programme, Southern Marine Science and Engineering Guangdong Laboratory, programu za sayansi za jimbo la Guangdong, China Agriculture Research System, National Natural Science Foundation of China na BIO-KEY Germplasm Preservation Program. Waandishi waliripoti kutokuwa na mgongano wa maslahi.
Makala hii ya Kituruki imeandaliwa tu kwa kutegemea mipangilio ya majaribio, vielelezo, majedwali, matokeo ya nambari na tafsiri za waandishi zilizomo katika PDF iliyopakiwa. Hakuna dai lisilopatikana katika PDF kuhusu mafanikio ya urutubishaji, dhamana ya hatchery ya kibiashara, athari ya kimatibabu au utaratibu wa uhakika wa kimolekuli lililoongezwa.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *