

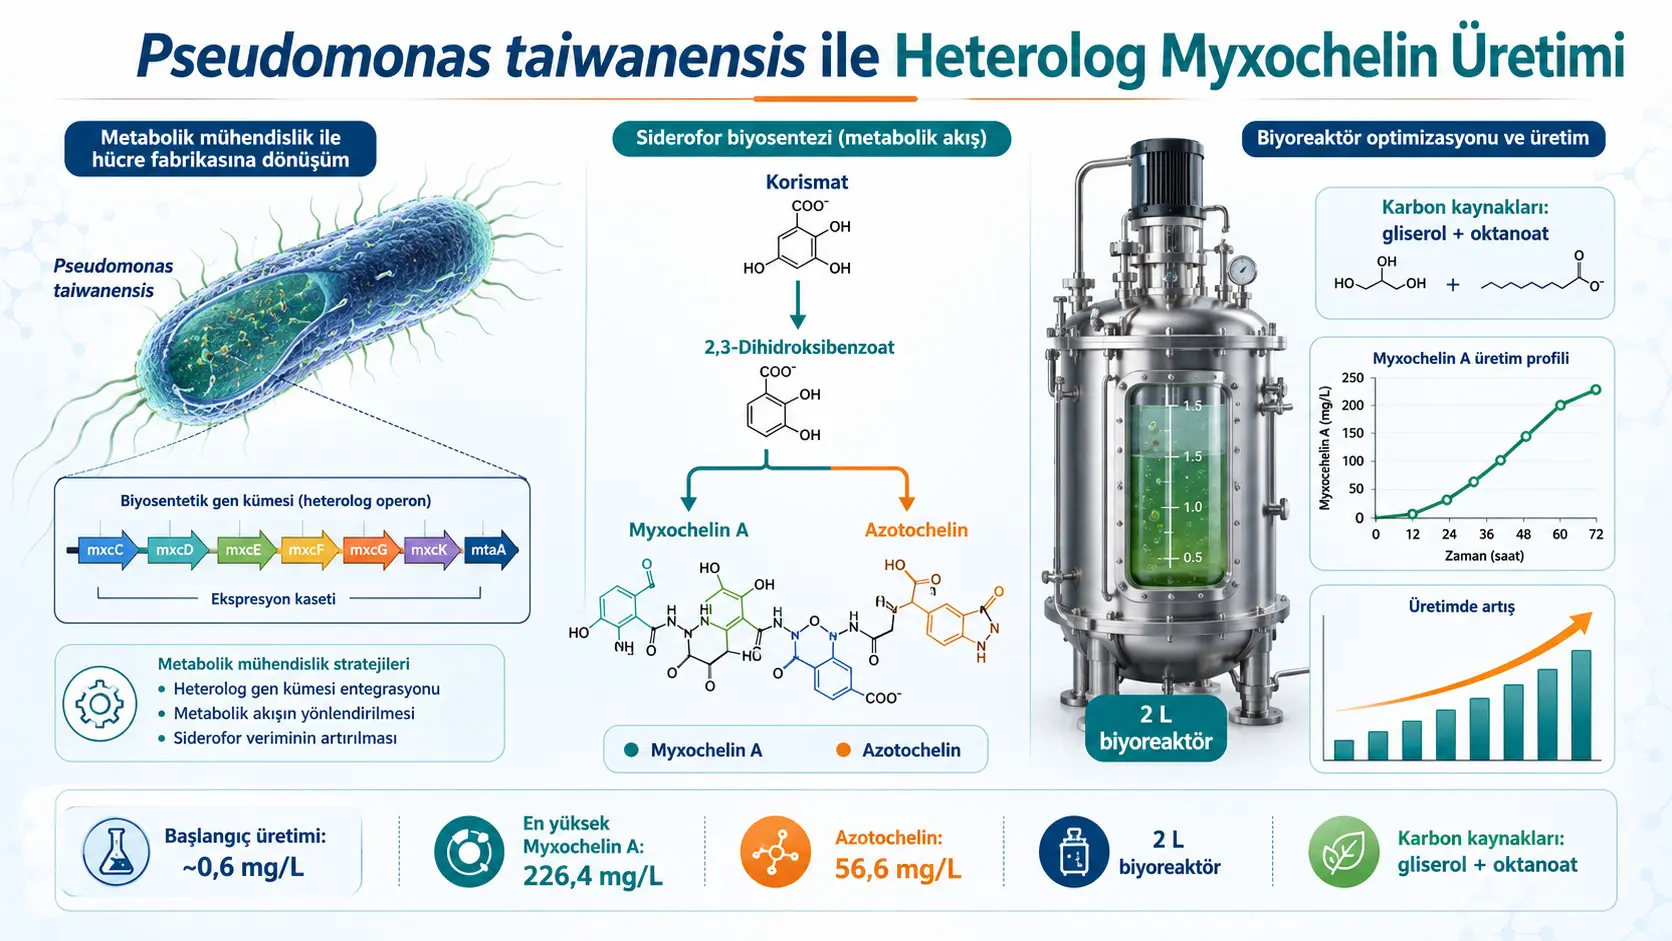
Myxochelin A, bakterilerin demiri yakalamalarına yardımcı olan katekolat sınıfı bir siderofordur. Doğal olarak bazı miksobakteriler tarafından üretilmesine rağmen doğal üretim miktarlarının düşük olması, bileşiğin araştırma ve olası biyoteknolojik uygulamalar için yeterli miktarda elde edilmesini zorlaştırmaktadır. Franziska Kofler ve çalışma arkadaşları, myxochelin A biyosentez genlerini daha kolay yetiştirilebilen ve genetik olarak düzenlenebilen Pseudomonas taiwanensis VLB120 bakterisine aktararak bu sorunu çözmeyi amaçlamıştır.
Çalışmada yalnızca bir gen kümesinin başka bir bakteriye taşınmasıyla yetinilmemiştir. Üretim sürecinin tamamı; konak bakterinin seçilmesi, biyosentetik genlerin kromozoma yerleştirilmesi, gen ifade düzeylerinin artırılması, karbon ve enerji kaynaklarının değiştirilmesi, öncül molekül desteği, ürün dönüşümlerinin izlenmesi ve işlemin kontrollü biyoreaktöre taşınması aşamalarıyla sistematik olarak geliştirilmiştir.
İlk tasarlanan üretim suşu glikozdan yalnızca yaklaşık 0,6 mg/L myxochelin A üretmiştir. Genetik düzenlemeler ve besiyeri optimizasyonları sonucunda 2 litrelik biyoreaktörde myxochelin A derişimi 226,4 ± 1,3 mg/L’ye yükselmiştir. Aynı süreçte yapısal olarak benzer başka bir siderofor olan azotochelin de 56,6 ± 8,7 mg/L düzeyinde oluşmuştur. Başlangıçtaki 0,6 mg/L değeriyle karşılaştırıldığında myxochelin A titresindeki artış 300 katın üzerindedir.
Çalışmanın önemli ve beklenmedik bulgularından biri, myxochelin A üretim genlerinin P. taiwanensis hücresine aktarılmasının azotochelin oluşumuna da yol açmasıdır. Zaman serisi deneyleri, üretimin belirli bir aşamasından sonra myxochelin A miktarı azalırken azotochelin miktarının artabildiğini göstermiştir. Araştırmacılar bu durumu, myxochelin biyosentezindeki aldehit ara ürününün konak bakterinin kendi oksidasyon enzimleri tarafından azotocheline yönlendirilmesiyle açıklamaktadır.
Ancak azotochelin kimliği kütle spektrometrisiyle doğrulanmamıştır. Araştırmacılar ticari azotochelin standardına sahip olmadıkları için, azotochelin üreten Azotobacter vinelandii kültüründeki HPLC pikinin tutulma zamanını ve UV-VIS spektrumunu üretim suşundaki bilinmeyen pikle karşılaştırmıştır. Benzerlik, bileşiğin azotochelin olduğu yorumunu desteklemektedir; fakat LC-MS veya saflaştırılmış standartla kesin yapısal doğrulama sunulmamıştır.
Üretimdeki ilk darboğazın yalnızca öncül molekül yetersizliği olmadığı görülmüştür. MxcG enziminin kodon optimizasyonu ve özellikle mxcE ile mxcF genlerinin ikinci kopyalarının eklenmesi, üretimde belirgin bir sıçrama sağlamıştır. Bu sonuç, öncül molekül 2,3-dihidroksibenzoatın aktive edilmesi, taşıyıcı proteine bağlanması ve lysinle birleştirilmesi aşamalarındaki enzim miktarlarının sınırlayıcı olduğunu düşündürmektedir.
Karbon kaynağı seçimi de üretimi güçlü biçimde etkilemiştir. Glikoz veya gliserolün tek başına kullanılmasına kıyasla, gliserol ile oktanoatın birlikte verilmesi daha yüksek toplam ürün düzeyleri sağlamıştır. Oktanoatın beta oksidasyonla asetil-KoA’ya dönüştürülerek enerji metabolizmasına katkı verebileceği; gliserolün ise glikoza göre daha indirgenmiş bir karbon kaynağı olarak indirgeme eşdeğerlerinin sağlanmasına yardımcı olabileceği tartışılmıştır. Bununla birlikte bu metabolik açıklamalar doğrudan akış analiziyle kanıtlanmamıştır.
En iyi üretim suşu kontrollü 2 litrelik biyoreaktöre taşındığında, 80 mM gliserol, 30 mM oktanoat ve 2 mM 2,3-dihidroksibenzoat içeren koşulda 34. saatte 226,4 mg/L myxochelin A ve 56,6 mg/L azotochelin elde edilmiştir. Bu sonuç tanımlı mineral besiyerinde gerçekleştirilmiş ve yazarların karşılaştırmasına göre doğal üreticiler için daha önce bildirilen myxochelin A düzeylerini aşmıştır.
Bununla birlikte araştırma bir ilaç geliştirme, klinik etkinlik veya kanser tedavisi çalışması değildir. Myxochelin A’nın 5-lipoksijenazı baskılaması ve hücresel modellerde bildirilen biyolojik etkileri çalışmanın gerekçesini oluşturan önceki literatüre aittir. Bu araştırmada insan hücreleri, hayvan tümör modelleri, ilaç güvenliği veya tedavi başarısı incelenmemiştir.
Çalışmanın temel problemi nedir?
Doğal ürünler, mikroorganizmalar, bitkiler veya diğer canlılar tarafından üretilen ve karmaşık biyolojik işlevler taşıyabilen moleküllerdir. Bunların bir bölümü ilaç araştırmalarında, tarımda, çevresel arıtmada veya endüstriyel biyoteknolojide kullanılabilecek özelliklere sahiptir. Ancak doğal üreticiler hedef molekülü çok düşük miktarda üretiyorsa, bileşiğin saflaştırılması ve ayrıntılı biçimde incelenmesi zorlaşır.
Myxochelin A bu probleme iyi bir örnektir. Bileşik doğal olarak Myxococcus xanthus, Stigmatella aurantiaca ve başka miksobakteriler tarafından üretilebilir. Miksobakteriler değerli ikincil metabolitler oluşturmalarına rağmen kültür koşulları, büyüme biçimleri ve düzenleyici sistemleri endüstriyel üretim açısından karmaşık olabilir. Myxochelin üretimi ayrıca demir düzeyi gibi çevresel koşullardan etkilenir.
Araştırmacıların çözmeye çalıştığı temel problem şudur: Myxochelin A’nın doğal üreticisine bağımlı kalmadan, genetik olarak daha kolay yönetilebilen bir bakteride yüksek miktarda ve kontrol edilebilir biçimde üretilmesi mümkün müdür?
Myxochelin A ve siderofor kavramı
Sideroforlar, mikroorganizmaların çevredeki demiri bağlamak için ürettiği küçük moleküllerdir. Demir birçok hücresel reaksiyon için zorunlu olmasına rağmen özellikle oksijenli ortamlarda serbest ve kolay kullanılabilir biçimde bulunmayabilir. Mikroorganizmalar bu nedenle demire yüksek ilgi gösteren moleküller salgılar. Siderofor demiri bağladıktan sonra oluşan kompleks, hücre yüzeyindeki taşıma sistemleri aracılığıyla içeri alınabilir.
Myxochelin A, demiri bağlayan katekol grupları taşıyan bir siderofordur. Molekülün iskeleti iki 2,3-dihidroksibenzoat birimi ile bir lysin molekülünün birleşmesine dayanır. Azotochelin de aynı temel öncüllerden oluşan, ancak uç fonksiyonel grubunun oksidasyon durumu bakımından farklılaşan yakın akraba bir siderofordur.
Sideroforların güçlü metal bağlama özellikleri çevresel metal kompleksleştirme, mikrobiyal rekabet, bitki-mikrop etkileşimleri ve doğal ürün araştırmaları açısından önemlidir. Bununla birlikte mevcut çalışma bu uygulamaların hiçbirini doğrudan test etmemiştir; yalnızca üretim sistemini geliştirmiştir.
Myxochelin A neden bilimsel ilgi görüyor?
Çalışmanın giriş bölümünde, myxochelin A ve bazı türevlerinin insan 5-lipoksijenaz enzimi üzerinde güçlü inhibitör etkinlik gösterdiğini bildiren önceki araştırmalara yer verilmiştir. 5-lipoksijenaz, lökotrien biyosentezinde görev yapan ve inflamatuvar yanıtlarla ilişkili bir enzimdir. Myxochelin A için hücre ve laboratuvar temelli antitümör veya antimetastatik etkiler de daha önce bildirilmiştir.
Bu bilgiler, myxochelin A’nın araştırma amacıyla daha yüksek miktarda üretilmesinin neden değerli olabileceğini açıklar. Ancak bir enzimin laboratuvar ortamında baskılanması, molekülün insanlarda etkili ve güvenli bir ilaç olduğu anlamına gelmez. Mevcut çalışma farmakolojik doğrulama yapmamış; yalnızca mikrobiyal üretimi geliştirmiştir.
Heterolog üretim ne anlama geliyor?
Heterolog üretim, bir canlının doğal olarak sahip olmadığı biyosentetik genlerin başka bir canlıya aktarılması ve hedef molekülün bu yeni konakta üretilmesidir. Burada myxochelin biyosentez genleri doğal miksobakteriyel bağlamından alınarak Pseudomonas taiwanensis VLB120 hücresine aktarılmıştır.
Bu yaklaşım, bir üretim hattının başka bir fabrikaya taşınmasına benzetilebilir. Ancak biyolojik üretimde makineler genler ve enzimlerdir. Yeni fabrikanın enerji sistemi, hammadde akışı, yardımcı enzimleri, taşıyıcı proteinleri ve atık işleme mekanizmaları eski fabrikadan farklıdır. Dolayısıyla genleri aktarmak çoğu zaman tek başına yeterli olmaz.
Neden Pseudomonas taiwanensis VLB120 seçildi?
P. taiwanensis VLB120, farklı karbon kaynaklarını kullanabilen, aromatik bileşiklere görece toleranslı, genetik olarak düzenlenebilir ve biyoproses araştırmalarında daha önce kullanılmış bir bakteriyel konaktır. Araştırma grubunun bu bakteri üzerinde geliştirdiği genomu sadeleştirilmiş şasi suşları ve aromatik bileşik üretim deneyimi de seçimde rol oynamıştır.
Yazarlar ayrıca üretim suşunun 50 mg/L’ye kadar myxochelin A bulunan ortamda büyüyebildiğini gösteren tolerans deneyi eklemiştir. Bu sonuç bakterinin, myxochelin A’nın metal bağlayıcı etkisinin oluşturabileceği strese belirli düzeyde dayanabildiğini desteklemektedir.
Bununla birlikte Pseudomonas metabolizmasının genişliği yalnızca avantaj değildir. Konak hücrenin doğal aldehit dehidrogenazları, hedef biyosentez yolundaki ara ürünleri farklı bir ürüne çevirebilir. Çalışmada beklenmedik azotochelin oluşumu tam olarak bu çift yönlü metabolik esnekliğin örneğidir.
Myxochelin biyosentez yolu nasıl çalışıyor?
Şekil 1, myxochelin A üretimini oluşturan temel enzimleri ve ara basamakları şematik olarak göstermektedir. Süreç, merkezi metabolit chorismate üzerinden başlar.
- MxcD, chorismateı isochorismate dönüştürür.
- MxcF’nin isochorismatase bölgesi, isochorismateı 2,3-dihidroksi-2,3-dihidrobenzoata yönlendirir.
- MxcC, bu ara ürünü 2,3-dihidroksibenzoata dönüştürür.
- MxcE, 2,3-dihidroksibenzoatı ATP kullanarak aktive eder.
- Aktive edilen aromatik öncül MxcF’nin aril taşıyıcı protein bölgesine bağlanır.
- Lysin, MxcG adlı ribozomal olmayan peptit sentetazın taşıyıcı bölgesine yüklenir.
- MxcG’nin kondenzasyon bölgesi, iki 2,3-dihidroksibenzoat birimi ile lysini birleştirir.
- MxcG’nin redüktaz bölgesi taşıyıcı proteine bağlı tioesteri indirger ve myxochelin A oluşumuna giden aldehit ara ürününü meydana getirir.
MxcF ve MxcG’nin öncülleri taşıyabilmesi için MtaA tarafından 4’-fosfopantetein kofaktörüyle post-translasyonel olarak değiştirilmesi gerekir. Bu kofaktör, öncül moleküllerin enzime geçici bir tioester bağıyla bağlanmasını sağlayan hareketli bir kol gibi çalışır.
Doğal yolakta MxcL adlı transaminaz bulunursa aldehit ara ürünü myxochelin B’ye yönlendirilebilir. Araştırmacılar myxochelin B oluşumunu önlemek için mxcL genini üretim modülüne dahil etmemiştir. MxcK ise oluşan ürünün hücre dışına taşınmasına katkı sağlayan ihracat proteini olarak eklenmiştir.
Myxochelin A ile azotochelin arasındaki ayrım
Azotochelin de iki 2,3-dihidroksibenzoat ve bir lysin biriminden oluşur. Temel fark, biyosentezin son aşamasında taşıyıcı proteine bağlı ara ürünün hangi kimyasal biçimde serbest bırakıldığıdır.
Azotobacter vinelandii bakterisindeki EntF enzimi MxcG’den farklı olarak redüktaz yerine tioesteraz bölgesi taşır ve ara ürünü azotocheline yönlendirir. Myxochelin yolunda ise MxcG’nin redüktaz etkinliği aldehit ve ardından alkol biçimindeki myxochelin A oluşumunu destekler.
Çalışmadaki P. taiwanensis suşunda azotochelin gen kümesi bulunmamasına rağmen azotochelin benzeri ürün oluşmuştur. Araştırmacılar, myxochelin sentezinde ortaya çıkan aldehit ara ürününün konak hücredeki aldehit oksidasyon enzimleri tarafından karboksilik aside çevrilmiş olabileceğini düşünmektedir.
İlk üretim modülleri neden yeterli olmadı?
Araştırmacılar başlangıçta 2,3-dihidroksibenzoat tedarikini artırmak amacıyla farklı biyosentetik modülleri karşılaştırmıştır. Bazı modüllerde miksobakteriyel genlerin yerine Escherichia coli kaynaklı entC, menF, entB ve entA gibi işlevsel olarak benzer genler kullanılmıştır.
Ayrıca lysin yıkımını azaltmak amacıyla davB geni silinmiş, MtaA miktarını artırmak için ek ifade sistemi denenmiş ve glikoz miktarı yükseltilmiştir. Buna rağmen üretim artmamış, bazı tasarımlarda daha da düşmüştür.
En başarılı ilk modül yalnızca 0,6 ± 0,0 mg/L myxochelin A üretmiştir. Alternatif öncül modüllerinden biri 0,2 ± 0,0 mg/L’ye kadar düşmüştür. Glikozun 20 mM’den 30 mM’ye çıkarılması da üretimi 0,7 mg/L’nin üzerine taşıyamamıştır.
Bu sonuçlar, sorunun yalnızca daha fazla karbon veya daha fazla öncül sağlamak olmadığını göstermiştir. Araştırmacılar biyosentetik genlerin ifade düzeyinin ve özellikle yolun sonraki enzimatik basamaklarının sınırlayıcı olabileceği sonucuna yönelmiştir.
Gen kümesinin düzeni neden önemliydi?
Büyük biyosentetik gen kümelerinde yalnızca hangi genlerin bulunduğu değil, genlerin sırası, promotöre uzaklığı, mRNA kararlılığı ve komşu genlerin ifade üzerindeki kutupsal etkileri de önemlidir. İşlevsel olarak benzer bir genin başka bir genle değiştirilmesi, teorik olarak aynı reaksiyonu sağlasa bile bütün operonun ifade dengesini bozabilir.
Araştırmacılar bu nedenle miksobakteriyel genlerin doğal sırasını koruyan daha bütünlüklü bir üretim modülünü de test etmiştir. Bu modül toplam 3,8 ± 2,4 mg/L ürün sağlayabilmiş, ancak büyüme ve üretim sonuçları tekrarlanabilir olmamıştır. Daha düşük titre sahip olan 0,6 ± 0,2 mg/L’lik modül ise daha kararlı ve tekrarlanabilir olduğu için sonraki optimizasyonlarda tercih edilmiştir.
Bu tercih, en yüksek tek ölçüm yerine güvenilir üretim platformunun seçildiğini göstermektedir. Biyoproses geliştirmede ortalama üretim miktarı kadar farklı kültürlerde aynı sonucun elde edilebilmesi de önemlidir.
Azotochelin oluşumu nasıl fark edildi?
Şekil 3, myxochelin A’nın zaman içindeki değişimini farklı kontrol ve üretim suşlarında göstermektedir. Dışarıdan eklenen myxochelin A, hücresiz besiyerinde ve biyosentez genlerini taşımayan ana suşta belirgin biçimde parçalanmamıştır.
Buna karşılık myxochelin biyosentez yolunu taşıyan üretim suşlarında myxochelin A yaklaşık 24 saat civarında tepe yaptıktan sonra azalmaya başlamıştır. Aynı dönemde ikinci bir HPLC piki ortaya çıkmış ve myxochelin A azalırken bu ürün birikmeye devam etmiştir.
Bu desen, ikinci bileşiğin yalnızca besiyerinde kendiliğinden oluşmadığını; myxochelin biyosentez enzimlerinin veya üretim suşunun metabolizmasının dönüşümde rol oynadığını düşündürmüştür.
Araştırmacılar bilinmeyen piki, doğal azotochelin üreticisi A. vinelandii kültürünün üst sıvısındaki pikle karşılaştırmıştır. İki pikin aynı HPLC tutulma zamanına ve benzer UV-VIS spektrumuna sahip olması, bilinmeyen bileşiğin azotochelin olduğu yorumuna temel oluşturmuştur.
Ancak bu tanımlama dolaylıdır. Azotochelin için saf ve doğrulanmış standart kullanılmamış, LC-MS veya yüksek çözünürlüklü kütle spektrometrisi yapılmamış ve molekülün demir bağlı ya da demirsiz biçimleri ayrı ayrı gösterilmemiştir. Bu nedenle makalede “azotochelin olarak dolaylı biçimde tanımlanan ürün” ifadesi bilimsel olarak daha dikkatli bir tanımdır.
Ürünün yeniden hücreye alınması ne gösterdi?
Dışarıdan myxochelin A eklenen üretim suşunda, bileşiğin hücre tarafından alınabildiği ve azotochelin benzeri ürüne dönüştürülebildiği görülmüştür. Bu gözlem, reaksiyonun yalnızca yeni sentezlenen ve enzime bağlı ara ürün üzerinde gerçekleşmediğini; hücre dışına çıkmış myxochelin A’nın yeniden içeri alınarak metabolik dönüşüme uğrayabileceğini düşündürmektedir.
Araştırmacılar bu dönüşümde MxcG’nin rol oynayabileceğini ve myxochelin A’nın tekrar aldehit ara ürüne yönlendirilebileceğini tartışmaktadır. Ancak ters reaksiyonun doğrudan enzim deneyiyle gösterilmediği unutulmamalıdır.
Karbon kaynakları neden birlikte kullanıldı?
Bir hücre fabrikasının üretim performansı yalnızca toplam karbon miktarına bağlı değildir. Farklı karbon kaynakları hücreye farklı hızlarda girer, farklı metabolik yollara bağlanır ve farklı miktarda ATP, NADH veya NADPH oluşmasına katkı sağlar.
Myxochelin sentezi ATP gerektiren adenilasyon basamakları, taşıyıcı protein aktivasyonu, peptit bağı oluşumu ve indirgeme reaksiyonları içerdiği için enerji ve indirgeme eşdeğeri bakımından yoğun bir süreçtir.
Şekil 4’te glikoz ve gliserol; sitrat, asetat, süksinat veya oktanoatla birlikte değerlendirilmiştir. Glikozun tek başına kullanıldığı koşulda toplam üretim 3,3 ± 0,1 mg/L olmuştur. Glikoza eklenen ikincil karbon kaynakları toplam üretimi yaklaşık 4,4–5,8 mg/L aralığına yükseltmiştir.
Gliserol tek başına 24 saatte 1,9 ± 0,0 mg/L ürün sağlamıştır. Gliserolün daha düşük başlangıç performansı, uzun uyum süresiyle ilişkilendirilmiştir. Kültür süresi 48 saate uzatıldığında gliserolle üretim 6,1 ± 0,1 mg/L’ye ulaşmıştır.
Gliserole sitrat, asetat, süksinat veya oktanoat eklenmesi toplam üretimi yaklaşık 6,1–9,6 mg/L aralığına yükseltmiştir. En dikkat çekici ilk kombinasyonlardan biri 40 mM gliserol ile 12 mM oktanoat olmuş; 1,5 mg/L myxochelin A ve 8,1 mg/L azotochelin olmak üzere toplam 9,6 mg/L ürün elde edilmiştir.
Oktanoatın olası rolü
Oktanoat sekiz karbonlu bir yağ asididir. Bakteri hücresinde beta oksidasyona uğrayarak asetil-KoA birimlerine dönüştürülebilir. Asetil-KoA, trikarboksilik asit döngüsüne girerek enerji üretimine katkı sağlayabilir.
Çalışmada önerilen temel ilişki şu şekilde özetlenebilir:
\[ \mathrm{Oktanoat} \xrightarrow{\beta\text{-oksidasyon}} \mathrm{Asetil\!-\!KoA} \rightarrow \mathrm{TCA\ döngüsü} \rightarrow \mathrm{enerji\ ve\ indirgeme\ eşdeğerleri} \]
Bu ifade makalede tek bir kimyasal denklem olarak verilmemiş, tartışmada önerilen metabolik mantığı göstermektedir. Oktanoatın üretimi tam olarak hangi gen veya metabolik akış üzerinden artırdığı izotop işaretleme ya da metabolik akış analiziyle doğrulanmamıştır.
Karbon kaynağı deneyinin önemli sınırlılığı
Karşılaştırılan besiyerlerinin toplam karbon molü eşit tutulmamıştır. Örneğin glikoz, gliserol, sitrat ve oktanoat kombinasyonları farklı toplam karbon miktarlarına sahiptir. Bu nedenle gözlenen üretim farkının ne kadarının karbon kaynağının metabolik niteliğinden, ne kadarının toplam karbon miktarından kaynaklandığını kesin biçimde ayırmak zordur.
Araştırmacılar farklı oktanoat konsantrasyonlarında toplam karbon miktarı artmasına rağmen glikozlu koşullarda üretimin aynı oranda yükselmediğini belirtmiş ve etkinin yalnızca toplam karbonla açıklanamayacağını savunmuştur. Yine de eşit karbonlu deney tasarımı daha güçlü bir karşılaştırma sağlayabilirdi.
MxcG düzeyinin artırılması
MxcG, lysini taşıyan, aromatik öncüllerin lysinle birleştirilmesini sağlayan ve son indirgeme basamağında görev yapan çok alanlı ribozomal olmayan peptit sentetazdır. Bu nedenle yolun enerji gerektiren merkez enzimlerinden biridir.
Araştırmacılar mxcG genini P. taiwanensis için kodon optimize etmiş ve salisilatla uyarılabilen bir plazmit üzerinden ek olarak ifade etmiştir. Kodon optimizasyonu, konak bakteride seyrek kullanılan kodonların daha uygun eş anlamlı kodonlarla değiştirilerek proteinin daha verimli sentezlenmesini amaçlar.
Oktanoat bulunmadığında ek MxcG ifadesi belirgin bir üretim artışı oluşturmamıştır. Buna karşılık glikoz veya gliserol ile birlikte oktanoat verildiğinde ek MxcG’nin yararı ortaya çıkmıştır.
Bu sonuç, yalnızca daha fazla enzim üretmenin yeterli olmadığını göstermektedir. MxcG miktarı artırıldığında enzimin enerji ve indirgeme gereksiniminin de karşılanması gerekir. Başka bir ifadeyle enzim kapasitesi ile hücrenin enerji kapasitesi birlikte artırılmalıdır.
Ek mxcG ifadesi ve 12 mM oktanoatla 48 saatlik kültürlerde toplam üretim glikoz temelinde 28,1 ± 6,5 mg/L, gliserol temelinde 44,5 ± 16,7 mg/L düzeyine ulaşmıştır.
Asıl sıçrama: mxcE ve mxcF genlerinin ikinci kopyası
Ek MxcG üretimine rağmen 2,3-dihidroksibenzoatın yalnızca sınırlı bir bölümü ürüne dönüşmüştür. Bu nedenle araştırmacılar öncülün aktive edilmesi ve taşıyıcı proteine bağlanması basamaklarına yönelmiştir.
MxcE, 2,3-dihidroksibenzoatı ATP kullanarak adenile eder. MxcF ise hem isochorismate dönüşümünde görev yapan bir enzim bölgesi hem de aktive edilmiş aromatik öncülü taşıyan aril taşıyıcı protein bölgesi içerir.
Üretim suşunun kromozomuna güçlü ve sürekli çalışan promotör altında ikinci bir mxcEF kopyası eklenmiştir. Bu düzenlemenin ardından glikozun tek karbon kaynağı olduğu koşulda bile toplam ürün 85,2 ± 3,4 mg/L’ye yükselmiştir.
Oktanoat eklenmeden 40 mM gliserolle 100,4 ± 16,1 mg/L; 10 mM glikoz ile 20 mM gliserol birlikte kullanıldığında 125,2 ± 7,0 mg/L toplam ürün elde edilmiştir.
20 mM glikoz, 15 mM oktanoat ve dışarıdan 75 mg/L 2,3-dihidroksibenzoat verilen koşulda 51,7 ± 0,0 mg/L myxochelin A ile 99,5 ± 0,6 mg/L azotochelin üretilmiş; toplam titre yaklaşık 151,2 mg/L’ye ulaşmıştır.
Bu sıçrama, önceki suşlarda MxcE ve MxcF miktarlarının önemli bir darboğaz olduğunu desteklemektedir. Bununla birlikte hangi enzimin tek başına ne ölçüde sınırlayıcı olduğu ve artan protein miktarlarının birbirleriyle nasıl etkileştiği ayrı enzim deneyleriyle gösterilmemiştir.
MxcE, MxcF ve MxcG arasında olası protein etkileşimleri
MxcF iki farklı işlev taşır: isochorismate dönüşümüne katılır ve aynı zamanda 2,3-dihidroksibenzoatı taşıyan protein bölgesini içerir. Bu nedenle MxcF’nin etkinliği yalnızca miktarına değil, MxcE ve MxcG ile kurduğu fiziksel etkileşimlere de bağlı olabilir.
Araştırmacılar ek mxcEF kopyalarının yararını açıklamak için birkaç olasılık tartışmıştır:
- MxcE’nin daha fazla 2,3-dihidroksibenzoatı aktive etmesi,
- MxcF’nin daha fazla aromatik öncül taşıyabilmesi,
- MxcE-MxcF-MxcG kompleksinin daha verimli kurulması,
- MxcG’nin MxcF’ye bağlı öncülü daha hızlı kabul etmesi,
- Konak hücredeki başka bir enzimin MxcE’ye kısmen benzer işlev göstermesi.
Çalışma bu olasılıkları doğrudan test etmemiştir. Protein-protein etkileşim deneyleri, çekme deneyleri, enzim kinetiği veya yapısal analiz yapılmadığından mekanizma açık bir araştırma sorusu olarak kalmıştır.
Biyotransformasyon verimi nasıl hesaplandı?
Çalışmada biyotransformasyon verimi, oluşan toplam myxochelin A ve azotochelin mol miktarının besiyerine eklenen 2,3-dihidroksibenzoat mol miktarına oranı üzerinden değerlendirilmiştir:
\[ Y_{\mathrm{BT}} = \frac{n_{\mathrm{myxochelin\ A}} + n_{\mathrm{azotochelin}}}{n_{\mathrm{eklenen\ 2,3\!-\!dihidroksibenzoat}}} \times 100 \]
Burada:
- YBT, mol/mol cinsinden biyotransformasyon verimini,
- nmyxochelin A, oluşan myxochelin A molünü,
- nazotochelin, oluşan azotochelin molünü,
- neklenen 2,3-dihidroksibenzoat, besiyerine dışarıdan verilen öncülün mol miktarını ifade eder.
Her bir myxochelin A veya azotochelin molekülü için iki 2,3-dihidroksibenzoat molekülü gerektiğinden, yalnızca dışarıdan verilen öncül kullanılıyorsa teorik üst sınır yüzde 50 mol/mol olur.
Bazı deneylerde hesaplanan verim yüzde 50’nin üzerine, örneğin yüzde 73,3 ± 0,9’a çıkmıştır. Araştırmacılar bunu hesaplama hatası olarak değil, dışarıdan verilen öncüle ek olarak bakterinin karbon kaynaklarından yeni 2,3-dihidroksibenzoat üretmesine bağlamıştır.
Yaklaşık 0,5 mM dış öncülden 0,37 mM toplam ürün oluştuğu koşulda, 0,12 mM ürünün dış öncülden değil, hücrenin kendi metabolizmasında de novo üretilen 2,3-dihidroksibenzoattan kaynaklandığı hesaplanmıştır. Bu miktar toplam ürünün yaklaşık yüzde 31,7’sine karşılık gelmektedir.
Dışarıdan öncül vermenin yararı ve sınırı
MxcEFG düzeyleri artırıldıktan sonra üretimin yeni darboğazı 2,3-dihidroksibenzoat tedariki olmuştur. Bu nedenle besiyerine 0,5, 1 ve 2 mM öncül eklenmiştir.
40 mM gliserol ve 15 mM oktanoatla birlikte artan öncül desteği, myxochelin A titresini 117,8 ± 5,9 mg/L’ye ve azotochelin titresini 45,3 ± 0,9 mg/L’ye çıkarmıştır. Toplam üretim 163,1 ± 6,8 mg/L olmuştur.
Ancak bu koşulda yaklaşık 140,7 ± 6,6 mg/L 2,3-dihidroksibenzoat kullanılmadan ortamda kalmıştır. Bu sonuç, öncül tedariki artırıldığında bile yolun aşağı akım enzimatik kapasitesinin sınırlı kalabildiğini göstermektedir.
Daha fazla hammadde vermek, üretim hattının sonraki makineleri yetersizse ürüne dönüşmek yerine ortamda birikmeye yol açar. Bu nedenle sonraki optimizasyonların yalnızca öncül sentezini değil, Mxc enzimlerinin dengeli ifade ve etkinliğini de dikkate alması gerekir.
Lysin desteği neden üretimi artırmadı?
Myxochelin A’nın ikinci temel öncülü lysindir. Bu nedenle dışarıdan lysin eklenmesinin üretimi artırması beklenebilirdi. Ancak deneylerde 0,5 mM lysin desteği çoğu koşulda üretimi düşürmüş ve 2,3-dihidroksibenzoat tüketimini azaltmıştır.
Bu durum, lysinin doğrudan toksik olduğunu veya tek bir belirli mekanizmayı kanıtlamaz. Lysin desteği; metabolik düzenleme, taşıma, enzim dengesi veya öncüllerin uygun oranı üzerinde olumsuz etki oluşturmuş olabilir. Çalışma bu mekanizmayı ayrıntılı olarak çözmemiştir.
Myxochelin A ve azotochelin oranı neden değişti?
Farklı besiyerlerinde myxochelin A’nın toplam ürün içindeki payı yüzde 15 ile yüzde 72 arasında değişmiştir. Bu geniş aralık, iki ürünün aynı ara metabolit havuzundan beslendiğini ve ortam koşullarının aldehit ara ürünün indirgenmesi ile oksitlenmesi arasındaki dengeyi etkilediğini düşündürmektedir.
Daha fazla karbon ve birden fazla karbon kaynağı toplam üretimi artırırken, 2,3-dihidroksibenzoat desteğinin yükseltilmesi bazı koşullarda myxochelin A oranını artırmıştır. En yüksek myxochelin A paylarından biri 40 mM gliserol, 15 mM oktanoat ve 2 mM 2,3-dihidroksibenzoat kombinasyonunda görülmüştür.
Ancak ürün oranını belirleyen kesin enzimatik ve redoks mekanizması ölçülmemiştir. NADH/NADPH düzeyleri, aldehit dehidrogenaz etkinliği veya hücre içi metabolit akışları doğrudan analiz edilmemiştir.
Mikroplaka deneylerinden biyoreaktöre geçiş
İlk taramalar 24 kuyulu System Duetz plakalarında, her kuyuda 1,5 mL besiyeri kullanılarak yapılmıştır. Bu sistem çok sayıda genetik yapı ve besiyeri koşulunun paralel biçimde karşılaştırılmasını sağlamıştır.
En iyi suş daha sonra 2 litrelik DASGIP biyoreaktörlerine taşınmış ve 1 litre çalışma hacminde yetiştirilmiştir. Biyoreaktörde:
- pH 7’de tutulmuştur.
- Çözünmüş oksijen gerilimi yüzde 30’a ayarlanmıştır.
- Karıştırma 400–800 rpm arasında otomatik olarak değiştirilmiştir.
- Hava akışı 1–2 vvm aralığında kontrol edilmiştir.
- Gerektiğinde besleme gazındaki oksijen oranı yüzde 21’den yüzde 100’e çıkarılmıştır.
- Numuneler otomatik örnekleyiciyle üç saatte bir alınmıştır.
Bu kontrol, hücre büyümesi, karbon tüketimi, öncül tüketimi ve ürün oluşumunun zaman içinde daha ayrıntılı izlenmesini sağlamıştır.
İlk biyoreaktör deneyi
İlk biyoreaktör koşulunda 40 mM gliserol, 15 mM oktanoat ve 1 mM 2,3-dihidroksibenzoat kullanılmıştır. Hücre yoğunluğu 22. saatte OD600 = 7,8 ± 0,1 değerine ulaşmıştır.
En yüksek üretim hızları 16–25 saat arasında ölçülmüştür:
- Myxochelin A için 11,6 ± 0,5 mg L−1 saat−1,
- Azotochelin için 2,2 ± 0,3 mg L−1 saat−1.
25. saatte 115,7 ± 1,8 mg/L myxochelin A ve 23,2 ± 1,4 mg/L azotochelin elde edilmiştir. Toplam ürünün yüzde 90,9 ± 0,3’ü myxochelin A’dan oluşmuştur.
Eklenen 1 mM 2,3-dihidroksibenzoat tamamen tüketilmesine rağmen toplam ürün yalnızca 0,34 ± 0,01 mM olmuştur. Biyotransformasyon verimi yüzde 33,6 ± 1,0 olarak hesaplanmıştır.
Hacimsel üretim hızı ne anlama geliyor?
Çalışmada bildirilen space-time yield, belirli zaman aralığında bir litre kültürde oluşan ürün miktarının süreye oranıdır:
\[ \mathrm{STY} = \frac{\Delta C_{\mathrm{ürün}}}{\Delta t} \]
Burada:
- STY, hacimsel üretim hızını,
- ΔCürün, belirli süre içinde ürün derişimindeki değişimi,
- Δt, geçen zamanı ifade eder.
Birim mg L−1 saat−1 olarak verilmiştir. Titre son anda tankta ne kadar ürün bulunduğunu, üretim hızı ise o miktara ne kadar hızlı ulaşıldığını gösterir.
İkinci biyoreaktör deneyi ve en yüksek üretim
İkinci biyoreaktör deneyinde karbon ve öncül miktarları iki katına çıkarılmıştır:
- 80 mM gliserol,
- 30 mM oktanoat,
- 2 mM 2,3-dihidroksibenzoat.
Hücre yoğunluğu 28. saatte OD600 = 15,0 ± 0,3’e ulaşmıştır. 22–31 saat arasında birleşik ürünler için en yüksek hacimsel üretim hızı 26,7 ± 1,8 mg L−1 saat−1, yalnızca myxochelin A için 21,7 ± 1,0 mg L−1 saat−1 olmuştur.
34. saatte:
- 226,4 ± 1,3 mg/L myxochelin A,
- 56,6 ± 8,7 mg/L azotochelin,
- Toplam 0,70 ± 0,02 mM ürün elde edilmiştir.
Bu sırada 1,64 ± 0,12 mM 2,3-dihidroksibenzoat tüketilmiş ve biyotransformasyon verimi yüzde 34,8 ± 1,2 olarak hesaplanmıştır.
Kültürün daha uzun sürdürülmesi kalan öncülün tamamen tüketilmesini sağlamış, fakat ürün miktarını artırmamıştır. Bu durum öncülün hedef ürünler dışında başka metabolik süreçlere gitmiş olabileceğini, enzime bağlı ara ürünlerde kalabileceğini veya oluşan ürünün parçalanabileceğini düşündürmektedir.
Şekil 6’nın gösterdiği üretim penceresi
Şekil 6’daki zaman grafikleri uzun bir başlangıç uyum döneminin ardından kısa ve yoğun bir üretim dönemi bulunduğunu göstermektedir. Myxochelin A ve azotochelin önce birlikte birikmekte, karbon kaynaklarının azalmasıyla myxochelin A’nın azotocheline dönüşümü daha belirgin hâle gelmektedir.
Yüksek titreye ulaşmak için kültürün yeterince uzun sürdürülmesi gerekir; ancak çok uzun sürdürülmesi ürün kaybına yol açabilir. Bu nedenle hasat zamanı yalnızca hücre büyümesine göre değil, myxochelin A ve azotochelin zaman profiline göre belirlenmelidir.
Pyoverdine deneyleri ne gösterdi?
Pseudomonas türleri kendi sideroforları olan pyoverdinleri üretebilir. Myxochelin A’nın ortamda demiri bağlaması, teorik olarak hücrede demir kıtlığı yanıtını ve pyoverdine üretimini tetikleyebilirdi.
Araştırmacılar pyoverdine floresansını 398 nm uyarma ve 456 nm emisyon değeri üzerinden ölçmüştür. Biyoreaktör kültürlerinde en yüksek pyoverdine sinyali 469 ± 83 bağıl floresans birimi olmuştur.
Aynı demir düzeyinde büyütülen ve myxochelin üretmeyen kontrol suşu 981 ± 338 bağıl birim göstermiştir. Demirsiz ortamda ise sinyal 17.166 ± 371 bağıl birime yükselmiştir. Ortama ek demir verilmesi kontrol floresansını 125 ± 5 birime kadar düşürmüştür.
Kontrol kültürüne 200 mg/L myxochelin A eklenmesi pyoverdine sinyalini artırmak yerine hafifçe azaltmıştır. Bu nedenle çalışma, myxochelin A’nın P. taiwanensis için güçlü bir demir açlığı yanıtı oluşturmadığı sonucuna varmıştır. Araştırmacılar bakterinin myxochelin A’yı yabancı bir siderofor, yani xenosiderofor olarak kullanabilme olasılığını tartışmaktadır.
Ancak myxochelin-demir kompleksinin hücreye hangi reseptörle alındığı gösterilmemiştir. “Xenosiderofor olarak kullanılabilir” yorumu floresans sonucuyla uyumlu bir olasılıktır, doğrudan taşıma kanıtı değildir.
Uzun fermantasyonda ürünler neden azaldı?
Uzun süreli biyoreaktör deneylerinde belirli bir aşamadan sonra hem myxochelin A hem de azotochelin miktarı azalmıştır. Bu durum yalnızca myxochelin A’nın azotocheline dönüşümüyle açıklanamaz; çünkü iki ürün birlikte kaybolmaktadır.
Katekol grupları oksidasyona ve polimerleşmeye açıktır. Yüksek hücre yoğunluğu, yüksek oksijen aktarımı ve reaktif oksijen türleri bu süreçleri hızlandırabilir. Kültürün önce açık pembe, daha sonra kahverengi ve koyu renge dönüşmesi de oksitlenmiş veya polimerleşmiş katekol ürünleriyle uyumlu olabilir.
Bununla birlikte çalışma bozunma ürünlerini kimyasal olarak tanımlamamıştır. Kahverengi renk oluşumu tek başına belirli bir polimerleşme yolunu kanıtlamaz. Ürün kaybının mekanizması ileri analitik çalışmalar gerektirmektedir.
Titre, verim ve hız neden birlikte değerlendirilmelidir?
Bir biyoprosesin başarısı genellikle üç temel göstergeyle değerlendirilir:
| Gösterge | Ne ölçer? | Bu çalışmadaki örnek |
|---|---|---|
| Titre | Kültür hacmi başına son ürün miktarı | 226,4 mg/L myxochelin A |
| Üretim hızı | Birim hacimde birim zamanda oluşan ürün | 21,7 mg L−1 saat−1 myxochelin A |
| Verim | Hammaddenin ne kadarının ürüne dönüştüğü | %34,8 mol/mol biyotransformasyon verimi |
Çalışma yüksek ayırma ve saflaştırma maliyetleri nedeniyle önceliği titreye vermiştir. Yüksek titre, bir litre kültürden daha fazla ürün elde edilmesini sağlar ve downstream processing yükünü azaltabilir.
Ancak yüksek titre her zaman yüksek hammadde verimi anlamına gelmez. En iyi biyoreaktör koşulunda yüksek ürün miktarı elde edilmiş olsa da öncülün tamamı ürüne dönüşmemiştir. Endüstriyel değerlendirme için hammadde maliyeti, üretim süresi, enerji tüketimi, saflaştırma kayıpları ve ürün kararlılığı da gereklidir.
Şekil 2 ne anlatıyor?
Şekil 2, farklı gen kümelerinin ve öncül üretim modüllerinin ilk myxochelin A üretimine etkisini göstermektedir. Şemanın üst bölümünde miksobakteriyel ve E. coli kaynaklı genlerin farklı düzenlerde birleştirildiği modüller yer almaktadır.
Alt çubuk grafik, yalnızca öncül üretim genlerini değiştirmek, lysin yıkımını durdurmak veya MtaA ifadesini artırmakla yüksek üretim sağlanamadığını göstermektedir. En iyi ilk sonuç yaklaşık 0,6 mg/L düzeyindedir.
Şekil 3 ne anlatıyor?
Şekil 3’te hücresiz kontrol, üretim genlerini taşımayan ana suş ve farklı üretim suşları zaman içinde karşılaştırılmaktadır. Hücresiz ve ana suş kontrollerinde dışarıdan verilen myxochelin A büyük ölçüde kararlı kalmıştır.
Üretim suşunda ise myxochelin A azalırken azotochelin benzeri pik yükselmiştir. Bu karşılaştırma, dönüşümün üretim yolu veya bu yolun bulunduğu hücresel bağlamla ilişkili olduğunu desteklemektedir.
Şekil 4 ne anlatıyor?
Şekil 4, glikoz ve gliserolün sitrat, asetat, süksinat ve farklı oktanoat konsantrasyonlarıyla birlikte kullanımını karşılaştırmaktadır. Çubukların toplam yüksekliği myxochelin A ve azotochelinin birleşik titresini, renkli bölümler iki ürünün ayrı katkılarını göstermektedir.
Gliserolün ikincil karbon kaynaklarıyla birlikte kullanılması, glikoz kombinasyonlarına göre daha yüksek toplam ürün sağlayabilmiştir. Oktanoat özellikle sonraki genetik optimizasyonlarda enerji desteğiyle birlikte yararlı hâle gelmiştir.
Şekil 5 ne anlatıyor?
Şekil 5, mxcG kodon optimizasyonu, ikinci mxcEF kopyası, karbon kaynağı oranları, oktanoat, 2,3-dihidroksibenzoat ve lysin desteğinin etkilerini bir arada göstermektedir.
En belirgin yükseliş ikinci mxcEF kopyasından sonra ortaya çıkmaktadır. Şekil aynı zamanda lysin desteğinin yararlı olmadığını, öncül ve karbon miktarlarının ürün oranını değiştirdiğini ve myxochelin A ile azotochelin arasında koşula bağlı bir dağılım bulunduğunu göstermektedir.
Şekil 6 ne anlatıyor?
Şekil 6’nın A ve B panelleri düşük ve yüksek besleme koşullarındaki hücre büyümesi, karbon kaynakları, 2,3-dihidroksibenzoat tüketimi ve iki ürünün zaman içindeki değişimini göstermektedir.
C ve D panelleri pyoverdine floresansını üretim süreciyle birlikte izlemektedir. E paneli ise demirsiz, normal demirli, yüksek demirli, myxochelin A eklenmiş ve 2,3-dihidroksibenzoat eklenmiş kontrol kültürlerini karşılaştırmaktadır.
Şekil, en yüksek üretimin yaklaşık 34. saatte elde edildiğini, kültür süresi uzatıldığında ürün kaybı oluştuğunu ve pyoverdine yanıtının güçlü demir açlığı kontrolüne göre düşük kaldığını göstermektedir.
Çalışmanın geçmiş açısından önemi
Önceki myxochelin araştırmaları büyük ölçüde doğal üreticilere, in vitro enzim sistemlerine veya myxochelin türevlerinin oluşturulmasına odaklanmıştır. Bu çalışma, yazarların bildiği kadarıyla myxochelin A’nın başka bir bakteriyel konakta heterolog biçimde üretildiğini bildiren ilk çalışmadır.
Çalışma, doğal üreticinin karmaşık düzenleyici sistemlerinden bağımsız, genetik olarak değiştirilebilir ve tanımlı mineral ortamda çalışabilen alternatif bir üretim platformu ortaya koymaktadır.
Bugün açısından önemi
Araştırma, biyosentetik gen kümesinin aktarılmasının yalnızca başlangıç olduğunu göstermektedir. Yüksek üretim için gen ifadesi, öncül akışı, enerji durumu, konak metabolizması, ürün dönüşümü ve proses zamanı birlikte düzenlenmelidir.
Beklenmedik azotochelin oluşumu, heterolog konak metabolizmasının üretim yoluna müdahale edebileceğini göstermesi bakımından özellikle önemlidir. Konak hücre istenen reaksiyonları yürütürken kendi enzimleriyle istenmeyen veya alternatif ürünler de oluşturabilir.
Gelecek açısından önemi
Çalışma birkaç açık geliştirme alanı bırakmaktadır:
- Azotochelin kimliğinin LC-MS ve saf standartla doğrulanması,
- Myxochelin A’yı azotocheline dönüştüren aldehit dehidrogenazların belirlenmesi,
- İstenmeyen dönüşümü azaltacak gen silmelerinin denenmesi,
- MxcE, MxcF ve MxcG arasındaki fiziksel etkileşimlerin incelenmesi,
- 2,3-dihidroksibenzoatın de novo üretiminin dengeli biçimde artırılması,
- Salisilatla uyarılan sistem yerine sürekli çalışan promotör kullanılması,
- Fed-batch fermantasyonla üretim döneminin uzatılması,
- Adsorban reçineyle ürünün kültürden üretim sırasında uzaklaştırılması,
- Oksidasyon ve polimerleşmeyi azaltacak proses koşullarının geliştirilmesi,
- Ürün saflaştırma verimi ve maliyetlerinin belirlenmesi.
Sanayi ve biyoteknoloji açısından anlamı
226 mg/L düzeyi, araştırma ölçeğinde önemli bir artıştır ve doğal üreticilere göre daha yüksek bir titre sunmaktadır. Tanımlı mineral besiyeri kullanılması, bileşimi değişebilen karmaşık organik besiyerlerine göre süreç kontrolünü kolaylaştırabilir.
Bununla birlikte 2 litrelik biyoreaktörden endüstriyel üretime doğrudan geçilemez. Karıştırma, oksijen aktarımı, köpük oluşumu, ısı transferi, sterilizasyon, hammadde maliyeti, genetik kararlılık ve downstream processing daha büyük ölçekte yeniden değerlendirilmelidir.
Çalışma ticari üretim maliyeti, saf ürün geri kazanımı, üretim kampanyası süresi veya ekonomik fizibilite analizi sunmamaktadır. Dolayısıyla “endüstriyel üretim hazırdır” sonucu çıkarılamaz.
Sağlık açısından anlamı
Daha yüksek üretim miktarı, myxochelin A’nın biyolojik etkilerinin daha ayrıntılı incelenmesini kolaylaştırabilir. Ancak bu çalışma myxochelin A’nın insanlarda inflamasyon, kanser veya başka bir hastalık üzerindeki etkisini değerlendirmemiştir.
Üretilen bileşiklerin farmasötik saflığı, toksisitesi, farmakokinetiği, hücre seçiciliği veya hayvanlardaki güvenliği ölçülmemiştir. Bu nedenle çalışma bir tedavi kanıtı değil, doğal ürün araştırmaları için üretim altyapısı çalışmasıdır.
Çalışmanın güçlü yönleri
- Doğal ürün gen kümesinden kontrollü biyoreaktör üretimine kadar bütün geliştirme zinciri incelenmiştir.
- Birden fazla genetik modül deneysel olarak karşılaştırılmıştır.
- Karbon kaynakları ve öncül desteği sistematik biçimde taranmıştır.
- Gen ifadesindeki darboğazlar aşamalı olarak belirlenmiştir.
- mxcG kodon optimizasyonu ile ikinci mxcEF kopyasının etkileri ayrı aşamalarda değerlendirilmiştir.
- Ürün oluşumu zaman serileriyle izlenmiştir.
- Beklenmedik azotochelin oluşumu göz ardı edilmemiş, ayrı bir ürün olarak araştırılmıştır.
- Mikroplaka ölçeğinden kontrollü 2 litrelik biyoreaktöre geçilmiştir.
- pH, çözünmüş oksijen, karıştırma ve örnekleme biyoreaktörde kontrollü yürütülmüştür.
- Titre yanında üretim hızı ve biyotransformasyon verimi de raporlanmıştır.
- Myxochelin A’nın olası demir açlığı etkisi pyoverdine floresans kontrolleriyle incelenmiştir.
- Tanımlı mineral besiyeri kullanılmıştır.
Çalışmanın sınırlılıkları
- Çalışma hakem değerlendirmesinden geçmemiş bir preprinttir.
- Dosyada hakem yorumları bulunmasına rağmen dergi kabulü gösterilmemektedir.
- Azotochelin için ticari veya saflaştırılmış doğrulanmış standart kullanılmamıştır.
- Azotochelin kimliği LC-MS veya NMR ile doğrulanmamıştır.
- Ürünlerin demir bağlı ve demirsiz biçimleri ayrı olarak ölçülmemiştir.
- Myxochelin A ve azotochelin yeterli miktarda saflaştırılarak yapısal doğrulamaya götürülememiştir.
- Karbon kaynağı karşılaştırmalarında toplam karbon molü eşit tutulmamıştır.
- Bazı mikroplaka deneylerinde biyolojik tekrar sayısı üç, aykırı değer çıkarılan koşullarda ikidir.
- Biyoreaktör deneyleri iki biyolojik tekrar üzerinden yürütülmüştür.
- MxcE, MxcF ve MxcG etkileşimleri doğrudan ölçülmemiştir.
- Azotochelin oluşumundan sorumlu konak enzimleri tanımlanmamıştır.
- Myxochelin A’nın azotocheline dönüşümünün tersinir mekanizması doğrudan kanıtlanmamıştır.
- Ürün kaybının oksidasyon, polimerleşme veya başka bir süreçten kaynaklandığı kimyasal olarak gösterilmemiştir.
- Tam karbon ve metabolit kütle dengesi sunulmamıştır.
- Fed-batch veya sürekli üretim denenmemiştir.
- Saflaştırma verimi, ürün geri kazanımı ve ekonomik analiz yapılmamıştır.
- Farmakolojik, hayvan veya klinik doğrulama bulunmamaktadır.
Çalışma ne söylüyor?
- Myxochelin A biyosentezi P. taiwanensis VLB120’de heterolog olarak kurulabilmiştir.
- İlk üretim düzeyi yaklaşık 0,6 mg/L’dir.
- Karbon ve enerji kaynağı kombinasyonları üretimi artırmıştır.
- Oktanoatın yararı özellikle artırılmış MxcG kapasitesiyle birlikte belirginleşmiştir.
- İkinci mxcEF kopyası üretimde büyük bir artış sağlamıştır.
- 2,3-dihidroksibenzoat tedariki sonraki aşamada darboğaz hâline gelmiştir.
- Besiyeri ve suş optimizasyonuyla myxochelin A üretimi 226,4 mg/L’ye ulaşmıştır.
- Aynı süreçte azotochelin benzeri ikinci ürün oluşmuştur.
- Myxochelin A üretim suşu tarafından yeniden alınarak azotochelin benzeri ürüne dönüştürülebilmektedir.
- Üretim ve hasat zamanı ürün kaybını önlemek açısından kritiktir.
Çalışma ne söylemiyor?
- Azotochelinin kimliğini kesin moleküler yöntemlerle kanıtlamamaktadır.
- Hangi aldehit dehidrogenazın dönüşümü gerçekleştirdiğini göstermemektedir.
- Oktanoatın etkisini metabolik akış düzeyinde kanıtlamamaktadır.
- Artan mxcEFG ifadesinin moleküler mekanizmasını çözmemektedir.
- Üretim suşunun endüstriyel ölçekte ekonomik olduğunu göstermemektedir.
- Myxochelin A’nın insanlarda güvenli veya etkili bir tedavi olduğunu göstermemektedir.
- Kanser, inflamasyon veya başka hastalıklarda klinik fayda kanıtı sunmamaktadır.
- Üretilen ürünlerin farmasötik kullanıma hazır olduğunu göstermemektedir.
Çalışmanın Yöntemi ve Bulguları
Çalışma tasarımının teknik özeti
| Aşama | Uygulanan yaklaşım | Amaç | Temel sonuç |
|---|---|---|---|
| Konak seçimi | P. taiwanensis VLB120 şasi suşları | Aromatik bileşiklere toleranslı ve genetik olarak erişilebilir üretim konağı oluşturmak | Myxochelin A varlığında büyüyebilen konak seçildi. |
| Öncül akışının artırılması | Şikimat yolu düzenlemeleri ve yıkım yolu silmeleri | 2,3-dihidroksibenzoat tedarikini artırmak | Tek başına öncül kapasitesini artırmak yüksek üretim sağlamadı. |
| Gen kümesi aktarımı | mxcCDEFGK ve mtaA modüllerinin kromozomal entegrasyonu | Myxochelin A biyosentezini kurmak | İlk üretim yaklaşık 0,6 mg/L oldu. |
| Yan ürün önleme | mxcL geninin üretim modülüne alınmaması | Myxochelin B oluşumunu azaltmak | Hedef yol myxochelin A yönünde tasarlandı. |
| Karbon taraması | Glikoz veya gliserol ile sitrat, asetat, süksinat ve oktanoat | Enerji ve redoks tedarikini geliştirmek | Gliserol-oktanoat kombinasyonu toplam üretimi artırdı. |
| MxcG artırılması | Kodon optimize mxcG geninin plazmit üzerinden ifadesi | NRPS basamağındaki kapasiteyi artırmak | Yarar yalnızca yeterli ek enerji kaynağıyla belirginleşti. |
| MxcEF artırılması | İkinci kromozomal mxcEF kopyası | 2,3-dihidroksibenzoat aktivasyonu ve taşınmasını güçlendirmek | Toplam üretim 151,2 mg/L düzeyine çıktı. |
| Öncül desteği | 0,5–2 mM 2,3-dihidroksibenzoat | Yeni oluşan öncül darboğazını aşmak | Toplam mikroplaka üretimi 163,1 mg/L’ye ulaştı. |
| Biyoreaktör ölçekleme | 2 L DASGIP reaktör, 1 L çalışma hacmi | Kontrollü yüksek yoğunluklu üretimi sınamak | 226,4 mg/L myxochelin A ve 56,6 mg/L azotochelin elde edildi. |
| Analiz | HPLC-DAD ve HPLC-RID | Karbon kaynakları, öncül ve ürünleri ölçmek | Myxochelin A standartla; azotochelin dolaylı karşılaştırmayla değerlendirildi. |
| Demir yanıtı | Pyoverdine floresans ölçümü | Myxochelin kaynaklı demir açlığı olasılığını değerlendirmek | Güçlü demir açlığı yanıtı görülmedi. |
Kullanılan temel suş düzenlemeleri
- pobA, hpd, quiC, quiC1, quiC2 ve benABCD yıkım yollarının silinmesiyle aromatik öncül kayıpları azaltılmıştır.
- pykA silinmesi ve TrpE P290S ile AroF-1 P148L değişiklikleriyle şikimat yoluna karbon akışı artırılmıştır.
- Gen modülleri mini-Tn7 tabanlı sistemle kromozomdaki attTn7 bölgesine yerleştirilmiştir.
- P14f ve P14c sentetik promotörleri kullanılmıştır.
- MxcK ihracat proteini üretim modülüne dahil edilmiştir.
- Myxochelin B oluşumunu azaltmak için mxcL çıkarılmıştır.
- MxcF ve MxcG’nin fosfopanteteinlenmesi için mtaA ifade edilmiştir.
- mxcG konak bakteriye göre kodon optimize edilmiştir.
- İkinci mxcEF kopyası kromozoma eklenmiştir.
Küçük ölçekli kültür koşulları
- Kültür sistemi: 24 kuyulu System Duetz plakaları.
- Çalışma hacmi: 1,5 mL.
- İnkübasyon sıcaklığı: 30°C.
- Çalkalama: 300 rpm, 50 mm hareket çapı.
- Başlangıç hücre yoğunluğu: OD600 = 0,05.
- Glikoz ön kültürü: 20 mM glikoz.
- Gliserole uyum ön kültürü: 40 mM gliserol ve 2 mM glikoz.
- Salicylate-inducible sistem için 0,1 mM sodyum salisilat.
- Kültür süreleri: deneye göre 24 veya 48 saat.
Biyoreaktör koşulları
- Reaktör hacmi: 2 L.
- Çalışma hacmi: 1.000 mL.
- Besiyeri: İki kat tamponlanmış mineral tuz ortamı.
- Başlangıç OD600: 0,05.
- Başlangıç karıştırma: 400 rpm.
- Karıştırma kontrol aralığı: 400–800 rpm.
- Başlangıç havalandırma: 60 standart litre/saat.
- Hava akışı kontrolü: 1–2 vvm.
- Çözünmüş oksijen: %30.
- pH: 7.
- pH kontrolü: 2 M NaOH ve 2 M H2SO4.
- Örnekleme aralığı: 3 saat.
Analitik yöntemler
| Ölçüm | Yöntem | Önemli ayrıntı |
|---|---|---|
| Hücre yoğunluğu | 600 nm optik yoğunluk | OD600 büyüme göstergesi olarak kullanıldı. |
| Glikoz, gliserol ve organik asitler | HPLC-RID | 5 mM H2SO4, 0,6 mL/dakika, 60°C. |
| Myxochelin A | HPLC-DAD | Ticari myxochelin A standardı kullanıldı. |
| Azotochelin | HPLC tutulma zamanı ve UV-VIS karşılaştırması | Saf standart ve LC-MS doğrulaması yoktur. |
| Pyoverdine | Floresans ölçümü | 398 nm uyarma, 456 nm maksimum emisyon. |
| İstatistik | İki yönlü t-testi veya tek yönlü ANOVA | Anlamlılık sınırı p < 0,05. |
Üretim artışının aşamalı özeti
| Optimizasyon aşaması | Myxochelin A | Azotochelin | Toplam veya önemli sonuç |
|---|---|---|---|
| İlk üretim modülü | 0,6 ± 0,0 mg/L | Başlangıç analizinde ayrı ölçülmedi | Heterolog üretim kuruldu. |
| 40 mM gliserol + 12 mM oktanoat | 1,5 mg/L | 8,1 mg/L | Toplam 9,6 mg/L |
| Ek kodon optimize MxcG, 48 saat | Karbon koşuluna göre birleşik ölçüm | Gliserol + oktanoatla 44,5 ± 16,7 mg/L toplam | |
| İkinci mxcEF kopyası | 51,7 ± 0,0 mg/L | 99,5 ± 0,6 mg/L | Toplam yaklaşık 151,2 mg/L |
| Mikroplaka ortam optimizasyonu | 117,8 ± 5,9 mg/L | 45,3 ± 0,9 mg/L | Toplam 163,1 ± 6,8 mg/L |
| İlk biyoreaktör koşulu | 115,7 ± 1,8 mg/L | 23,2 ± 1,4 mg/L | 25. saatte maksimum |
| Yüksek beslemeli biyoreaktör | 226,4 ± 1,3 mg/L | 56,6 ± 8,7 mg/L | 34. saatte maksimum |
En iyi biyoreaktör performansının sayısal özeti
| Parametre | Sonuç |
|---|---|
| Gliserol | 80 mM |
| Oktanoat | 30 mM |
| 2,3-dihidroksibenzoat | 2 mM |
| Maksimum OD600 | 15,0 ± 0,3 |
| Maksimum hücre yoğunluğuna ulaşma süresi | 28 saat |
| Myxochelin A titresi | 226,4 ± 1,3 mg/L |
| Azotochelin titresi | 56,6 ± 8,7 mg/L |
| Maksimum titre zamanı | 34 saat |
| Toplam ürün | 0,70 ± 0,02 mM |
| Tüketilen 2,3-dihidroksibenzoat | 1,64 ± 0,12 mM |
| Biyotransformasyon verimi | %34,8 ± 1,2 mol/mol |
| Birleşik maksimum üretim hızı | 26,7 ± 1,8 mg L−1 saat−1 |
| Myxochelin A maksimum üretim hızı | 21,7 ± 1,0 mg L−1 saat−1 |
Sonuçların teknik değerlendirmesi
- İlk aşamada öncül tedarikinden çok biyosentetik genlerin dengeli ifadesi sınırlayıcı olmuştur.
- MxcG miktarını artırmak yalnızca yeterli enerji desteği bulunduğunda yarar sağlamıştır.
- MxcE ve MxcF düzeylerinin artırılması üretimde en büyük genetik sıçramayı oluşturmuştur.
- Bu iyileştirmeden sonra 2,3-dihidroksibenzoat tedariki yeni darboğaz hâline gelmiştir.
- Gliserol ve oktanoat birlikte yüksek üretimi desteklemiştir.
- Konak metabolizması hedef ürünün azotochelin benzeri ikinci bir ürüne dönüşmesine yol açmıştır.
- Myxochelin A ile azotochelin oranı besiyeri bileşimine ve kültür süresine bağlıdır.
- En yüksek ürün miktarına ulaşıldıktan sonra fermantasyonun sürdürülmesi ürün kaybına yol açmıştır.
- Biyoreaktör ölçeklemesi mikroplaka titresinin üzerinde üretim sağlamıştır.
- Yüksek titreye rağmen öncül dönüşüm verimi ve ürün kararlılığı daha fazla iyileştirme gerektirmektedir.
Kaynak ve Yöntem Notu
Bu içerik, Franziska Kofler, Astrid Wirtz, Amelie Jäger, Dominik Oskamp, Seung-Hyun Paik, Thomas Drepper, Benedikt Wynands ve Nick Wierckx tarafından hazırlanan “Metabolic Engineering of Pseudomonas Taiwanensis for Heterologous Production of Myxochelin” başlıklı çalışmaya dayanmaktadır.
Yüklenen dosya; hakem değerlendirme yorumlarını, yazarların bu yorumlara verdiği yanıtları, revize ana metni ve şekilleri bir arada içermektedir. Bununla birlikte her sayfada “This preprint research paper has not been peer reviewed” uyarısı bulunmaktadır. Bu nedenle çalışma hakemli yayımlanmış makale olarak değil, hakem değerlendirmesinden geçmemiş preprint olarak ele alınmalıdır.
Yazar yanıtlarında çalışmanın başka bir dergiye aktarılmasından söz edilmiştir; ancak dosyada dergi kabulü, yayımlanmış nihai sürüm veya tamamlanmış hakemlik bilgisi bulunmamaktadır.
Araştırma klinik çalışma değildir. Genetiği düzenlenmiş P. taiwanensis bakterilerinde gerçekleştirilen metabolik mühendislik, mikroplaka kültürü, HPLC analizi, floresans ölçümü ve 2 litrelik biyoreaktör deneylerinden oluşmaktadır.
Myxochelin A ticari standartla HPLC üzerinden ölçülmüştür. Azotochelin için doğrulanmış standart bulunmadığından, üretim suşundaki bilinmeyen pik Azotobacter vinelandii kültüründeki pikin tutulma zamanı ve UV-VIS spektrumuyla karşılaştırılmıştır. Yazarların hakem yanıtında LC-MS analizi yapamadıkları açıkça belirtilmiştir. Bu nedenle azotochelin tanımlaması güçlü fakat dolaylı analitik kanıta dayanmaktadır.
HPLC analizlerinin asidik koşullarda yürütülmesi, sideroforlara bağlı demirin ayrılmasını ve analitik ekipmandan alınan demire göre piklerin değişmesini önlemeyi amaçlamıştır. Ancak ürünlerin demir bağlı holo biçimleri ile demirsiz apo biçimleri ayrı olarak karakterize edilmemiştir.
Çalışmada bildirilen farmakolojik özellikler önceki literatürden aktarılmıştır. Mevcut araştırma 5-lipoksijenaz inhibisyonunu, antitümör etkiyi, insan güvenliğini veya klinik tedavi başarısını test etmemiştir.
Bu Türkçe makale yüklenen çalışmadaki deney düzenekleri, sayısal sonuçlar, şekiller, yazar yorumları ve açıkça belirtilen sınırlılıklar temel alınarak hazırlanmıştır. PDF’de bulunmayan klinik etki, tedavi garantisi, endüstriyel başarı, ticari kârlılık veya güvenlik iddiaları eklenmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir