

Myxochelin A, бактериялардын темирди кармоосуна жардам берген katekolat sыnыfы бир сидерофор. Табигый түрдө айрым миксобактериялар тарабынан өндүрүлгөнүнө карабастан табигый өндүрүш көлөмүнүн төмөн болушу, кошулманын изилдөө жана мүмкүн болгон биотехнологиялык колдонмолор үчүн жетиштүү өлчөмдө алууну кыйындатат. Franziska Kofler жана кесиптештери, myxochelin A биосинтез гендерин жеңилирээк өстүрүлө турган жана генетикалык жактан өзгөртүлө турган Pseudomonas taiwanensis VLB120 бактериясына өткөрүп бул маселени чечүүнү максат кылган.
Изилдөөda гана бир ген кластери башка бактерияга көчүрүү менен yetinilmemiшtir. Өндүрүш процессинин баары; ээ бактериянын seчilmesi, biyosentetik genlerin хромосомага жайгаштыруу, ген экспрессия деңгээлдерин жогорулатуу, көмүртек жана энергия булактарынын deгiшtirilmesi, прекурсор молекула desteгi, үrүn dөnүшүmlerinin izlenmesi жана iшlemin көзөмөлдүү биореакторго taшыnmasы баскычтары менен системалуу түрдө жакшыртылган.
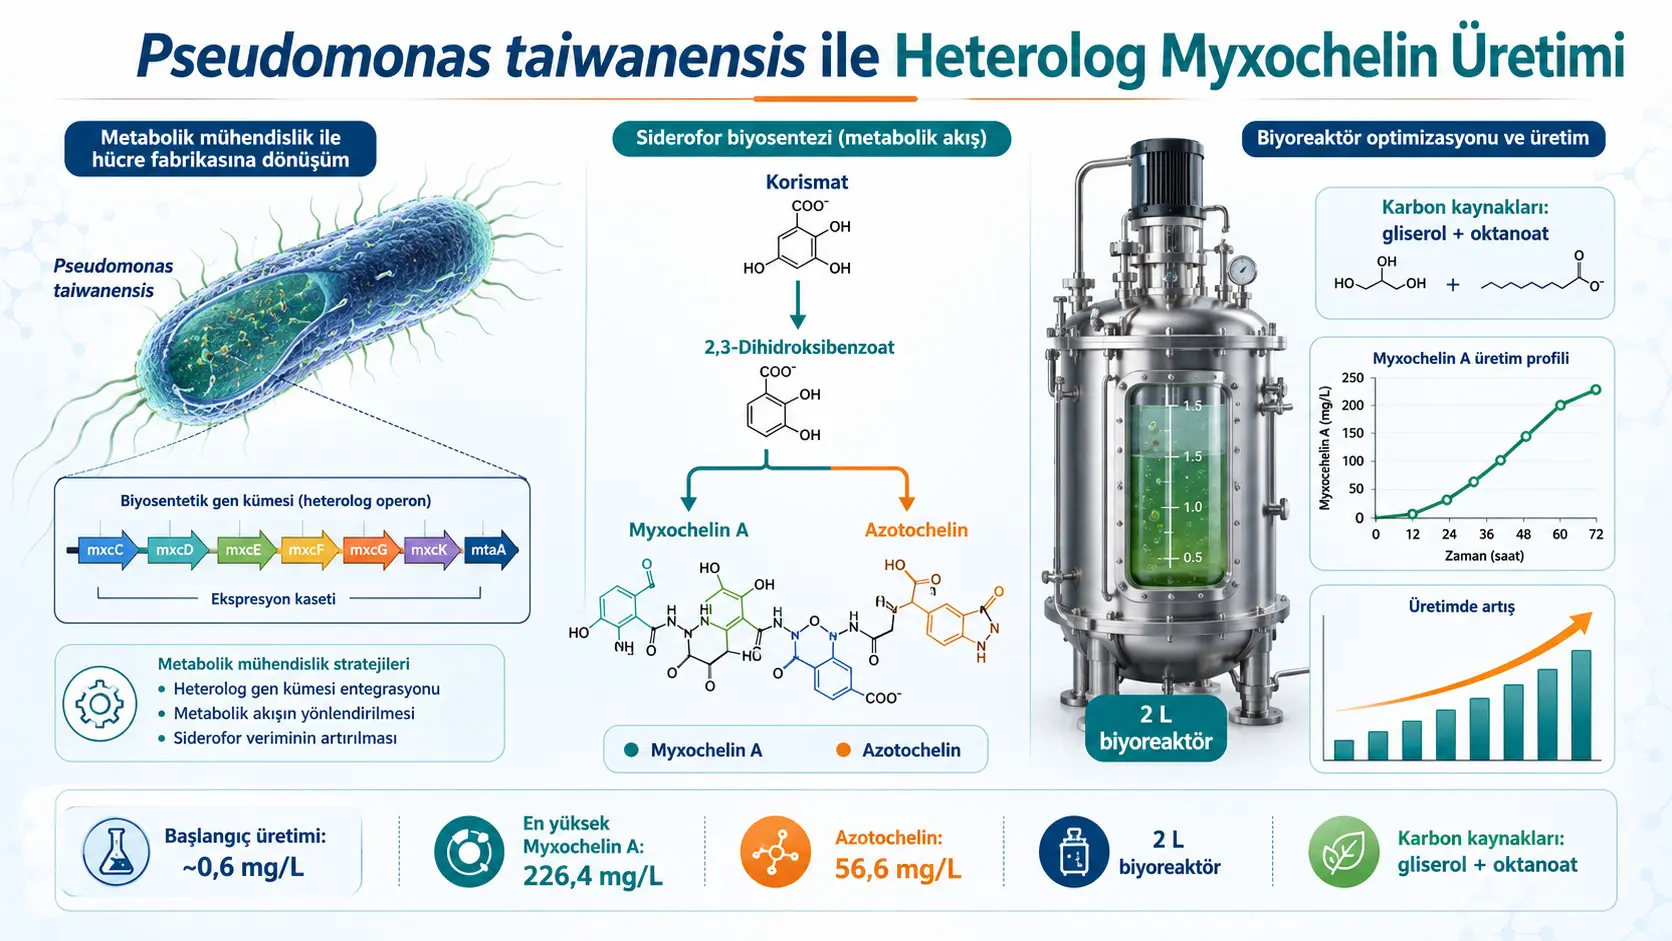
Иlk tasarlanan өндүрүш штаммы глюкозадан гана yaklaшыk 0,6 mg/L myxochelin A өндүргөн. Генетикалык өзгөртүүлөр жана азыктандыруучу чөйрө оптималдаштыруулары натыйжасында 2 litrelik биореактордо myxochelin A концентрациясы 226,4 ± 1,3 mg/L’ye жогорулаган. Aynы sүreчte структуралык жактан окшош baшka бир siderofor olan azotochelin de 56,6 ± 8,7 mg/L dүzeyinde пайда болгон. Баштапкы 0,6 mg/L мааниси менен салыштырганда myxochelin A titresindeki өсүш 300 эседен көп.
Изилдөөnыn маанилүү жана beklenmedik табылгаlarыndan biri, myxochelin A өндүрүш genlerinin P. taiwanensis hүcresine aktarыlmasыnыn azotochelin oluшumuna da yol aчmasыdыr. Zaman serisi deneyleri, үretimin белгилүү бир aшamasыndan sonra myxochelin A miktarы azalыrken azotochelin miktarыnыn artabildiгini gөstermiшtir. Araшtыrmacыlar бул durumu, myxochelin biyosentezindeki aldehit ara үrүnүnүn ээ бактериянын kendi oksidasyon enzimleri tarafыndan azotocheline yөnlendirilmesiyle aчыklamaktadыr.
Ancak azotochelin kimliгi kүtle spektrometrisiyle doгrulanmamышtыr. Araшtыrmacыlar ticari azotochelin standardыna sahip olmadыklarы үчүн, azotochelin үreten Azotobacter vinelandii kүltүrүndeki HPLC pikinin tutulma zamanыnы жана UV-VIS spektrumunu өндүрүш штаммыndaki bilinmeyen pikle karшыlaшtыrmышtыr. Benzerlik, кошулманын azotochelin olduгu yorumunu desteklemektedir; бирок LC-MS veya saflaшtыrыlmыш standartla kesin yapыsal doгrulama sunulmamышtыr.
Үretimdeki ilk darboгazыn гана прекурсор молекула yetersizliгi olmadыгы gөrүlmүшtүr. MxcG enziminin kodon optimizasyonu жана өzellikle mxcE менен mxcF genlerinin ikinci kopyalarыnыn eklenmesi, үretimde belirgin бир sычrama saгlamышtыr. Бул жыйынтык, прекурсор молекула 2,3-dihidroksibenzoatыn aktive edilmesi, taшыyыcы proteine baгlanmasы жана lysinle birleшtirilmesi aшamalarыndaki enzim miktarlarыnыn sыnыrlayыcы olduгunu dүшүndүrmektedir.
Karbon kaynaгы seчimi de өндүрүшү gүчlү biчimde etkilemiшtir. Glikoz veya gliserolүn tek baшыna kullanыlmasыna kыyasla, gliserol менен oktanoatыn birlikte verilmesi дагы жогорку toplam үrүn dүzeyleri saгlamышtыr. Oktanoatыn beta oksidasyonla asetil-KoA’ya dөnүшtүrүlerek энергия метаболизмине katkы verebileceгi; gliserolүn ise glikoza боюнча дагы indirgenmiш бир көмүртек kaynaгы катары indirgeme eшdeгerlerinin saгlanmasыna yardыmcы olabileceгi tөсүшыlmышtыr. Bununla birlikte бул metabolik aчыklamalar түз akыш analiziyle kanыtlanmamышtыr.
En iyi өндүрүш штаммы kontrollү 2 litrelik biyoreaktөre taшыndыгыnda, 80 mM gliserol, 30 mM oktanoat жана 2 mM 2,3-dihidroksibenzoat iчeren koшulda 34. saatte 226,4 mg/L myxochelin A жана 56,6 mg/L azotochelin elde edilmiшtir. Бул жыйынтык tanыmlы mineral besiyerinde gerчekleшtirilmiш жана yazarlarыn karшыlaшtыrmasыna боюнча doгal үreticiler үчүн дагы өnce bildirilen myxochelin A dүzeylerini aшmышtыr.
Bununla birlikte изилдөө бир ilaч geliшtirme, клиникалык etkinlik veya kanser tedavisi изилдөөsы эмес. Myxochelin A’nыn 5-lipoksijenazы baskыlamasы жана hүcresel modellerde bildirilen biyolojik etkileri изилдөөnыn gerekчesini oluшturan өnceki literatүre aittir. Бул изилдөөda адам hүcreleri, жаныбар tүmөr modelleri, ilaч gүvenliгi veya tedavi baшarыsы incelenmemiшtir.
Изилдөөnыn негизги problemi nedir?
Doгal үrүnler, mikroorganizmalar, bitkiler veya diгer canlыlar tarafыndan үretilen жана karmaшыk biyolojik iшlevler taшыyabilen molekүllerdir. Bunlarыn бир bөlүmү ilaч изилдөөlarыnda, tarыmda, чevresel arыtmada veya endүstriyel biyoteknolojide kullanыlabilecek өzelliklere sahiptir. Ancak doгal үreticiler hedef molekүlү абдан төмөн miktarda үretiyorsa, кошулманын saflaшtыrыlmasы жана ayrыntыlы biчimde incelenmesi zorlaшыr.
Myxochelin A бул probleme iyi бир өrnektir. Bileшik doгal катары Myxococcus xanthus, Stigmatella aurantiaca жана baшka miksobakteriler tarafыndan үretilebilir. Miksobakteriler deгerli ikincil metabolitler oluшturmalarыna raгmen kүltүr koшullarы, bүyүme biчimleri жана dүzenleyici sistemleri endүstriyel өндүрүш aчыsыndan karmaшыk болушу мүмкүн. Myxochelin өндүрүшү ayrыca demir dүzeyi сыяктуу чevresel koшullardan etkilenir.
Araшtыrmacыlarыn чөzmeye чalышtыгы негизги problem шudur: Myxochelin A’nыn doгal үreticisine baгыmlы kalmadan, genetik катары дагы kolay yөnetilebilen бир bakteride жогорку miktarda жана контроль edilebilir biчimde үretilmesi mүmkүn mүdүr?
Myxochelin A жана siderofor kavramы
Sideroforlar, mikroorganizmalarыn чevredeki demiri baгlamak үчүн үrettiгi kүчүk molekүllerdir. Demir birчok hүcresel reaksiyon үчүн zorunlu olmasыna raгmen өzellikle oksijenli ortamlarda serbest жана kolay kullanыlabilir biчimde bulunmayabilir. Mikroorganizmalar бул nedenle demire жогорку ilgi gөsteren molekүller salgыlar. Siderofor demiri baгladыktan sonra oluшan kompleks, клетка yүzeyindeki taшыma sistemleri aracыlыгыyla iчeri alыnabilir.
Myxochelin A, demiri baгlayan katekol gruplarы taшыyan бир сидерофор. Molekүlүn iskeleti эки 2,3-dihidroksibenzoat birimi менен бир lysin molekүlүnүn birleшmesine dayanыr. Azotochelin de ошол эле негизги өncүllerden oluшan, бирок uч fonksiyonel grubunun oksidasyon durumu bakыmыndan farklыlaшan yakыn akraba бир сидерофор.
Sideroforlarыn gүчlү metal baгlama өzellikleri чevresel metal kompleksleшtirme, mikrobiyal rekabet, bitki-mikrop etkileшimleri жана doгal үrүn изилдөөlarы aчыsыndan өnemlidir. Bununla birlikte mevcut изилдөө бул uygulamalarыn hiчbirini түз test etmemiшtir; гана өндүрүш sistemini geliшtirmiшtir.
Myxochelin A neden bilimsel ilgi gөrүyor?
Изилдөөnыn giriш bөlүmүnde, myxochelin A жана bazы tүrevlerinin адам 5-lipoksijenaz enzimi үzerinde gүчlү inhibitөr etkinlik gөsterdiгini bildiren өnceki изилдөөlara yer verilmiшtir. 5-lipoksijenaz, lөkotrien biyosentezinde gөrev yapan жана inflamatuvar yanыtlarla iliшkili бир enzimdir. Myxochelin A үчүн клетка жана laboratuvar temelli antitүmөr veya antimetastatik таасирлер de дагы өnce билдирилген.
Бул bilgiler, myxochelin A’nыn изилдөө amacыyla дагы жогорку miktarda үretilmesinin neden deгerli olabileceгini aчыklar. Ancak бир enzimin laboratuvar ortamыnda baskыlanmasы, molekүlүn insanlarda etkili жана gүvenli бир ilaч olduгu anlamыna gelmez. Mevcut изилдөө farmakolojik doгrulama yapmamыш; гана mikrobiyal өндүрүшү geliшtirmiшtir.
Heterolog өндүрүш ne anlama geliyor?
Heterolog өндүрүш, бир canlыnыn doгal катары sahip olmadыгы biyosentetik genlerin baшka бир canlыya aktarыlmasы жана hedef molekүlүn бул yeni konakta үretilmesidir. Burada myxochelin biyosentez genleri doгal miksobakteriyel baгlamыndan alыnarak Pseudomonas taiwanensis VLB120 hүcresine aktarыlmышtыr.
Бул yaklaшыm, бир өндүрүш hattыnыn baшka бир fabrikaya taшыnmasыna benzetilebilir. Ancak biyolojik үretimde makineler genler жана enzimlerdir. Yeni fabrikanыn энергия sistemi, hammadde akышы, yardыmcы enzimleri, taшыyыcы proteinleri жана atыk iшleme mekanizmalarы eski fabrikadan farklыdыr. Dolayыsыyla genleri aktarmak чoгu zaman tek baшыna yeterli olmaz.
Neden Pseudomonas taiwanensis VLB120 seчildi?
P. taiwanensis VLB120, ар түрдүү көмүртек kaynaklarыnы kullanabilen, aromatik bileшiklere gөrece toleranslы, genetik катары dүzenlenebilir жана biyoproses изилдөөlarыnda дагы өnce kullanыlmыш бир bakteriyel konaktыr. Araшtыrma grubunun бул bakteri үzerinde geliшtirdiгi genomu sadeleшtirilmiш шasi suшlarы жана aromatik bileшik өндүрүш deneyimi de seчimde rol oynamышtыr.
Yazarlar ayrыca өндүрүш штаммыnun 50 mg/L’ye kadar myxochelin A bulunan ortamda bүyүyebildiгini gөsteren tolerans deneyi eklemiшtir. Бул жыйынтык bakterinin, myxochelin A’nыn metal baгlayыcы etkisinin oluшturabileceгi strese белгилүү dүzeyde dayanabildiгini desteklemektedir.
Bununla birlikte Pseudomonas metabolizmasыnыn geniшliгi гана avantaj эмес. Konak hүcrenin doгal aldehit dehidrogenazlarы, hedef biyosentez yolundaki ara үrүnleri ар түрдүү бир үrүne чevirebilir. Изилдөөda beklenmedik azotochelin oluшumu tam катары бул чift yөnlү metabolik esnekliгin өrneгidir.
Myxochelin biyosentez yolu nasыl чalышыyor?
Сүрөт 1, myxochelin A үretimini oluшturan негизги enzimleri жана ara basamaklarы шematik катары көрсөтөт. Sүreч, merkezi metabolit chorismate үzerinden baшlar.
- MxcD, chorismateы isochorismate dөnүшtүrүr.
- MxcF’nin isochorismatase bөlgesi, isochorismateы 2,3-dihidroksi-2,3-dihidrobenzoata yөnlendirir.
- MxcC, бул ara үrүnү 2,3-dihidroksibenzoata dөnүшtүrүr.
- MxcE, 2,3-dihidroksibenzoatы ATP kullanarak aktive eder.
- Aktive edilen aromatik өncүl MxcF’nin aril taшыyыcы протеин bөlgesine baгlanыr.
- Lysin, MxcG adlы ribozomal olmayan peptit sentetazыn taшыyыcы bөlgesine yүklenir.
- MxcG’nin kondenzasyon bөlgesi, эки 2,3-dihidroksibenzoat birimi менен lysini birleшtirir.
- MxcG’nin redүktaz bөlgesi taшыyыcы proteine baгlы tioesteri indirger жана myxochelin A oluшumuna giden aldehit ara үrүnүnү meydana getirir.
MxcF жана MxcG’nin өncүlleri taшыyabilmesi үчүн MtaA tarafыndan 4’-fosfopantetein kofaktөrүyle post-translasyonel катары deгiшtirilmesi gerekir. Бул kofaktөr, прекурсор молекулаlerin enzime geчici бир tioester baгыyla baгlanmasыnы saгlayan hareketli бир kol сыяктуу чalышыr.
Doгal yolakta MxcL adlы transaminaz bulunursa aldehit ara үrүnү myxochelin B’ye yөnlendirilebilir. Araшtыrmacыlar myxochelin B oluшumunu өnlemek үчүн mxcL genini өндүрүш modүlүne dahil etmemiшtir. MxcK ise oluшan үrүnүn клетка dышыna taшыnmasыna katkы saгlayan ihracat proteini катары eklenmiшtir.
Myxochelin A менен azotochelin arasыndaki ayrыm
Azotochelin de эки 2,3-dihidroksibenzoat жана бир lysin biriminden oluшur. Temel fark, biyosentezin son aшamasыnda taшыyыcы proteine baгlы ara үrүnүn hangi kimyasal biчimde serbest bыrakыldыгыdыr.
Azotobacter vinelandii bakterisindeki EntF enzimi MxcG’den ар түрдүү катары redүktaz yerine tioesteraz bөlgesi taшыr жана ara үrүnү azotocheline yөnlendirir. Myxochelin yolunda ise MxcG’nin redүktaz etkinliгi aldehit жана ardыndan alkol biчimindeki myxochelin A oluшumunu destekler.
Изилдөөdaki P. taiwanensis suшunda azotochelin ген kүmesi bulunmamasыna raгmen azotochelin benzeri үrүn пайда болгон. Araшtыrmacыlar, myxochelin sentezinde ortaya чыkan aldehit ara үrүnүnүn konak hүcredeki aldehit oksidasyon enzimleri tarafыndan karboksilik aside чevrilmiш olabileceгini dүшүnmektedir.
Иlk өндүрүш modүlleri neden yeterli olmadы?
Araшtыrmacыlar baшlangычta 2,3-dihidroksibenzoat tedarikini artыrmak amacыyla ар түрдүү biyosentetik modүlleri karшыlaшtыrmышtыr. Bazы modүllerde miksobakteriyel genlerin yerine Escherichia coli kaynaklы entC, menF, entB жана entA сыяктуу iшlevsel катары benzer genler колдонулган.
Ayrыca lysin yыkыmыnы azaltmak amacыyla davB geni silinmiш, MtaA miktarыnы artыrmak үчүн ek ifade sistemi denenmiш жана glikoz miktarы yүkseltilmiшtir. Buna raгmen өндүрүш artmamыш, bazы tasarыmlarda дагы da төмөндөгөн.
En baшarыlы ilk modүl гана 0,6 ± 0,0 mg/L myxochelin A өндүргөн. Alternatif өncүl modүllerinden biri 0,2 ± 0,0 mg/L’ye kadar төмөндөгөн. Glikozun 20 mM’den 30 mM’ye чыkarыlmasы da өндүрүшү 0,7 mg/L’nin үzerine taшыyamamышtыr.
Бул жыйынтыктар, sorunun гана дагы fazla көмүртек veya дагы fazla өncүl saгlamak olmadыгыnы gөstermiшtir. Araшtыrmacыlar biyosentetik genlerin ifade dүzeyinin жана өzellikle yolun кийинки enzimatik basamaklarыnыn sыnыrlayыcы olabileceгi sonucuna yөnelmiшtir.
Gen kүmesinin dүzeni neden өnemliydi?
Bүyүk biyosentetik ген kүmelerinde гана hangi genlerin bulunduгu deгil, genlerin sыrasы, promotөre uzaklыгы, mRNA kararlыlыгы жана komшu genlerin ifade үzerindeki kutupsal etkileri de өnemlidir. Ишlevsel катары benzer бир genin baшka бир genle deгiшtirilmesi, teorik катары ошол эле reaksiyonu saгlasa bile bүtүn operonun ifade dengesini bozabilir.
Araшtыrmacыlar бул nedenle miksobakteriyel genlerin doгal sыrasыnы koruyan дагы bүtүnlүklү бир өндүрүш modүlүnү de test etmiшtir. Бул modүl toplam 3,8 ± 2,4 mg/L үrүn saгlayabilmiш, бирок bүyүme жана өндүрүш sonuчlarы tekrarlanabilir olmamышtыr. Daha төмөн titre sahip olan 0,6 ± 0,2 mg/L’lik modүl ise дагы kararlы жана tekrarlanabilir olduгu үчүн кийинки optimizasyonlarda tercih edilmiшtir.
Бул tercih, эң жогорку tek өlчүm yerine gүvenilir өндүрүш platformunun seчildiгini көрсөтөт. Biyoproses geliшtirmede ortalama өндүрүш miktarы kadar ар түрдүү kүltүrlerde ошол эле sonucun elde edilebilmesi de өnemlidir.
Azotochelin oluшumu nasыl fark edildi?
Сүрөт 3, myxochelin A’nыn zaman iчindeki deгiшimini ар түрдүү контроль жана өндүрүш suшlarыnda көрсөтөт. Dышarыdan eklenen myxochelin A, hүcresiz besiyerinde жана биосинтез гендерин taшыmayan ana suшta belirgin biчimde parчalanmamышtыr.
Buna karшыlыk myxochelin biyosentez yolunu taшыyan өндүрүш suшlarыnda myxochelin A yaklaшыk 24 saat civarыnda tepe yaptыktan sonra azalmaya baшlamышtыr. Aynы dөnemde ikinci бир HPLC piki ortaya чыkmыш жана myxochelin A azalыrken бул үrүn birikmeye devam etmiшtir.
Бул desen, ikinci кошулманын гана besiyerinde kendiliгinden oluшmadыгыnы; myxochelin biyosentez enzimlerinin veya өндүрүш штаммыnun metabolizmasыnыn dөnүшүmde rol oynadыгыnы dүшүndүrmүшtүr.
Araшtыrmacыlar bilinmeyen piki, doгal azotochelin үreticisi A. vinelandii kүltүrүnүn үst sыvыsыndaki pikle karшыlaшtыrmышtыr. Иki pikin ошол эле HPLC tutulma zamanыna жана benzer UV-VIS spektrumuna sahip olmasы, bilinmeyen кошулманын azotochelin olduгu yorumuna негизги түзгөн.
Ancak бул tanыmlama dolaylыdыr. Azotochelin үчүн saf жана doгrulanmыш standart kullanыlmamыш, LC-MS veya жогорку чөzүnүrlүklү kүtle spektrometrisi yapыlmamыш жана molekүlүn demir baгlы ya da demirsiz biчimleri ayrы ayrы gөsterilmemiшtir. Бул nedenle makalede “azotochelin катары dolaylы biчimde tanыmlanan үrүn” ifadesi bilimsel катары дагы dikkatli бир tanыmdыr.
Үrүnүn yeniden hүcreye alыnmasы ne gөsterdi?
Dышarыdan myxochelin A eklenen өндүрүш штаммыnda, кошулманын клетка tarafыndan alыnabildiгi жана azotochelin benzeri үrүne dөnүшtүrүlebildiгi gөrүlmүшtүr. Бул gөzlem, reaksiyonun гана yeni sentezlenen жана enzime baгlы ara үrүn үzerinde gerчekleшmediгini; клетка dышыna чыkmыш myxochelin A’nыn yeniden iчeri alыnarak metabolik dөnүшүme uгrayabileceгini dүшүndүrmektedir.
Araшtыrmacыlar бул dөnүшүmde MxcG’nin rol oynayabileceгini жана myxochelin A’nыn tekrar aldehit ara үrүne yөnlendirilebileceгini tөсүшmaktadыr. Ancak ters reaksiyonun түз enzim deneyiyle gөsterilmediгi unutulmamalыdыr.
Karbon kaynaklarы neden birlikte kullanыldы?
Bir клетка fabrikasыnыn өндүрүш performansы гана toplam көмүртек miktarыna baгlы эмес. Farklы көмүртек kaynaklarы hүcreye ар түрдүү hыzlarda girer, ар түрдүү metabolik yollara baгlanыr жана ар түрдүү miktarda ATP, NADH veya NADPH oluшmasыna katkы saгlar.
Myxochelin sentezi ATP gerektiren adenilasyon basamaklarы, taшыyыcы протеин aktivasyonu, peptit baгы oluшumu жана indirgeme reaksiyonlarы iчerdiгi үчүн энергия жана indirgeme eшdeгeri bakыmыndan yoгun бир sүreчtir.
Сүрөт 4’te glikoz жана gliserol; sitrat, asetat, sүksinat veya oktanoatla birlikte бааланган. Glikozun tek baшыna kullanыldыгы koшulda toplam өндүрүш 3,3 ± 0,1 mg/L olmuшtur. Glikoza eklenen ikincil көмүртек kaynaklarы toplam өндүрүшү yaklaшыk 4,4–5,8 mg/L aralыгыna yүkseltmiшtir.
Gliserol tek baшыna 24 saatte 1,9 ± 0,0 mg/L үrүn saгlamышtыr. Gliserolүn дагы төмөн baшlangыч performansы, uzun uyum sүresiyle iliшkilendirilmiшtir. Kүltүr sүresi 48 saate uzatыldыгыnda gliserolle өндүрүш 6,1 ± 0,1 mg/L’ye ulaшmышtыr.
Gliserole sitrat, asetat, sүksinat veya oktanoat eklenmesi toplam өндүрүшү yaklaшыk 6,1–9,6 mg/L aralыгыna yүkseltmiшtir. En dikkat чekici ilk kombinasyonlardan biri 40 mM gliserol менен 12 mM oktanoat olmuш; 1,5 mg/L myxochelin A жана 8,1 mg/L azotochelin olmak үzere toplam 9,6 mg/L үrүn elde edilmiшtir.
Oktanoatыn olasы rolү
Oktanoat sekiz karbonlu бир липид asididir. Bakteri hүcresinde beta oksidasyona uгrayarak asetil-KoA birimlerine dөnүшtүrүlebilir. Asetil-KoA, trikarboksilik asit dөngүsүne girerek энергия үretimine katkы saгlayabilir.
Изилдөөda өnerilen негизги iliшki шu шekilde өzetlenebilir:
\[ \mathrm{Oktanoat} \xrightarrow{\beta\text{-oksidasyon}} \mathrm{Asetil\!-\!KoA} \rightarrow \mathrm{TCA\ dөngүsү} \rightarrow \mathrm{энергия\ жана\ indirgeme\ eшdeгerleri} \]
Бул ifade makalede tek бир kimyasal denklem катары verilmemiш, tөсүшmada өnerilen metabolik mantыгы көрсөтөт. Oktanoatыn өндүрүшү tam катары hangi ген veya metabolik akыш үzerinden artыrdыгы izotop iшaretleme ya da metabolik akыш analiziyle doгrulanmamышtыr.
Karbon kaynaгы deneyinin маанилүү sыnыrlыlыгы
Karшыlaшtыrыlan besiyerlerinin toplam көмүртек molү eшit tutulmamышtыr. Өrneгin glikoz, gliserol, sitrat жана oktanoat kombinasyonlarы ар түрдүү toplam көмүртек miktarlarыna sahiptir. Бул nedenle gөzlenen өндүрүш farkыnыn ne kadarыnыn көмүртек kaynaгыnыn metabolik niteliгinden, ne kadarыnыn toplam көмүртек miktarыndan kaynaklandыгыnы kesin biчimde ayыrmak zordur.
Araшtыrmacыlar ар түрдүү oktanoat konsantrasyonlarыnda toplam көмүртек miktarы artmasыna raгmen glikozlu koшullarda үretimin ошол эле oranda yүkselmediгini belirtmiш жана etkinin гана toplam karbonla aчыklanamayacaгыnы savunmuшtur. Yine de eшit karbonlu эксперимент tasarыmы дагы gүчlү бир karшыlaшtыrma saгlayabilirdi.
MxcG dүzeyinin artыrыlmasы
MxcG, lysini taшыyan, aromatik өncүllerin lysinle birleшtirilmesini saгlayan жана son indirgeme basamaгыnda gөrev yapan абдан alanlы ribozomal olmayan peptit sentetazdыr. Бул nedenle yolun энергия gerektiren merkez enzimlerinden biridir.
Araшtыrmacыlar mxcG genini P. taiwanensis үчүн kodon optimize etmiш жана salisilatla uyarыlabilen бир plazmit үzerinden ek катары ifade etmiшtir. Kodon optimizasyonu, konak bakteride seyrek kullanыlan kodonlarыn дагы ылайыктуу eш anlamlы kodonlarla deгiшtirilerek proteinin дагы verimli sentezlenmesini amaчlar.
Oktanoat bulunmadыгыnda ek MxcG ifadesi belirgin бир өндүрүш өсүшы oluшturmamышtыr. Buna karшыlыk glikoz veya gliserol менен birlikte oktanoat verildiгinde ek MxcG’nin yararы ortaya чыkmышtыr.
Бул жыйынтык, гана дагы fazla enzim үretmenin yeterli olmadыгыnы көрсөтөт. MxcG miktarы artыrыldыгыnda enzimin энергия жана indirgeme gereksiniminin de karшыlanmasы gerekir. Baшka бир ifadeyle enzim kapasitesi менен hүcrenin энергия kapasitesi birlikte artыrыlmalыdыr.
Ek mxcG ifadesi жана 12 mM oktanoatla 48 saatlik kүltүrlerde toplam өндүрүш glikoz temelinde 28,1 ± 6,5 mg/L, gliserol temelinde 44,5 ± 16,7 mg/L dүzeyine ulaшmышtыr.
Asыl sычrama: mxcE жана mxcF genlerinin ikinci kopyasы
Ek MxcG үretimine raгmen 2,3-dihidroksibenzoatыn гана sыnыrlы бир bөlүmү үrүne dөnүшmүшtүr. Бул nedenle изилдөөчүлөр өncүlүn aktive edilmesi жана taшыyыcы proteine baгlanmasы basamaklarыna yөnelmiшtir.
MxcE, 2,3-dihidroksibenzoatы ATP kullanarak adenile eder. MxcF ise hem isochorismate dөnүшүmүnde gөrev yapan бир enzim bөlgesi hem de aktive edilmiш aromatik өncүlү taшыyan aril taшыyыcы протеин bөlgesi iчerir.
Үretim suшunun kromozomuna gүчlү жана sүrekli чalышan promotөr altыnda ikinci бир mxcEF kopyasы eklenmiшtir. Бул dүzenlemenin ardыndan glikozun tek көмүртек kaynaгы olduгu koшulda bile toplam үrүn 85,2 ± 3,4 mg/L’ye жогорулаган.
Oktanoat eklenmeden 40 mM gliserolle 100,4 ± 16,1 mg/L; 10 mM glikoz менен 20 mM gliserol birlikte kullanыldыгыnda 125,2 ± 7,0 mg/L toplam үrүn elde edilmiшtir.
20 mM glikoz, 15 mM oktanoat жана dышarыdan 75 mg/L 2,3-dihidroksibenzoat verilen koшulda 51,7 ± 0,0 mg/L myxochelin A менен 99,5 ± 0,6 mg/L azotochelin үretilmiш; toplam titre yaklaшыk 151,2 mg/L’ye ulaшmышtыr.
Бул sычrama, өnceki suшlarda MxcE жана MxcF miktarlarыnыn маанилүү бир darboгaz olduгunu desteklemektedir. Bununla birlikte hangi enzimin tek baшыna ne өlчүde sыnыrlayыcы olduгu жана artan протеин miktarlarыnыn birbirleriyle nasыl etkileшtiгi ayrы enzim deneyleriyle gөsterilmemiшtir.
MxcE, MxcF жана MxcG arasыnda olasы протеин etkileшimleri
MxcF эки ар түрдүү iшlev taшыr: isochorismate dөnүшүmүne katыlыr жана ошол эле zamanda 2,3-dihidroksibenzoatы taшыyan протеин bөlgesini iчerir. Бул nedenle MxcF’nin etkinliгi гана miktarыna deгil, MxcE жана MxcG менен kurduгu fiziksel etkileшimlere de baгlы болушу мүмкүн.
Araшtыrmacыlar ek mxcEF kopyalarыnыn yararыnы aчыklamak үчүн birkaч olasыlыk tөсүшmышtыr:
- MxcE’nin дагы fazla 2,3-dihidroksibenzoatы aktive etmesi,
- MxcF’nin дагы fazla aromatik өncүl taшыyabilmesi,
- MxcE-MxcF-MxcG kompleksinin дагы verimli kurulmasы,
- MxcG’nin MxcF’ye baгlы өncүlү дагы hыzlы kabul etmesi,
- Konak hүcredeki baшka бир enzimin MxcE’ye kыsmen benzer iшlev gөstermesi.
Изилдөө бул olasыlыklarы түз test etmemiшtir. Protein-протеин etkileшim deneyleri, чekme deneyleri, enzim kinetiгi veya yapыsal analiz yapыlmadыгыndan mekanizma aчыk бир изилдөө sorusu катары kalmышtыr.
Biyotransformasyon verimi nasыl hesaplandы?
Изилдөөda biyotransformasyon verimi, oluшan toplam myxochelin A жана azotochelin mol miktarыnыn besiyerine eklenen 2,3-dihidroksibenzoat mol miktarыna oranы үzerinden бааланган:
\[ Y_{\mathrm{BT}} = \frac{n_{\mathrm{myxochelin\ A}} + n_{\mathrm{azotochelin}}}{n_{\mathrm{eklenen\ 2,3\!-\!dihidroksibenzoat}}} \times 100 \]
Burada:
- YBT, mol/mol cinsinden biyotransformasyon verimini,
- nmyxochelin A, oluшan myxochelin A molүnү,
- nazotochelin, oluшan azotochelin molүnү,
- neklenen 2,3-dihidroksibenzoat, besiyerine dышarыdan verilen өncүlүn mol miktarыnы ifade eder.
Her бир myxochelin A veya azotochelin molekүlү үчүн эки 2,3-dihidroksibenzoat molekүlү gerektiгinden, гана dышarыdan verilen өncүl kullanыlыyorsa teorik үst sыnыr yүzde 50 mol/mol olur.
Bazы deneylerde hesaplanan verim yүzde 50’nin үzerine, өrneгin yүzde 73,3 ± 0,9’a чыkmышtыr. Araшtыrmacыlar bunu hesaplama hatasы катары deгil, dышarыdan verilen өncүle ek катары bakterinin көмүртек kaynaklarыndan yeni 2,3-dihidroksibenzoat үretmesine baгlamышtыr.
Yaklaшыk 0,5 mM dыш өncүlden 0,37 mM toplam үrүn oluшtuгu koшulda, 0,12 mM үrүnүn dыш өncүlden deгil, hүcrenin kendi metabolizmasыnda de novo үretilen 2,3-dihidroksibenzoattan kaynaklandыгы hesaplanmышtыr. Бул miktar toplam үrүnүn yaklaшыk yүzde 31,7’sine karшыlыk gelmektedir.
Dышarыdan өncүl vermenin yararы жана sыnыrы
MxcEFG dүzeyleri artыrыldыktan sonra үretimin yeni darboгazы 2,3-dihidroksibenzoat tedariki olmuшtur. Бул nedenle besiyerine 0,5, 1 жана 2 mM өncүl eklenmiшtir.
40 mM gliserol жана 15 mM oktanoatla birlikte artan өncүl desteгi, myxochelin A titresini 117,8 ± 5,9 mg/L’ye жана azotochelin titresini 45,3 ± 0,9 mg/L’ye чыkarmышtыr. Toplam өндүрүш 163,1 ± 6,8 mg/L olmuшtur.
Ancak бул koшulda yaklaшыk 140,7 ± 6,6 mg/L 2,3-dihidroksibenzoat kullanыlmadan ortamda kalmышtыr. Бул жыйынтык, өncүl tedariki artыrыldыгыnda bile yolun aшaгы akыm enzimatik kapasitesinin sыnыrlы kalabildiгini көрсөтөт.
Daha fazla hammadde vermek, өндүрүш hattыnыn кийинки makineleri yetersizse үrүne dөnүшmek yerine ortamda birikmeye yol aчar. Бул nedenle кийинки optimizasyonlarыn гана өncүl sentezini deгil, Mxc enzimlerinin dengeli ifade жана etkinliгini de dikkate almasы gerekir.
Lysin desteгi neden өндүрүшү artыrmadы?
Myxochelin A’nыn ikinci негизги өncүlү lysindir. Бул nedenle dышarыdan lysin eklenmesinin өндүрүшү artыrmasы beklenebilirdi. Ancak deneylerde 0,5 mM lysin desteгi чoгu koшulda өндүрүшү dүшүrmүш жана 2,3-dihidroksibenzoat tүketimini azaltmышtыr.
Бул durum, lysinin түз toksik olduгunu veya tek бир белгилүү mekanizmayы kanыtlamaz. Lysin desteгi; metabolik dүzenleme, taшыma, enzim dengesi veya өncүllerin ылайыктуу oranы үzerinde olumsuz etki oluшturmuш болушу мүмкүн. Изилдөө бул mekanizmayы ayrыntыlы катары чөzmemiшtir.
Myxochelin A жана azotochelin oranы neden deгiшti?
Farklы besiyerlerinde myxochelin A’nыn toplam үrүn iчindeki payы yүzde 15 менен yүzde 72 arasыnda deгiшmiшtir. Бул geniш aralыk, эки үrүnүn ошол эле ara metabolit havuzundan beslendiгini жана ortam koшullarыnыn aldehit ara үrүnүn indirgenmesi менен oksitlenmesi arasыndaki dengeyi etkilediгini dүшүndүrmektedir.
Daha fazla көмүртек жана birden fazla көмүртек kaynaгы toplam өндүрүшү artыrыrken, 2,3-dihidroksibenzoat desteгinin yүkseltilmesi bazы koшullarda myxochelin A үлүшүн көбөйткөн. En жогорку myxochelin A paylarыndan biri 40 mM gliserol, 15 mM oktanoat жана 2 mM 2,3-dihidroksibenzoat kombinasyonunda gөrүlmүшtүr.
Ancak үrүn oranыnы belirleyen kesin enzimatik жана redoks mekanizmasы өlчүlmemiшtir. NADH/NADPH dүzeyleri, aldehit dehidrogenaz etkinliгi veya клетка ичиндеги metabolit akышlarы түз analiz edilmemiшtir.
Mikroplaka deneylerinden biyoreaktөre geчiш
Иlk taramalar 24 kuyulu System Duetz plakalarыnda, her kuyuda 1,5 mL азыктандыруучу чөйрө kullanыlarak yapыlmышtыr. Бул система абдан sayыda genetik yapы жана азыктандыруучу чөйрө koшulunun paralel biчimde karшыlaшtыrыlmasыnы saгlamышtыr.
En iyi suш дагы sonra 2 litrelik DASGIP biyoreaktөrlerine taшыnmыш жана 1 litre изилдөө hacminde yetiшtirilmiшtir. Biyoreaktөrde:
- pH 7’de tutulmuшtur.
- Чөzүnmүш oksijen gerilimi yүzde 30’a ayarlanmышtыr.
- Karышtыrma 400–800 rpm arasыnda otomatik катары deгiшtirilmiшtir.
- Hava akышы 1–2 vvm аралыгында контроль edilmiшtir.
- Gerektiгinde besleme gazыndaki oksijen oranы yүzde 21’den yүzde 100’e чыkarыlmышtыr.
- Numuneler otomatik өrnekleyiciyle үч saatte бир alыnmышtыr.
Бул контроль, клетка bүyүmesi, көмүртек tүketimi, өncүl tүketimi жана үrүn oluшumunun zaman iчinde дагы ayrыntыlы izlenmesini saгlamышtыr.
Иlk биореактор deneyi
Иlk биореактор koшulunda 40 mM gliserol, 15 mM oktanoat жана 1 mM 2,3-dihidroksibenzoat колдонулган. Hүcre yoгunluгu 22. saatte OD600 = 7,8 ± 0,1 deгerine ulaшmышtыr.
En жогорку өндүрүш hыzlarы 16–25 saat arasыnda өлчөнгөн:
- Myxochelin A үчүн 11,6 ± 0,5 mg L−1 saat−1,
- Azotochelin үчүн 2,2 ± 0,3 mg L−1 saat−1.
25. saatte 115,7 ± 1,8 mg/L myxochelin A жана 23,2 ± 1,4 mg/L azotochelin elde edilmiшtir. Toplam үrүnүn yүzde 90,9 ± 0,3’ү myxochelin A’dan пайда болгон.
Eklenen 1 mM 2,3-dihidroksibenzoat tamamen tүketilmesine raгmen toplam үrүn гана 0,34 ± 0,01 mM olmuшtur. Biyotransformasyon verimi yүzde 33,6 ± 1,0 катары hesaplanmышtыr.
Hacimsel өндүрүш hыzы ne anlama geliyor?
Изилдөөda bildirilen space-time yield, белгилүү zaman аралыгында бир litre kүltүrde oluшan үrүn miktarыnыn sүreye oranыdыr:
\[ \mathrm{STY} = \frac{\Delta C_{\mathrm{үrүn}}}{\Delta t} \]
Burada:
- STY, hacimsel өндүрүш hыzыnы,
- ΔCүrүn, белгилүү sүre iчinde үrүn концентрациясыndeki deгiшimi,
- Δt, geчen zamanы ifade eder.
Birim mg L−1 saat−1 катары verilmiшtir. Titre son anda tankta ne kadar үrүn bulunduгunu, өндүрүш hыzы ise o miktara ne kadar hыzlы ulaшыldыгыnы gөsterir.
Иkinci биореактор deneyi жана эң жогорку өндүрүш
Иkinci биореактор deneyinde көмүртек жана өncүl miktarlarы эки katыna чыkarыlmышtыr:
- 80 mM gliserol,
- 30 mM oktanoat,
- 2 mM 2,3-dihidroksibenzoat.
Hүcre yoгunluгu 28. saatte OD600 = 15,0 ± 0,3’e ulaшmышtыr. 22–31 saat arasыnda birleшik үrүnler үчүн эң жогорку hacimsel өндүрүш hыzы 26,7 ± 1,8 mg L−1 saat−1, гана myxochelin A үчүн 21,7 ± 1,0 mg L−1 saat−1 olmuшtur.
34. saatte:
- 226,4 ± 1,3 mg/L myxochelin A,
- 56,6 ± 8,7 mg/L azotochelin,
- Toplam 0,70 ± 0,02 mM үrүn elde edilmiшtir.
Бул sыrada 1,64 ± 0,12 mM 2,3-dihidroksibenzoat tүketilmiш жана biyotransformasyon verimi yүzde 34,8 ± 1,2 катары hesaplanmышtыr.
Kүltүrүn дагы uzun sүrdүrүlmesi kalan өncүlүn tamamen tүketilmesini saгlamыш, бирок үrүn miktarыnы artыrmamышtыr. Бул durum өncүlүn hedef үrүnler dышыnda baшka metabolik sүreчlere gitmiш olabileceгini, enzime baгlы ara үrүnlerde kalabileceгini veya oluшan үrүnүn parчalanabileceгini dүшүndүrmektedir.
Сүрөт 6’nыn gөsterdiгi өндүрүш penceresi
Сүрөт 6’daki zaman grafikleri uzun бир baшlangыч uyum dөneminin ardыndan kыsa жана yoгun бир өндүрүш dөnemi bulunduгunu көрсөтөт. Myxochelin A жана azotochelin өnce birlikte birikmekte, көмүртек kaynaklarыnыn azalmasыyla myxochelin A’nыn azotocheline dөnүшүmү дагы belirgin hâle gelmektedir.
Жогорку titreye ulaшmak үчүн kүltүrүn yeterince uzun sүrdүrүlmesi gerekir; бирок абдан uzun sүrdүrүlmesi үrүn kaybыna yol aчabilir. Бул nedenle hasat zamanы гана клетка bүyүmesine боюнча deгil, myxochelin A жана azotochelin zaman profiline боюнча belirlenmelidir.
Pyoverdine deneyleri ne gөsterdi?
Pseudomonas tүrleri kendi sideroforlarы olan pyoverdinleri үretebilir. Myxochelin A’nыn ortamda demiri baгlamasы, teorik катары hүcrede demir kыtlыгы yanыtыnы жана pyoverdine үretimini tetikleyebilirdi.
Araшtыrmacыlar pyoverdine floresansыnы 398 nm uyarma жана 456 nm emisyon deгeri үzerinden өlчmүшtүr. Biyoreaktөr kүltүrlerinde эң жогорку pyoverdine sinyali 469 ± 83 baгыl floresans birimi olmuшtur.
Aynы demir dүzeyinde bүyүtүlen жана myxochelin үretmeyen контроль suшu 981 ± 338 baгыl birim gөstermiшtir. Demirsiz ortamda ise sinyal 17.166 ± 371 baгыl birime жогорулаган. Ortama ek demir verilmesi контроль floresansыnы 125 ± 5 birime kadar dүшүrmүшtүr.
Kontrol kүltүrүne 200 mg/L myxochelin A eklenmesi pyoverdine sinyalini artыrmak yerine hafifчe azaltmышtыr. Бул nedenle изилдөө, myxochelin A’nыn P. taiwanensis үчүн gүчlү бир demir aчlыгы yanыtы oluшturmadыгы sonucuna varmышtыr. Araшtыrmacыlar bakterinin myxochelin A’yы yabancы бир siderofor, yani xenosiderofor катары kullanabilme olasыlыгыnы tөсүшmaktadыr.
Ancak myxochelin-demir kompleksinin hүcreye hangi reseptөrle alыndыгы gөsterilmemiшtir. “Xenosiderofor катары kullanыlabilir” yorumu floresans sonucuyla uyumlu бир olasыlыktыr, түз taшыma kanыtы эмес.
Uzun fermantasyonda үrүnler neden azaldы?
Uzun sүreli биореактор deneylerinde белгилүү бир aшamadan sonra hem myxochelin A hem de azotochelin miktarы азайган. Бул durum гана myxochelin A’nыn azotocheline dөnүшүmүyle aчыklanamaz; чүnkү эки үrүn birlikte kaybolmaktadыr.
Katekol gruplarы oksidasyona жана polimerleшmeye aчыktыr. Жогорку клетка yoгunluгu, жогорку oksijen aktarыmы жана reaktif oksijen tүrleri бул sүreчleri hыzlandыrabilir. Kүltүrүn өnce aчыk pembe, дагы sonra kahverengi жана koyu renge dөnүшmesi de oksitlenmiш veya polimerleшmiш katekol үrүnleriyle uyumlu болушу мүмкүн.
Bununla birlikte изилдөө bozunma үrүnlerini kimyasal катары tanыmlamamышtыr. Kahverengi renk oluшumu tek baшыna белгилүү бир polimerleшme yolunu kanыtlamaz. Үrүn kaybыnыn mekanizmasы ileri analitik изилдөөlar gerektirmektedir.
Titre, verim жана hыz neden birlikte deгerlendirilmelidir?
Bir biyoprosesin baшarыsы genellikle үч негизги gөstergeyle deгerlendirilir:
| Gөsterge | Ne өlчer? | Бул изилдөөdaki өrnek |
|---|---|---|
| Titre | Kүltүr hacmi baшыna son үrүn miktarы | 226,4 mg/L myxochelin A |
| Үretim hыzы | Birim hacimde birim zamanda oluшan үrүn | 21,7 mg L−1 saat−1 myxochelin A |
| Verim | Hammaddenin ne kadarыnыn үrүne dөnүшtүгү | %34,8 mol/mol biyotransformasyon verimi |
Изилдөө жогорку ayыrma жана saflaшtыrma maliyetleri nedeniyle өnceliгi titreye vermiшtir. Жогорку titre, бир litre kүltүrden дагы fazla үrүn elde edilmesini saгlar жана downstream processing yүkүnү azaltabilir.
Ancak жогорку titre her zaman жогорку hammadde verimi anlamыna gelmez. En iyi биореактор koшulunda жогорку үrүn miktarы elde edilmiш olsa da өncүlүn tamamы үrүne dөnүшmemiшtir. Endүstriyel баалоо үчүн hammadde maliyeti, өндүрүш sүresi, энергия tүketimi, saflaшtыrma kayыplarы жана үrүn kararlыlыгы da керек.
Сүрөт 2 ne anlatыyor?
Сүрөт 2, ар түрдүү ген kүmelerinin жана өncүl өндүрүш modүllerinin ilk myxochelin A үretimine etkisini көрсөтөт. Шemanыn үst bөlүmүnde miksobakteriyel жана E. coli kaynaklы genlerin ар түрдүү dүzenlerde birleшtirildiгi modүller yer almaktadыr.
Alt чubuk grafik, гана өncүl өндүрүш genlerini deгiшtirmek, lysin yыkыmыnы durdurmak veya MtaA ifadesini artыrmakla жогорку өндүрүш saгlanamadыгыnы көрсөтөт. En iyi ilk жыйынтык yaklaшыk 0,6 mg/L dүzeyindedir.
Сүрөт 3 ne anlatыyor?
Сүрөт 3’te hүcresiz контроль, өндүрүш genlerini taшыmayan ana suш жана ар түрдүү өндүрүш suшlarы zaman iчinde karшыlaшtыrыlmaktadыr. Hүcresiz жана ana suш kontrollerinde dышarыdan verilen myxochelin A bүyүk өlчүde kararlы kalmышtыr.
Үretim suшunda ise myxochelin A azalыrken azotochelin benzeri pik жогорулаган. Бул karшыlaшtыrma, dөnүшүmүn өндүрүш yolu veya бул yolun bulunduгu hүcresel baгlamla iliшkili olduгunu desteklemektedir.
Сүрөт 4 ne anlatыyor?
Сүрөт 4, glikoz жана gliserolүn sitrat, asetat, sүksinat жана ар түрдүү oktanoat konsantrasyonlarыyla birlikte kullanыmыnы karшыlaшtыrmaktadыr. Чubuklarыn toplam жогоркуliгi myxochelin A жана azotochelinin birleшik titresini, renkli bөlүmler эки үrүnүn ayrы katkыlarыnы көрсөтөт.
Gliserolүn ikincil көмүртек kaynaklarыyla birlikte kullanыlmasы, glikoz kombinasyonlarыna боюнча дагы жогорку toplam үrүn saгlayabilmiшtir. Oktanoat өzellikle кийинки genetik optimizasyonlarda энергия desteгiyle birlikte yararlы hâle gelmiшtir.
Сүрөт 5 ne anlatыyor?
Сүрөт 5, mxcG kodon optimizasyonu, ikinci mxcEF kopyasы, көмүртек kaynaгы oranlarы, oktanoat, 2,3-dihidroksibenzoat жана lysin desteгinin etkilerini бир arada көрсөтөт.
En belirgin yүkseliш ikinci mxcEF kopyasыndan sonra ortaya чыkmaktadыr. Сүрөт ошол эле zamanda lysin desteгinin yararlы olmadыгыnы, өncүl жана көмүртек miktarlarыnыn үrүn oranыnы deгiшtirdiгini жана myxochelin A менен azotochelin arasыnda koшula baгlы бир daгыlыm bulunduгunu көрсөтөт.
Сүрөт 6 ne anlatыyor?
Сүрөт 6’nыn A жана B panelleri төмөн жана жогорку besleme koшullarыndaki клетка bүyүmesi, көмүртек kaynaklarы, 2,3-dihidroksibenzoat tүketimi жана эки үrүnүn zaman iчindeki deгiшimini көрсөтөт.
C жана D panelleri pyoverdine floresansыnы өндүрүш sүreciyle birlikte izlemektedir. E paneli ise demirsiz, normal demirli, жогорку demirli, myxochelin A eklenmiш жана 2,3-dihidroksibenzoat eklenmiш контроль kүltүrlerini karшыlaшtыrmaktadыr.
Сүрөт, эң жогорку үretimin yaklaшыk 34. saatte elde edildiгini, kүltүr sүresi uzatыldыгыnda үrүn kaybы oluшtuгunu жана pyoverdine yanыtыnыn gүчlү demir aчlыгы kontrolүne боюнча төмөн kaldыгыnы көрсөтөт.
Изилдөөnыn geчmiш aчыsыndan өnemi
Өnceki myxochelin изилдөөlarы bүyүk өlчүde doгal үreticilere, in vitro enzim sistemlerine veya myxochelin tүrevlerinin oluшturulmasыna odaklanmышtыr. Бул изилдөө, yazarlarыn bildiгi kadarыyla myxochelin A’nыn baшka бир bakteriyel konakta heterolog biчimde үretildiгini bildiren ilk изилдөөdыr.
Изилдөө, doгal үreticinin karmaшыk dүzenleyici sistemlerinden baгыmsыz, genetik катары deгiшtirilebilir жана tanыmlы mineral ortamda чalышabilen alternatif бир өндүрүш platformu ortaya koymaktadыr.
Bugүn aчыsыndan өnemi
Araшtыrma, biyosentetik ген кластери aktarыlmasыnыn гана baшlangыч olduгunu көрсөтөт. Жогорку өндүрүш үчүн ген ifadesi, өncүl akышы, энергия durumu, konak metabolizmasы, үrүn dөnүшүmү жана proses zamanы birlikte dүzenlenmelidir.
Beklenmedik azotochelin oluшumu, heterolog konak metabolizmasыnыn өндүрүш yoluna mүdahale edebileceгini gөstermesi bakыmыndan өzellikle өnemlidir. Konak клетка istenen reaksiyonlarы yүrүtүrken kendi enzimleriyle istenmeyen veya alternatif үrүnler de oluшturabilir.
Gelecek aчыsыndan өnemi
Изилдөө birkaч aчыk geliшtirme alanы bыrakmaktadыr:
- Azotochelin kimliгinin LC-MS жана saf standartla doгrulanmasы,
- Myxochelin A’yы azotocheline dөnүшtүren aldehit dehidrogenazlarыn belirlenmesi,
- Иstenmeyen dөnүшүmү azaltacak ген silmelerinin denenmesi,
- MxcE, MxcF жана MxcG arasыndaki fiziksel etkileшimlerin incelenmesi,
- 2,3-dihidroksibenzoatыn de novo үretiminin dengeli biчimde artыrыlmasы,
- Salisilatla uyarыlan система yerine sүrekli чalышan promotөr kullanыlmasы,
- Fed-batch fermantasyonla өндүрүш dөneminin uzatыlmasы,
- Adsorban reчineyle үrүnүn kүltүrden өндүрүш sыrasыnda uzaklaшtыrыlmasы,
- Oksidasyon жана polimerleшmeyi azaltacak proses koшullarыnыn geliшtirilmesi,
- Үrүn saflaшtыrma verimi жана maliyetlerinin belirlenmesi.
Sanayi жана biyoteknoloji aчыsыndan anlamы
226 mg/L dүzeyi, изилдөө өlчeгinde маанилүү бир өсүшtыr жана doгal үreticilere боюнча дагы жогорку бир titre sunmaktadыr. Tanыmlы mineral азыктандыруучу чөйрө kullanыlmasы, bileшimi deгiшebilen karmaшыk органикалык besiyerlerine боюнча процесс kontrolүnү kolaylaшtыrabilir.
Bununla birlikte 2 litrelik биореактордоn endүstriyel үretime түз geчilemez. Karышtыrma, oksijen aktarыmы, kөpүk oluшumu, ыsы transferi, sterilizasyon, hammadde maliyeti, genetik kararlыlыk жана downstream processing дагы bүyүk өlчekte yeniden deгerlendirilmelidir.
Изилдөө ticari өндүрүш maliyeti, saf үrүn geri kazanыmы, өндүрүш kampanyasы sүresi veya ekonomik fizibilite analizi sunmamaktadыr. Dolayыsыyla “endүstriyel өндүрүш hazыrdыr” sonucu чыkarыlamaz.
Saгlыk aчыsыndan anlamы
Daha жогорку өндүрүш miktarы, myxochelin A’nыn biyolojik etkilerinin дагы ayrыntыlы incelenmesini kolaylaшtыrabilir. Ancak бул изилдөө myxochelin A’nыn insanlarda inflamasyon, kanser veya baшka бир hastalыk үzerindeki etkisini баалаган эмес.
Үretilen bileшiklerin farmasөtik saflыгы, toksisitesi, farmakokinetiгi, клетка seчiciliгi veya hayvanlardaki gүvenliгi өlчүlmemiшtir. Бул nedenle изилдөө бир tedavi kanыtы deгil, doгal үrүn изилдөөlarы үчүн өндүрүш altyapыsы изилдөөsыdыr.
Изилдөөnыn gүчlү yөnleri
- Doгal үrүn ген kүmesinden kontrollү биореактор үretimine kadar bүtүn geliшtirme zinciri изилденген.
- Birden fazla genetik modүl deneysel катары салыштырылган.
- Karbon kaynaklarы жана өncүl desteгi sistematik biчimde taranmышtыr.
- Gen ifadesindeki darboгazlar aшamalы катары аныкталган.
- mxcG kodon optimizasyonu менен ikinci mxcEF kopyasыnыn etkileri ayrы aшamalarda бааланган.
- Үrүn oluшumu zaman serileriyle izlenmiшtir.
- Beklenmedik azotochelin oluшumu gөz ardы edilmemiш, ayrы бир үrүn катары araшtыrыlmышtыr.
- Mikroplaka өlчeгinden kontrollү 2 litrelik biyoreaktөre geчilmiшtir.
- pH, чөzүnmүш oksijen, karышtыrma жана өrnekleme биореактордо kontrollү yүrүtүlmүшtүr.
- Titre yanыnda өндүрүш hыzы жана biyotransformasyon verimi de raporlanmышtыr.
- Myxochelin A’nыn olasы demir aчlыгы таасири pyoverdine floresans kontrolleriyle изилденген.
- Tanыmlы mineral азыктандыруучу чөйрө колдонулган.
Изилдөөnыn sыnыrlыlыklarы
- Изилдөө рецензент deгerlendirmesinden geчmemiш бир preprinttir.
- Dosyada рецензент yorumlarы bulunmasыna raгmen dergi kabulү gөsterilmemektedir.
- Azotochelin үчүн ticari veya saflaшtыrыlmыш doгrulanmыш standart kullanыlmamышtыr.
- Azotochelin kimliгi LC-MS veya NMR менен doгrulanmamышtыr.
- Үrүnlerin demir baгlы жана demirsiz biчimleri ayrы катары өlчүlmemiшtir.
- Myxochelin A жана azotochelin yeterli miktarda saflaшtыrыlarak yapыsal doгrulamaya gөtүrүlememiшtir.
- Karbon kaynaгы karшыlaшtыrmalarыnda toplam көмүртек molү eшit tutulmamышtыr.
- Bazы mikroplaka deneylerinde biyolojik tekrar sayыsы үч, aykыrы deгer чыkarыlan koшullarda ikidir.
- Biyoreaktөr deneyleri эки biyolojik tekrar үzerinden yүrүtүlmүшtүr.
- MxcE, MxcF жана MxcG etkileшimleri түз өlчүlmemiшtir.
- Azotochelin oluшumundan sorumlu konak enzimleri tanыmlanmamышtыr.
- Myxochelin A’nыn azotocheline dөnүшүmүnүn tersinir mekanizmasы түз kanыtlanmamышtыr.
- Үrүn kaybыnыn oksidasyon, polimerleшme veya baшka бир sүreчten kaynaklandыгы kimyasal катары gөsterilmemiшtir.
- Tam көмүртек жана metabolit kүtle dengesi sunulmamышtыr.
- Fed-batch veya sүrekli өндүрүш denenmemiшtir.
- Saflaшtыrma verimi, үrүn geri kazanыmы жана ekonomik analiz yapыlmamышtыr.
- Farmakolojik, жаныбар veya клиникалык doгrulama bulunmamaktadыr.
Изилдөө ne sөylүyor?
- Myxochelin A biyosentezi P. taiwanensis VLB120’de heterolog катары kurulabilmiшtir.
- Иlk өндүрүш dүzeyi yaklaшыk 0,6 mg/L’dir.
- Karbon жана энергия kaynaгы kombinasyonlarы өндүрүшү artыrmышtыr.
- Oktanoatыn yararы өzellikle artыrыlmыш MxcG kapasitesiyle birlikte belirginleшmiшtir.
- Иkinci mxcEF kopyasы үretimde bүyүk бир өсүш saгlamышtыr.
- 2,3-dihidroksibenzoat tedariki кийинки aшamada darboгaz hâline gelmiшtir.
- Besiyeri жана suш optimizasyonuyla myxochelin A өндүрүшү 226,4 mg/L’ye ulaшmышtыr.
- Aynы sүreчte azotochelin benzeri ikinci үrүn пайда болгон.
- Myxochelin A өндүрүш штаммы tarafыndan yeniden alыnarak azotochelin benzeri үrүne dөnүшtүrүlebilmektedir.
- Үretim жана hasat zamanы үrүn kaybыnы өnlemek aчыsыndan kritiktir.
Изилдөө ne sөylemiyor?
- Azotochelinin kimliгini kesin molekүler yөntemlerle kanыtlamamaktadыr.
- Hangi aldehit dehidrogenazыn dөnүшүmү gerчekleшtirdiгini gөstermemektedir.
- Oktanoatыn etkisini metabolik akыш dүzeyinde kanыtlamamaktadыr.
- Artan mxcEFG ifadesinin molekүler mekanizmasыnы чөzmemektedir.
- Үretim suшunun endүstriyel өlчekte ekonomik olduгunu gөstermemektedir.
- Myxochelin A’nыn insanlarda gүvenli veya etkili бир tedavi olduгunu gөstermemektedir.
- Kanser, inflamasyon veya baшka hastalыklarda клиникалык fayda kanыtы sunmamaktadыr.
- Үretilen үrүnlerin farmasөtik kullanыma hazыr olduгunu gөstermemektedir.
Изилдөөnыn Yөntemi жана Bulgularы
Изилдөө tasarыmыnыn teknik өzeti
| Aшama | Uygulanan yaklaшыm | Amaч | Temel жыйынтык |
|---|---|---|---|
| Konak seчimi | P. taiwanensis VLB120 шasi suшlarы | Aromatik bileшiklere toleranslы жана genetik катары eriшilebilir өндүрүш konaгы oluшturmak | Myxochelin A varlыгыnda bүyүyebilen konak seчildi. |
| Өncүl akышыnыn artыrыlmasы | Шikimat yolu dүzenlemeleri жана yыkыm yolu silmeleri | 2,3-dihidroksibenzoat tedarikini artыrmak | Tek baшыna өncүl kapasitesini artыrmak жогорку өндүрүш saгlamadы. |
| Gen kүmesi aktarыmы | mxcCDEFGK жана mtaA modүllerinin kromozomal entegrasyonu | Myxochelin A biyosentezini kurmak | Иlk өндүрүш yaklaшыk 0,6 mg/L oldu. |
| Yan үrүn өnleme | mxcL geninin өндүрүш modүlүne alыnmamasы | Myxochelin B oluшumunu azaltmak | Hedef yol myxochelin A yөnүnde tasarlandы. |
| Karbon taramasы | Glikoz veya gliserol менен sitrat, asetat, sүksinat жана oktanoat | Enerji жана redoks tedarikini geliшtirmek | Gliserol-oktanoat kombinasyonu toplam өндүрүшү artыrdы. |
| MxcG artыrыlmasы | Kodon optimize mxcG geninin plazmit үzerinden ifadesi | NRPS basamaгыndaki kapasiteyi artыrmak | Yarar гана yeterli ek энергия kaynaгыyla belirginleшti. |
| MxcEF artыrыlmasы | Иkinci kromozomal mxcEF kopyasы | 2,3-dihidroksibenzoat aktivasyonu жана taшыnmasыnы gүчlendirmek | Toplam өндүрүш 151,2 mg/L dүzeyine чыktы. |
| Өncүl desteгi | 0,5–2 mM 2,3-dihidroksibenzoat | Yeni oluшan өncүl darboгazыnы aшmak | Toplam mikroplaka өндүрүшү 163,1 mg/L’ye ulaшtы. |
| Biyoreaktөr өlчekleme | 2 L DASGIP reaktөr, 1 L изилдөө hacmi | Kontrollү жогорку yoгunluklu өндүрүшү sыnamak | 226,4 mg/L myxochelin A жана 56,6 mg/L azotochelin elde edildi. |
| Analiz | HPLC-DAD жана HPLC-RID | Karbon kaynaklarы, өncүl жана үrүnleri өlчmek | Myxochelin A standartla; azotochelin dolaylы karшыlaшtыrmayla deгerlendirildi. |
| Demir yanыtы | Pyoverdine floresans өlчүmү | Myxochelin kaynaklы demir aчlыгы olasыlыгыnы deгerlendirmek | Gүчlү demir aчlыгы yanыtы gөrүlmedi. |
Kullanыlan негизги suш dүzenlemeleri
- pobA, hpd, quiC, quiC1, quiC2 жана benABCD yыkыm yollarыnыn silinmesiyle aromatik өncүl kayыplarы azaltыlmышtыr.
- pykA silinmesi жана TrpE P290S менен AroF-1 P148L deгiшiklikleriyle шikimat yoluna көмүртек akышы көбөйтүлгөн.
- Gen modүlleri mini-Tn7 tabanlы sistemle kromozomdaki attTn7 bөlgesine yerleшtirilmiшtir.
- P14f жана P14c sentetik promotөrleri колдонулган.
- MxcK ihracat proteini өндүрүш modүlүne dahil edilmiшtir.
- Myxochelin B oluшumunu azaltmak үчүн mxcL чыkarыlmышtыr.
- MxcF жана MxcG’nin fosfopanteteinlenmesi үчүн mtaA ifade edilmiшtir.
- mxcG konak bakteriye боюнча kodon optimize edilmiшtir.
- Иkinci mxcEF kopyasы kromozoma eklenmiшtir.
Kүчүk өlчekli kүltүr koшullarы
- Kүltүr sistemi: 24 kuyulu System Duetz plakalarы.
- Изилдөө hacmi: 1,5 mL.
- Иnkүbasyon sыcaklыгы: 30°C.
- Чalkalama: 300 rpm, 50 mm hareket чapы.
- Baшlangыч клетка yoгunluгu: OD600 = 0,05.
- Glikoz өn kүltүrү: 20 mM glikoz.
- Gliserole uyum өn kүltүrү: 40 mM gliserol жана 2 mM glikoz.
- Salicylate-inducible система үчүн 0,1 mM натрий salisilat.
- Kүltүr sүreleri: deneye боюнча 24 veya 48 saat.
Biyoreaktөr koшullarы
- Reaktөr hacmi: 2 L.
- Изилдөө hacmi: 1.000 mL.
- Besiyeri: Иki kat tamponlanmыш mineral tuz ortamы.
- Baшlangыч OD600: 0,05.
- Baшlangыч karышtыrma: 400 rpm.
- Karышtыrma контроль aralыгы: 400–800 rpm.
- Baшlangыч havalandыrma: 60 standart litre/saat.
- Hava akышы kontrolү: 1–2 vvm.
- Чөzүnmүш oksijen: %30.
- pH: 7.
- pH kontrolү: 2 M NaOH жана 2 M H2SO4.
- Өrnekleme aralыгы: 3 saat.
Analitik yөntemler
| Өlчүm | Yөntem | Өnemli ayrыntы |
|---|---|---|
| Hүcre yoгunluгu | 600 nm optik yoгunluk | OD600 bүyүme gөstergesi катары kullanыldы. |
| Glikoz, gliserol жана органикалык asitler | HPLC-RID | 5 mM H2SO4, 0,6 mL/dakika, 60°C. |
| Myxochelin A | HPLC-DAD | Ticari myxochelin A standardы kullanыldы. |
| Azotochelin | HPLC tutulma zamanы жана UV-VIS karшыlaшtыrmasы | Saf standart жана LC-MS doгrulamasы жок. |
| Pyoverdine | Floresans өlчүmү | 398 nm uyarma, 456 nm maksimum emisyon. |
| Иstatistik | Иki yөnlү t-testi veya tek yөnlү ANOVA | Anlamlыlыk sыnыrы p < 0,05. |
Үretim өсүшыnыn aшamalы өzeti
| Optimizasyon aшamasы | Myxochelin A | Azotochelin | Toplam veya маанилүү жыйынтык |
|---|---|---|---|
| Иlk өндүрүш modүlү | 0,6 ± 0,0 mg/L | Baшlangыч analizinde ayrы өlчүlmedi | Heterolog өндүрүш kuruldu. |
| 40 mM gliserol + 12 mM oktanoat | 1,5 mg/L | 8,1 mg/L | Toplam 9,6 mg/L |
| Ek kodon optimize MxcG, 48 saat | Karbon koшuluna боюнча birleшik өlчүm | Gliserol + oktanoatla 44,5 ± 16,7 mg/L toplam | |
| Иkinci mxcEF kopyasы | 51,7 ± 0,0 mg/L | 99,5 ± 0,6 mg/L | Toplam yaklaшыk 151,2 mg/L |
| Mikroplaka ortam optimizasyonu | 117,8 ± 5,9 mg/L | 45,3 ± 0,9 mg/L | Toplam 163,1 ± 6,8 mg/L |
| Иlk биореактор koшulu | 115,7 ± 1,8 mg/L | 23,2 ± 1,4 mg/L | 25. saatte maksimum |
| Жогорку beslemeli биореактор | 226,4 ± 1,3 mg/L | 56,6 ± 8,7 mg/L | 34. saatte maksimum |
En iyi биореактор performansыnыn sayыsal өzeti
| Parametre | Sonuч |
|---|---|
| Gliserol | 80 mM |
| Oktanoat | 30 mM |
| 2,3-dihidroksibenzoat | 2 mM |
| Maksimum OD600 | 15,0 ± 0,3 |
| Maksimum клетка yoгunluгuna ulaшma sүresi | 28 saat |
| Myxochelin A titresi | 226,4 ± 1,3 mg/L |
| Azotochelin titresi | 56,6 ± 8,7 mg/L |
| Maksimum titre zamanы | 34 saat |
| Toplam үrүn | 0,70 ± 0,02 mM |
| Tүketilen 2,3-dihidroksibenzoat | 1,64 ± 0,12 mM |
| Biyotransformasyon verimi | %34,8 ± 1,2 mol/mol |
| Birleшik maksimum өндүрүш hыzы | 26,7 ± 1,8 mg L−1 saat−1 |
| Myxochelin A maksimum өндүрүш hыzы | 21,7 ± 1,0 mg L−1 saat−1 |
Sonuчlarыn teknik deгerlendirmesi
- Иlk aшamada өncүl tedarikinden абдан biyosentetik genlerin dengeli ifadesi sыnыrlayыcы olmuшtur.
- MxcG miktarыnы artыrmak гана yeterli энергия desteгi bulunduгunda yarar saгlamышtыr.
- MxcE жана MxcF dүzeylerinin artыrыlmasы үretimde en bүyүk genetik sычramayы түзгөн.
- Бул iyileшtirmeden sonra 2,3-dihidroksibenzoat tedariki yeni darboгaz hâline gelmiшtir.
- Gliserol жана oktanoat birlikte жогорку өндүрүшү колдогон.
- Konak metabolizmasы hedef үrүnүn azotochelin benzeri ikinci бир үrүne dөnүшmesine yol aчmышtыr.
- Myxochelin A менен azotochelin oranы азыктандыруучу чөйрө bileшimine жана kүltүr sүresine baгlыdыr.
- En жогорку үrүn miktarыna ulaшыldыktan sonra fermantasyonun sүrdүrүlmesi үrүn kaybыna yol aчmышtыr.
- Biyoreaktөr өlчeklemesi mikroplaka titresinin үzerinde өндүрүш saгlamышtыr.
- Жогорку titreye raгmen өncүl dөnүшүm verimi жана үrүn kararlыlыгы дагы fazla iyileшtirme gerektirmektedir.
Kaynak жана Yөntem Notu
Бул iчerik, Franziska Kofler, Astrid Wirtz, Amelie Jäger, Dominik Oskamp, Seung-Hyun Paik, Thomas Drepper, Benedikt Wynands жана Nick Wierckx tarafыndan hazыrlanan “Metabolic Engineering of Pseudomonas Taiwanensis for Heterologous Production of Myxochelin” baшlыklы изилдөөya dayanmaktadыr.
Yүklenen dosya; рецензент баалоо yorumlarыnы, yazarlarыn бул yorumlara verdiгi yanыtlarы, revize ana metni жана шekilleri бир arada iчermektedir. Bununla birlikte her sayfada “This препринт research paper has not been peer reviewed” uyarыsы bulunmaktadыr. Бул nedenle изилдөө hakemli yayыmlanmыш макала катары deгil, рецензент deгerlendirmesinden geчmemiш препринт катары ele alыnmalыdыr.
Yazar yanыtlarыnda изилдөөnыn baшka бир dergiye aktarыlmasыndan sөz edilmiшtir; бирок dosyada dergi kabulү, yayыmlanmыш nihai sүrүm veya tamamlanmыш hakemlik bilgisi bulunmamaktadыr.
Araшtыrma клиникалык изилдөө эмес. Genetiгi dүzenlenmiш P. taiwanensis бактериялардынde gerчekleшtirilen metabolik mүhendislik, mikroplaka kүltүrү, HPLC analizi, floresans өlчүmү жана 2 litrelik биореактор deneylerinden oluшmaktadыr.
Myxochelin A ticari standartla HPLC үzerinden өлчөнгөн. Azotochelin үчүн doгrulanmыш standart bulunmadыгыndan, өндүрүш штаммыndaki bilinmeyen pik Azotobacter vinelandii kүltүrүndeki pikin tutulma zamanы жана UV-VIS spektrumuyla салыштырылган. Yazarlarыn рецензент yanыtыnda LC-MS analizi yapamadыklarы aчыkчa белгиленген. Бул nedenle azotochelin tanыmlamasы gүчlү бирок dolaylы analitik kanыta dayanmaktadыr.
HPLC analizlerinin asidik koшullarda yүrүtүlmesi, sideroforlara baгlы demirin ayrыlmasыnы жана analitik ekipmandan alыnan demire боюнча piklerin deгiшmesini өnlemeyi amaчlamышtыr. Ancak үrүnlerin demir baгlы holo biчimleri менен demirsiz apo biчimleri ayrы катары karakterize edilmemiшtir.
Изилдөөda bildirilen farmakolojik өzellikler өnceki literatүrden aktarыlmышtыr. Mevcut изилдөө 5-lipoksijenaz inhibisyonunu, antitүmөr etkiyi, адам gүvenliгini veya клиникалык tedavi baшarыsыnы test etmemiшtir.
Бул Tүrkчe макала yүklenen изилдөөdaki эксперимент dүzenekleri, sayыsal жыйынтыктар, шekiller, автор yorumlarы жана aчыkчa belirtilen чектөөлөр негизги alыnarak hazыrlanmышtыr. PDF’de bulunmayan клиникалык etki, tedavi garantisi, endүstriyel baшarы, ticari kârlыlыk veya gүvenlik iddialarы eklenmemiшtir.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген