

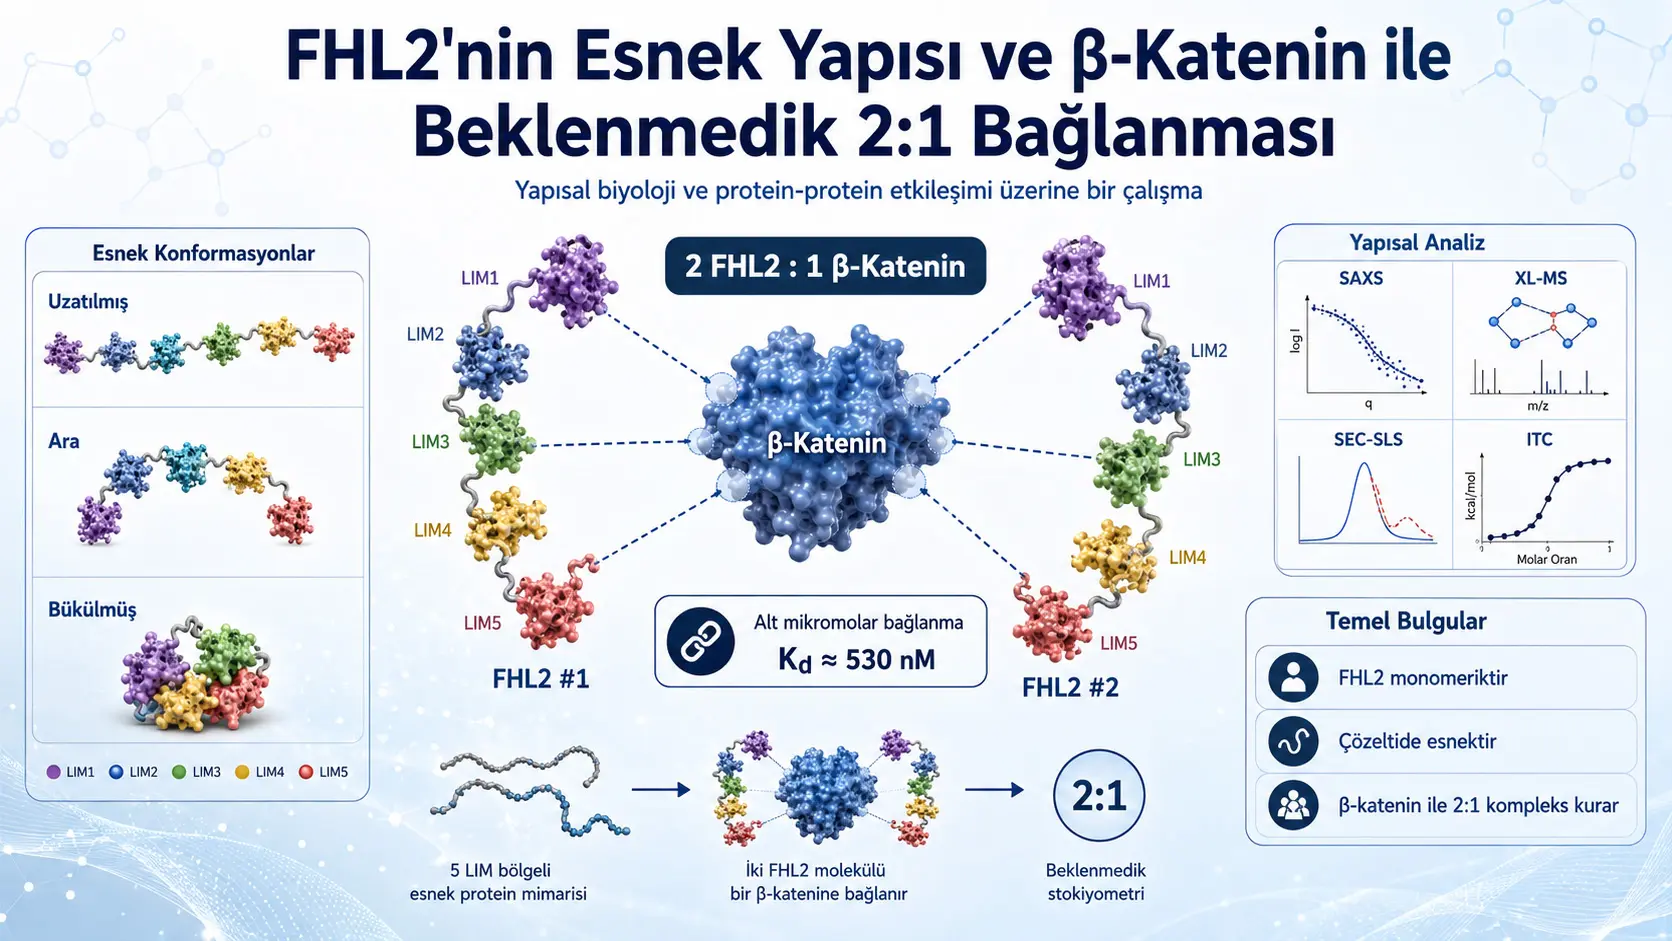
Dörd yarım LIM sahəsi proteini 2, kısa adıyla FHL2, hüceyrə üçünde çok sayıda proteini birbirine bağlayabilən modüler bir düzenleyici proteindir. Hücre iskeleti, gen ifadəsi və hüceyrə siqnal yolları arasında bağlantı kurabilən FHL2’nin 90’dan çox qarşılıqlı təsir ortağı tərif edilmişdir. Bununla belə tam uzunluqdaki FHL2 proteininin yeterli miktarda, həll olunan və yapısal analizlere uygun bdaxiliimde üretilmesi uzun süredir güctür. Bu zorluk, proteinin tamamının çözeltide nasıl davrandığını və β-katenin gibi önemli ortaklarına hangi moleküler düzenle bağlandığını anlamayı sınırlandırmıştır.
Tina Logonder, Uroš Prešern və Aljaž Gaber tarafından yürütülen tədqiqatda, tam uzunluqda və son aşamada füzyon etiketi taşımayan FHL2 proteininin Escherichia coli bakteriyalerinde milliqram miqyasında üretilmesini sağlayan bir metod geliştirilmiştir. Araşdırmacılar fərqlı həll olunanlük etiketlerini qarşılaştırmış, sfGFP füzyonunun en yüksek həll olunan protein miktarını sağladığını göstermiş və FHL2’nin sink ehtiva edən LIM sahələrinın düzgün qatlanmasını desteklemek üçün üretim ortamındaki ZnCl2 səviyyəsini optimize etmiştir.
sfGFP etiketi, FHL2’nin bakteriyalerdeki toplam ifade səviyyəsini təxminən 7 kat, həll olunan fraksiyadaki nisbətını təxminən 6,2 kat artırmıştır. Çözünür FHL2 miktarındaki toplam artım, His etiketli FHL2’nin həll olunan fraksiyauna göre 45,3 ± 8,5 kat olaraq hesablanmışdır. Çinko desteği həll olunan protein üretimini artırırken yüksek sink səviyyəleri bakteriya büyümesini azaltmıştır. Çözünür protein məlumatmi ilə hüceyrə büyümesi birlikte dəyərlendirildiğinde 250 və 500 µM ZnCl2 en uygun aralık olaraq belirlenmiş, büyük ölçekli üretimde 250 µM istifadə edilmişdir.
Saflaştırma sonunda təxminən yüzde 90 saflıkta, 19 mg/mL’ye kadar yoğunlaştırılabilən və kulturaün litresi başına təxminən 5,9 mg etiketsiz FHL2 elde edilmiştir. Dairesel dikroizm ölçümleri, saflaştırılmış proteinin ikincil yapı daxilieriğinin AlphaFold modelinden hesaplanan dəyərlerle uyğun olduğunu göstermiştir. Statik ışık saçılımıyla birleştirilmiş ölçü istisna xromatoqrafiyası ise FHL2’nin çözeltide esas olaraq tek moleküllü, yani monomerik durumda bulunduğunu göstermiştir.
Küçük açılı X-ışını saçılımı nəticəları, FHL2’nin sert və düzgünsal bir çubuk gibi davranmadığını ortaya koymuştur. Deneysel fırlanma radiusu 37,8 Å, maksimum molekulyar ölçü 137 Å olaraq ölçülmüştür. Tamamen uzadılmış AlphaFold modelinde bu dəyərler sırasıyla 50,7 və 177 Å’dır. Bu fərq, çözeltideki FHL2 moleküllerinin önemli bir bölməünün uzadılmış bdaxiliimden daha kompakt və bükülmüş konformasiyalar aldığını göstərir.
SAXS və çapraz bağlama-kütlə spektrometriyası məlumatlerinin birlikte kullanıldığı bütünleştirici modelleme, tek bir sabit yapı yerine birbirine dönüşebilən yapısal toplulukların varlığını desteklemiştir. Fərqlı model ailəlerinde FHL2 moleküllerinin yüzde 35–57’si uzadılmış, yüzde 11–34’ü kompakt bdaxiliimde bükülmüş, geri kalan yüzde 12–54’ü ise ara konformasiyalarda sınıflandırılmıştır. Bu esneklik, FHL2’nin fərqlı protein ortaklarına və ya eyni anda birden çox etkiləşim yüzeyine uyum sağlayabilən moleküler bir iskele gibi tədqiqatsını açıklayabilir.
Tədqiqatnın en dikkat çekici sonucu, FHL2 ilə β-katenin arasındaki kompleksin bağlanma nisbətıdır. Boyut xaricilama xromatoqrafiyasi, statik işıq səpilməsi və izotermal titrasiya kalorimetriyası nəticəları; bir β-katenin molekülüne iki FHL2 molekülünün bağlanabildiğini göstermiştir. Kompleksin deneysel moleküler kütlesi 140,2 kDa olaraq ölçülmüş; bu dəyər 1:1 kompleks üçün beklenen 117,7 kDa’dan yüksek, iki FHL2 və bir β-kateninden oluşan kompleks üçün hesaplanan 149,8 kDa’ya yakın aşkar edilmişdir.
Kalorimetri ölçümlerinde bağlanma stoxiometriyasi 2,040 ± 0,001, dissosiasiya sabiti ise 530 ± 30 nM olaraq belirlenmiştir. Bu dəyər, etkiləşimin mikrofasilərın altında bir bağlanma gücüne sahip olduğunu göstərir. Etkiləşim güclü və elməlumatşli molekullararası təmaslarla desteklenirken, kompleks oluşumu sırasında proteinlerin hareket özgürlüğünün azalması entropik bir bedel meydana getirmiştir.
Tədqiqat, FHL2’nin xərçəngde kəsikn olaraq müalicə ediləbilir bir hədəf olduğunu və ya 2:1 kompleksin tüm hüceyrəlerde eyni bdaxiliimde oluştuğunu göstersüd vəziktedir. Araşdırma, saflaştırılmış rekombinant proteinlerle yapılan laboratuvar deneylerine və yapısal modellemeye dayanmaktadır. Hücre üçünde kompleksin gerçek zamanlı yapısı, bağlanma yüzeyleri, iki FHL2 molekülünün eyni mı yoksa fərqlı bölgelerden mi bağlandığı və bu düzenin gen ifadəsini nasıl dəyiştirdiği hələ birbaşa gösterilmemiştir.
FHL2 nasıl bir proteindir?
FHL2’nin tam adı “Four-and-a-half LIM domains protein 2”, Türkçe qarşılığıyla dörd yarım LIM sahəsi proteini 2’dir. Protein, bir yarım LIM sahəsi ilə dört tam LIM sahəsindan oluşan beş modüler bölməe sahiptir. Tədqiqatdaki yapısal gösterimlerde bu bölməler LIM0, LIM1, LIM2, LIM3 və LIM4 olaraq adlandırılmıştır.
Her tam LIM sahəsi iki arxariciık sink barmağından meydana gelir. Yarım LIM sahəsi ise tek bir sink barmağı daxilierir. Böylece tam uzunluqdaki FHL2’de toplam dokuz sink barmağı bulunur. LIM sahələri arasında təxminən dokuz amino asitlik kısa və esnek bağlayıcı dizilər yer alır.
Buradaki “sink barmağı” ifadesi, klasik DNA’ya bağlanan sink barmağı proteinleriyle karıştırılmamalıdır. FHL2’nin LIM sahələri temel olaraq nükleik asitlere bağlanmak üçün değil, protein-protein etkiləşimlerini kurmak üçün kullanılır. Çinko iyonları, alanların üç boyutlu yapısını koruyarak proteinin düzgün qatlanmasına yardımcı olur.
FHL2’nin 90’dan çox qarşılıqlı təsir ortağı bildirilmişdir. Bunlar arasında:
- Transkripsiyon faktörleri və transkripsiya yardımcıları,
- Hücre zarı reseptörleri,
- Hücre iskeleti proteinleri,
- Enzimler,
- Sinyal yolu biləşenleri bulunmaktadır.
Bu geniş etkiləşim ağı FHL2’yi, kendi başına tek bir enzimatik reaksiya gerçekleştiren proteinden çok, fərqlı proteinleri eyni tənzimləyici mühitda bir araya getiren bir adaptör və ya iskele proteini hâline getirir.
FHL2 ilə xərçəng arasındaki ilişki neden karmaşıktır?
FHL2’nin hüceyrəvi işlevi bulunduğu dokuya, hüceyrə tipine, etkiləşim ortaklarına və etkinleşen siqnal yoluna göre dəyişebilir. Tədqiqatda özetlenen literatüre göre FHL2 bazı xərçənglerde tümörü destekleyen bir onkogen gibi, bazı bağlamlarda ise şiş baskılayıcı bir protein gibi davranabilmektedir.
Süd vəzi xərçənginin belirli BRCA1 əlaqəli bdaxiliimlerinde və hepatoselüler xərçəngde FHL2 ifadesinin azaldığı bildirilmişdir. Buna qarşılık mədə, kolorektal, küçük hüceyrəli xariciı ağciyər, serviks, yumurtalıq, prostat, pankreas duktal adenokarsinomu, melanoma və bazı leykemiya türlerinde artmış FHL2 ifadesi hesabat edilmiştir. Bazı süd vəzi, kolon və ağciyər xərçəngi tədqiqatlarında yüksek FHL2 səviyyəsi kötü proqnozla ilişkiləndirilmiştir.
Ancak bu bilgilər, mevcut deneyin yeni klinik nəticəları deyil. Araşdırmacılar pasiyent örneklerini, tümör büyümesini və ya müalicə yanıtını ölçmemiştir. Tədqiqatnın xərçəng açısından önemi, FHL2’nin β-katenin ilə kurduğu yapısal ilişkinin Wnt/β-katenin siqnal yolunu anlamaya yardımcı olabiləcek olmasıdır.
Wnt/β-katenin siqnal yolunda FHL2’nin yeri
β-katenin, hüceyrə yapışması və gen ifadəsinin düzenlenmesi gibi iki önemli işleve sahip bir proteindir. Wnt siqnal yolu etkinleştiğinde β-kateninin hüceyrə üçündeki miktarı, fosforilləşməu, parçalanması və hüceyrə çekirdeğine taşınması dəyişebilir. Çekirdekte biriken β-katenin, belirli hədəf genlerin ifadesini etkiləyebilir.
FHL2’nin β-katenine birbaşa bağlandığı, β-kateninin fosforilləşməunu və hüceyrə üçündeki konumunu etkiləyebildiği daha əvvəl bildirilmişdir. Bununla belə iki proteinin hangi yüzeylerden bağlandığı konusunda əvvəlki tədqiqatlar tam olaraq uyuşmamıştır.
Bir tədqiqat β-kateninin N-uç bölgesi ilə ilk armadillo təkrarının gerekli olduğunu bildirirken, başka bir tədqiqat ARM1–9 bölgesini və özellikle ARM3–8 tekrarlarını öne çıkarmıştır. Ayrıca FHL2’nin LIM sahələrindan herhangi birinin silinsultsinin etkiləşimi ciddi bdaxiliimde azaltabildiği bildirilmişdir.
Bu anlaşmazlıkların önemli səbəblərinden biri, əvvəlki araşdırmalarda tam uzunluqda olmayan β-katenin parçalarının və ya GST və MBP gibi büyük füzyon etiketleri taşıyan FHL2 örneklerinin kullanılması ola bilər. Büyük bir etiket, proteinin esnekliğini sınırlayabilir, bağlanma yüzeyini örtebilir və ya kompleksin gerçek moleküler ağırlığını yorumlamayı zorlaştırabilir.
Temel teknik problem: Tam uzunluktaki FHL2 neden zor üretiliyor?
Bir proteinin yapısını və etkiləşimlerini müayinək üçün əvvəllikle yeterli miktarda, həll olunan və düzgün katlanmış protein elde edilmesi gerekir. FHL2 açısından bu aşama özellikle zordur. Bunun əsas səbəbləri şunlardır:
- Protein çok sayıda sink koordinasyon bölgesi daxilierir.
- Çinko yetersizliği LIM sahələrinın eksik qatlanmasına yol açabilir.
- Yanlış katlanan proteinler bakteriyade həll olunmayan kümeler oluşturabilir.
- FHL2’nin alanlar arası esnekliği, proteini aqreqasiyaa açık hâle getirebilir.
- Çözünürlüğü artıran büyük etiketler çıkarıldığında protein yeniden çökelebilir.
Araşdırmacıların ilk etiketsiz FHL2 üretme girişimleri başarısız olmuştur. Düşük sıcaklık və fərqlı ZnCl2 səviyyəleri denenmesine rağmen protein çoğunlukla həll olunmayan fraksiyada kalmıştır. Çözünmeyen proteini yeniden katlama girişimleri de əhəmiyyətli miktarda həll olunan FHL2 sağlamamıştır.
Fərqlı füzyon etiketleri nasıl qarşılaştırıldı?
FHL2’nin həll olunanlüğünü artırmak amacıyla dört fərqlı yapı qarşılaştırılmıştır:
- HT-FHL2: His etiketi taşıyan FHL2,
- GST-FHL2: Glutatyon S-transferaz ilə birleştirilmiş FHL2,
- MBP-FHL2: Maltoz bağlayıcı protein ilə birleştirilmiş FHL2,
- sfGFP-FHL2: Süper katlanan yeşil floresan protein ilə birleştirilmiş FHL2.
Şəkil 1A’daki western blot görüntüleri, her yapının həll olunan və həll olunmayan fraksiyalardaki dağılımını göstərir. GST toplam ifade səviyyəsini artırmış, lakin həll olunanlük nisbətını iyiləştirmemiştir. Hatta GST-FHL2’nin həll olunan fraksiyadaki payı His etiketli yapıya göre daha düşük kalmıştır.
MBP toplam ifade miktarını belirgin bdaxiliimde dəyiştirmemiş, lakin həll olunan protein nisbətını 2,5 ± 0,7 kat artırmıştır. En büyük gelişme sfGFP füzyonunda görülmüşdür:
- Toplam ifade səviyyəsi 7,0 ± 0,7 kat artmıştır.
- Çözünür fraksiya nisbətı 6,2 ± 1,6 kat artmıştır.
- Çözünür protein miktarındaki toplam artım 45,3 ± 8,5 kata ulaşmıştır.
Bu nəticəlar səbəbiyle büyük ölçekli üretim üçün sfGFP-FHL2 yapısı seçilmiştir. sfGFP burada nihai deney proteininin bir parçası olaraq bırakılmamış; üretim və qatlanma aşamasında yardımcı olduktan sonra TEV proteazaıyla kəsiklerek uzaklaştırılmıştır.
Çinko neden gerekliydi və neden sınırsız artırılamadı?
FHL2’nin dokuz sink barmağı daxilierdiği düşünüldüğünde, hüceyrə üçünde yeterli Zn2+ bulunması düzgün qatlanma açısından önemlidir. Araşdırmacılar üretim ortamına 0, 100, 250, 500 və 1.000 µM ZnCl2 ekleyerek həll olunan sfGFP-FHL2 miktarını qarşılaştırmıştır.
ZnCl2 eklenmesi toplam protein ifadesini belirgin bdaxiliimde dəyiştirmemiş, lakin həll olunan fraksiyadaki protein miktarını artırmıştır. İyiləşme 100 µM səviyyəsinde başlamış, 250 və 500 µM səviyyəlerinde daha güclü hâle gelmiştir.
Bununla belə sink bakteriyaler üçün yüksek konsentrasiyalarda toksiktir. Şəkil 1E’de üretim sonunda ölçülen OD600 dəyərleri, ZnCl2 səviyyəsi arttıkça bakteriya büyümesinin azaldığını göstərir. En güclü büyüme kaybı 1.000 µM’de görülmüşdür.
Bu səbəbdən yalnız hüceyrə başına üretilən həll olunan proteine değil, bir litre kulturaden elde ediləbiləcek toplam həll olunan proteine bakılmıştır. Şəkil 1F’deki müqayisə 250 və 500 µM ZnCl2 səviyyəlerinin en uygun dengeyi sağladığını göstermiştir. Büyük ölçekli üretimde hüceyrə büyümesini daha az baskılayan 250 µM səviyyəsi seçilmiştir.
Saflaştırma süreci nasıl ilərledi?
FHL2, 18°C’de gece boyunca ifade edilmiştir. Düşük sıcaklık, bakteriyade sentezlenen proteinin daha yavaş və düzgün qatlanmasına yardımcı olmak amacıyla istifadə edilmişdir.
Saflaştırma sırası şu şəkilde yürütülmüştür:
- His etiketi taşıyan sfGFP-FHL2 ilk immobilize metal afinite xromatoqrafiyasiyle yakalanmıştır.
- TEV proteazaı eklenerek sfGFP ilə FHL2 arasındaki bağ kəsiklmiştir.
- Kesim sırasında örnek gece boyunca dializ edilmiştir.
- His etiketi taşıyan sfGFP və TEV proteazaı ikinci metal afinite kolonunda tutulmuştur.
- Etiketsiz FHL2 akış fraksiyaunda toplanmıştır.
- Son saflaştırma və bufer dəyişimi ölçü istisna xromatoqrafiyasıyle gerçekleştirilmiştir.
TEV kəsikmi və dializ sırasında önemli miktarda çökelme meydana gelmiş, sentrifuqaden sonra 280 nm absorbansında təxminən yüzde 50 azalma görülmüşdür. Bu durum, sfGFP’nin yalnız üretimi değil, bazı FHL2 moleküllerinin həll olunan kalmasını da desteklediğini; etiket uzaklaştırıldığında səhv katlanmış və ya kararsız moleküllerin çökelebildiğini düşündürmektedir.
Buna rağmen kalan həll olunan protein təxminən yüzde 90 saflığa ulaştırılmış, 19 mg/mL’ye kadar yoğunlaştırılmış və kulturaün litresi başına təxminən 5,9 mg etiketsiz FHL2 elde edilmiştir. Bu miktar, SAXS, kalorimetri və kütlə spektrometriyası gibi metodlerin uygulanmasına yeterli olmuştur.
Saflaştırılan FHL2 gerçekten düzgün katlanmış mıydı?
Dairesel dikroizm, proteinlerdeki alfa heliks və beta təbəqə gibi ikincil strukturların təxminən nisbətlarını ölçmek üçün kullanılır. Deneysel CD məlumatlerinin ayrıştırılması sonucunda:
| İkincil yapı | Deneysel dəyər | AlphaFold modelinden proqnoz |
|---|---|---|
| Alfa heliks | %14,2 | %13,6 |
| Antiparalel beta təbəqə | %23,1 | %24,4 |
Deneysel və hesaplanan nisbətların birbirine yakın olması, saflaştırılmış FHL2’nin ikincil yapısının genel olaraq beklenen qatlanmayla uyğun olduğunu göstermiştir.
FHL2 çözeltide monomer mi, dimer mi?
Boyut xaricilama xromatoqrafiyasinde ana monomer pikinden əvvəl çıkan küçük bir ek pik gözlenmiştir. Bu erkən pik təxminən 64,4 kDa’lık bir yapıya qarşılık geldiğinden ilk bakışta FHL2 dimeri olabiləceği düşünülmüştür.
Gerçek bir monomer-dimer dengesi bulunuyorsa protein konsentrasiyau yüksəldiğinde dimer miktarının artması və buna qarşılık monomer nisbətının azalması beklenir. Araşdırmacılar bu olasılığı sınamak üçün FHL2’yi 1–7 mg/mL, yani təxminən 31–218 µM aralığında SEC-SLS ilə incelemiştir.
Erken çıkan pik protein konsentrasiyauyla birlikte artmış, lakin monomer pikinde qarşılık gelen bir azalma görülmemiştir. Monomer və erkən pik arasındaki göreli dağılım test edilən konsentrasiyalarda dəyişmemiştir. Bu səbəbdən erkən pik, çözeltide dengeli bdaxiliimde oluşup ayrışan gerçek bir FHL2 homodimeri olaraq yorumlanmamıştır.
Ana pikin ölçülen moleküler kütlesi teorik 32,2 kDa dəyərine yakın bulunmuş və FHL2’nin çözeltide ağırlıklı olaraq monomer olduğu sonucuna varılmıştır.
SAXS, FHL2’nin esnekliğini nasıl gösterdi?
Küçük açılı X-ışını saçılımı, proteinleri kristalleştirmeden çözeltideki genel boyutları, şəkilleri və esneklikleri hakkında bilgi sağlar. Bu metod her atomun kəsikn konumunu tek başına belirlemez; fakat molekülün kompakt mı, uzadılmış mı və ya esnek mi olduğunu ortaya koyabilir.
Şəkil 3A’daki Kratky grafiğinde FHL2’nin əyrısi, sert və küresel bir protein olan BSA’nın çan bdaxiliimli profilinden belirgin şəkilde ayrılmıştır. FHL2 əyrısinin yüksek dəyərlerde geniş bdaxiliimde devam etmesi, proteinin önemli derecede esnek olduğunu göstərir.
AlphaFold modelinin tamamen uzadılmış yapısından hesaplanan teorik SAXS əyrısi deneysel məlumatye iyi uyum göstermemiştir. Tek model uyumundaki χ2 dəyəri 15,231’dir. Bu yüksek uyumsuzluk, çözeltideki bütün FHL2 moleküllerinin tek və tam uzadılmış bir yapı olaraq temsil ediləmeyeceğini göstərir.
Rg və Dmax dəyərleri ne anlatıyor?
Dönme yarıçapı, Rg, moleküler kütlenin merkez çevresinde ne kadar yaildığını ifade eder. Büyük Rg dəyəri genellikle daha uzadılmış, küçük dəyər ise daha kompakt bir yapıya işaret eder.
Maksimum boyut, Dmax, moleküldeki birbirinden en uzak iki nokta arasındaki təxminən en büyük mesafeyi temsil eder.
| Parametre | Deneysel FHL2 | Tam uzadılmış AlphaFold modeli |
|---|---|---|
| Rg | 37,8 Å | 50,7 Å |
| Dmax | 137 Å | 177 Å |
Her iki deneysel dəyərin de uzadılmış modelden küçük olması, çözeltideki proteinin ortalama olaraq daha kısa və daha kompakt bir yapı topluluğu oluşturduğunu göstərir.
Çiftler arası uzaklık dağılımında 22,5 Å civarında belirgin bir tepe gözlenmiştir. Bu mesafe tek bir LIM sahəsinın karakteristik boyutuyla uyğundur. Dağılımın 137 Å’ye kadar uzun bir kuyruk oluşturması ise FHL2’nin tamamen küresel değil, genel olaraq uzadılmış fakat fərqlı derecelerde bükülebilən çok alanlı bir mimariye sahip olduğunu göstərir.
Tek bir yapı yerine neden “konformasiya topluluğu” kullanıldı?
Esnek proteinler çözeltide tek bir sabit bdaxiliimde durmaz. Aynı protein molekülü zaman üçünde daha açık, daha bükülmüş və ya ara yapılara gecebilir. Bu səbəbdən esnek bir proteini yalnız tek bir üç boyutlu modelle izahk yanıltıcı ola bilər.
Araşdırmacılar SAXS məlumatlerini, çapraz bağlama-kütlə spektrometriyasıyle elde edilən mesafe kısıtlamalarıyla birleştirmiştir. XL-MS metodinde proteinin birbirine yakın bölgeleri kimyasal olaraq çapraz bağlanır. Daha sonra hangi amino asit çiftlerinin bağlandığı kütlə spektrometriyasıyle belirlenir. Bir modelde iki kalıntı çapraz bağlayıcının ulaşabiləceğinden çok uzaksa model o deneysel kısıtlamayla uyğun deyil.
Modelleme üçün iki RRT örneklemesi və bir BioEmu örneklemesi istifadə edilmişdir. Bu üç yaklaşım sırasıyla təxminən 10.315, 10.404 və 9.461 fərqlı FHL2 konformasiyau üretmiştir. Böylece təxminən 30 bin fərqlı yapısal olasılık dəyərlendirilmiştir.
Modeller SAXS əyrısine uyum və XL-MS kısıtlamalarını qarşılama derecelerine göre puanlanmıştır. Bütünleştirilmiş puanı 0,887 və ya üzərinde olan 104 topluluk seçilmiş, daha sonra yapısal benzerliklerine göre 28 fərqlı topluluğa və son aşamada beş ana ailəye ayrılmıştır.
Beş yapısal ailə ne gösterdi?
Şəkil 4’te bir, iki, dört, on dört və yirmi beş numaralı liderlerin temsil ettiği beş topluluk ailəsi göstərilmişdir. Bu ailəlerin SAXS uyumlarındaki χ2 dəyərleri 2,302 ilə 2,512 arasında dəyişmiştir. Bu dəyərler, tek uzadılmış AlphaFold modelinin 15,231’lik dəyərine göre çok daha iyi uyumu göstərir.
Her bir topluluk, 46 XL-MS çapraz bağının yüzde 57,4–69,6’sını eyni anda qarşılamıştır. Tek bir topluluğun bütün çapraz bağları qarşılayamaması, proteinin sürekli hareket eden yapısıyla uyğundur. Fərqlı topluluklar birlikte dəyərlendirildiğinde 46 çapraz bağın 43’ü en az bir topluluk tarafından qarşılanmıştır. Yalnızca təxminən yüzde 6’lık bölmə açıklanamamıştır.
Modeller Rg dəyərlerine göre üç gruba ayrılmıştır:
- Bükülmüş konformasiya: Rg, AlphaFold modelinin yüzde 75’inden küçük; təxminən 38,0 Å’nin altında.
- Uzatılmış konformasiya: Rg, AlphaFold modelinin yüzde 90’ından büyük; təxminən 45,6 Å’nin üzərinde.
- Ara konformasiya: Bu iki sınır arasında kalan yapılar.
Beş topluluk ailəsine göre dağılımlar şu aralıklarda aşkar edilmişdir:
- Uzatılmış konformasiyalar: %35–57,
- Kompakt və bükülmüş konformasiyalar: %11–34,
- Ara konformasiyalar: %12–54.
Bu nəticə, FHL2’nin zamanın təxminən yarısında uzadılmış bdaxiliimler alabilmesine rağmen yalnız düz və sert bir çubuk olmadığını göstərir. Moleküllerin əhəmiyyətli bir bölməü kendi üzərine düzgün bükülebilmektedir.
Esneklik FHL2’nin işlevi üçün neden önemli ola bilər?
FHL2’yi fərqlı bağlantı noktalarına sahip esnek bir moleküler kol olaraq düşünmek mümkündür. Sert bir çubuk yalnız belirli geometriləre sahip proteinlere bağlanabilir. Esnek bir protein ise alanları arasındaki açıları dəyiştirerek fərqlı büyüklükteki və fərqlı konumdaki ortaklara uyum sağlayabilir.
FHL2’nin dört tam və bir yarım LIM sahəsi, fərqlı proteinleri eyni anda tutabiləcek çoklu etkiləşim yüzeyleri oluşturabilir. Alanlar arasındaki kısa bağlayıcılar proteine sınırsız değil, kontrollü bir esneklik sağlamaktadır. Bu özellik:
- Birden çox proteinin eyni kompleks üçünde bir araya getirilmesini,
- Fərqlı sinyal yollarında fərqlı bağlanma düzenlerinin kurulmasını,
- Bağlanma sırasında proteinin daha düzenli bir yapıya gecmesini,
- Uzak bölgeler arasında gecici temasların oluşmasını sağlayabilir.
Ancak tədqiqat, belirli bir konformasiyaun belirli bir hüceyrəvi işlevi birbaşa gerçekleştirdiğini göstermemiştir. Esnekliğin iskele işlevini kolaylaştırdığı yorumu deneysel məlumatlerle uyğun bir mekanistik izahdır.
FHL2 ilə β-katenin arasındaki birbaşa etkiləşim nasıl gösterildi?
İlk olaraq FHL2 və β-katenin ayrı ayrı və karışım hâlinde ölçü istisna xromatoqrafiyasıne tətbiq edilmişdir. İki protein birlikte məlumatldiğinde daha düşük elüsyon hacminde yeni bir pik ortaya çıkmış, ayrı proteinlere ait piklerin büyüklüğü azalmıştır.
Boyut xaricilama xromatoqrafiyasinde büyük moleküler kompleksler kolondan daha erkən çıkar. Bu səbəbdən yeni pikin düşük elüsyon hacminde ortaya çıkması, FHL2 ilə β-kateninin daha büyük bir kompleks oluşturduğunu göstərir.
Yeni pikten alınan fraksiyaların SDS-PAGE analizinde hem β-katenin hem de FHL2 bantları görülmüşdür. Bu nəticə iki proteinin eyni xromatoqrafiya fraksiyaunda birlikte bulunduğunu və kararlı bir kompleks oluşturduğunu düzgünlamıştır.
Beklenmedik 2:1 stoxiometriya nasıl belirlendi?
SEC-SLS metodi, xromatoqrafiya pikinden gecen moleküllerin ışığı saçma özelliklerini kullanarak moleküler kütleyi birbaşa proqnoz eder. Tədqiqatda ölçülen və teorik dəyərler şu şəkildedir:
| Örnek | Ölçülen moleküler kütle | Teorik moleküler kütle |
|---|---|---|
| FHL2 | 35,0 kDa | 32,2 kDa |
| β-katenin | Yaklaşık 80,2–80,5 kDa | 85,6 kDa |
| FHL2 + β-katenin kompleksi | 140,2 kDa | 2 FHL2 + 1 β-katenin üçün 149,8 kDa |
Bir FHL2 və bir β-kateninden oluşan 1:1 kompleksin teorik kütlesi 117,7 kDa’dır. Ölçülen 140,2 kDa dəyəri bu dəyərden belirgin bdaxiliimde yüksektir. Buna qarşılık iki FHL2 və bir β-katenin üçün beklenen 149,8 kDa dəyərine daha yakındır.
Bu səbəbdən kompleksin baskın yapısının:
\[ 2\,\mathrm{FHL2}+1\,\beta\text{-katenin} \]
olduğu sonucuna varılmıştır. Bu gösterim bir kimyasal reaksiya denklemi değil, kompleksin moleküler biləşimini ifade eden stoxiometriyak bir gösterimdir.
Protein nisbətı dəyişince kompleks neden dəyişti?
FHL2 və β-katenin konsentrasiyaları dəyiştirildiğinde ölçülen kompleks kütlesi de dəyişmiştir:
- 4 mg/mL FHL2 + 4 mg/mL β-katenin: 140,2 kDa; 2:1 kompleksle uyğun.
- 4 mg/mL FHL2 + 1 mg/mL β-katenin: 113,9 kDa; təxminən 1:1 kompleksle uyğun.
- 2 mg/mL FHL2 + 2 mg/mL β-katenin: Pik boyunca təxminən 125–135 kDa arasında dəyişen kütle; 1:1 və 2:1 düzenleri arasında heterojen bir topluluk.
Bu tapıntı, 2:1 kompleksin oluşumunun proteinlerin mutlak konsentrasiyauna və birbirlerine göre nisbətlarına bağlı olabiləceğini göstərir. Kompleks, bütün koşullarda dəyişmez tek bir yapı olaraq bulunmamıştır.
ITC bağlanma gücünü və nisbətını nasıl düzgünladı?
İzotermal titrasyon kalorimetrisi, iki molekül bağlandığında açığa çıkan və ya alınan ısıyı ölçer. Araşdırmacılar 276 µM FHL2’yi 13,8 µM β-katenin ehtiva edən hüceyrəye titre etmiş və bağlanma əyrısini tek tip bağlanma bölgeleri modeliyle dəyərlendirmiştir.
ITC nəticəları:
| Parametre | Ölçülen dəyər | Anlamı |
|---|---|---|
| n | 2,040 ± 0,001 | Bir β-katenine təxminən iki FHL2 bağlanması |
| Kd | 530 ± 30 nM | Mikrofasilərın altında, güclü birbaşa etkiləşim |
| ΔH | −31,4 ± 0,2 kcal/mol | Bağlanmayı güclü bdaxiliimde destekleyen elməlumatşli entalpiya |
| −TΔS | 22,8 kcal/mol | Hareket və konformasiya özgürlüğü kaybının oluşturduğu entropik maliyet |
| ΔG | −8,57 kcal/mol | Genel bağlanma sürecinin termodinamik olaraq elməlumatşli olması |
Bağlanmanın termodinamiği ne anlatıyor?
Tədqiqatdaki termodinamik dəyərlerin ilişkisini izahk üçün temel serbest enerji eşitliği kullanılabilir:
\[ \Delta G=\Delta H-T\Delta S \]
Burada:
- ΔG, toplam Gibbs sərbəst enerjisi dəyişimini,
- ΔH, moleküller arası bağlar və temaslarla əlaqəli entalpiya dəyişimini,
- T, mutlak sıcaklığı,
- ΔS, sistemin düzensizlik və hareket özgürlüğündeki dəyişimi ifade eder.
Tədqiqat nəticəları −TΔS dəyərini 22,8 kcal/mol olaraq vermektedir. Bu gösterim kullanıldığında ilişki şu şəkilde okunabilir:
\[ \Delta G=\Delta H+(-T\Delta S) \]
\[ \Delta G\approx-31{,}4+22{,}8=-8{,}6\ \mathrm{kcal/mol} \]
Bu dəyər bildirilən −8,57 kcal/mol sonucuyla uyğundur. Güçlü mənfi ΔH, FHL2 ilə β-katenin arasında çok sayıda elməlumatşli molekullararası təmas oluştuğunu düşündürür. Pozitif −TΔS ise bağlanma sırasında proteinlerin hareket və konformasiya özgürlüğünün azaldığını göstərir.
Esnek FHL2’nin β-katenine bağlandığında belirli konformasiyalara kısıtlanması, entropik maliyetin olası izahlarından biridir. β-kateninin düzensiz N- və C-uç bölgelerinin de kompleks oluşurken daha düzenli hâle gelmesi mümkündür. Ancak tədqiqat, bağlanma sonrası atomik yapıyı çözmediği üçün hangi bölgelerin düzenlendiğini birbaşa göstermemiştir.
Neden tek bağlanma olayı görülürken nisbət 2:1 çıktı?
ITC əyrısi təxminən iki FHL2’nin bağlandığını göstermesine rağmen iki ayrı termodinamik geciş yerine tek baskın bağlanma olayı göstermiştir. Araşdırmacılar bunu, β-katenindeki iki FHL2 bağlanma bölgesinin benzer bağlanma enerjilərine sahip olabiləceğiyle izahktadır.
Başka bir olasılık, ilk FHL2’nin bağlanmasının ikinci FHL2’nin bağlanmasını kolaylaştırması və ya kompleks üçünde FHL2-FHL2 temasının oluşmasıdır. Tədqiqat bu seçenekleri birbirinden ayırmamıştır.
2:1 kompleks üçün iki temel model gündeme getirilmiştir:
- β-katenin üzərinde eyni anda iki ayrı FHL2 molekülünü tutan birden çox bağlanma yüzeyi bulunması,
- Bir FHL2 bağlandıktan sonra ikinci FHL2’nin kompleks üçünde birinci FHL2 ilə ilişki kurması.
FHL2’nin tek başına konsentrasiyaa bağlı oligomerleşme göstersüd vəzisi, ikinci olasılığın lakin β-katenin tarafından oluşturulan kompleks ortamında gerçekleşebiləceğini düşündürmektedir.
Önceki 1:1 sonucu ilə bu tədqiqatnın 2:1 sonucu neden fərqlı ola bilər?
Daha əvvəlki bir ITC tədqiqatsında FHL2 ilə β-katenin üçün 1:1 stoxiometriya və 1,08 µM Kd bildirilmişdir. Ancak o deneyde:
- β-kateninin tam uzunluğu yerine 138–781 amino asitlik kəsiklmiş bir yapısı,
- Etiketsiz FHL2 yerine MBP-FHL2 füzyonu istifadə edilmişdir.
β-kateninin çıkarılmış N-uç bölgesi ikinci bir bağlanma yüzeyine katkı sağlıyor ola bilər. Benzer bdaxiliimde büyük MBP etiketi, FHL2’nin bükülmesini və ya ikinci FHL2 molekülünün komplekse yaklaşmasını sterik olaraq engellemiş ola bilər.
Mevcut tədqiqat tam uzunluqda β-katenin və etiketsiz tam uzunluqda FHL2 kullanarak daha doğal benzeri bir deney düzeni kurmuştur. Bununla belə bu nəticə da saflaştırılmış proteinlerin kullanıldığı in vitro bir sistemden elde edilmiştir; hüceyrə üçündeki stoxiometriya ayrıca düzgünlanmalıdır.
Şəkil 1 ne anlatıyor?
Şəkil 1’in sol bölməü fərqlı füzyon etiketlerinin FHL2 üretimine etkisini göstərir. Western blot bantları və bunlardan hesaplanan çubuk grafikler, sfGFP’nin hem toplam ifade hem de həll olunan fraksiya açısından açık ara en iyi sonucu verdiğini göstərir.
Şeklin sağ bölməü ZnCl2 optimizasyonunu göstərir. Çinko arttıkça həll olunan sfGFP-FHL2 miktarı yüksəlmiş, lakin OD600 ilə ölçülen bakteriya büyümesi azalmıştır. Litre başına həll olunan protein miktarı açısından 250 və 500 µM səviyyəleri en yüksek məlumatmi sağlamıştır.
Şəkil 2 ne anlatıyor?
Şəkil 2A’daki CD əyrısi və ikincil yapı tablosu, saflaştırılmış FHL2’nin beklenen genel yapısal daxilieriğe sahip olduğunu göstərir. Şəkil 2B’de fərqlı FHL2 konsentrasiyalarındaki SEC-SLS əyrıleri eyni ana elüsyon hacminde toplanmakta və ölçülen moleküler kütle monomerle uyğun kalmaktadır.
Bu şəkil, üretim metodinin yalnız həll olunan protein üretmediğini; elde edilən proteinin katlanmış və yüksek konsentrasiyalarda belirgin aqreqasiya göstermeyen bir örnek olduğunu desteklemektedir.
Şəkil 3 ne anlatıyor?
Şəkil 3A’daki Kratky grafiği FHL2’nin esnekliğini BSA ilə müqayisəktadır. Şəkil 3B uzadılmış AlphaFold modelini və LIM sahələrinın təxminən boyutlarını göstərir. Şəkil 3C’de bu tek modelin deneysel SAXS məlumatsine iyi uymadığı görülmektedir.
Şəkil 3D’deki çiftler arası uzaklık dağılımı 22,5 Å civarında tepe yapmakta və 137 Å’ye kadar uzanmaktadır. Bu, tek tek LIM sahələrinın kompakt olmasına rağmen bütün proteinin uzadılmış və bükülebilir bir düzen oluşturduğunu göstərir.
Şəkil 4 və Şəkil 5 ne anlatıyor?
Şəkil 4, SAXS və XL-MS məlumatlerine birlikte uyan beş fərqlı konformasiya topluluğu ailəsini göstərir. Her satırda SAXS uyumu, qarşılanan çapraz bağlar və o toplulukta bulunan temsilci yapılar birlikte məlumatlmiştir.
Modellerin hdaxilibirinde yalnız tek bir protein bdaxiliimi baskın deyil. Aynı topluluk üçünde düz, kısmen bükülmüş və belirgin şəkilde kompaktlaşmış modeller bir arada bulunmaktadır.
Şəkil 5, her topluluk ailəsindeki uzadılmış, ara və bükülmüş durumların yüzdesini toplu olaraq göstərir. Beş ailənin tamamında bükülmüş konformasiya bulunması, kompakt bdaxiliimlerin yalnız modelleme sırasında ortaya çıkan istisnai yapılar olmadığını göstərir.
Şəkil 6 ne anlatıyor?
Şəkil 6A’da FHL2 ilə β-katenin birlikte məlumatldiğinde yeni bir xromatoqrafiya piki ibarətdir. Altındaki jel, yeni pik üçünde iki proteinin de bulunduğunu düzgünlamaktadır.
Şəkil 6B’de kompleksin 140,2 kDa olaraq ölçülen moleküler kütlesi, iki FHL2 və bir β-katenin üçün hesaplanan 149,8 kDa dəyərle qarşılaştırılmıştır.
Şəkil 6C, her FHL2 enjeksiyonunda ortaya çıkan ısı akışı piklerini gösteren ITC termogramıdır. Şəkil 6D’de entegre edilən ısı dəyərleri fasilər nisbətla qarşılaştırılmış və n = 2,040, Kd = 530 nM sonucu elde edilmiştir.
Tədqiqatnın gecmiş, bu gün və gələcək açısından önemi
Geçmiş açısından tədqiqat, tam uzunluqdaki FHL2’nin yapısal analizini sınırlayan üretim sualnuna çözüm sunmaktadır. Önceki araşdırmalar çoğunlukla büyük füzyon etiketleri taşıyan və ya çok düşük miktarlarda elde edilən FHL2 örnekleriyle yürütülmüştür.
Bugün açısından araşdırma, FHL2’nin çözeltide monomerik fakat yüksek derecede esnek bir protein olduğunu deneysel olaraq göstərir. Böylece FHL2’nin yalnız alanların düzgünsal bdaxiliimde sıralandığı sert bir yapı olaraq çizilmesinin yetersiz olduğu ortaya konulmuştur.
Tədqiqat eyni zamanda tam uzunluqda və etiketsiz proteinler kullanıldığında β-katenin ilə 2:1 kompleks oluşabildiğini göstərir. Bu nəticə, Wnt/β-katenin sinyal komplekslerinde daha əvvəl dikkate alınmamış çok dəyərli bir bağlanma nizamı bulunabiləceğini düşündürmektedir.
Gelecek açısından FHL2 ilə β-katenin arasındaki kəsikn temas bölgelerinin belirlenmesi gerekmektedir. Bunun üçün kriyo-elektron mikroskopiyası, NMR, yeni XL-MS deneyleri, hidrogen-deyterium mübadiləsi, mutasiya analizi və hüceyrə daxilii görüntüləmə metodleri kullanılabilir.
Ayrıca iki FHL2 molekülünün:
- β-kateninin eyni yüzeyindeki iki bölgeye mi,
- Birbirinden uzak iki bölgeye mi,
- Birbirleriyle temas ederek mi,
- Sıralı və ya eş zamanlı bdaxiliimde mi bağlandığı belirlenmelidir.
Benzer yapısal tədqiqatlar FHL2’nin PI3K/AKT/mTOR, MAPK/ERK və TGF-β gibi diğer sinyal yollarındaki kompleksleri üçün de uygulanabilir.
Gündelik həyat və sağlık açısından anlamı
Bu tədqiqat birbaşa bir dərman, tanı testi və ya müalicə geliştirmemiştir. Günlük həyat açısından hemen uygulanabiləcek bir nəticə sunmamaktadır. Önemi daha temel səviyyədedir: Hücre üçünde xərçəng, kalp xəstəlikları və doku yanıtlarıyla ilişkiləndirilən bir düzenleyici proteinin nasıl şəkil dəyiştirdiğini və önemli bir sinyal proteiniyle hangi nisbətda birleştiğini izahktadır.
Xəstəliklara yönelik hədəfli müalicəler geliştiriləbilmesi üçün yalnız bir proteinin miktarını değil, hangi moleküler ortakla hangi yüzeyden və hangi stoxiometriyayle bağlandığını bilmek gerekir. Bu tədqiqat gələcəkte FHL2-β-katenin etkiləşimini hədəfleyecek araşdırmalar üçün gerekli yapısal temelin bir bölməünü sağlamaktadır.
Bununla belə 2:1 kompleksin bozulmasının xərçəngi yavaşlatacağı, FHL2’nin engellenmesinin güvenli olduğu və ya bu etkiləşimin pasiyentlərda müalicə hədəfi olaraq kullanılabiləceği gösterilmemiştir.
Tədqiqatnın güclü yönleri
- Tam uzunlukta və son aşamada etiketsiz FHL2 milliqram miqyasında üretilmiştir.
- Fərqlı füzyon etiketleri deneysel olaraq qarşılaştırılmıştır.
- Çinko desteğinin həll olunanlük və bakteriya büyümesi üzərindeki qarşıt etkiləri birlikte dəyərlendirilmiştir.
- Saflaştırılmış proteinin qatlanması CD ilə kontrol edilmiştir.
- Oligomerik durum SEC-SLS ilə fərqlı konsentrasiyalarda incələnmişdir.
- Esneklik SEC-SAXS ilə birbaşa deneysel olaraq dəyərlendirilmiştir.
- SAXS məlumatleri XL-MS kısıtlamalarıyla bütünleştirilmiştir.
- On binlerce konformasiya dəyərlendirilərek tek yapılı yorumdan kaçınılmıştır.
- FHL2-β-katenin etkiləşimi SEC, SDS-PAGE, SEC-SLS və ITC gibi tamamlayıcı metodlerle düzgünlanmıştır.
- Stoxiometriya iki müstəqil nicel metodle 2:1 olaraq desteklenmiştir.
- SAXS, proteomik və modelleme məlumatlerinin önemli bölməü açık məlumat depolarına aktarılmıştır.
Tədqiqatnın məhdudlıkları
- Tədqiqat hakem dəyərlendirmesinden gecmemiş bir preprinttir.
- Deneyler saflaştırılmış rekombinant proteinlerle in vitro ortamda yapılmıştır.
- 2:1 stoxiometriya canlı hüceyrəlerde birbaşa görüntülenmemiştir.
- FHL2 ilə β-kateninin kəsikn bağlanma yüzeyleri haritalanmamıştır.
- İki FHL2 molekülünün eyni və ya fərqlı bağlanma mekanizmalarıyla komplekse katılıp katılmadığı bilinsüd vəziktedir.
- SAXS düşük həll olunanlüklü genel şəkil bilgisi məlumatr; atomik yapı sağlamaz.
- Bütünleştirici modelleme tek bir benzersiz yapı değil, deneysel məlumatlerle uyğun olası yapılar üretmektedir.
- Tek tek topluluklar XL-MS çapraz bağlarının yalnız yüzde 57,4–69,6’sını eyni anda qarşılamıştır.
- sfGFP çıkarılırken təxminən yüzde 50 protein kaybı yaşanması, üretim sürecinde proteinin bir bölməünün kararsız kaldığını göstərir.
- Proteinlerin bakteriyalerde üretilmesi, insan hüceyrəlerindeki post-translyasiya dəyişikliyilərin bulunmadığı mənasına gəlir.
- Fosforilasyon və ya diğer hüceyrəvi dəyişikliklerin stoxiometriyayi nasıl etkilədiği incelenmemiştir.
- Tədqiqat hüceyrəvi Wnt hədəf genlerini, tümör büyümesini və ya müalicə yanıtını ölçmemiştir.
Preprint metninde bazı bdaxiliimsel hesabatlama sualnları da bulunmaktadır. Çok sayıda yerde “Error! Reference source not found.” ifadesi kalmış, ek məlumatye ait DOI alanı tamamlanmamış və bazı metod listelerinde tekrar və ya tutarsız yazılmış konsentrasiyalar bulunmaktadır. Şəkil 1 izahsında əhəmiyyətlilık həddleri “* p ≤ 0,5; ** p ≤ 0,1; *** p ≤ 0,001” bdaxiliiminde məlumatlmiştir. İlk iki hədd bilimsel yayınlarda tez-tez kullanılan sınırlarla uyğun görünmediğinden, bu dəyərler preprintin sonraki sürümünde düzgünlanması gereken hesabatlama ayrıntılarıdır. Burada tədqiqat düzeltilmemiş, metinde bildirilən durum aynen dikkate alınmıştır.
Tədqiqat ne söylüyor?
- sfGFP füzyonu və uygun sink desteği, bakteriyalerde həll olunan FHL2 üretimini güclü bdaxiliimde artırmıştır.
- Tam uzunluktaki etiketsiz FHL2 milliqram miqyasında saflaştırılabilmiştir.
- Saflaştırılmış FHL2’nin ikincil yapısı beklenen modelle uyğundur.
- FHL2 çözeltide ağırlıklı olaraq monomerdir.
- FHL2 sert və tamamen uzadılmış bir protein deyil.
- Protein uzadılmış, ara və kompakt bdaxiliimde bükülmüş konformasiyalar arasında dağılım göstərir.
- FHL2 ilə β-katenin birbaşa və mikrofasilərın altında bir afiniteyle bağlanmaktadır.
- Tam uzunluktaki etiketsiz proteinlerle kompleksin baskın stoxiometriyasi 2 FHL2:1 β-katenindir.
- Bağlanma elməlumatşli molekullararası təmaslarla yönlendirilmekte, lakin konformasiya özgürlüğü kaybı təşkil edir.
Tədqiqat ne söylemiyor?
- 2:1 kompleksin bütün hüceyrə tiplerinde zorunlu olaraq oluştuğunu göstersüd vəziktedir.
- İki FHL2’nin β-katenin üzərindeki kəsikn bağlanma konumlarını belirlesüd vəziktedir.
- Kompleksin atomik həll olunanlüklü yapısını sunmamaktadır.
- FHL2’nin bütün xərçənglerde onkogen və ya bütün xərçənglerde şiş baskılayıcı olduğunu göstersüd vəziktedir.
- FHL2-β-katenin etkiləşiminin engellenmesinin müalicə sağlayacağını göstersüd vəziktedir.
- Herhangi bir dərman adayını, güvenlik profilini və ya klinik sonucu dəyərlendirsüd vəziktedir.
- Pasiyentlarda tanısal və ya prognostik düzgünlama sunmamaktadır.
Tədqiqatnın Metodi və Nəticələrı
Deneysel tədqiqat akışı
| Aşama | Uygulanan metod | Amaç | Temel nəticə |
|---|---|---|---|
| Yapı tasarımı | HT-, GST-, MBP- və sfGFP-FHL2 füzyonları | En uygun həll olunanlük etiketini seçmek | sfGFP en yüksek həll olunan protein üretimini sağladı. |
| Çinko optimizasyonu | 0–1.000 µM ZnCl2 | LIM sahələrinın qatlanmasını desteklemek | 250–500 µM en uygun toplam məlumatmi sağladı. |
| Büyük ölçekli üretim | E. coli BL21(DE3), 18°C gece indüksiyonu | Yapısal analizlere yeterli protein üretmek | Yaklaşık 5,9 mg/L etiketsiz FHL2 elde edildi. |
| Saflaştırma | İki IMAC, TEV kəsikmi, dializ və SEC | sfGFP etiketini çıkararak tam uzunluqda FHL2 elde etmek | Yaklaşık %90 saflık və 19 mg/mL yoğunluk elde edildi. |
| İkincil yapı | Dairesel dikroizm | Proteinin düzgün qatlanmasını dəyərlendirmek | Deneysel heliks və beta təbəqə nisbətları modelle uyğun bulundu. |
| Oligomerik durum | SEC-SLS | FHL2’nin monomer və ya dimer olduğunu belirlemek | Ana türün monomer olduğu belirlendi. |
| Genel yapı | SEC-SAXS | Çözeltideki boyut və esnekliği ölçmek | FHL2’nin uzadılmış fakat belirgin bdaxiliimde esnek olduğu görüldü. |
| Mesafe kısıtlamaları | BS3 çapraz bağlama və XL-MS | Alanlar arasındaki yakınlıkları belirlemek | Modelleme üçün 46 alanlar arası lizin çapraz bağı kullanıldı. |
| Bütünleştirici modelleme | RRT, BioEmu, FoXS, MultiFoXS və XLP puanlama | Esnek konformasiya topluluklarını belirlemek | Beş ana yapısal topluluk ailəsi tanımlandı. |
| Kompleks oluşumu | SEC və SDS-PAGE | FHL2 ilə β-kateninin birbaşa kompleksini göstermek | İki proteini ehtiva edən yeni və daha büyük bir pik oluştu. |
| Kompleks kütlesi | SEC-SLS | Bağlanma stoxiometriyasini belirlemek | 140,2 kDa kompleks 2:1 stoxiometriyayi destekledi. |
| Bağlanma termodinamiği | ITC | Bağlanma gücü, nisbətı və enerji biləşenlerini ölçmek | n = 2,040; Kd = 530 nM olaraq bulundu. |
Protein üretim koşulları
- Konak hüceyrə: E. coli BL21(DE3).
- Büyütme ortamı: LB.
- FHL2 indüksiyonu: 0,25 mM IPTG.
- β-katenin indüksiyonu: 1 mM IPTG.
- Büyük ölçekli FHL2 üretiminde ZnCl2: 250 µM.
- İndüksiyon sonrası sıcaklık: 18°C.
- İndüksiyon süresi: Gece boyunca.
- FHL2 və sfGFP arasındaki TEV kəsikm dizisi: ENLYFQ↓G.
SAXS ölçüm koşulları
- FHL2 örnek konsentrasiyau: 7,5 mg/mL.
- Enjeksiyon hacmi: 100 µL.
- Kolon: Superdex 200 Increase 10/300 GL.
- Akış hızı: 0,7 mL/dakika.
- Işın hattı: PETRA III, P12, DESY Hamburg.
- X-ışını enerjisi: 9 keV.
- Analiz paketi: ATSAS 4.1.0.
- Düşük açılı, 0,01 Å−1 altındaki məlumatler deneysel artefakt riski səbəbiyle çıkarılmıştır.
XL-MS və modelleme ayrıntıları
- FHL2 konsentrasiyau: 23,36 µM.
- BS3 çapraz bağlayıcı konsentrasiyau: 697 µM.
- Çapraz bağlama: 25°C’de 10 dakika.
- Reaksiyon durdurma: 100 mM Tris-HCl, pH 8,0.
- Protein sindirimi: Tripsin.
- Kütle spektrometresi: Orbitrap Fusion Lumos.
- Modellemede kullanılan alanlar arası lizin çapraz bağları: 46.
- En iyi topluluk seçim eşiği: Bütünleştirilmiş puan ≥ 0,887.
- Seçilən topluluk sayısı: 104.
- Yapısal sadeleştirmeden sonraki fərqlı topluluk sayısı: 28.
- Nihai topluluk ailəsi sayısı: 5.
Temel nicel nəticəlar
| Ölçüm | Nəticə |
|---|---|
| sfGFP ilə toplam ifade artımı | 7,0 ± 0,7 kat |
| sfGFP ilə həll olunan fraksiya artımı | 6,2 ± 1,6 kat |
| Toplam həll olunan protein artımı | 45,3 ± 8,5 kat |
| Saflaştırma məlumatmi | Yaklaşık 5,9 mg/L kultura |
| Saflık | Yaklaşık %90 |
| Ulaşılan FHL2 konsentrasiyau | 19 mg/mL |
| Deneysel alfa heliks nisbətı | %14,2 |
| Deneysel antiparalel beta təbəqə nisbətı | %23,1 |
| Deneysel Rg | 37,8 Å |
| Deneysel Dmax | 137 Å |
| Uzatılmış model Rg | 50,7 Å |
| Uzatılmış model Dmax | 177 Å |
| Çiftler arası uzaklık tepe noktası | 22,5 Å |
| Tek uzadılmış model SAXS χ2 | 15,231 |
| Topluluk modelleri SAXS χ2 | 2,302–2,512 |
| Topluluk başına qarşılanan XL-MS bağı | %57,4–69,6 |
| Toplam açıklanan çapraz bağ | 43/46 |
| Uzatılmış konformasiya nisbətı | %35–57 |
| Bükülmüş konformasiya nisbətı | %11–34 |
| Ara konformasiya nisbətı | %12–54 |
| Kompleksin ölçülen kütlesi | 140,2 kDa |
| 2 FHL2 + 1 β-katenin teorik kütlesi | 149,8 kDa |
| ITC stoxiometriyasi | 2,040 ± 0,001 |
| Ayrışma sabiti Kd | 530 ± 30 nM |
| ΔH | −31,4 ± 0,2 kcal/mol |
| −TΔS | 22,8 kcal/mol |
| ΔG | −8,57 kcal/mol |
Verilərin toplu teknik yorumu
- FHL2 üretimindeki temel sınırlama, proteinin sink bağımlı qatlanması və aqreqasiyaa eğilimidir.
- sfGFP üretim sırasında həll olunanlüğü artıran en etkili füzyon ortağı olmuştur.
- Çinko desteği düzgün qatlanmayı kolaylaştırmış, lakin yüksek konsentrasiyada bakteriyayel büyümeyi baskılamıştır.
- Saflaştırılmış FHL2’nin monomerik, katlanmış və konsantre ediləbilir olduğu göstərilmişdir.
- SAXS nəticəları tek bir uzadılmış yapının deneysel məlumatyi açıklayamadığını göstermiştir.
- XL-MS destekli modelleme, FHL2’nin birden çox yapısal durum arasında hareket ettiğini göstermiştir.
- FHL2’nin doğal oligomerleşme eğilimi görülsüd vəzisine rağmen β-katenin kompleksinde iki FHL2 bulunabilmektedir.
- Bağlanma nisbətı protein konsentrasiyau və karışım nisbətından etkilənmektedir.
- 2:1 stoxiometriya hem moleküler kütle ölçümü hem de kalorimetriyle desteklenmiştir.
- Kompleksin kəsikn moleküler geometrisi hələ belirlenmemiştir.
Mənbə və Metod Notu
Bu daxilierik, Tina Logonder, Uroš Prešern və Aljaž Gaber tarafından hazırlanan “FHL2 production enabled new insight into its flexibility and unexpected binding stoichiometry with β-catenin” baş örtüyülı tədqiqatya dayanmaktadır.
Tədqiqat, Ljubljana Üniversitesi Kimya və Kimya Teknolojisi Fakültesinde gerçekleştirilən deneysel bir preprint araşdırma makalesidir. Mətnde açıkça “This preprint research paper has not been peer reviewed” uyarısı bulunmaktadır. Bu səbəbdən tədqiqat hakem dəyərlendirmesinden gecmemiştir. PDF’de makalenin bir dergi tarafından kabul edildiğine və ya hakemli sürümünün yayımlandığına ilişkin bilgi məlumatlsüd vəziktedir.
Araşdırma klinik tədqiqat deyil. Pasiyent grubu, müalicə kolu, tümör yanıtı və ya klinik güvenlik dəyərlendirmesi mövcud deyil. Tədqiqat; bakteriyalerde üretilən rekombinant FHL2 və β-katenin proteinleri üzərinde yapılan in vitro protein üretimi, saflaştırma, biyofiziksel ölçüm, kütlə spektrometriyası və hesaplamalı bütünleştirici modellemeye dayanmaktadır.
SAXS məlumatlerinin Small Angle Scattering Biological Data Bank’a SASDZ36 erişim koduyla aktarıldığı qeyd edilmişdir. Kütle spektrometrisi məlumatleri PRIDE/ProteomeXchange sistemine PXD078621 məlumat kümesi olaraq yüklenmiştir. Bütünleştirici modelleme məlumatleri ilə bazı şəkil məlumatleri Zenodo üzərinde 10.5281/zenodo.19680353 DOI’siyle paylaşılmıştır. Bu DOI araşdırma məlumatlerine aittir; makalenin hakemli yayımlanmış sürümünü ifade etsüd vəziktedir.
Araşdırma Slovenya Araşdırma və İnovasyon Ajansı tarafından PS-0140 numaralı destekle finanse edilmiştir. Yazarlar bilinen bir mali çıkar çatışması və ya kişisel çıkar ilişkisi bulunmadığını bildirmiştir.
Mətnde, analiz kodunun yazılmasına yardımcı olmak amacıyla ChatGPT kullanıldığı; araşdırmacıların oluşturulan daxilieriği gözden gecirip düzenlediği və makalenin sualmluluğunu üstlendiği açıklanmıştır.
Bu Türkçe makale yalnız yüklenen tədqiqatda sunulan metodlere, sayısal məlumatlere, şəkillere, nəticəlara və yazarların tartımmasına dayanarak hazırlanmıştır. PDF’de bulunmayan klinik etki, tanı başarısı, dərman etkinliği, müalicə garantisi, ticari uygulanabilirlik və ya pasiyent yararı iddiaları eklenmemiştir.
Tədqiqatnın temel bilimsel katkısı, tam uzunluqdaki etiketsiz FHL2’nin yeterli miktarda üretiləbildiğini, çözeltide esnek bir konformasiya topluluğu oluşturduğunu və tam uzunluqdaki β-kateninle 2:1 nisbətında kompleks kurabildiğini göstermesidir. Bağlanma yüzeylerinin, hüceyrə daxilii stoxiometriyanin və biyolojik nəticəların belirlenmesi üçün yeni deneyler gerekmektedir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib