

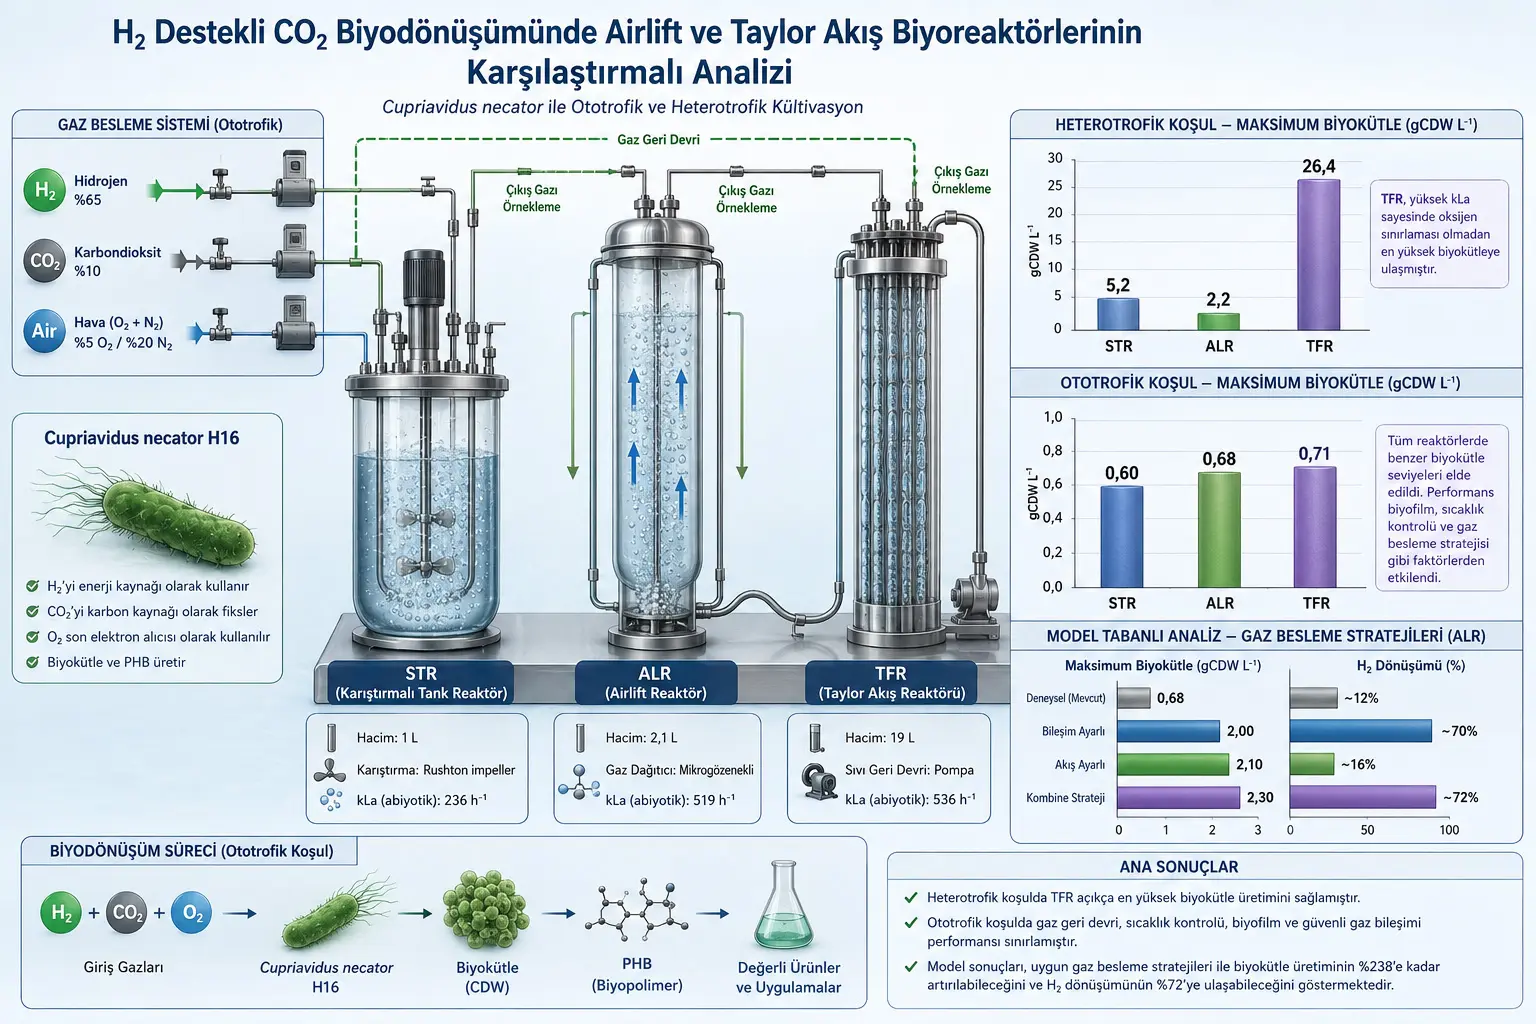
Bu çalışma, hidrojen destekli CO₂ biyodönüşümünde farklı biyoreaktör tasarımlarının ne kadar etkili olabileceğini inceliyor. Araştırmanın merkezinde Cupriavidus necator H16 adlı hidrojen oksitleyen bakteri yer alıyor. Bu bakteri, uygun koşullarda hidrojen gazını enerji kaynağı olarak kullanabiliyor, CO₂’yi karbon kaynağı olarak hücre yapısına katabiliyor ve oksijeni son elektron alıcısı olarak kullanarak büyüyebiliyor. Bu nedenle, fosil kaynaklara daha az bağımlı kimyasal üretim ve karbonun yeniden değerlendirilmesi açısından önemli bir biyoteknolojik platform olarak görülüyor.
Çalışmada üç farklı biyoreaktör yaklaşımı karşılaştırılmıştır: geleneksel karıştırmalı tank reaktörü (stirred tank reactor, STR), airlift reaktör (airlift reactor, ALR) ve Taylor akış reaktörü (Taylor flow reactor, TFR). Deneyler iki ana koşulda yürütülmüştür. Heterotrofik koşulda bakteri karbon kaynağı olarak fruktoz kullanmıştır. Ototrofik koşulda ise bakteri H₂, CO₂ ve O₂ gaz karışımıyla büyütülmeye çalışılmıştır. Böylece araştırmacılar, bu reaktörlerin hem daha klasik organik karbonlu büyümede hem de doğrudan gazlarla yürüyen CO₂ biyodönüşümünde nasıl davrandığını karşılaştırmıştır.
Heterotrofik koşullarda TFR açık biçimde en yüksek biyokütle üretimini sağlamıştır. TFR’de 26,4 gCDW L-1 biyokütleye ulaşılırken, STR 5,2 g L-1, ALR ise 2,2 g L-1 düzeyinde kalmıştır. Bu fark, TFR’nin gaz-sıvı kütle transferini daha güçlü sağlamasıyla ilişkilendirilmiştir. Ototrofik koşullarda ise beklenen üstünlük tam olarak ortaya çıkmamıştır. ALR, TFR ve STR benzer aralıkta kalmış; en yüksek biyokütle değerleri yaklaşık 0,60–0,71 gCDW L-1 aralığında raporlanmıştır. Araştırmacılar bu sınırlı performansı biyofilm oluşumu, hücre kümelenmesi, TFR’de sıcaklık kontrol sorunları, güvenli fakat biyolojik olarak alt-optimal gaz besleme koşulları ve geri devreden gazın taze gazı seyreltmesi gibi nedenlerle açıklamıştır.
Çalışmanın önemli katkısı yalnızca deneysel karşılaştırma yapması değildir. Araştırma ayrıca ototrofik biyoreaktörleri matematiksel modelle analiz etmiş ve gaz geri devri, taze gaz akışı, gaz bileşimi, oksijen bulunabilirliği ve hidrojen dönüşümü arasındaki dengenin biyokütle üretimini güçlü biçimde etkilediğini göstermiştir. Model sonuçlarına göre, taze gaz bileşimi ile akış hızını birlikte ayarlayan strateji, deneysel ALR sonucuna göre biyokütle üretimini teorik olarak %238 artırarak 2,3 g L-1 seviyesine çıkarabilir ve H₂ dönüşümünü yaklaşık %72’ye ulaştırabilir. Ancak bu model sonuçları deneysel doğrulama değil, simülasyon temelli öngörüdür; bu nedenle dikkatli okunmalıdır.
Detaylı Açıklama
Çalışmanın temel problemi nedir?
Sanayide karbon salımını azaltmak için yalnızca enerji kaynağını değiştirmek yeterli değildir. Kimya endüstrisi gibi sektörlerde karbon atomunun kendisi de ürünlerin yapısına girer. Plastik, çözücü, biyopolimer, platform kimyasalları ve bazı biyoteknolojik ürünler karbon içerir. Bu nedenle mesele yalnızca “daha az enerji harcamak” değil, aynı zamanda fosil kaynaklı karbon yerine geri kazanılmış veya biyolojik olarak dönüştürülmüş karbon kullanabilmektir.
Bu çalışmanın ilgilendiği temel fikir şudur: CO₂ yalnızca atmosfere salınan bir atık gaz olarak değil, biyolojik üretimde karbon kaynağı olarak da değerlendirilebilir. Fakat CO₂’nin hücre tarafından kullanılabilmesi için enerji gerekir. Hidrojen burada enerji kaynağı ve elektron vericisi olarak devreye girer. Cupriavidus necator gibi hidrojen oksitleyen bakteriler, H₂’den enerji elde ederek CO₂’yi hücresel maddeye dönüştürebilir. Bu yaklaşım, yenilenebilir hidrojenle birleştirildiğinde, teorik olarak fosil hammaddeye daha az bağımlı bir biyoproses yolu sunar.
Ancak sorun burada başlar: H₂ ve O₂ gibi gazların suda çözünürlüğü düşüktür. Bakterinin büyümesi için bu gazların sıvı kültür ortamına geçmesi gerekir. Gaz kabarcığı reaktöre verilse bile, hücre gaz fazındaki molekülü doğrudan kullanmaz; gazın önce sıvı faza çözünmesi, sonra hücreye ulaşması gerekir. Bu geçiş yeterince hızlı olmazsa, hücre ortamda gaz varmış gibi görünse bile aslında aç kalır. Çalışmanın ana problemi tam olarak bu gaz-sıvı kütle transferi darboğazıdır.
Bir diğer temel sorun güvenliktir. Cupriavidus necator ototrofik büyümede H₂, CO₂ ve O₂ karışımıyla çalışır. Oksijen artırıldığında hücrelerin büyümesi kolaylaşabilir; ancak H₂/O₂ karışımları belirli oranlarda yanıcı ve patlayıcı hale gelebilir. Dolayısıyla araştırmacılar yalnızca “en iyi biyolojik büyümeyi” değil, güvenli gaz bileşimi altında büyümeyi de dikkate almak zorundadır. Bu durum biyoproses tasarımını daha karmaşık hale getirir.
Bu problem neden önemli?
CO₂ biyodönüşümü, iklim değişikliği, karbon döngüsü, kimyasal üretim ve biyoteknoloji alanlarının kesiştiği bir konudur. Bu yaklaşım başarıyla geliştirilebilirse, CO₂’den biyokütle, tek hücre proteini, biyopolimerler, yağlar veya değerli kimyasal ara ürünler üretmek mümkün olabilir. Ancak laboratuvar ölçeğinde umut verici görünen bir biyolojik fikir, reaktör ölçeğinde gaz transferi, ısı kontrolü, köpüklenme, biyofilm oluşumu ve güvenli gaz beslemesi gibi mühendislik sorunları nedeniyle beklenen performansı veremeyebilir.
Bu çalışma bu açıdan değerlidir; çünkü yalnızca bakterinin metabolik potansiyeline bakmıyor, “Bu bakteri hangi reaktörde, hangi gaz transfer koşullarında gerçekten büyüyebiliyor?” sorusuna odaklanıyor. Bir bakteri CO₂’yi biyokütleye çevirebilir; fakat eğer reaktör gazı sıvıya yeterince aktaramıyorsa, proses endüstriyel açıdan zayıf kalır. Tersi de mümkündür: Reaktör gaz transferi açısından çok güçlü olabilir; fakat sıcaklık kontrolü bozulursa, biyofilm gözenekleri tıkarsa veya güvenlik nedeniyle oksijen düşük tutulursa beklenen biyolojik sonuç alınamayabilir.
Gündelik bir benzetmeyle, bu durum mutfakta çok iyi bir tarifin olması ama ocağın ısıyı düzgün verememesi gibidir. Malzeme doğru, tarif doğru, hatta aşçı iyi olabilir; fakat ısı, karıştırma ve zamanlama doğru değilse yemek beklenen kıvama gelmez. Bu çalışmada da bakteri, gazlar ve reaktörler arasındaki ilişki böyle bir bütün olarak ele alınmaktadır.
Araştırmanın cevap verdiği boşluk
H₂ destekli CO₂ biyodönüşümünde birçok çalışma mikroorganizmanın metabolizmasına, ürün yelpazesine veya gaz bileşimine odaklanır. Ancak farklı yoğunlaştırılmış reaktör tasarımlarının aynı biyolojik sistem altında karşılaştırılması sınırlıdır. Bu çalışmada airlift reaktör ve Taylor akış reaktörü, geleneksel karıştırmalı tank reaktörüne karşı değerlendirilmiştir.
STR, biyoteknolojide çok yaygın kullanılan klasik bir sistemdir. Mekanik karıştırıcılarla sıvıyı karıştırır ve gaz kabarcıklarının dağılmasını sağlar. ALR ise mekanik karıştırıcı yerine gaz akışının oluşturduğu dolaşımla çalışır; daha düşük kesme kuvveti ve daha basit tasarım avantajı vardır. TFR ise kapiler kanallar içinde Taylor akışı denilen segmentli gaz-sıvı akış oluşturur. Bu akışta gaz kabarcıkları ve sıvı tıkaçları ardışık şekilde hareket eder; böylece gaz-sıvı temas alanı artar ve difüzyon mesafesi kısalır.
Çalışmanın yanıt aradığı boşluk şudur: Gaz transferi açısından daha yoğunlaştırılmış ALR ve TFR sistemleri, H₂ destekli CO₂ biyodönüşümünde geleneksel STR’den gerçekten daha iyi biyolojik performans sağlar mı? Araştırmanın yanıtı iki parçalıdır. Fruktozlu heterotrofik büyümede TFR çok güçlü bir üstünlük göstermiştir. Fakat doğrudan H₂/CO₂/O₂ ile ototrofik büyümede bu üstünlük tam olarak görünmemiştir. Bu sonuç, reaktör tasarımında yalnızca kLa değerine bakmanın yeterli olmadığını göstermektedir.
Çalışmada kullanılan mikroorganizma: Cupriavidus necator
Cupriavidus necator H16, hidrojen oksitleyen ve farklı beslenme biçimlerine uyum sağlayabilen bir bakteridir. Heterotrofik koşullarda organik karbon kaynaklarını, örneğin fruktozu kullanabilir. Ototrofik koşullarda ise H₂’yi enerji ve elektron kaynağı, CO₂’yi karbon kaynağı, O₂’yi de terminal elektron alıcısı olarak kullanabilir.
Bu bakterinin önemli özelliklerinden biri, polihidroksibütirat yani PHB biriktirebilmesidir. PHB, biyobazlı ve biyolojik olarak parçalanabilir bir polyester olarak değerlendirilebilir. Çalışmada PHB ölçümü de yapılmıştır; özellikle TFR’de heterotrofik koşullarda amonyum sınırlaması ve besleme darbeleriyle birlikte PHB birikimi gözlenmiştir. Bu, bakterinin yalnızca çoğalmakla kalmadığını, besin dengesine göre karbonu depolama polimerine yönlendirebildiğini gösterir.
Heterotrofik ve ototrofik koşul arasındaki fark
Çalışmada iki farklı biyolojik çalışma biçimi vardır. Heterotrofik koşulda bakteri fruktoz kullanır. Bu durumda karbon kaynağı sıvı ortamda çözünmüş haldedir ve bakteriye ulaşması, gaz halindeki CO₂’ye göre daha kolaydır. Oksijen yine önemlidir; çünkü hücrenin solunumu için gereklidir. Bu yüzden heterotrofik deneylerde asıl sınırlayıcı unsurun oksijen transferi olup olmadığı izlenmiştir.
Ototrofik koşulda durum daha zordur. Bakteri hem karbonu CO₂’den alır hem enerjiyi H₂’den sağlar hem de O₂’ye ihtiyaç duyar. Bu üç gazın da reaktöre doğru oranlarda verilmesi, sıvıya çözünmesi ve hücre tarafından kullanılabilir hale gelmesi gerekir. Üstelik H₂/O₂ güvenliği nedeniyle oksijen oranı biyolojik olarak ideal olabilecek düzeyin altında tutulmak zorunda kalabilir. Bu nedenle ototrofik büyüme, heterotrofik büyümeye göre çok daha hassas bir mühendislik problemi haline gelir.
Gaz-sıvı kütle transferi ve kLa neden çalışmanın merkezinde?
Çalışmada sık sık geçen kLa, hacimsel gaz-sıvı kütle transfer katsayısıdır. Basitçe, gaz fazındaki bir bileşenin sıvıya ne kadar hızlı aktarılabildiğini temsil eder. kLa ne kadar yüksekse, reaktör gazı sıvı ortama o kadar etkili aktarabilir. Ancak çalışmanın gösterdiği gibi, kLa tek başına her şeyi açıklamaz; çünkü gerçek biyolojik koşullarda biyofilm, sıcaklık, gaz bileşimi ve geri devir oranı da performansı belirler.
Çalışmanın mantığını açıklamak için temel gaz transfer ilişkisi şu şekilde anlaşılabilir:
\[
r_{O_2}=K_La\left(M_{O_2}^{sat}-M_{O_2}\right)
\]
Bu formül çalışmadaki oksijen denge denkleminin ilk kısmına karşılık gelen kütle transfer terimini anlamak için kullanılabilir. Burada rO₂, oksijenin sıvı faza aktarım hızını; KLa, hacimsel oksijen kütle transfer katsayısını; MO₂sat, mevcut gaz koşullarında sıvıda ulaşılabilecek doygun çözünmüş oksijen derişimini; MO₂ ise anlık çözünmüş oksijen derişimini ifade eder. Parantez içindeki fark büyüdükçe, oksijenin sıvıya geçmesi için itici güç artar.
Gündelik bir benzetmeyle, bu ilişki boş bir bardağın suyla dolmasına benzer. Bardak ne kadar boşsa, doldurma farkı o kadar büyüktür. Ancak musluğun debisi de önemlidir. kLa, bu örnekte musluğun ne kadar etkili su verebildiğine benzetilebilir. Fakat eğer su borusu tıkanırsa, bardak eğilirse veya su çok sıcaksa, yalnızca musluk debisine bakmak yeterli olmaz. Çalışmada da yüksek kLa değerine rağmen ototrofik TFR’nin beklenen biyokütleye ulaşamaması bu yüzden önemlidir.
Deney düzeneği: STR, ALR ve TFR nasıl farklı?
Çalışmada kullanılan STR, 1 L çalışma hacmine sahip Labfors 5 biyoreaktördür. Sıcaklık, çözünmüş oksijen ve pH sensörleriyle izlenmiş; pH kontrolü 5 M NaOH ile yapılmıştır. Karıştırma üç adet altı kanatlı Rushton impeller ile sağlanmıştır. Karıştırma hızı çözünmüş oksijene bağlı kademeli kontrol stratejisiyle 300 rpm’den maksimum 1100 rpm’ye kadar ayarlanabilecek şekilde kullanılmıştır.
ALR, iç döngülü konsantrik tip bir airlift reaktördür. 2,1 L çalışma hacmine sahiptir. Reaktörde 470 mm uzunluğunda cam bir yükseltici bölüm ve dış kolon arasında iniş bölgesi bulunur. Gaz, yükseltici bölümün tabanındaki mikrogözenekli paslanmaz çelik dağıtıcıdan verilmiştir. Bu dağıtıcı 0,5 µm nominal gözenek boyutuna sahiptir. Amaç, küçük kabarcıklar oluşturarak gazın sıvıda daha homojen dağılmasını sağlamaktır.
TFR, 1600 mm uzunluğunda paslanmaz çelik bir kolon içinde 207 kapiler kanal içeren daha büyük bir sistemdir. Kapilerlerin iç çapı 3 mm, dış çapı 6 mm’dir ve çalışma hacmi 19 L’dir. Gaz alttan verilmiş, kapilerlere girmeden önce K1 Kaldnes halkaları kullanılarak daha düzgün gaz dağılımı hedeflenmiştir. Sıvı geri devri santrifüj pompayla sağlanmıştır. Taylor akış mantığında gaz kabarcıkları ve sıvı segmentleri kapiler içinde düzenli şekilde ilerler. Bu yapı, gaz-sıvı temasını güçlendirdiği için özellikle düşük çözünürlüklü gazlarla çalışan sistemlerde önemlidir.
Şekil 1 ne anlatıyor?
Çalışmadaki deney düzeneği şeması, heterotrofik ve ototrofik büyüme hatlarını birlikte gösterir. Kırmızı hatlar heterotrofik deneylerde kullanılan taze hava beslemesini, yeşil hatlar ototrofik deneylerde kullanılan H₂, CO₂ ve hava besleme sistemini, siyah hatlar ise iki sistemin ortak kullandığı reaktör istasyonunu temsil eder. Reaktör istasyonunda TFR, ALR ve STR birlikte gösterilir; TFR’de ayrıca sıvı geri devir döngüsü vardır.
Bu şema önemlidir, çünkü çalışmanın yalnızca “üç farklı kapta bakteri büyütme” deneyi olmadığını gösterir. Gaz kaynakları, kütle akış kontrolörleri, gaz örnekleme noktaları, geri devir kompresörü, sıvı pompası ve reaktör istasyonu birlikte düşünülmüştür. Özellikle ototrofik koşulda gaz bileşiminin girişte ve çıkışta izlenmesi, H₂ ve O₂ güvenliğiyle biyolojik büyüme arasındaki dengenin ölçülmesi açısından kritiktir.
Heterotrofik büyüme sonuçları: TFR neden öne çıktı?
Heterotrofik deneylerde fruktoz karbon kaynağı olarak kullanılmış ve her reaktörde Cupriavidus necator büyümesi izlenmiştir. STR deneyinde 800 rpm karıştırma ve 1,8 L dk-1 hava akışı uygulanmıştır. Bu koşulda abiyotik kLa 385 h-1 olarak verilmiştir. Yaklaşık 20 saatlik gecikme evresinden sonra 30 saat kadar süren üstel büyüme görülmüş, özgül büyüme hızı 0,17 h-1 düzeyine ulaşmıştır. Yaklaşık 50 saatten sonra çözünmüş oksijen neredeyse sıfıra düşmüş ve oksijen sınırlaması nedeniyle biyokütle artışı durmuştur. Maksimum hücre derişimi 5,2 g L-1 olarak raporlanmıştır.
ALR deneyinde hava akışı 2 L dk-1, abiyotik kLa 336 h-1 olarak verilmiştir. Büyüme profili STR’ye benzer bir gecikme evresi göstermiş, üstel evre yaklaşık 20 saatten sonra başlamış ve özgül büyüme hızı 0,16 h-1 olmuştur. Ancak maksimum hücre derişimi yalnızca 2,2 g L-1 düzeyinde kalmıştır. Araştırmacılar bu düşük değerin en azından kısmen hücre kümelenmesi ve biyofilm oluşumu nedeniyle biyokütlenin doğru ölçülememesiyle ilişkili olduğunu belirtmiştir. ALR’nin düşük kesme kuvvetli yapısı hücrelerin reaktör duvarına tutunmasını ve kendi aralarında kümelenmesini kolaylaştırmış olabilir.
TFR ise heterotrofik koşulda en güçlü sonucu vermiştir. Hava akışı 40 L dk-1, sıvı geri devir hızı 35 L dk-1 ve abiyotik kLa 1300 h-1 olarak verilmiştir. Bu sistemde kapiler tüpler boyunca Taylor akışına özgü uzun kabarcıklar gözlenmiştir. Üstel büyüme yaklaşık 30 saatten sonra başlamış ve özgül büyüme hızı 0,16 h-1 olarak raporlanmıştır. TFR, deney boyunca oksijen sınırlaması göstermeden 26,4 g L-1 maksimum biyokütleye ulaşmıştır.
Bu sonuç çok önemlidir. Çünkü başlangıç büyüme hızları STR, ALR ve TFR’de birbirine yakındır; asıl fark nihai biyokütle kapasitesinde ortaya çıkmıştır. TFR, oksijeni daha iyi aktarabildiği için hücre yoğunluğu yükseldiğinde bile büyümenin oksijen yetersizliğiyle erken durmasını engellemiştir. Taylor akışında gaz kabarcıklarının yarım küresel uçlarından sıvı tıkaçlarına ve silindirik kabarcık yüzeyinden ince sıvı filmine transfer gerçekleşir. Bu iki yol, temas alanını artırır ve difüzyon mesafesini kısaltır. Böylece oksijen transferi güçlenir.
Şekil 2 ne anlatıyor?
Heterotrofik büyüme grafikleri, STR, ALR ve TFR’de hücre derişimi, fruktoz derişimi ve amonyum sülfat derişiminin zamanla değişimini gösterir. STR ve ALR’de hücre derişimi belirli bir noktaya kadar artar, sonra oksijen sınırlaması ve besin durumuyla birlikte artış durur. TFR grafiğinde ise daha uzun süreli ve daha yüksek biyokütle oluşumu görülür. Ayrıca grafikte besin ekleme olayları ve PHB ölçüm zamanları işaretlenmiştir.
TFR’de yaklaşık 40 saat civarında ilk amonyum sınırlaması görülmüş, sonrasında biyokütle büyümesi ile PHB birikimi arasında değişen bir metabolik davranış ortaya çıkmıştır. Maksimum PHB içeriği %47,8 olarak, son PHB içeriği ise %37,4 olarak raporlanmıştır. Bu, azot sınırlaması sırasında hücrenin karbonu büyüme yerine depolama polimerine yönlendirebildiğini gösterir.
Şekil 3 ne anlatıyor?
Airlift reaktör görseli, deneysel sistemde biyofilm oluşumunun yalnızca teorik bir sorun olmadığını, fiziksel olarak reaktör yüzeylerinde gözlendiğini gösterir. Görselde ALR’nin yandan görünümü ve kültivasyon sonrası üstten görünümü yer alır. Üstten görünümde reaktör duvarında biyofilm oluşumu, downcomer ve riser bölümleri işaretlenmiştir.
Bu görsel çalışmanın yorumunda çok önemlidir. Çünkü ALR’nin düşük biyokütle sonucunu yalnızca “bu reaktör zayıf” diye okumak doğru olmaz. Biyofilm oluştuğunda hücrelerin bir kısmı sıvı fazda serbest dolaşmaz; duvara veya iç yapılara tutunur. Bu durum hem ölçümü bozar hem de gaz dağıtıcı yüzeyleri tıkayarak kabarcık boyutunu ve gaz transferini değiştirebilir. Ototrofik koşulda sparger üzerinde biyofilm oluşması, gözenekleri kısmen tıkayarak kLa’yı düşürebilecek bir etki olarak tartışılmıştır.
Ototrofik deneylerde neden beklenen üstünlük oluşmadı?
Ototrofik deneylerde amaç, ALR ve TFR’nin düşük çözünürlüklü gazlarla çalışan CO₂ biyodönüşümünde STR’ye göre avantaj sağlayıp sağlamadığını görmekti. Taze gaz beslemesi CO₂, elektrolitik H₂ ve filtrelenmiş hava ile hazırlanmıştır. Gaz bileşimi 10%:65%:5%:20% oranında CO₂:H₂:O₂:N₂ olacak şekilde toplam 140 NmL dk-1 akışla verilmiştir. Tüm ototrofik kültürler 30 °C ve pH 7,0 koşullarında yürütülmüştür. ALR ve TFR’de gaz geri devri uygulanmış; ALR’de 5 L dk-1, TFR’de 10 L dk-1 gaz geri devir hızı kullanılmıştır.
ALR ototrofik deneyinde abiyotik kLa 519 h-1 olarak verilmiştir. Buna rağmen maksimum biyokütle yalnızca 0,68 gCDW L-1 olmuştur. Özgül büyüme hızı üstel evrede 0,01 h-1 düzeyindedir. Biyofilm ve hücre aglomerasyonu burada da önemli sorun olarak gözlenmiştir. Özellikle gaz dağıtıcı yüzeyde biyofilm oluşması, kabarcık boyutunu değiştirerek gaz-sıvı transferini azaltmış olabilir.
TFR ototrofik deneyinde abiyotik kLa 536 h-1 olarak verilmiş ve maksimum biyokütle 0,71 gCDW L-1 olarak raporlanmıştır. Bu değer STR ve ALR’ye yakındır. Oysa TFR’nin daha iyi gaz-sıvı transferinden dolayı daha yüksek biyokütle bekleniyordu. Araştırmacılar burada sıcaklık kontrolünü önemli bir sınırlayıcı olarak değerlendirmiştir. Sıvı geri devir pompasının enerji girdisi nedeniyle özellikle sıcak günlerde 33–40 °C aralığında geçici sıcaklık tepe değerleri oluşmuştur. Cupriavidus necator tipik olarak yaklaşık 30 °C’de yetiştirilir; 40 °C üzerindeki sıcaklıkların büyümeyi ciddi biçimde bozabileceği belirtilmiştir. Ototrofik koşulda büyüme zaten gaz transferiyle sınırlı olduğu için sıcaklık artışı gaz çözünürlüğünü de düşürerek sorunu ağırlaştırmıştır.
STR kontrol kültürü abiyotik kLa 236 h-1 ile 0,6 gCDW L-1 son biyokütleye ulaşmıştır. Bu değer, daha yüksek kLa değerlerine sahip ALR ve TFR ile aynı büyüklük mertebesindedir. Bu sonuç çalışmanın ana mesajlarından biridir: Yoğunlaştırılmış gaz-sıvı transferi potansiyeli tek başına ototrofik büyümede üstünlük garantisi vermemiştir. Reaktör içinde biyofilm, sıcaklık, güvenli gaz bileşimi ve geri devir oranı gibi başka kısıtlar bu avantajı maskelemiştir.
Şekil 4 ne anlatıyor?
Ototrofik büyüme grafiği, STR, ALR ve TFR’nin biyokütle derişimlerini zaman içinde karşılaştırır. Ayrıca daha önce raporlanan hibrit ATFR verisi de referans olarak eklenmiştir. STR erken dönemde yaklaşık 0,6 g L-1 civarına ulaşır ve orada kalır. ALR daha yavaş yükselir, daha geç dönemde yaklaşık 0,68 g L-1 seviyesine çıkar ve sonra düşüş gösterir. TFR ise zamanla yaklaşık 0,71 g L-1 seviyesine ulaşır, ancak beklenen yüksek biyokütleye çıkamaz.
Grafikte ATFR’nin yaklaşık 0,95 gCDW L-1 düzeyine kadar çıktığı görülür. Ancak bu değer bile yüksek hücre yoğunluklu ototrofik büyüme beklentisinin oldukça altındadır. Çalışma, bunun gaz geri devri ile taze gaz beslemesi arasındaki oranın etkili olabileceğini tartışır. Yani sistemde çok fazla gaz dolaştırmak, hidrodinamik ve kLa açısından gerekli olabilir; fakat eğer taze gaz akışı çok düşük kalırsa, geri dönen gaz taze gazı seyreltir ve oksijenin sıvıya geçişi için gereken kısmi basınç düşer.
Gaz bileşimi ve güvenlik dengesi
Çalışmada kullanılan gaz karışımı, azotsuz temelde yeniden hesaplandığında 12,5%:81,3%:6,2% oranında CO₂:H₂:O₂ bileşimine karşılık gelmektedir. Literatürde Cupriavidus necator ototrofik kültivasyonu için sık kullanılan daha uygun bileşimlerden biri 10% CO₂, 70% H₂ ve 20% O₂ olarak verilir. Fakat bu oran H₂/O₂ karışımları açısından alt patlama sınırını aşabilir. Bu nedenle araştırmacılar güvenlik gerekçesiyle oksijeni daha düşük tutmuştur.
Bu durum biyoproses tasarımında çok hassas bir ikilem oluşturur. Bakteri daha fazla oksijenle daha iyi büyüyebilir; ancak daha fazla oksijen, hidrojen içeren sistemde güvenlik riskini artırır. Dolayısıyla güvenli ve biyolojik olarak verimli gaz besleme arasında bir denge kurulmalıdır. Çalışmanın modelleme kısmı bu dengeyi daha sistematik olarak araştırır.
Matematiksel model: Oksijen büyümeyi nasıl etkiliyor?
Ototrofik büyümede oksijenin hem eksikliği hem fazlalığı sorun olabilir. Çalışmada oksijen sınırlamasının yaklaşık 1,1 mgO₂ L-1 altında bildirildiği, 11,3 mgO₂ L-1 üzerinde ise inhibitör etkilerden söz edildiği aktarılmıştır. Ayrıca 4–7 mgO₂ L-1 arasında daha düşük özgül büyüme hızları, 2–3 mgO₂ L-1 arasında ise daha yüksek büyüme hızları bildirildiği için oksijenin derişime bağlı etkisini tanımlamak üzere Haldane-Andrews modeli seçilmiştir.
Çalışmada verilen özgül büyüme hızı denklemi şöyledir:
\[
\mu = \mu_{max}\frac{M_{O_2}}{K_{O_2}+M_{O_2}+\frac{M_{O_2}^{2}}{K_I}}
\]
Burada \(\mu\), özgül büyüme hızıdır ve hücrelerin birim zamanda ne kadar hızlı çoğaldığını gösterir. \(\mu_{max}\), ulaşılabilecek maksimum özgül büyüme hızıdır. \(M_{O_2}\), çözünmüş oksijen derişimidir. \(K_{O_2}\), oksijen için doygunluk sabitidir; oksijenin büyüme üzerindeki sınırlayıcı etkisini temsil eder. \(K_I\), oksijen inhibisyon sabitidir; yüksek oksijenin büyümeyi baskılamaya başladığı etkiyi ifade eder.
Bu formülün anlamı şudur: Oksijen çok düşükse büyüme yavaşlar, çünkü hücre solunum için yeterli oksijen bulamaz. Oksijen uygun aralıktaysa büyüme hızlanır. Ancak oksijen fazla yükselirse, paydadaki \(M_{O_2}^{2}/K_I\) terimi büyür ve büyüme hızı yeniden düşebilir. Yani oksijen için “ne kadar çok, o kadar iyi” mantığı geçerli değildir; güvenli ve biyolojik olarak uygun bir aralık gerekir.
STR için biyokütle ve çözünmüş oksijen denge denklemleri
Karıştırmalı tank reaktörü için biyokütle büyümesi şu kütle dengesiyle ifade edilmiştir:
\[
\frac{dx}{dt}=\mu x-k_d x
\]
Burada \(x\), hücre derişimidir ve birimi g L-1 olarak verilir. \(\mu\), özgül büyüme hızıdır. \(k_d\), görünür biyokütle bozunma katsayısıdır. Denklem, biyokütlenin bir taraftan büyüme ile arttığını, diğer taraftan bakım/bozunma etkileriyle azaldığını anlatır. \(\mu x\) terimi hücre çoğalmasını, \(k_d x\) terimi ise biyokütle kaybını temsil eder.
Çözünmüş oksijen dengesi ise şu şekilde verilmiştir:
\[
\frac{dM_{O_2}}{dt}=K_La\left(M_{O_2}^{sat}-M_{O_2}\right)-\left(\frac{\mu}{Y_{x/O_2}}+m_{O_2}\right)x
\]
Burada \(M_{O_2}\), çözünmüş oksijen derişimidir. \(K_La\), hacimsel oksijen kütle transfer katsayısıdır. \(M_{O_2}^{sat}\), doygun çözünmüş oksijen derişimidir. \(Y_{x/O_2}\), oksijene göre biyokütle verimidir; tüketilen oksijen başına ne kadar hücre kuru ağırlığı oluştuğunu gösterir. \(m_{O_2}\), hücrelerin büyüme dışında yaşamını sürdürmek için harcadığı özgül oksijen bakım katsayısıdır.
Bu denklemin sol tarafı oksijen derişiminin zamanla değişimidir. Sağ tarafın ilk bölümü oksijenin gazdan sıvıya girişini, ikinci bölümü ise hücreler tarafından tüketilmesini gösterir. Yani oksijen seviyesi, reaktörün oksijen aktarma kapasitesi ile hücrelerin oksijen tüketimi arasındaki yarışın sonucudur.
Gaz geri devirli sistemler için model
ALR gibi gaz geri devirli sistemlerde yalnızca sıvı fazdaki oksijen değil, gaz fazındaki H₂ ve CO₂ oranları da zamanla değişir. Çalışmada gaz fazındaki hidrojen mol kesri için şu diferansiyel denklem verilmiştir:
\[
\frac{dy_{H_2,out}}{dt}=\left(n_{in}y_{H_2,in}-n_{out}y_{H_2,out}-\frac{Y_{x/O_2}}{Y_{x/H_2}}q_{O_2}xV\right)n_G^{-1}
\]
Burada \(y_{H_2,out}\), reaktör çıkışı veya baş boşluğundaki hidrojen mol kesridir. \(y_{H_2,in}\), giriş gazındaki hidrojen mol kesridir. \(n_{in}\) ve \(n_{out}\), molar gaz giriş ve çıkış hızlarıdır. \(Y_{x/H_2}\), hidrojene göre biyokütle verimidir. \(q_{O_2}\), özgül oksijen tüketim hızıdır. \(x\), biyokütle derişimi; \(V\), çalışma hacmi; \(n_G\) ise reaktör baş boşluğundaki toplam gaz mol sayısıdır.
Bu denklem, gaz fazındaki hidrojen oranının üç ana etkiyle değiştiğini anlatır: Sisteme giren hidrojen, sistemden çıkan hidrojen ve hücrelerin metabolik faaliyetleriyle tüketilen hidrojen. Bu nedenle gaz geri devirli sistemlerde yalnızca taze gaz kompozisyonunu ayarlamak yetmez; geri dönen gazın bileşimi de zamanla prosesi etkiler.
CO₂ mol kesri için çalışmada şu kapatma ilişkisine dayalı ifade verilmiştir:
\[
\frac{dy_{CO_2,out}}{dt}=-\frac{dy_{H_2,out}}{dt}
\]
Bu ifade, modelde belirli varsayımlar altında gaz fazı bileşiminin mol kesri kapanışını temsil eder. Burada amaç, gaz fazındaki bileşim değişiminin basitleştirilmiş şekilde izlenmesidir. Model, gerçek sistemdeki tüm karmaşıklıkları değil, büyüme, oksijen bulunabilirliği, hidrojen kullanımı ve gaz besleme stratejisi arasındaki temel ilişkileri temsil etmeye çalışır.
Hidrojen dönüşüm formülü ne anlatıyor?
Çalışmada hidrojen dönüşümü, taze gazla sisteme verilen toplam hidrojenin ne kadarının purge yani atılan gaz akışıyla kaybedilmediğini ifade edecek şekilde hesaplanmıştır:
\[
X_{H_2}(t)=\frac{\int_{0}^{t}y_{H_2,fresh}(\tau)n_{fresh}(\tau)d\tau-\int_{0}^{t}y_{H_2,out}(\tau)n_{purge}(\tau)d\tau}{\int_{0}^{t}y_{H_2,fresh}(\tau)n_{fresh}(\tau)d\tau}
\]
Burada \(X_{H_2}(t)\), zamana bağlı hidrojen dönüşümüdür. \(y_{H_2,fresh}\), taze gazdaki hidrojen mol kesridir. \(n_{fresh}\), taze gaz molar akış hızıdır. \(y_{H_2,out}\), çıkış veya purge gazındaki hidrojen mol kesridir. \(n_{purge}\), purge gaz akışıdır. Payda, sisteme verilen toplam hidrojen miktarını; paydaki ikinci terim, dışarı atılarak kaybedilen hidrojen miktarını gösterir.
Bu formülün pratik anlamı çok nettir: Hidrojen pahalı ve değerli bir girdidir. Eğer verilen hidrojenin büyük bölümü hücreler tarafından kullanılmadan çıkış gazıyla kayboluyorsa, proses ekonomik açıdan zayıflar. Bu nedenle yalnızca biyokütle miktarına değil, hidrojenin ne kadar verimli kullanıldığına da bakmak gerekir.
Modelleme sonuçları: kLa gerçek biyolojik koşulda neden farklı görünebilir?
STR ototrofik modellemesinde iki kLa değeri karşılaştırılmıştır: abiyotik ölçülen 236 h-1 ve deneysel biyokütle eğrisine daha iyi uyan 145 h-1. Model, 145 h-1 değeriyle deneysel biyokütle profilini daha iyi temsil etmiştir. 236 h-1 kullanıldığında biyokütle birikimi belirgin biçimde fazla tahmin edilmiştir.
Bu sonuç önemli bir uyarıdır. Abiyotik kLa ölçümü, yani canlı hücre olmadan yapılan kütle transfer ölçümü, gerçek kültivasyon koşullarındaki etkili oksijen transferini olduğundan yüksek gösterebilir. Hücrelerin varlığı, ortam bileşimi, biyofilm, köpük, viskozite, yüzey aktif bileşenler ve gaz kabarcık davranışı gerçek proseste kLa’nın etkisini değiştirebilir. Çalışmada 145 h-1 ile 236 h-1 arasındaki farkın modelde maksimum biyokütleyi yaklaşık %58 artırdığı belirtilmiştir. Bu, biyokütle üretiminin etkili gaz-sıvı transferine ne kadar duyarlı olduğunu gösterir.
Şekil 5 ne anlatıyor?
Şekil 5, STR’de deneysel biyokütle verisi ile iki farklı kLa değerine dayalı model tahminlerini karşılaştırır. 236 h-1 değerine dayalı tahmin, biyokütleyi hızlı biçimde daha yüksek seviyeye çıkarır ve deneysel sonucu aşırı tahmin eder. 145 h-1 değeri ise deneysel eğriye daha yakındır. Bu grafik, modelin yalnızca teorik bir egzersiz olmadığını; deneysel veriyle karşılaştırılarak hangi parametrenin gerçek kültür koşullarını daha iyi temsil ettiğinin görüldüğünü gösterir.
Gaz geri devir oranı neden kritik?
Gaz geri devri, gazın reaktörde daha uzun süre kalmasını ve daha iyi kullanılmasını sağlayabilir. Ancak çok yüksek geri devir oranı taze gazın etkisini seyreltir. Çalışmada ALR için gaz geri devir/taze gaz oranı 35,7; TFR için 71,4 olarak verilmiştir. Bu çok yüksek oranlar, taze gazdaki oksijenin geri dönen gazla seyrelmesine yol açabilir.
Henry yasasına göre gaz fazındaki oksijenin kısmi basıncı azaldığında, sıvı fazda ulaşılabilecek doygun çözünmüş oksijen derişimi de düşer. Bu nedenle reaktörde yüksek gaz dolaşımı olsa bile, sıvıya aktarılabilecek etkili oksijen azalabilir. Bu durum ototrofik büyümede özellikle önemlidir; çünkü Cupriavidus necator H₂ ve CO₂’yi kullanırken oksijene de gereksinim duyar.
Şekil 6 ne anlatıyor?
Şekil 6, gaz geri devir oranının maksimum biyokütle ve hidrojen dönüşümü üzerindeki model tahminlerini gösterir. Sol panelde geri devir oranı arttıkça maksimum biyokütle derişiminin düştüğü görülür. Bu düşüş, geri devreden gazın taze gazı seyreltmesi ve oksijenin giriş mol kesrini azaltmasıyla açıklanmıştır.
Sağ panelde ise hidrojen dönüşümünün gaz bileşimine bağlı olarak değiştiği gösterilir. H₂ oranı çok yüksek gaz karışımlarında hidrojen kaybı artabilir ve dönüşüm düşebilir. Daha yüksek oksijen içeren bazı referans karışımlar daha yüksek biyokütle ve H₂ dönüşümü sağlayabilir; fakat bunların bir kısmı H₂/O₂ patlama güvenliği açısından pratikte kullanılamayabilir. Bu grafik, biyolojik performans ile güvenlik arasında zorunlu bir mühendislik dengesi olduğunu açıkça gösterir.
Gaz besleme stratejileri: Model ne öneriyor?
Çalışmada güvenli işletim koşullarında çıkış gazındaki oksijen mol kesrini 0,05 düzeyinde tutmak için üç gaz besleme stratejisi modellenmiştir:
- Bileşim ayarlı strateji: Taze gaz akış hızı sabit tutulur, fakat gaz bileşimi zamanla değiştirilir.
- Akış ayarlı strateji: Taze gaz bileşimi sabit tutulur, fakat taze gaz akış hızı artırılır.
- Kombine strateji: Önce taze gaz bileşimi ayarlanır, purge akışı sıfıra ulaştıktan sonra taze gaz akış hızı artırılır.
Bileşim ayarlı stratejide maksimum biyokütle 2,0 g L-1 olarak tahmin edilmiştir. Bu, deneysel ALR performansına göre %194 artış anlamına gelir. Akış ayarlı stratejide maksimum biyokütle 2,1 g L-1 olarak tahmin edilmiş, deneysel kültüre göre %208 artış raporlanmıştır. Kombine strateji ise en iyi sonucu vermiştir: maksimum biyokütle 2,3 g L-1 olarak tahmin edilmiş ve deneysel sonuca göre %238 artışa karşılık geldiği belirtilmiştir.
Ancak bu sonuçlar deneysel olarak doğrulanmış sonuçlar değildir. Model, ALR için abiyotik ölçülen kLa değerine dayanır. Çalışma, abiyotik kLa’nın gerçek biyolojik koşulları fazla iyimser temsil edebileceğini kendisi de belirtmektedir. Bu nedenle %238 artış ifadesi “kesin deneysel başarı” değil, modelin belirli varsayımlar altında gösterdiği potansiyel iyileşmedir.
Şekil 7 ne anlatıyor?
Şekil 7, üç gaz besleme stratejisinin zaman içindeki etkilerini çok panelli grafiklerle gösterir. Üst sırada biyokütle ve çözünmüş oksijen, alt sıralarda taze gaz ve purge akışları, giriş gazı mol kesirleri ve çıkış gazı mol kesirleri yer alır. Kombine stratejide dikey kesikli çizgi, kontrolün bileşim ayarından akış ayarına geçtiği noktayı gösterir.
Bu grafikler, gaz besleme kontrolünün dinamik bir problem olduğunu gösterir. Hücre sayısı arttıkça gaz tüketimi de artar; dolayısıyla başlangıçta uygun olan gaz bileşimi daha sonra yetersiz kalabilir. Bu yüzden sabit bir gaz reçetesi yerine, büyüme ilerledikçe gaz bileşimi ve akışının ayarlanması daha iyi sonuç verebilir.
Şekil 8 ne anlatıyor?
Şekil 8, üç strateji için hidrojen dönüşümünün zamanla değişimini gösterir. Akış ayarlı stratejide H₂ dönüşümü yalnızca yaklaşık %16’ya ulaşmıştır. Bileşim ayarlı stratejide yaklaşık %70, kombine bileşim + akış stratejisinde ise yaklaşık %72 H₂ dönüşümü raporlanmıştır. Bu fark, purge akışının bazı stratejilerde 28 saatten sonra sıfıra düşmesiyle açıklanır. Purge azalınca verilen hidrojenin daha büyük kısmı ya hücreler tarafından tüketilir ya da geri devir döngüsünde tutulur.
Bu sonuç proses ekonomisi açısından çok önemlidir. Hidrojen, özellikle yenilenebilir kaynaklardan üretildiğinde değerli ve maliyetli bir girdidir. Biyokütle artışı sağlansa bile hidrojenin büyük kısmı kullanılmadan atılıyorsa sistem ekonomik olarak zayıflar. Bu nedenle çalışmanın en güçlü mesajlarından biri, gaz besleme stratejisinin yalnızca biyolojik büyüme için değil, H₂ kullanım verimi için de kritik olduğudur.
Çalışmanın güçlü yönleri
- Deneysel karşılaştırma yapması: STR, ALR ve TFR aynı biyolojik bağlamda karşılaştırılmıştır.
- İki farklı büyüme koşulu kullanması: Heterotrofik ve ototrofik koşullar ayrı ayrı değerlendirilmiştir.
- Gaz-sıvı transferini merkeze alması: Çalışma, biyolojik performansı reaktör mühendisliğiyle birlikte ele almıştır.
- Görsel ve deneysel kanıt sunması: Reaktör şeması, büyüme eğrileri, biyofilm görseli ve model grafikleri birlikte değerlendirilmiştir.
- Model tabanlı analiz eklemesi: Ototrofik büyüme, gaz geri devri ve besleme stratejileri matematiksel modelle yorumlanmıştır.
- Güvenlik konusunu dikkate alması: H₂/O₂ karışımlarında patlama riski nedeniyle güvenli gaz bileşimi kısıtı açıkça ele alınmıştır.
Çalışmanın sınırlılıkları
- Hakemlik durumu: Çalışma hakem değerlendirmesinden geçmemiş preprinttir.
- Ototrofik sonuçların sınırlı kalması: ALR ve TFR’nin beklenen üstünlüğü ototrofik koşullarda deneysel olarak tam gösterilememiştir.
- Biyofilm ve hücre aglomerasyonu: ALR’de biyokütle ölçümünü ve gaz transferini etkileyebilecek biyofilm oluşumu gözlenmiştir.
- Sıcaklık kontrol sorunu: TFR’de pompa kaynaklı ısı girişi nedeniyle 33–40 °C aralığında sıcaklık tepe değerleri oluşmuştur.
- Gaz bileşimi güvenlik nedeniyle alt-optimaldir: Biyolojik açıdan daha iyi olabilecek oksijen oranları güvenlik nedeniyle kullanılamamıştır.
- Model sonuçları deneysel doğrulama değildir: Gaz besleme stratejileriyle öngörülen %194–%238 artışlar simülasyon temellidir.
- Abiyotik kLa belirsizliği: Abiyotik kLa değerleri gerçek biyolojik kültivasyon koşullarındaki etkili gaz transferini fazla tahmin edebilir.
- Ölçek büyütme doğrudan kanıtlanmamıştır: Çalışma, endüstriyel ölçekli sürekli üretim başarısı göstermemektedir.
Çalışma ne söylüyor, ne söylemiyor?
Çalışma şunu söylüyor: Taylor akış reaktörü, heterotrofik Cupriavidus necator kültivasyonunda yüksek kLa sayesinde oksijen sınırlamasını önleyerek STR ve ALR’den çok daha yüksek biyokütle sağlayabilir. Ayrıca H₂ destekli CO₂ biyodönüşümünde reaktör tasarımı, gaz-sıvı kütle transferi, gaz geri devri ve gaz besleme stratejisi birlikte düşünülmelidir. Model sonuçları, güvenli işletim altında bile uygun bileşim ve akış kontrolüyle ototrofik biyokütle üretiminin artırılabileceğini göstermektedir.
Çalışma şunu söylemiyor: ALR veya TFR’nin her koşulda STR’den daha üstün olduğunu kanıtlamıyor. Ototrofik deneylerde bu üstünlük tam olarak ortaya çıkmamıştır. Çalışma, CO₂’den endüstriyel ölçekte ekonomik ve güvenli üretimin hazır olduğunu da söylememektedir. Ayrıca modelin öngördüğü yüksek iyileşmeler deneysel olarak doğrulanmadan kesin sonuç gibi değerlendirilmemelidir.
Geçmiş, bugün ve gelecek açısından önemi
Geçmişte biyoproseslerde karıştırmalı tank reaktörleri yaygın standarttı. Bu sistemler esnek, iyi tanınan ve kontrol edilebilir yapılardır. Ancak düşük çözünürlüklü gazlarla çalışan süreçlerde mekanik karıştırma tek başına yeterli olmayabilir veya yüksek enerji gerektirebilir. Bu nedenle airlift ve Taylor akış gibi yoğunlaştırılmış sistemler, gaz transferini artırma potansiyeli nedeniyle önem kazanmıştır.
Bugün CO₂’nin değerlendirilmesi, yenilenebilir hidrojenin kullanılması ve fosil kaynak dışı kimyasal üretim rotalarının geliştirilmesi büyük önem taşır. Bu çalışma, bu hedeflerin yalnızca mikroorganizma seçimiyle değil, reaktör mühendisliğiyle de doğrudan bağlantılı olduğunu gösterir. Bakteri CO₂’yi kullanabilir; fakat reaktör ona H₂, CO₂ ve O₂’yi doğru hızda, doğru biçimde ve güvenli sınırlar içinde ulaştıramazsa proses sınırlı kalır.
Gelecekte bu tür çalışmalar, CO₂’den biyopolimer, tek hücre proteini, biyobazlı kimyasallar veya özel metabolitlerin üretimine yönelik daha güvenli ve daha verimli reaktör tasarımlarının geliştirilmesine katkı sağlayabilir. Ancak bunun için biyofilm kontrolü, sıcaklık yönetimi, gaz geri devri, gaz kullanım verimi, enerji tüketimi ve ekonomik fizibilite birlikte optimize edilmelidir.
Çalışmanın Yöntemi ve Bulguları
Çalışmanın deneysel tasarımı
| Başlık | Çalışmada kullanılan yaklaşım |
|---|---|
| Mikroorganizma | Cupriavidus necator H16 (DSM 428) |
| Karşılaştırılan reaktörler | STR, ALR ve TFR |
| Heterotrofik karbon kaynağı | Fruktoz |
| Ototrofik substratlar | H₂, CO₂ ve O₂ |
| Ototrofik gaz bileşimi | 10%:65%:5%:20% CO₂:H₂:O₂:N₂ |
| Ototrofik toplam taze gaz akışı | 140 NmL dk-1 |
| Ototrofik sıcaklık ve pH | 30 °C ve pH 7,0 |
| ALR gaz geri devri | 5 L dk-1 |
| TFR gaz geri devri | 10 L dk-1 |
Reaktör yapı bilgileri
| Reaktör | Temel yapı | Çalışma hacmi | Öne çıkan özellik |
|---|---|---|---|
| STR | Rushton impellerli karıştırmalı tank | 1 L | pH, sıcaklık, DO ve karıştırma kontrolü güçlü klasik sistem |
| ALR | İç döngülü konsantrik airlift | 2,1 L | Düşük kesme kuvveti, gazla dolaşım, mikrogözenekli sparger |
| TFR | 207 kapiler kanallı Taylor akış reaktörü | 19 L | Segmentli gaz-sıvı akış, yüksek temas alanı, kısa difüzyon mesafesi |
Heterotrofik koşulda ana sonuçlar
| Reaktör | İşletim bilgisi | kLa | Maksimum biyokütle | Özgül büyüme hızı | Yorum |
|---|---|---|---|---|---|
| STR | 800 rpm, 1,8 L dk-1 hava | 385 h-1 | 5,2 g L-1 | 0,17 h-1 | Yaklaşık 50 saatten sonra oksijen sınırlaması büyümeyi durdurdu. |
| ALR | 2 L dk-1 hava | 336 h-1 | 2,2 g L-1 | 0,16 h-1 | Biyofilm ve hücre aglomerasyonu ölçümü ve performansı etkilemiş olabilir. |
| TFR | 40 L dk-1 hava, 35 L dk-1 sıvı geri devri | 1300 h-1 | 26,4 g L-1 | 0,16 h-1 | Oksijen sınırlaması görülmeden en yüksek biyokütleye ulaştı. |
Bu sonuçlar, TFR’nin heterotrofik büyümede çok güçlü bir gaz-sıvı transfer avantajı sağladığını göstermektedir. Ancak büyüme hızlarının başlangıçta benzer olması, farkın bakterinin temel büyüme kapasitesinden çok reaktörün yüksek hücre yoğunluğunda oksijen sağlamaya devam edebilmesiyle ilişkili olduğunu düşündürür.
PHB bulguları
| Gözlem | Çalışmadaki bulgu | Anlamı |
|---|---|---|
| Maksimum PHB içeriği | %47,8 | Azot sınırlaması sırasında karbonun depolama polimerine yöneldiğini gösterir. |
| Son PHB içeriği | %37,4 | Besin darbeleri sonrasında metabolizma büyüme ve depolama arasında değişmiştir. |
| Amonyum besleme darbeleri | 58–140 saat arasında uygulanmıştır | Azot sınırlaması geçici olarak azaltılmış ve biyokütle oluşumu desteklenmiştir. |
Ototrofik koşulda ana sonuçlar
| Reaktör | kLa | Maksimum biyokütle | Başlıca sınırlayıcı faktör |
|---|---|---|---|
| STR | 236 h-1 | 0,6 gCDW L-1 | Daha düşük kLa’ya rağmen ALR ve TFR ile aynı mertebede sonuç verdi. |
| ALR | 519 h-1 | 0,68 gCDW L-1 | Biyofilm, hücre aglomerasyonu ve sparger gözeneklerinin kısmi tıkanması. |
| TFR | 536 h-1 | 0,71 gCDW L-1 | Sıcaklık kontrol zorluğu, gaz çözünürlüğünün azalması ve güvenli fakat sınırlayıcı gaz bileşimi. |
Ototrofik koşullarda ALR ve TFR’nin yüksek kLa değerleri beklenen biyolojik üstünlüğe dönüşmemiştir. Bu sonuç, gaz-sıvı kütle transferinin önemli olduğunu fakat tek başına yeterli olmadığını gösterir. Reaktörün biyofilm üretme eğilimi, ısı yönetimi ve gaz geri devir-taze gaz oranı da aynı derecede önemlidir.
Modelde kullanılan temel denklemler
| Denklem | Görevi | Yorum |
|---|---|---|
| \(\mu = \mu_{max}\frac{M_{O_2}}{K_{O_2}+M_{O_2}+\frac{M_{O_2}^{2}}{K_I}}\) | Oksijene bağlı özgül büyüme hızını hesaplar. | Oksijen azsa büyüme sınırlanır; fazla olursa inhibisyon etkisi oluşabilir. |
| \(\frac{dx}{dt}=\mu x-k_d x\) | Biyokütlenin zamanla değişimini verir. | Büyüme ve biyokütle kaybı birlikte değerlendirilir. |
| \(\frac{dM_{O_2}}{dt}=K_La(M_{O_2}^{sat}-M_{O_2})-(\frac{\mu}{Y_{x/O_2}}+m_{O_2})x\) | Çözünmüş oksijen dengesini verir. | Gazdan sıvıya oksijen girişi ile hücresel oksijen tüketimini karşılaştırır. |
| \(X_{H_2}(t)\) | Hidrojen dönüşümünü hesaplar. | Verilen hidrojenin purge ile kaybolmadan ne kadarının sistemde değerlendirildiğini gösterir. |
Gaz besleme stratejisi model sonuçları
| Strateji | Maksimum biyokütle tahmini | Deneysel ALR’ye göre artış | H₂ dönüşümü | Yorum |
|---|---|---|---|---|
| Bileşim ayarlı | 2,0 g L-1 | %194 | Yaklaşık %70 | Taze gaz bileşimi değiştirilerek güvenli O₂ çıkışı korunmaya çalışılmıştır. |
| Akış ayarlı | 2,1 g L-1 | %208 | Yaklaşık %16 | Biyokütle artışı sağlar fakat hidrojen kaybı yüksek kalır. |
| Kombine bileşim + akış ayarlı | 2,3 g L-1 | %238 | Yaklaşık %72 | En yüksek biyokütle ve en iyi H₂ kullanımına yakın sonuç vermiştir. |
Bu sonuçlar, ototrofik CO₂ biyodönüşümünde reaktör seçiminin yanında gaz kontrol stratejisinin de temel belirleyici olduğunu gösterir. Ancak bu tablo model tahminidir; deneysel uygulamada sıcaklık kontrolü, biyofilm, gerçek kLa, köpüklenme, gaz güvenliği ve ölçek büyütme maliyeti ayrıca değerlendirilmelidir.
Genel bulguların kısa yorumu
- Heterotrofik büyümede TFR’nin yüksek kLa değeri doğrudan yüksek biyokütleye yansımıştır.
- Ototrofik büyümede yüksek kLa tek başına yeterli olmamış; biyofilm, sıcaklık ve gaz besleme sınırlamaları performansı baskılamıştır.
- ALR düşük kesme kuvveti ve basit tasarım avantajına sahip olsa da, bu çalışmada hücre aglomerasyonu ve biyofilm nedeniyle ölçüm ve transfer sorunları yaşamıştır.
- TFR gaz transferi açısından güçlüdür; fakat 19 L’lik sistemde pompa kaynaklı ısı kontrolü ototrofik büyümede kritik bir sınırlayıcı haline gelmiştir.
- Modelleme, taze gaz/geri devir oranı ve gaz bileşimi ayarının biyokütle ve H₂ dönüşümü için belirleyici olduğunu göstermiştir.
- H₂/O₂ güvenliği, biyolojik performans kadar önemli bir tasarım kısıtıdır.
Kaynak ve Yöntem Notu
Bu makale, Pedro Cruz, Paz Torres-Praderio, Felipe Scott ve Alberto Vergara-Fernandez tarafından hazırlanan “Enhancing H2-Driven CO2 bioconversion through Airlift and Taylor Flow bioreactors: experimental comparison and model-based analysis” başlıklı çalışmaya dayanarak hazırlanmıştır. Çalışma, SSRN üzerinde yer alan bir preprint araştırma makalesidir ve metinde açıkça “This preprint research paper has not been peer reviewed” ifadesi bulunduğu için hakem değerlendirmesinden geçmemiştir.
Bu içerik, çalışmadaki deneysel reaktör karşılaştırmaları, Cupriavidus necator H16 kültivasyonları, heterotrofik ve ototrofik büyüme sonuçları, gaz-sıvı kütle transferi değerlendirmeleri, model denklemleri, gaz geri devir analizi ve gaz besleme stratejisi simülasyonları temel alınarak hazırlanmıştır. Çalışmada olmayan ticari ölçek başarısı, kesin endüstriyel uygulanabilirlik, güvenlik garantisi veya tüm CO₂ biyodönüşüm sistemlerine genellenebilirlik iddiası eklenmemiştir.
Çalışmanın deneysel kısmı belirli STR, ALR ve TFR düzenekleriyle sınırlıdır. Heterotrofik koşullarda TFR yüksek biyokütle üretmiştir; ancak ototrofik koşullarda ALR ve TFR’nin beklenen üstünlüğü tam olarak ortaya çıkmamıştır. Bu durum, biyofilm oluşumu, hücre aglomerasyonu, sıcaklık kontrol zorluğu, güvenli ama biyolojik olarak sınırlayıcı gaz bileşimi ve yüksek gaz geri devir/taze gaz oranı gibi faktörlerle açıklanmıştır.
Matematiksel modelleme bölümü, deneysel bulguların yorumlanmasına ve alternatif gaz besleme stratejilerinin teorik olarak değerlendirilmesine yöneliktir. Modelin öngördüğü biyokütle artışları ve H₂ dönüşümü değerleri, doğrudan deneysel doğrulama olarak değil, belirli varsayımlar altında elde edilmiş simülasyon sonuçları olarak okunmalıdır. Özellikle abiyotik kLa değerlerinin gerçek biyolojik kültivasyon koşullarındaki etkili gaz transferini fazla tahmin edebileceği çalışmada açıkça tartışılmıştır.
Preprint niteliği nedeniyle sonuçlar dikkatli değerlendirilmelidir. Çalışma, H₂ destekli CO₂ biyodönüşümü için ALR ve TFR gibi yoğunlaştırılmış reaktör tasarımlarının potansiyelini göstermekte; ancak ölçek büyütme için biyolojik performans, gaz-sıvı transfer verimi, enerji ihtiyacı, güvenlik ve tekno-ekonomik fizibilitenin birlikte optimize edilmesi gerektiğini ortaya koymaktadır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir