

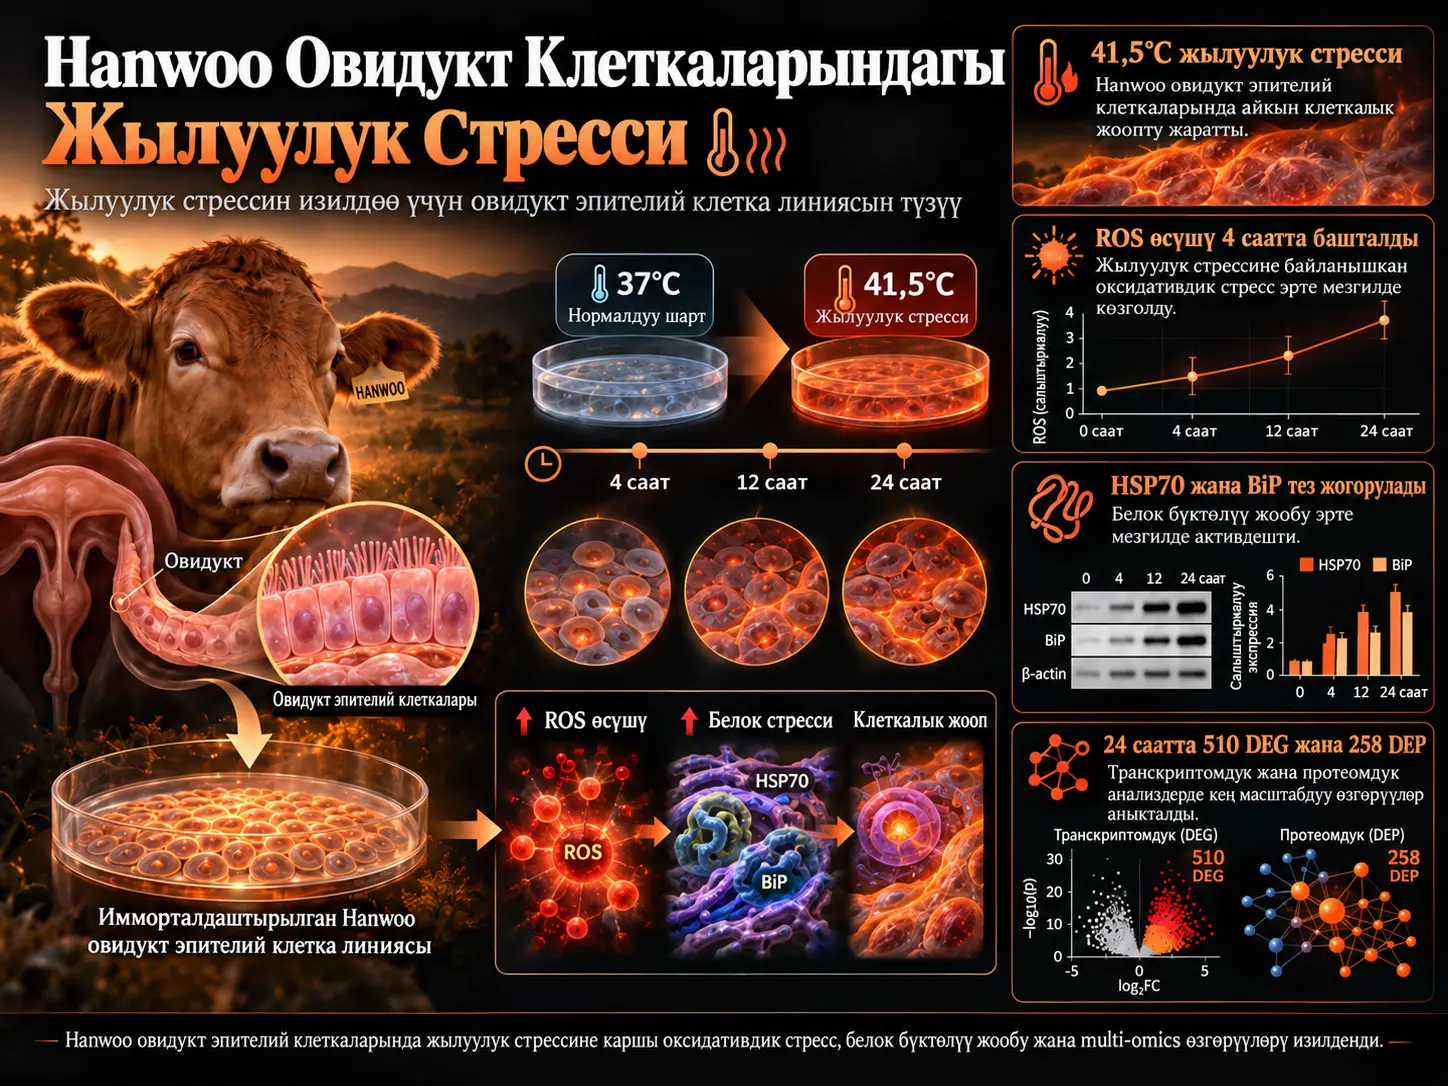
Жылуулук стресси бодо малдын жалпы метаболизмине гана эмес, көбөйүүнүн алгачкы баскычтарында иштеген клеткалык чөйрөгө да таасир этиши мүмкүн. Бул изилдөөдө окумуштуулар Кореянын жергиликтүү Hanwoo бодо малынын овидуктунан — башкача айтканда, энелик без менен жатындын ортосундагы көбөйүү каналынан — эпителий клеткаларын бөлүп алып, аларды лабораторияда узак убакыт колдонууга боло турган имморталдаштырылган клетка линиясына айландырышкан.
Баштапкы овидукт эпителий клеткаларына piggyBac транспозон системасы аркылуу SV40 large T antigen (SV40T) киргизилип, пуромицин менен тандоо жүргүзүлгөн жана эпителий клеткасынын маркери CDH1/E-cadherin оң болгон клеткалар FACS аркылуу байытылган. Алынган клетка популяциясында CDH1 оңдугу %98,2 деңгээлинде билдирилген.
Андан кийин клеткалар 41,5 °Cде 4, 12 же 24 саат жылуулук стрессине дуушар кылынып, ага туура келген 37 °C калыбына келүү мезгилдери изилденген. Клетка ичиндеги реактивдүү кычкылтек түрлөрү (ROS) болгону 4 сааттын ичинде көбөйгөнү менен, SOD1, CAT жана GPX1 сыяктуу антиоксидант гендердин айкын жогорулашы кечирээк пайда болуп, 24 сааттык стресс мезгилинде эң күчтүү деңгээлге жеткен.
HSP70 жана эндоплазмалык ретикулумдун шаперону BiP/GRP78 болсо эртерээк жооп берген. HSP70 4 сааттык жылуулук стрессинде болжол менен 10,85 эсе, 12 саатта болжол менен 17,24 эсе көбөйгөн. Бул белоктордун калыбына келүү мезгилинде да жогору бойдон калышы температура нормалдуу абалга кайткандан кийин клеткалык стресс жообу дароо токтобой турганын көрсөтөт.
24 сааттык жылуулук стресси транскриптомикалык жана протеомикалык талдоо үчүн тандалып, 510 дифференциалдуу экспрессияланган ген жана 258 дифференциалдуу экспрессияланган белок аныкталган. Байытуу талдоолору кычкылдануу стресси, белоктун бүктөлүшү, ER стресси, иммундук жооп, клеткалык картаюу, азык жетишсиздигине жооп, метаболизм жана клеткадан тышкаркы матрикс менен байланышкан процесстерде өзгөрүүлөр болгонун көрсөткөн.
Ошол эле учурда изилдөө чыныгы уруктануу же кош бойлуулуктун ийгилигин түздөн-түз өлчөбөйт. Натыйжалар жылуулук стресси Hanwoo овидуктунун эпителий клеткаларынын молекулалык функцияларын өзгөртөрүн көрсөткөн лабораториялык моделге тиешелүү.
Овидукттун эпителий клеткалары көбөйүү үчүн эмне себептен маанилүү?
Овидукт энелик без менен жатындын ортосундагы жөнөкөй ташуучу түтүк эмес. Анын ички бетиндеги эпителий клеткалары сперматозоид, ооцит жана алгачкы эмбрион менен физикалык да, химиялык да өз ара аракеттенет.
Бул клеткалар түзгөн микрочөйрө сперматозоиддин кыймылдуулугу жана капацитациясы, кумулус-ооцит комплексинин ташылышы, алгачкы эмбриондун жылышы, азык менен камсыз кылуу, редокс тең салмактуулугу жана иммундук жөнгө салуу сыяктуу процесстерге салым кошушу мүмкүн.
OECлер ошондой эле SOD, GPX жана CAT сыяктуу антиоксиданттык коргонуу системаларын экспрессиялап, ооцит менен алгачкы эмбриондун ашыкча ROS таасирине кабылышын чектөөгө жардам бере алат.
Ошондуктан овидукт эпителийинин жогорку температурада кандай өзгөрөрүн түшүнүү бодо малдын көбөйүү биологиясында жылуулук стрессинин алгачкы механизмдерин изилдөө үчүн маанилүү.
Hanwoo Овидукт Клетка Линиясы Кантип Түзүлдү?
Жаңы Hanwoo овидукт ткандары союучу жайдан алынып, муз үстүндө лабораторияга жеткирилген. Ампулла аймагындагы ички эпителий катмары физикалык жана ферменттик ыкмалар менен ажыратылган.
Баштапкы клеткалар жогорку глюкозалуу DMEM, %10 FBS жана антибиотик-антимикотик камтыган өстүрүү чөйрөсүндө көбөйтүлгөн.
Биринчи пассаждан кийин клеткаларга piggyBac транспозон системасы аркылуу SV40T гени киргизилген. SV40T интеграциясы PCR менен ырасталып, андан соң пуромицин колдонулуп туруктуу клеткалар тандалган.
Эпителий клеткасынын өздүгүн аныктоо үчүн CDH1/E-cadherin маркери колдонулган. CDH1 оң клеткалар FACS менен бөлүнүп, имморталдаштырылган клетка линиясынын бир тектүүлүгү жогорулатылган.
Клеткалардын passage 23-ке чейин активдүү көбөйүшү бул линияны кайталануучу жылуулук стресси тажрыйбаларында колдонууга боло турган туруктуу in vitro модель экенин колдойт.
Жылуулук Стрессине Биринчи Жооп ROSпу же Антиоксидант Гендерби?
Изилдөөнүн убакыттык катары бул эки жооп бир учурда башталбаганын көрсөтөт.
41,5 °Cде 4 сааттык жылуулук стрессинен кийин клетка ичинде DCF флуоресценциясы көбөйүп, ROS топтолушу айкын болгон. Ошого карабастан, ошол эле убакыт чекитинде SOD1, CAT жана GPX1 гендери олуттуу жогорулаган эмес.
12 сааттык стресс мезгилинде антиоксиданттык жооп пайда болгон:
| Ген | 12 саат жылуулук стресси | 24 саат жылуулук стресси |
|---|---|---|
| SOD1 | 1,40 ± 0,07 эсе | 1,71 ± 0,03 эсе |
| CAT | 1,50 ± 0,06 эсе | 1,78 ± 0,06 эсе |
| GPX1 | 1,49 ± 0,02 эсе | 2,10 ± 0,09 эсе |
Бул убакыттык ырааттуулук клетка ичиндеги кычкылдануу жүгүнүн өсүшү өлчөнө турган антиоксидант ген жообунан мурда пайда болушу мүмкүн экенин көрсөтөт.
Калыбына келүү мезгилинде SOD1 жана CAT негизинен баштапкы деңгээлге кайтса, GPX1 айрым шарттарда жогору бойдон калган. Бул ар башка антиоксидант компоненттердин калыбына келүү кинетикасы бирдей эмес экенин көрсөтөт.
HSP70 жана BiP Эмне Үчүн Мынчалык Тез Жогорулады?
Жогорку температура белоктордун табигый үч өлчөмдүү түзүлүшүн бузуп, туура эмес бүктөлгөн белоктордун жүгүн көбөйтүшү мүмкүн. Мындай учурда клеткалар шаперон деп аталган белокторду активдештирип, белоктордун кайра бүктөлүшүн жана агрегациянын чектелишин колдойт.
Бул изилдөөдө HSP70 жообу антиоксидант гендердин айкын жогорулашынан эртерээк пайда болгон.
| Жылуулук стрессинин узактыгы | HSP70 көбөйүшү | BiP көбөйүшү |
|---|---|---|
| 4 саат | 10,85 ± 0,83 эсе | 2,46 ± 0,08 эсе |
| 12 саат | 17,24 ± 0,52 эсе | 2,19 ± 0,21 эсе |
| 24 саат | 6,24 ± 0,11 эсе | 2,56 ± 0,07 эсе |
BiPнин 4 сааттык жылуулук стрессинен кийинки калыбына келүү мезгилинде болжол менен 4,31 эсе деңгээлге чыгышы өзгөчө көңүл бурууга татыктуу. Температура кайра 37 °Cге түшсө да, белок гомеостазын калыбына келтирүү улана бериши мүмкүн.
Бул натыйжалар клеткалар кычкылдануу стрессине гана эмес, цитоплазма жана эндоплазмалык ретикулум деңгээлиндеги белок бүктөлүү көйгөйлөрүнө да жооп берерин көрсөтөт.
Эмне Үчүн 24 Сааттык Жылуулук Стресси Multi-Omics Талдоосу Үчүн Тандалды?
24 сааттык мезгилде SOD1, CAT жана GPX1 антиоксидант гендеринин күчтүү жогорулашы, ошондой эле HSP70 жана BiPнин дагы эле айкын деңгээлде болушу изилдөөчүлөрдүн бул убакыт чекитин кеңири молекулалык талдоо үчүн тандоосуна алып келген.
24 сааттык жылуулук стресси менен контролду салыштырганда:
| Omics катмары | Жалпы өзгөргөн | Жогору жөнгө салынган | Төмөн жөнгө салынган |
|---|---|---|---|
| DEG | 510 | 276 | 234 |
| DEP | 258 | 88 | 170 |
DEG аныктамасы үчүн ≥|2| fold-change, DEP үчүн ≥|1,5| fold-change чеги колдонулган.
Калыбына келүү тобунда да көптөгөн ген жана белок өзгөрүүлөрүнүн сакталышы жылуулук стрессинин молекулалык таасири температурага кабылуу убактысы менен гана чектелбесин көрсөтөт.
Транскриптом жана Протеом Бирдей Нерсени Көрсөттүбү?
Толук эмес. mRNA жана белок деңгээлинде шайкеш өзгөрүү көрсөткөн болгону 28 жалпы ген/белок аныкталган.
Алардын тогузу түздөн-түз жылуулук стресси/контроль салыштыруусунда, 19-у болсо калыбына келүү/контроль салыштыруусунда табылган.
Мындай чектелүү дал келүү биологиялык жактан мүмкүн; анткени mRNAнын белокко которулушу, белоктун жарым ажыроо мөөнөтү, деградация, трансляция ылдамдыгы жана пост-трансляциялык көзөмөл сыяктуу процесстер эки молекулалык катмандын ортосунда айырма жаратышы мүмкүн.
Бирок изилдөө түзүлүшүндөгү маанилүү чектөөнү да эске алуу керек: транскриптом жана протеом талдоосуна чейин үч биологиялык кайталоо бириктирилип, бир pooled үлгү түзүлгөн.
Ошондуктан кеңири DEG/DEP маалымат топтомдору күчтүү ачылыш булагы болгону менен, классикалык мааниде үч көз карандысыз omics репликациясынан алынган эмес. Изилдөөчүлөр бул чектөөнү моюнга алып, тандалган натыйжаларды көз карандысыз биологиялык кайталоолор менен qRT-PCR жана Western blot колдонуп ырасташкан.
Кайсы Клеткалык Жолдор Таасирленди?
GO, KEGG жана Reactome талдоолору жылуулук стресси жана калыбына келүү мезгилдеринде бири-бири менен байланышкан көптөгөн процесстерде өзгөрүүлөр болгонун көрсөткөн.
Жогору жөнгө салынган топтордо өзгөчө белок бүктөлүшү, HSP байланышы, кычкылдануу стресси, эндоплазмалык ретикулум стресси жана белоктун кайра бүктөлүшү айырмаланган.
“Response to starvation” термининин да күчтүү байытылышы клетканын энергия жана азык метаболизминде стресс шарттарына ылайыкташкан өзгөрүүлөрдү иштеп чыкканын болжолдоого негиз берет.
Аминокислота, липид, углевод жана нуклеотид метаболизми менен байланышкан гендерде жана белоктордо өзгөрүүлөр байкалган; айрым SLC ташуучуларына байланышкан молекула ташуу функциялары да таасирленген.
Иммундук система менен байланышкан интерлейкин жана цитокин жолдору, ошондой эле клеткадан тышкаркы матрикстин уюшулушу да өзгөргөн. Бул табылгалар OEC сперматозоид, ооцит жана алгачкы эмбрион үчүн түзгөн микрочөйрө жылуулук стрессинен таасирлениши мүмкүн экенин көрсөтөт.
Бирок жолдордун байытылышы чыныгы тукумдуулуктун төмөндөшүн түздөн-түз өлчөө эмес.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Клетка булагы
Hanwoo ургаачы бодо малынан алынган жаңы овидукт тканынын ампулла аймагынан баштапкы эпителий клеткалары бөлүнүп алынган.
Имморталдаштыруу
SV40 large T antigen piggyBac транспозон системасы аркылуу клеткаларга киргизилген. Туруктуу интеграция PCR менен ырасталып, пуромицин тандоосу жүргүзүлгөн.
Эпителийди мүнөздөө
CDH1/E-cadherin иммундук-флуоресценттик боёо жана FACS менен бааланган. Изилдөөнүн кыскача мазмунунда клетка линиясы үчүн %98,2 CDH1 оңдугу билдирилет.
Жылуулук стресси модели
Контроль клеткалары 37 °Cде кармалып, тажрыйба клеткалары 41,5 °Cде 4, 12 же 24 саат жылуулук стрессине дуушар кылынган. Андан кийин клеткалар 37 °Cде тиешелүү калыбына келүү мезгилдерине өткөрүлгөн.
ROS
CM-H2-DCFDA флуоресценттик зонду колдонулуп, 4 сааттык жылуулук стрессинен кийин клетка ичиндеги ROS көбөйүшү байкалган.
qRT-PCR
SOD1, CAT жана GPX1 антиоксидант гендери GAPDHге нормалдаштырылып, 2−ΔΔCt ыкмасы менен бааланган. Multi-omics натыйжаларын ырастоо үчүн BAG3, HSPB1, FOXO3 жана CHAC1 гендери да өзүнчө текшерилген.
Western blot
HSP70, BiP/HSPA5, BAG3, COL1A1 жана ACTB белоктору бааланган.
Транскриптомика
Affymetrix GeneChip Bovine Gene 1.0 ST Array колдонулган. Үч биологиялык RNA үлгүсү талдоодон мурда бириктирилген.
Протеомика
Белоктор S-Trap менен даярдалып, TMT10 менен белгиленип, Q Exactive HF-X LC/MS системасы аркылуу талданган. Proteome Discoverer 3.0 жана CHIMERYS колдонулуп, кеминде эки уникалдуу пептид жана %1 FDR шарты колдонулган.
Функционалдык талдоо
GO талдоосу clusterProfiler, KEGG жана Reactome талдоосу Metascape менен жүргүзүлгөн. Белок-белок өз ара аракеттенүү тармактары STRING колдонуу менен түзүлгөн.
Изилдөө колдогон жыйынтыктар
Изилдөө Hanwoo тектүү туруктуу имморталдаштырылган OEC линиясын түзүүгө болорун; жылуулук стресси бул клеткаларда эрте ROS көбөйүшүн, күчтүү HSP70/BiP жообун, кечиккен антиоксидант ген активдешүүсүн жана кеңири транскриптомикалык/протеомикалык өзгөрүүлөрдү жаратарын колдойт.
Изилдөө колдобогон жыйынтыктар
Бул тажрыйба тирүү Hanwoo бодо малында кош бойлуулуктун көрсөткүчү канчалык төмөндөгөнүн өлчөгөн эмес. Жаңы клетка линиясында эмбриондун өнүгүшү же уруктануунун ийгилиги түздөн-түз текшерилген эмес. Аныкталган байытылган жолдордун ар бири үчүн себептик молекулалык механизм өзүнчө тажрыйбалар менен ырасталган эмес. Ошондой эле имморталдаштырылган клеткалар баштапкы овидукт клеткаларынын бардык биологиялык жүрүм-турумун толук чагылдырары көрсөтүлгөн эмес.
SV40T чектөөсү
SV40T клетка пролиферациясын сактоо үчүн колдонулган, бирок p53 сыяктуу клеткалык көзөмөл механизмдери менен өз ара аракеттениши мүмкүн. Авторлор ошондуктан иштелип чыккан линия p53 модуляциясын изилдөө үчүн ылайыктуу эмес экенин өзгөчө белгилешкен.
Multi-omics чектөөсү
Microarray жана LC/MS талдоолорунда үч биологиялык кайталоо бир pooled үлгүгө айландырылган. Бул ыкма биологиялык вариацияны түздөн-түз статистикалык баалоону чектейт. Өкүл гендер менен белоктордун n=3 ырастоолор аркылуу өзүнчө текшерилиши бул тобокелдикти азайтат, бирок бүткүл DEG/DEP тизмесин көз карандысыз ырастабайт.
Түрлөр аралык аннотация чектөөсү
GO жана жол талдоолорунда адамдын референстик маалымат базалары колдонулган. Бодо малдын гомологдору аркылуу жүргүзүлгөн бул функционалдык аннотация кеңири биологиялык чечмелөө берет, бирок адам менен бодо малдын биологиясы ар бир ген-жол байланышында толугу менен бирдей деп эсептелбеши керек.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө:Development and characterization of Hanwoo oviduct epithelial cell line for heat stress study
Авторлор: Ismail Shaleh; Sung Woo Kim; Tae Sub Park; Joonghoon Park.
Жооптуу автор: Joonghoon Park.
Мекемелер: Seoul National University; IPB University; Hanwoo Research Institute, National Institute of Animal Science, Rural Development Administration.
Журнал: Animal Bioscience.
DOI: 10.5713/ab.250962
Учурдагы жарыялоо абалы: PubMed жазууларына ылайык 1 Сентябрь 2026 күнүнө карата ahead-of-print.
Каржылоо: Rural Development Administration, Republic of Korea — Cooperative Research Program for Agriculture Science and Technology Development, долбоор RS-2024-00399381. Ismail Shalehтин докторлук иши ошондой эле KOICA стипендиялык колдоосун алган.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышын билдиришкен эмес.
Маалыматка жетүү: Изилдөө маалыматтары негиздүү суроо-талап боюнча жооптуу автордон алынышы мүмкүн экени көрсөтүлгөн.
Этикалык жактыруу: Макалада “Not applicable” деп көрсөтүлгөн. Овидукт үлгүлөрү союучу жайдан алынган.
Жасалма интеллектти колдонуу жөнүндө билдирүү: Авторлор ыкмалар бөлүмүнүн англисче жазылышынын натыйжалуулугун жакшыртуу үчүн OpenAI ChatGPT колдонгонун, андан кийин мазмунду карап чыгып түзөтүшкөнүн жана жарыя үчүн жоопкерчиликти өзүнө алышканын билдиришкен.
Негизги чектөөлөр: Модель SV40T менен имморталдаштырылган клеткаларга негизделет; өзгөчө p53 модуляциясын изилдөө үчүн ылайыктуу эмес. Транскриптомикалык жана протеомикалык үлгүлөр биологиялык кайталоолор боюнча өзүнчө талданбастан, pooling аркылуу бир үлгүгө айландырылган. GO/жол аннотацияларында адамдын референстик маалымат базалары колдонулган. Уруктануу, эмбриондун өнүгүшү жана тирүү жаныбарлардын көбөйүү көрсөткүчтөрү жаңы клетка линиясы менен түздөн-түз текшерилген эмес.
Verianla баяндоо принциби: Бул мазмун булак макаланын толук тексттик котормосу эмес. Клетка линиясын иштеп чыгуу ыкмасы, температура жана убакыт шарттары, биомаркер натыйжалары, DEG/DEP сандары, multi-omics ыкмасы жана методологиялык чектөөлөр булакка берилген бойдон сакталып, өз алдынча илимий-окутуучу түзүлүштө кайра баяндалган. Түпнуска микроскопия сүрөттөрү, Western blotтор жана omics тармактары үчүн булак изилдөөнү DOI аркылуу кароо керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген