


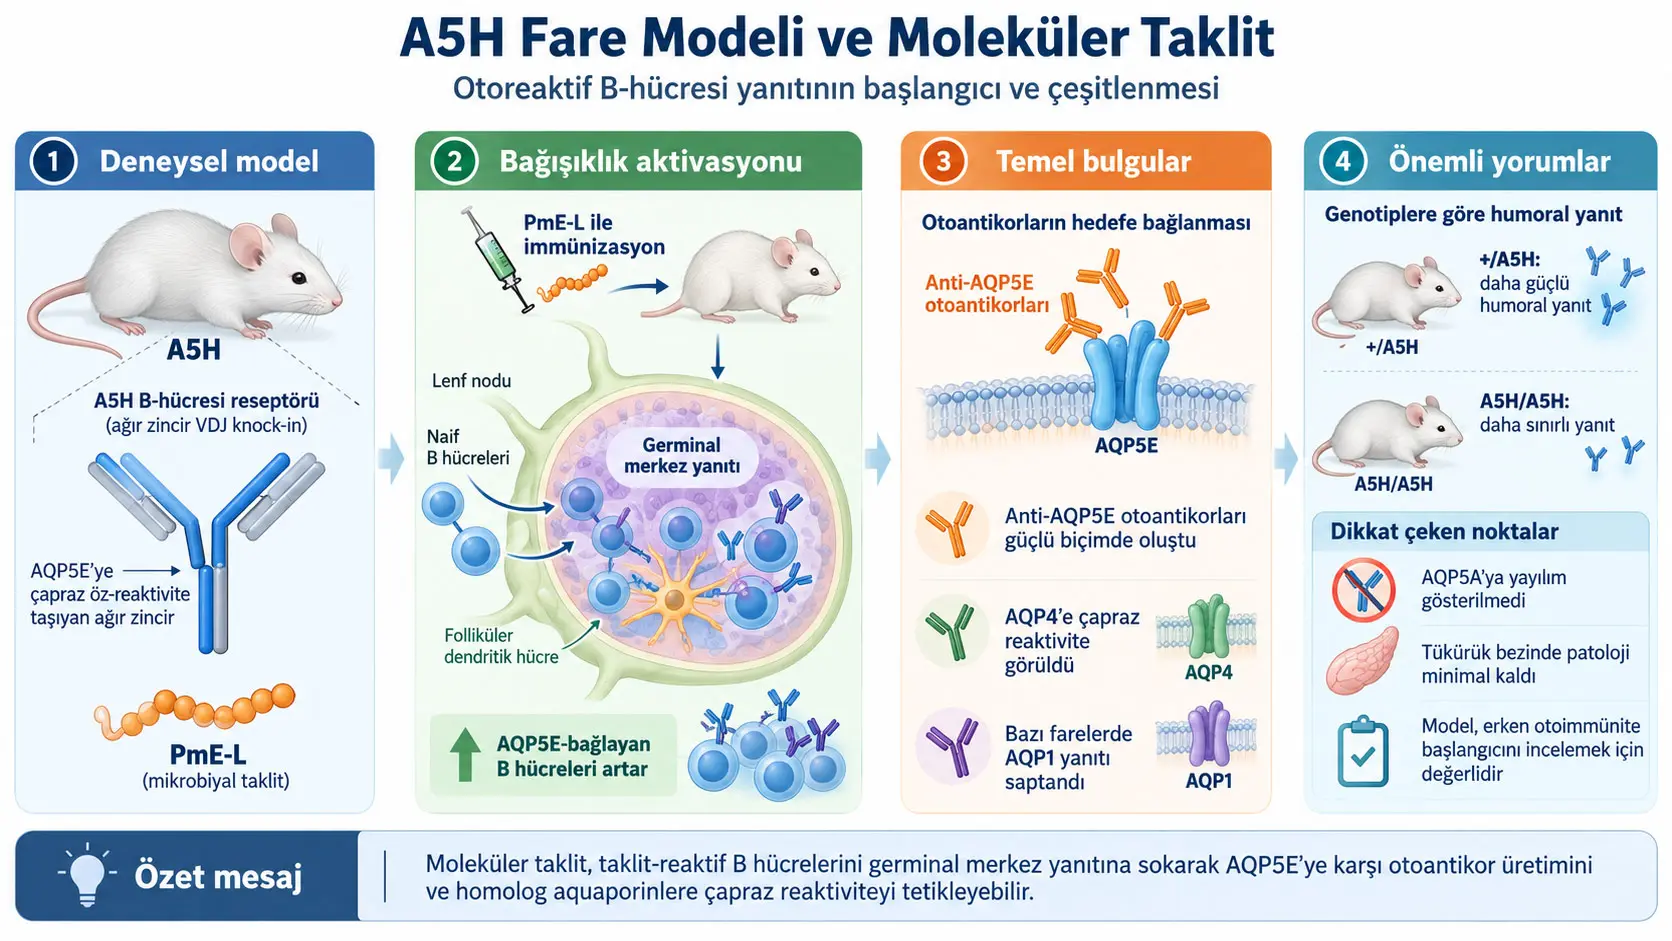
A5H fare modeli, aquaporin-5'in (AQP5) “E” epitopuna bağlanabilen antikordan türetilmiş ağır zincir VDJ dizisinin fare immünoglobulin ağır zincir lokusuna yerleştirildiği bir B-hücresi reseptörü (B-cell receptor, BCR) knock-in modelidir. Model, B hücrelerinin mikrobiyal bir taklit peptidi olan PmE-L'yi tercihli olarak tanımasına rağmen AQP5'e karşı gizli çapraz öz-reaktivite taşıyabildiği erken otoimmünite sürecini incelemek için geliştirilmiştir. Çalışmanın temel bulgusu, PmE-L ile immünizasyon sonrasında bu taklit-reaktif B hücrelerinin germinal merkez yanıtına katılarak güçlü anti-AQP5E otoantikorları üretmesi ve antikor yanıtının homolog aquaporinler AQP4 ve bazı farelerde AQP1'e kadar genişleyebilmesidir. Bununla birlikte başka bir AQP5 epitopu olan AQP5A'ya intramoleküler epitop yayılması görülmemiş; otoantikorların tükürük bezi dokusuna birikimi ve Sjögren-benzeri bez patolojisi minimal kalmıştır.
Moleküler taklit (molecular mimicry), mikrobiyal bir antijen ile vücudun kendi antijeninin yapısal veya dizisel benzerliği nedeniyle aynı immün yanıtın her ikisini de tanıyabilmesidir. Bu çalışmada bakteriyel kökenli PmE-L/PmE bölgesi ile AQP5E arasındaki benzerlik, çapraz reaktif B hücrelerinin nasıl oluşup aktive olabildiğini incelemek için kullanılmıştır. PmE ile AQP5E yalnız bir amino asit bakımından farklıdır; çalışmada kullanılan Clone 44 kökenli ağır zincir PmE'ye AQP5E'den biraz daha güçlü reaktivite göstermektedir.
A5H farelerinde toplam B-hücresi gelişimi büyük ölçüde korunmuştur. Kemik iliği, lenf düğümü ve dalaktaki toplam, olgunlaşmamış ve olgun B-hücresi sayılarında büyük bir merkezi delesyon veya gelişimsel duraklama saptanmamıştır. Buna karşılık geçişsel B-hücresi kompartımanında T1 hücrelerinin artması, T3 hücrelerinin azalması ve dalak ile lenf düğümünde IgD+IgMlo fenotipli anergiyle ilişkili olgun B hücrelerinin azalması, A5H ağır zincirini taşıyan taklit-reaktif hücrelerin periferde daha geniş bir havuz olarak kalabildiğini göstermiştir.
Dinlenim koşulunda A5H farelerinde mikrobiyal PmE-L'ye karşı antikorlar zaten saptanabilmiş, fakat ELISA ile anti-AQP5E otoantikorları saptanmamıştır. PmE-L ile tek immünizasyonun ardından +/A5H farelerinin tamamı 13. güne kadar anti-AQP5E otoantikorları üretmiş ve yanıt 21. günde daha da artmıştır. Aynı deneyde yabani tip farelerin yalnız birinde anti-AQP5E yanıtı görülmüştür. Lenf düğümündeki toplam B-hücresi sayısı belirgin biçimde değişmezken, germinal merkez B hücreleri ve germinal merkez içindeki AQP5E-bağlayan B hücreleri +/A5H farelerinde zenginleşmiştir.
Çalışmanın önemli sonuçlarından biri heterozigot +/A5H farelerin homozigot A5H/A5H farelerden daha güçlü otoantikor yanıtı geliştirmesidir. +/A5H farelerde anti-AQP5E, anti-AQP4 ve streptavidine karşı antikor yanıtları daha güçlüdür. Yazarlar bunun, A5H ağır zincir aleli ile endojen ağır zincir alelinin aynı B-hücresi popülasyonunda birlikte ifade edilebildiği allelic inclusion olasılığıyla ilişkili olabileceğini tartışmaktadır. Ancak çalışma allelic inclusion mekanizmasını doğrudan repertuvar dizilemesiyle göstermemiştir; dolayısıyla bu açıklama güçlü bir biyolojik yorumdur fakat doğrudan kanıtlanmış nedensel mekanizma değildir.
AQP5E'ye karşı gelişen yanıt yalnız AQP5 ile sınırlı kalmamıştır. Serum IgG'si homolog AQP4'e çapraz bağlanmış ve +/A5H farelerde AQP4 yanıtı A5H/A5H farelerden daha güçlü olmuştur. AQP1'e düşük düzeyli bağlanma bazı hayvanlarda görülmüş; PmE-L immünizasyonundan sonra iki dişi farede yüksek anti-AQP1 düzeyi saptanmıştır. Buna karşılık aynı AQP5 proteininin ayrı “A” epitopuna karşı anti-AQP5A antikoru hiçbir farede gösterilememiştir. Bu ayrım, homolog proteinler arası çapraz reaktivitenin gelişebilmesine rağmen aynı proteinin farklı epitoplarına doğru intramoleküler yayılımın bu deneyde oluşmadığını göstermektedir.
Yüksek anti-AQP5E antikor düzeylerine rağmen histolojik sonuçlar sınırlıdır. Tükürük bezlerinde lenfosit infiltrasyonu minimal kalmış; yalnız bir farede focus score ≥1 görülmüş ve IgG doku birikimi yalnız birkaç farede saptanmıştır. Dolayısıyla çalışma “AQP5 otoantikorları tek başına Sjögren hastalığı oluşturur” sonucunu desteklememektedir. Model, esas olarak moleküler taklidin otoreaktif B-hücresi yanıtını nasıl başlatıp çeşitlendirdiğini inceleyen erken otoimmünite modelidir.
Araştırmanın temel problemi nedir?
Bağışıklık sistemi gelişim sırasında öz-antijenleri tanıyabilen B hücreleri oluşturabilir. Normal koşullarda klonal delesyon, reseptör düzenleme, anergi ve inhibitör reseptör sinyallemesi gibi tolerans mekanizmaları bu hücrelerin zararlı otoantikor üretmesini engeller. Bununla birlikte mikrobiyal bir antijen vücudun kendi proteinlerinden bir bölgeye yeterince benziyorsa, yabancı antijene karşı başlayan yanıt öz-antijeni de tanıyabilir. Bu olgu moleküler taklit olarak adlandırılır.
Bilimsel boşluk yalnız “moleküler taklit otoimmüniteye yol açabilir mi?” sorusu değildir. Asıl soru, başlangıçta mikrobiyal taklide yanıt veren bir B-hücresi havuzunun nasıl aktive olarak öz-antijenlere karşı yanıt geliştirdiği ve bu yanıtın daha sonra başka öz-antijenlere nasıl genişleyebildiğidir. A5H modeli bu erken olayları B-hücresi düzeyinde izleyebilmek amacıyla geliştirilmiştir.
Moleküler Taklit B Hücresini Nasıl Otoreaktif Hale Getirebilir?
Moleküler taklit, bir B-hücresi reseptörünün mikrobiyal antijeni güçlü biçimde tanırken benzer bir öz-epitopu daha düşük fakat anlamlı çapraz reaktiviteyle tanıyabilmesine izin verebilir; A5H modelinde PmE-L/PmE'yi tercihli olarak tanıyan B hücreleri immünizasyon sonrası germinal merkez yanıtına katıldığında AQP5E'ye karşı belirgin otoantikor yanıtı ortaya çıkmıştır.
AQP5 nedir?
Aquaporin-5 (AQP5), aquaporin protein ailesinin bir üyesidir. Çalışma özellikle AQP5'in daha önce haritalanmış iki ekstrasellüler epitopundan “E” epitopunu, yani AQP5E'yi merkez alır. AQP5A ise aynı proteinin farklı bir ekstrasellüler epitopudur ve araştırmada intramoleküler epitop yayılmasını test etmek amacıyla ayrı hedef olarak ölçülmüştür.
PmE ve PmE-L nedir?
PmE, Prevotella melaninogenica aquaporininden türetilmiş ve AQP5E'yi taklit eden mikrobiyal B-hücresi epitopudur. PmE ile AQP5E arasında yalnız bir amino asit farkı vardır. PmE-L ise deneysel immünizasyonda kullanılan, hem B-hücresi hem T-hücresi epitopları içeren daha uzun peptit yapısıdır. Kaynak özellikle PmE ve AQP5E'nin yalnız B-hücresi epitopu, PmE-L'nin ise hem B- hem T-hücresi epitopu içerdiğini belirtmektedir.
BCR nedir?
B-cell receptor (BCR), B hücresinin yüzeyindeki antijen tanıma reseptörüdür. Bir immünoglobulinin membrana bağlı biçimi olarak düşünülebilir. BCR'nin antijene bağlanan bölgesinin çeşitliliği, immünoglobulin ağır ve hafif zincir genlerinin yeniden düzenlenmesiyle oluşur.
VDJ ne anlama gelir?
İmmünoglobulin ağır zincirinin antijen tanıyan değişken bölgesi, V (variable), D (diversity) ve J (joining) gen segmentlerinin yeniden düzenlenmesiyle oluşturulur. “VDJ knock-in” ifadesi bu çalışmada belirli bir antikor ağır zincirine ait hazırlanmış VDJ dizisinin faredeki doğal Igh lokusuna hedefli biçimde yerleştirilmesini ifade eder.
Clone 44 neden seçildi?
Clone 44 daha önce PmE kullanılarak bir phage-display antikor kütüphanesinden izole edilmiş AQP5E-reaktif bir antikor klonudur. Ağır zincir değişken bölgesinde IGHV5-6, IGHD2-3 ve IGHJ2 kökenli toplam yedi amino asit mutasyonu; hafif zincir değişken bölgesinde IGKV14–111 ve IGKJ4 kökenli dört amino asit mutasyonu bulunmaktadır.
Clone 44'ten türetilen rekombinant IgG hem PmE'ye hem AQP5E'ye bağlanmakta, fakat PmE'ye biraz daha güçlü reaktivite göstermektedir. İlgisiz AQP5A epitopuna bağlanmamaktadır. Bu özellik, modeli doğrudan öz-antijene yüksek afiniteli klasik bir BCR modeli olmaktan ayırmaktadır: A5H reseptörü mikrobiyal taklidi tercih ederken öz-AQP5E'ye çapraz reaktivite taşır.
A5H knock-in fare nasıl üretildi?
AQP5E bağlayan BCR'den elde edilen ağır zincir VDJ dizisi iki homoloji kolu içeren hedefleme vektörüne yerleştirilmiş ve C57BL/6J farelerinin Igh lokusuna hedeflenmiştir. Ortaya çıkan hat A5H olarak adlandırılmıştır. Doğru genetik entegrasyon ve okuma çerçevesinin korunması hedef lokusun Sanger dizilemesiyle doğrulanmıştır.
A5H aleli PCR genotiplemesinde 361 baz çiftlik ürün, yabani tip alel ise 234 baz çiftlik ürün vermektedir. Çalışmada 6–21 haftalık erkek ve dişi fareler kullanılmıştır.
VH bölgesi içinde olası ağır zincir gen değiştirmesini azaltmak amacıyla iç heptamer bölgesinde TGT → TGC sessiz mutasyonu oluşturulmuştur. Kodlanan amino asidi değiştirmeyen bu nükleotid değişikliği, VH replacement mekanizmasına ilişkin dizisel sinyali değiştirmek için kullanılmıştır.
A5H farelerinde ağır ve hafif zincir nasıl davranır?
A5H hattındaki B hücreleri Clone 44 kökenli ağır zinciri ifade ederken, hafif zincirler endojen biçimde yeniden düzenlenmeye devam eder. Bu ayrıntı çok önemlidir; çünkü sabitlenmiş ağır zincirin farklı doğal hafif zincirlerle eşleşmesi, farklı B hücrelerinde aynı ağır zincire rağmen farklı antijen bağlanma özellikleri ortaya çıkarabilir.
Knock-in dizisinin doğal Igh lokusuna hedeflenmesi ayrıca germinal merkez sırasında gerçekleşebilen somatik hipermutasyon, afinite olgunlaşması ve izotip değişimi gibi süreçlerin model içinde çalışabilmesine olanak verir.
Somatik hipermutasyon nedir?
Somatik hipermutasyon, aktive B hücrelerinin immünoglobulin değişken bölge genlerinde yüksek oranda nokta mutasyonu oluşturduğu germinal merkez sürecidir. Ortaya çıkan BCR varyantlarından antijene daha iyi bağlanan hücreler seçilebilir.
Afinite olgunlaşması nedir?
Afinite olgunlaşması, germinal merkez reaksiyonu sırasında somatik hipermutasyon ve seçilim sonucunda antijene daha yüksek afiniteyle bağlanan B-hücresi klonlarının zenginleşmesidir. Bu çalışma doğrudan her antikor klonunun mutasyon geçmişini sekanslamamıştır; fakat A5H sisteminin doğal Igh lokusunda kurulması bu biyolojik süreçlere izin vermektedir.
İzotip değişimi nedir?
Class-switch recombination veya izotip değişimi, B hücresinin antijen tanıma özgüllüğünü büyük ölçüde korurken antikorun sabit ağır zincir bölgesini değiştirmesidir. Böylece örneğin IgM tipi yanıt farklı efektör işlevlere sahip IgG sınıflarına dönüşebilir.
Anergi Nedir ve A5H Farelerinde Neden Önemlidir?
B-hücresi anergisi, öz-antijeni tanıyabilen bir B hücresinin fiziksel olarak tamamen ortadan kaldırılmak yerine fonksiyonel olarak yanıt veremez veya daha az yanıt verir durumda tutulduğu periferik tolerans mekanizmasıdır; A5H farelerinde anergiyle ilişkili IgD+IgMlo olgun B-hücresi kompartımanının azalması, mikrobiyal taklide reaktif ve gizli öz-reaktivite taşıyan daha büyük bir B-hücresi havuzunun immünizasyona cevap verebilmesiyle ilişkilidir.
Merkezi delesyon gerçekleşti mi?
A5H farelerinde toplam B-hücresi sayıları ve olgunlaşmamış/olgun B-hücresi oranları kemik iliği, dalak ve lenf düğümünde büyük ölçüde korunmuştur. Bu sonuç belirgin bir merkezi klonal delesyon veya genel B-hücresi gelişimsel blok olmadığını desteklemektedir.
Geçişsel T1, T2 ve T3 B hücreleri nedir?
Çalışmada olgunlaşmamış geçişsel B hücreleri IgM ve CD23 ekspresyonuyla sınıflandırılmıştır: T1 hücreleri IgMhiCD23−, T2 hücreleri IgMhiCD23+, T3 hücreleri ise IgMloCD23+ olarak tanımlanmıştır. A5H farelerinde T1 hücrelerinin oranı artarken T3 hücrelerinin oranı azalmıştır.
Foliküler ve marjinal zon B hücreleri nedir?
Dalaktaki olgun B hücreleri arasında foliküler B hücreleri ve marjinal zon B hücreleri (MZB) farklı immünolojik kompartımanları temsil eder. Çalışmada MZB hücreleri IgMhiCD23−, foliküler hücreler IgMint/loCD23+ fenotipiyle tanımlanmıştır. A5H farelerinde dalak MZB kompartımanı genişlerken splenik foliküler B hücreleri azalmış; lenf düğümü foliküler hücreleri ise belirgin etkilenmemiştir.
Antijen bağlanması nasıl test edildi?
Tek hücre süspansiyonları kemik iliği, dalak ve lenf düğümlerinden hazırlanarak 40 μm hücre süzgecinden geçirilmiştir. B hücreleri FITC işaretli PmE-L ve Cy5 işaretli AQP5E ile inkübe edilmiş ve akım sitometrisiyle analiz edilmiştir.
100 nM gibi daha düşük seçicilikteki prob koşulunda PmE-L bağlayan hücreler +/A5H ve A5H/A5H farelerin birçok B-hücresi kompartımanında artmıştır. AQP5E bağlayan hücrelerin artışı ise özellikle +/A5H dalağının toplam ve olgun B-hücresi kompartımanında belirgindir.
Daha yüksek seçicilik sağlayan 10 nM prob koşulunda PmE-L bağlanması genotipler arasında daha benzer hale gelirken, AQP5E-bağlayan B hücreleri +/A5H dalağının özellikle marjinal zon ve foliküler bölümlerinde zengin kalmıştır.
Kompetisyon deneyi neden yapıldı?
Floresan işaretli antijene görülen bağlanmanın gerçekten PmE/AQP5E ile ilişkili özgüllükten kaynaklanıp kaynaklanmadığını sınamak için hücreler işaretli problardan önce on kat fazla işaretsiz PmE veya AQP5E ile inkübe edilmiştir. Fazla PmE, AQP5E probuyla saptanan hücre frekansını azaltırken işaretsiz AQP5E aynı ölçüde etkili olmamıştır. Yazarlar bu sonucu, saptanan AQP5E bağlanmasının A5H ağır zincirinden gelen ve PmE'ye daha yüksek afinite gösteren çapraz reaktif özgüllüğü yansıttığı şeklinde yorumlamaktadır.
Germinal Merkez Yanıtı Otoantikor Çeşitlenmesinde Nasıl Rol Oynadı?
PmE-L ile uyarılan +/A5H farelerinde taklit-reaktif B hücreleri germinal merkez kompartımanına daha güçlü biçimde katılmış, AQP5E-bağlayan germinal merkez B hücreleri ve AQP5E-bağlayan plasmablastlar zenginleşmiş ve bununla birlikte güçlü anti-AQP5E otoantikor yanıtı gelişmiştir.
Germinal merkez nedir?
Germinal merkez (GC), aktive B hücrelerinin lenfoid dokudaki foliküller içinde çoğaldığı, immünoglobulin genlerinde somatik hipermutasyon geçirdiği ve antijene bağlanma özelliklerine göre seçildiği özel mikroanatomik reaksiyon bölgesidir. Çalışmada GC B hücreleri TCRβ−B220+CD138− hücreleri içinde GL7+CD38− olarak tanımlanmıştır.
Plasmablast nedir?
Plasmablast, aktive B hücresinden antikor salgılayan plazma hücresine doğru farklılaşan erken antikor-üretici hücredir. Çalışmada plasmablastlar toplam B-hücresi popülasyonu içinde CD138+ olarak tanımlanmıştır.
PmE-L immünizasyon deneyinin grupları
| Grup | n | Yaş | Uygulama |
|---|---|---|---|
| Sham +/A5H | 5 | 6–14 hafta | Kontrol uygulaması |
| PmE-L immünize yabani tip | 5 | 6–14 hafta | PmE-L + IFA |
| PmE-L immünize +/A5H | 7 | 6–14 hafta | PmE-L + IFA |
Bu deney üç bağımsız deneyin birleşik verisini içermektedir. Serum antikorları 13. ve 21. günlerde değerlendirilmiştir.
İmmünizasyon nasıl yapıldı?
PmE-L peptidinden 100 μg, incomplete Freund's adjuvant (IFA) ile 1:1 oranında emülsifiye edilmiştir. Farelere kuyruk tabanının iki tarafına subkutan olarak 50 μl/yan uygulanmıştır.
IFA nedir?
Incomplete Freund's adjuvant, verilen antijenin immün sistem tarafından daha güçlü ve uzun süreli biçimde algılanmasına yardımcı olan yağ bazlı adjuvandır. Çalışmada PmE-L'nin immünizasyon koşulunda sunulması için kullanılmıştır. IFA'nın kendisi gerçek insan enfeksiyonu değildir; bu nedenle deney, doğal mikrobiyal maruziyetin birebir taklidi olarak değerlendirilmemelidir.
13. ve 21. günlerde ne bulundu?
Sham +/A5H farelerinde anti-PmE-L antikorları bulunmasına rağmen anti-AQP5E ELISA yanıtı saptanmamıştır. PmE-L immünizasyonundan sonra +/A5H grubunda hem anti-PmE-L hem anti-AQP5E antikorları 13. ve 21. günlerde artmıştır. +/A5H farelerinin tamamında 13. güne kadar anti-AQP5E yanıtı gelişmiş, 21. günde düzeyler daha da yükselmiştir.
Yabani tip farelerde ise aynı deneyde anti-AQP5E yanıtı yalnız bir farede saptanmıştır. Kaynak, önceki model deneylerinde yabani tip farelerde belirgin anti-AQP5E yanıtı için en az iki immünizasyon gerektiğini belirtmektedir.
Lenf düğümünde ne değişti?
Draining lenf düğümünde toplam B-hücresi sayıları ve toplam B hücreleri arasındaki AQP5E-bağlayan hücre frekansı gruplar arasında benzerdi. Buna karşılık GC B-hücresi frekansı ve GC B hücreleri içindeki AQP5E-bağlayan hücre frekansı PmE-L immünize +/A5H farelerinde artmıştır.
Toplam plasmablast frekansı +/A5H farelerinde yabani tipe göre daha düşük olmasına rağmen AQP5E-bağlayan plasmablastlar zenginleşmiştir. Bu sonuç, toplam plasmablast miktarı ile hedef antijene özgü plasmablast oranının aynı şey olmadığını göstermektedir.
ELISA ne ölçüyor?
Enzyme-linked immunosorbent assay (ELISA), serumdaki belirli antijene bağlanan antikor miktarının ölçülmesinde kullanılan immünolojik yöntemdir. PmE-L, AQP5E ve AQP5A ölçümlerinde avidin kaplı plaklara kuyu başına 0.2 μg biyotinlenmiş peptit bağlanmış; anti-streptavidin IgG için plaklar kuyu başına 0.2 μg streptavidinle kaplanmıştır.
Standart eğriler 40–0.625 ng/ml fare IgG1 kullanılarak hazırlanmıştır. Serum seyreltmeleri anti-PmE-L ve anti-AQP5E için 1:3.000–1:10.000, anti-AQP5A için 1:300, anti-streptavidin için 1:10.000 aralığındadır.
Heterozigot +/A5H Fareler Neden Homozigot A5H/A5H Farelerden Daha Güçlü Yanıt Verdi?
Çalışmada +/A5H fareler anti-AQP5E, anti-AQP4 ve anti-streptavidin yanıtlarında A5H/A5H farelerden daha güçlü humoral yanıt göstermiştir; yazarlar bunun endojen ağır zincir ile A5H ağır zincirinin birlikte ifade edilmesine izin veren allelic inclusion ve buna bağlı daha geniş BCR repertuvarıyla ilişkili olabileceğini önermektedir, ancak bu mekanizma repertuvar dizilemesiyle doğrudan doğrulanmamıştır.
Allelic exclusion nedir?
Normal B-hücresi biyolojisinde immünoglobulin ağır zincir alellerinden genellikle yalnız birinin üretken biçimde ifade edilmesi, tek bir hücrenin daha tekil antijen özgüllüğüne sahip olmasına yardımcı olur. Bu düzen allelic exclusion olarak adlandırılır.
Allelic inclusion nedir?
Allelic inclusion, aynı B hücresinde birden fazla immünoglobulin alelinin fonksiyonel olarak katkı sağlayabilmesi durumudur. Böyle bir durumda hücre birden fazla reseptör özgüllüğü sergileyebilir. Yazarlar +/A5H farelerde A5H aleliyle endojen ağır zincir alelinin birlikte bulunmasının daha geniş antijen repertuvarına olanak sağlayabileceğini ve otoreaktif hücrelerin delesyon veya anergiden kaçmasına katkıda bulunabileceğini tartışmaktadır.
Ancak “+/A5H daha güçlü yanıt verdi, o halde bunun nedeni kesin allelic inclusion'dır” denilemez. Kaynak açıkça nedensel ilişkilerin henüz kurulmadığını ve özellikle homozigot A5H/A5H'deki ağır repertuvar kısıtlanmasının etkisinin repertuvar dizilemesiyle doğrulanması gerektiğini belirtmektedir.
Genotip ve cinsiyet deneyi nasıl kuruldu?
| Grup | n | Cinsiyet dağılımı | Yaş |
|---|---|---|---|
| +/A5H + DPBS | 13 | 7 erkek + 6 dişi | 7–14 hafta |
| +/A5H + PmE-L | 13 | 7 erkek + 6 dişi | 7–14 hafta |
| A5H/A5H + DPBS | 11 | 5 erkek + 6 dişi | 8–21 hafta |
| A5H/A5H + PmE-L | 14 | 7 erkek + 7 dişi | 8–21 hafta |
Sham koşulunda anti-PmE-L antikorları her iki A5H genotipinde saptanmış ve A5H/A5H farelerinde +/A5H farelerinden daha yüksek bulunmuştur; buna karşın anti-AQP5E antikorları iki genotipte de ELISA ile saptanmamıştır.
PmE-L immünizasyonu sonrasında hem anti-PmE-L hem anti-AQP5E yanıtı iki A5H genotipinde yükselmiş, fakat genel olarak A5H/A5H grubunda daha düşük eğilim göstermiştir. İmmünize homozigot farelerin ikisi anti-AQP5E yanıtı üretmemiştir. Antikor yanıtları erkek ve dişiler arasında büyük ölçüde benzer bulunmuştur.
Epitop Yayılması ile Çapraz Reaktivite Arasındaki Fark Nedir?
Bu çalışmada homolog AQP5, AQP4 ve kısmen AQP1 proteinlerinin benzer epitop bölgelerine çapraz reaktivite gelişmiş, fakat aynı AQP5 molekülünün farklı AQP5A epitopuna yeni antikor yanıtı oluşmamıştır; dolayısıyla kaynak homolog proteinler arasındaki yanıt genişlemesini moleküler taklit tarafından yönlendirilen intermoleküler çeşitlenme olarak değerlendirirken AQP5 içinde intramoleküler epitop yayılmasının gösterilmediğini özellikle ayırmaktadır.
İntramoleküler epitop yayılması nedir?
İntramoleküler epitop yayılması, bağışıklık yanıtının aynı protein üzerindeki başlangıç epitopundan farklı epitoplara doğru genişlemesidir. Bu deneyde başlangıç öz-epitopu AQP5E iken, aynı AQP5 proteininin AQP5A epitopuna karşı antikor aranmıştır. Anti-AQP5A hiçbir farede saptanmamıştır.
İntermoleküler çeşitlenme nedir?
Yanıtın bir proteinden yapısal olarak benzer başka proteinlere genişlemesi intermoleküler çeşitlenme olarak düşünülebilir. Çalışmada AQP5E bölgesine homolog dizilere sahip AQP4 ve AQP1 bu açıdan incelenmiştir.
AQP4'e çapraz reaktivite nasıl doğrulandı?
Tükürük bezi kesitlerinde çift immünofloresansla serum IgG'nin AQP4 ile birlikte lokalizasyonu değerlendirilmiştir. Daha sonra insan AQP4-M23-EGFP ifade eden L929 hücreleri kullanılarak hücre-temelli akım sitometri testi yapılmıştır. Parental L929 hücreleri negatif kontrol olarak kullanılmıştır.
Hem sham hem immünize koşullarda +/A5H serumunda AQP4 bağlanması A5H/A5H farelerinden daha yüksek bulunmuştur. İmmünofloresans ve hücre-temelli test aynı genel genotip farkını desteklemiştir.
AQP1 nasıl test edildi?
İnsan AQP1 ifade eden stabil HEK293 hücreleri oluşturulmuş ve fare serumlarının bu hücrelere bağlanması akım sitometrisiyle ölçülmüştür. AQP1 testi için serum 1:20 oranında, AQP4 testi için 1:200 oranında seyreltilmiştir.
AQP1'e düşük düzeyli reaktivite bazı farelerde immünizasyon, genotip veya cinsiyetten bağımsız olarak görülmüştür. PmE-L immünizasyonundan sonra biri +/A5H, biri A5H/A5H olmak üzere iki dişi farede yüksek anti-AQP1 yanıtı ortaya çıkmıştır. Bu iki gözlemden “dişi fareler AQP1 otoantikoruna daha yatkındır” sonucu çıkarılamaz; çalışmanın genotip-cinsiyet analizinde genel antikor yanıtları cinsiyetler arasında büyük ölçüde benzerdir.
AQP5 ile AQP4 yanıtları arasındaki ilişki
AQP5 ve AQP4 bağlayan otoantikorların varlığı ve büyüklüğü arasında anlamlı ilişki bulunmuştur: Kendall's Tau-b testi p<0.001. Bu istatistiksel ilişki iki antikor yanıtının birlikte değiştiğini desteklemektedir; tek başına bir antikorun diğerini oluşturduğunu kanıtlamaz.
Neden AQP4 ve AQP1 aynı ölçüde yanıt vermedi?
Kaynak, AQP4'ün AQP5E'ye homolog bölgede AQP5'ten yalnız bir amino asit; AQP1'in ise iki amino asit farklı olduğunu belirtmektedir. Buna rağmen yüksek anti-AQP1 düzeyi yalnız bazı farelerde görülmüştür. Yazarlar bunun bireysel hafif zincir repertuvarındaki rastlantısal farklılıklar ve B-hücresi gelişimi sırasında antijen erişilebilirliğiyle ilişkili olabileceğini tartışmaktadır.
Bu açıklama deneyde doğrudan kanıtlanmış tek mekanizma değildir. Özellikle AQP1'in kırmızı kan hücreleri ve vasküler endotelde yaygın bulunmasının AQP1-reaktif B hücrelerinin gelişim sırasında delesyonuna katkıda bulunabileceği bir yorum olarak sunulmaktadır.
İmmünofloresans neden ELISA'dan farklı sonuç verebilir?
Sham A5H farelerinin 24'ünün 13'ünde (%54) tükürük bezi immünofloresansında serum IgG ile AQP5 kolokalizasyonu görülmesine rağmen anti-AQP5E ELISA'sı negatifti. İki yöntem aynı biyolojik özelliği birebir ölçmez: ELISA tanımlı AQP5E peptidine bağlanmayı ölçerken doku immünofloresansı doğal doku ortamındaki AQP5 ile birlikte lokalize olan serum IgG sinyalini değerlendirir. Bu nedenle kaynak bu gözlemi AQP5E ELISA sonucu ile eşdeğer saymamıştır.
Streptavidin Gibi İmmünodominant Bir Antijen A5H Yanıtını Engelleyebildi mi?
Yabani tip fareler streptavidin-kompleksli PmE-L deneyinde güçlü anti-streptavidin yanıtına rağmen anti-AQP5E üretmezken, +/A5H ve A5H/A5H fareler anti-AQP5E oluşturabilmiştir; bu sonuç A5H kökenli taklit-reaktif B hücrelerinin immünodominant taşıyıcı antijen rekabeti altında da germinal merkez yanıtına katılabildiğini göstermektedir.
Bu ikinci immünizasyon düzeni nasıl yapıldı?
Fareler önce P. melaninogenica lizatıyla prime edilmiş, ardından streptavidin-kompleksli PmE-L tetrameriyle iki kez boost edilmiştir. Antikor yanıtları 24. ve 34. günlerde değerlendirilmiştir.
| Grup | n | Yaş | Ana gözlem |
|---|---|---|---|
| Sham A5H genotipleri | Her genotip n=2; toplam n=4 | 6–15 hafta | Kontrol |
| İmmünize +/+ | 5 | 6–15 hafta | Anti-SA güçlü; anti-AQP5E oluşmadı |
| İmmünize +/A5H | 5 | 6–15 hafta | Anti-AQP5E ve anti-SA oluştu |
| İmmünize A5H/A5H | 5 | 6–15 hafta | Anti-AQP5E oluştu; anti-SA saptanmadı |
Yabani tip farelerin güçlü anti-SA yanıtı üretip anti-AQP5E üretememesi, immünodominant taşıyıcıya yanıtın PmE-L ile ilişkili otoantikor yolunu baskılayabildiği önceki gözlemlerle uyumludur. Buna karşılık A5H farelerinde önceden genişlemiş taklit-reaktif B-hücresi havuzu bu rekabet koşulunda anti-AQP5E üretmiştir.
A5H/A5H farelerde anti-SA antikoru oluşmaması, yazarlar tarafından çok ağır BCR repertuvar kısıtlanmasının olası fonksiyonel sonucu olarak tartışılmaktadır. Ancak bunu doğrulamak için BCR repertuvar dizilemesi gerekmektedir.
Çalışmanın Yöntemi ve Bulguları
Deneysel modelin temel bileşenleri
| Bileşen | Kaynakta uygulanan yöntem |
|---|---|
| Hayvan modeli | C57BL/6J arka planında Igh-VDJ knock-in A5H fareleri |
| Fare yaşı | Deneye göre 6–21 hafta aralığı |
| Cinsiyet | Erkek ve dişi |
| Barındırma | Specific pathogen-free koşullar |
| Knock-in doğrulama | PCR genotipleme + hedef lokusta Sanger dizileme |
| A5H PCR ürünü | 361 bp |
| Yabani tip PCR ürünü | 234 bp |
| Ana immünizasyon antijeni | PmE-L |
| PmE-L dozu | 100 μg |
| Adjuvan | Incomplete Freund's adjuvant; 1:1 emülsiyon |
| Enjeksiyon | Kuyruk tabanının iki yanına subkutan 50 μl/yan |
| Akım sitometrisi | LSR Fortessa X-20 ve bazı hücre testlerinde BD FACS Symphony A5 SE / Fortessa X-20 |
| Akım sitometri analizi | FlowJo v10.10.0; hücre-temelli testlerde FlowJo |
| Konfokal mikroskop | Carl Zeiss LSM980, 400× |
| İstatistik yazılımı | GraphPad Prism 9.0 |
Örneklem büyüklüğü nasıl planlandı?
Örneklem büyüklüğü pilot deney veya ilk deney setlerinden elde edilen verilere göre hesaplanmıştır. Hesaplamada anlamlılık düzeyi α=0.05 ve istatistiksel güç %80 alınmıştır. Planlama için +/+ ve +/A5H farelerdeki AQP5E+ hücre frekanslarının ortalama ve standart sapmaları ile immünizasyon sonrası +/A5H anti-AQP5E otoantikor düzeyleri kullanılmıştır.
α=0.05 ne demektir?
α=0.05, çalışmanın istatistiksel karar kuralında sıfır hipotezi doğruyken yanlış pozitif sonuç verme olasılığı için önceden belirlenen %5'lik eşiktir. Bu değer, elde edilen her p-değerinin “%95 olasılıkla doğru” olduğu anlamına gelmez.
%80 istatistiksel güç ne demektir?
%80 güç, örneklem planlamasında varsayılan etki ve değişkenlik gerçekten mevcutsa istatistiksel testin bu etkiyi belirlenen α düzeyinde yakalama olasılığının yaklaşık %80 olarak hedeflenmesidir. Kaynak örneklem hesabında kullanılan tam etki büyüklüğü formülünü raporlamamaktadır; bu nedenle Verianla kaynakta olmayan sayısal güç denklemi üretmemektedir.
Akım sitometrisi kapılama mantığı
Önce FSC-A ve SSC-A ile canlı hücre bölgesi seçilmiş, FSC-A/FSC-H ile çift hücreler dışlanmış ve Ghost Dye pozitif ölü hücreler çıkarılmıştır.
| Popülasyon | Tanımlayıcı marker yapısı |
|---|---|
| Kemik iliği toplam B hücresi | CD19+IgM+ |
| Kemik iliği olgunlaşmamış B | CD93+IgD− |
| Kemik iliği olgun/recirculating B | CD93−IgD+ |
| Dalak/LN toplam B | CD19+ |
| Dalak/LN olgunlaşmamış B | CD93+ |
| Dalak/LN olgun B | CD93− |
| T1 | IgMhiCD23− |
| T2 | IgMhiCD23+ |
| T3 | IgMloCD23+ |
| Anergiyle ilişkili olgun B | IgD+IgMlo |
| Marjinal zon B | IgMhiCD23− |
| Foliküler B | IgMint/loCD23+ |
| Plasmablast | CD138+ |
| GC B hücresi | TCRβ−B220+CD138− içinde GL7+CD38− |
Şekil 1 ve Şekil 2'nin ana mesajı
Şekil 1'de her genotip için n=6 fare — dört erkek ve iki dişi — iki bağımsız deneyde değerlendirilmiştir. Toplam B-hücresi gelişimi korunurken T1/T3 dağılımı, anergiyle ilişkili kompartıman ve dalak MZB/foliküler B-hücresi dengesi değişmiştir.
Şekil 2, AQP5E ve PmE-L bağlayan B hücrelerinin dağılımını gösterir. PmE-L'ye reaktif hücre havuzu A5H aleliyle genişlerken, öz-AQP5E'yi belirgin biçimde tanıyan hücrelerin özellikle heterozigot +/A5H dalak olgun kompartımanlarında zenginleşmesi modelin önemli özelliklerinden biridir. AQP5E-bağlayan olgun B hücreleri içinde anergiyle ilişkili fenotip de A5H farelerinde azalmıştır.
Doku histolojisi nasıl değerlendirildi?
Submandibular tükürük bezleri %4 paraformaldehitte 4 °C'de 24 saat fikse edilmiş, parafine gömülmüş ve 4 μm kesitler H&E ile boyanarak lenfosit infiltrasyonu incelenmiştir.
İmmünofloresans için dokular Zinc Fixative içinde 4 °C'de gece boyunca fikse edilmiş, %10–30 sakkarozla kriyoprotekte edilmiş ve OCT'ye gömülmüştür. 10 μm donmuş kesitler buz soğukluğunda asetonda 10 dakika fikse edilmiştir.
AQP5 veya AQP4 için kesitler ilgili tavşan primer antikorları ve 1:10 seyreltilmiş fare serumuyla gece boyunca 4 °C'de inkübe edilmiş; daha sonra floresan sekonder antikorlarla işaretlenmiştir. Görüntüler Carl Zeiss LSM980 konfokal mikroskopta 400× büyütmeyle alınmıştır.
İmmünofloresans puanlama sistemi
IgG bağlanması kör biçimde 0–5 arası altı basamaklı ölçekle değerlendirilmiştir. Puan, floresans sinyalinin görüntü parlaklığı eşiği değiştirilirken hangi düzeye kadar saptanabilir kaldığına dayanır. Böylece yalnız gözlemcinin “parlak/zayıf” izlenimine değil, önceden tanımlanmış eşik basamaklarına göre yarı-nicel değerlendirme yapılmıştır.
AQP4 hücre-temelli testi
İnsan AQP4-M23-EGFP'yi stabil olarak ifade eden L929 fare fibroblast hücreleri lentiviral vektörle üretilmiş ve puromisin seçimi altında tutulmuştur. Parental L929 hücreleri negatif kontroldür. Hücreler 1:200 seyreltilmiş serumla bir saat inkübe edilmiştir.
AQP1 hücre-temelli testi
İnsan AQP1 ifade eden HEK293 hücreleri pEGFP-N1-AQP1 vektörüyle transfekte edilmiş ve G418 ile seçilmiştir. 1 × 10⁶ hücre 1:20 seyreltilmiş serumla bir saat inkübe edilmiş, ardından floresan sekonder antikorla boyanmıştır.
İstatistiksel karar akışı
Veri dağılımının normalliği Shapiro–Wilk testi ile değerlendirilmiştir. İki grup karşılaştırmalarında eşlenmemiş iki yönlü t-testi kullanılmış; F testi varyansların eşit olmadığını p<0.05 ile gösterdiğinde Welch düzeltmesi uygulanmıştır.
İkiden fazla grup karşılaştırmasında tek yönlü ANOVA ve Tukey çoklu karşılaştırma testi kullanılmıştır. Brown–Forsythe testi p<0.05 ile eşit olmayan varyans gösterdiğinde klasik ANOVA yerine Brown–Forsythe ve Welch ANOVA uygulanmış; post hoc karşılaştırmalarda Dunnett T3 testi kullanılmıştır.
İstatistiksel anlamlılık eşiği p<0.05'tir ve veriler ortalama ± standart sapma olarak sunulmuştur.
Shapiro–Wilk testi neyi kontrol eder?
Shapiro–Wilk testi, örnek verinin normal dağılıma uyumluluğunu değerlendirmek için kullanılır. Testin rolü biyolojik etkinin varlığını göstermek değil, parametrik karşılaştırma yöntemlerinin dağılım varsayımını değerlendirmeye yardımcı olmaktır.
Welch düzeltmesi neden kullanılır?
Klasik t-testi iki grubun varyanslarının eşit olduğu varsayımına dayanabilir. Varyanslar farklı olduğunda Welch yaklaşımı serbestlik derecesini buna göre ayarlayarak daha uygun karşılaştırma sağlar.
ANOVA neyi test eder?
Tek yönlü ANOVA üç veya daha fazla grubun ortalamalarının tamamının aynı olduğu temel hipotezini test eder. ANOVA anlamlı olduğunda hangi grupların farklı olduğunu belirlemek için Tukey gibi post hoc testler kullanılır. Varyans eşitliği bozulduğunda çalışmada Brown–Forsythe/Welch ANOVA ve Dunnett T3 tercih edilmiştir.
Çalışmanın desteklediği sonuçlar
- A5H ağır zinciri, mikrobiyal PmE/PmE-L'yi tercihli olarak tanıyan ve AQP5E'ye çapraz reaktivite taşıyan B-hücresi havuzu oluşturabilmektedir.
- A5H farelerinde genel B-hücresi sayısı ve temel olgunlaşma korunurken anergiyle ilişkili periferik B-hücresi kompartımanı azalmaktadır.
- PmE-L immünizasyonu +/A5H farelerinde güçlü anti-AQP5E otoantikor yanıtını tetiklemektedir.
- Taklit-reaktif B hücreleri germinal merkez yanıtlarına katılmakta ve AQP5E-bağlayan GC B hücreleri ile plasmablastlar zenginleşmektedir.
- +/A5H fareler A5H/A5H farelerden daha güçlü anti-AQP5E ve anti-AQP4 yanıtı göstermektedir.
- AQP5E ile ilişkili yanıt homolog AQP4'e ve bazı farelerde AQP1'e çapraz reaktivite gösterebilmektedir.
- AQP5A'ya karşı antikor oluşmadığı için aynı AQP5 proteini içinde intramoleküler epitop yayılması gösterilmemiştir.
- A5H fareleri streptavidin gibi immünodominant taşıyıcı antijen varlığında bile anti-AQP5E yanıtı oluşturabilmektedir.
- Dolaşımdaki otoantikorların yüksek olmasına rağmen tükürük bezinde doku birikimi ve lenfositik patoloji minimaldir.
Çalışmanın desteklemediği sonuçlar
- A5H farelerinin tam Sjögren hastalığı modeli olduğu gösterilmemiştir.
- Anti-AQP5E otoantikorunun tek başına tükürük bezi hasarına yeterli olduğu gösterilmemiştir.
- Allelic inclusion'ın heterozigot farelerdeki güçlü yanıtın kesin nedeni olduğu doğrudan kanıtlanmamıştır.
- A5H/A5H farelerde anti-SA eksikliğinin kesin nedeninin repertuvar kısıtlanması olduğu henüz repertuvar sekanslamasıyla doğrulanmamıştır.
- AQP5E-bağlayan hücrelerdeki düşük anergi fenotipinin hangi öz-antijen veya repertuvar mekanizmasından kaynaklandığı doğrudan test edilmemiştir.
- AQP5A yanıtı oluşmadığı için AQP5 molekülünün diğer epitoplarına genel intramoleküler yayılım gösterilmemiştir.
- AQP1'e yüksek yanıtın yalnız iki dişi farede görülmesi cinsiyete bağlı genel bir mekanizma olduğunu kanıtlamaz.
- Fare modelindeki bulgular insanlarda moleküler taklidin aynı sıra ve büyüklükte otoimmün hastalık oluşturduğunu kanıtlamaz.
- Bu çalışma enfeksiyon geçiren insanlarda hastalık riski veya klinik tedavi etkisi ölçmemektedir.
Çalışmanın güçlü yönleri
Birinci güçlü yön, doğrudan yüksek afiniteli öz-antijen tanıyan klasik otoreaktif BCR modellerinden farklı olarak, mikrobiyal taklidi tercihli tanıyan fakat gizli öz-reaktivite taşıyan B hücrelerini inceleyen özel knock-in sistemidir.
İkinci güçlü yön, B-hücresi gelişiminden germinal merkez reaksiyonuna, serum otoantikoruna, doku bağlanmasına ve homolog aquaporin çapraz reaktivitesine kadar otoimmünite başlangıcının birden fazla aşamasının aynı modelde araştırılmasıdır.
Üçüncü güçlü yön, +/A5H ve A5H/A5H genotiplerinin karşılaştırılmasıyla BCR çeşitliliği ve allelic inclusion/repertuvar kısıtlanması hipotezlerinin araştırılabilmesidir.
Dördüncü güçlü yön, AQP4 çapraz reaktivitesinin yalnız doku immünofloresansıyla değil AQP4 ifade eden hücre-temelli assay ile de değerlendirilmesidir.
Çalışmanın temel sınırlılıkları
Klinik olarak anlamlı doku patolojisinin eksikliği: Kaynak bunu modelin başlıca sınırlılığı olarak açıkça belirtmektedir. Yüksek otoantikor yanıtına rağmen tükürük bezinde belirgin Sjögren-benzeri patoloji oluşmamıştır.
Nedensel allelic inclusion mekanizmasının doğrulanmamış olması: +/A5H farelerde daha güçlü yanıt allelic inclusion ile uyumludur fakat BCR repertuvarının doğrudan dizilenmesiyle mekanizma gösterilmemiştir.
Anergi mekanizmasının kaynağı bilinmiyor: AQP5E-bağlayan olgun B hücrelerindeki anergi fenotipinin alternatif öz-antijenlerden mi yoksa sabit ağır zincirin repertuvar çeşitliliğini kısıtlamasından mı kaynaklandığı doğrudan test edilmemiştir.
İntramoleküler epitop yayılımı görülmedi: PmE-L immünizasyonu AQP5A antikoru oluşturmamıştır. Model bu deney koşulunda tam öz-antijen AQP5'e doğru geniş bir epitop yayılmasını yeniden üretmemektedir.
Hayvan-model sınırı: Deney kontrollü fare modelinde ve adjuvan destekli immünizasyon koşullarında yapılmıştır. İnsan otoimmün hastalığının doğal başlangıcını veya klinik ilerlemesini doğrudan ölçmemektedir.
Model neden klasik otoreaktif BCR modellerinden farklıdır?
| Özellik | Klasik otoreaktif BCR Tg/KI modelleri | A5H modeli |
|---|---|---|
| Başlangıçta tanınan antijen | Doğrudan öz-antijen; ör. HEL, DNA veya insülin | Tercihli olarak mikrobiyal taklit PmE-L |
| Klonal delesyon | Reseptör düzenleme/delesyon başarısız olduğunda B-hücresi sayısında azalma görülebilir | Toplam B-hücresi sayıları genel olarak korunur |
| Anergi | Belirgin anergi yaygındır | Anergiyle ilişkili B-hücresi kompartımanı azalmıştır |
| Otoimmün yanıt tetikleyicisi | Öz-antijen veya TLR ligandlarıyla ilişkili uyarılar | Adjuvanla verilen mikrobiyal taklit antijeni |
| Otoantikor çeşitlenmesi | Genellikle tanımlı öz-antijenlerle sınırlı | Moleküler taklit homolog proteinlere çapraz reaktiviteyi genişletebilir |
| Modelin ana odağı | Tolerans veya doğrudan autoreaktivite | B-hücresi merkezli moleküler taklit ve otoimmünite başlangıcı |
Kaynak ve Yöntem Notu
Özgün başlık: Aquaporin-5–specific heavy chain VDJ knock-in (A5H) mice reveal molecular mimicry–driven initiation and diversification of autoreactive B-cell responses.
Yazarlar ve sıra: Hyunjin Kim, Nayoon Lee, Sabin Acharya, Sungmin Kim, Youngnim Choi.
Eş katkı: Kaynakta eşit katkı veya eş birinci yazar bildirimi bulunmamaktadır.
Sorumlu yazar: Youngnim Choi.
Kurum 1: Department of Immunology and Molecular Microbiology in Dental Sciences, Seoul National University and Dental Research Institute, Seoul, Republic of Korea.
Kurum 2: Department of Translational Medicine, College of Medicine, Seoul National University, Seoul, Republic of Korea.
Kurum 3: Department of Neurology, Seoul National University Hospital, Seoul, Republic of Korea.
Kurum 4: Department of Neurology, College of Medicine, Seoul National University, Seoul, Republic of Korea.
Dergi: Frontiers in Immunology.
Bölüm: Autoimmune Disorders.
Yayınevi/platform: Frontiers / Frontiers Media SA.
Cilt / makale numarası: 17:1866158.
DOI: 10.3389/fimmu.2026.1866158.
Received: 27 Nisan 2026.
Revised: 30 Mayıs 2026.
Accepted: 18 Haziran 2026.
Published: 2 Temmuz 2026.
Kaynak türü: Original Research; deneysel hayvan immünolojisi ve genetik knock-in model çalışması.
Hakemlik durumu: Yayımlanmış hakemli araştırma makalesidir. Kaynak sayfasında editör Gunnar Houen; hakemler Chandrani Thakur ve Jin Hu olarak belirtilmiştir.
Preprint durumu: Sağlanan kaynak yayımlanmış Frontiers makalesidir. Sağlanan belgede ayrı bir preprint kimliği belirtilmemektedir.
Lisans: Creative Commons Attribution 4.0 International (CC BY 4.0).
Ana model: C57BL/6J arka planında aquaporin-5 E epitopuyla çapraz reaktif ağır zincir VDJ knock-in A5H fare hattı.
Model genotipleri: Yabani tip +/+, heterozigot +/A5H ve homozigot A5H/A5H.
Model doğrulaması: PCR genotipleme ve hedef Igh lokusunda Sanger dizileme.
Deney hayvanı yaş aralığı: 6–21 hafta; belirli deneylerde daha dar yaş aralıkları kullanılmıştır.
Antijen: Prevotella melaninogenica aquaporininden türetilmiş PmE-L; PmE-L B- ve T-hücresi epitopları içerirken PmE ve AQP5E yalnız B-hücresi epitopu içermektedir.
Standart PmE-L immünizasyonu: 100 μg PmE-L, incomplete Freund's adjuvant ile 1:1; kuyruk tabanının iki yanına subkutan 50 μl/yan.
Streptavidin tetrameri: Streptavidin ve biyotinlenmiş PmE-L 1:4 molar oranda karıştırılmış; oda sıcaklığında 30 dakika ve ardından 4 °C'de gece boyunca inkübe edilmiş; 50-kDa Amicon filtreyle işlenmiştir.
ELISA kaplaması: PmE-L/AQP5E/AQP5A için 0.2 μg/kuyu biyotinlenmiş peptit; anti-SA ölçümünde 0.2 μg/kuyu streptavidin.
ELISA standart eğrisi: 40–0.625 ng/ml fare IgG1.
Serum seyreltmeleri: anti-PmE-L 1:3.000–1:10.000; anti-AQP5E 1:3.000–1:10.000; anti-AQP5A 1:300; anti-SA 1:10.000.
Antijen probu: Flow cytometry için FITC-PmE-L ve Cy5-AQP5E; 100 nM ve seçilmiş yüksek-stringency analizlerinde 10 nM.
Kompetisyon: İşaretli probdan önce PmE veya AQP5E'nin on kat fazlasıyla 4 °C'de 30 dakika ön inkübasyon.
Akım sitometresi: BD LSR Fortessa X-20; AQP4/AQP1 hücre-temelli analizlerinde BD FACS Symphony A5 SE veya Fortessa X-20.
Analiz yazılımı: FlowJo v10.10.0; hücre-temelli testlerde FlowJo.
Doku histolojisi: Submandibular tükürük bezi; %4 paraformaldehit, 4 °C, 24 saat; parafin; 4 μm H&E kesiti.
İmmünofloresans: Zinc Fixative, 4 °C gece boyunca; %10–30 sakkaroz; OCT; 10 μm donmuş kesit; asetonda 10 dakika; 5% BSA + 10% horse serum bloklama.
AQP5 primer antikoru: 1:200.
AQP4 primer antikoru: 1:100.
İmmünofloresans serum: 1:10.
Konfokal mikroskop: Carl Zeiss LSM980, 400×.
AQP4 hücre-temelli test: İnsan AQP4-M23-EGFP ifade eden L929 hücreleri; parental L929 negatif kontrol; serum 1:200.
AQP1 hücre-temelli test: İnsan AQP1 ifade eden HEK293 hücreleri; serum 1:20.
Hücre sayısı: AQP4/AQP1 testlerinde 1 × 10⁶ hücre.
İstatistik yazılımı: GraphPad Prism 9.0.
Normalite: Shapiro–Wilk.
İki grup: Eşlenmemiş iki yönlü t-testi; eşit olmayan varyansta Welch düzeltmesi.
İkiden fazla grup: One-way ANOVA + Tukey; Brown–Forsythe ile varyans eşitsizliği saptanırsa Brown–Forsythe/Welch ANOVA + Dunnett T3.
Anlamlılık eşiği: p<0.05.
Raporlama: Ortalama ± standart sapma.
Ek ilişki analizi: AQP5 ve AQP4 bağlayan otoantikorlar arasında Kendall's Tau-b; p<0.001.
Örneklem planı: α=0.05 ve %80 güç; pilot/ilk deney verilerindeki AQP5E+ hücre frekansları ve anti-AQP5E otoantikor düzeyleri temel alınmıştır.
Matematiksel formül durumu: Kaynakta bilimsel sonuç üretmek için kullanılan açık matematiksel denklem bulunmamaktadır. Verianla kaynakta olmayan formül eklememiştir.
Etik onay: Seoul National University Animal Care and Use Committee; No. SNU-21104-2-6.
Veri erişilebilirliği: Çalışmanın özgün katkılarının makale ve Supplementary Material içinde bulunduğu; ek soruların sorumlu yazara yöneltilebileceği belirtilmiştir.
Finansman: National Research Foundation of Korea Basic Science Research Program Grant, #RS-2024-00342340; Republic of Korea Ministry of Science & ICT tarafından finanse edilmiştir.
Çıkar çatışması: Yazarlar ticari veya finansal çıkar çatışması oluşturabilecek ilişki olmadığını bildirmiştir. Youngnim Choi, gönderim sırasında Frontiers editorial board üyesi olduğunu bildirmiş; kaynağa göre bunun peer-review süreci veya nihai karar üzerinde etkisi olmamıştır.
Yazar katkıları: Hyunjin Kim — data curation, formal analysis, investigation, writing-original draft; Nayoon Lee — investigation, writing-review & editing; Sabin Acharya — investigation, writing-review & editing; Sungmin Kim — supervision, writing-review & editing; Youngnim Choi — conceptualization, formal analysis, funding acquisition, supervision, writing-review & editing.
Generative AI bildirimi: Yazarlar, veri üretimi veya deney yapmak için değil; veri yorumunu destekleyecek ilgili kaynakları bulmak ve İngilizceyi düzeltmek/polish etmek amacıyla generative AI kullandıklarını bildirmiştir. Frontiers ayrıca şekil alt metinlerinin yapay zekâ desteğiyle oluşturulabileceğini ve mümkün olduğunca yazar incelemesinden geçirildiğini belirtmektedir.
Temel yorum sınırı: A5H farelerinde moleküler taklit güçlü otoantikor yanıtı ve homolog aquaporinlere çapraz reaktivite oluşturmuştur; ancak dolaşımdaki otoantikor tek başına belirgin Sjögren-benzeri tükürük bezi patolojisi yaratmamıştır.
İkinci kritik sınır: +/A5H farelerdeki daha güçlü yanıt allelic inclusion ile uyumludur fakat doğrudan nedensel kanıt değildir; repertuvar sekanslaması gereklidir.
Üçüncü kritik sınır: Anti-AQP5A yanıtı bulunmadığı için native AQP5 üzerinde intramoleküler epitop yayılması bu deneyde gösterilmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir