

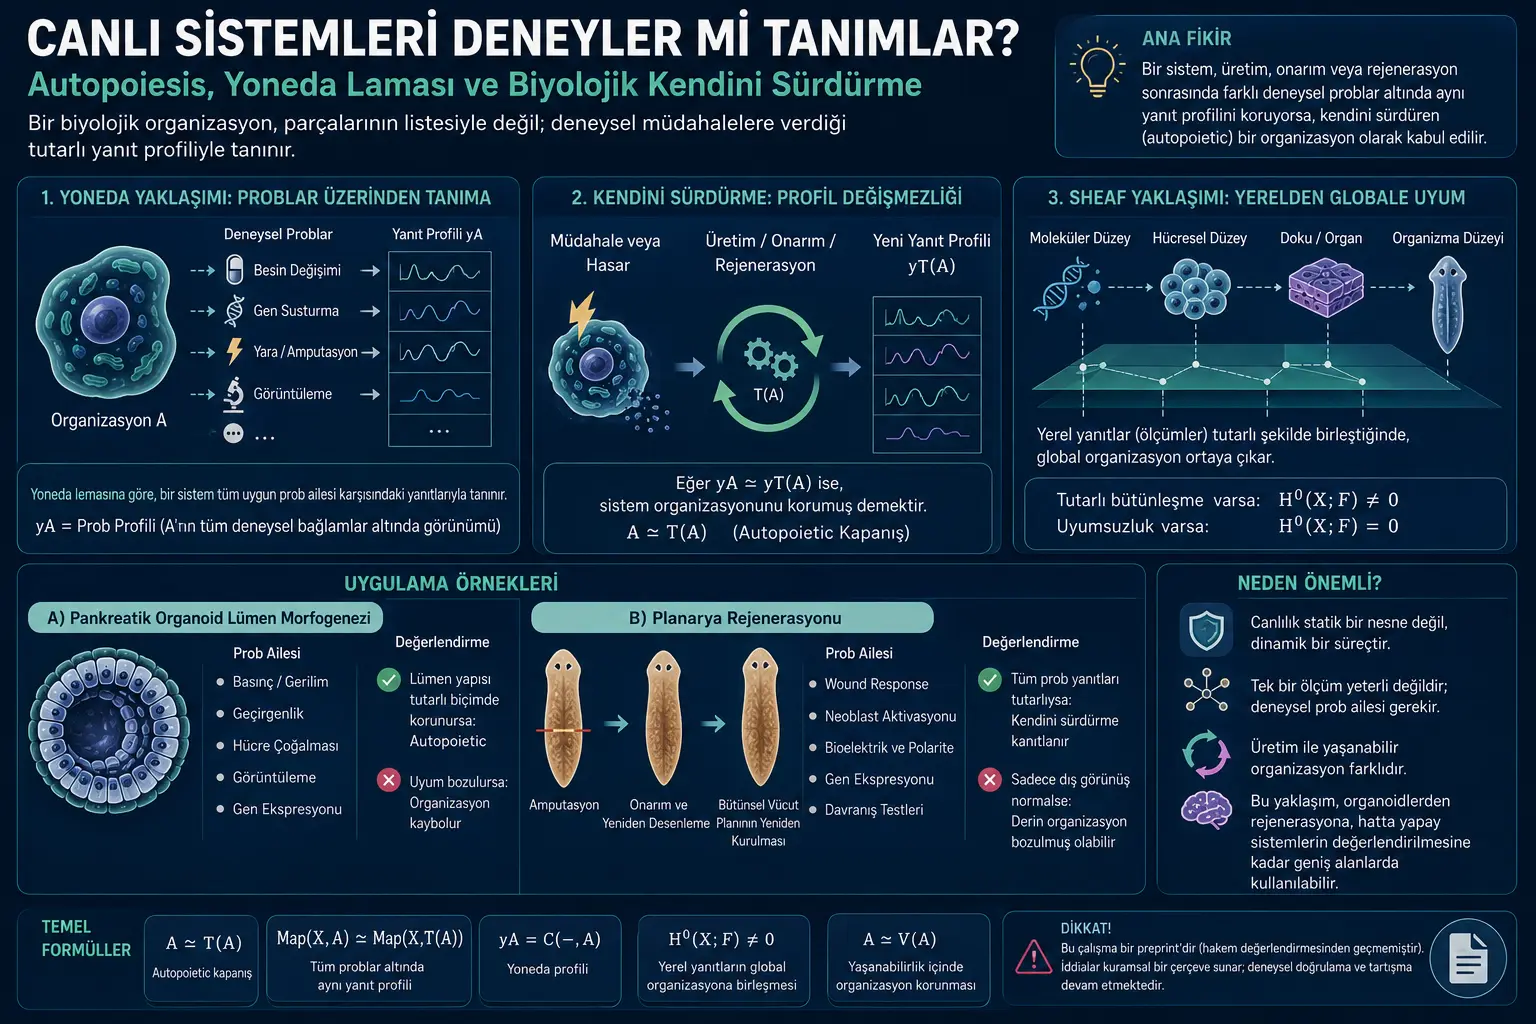
Makale, biyolojik sistemlerin doğrudan ve tek bakışta kavranan sabit nesneler olmadığını savunur. Bir hücre, doku, organoid veya rejenerasyon geçiren canlı parçası, bilim insanının karşısına deneysel problar aracılığıyla çıkar. Besin verilir, gen susturulur, doku yaralanır, sınır zorlanır, görüntüleme yapılır, tek hücre dizileme uygulanır veya çevresel koşul değiştirilir. Canlı organizasyon, bu müdahalelere verdiği yanıtların tutarlılığıyla anlaşılır.
Çalışmanın ana önerisi şudur: Bir biyolojik organizasyonun kendini sürdürüp sürdürmediğini anlamak için tek bir ölçüme veya tek bir moleküler belirtece bakmak yeterli değildir. Önemli olan, sistemin üretim, onarım, yenilenme ve çevresel müdahale sonrasında deneysel prob profilini koruyup korumadığıdır.
Yazar, bu fikri Yoneda lemasıyla ilişkilendirir. Basit ifadeyle, bir biyolojik nesne onu test eden tüm uygun deneysel bağlamlar üzerinden tanınır. Eğer sistem üretim, onarım veya rejenerasyon sonrasında aynı deneysel yanıt profilini tutarlı biçimde sunuyorsa, autopoietic yani kendini sürdüren bir organizasyon olarak yorumlanabilir.
Problem Ne?
Biyolojide canlı sistemler çoğu zaman parça listeleriyle açıklanır: genler, proteinler, hücre tipleri, metabolik yollar, zar yapıları veya moleküler belirteçler. Fakat yaşayan organizasyon yalnızca bu parçaların toplamı değildir. Bileşenler sürekli yenilenir, sınırlar onarılır, hücreler yer değiştirir, iç durumlar dalgalanır ve sistem çevreyle madde-enerji alışverişi yapar.
Bu nedenle temel problem şudur: Bir sistemin aynı canlı organizasyon olarak devam ettiğini nasıl anlarız? Örneğin bir doku yaralandıktan sonra moleküler belirteçler normale dönmüş olabilir; ama doku gerçekten eski organizasyonunu geri kazanmış mıdır? Bir organoid büyümeye devam edebilir; fakat bu büyüme sağlıklı ve uyumlu bir bütünsel yapı mı üretmektedir? Bir planarya parçası yeniden hayvan biçimi alabilir; ama gelecekteki amputasyon testlerinde aynı rejeneratif kapasiteyi gösterebilir mi?
Makale bu soruları “deneysel prob profili” kavramıyla ele alır. Prob, burada canlı sistemi sınayan deneysel bağlam anlamına gelir. Bir gen susturma, yara açma, görüntüleme penceresi, basınç değişimi, bioelektrik müdahale veya tek hücre okuması birer prob olarak düşünülebilir. Eğer bu probların ortaya çıkardığı yanıtlar birbiriyle uyumlu biçimde birleşiyorsa, sistemin bütünsel organizasyonu daha güçlü biçimde tanımlanabilir.
Yöntem Ne Öneriyor?
Çalışma deneysel veri üretmez; var olan biyolojik deneyleri anlamak için matematiksel-kavramsal bir temsil önerir. Yöntem üç ana katmandan oluşur: Yoneda semantiği, sheaf gluing ve viability modality.
Yoneda semantiği, biyolojik organizasyonun deneysel problar üzerinden temsil edilmesi anlamına gelir. Bir organizasyon \(A\) ile gösterilir. Bir deneysel bağlam veya prob \(X\) ile temsil edilir. \(Map(X,A)\), bu probun organizasyonu gözleme veya ona müdahale etme yollarını ifade eder. Tüm uygun problar birlikte ele alındığında, sistemin deneysel profili oluşur.
Sheaf gluing, yerel deneysel yanıtların bütünsel organizasyona dönüşüp dönüşmediğini test eden katmandır. Sheaf teorisi, farklı yerel veri parçalarının uyumlu biçimde bir araya gelip gelmediğini inceleyen matematiksel bir dildir. Biyolojide bunun karşılığı şudur: Moleküler, hücresel, doku düzeyi ve organizma düzeyi yanıtlar birbirine tutarlı biçimde bağlanıyor mu?
Viability modality ise üretim ile yaşanabilir organizasyon arasındaki farkı göstermek için kullanılır. Bir sistem bir şeyler üretmeye devam edebilir; fakat bu üretim sistemin bütünsel canlılığını veya sağlıklı organizasyonunu korumayabilir. Tümör büyümesi, kontrolsüz bağışıklık aktivasyonu, başarısız rejenerasyon veya hatalı organoid gelişimi bu ayrımı açıklamak için kullanılabilir.
Formüller Ne Anlatıyor?
Bu çalışma matematiksel formüller içermektedir. Formüller, biyolojik sistemlerin deneysel problar üzerinden nasıl temsil edilebileceğini ve autopoietic kendini sürdürmenin nasıl “prob profili değişmezliği” olarak okunabileceğini anlatır. Aşağıdaki ifadeler, metindeki ana formüllerin MathJax uyumlu biçimde sadeleştirilmiş aktarımıdır.
Bu formül, autopoietic kapanışın en kısa ifadesidir. \(A\), biyolojik organizasyonu; \(T(A)\), üretim, bakım, onarım veya rejenerasyon sonrası oluşan organizasyonu temsil eder. Denklem, sistemin madde düzeyinde birebir aynı kaldığını değil; organizasyon düzeyinde eşdeğer kaldığını anlatır.
Bu ifade, Yoneda yorumunun biyolojik karşılığıdır. Eğer her uygun deneysel prob \(X\), onarım veya üretim öncesi organizasyon ile sonrası organizasyonu eşdeğer biçimde algılıyorsa, sistem deneysel olarak aynı organizasyonu koruyor demektir.
Bu formül, Yoneda profilini gösterir. \(yA\), \(A\) nesnesinin tüm uygun bağlamlardan nasıl görüldüğünü toplayan temsilidir. Biyolojik çevirisiyle, \(A\) organizasyonunun tüm deneysel problar karşısındaki yanıt profilidir.
Bu Yoneda ilkesinin klasik biçimidir. Bir nesneden başka bir nesneye olan haritalar, bu nesnelerin prob profilleri arasındaki doğal dönüşümlerle anlaşılabilir. Biyolojik açıdan bu, organizasyonlar arasındaki farkların deneysel yanıt profillerindeki tutarlı farklar olarak okunabileceği anlamına gelir.
Gerçek biyoloji tüm olası probları kullanamaz; yalnızca sınırlı bir deney paneli kullanır. \(P\), seçilmiş deneysel prob ailesini gösterir. Bu formül, sınırlı ama yeterli bir deney ailesi altında sistemin üretim veya onarım sonrası aynı profili koruyup korumadığını test eder.
Bu ifade, deney panelinin yeterli olması gerektiğini anlatır. Eğer iki organizasyon seçilen prob ailesi altında aynı görünüyorsa ve bu gerçekten organizasyonların eşdeğer olduğu sonucunu destekliyorsa, prob ailesi ayırt edici kabul edilir. Zayıf bir deney paneli, farklı organizasyonları yanlışlıkla aynıymış gibi gösterebilir.
Bu formül, yerel yanıtların bütünsel uyumunu anlatır. \(H^0(X;\mathcal{F})\), sheaf teorisinde global section yani bütünsel uyumlu seçimler uzayıdır. Biyolojik karşılığı şudur: Yerel hücre, doku, sinyal veya mekanik yanıtlar tutarlı bir bütünsel organizasyona bağlanıyor mu?
Bu ifade, en az bir tutarlı bütünsel organizasyon biçiminin var olduğunu gösterir. Yani yerel biyolojik yanıtlar birbirine eklenip işleyen bir bütün oluşturabilir.
Bu durumda yerel yanıtlar vardır, fakat bütünsel organizasyona birleşemez. Örneğin hücreler çoğalabilir, bazı sinyaller çalışabilir, yara yanıtı başlayabilir; ancak bunlar tutarlı bir doku, lümen veya vücut planı oluşturamayabilir.
Bu formül, döngüsel bir biyolojik organizasyon için minimal bir hesap örneğidir. \(M\), döngü boyunca yerel durumların nasıl değiştiğini gösteren monodromi haritasıdır. Döngü sonunda sistemin uyumlu kapanış sağlayıp sağlayamadığı \(I-M\) üzerinden test edilir.
Bu ifade, kapanış modlarının \(I-M\) çekirdeğiyle ilişkili olduğunu söyler. Basitçe, döngü sonunda kendisiyle uyumlu kalan durumlar varsa sistemde global kapanış modu vardır.
Bu formül, geride kalan uyumsuzlukları veya kapanmayan farkları gösterir. Biyolojik anlamda, yerel süreçler çalışsa bile döngüsel organizasyonun tam kapanamaması bir tür yapısal engel olarak okunabilir.
Bu ifade, organizasyonun yaşanabilirlik açısından kendiyle uyumlu olduğunu gösterir. \(V\), viability yani yaşanabilirlik modalitesidir. Sistem yalnızca üretmiyor; ürettiği yapı yaşanabilir organizasyonu koruyor demektir.
Bu formül, üretim ile yaşanabilirliğin uyumlu olması gerektiğini anlatır. Bir sistem üretim yapabilir; ancak üretim yaşanabilir organizasyonu korumuyorsa autopoietic anlamda yeterli değildir.
Grafik, Tablo ve Şema Ana Mesajı
Çalışmanın ana şeması, biyolojik organizasyonun bir deney ailesi üzerinden temsil edildiğini gösterir. Organizasyon; yara, amputasyon, omics okuması, görüntüleme, sınır testi ve polarite ölçümü gibi problarla sınanır. Daha sonra üretim, onarım veya rejenerasyon sonrası ortaya çıkan yeni profil, önceki profille karşılaştırılır. Eğer profiller tutarlı biçimde eşdeğerse, kendini sürdürme deneysel olarak desteklenir.
Şemanın önemli mesajı şudur: Canlı organizasyonu anlamak, tek bir fotoğraf çekmek gibi değildir. Sistem bir müdahaleden sonra yeniden biçimlenir, onarılır, sınırlarını düzenler ve yanıtlarını farklı ölçeklerde uyumlu hale getirir. Bu nedenle güçlü deney, yalnızca bir değişkeni ölçen deney değil; organizasyonun farklı yönlerini ayırt edebilen deney ailesidir.
Tablolarda iki örnek biyolojik sistem formalizme çevrilir. İlk örnek pankreatik organoid lümen morfogenezidir. Organoid, organizasyon \(A\) olarak; büyüme ve epitel bakımı üretim haritası olarak; basınç, geçirgenlik, çoğalma ve geometri deneyleri prob ailesi olarak yorumlanır. Tutarlı lümen morfolojisi ise yerel yanıtların global bir organizasyona bağlanmasıdır.
İkinci örnek planarya rejenerasyonudur. Planaryada amputasyon temel prob olarak alınır. Wound response, neoblast aktivasyonu, bioelektrik durum, Wnt/β-catenin polarite bilgisi ve organizatör oluşumu yerel yanıtlar olarak değerlendirilir. Tutarlı biçimde yeniden kurulan vücut planı global section gibi okunur. Görünüşte normal olan ama sonraki amputasyonda farklı davranan bir planarya, tek gözlemin yeterli olmadığını gösterir.
Deneyler Nasıl Yapılmış?
Bu makale yeni deney üretmez; literatürdeki deneyleri matematiksel bir temsil çerçevesine yerleştirir. İki ana örnek kullanılır: pankreatik organoid lümen morfogenezi ve planarya rejenerasyonu.
Pankreatik organoid örneğinde, organoidlerin lümen yapısının hücre çoğalması, geçirgenlik, basınç ve epitel geometrisiyle nasıl şekillendiği ele alınır. Lümen, organoid içinde oluşan boşluk veya kanal benzeri yapıdır. Çalışmanın yorumuna göre burada temel soru, yerel hücresel durumların tutarlı bir bütünsel lümen morfolojisine bağlanıp bağlanmadığıdır.
Planarya örneğinde, hayvanın bir parçası kesildikten sonra vücut planını yeniden kurma kapasitesi değerlendirilir. Planaryalar güçlü rejenerasyon yetenekleriyle bilinen yassı solucanlardır. Bioelektrik gradyanlar, Wnt/β-catenin polarite bilgisi, kök hücre benzeri neoblast dinamikleri ve organizatör oluşumu, rejenerasyonun yerel bileşenleri olarak ele alınır. Bu yerel bileşenlerin uyumlu biçimde birleşmesi, bütünsel vücut planının yeniden kurulması anlamına gelir.
Makale bu deneyleri “sadece ölçüm” olarak değil, organizasyonu ortaya çıkaran yapılandırılmış problar olarak görür. Bir sistemin kendini sürdürdüğünü söylemek için tek bir belirtecin normale dönmesi yetmez; yeterince ayırt edici deney ailesi altında yerel yanıtların uyumlu bir bütün oluşturması gerekir.
Sonuçlar Ne Gösteriyor?
Çalışmanın temel sonucu, autopoietic kendini sürdürmenin deneysel olarak “prob profili değişmezliği” şeklinde okunabileceğidir. Bir sistem üretim, onarım veya rejenerasyon geçirdikten sonra hâlâ aynı uygun deneysel problar karşısında tutarlı ve eşdeğer bir yanıt profili sunuyorsa, organizasyonunu korumuş sayılabilir.
Bu yaklaşım, biyolojik kimliği statik bir parça listesi olmaktan çıkarır. Bir doku yalnızca hücre tipleriyle, bir organoid yalnızca marker ifadeleriyle, bir rejenerasyon süreci yalnızca son görünümle tanımlanmaz. Biyolojik kimlik, sistemin farklı müdahalelere verdiği yanıtların bütünsel tutarlılığıyla anlaşılır.
Çalışma ayrıca üretim ile yaşanabilirlik arasındaki ayrımı vurgular. Bir sistem büyüyebilir, çoğalabilir veya lokal üretim gösterebilir; fakat bu üretim sağlıklı bir organizasyon üretmeyebilir. Tümör büyümesi, yanlış gelişmiş organoidler, kontrolsüz bağışıklık aktivasyonu veya başarısız rejenerasyon bu ayrımı anlatır. Üretim varsa ama organizasyon yoksa, autopoietic kapanıştan söz etmek zordur.
Sheaf teorisi bu noktada yerel ve global arasındaki farkı teknik biçimde açıklar. Yerel hücresel yanıtların varlığı tek başına yeterli değildir. Bu yanıtların doku, organoid veya organizma ölçeğinde uyumlu bir bütün oluşturması gerekir. Aksi durumda biyolojik etkinlik vardır, fakat global organizasyon kapanışı yoktur.
Bu Neden Önemli?
Bu çalışma, deneysel biyolojide sık karşılaşılan bir sorunu teorik olarak açık hale getirir: Ne kadar ölçüm yeterlidir? Bir sistemin gerçekten kendini sürdürdüğünü söylemek için hangi deney paneline ihtiyaç vardır? Yazarın cevabı, deney panelinin ilgili organizasyon alternatiflerini ayırt edebilecek kadar güçlü olması gerektiğidir.
Organoid araştırmalarında bu önemlidir. Organoidler, laboratuvarda üç boyutlu olarak geliştirilen ve organ benzeri özellikler gösterebilen hücresel yapılardır. Bir organoidin yalnızca büyümesi yeterli değildir; yerel hücresel davranışların tutarlı bir morfoloji ve işlevsel düzen oluşturup oluşturmadığı da önemlidir.
Rejenerasyon biyolojisinde de aynı durum geçerlidir. Bir canlının dış görünüş olarak yeniden oluşması, altta yatan organizasyonun tamamen aynı kaldığını garanti etmez. Bazı gizli durumlar ancak sonraki deneysel problarla ortaya çıkabilir. Bu bakış, rejenerasyon çalışmalarında tek gözlem yerine çoklu ve ayırt edici deney ailesi kurmanın önemini artırır.
Felsefi açıdan çalışma, canlı organizasyonu “gizli öz” gibi değil, deneysel ilişkiler ağı içinde tanımlar. Bu, biyolojiye daha ilişkisel ve süreç odaklı bir bakış kazandırır. Canlılık, yalnızca içeride bulunan parçalarda değil; sistemin müdahalelere verdiği tutarlı, onarıcı ve bütünleştirici yanıtlarda görünür hale gelir.
Dikkat Noktaları
Bu çalışma preprint niteliğindedir ve henüz hakem değerlendirmesinden geçmemiştir. Bu nedenle önerilen matematiksel çerçeve, yerleşik bir biyolojik yöntem gibi değil, tartışmaya açık bir kuramsal model olarak değerlendirilmelidir.
Yoneda leması ve sheaf teorisi güçlü matematiksel araçlardır; ancak bu araçlar biyolojik veriyi kendiliğinden açıklamaz. Hangi nesnelerin, probların, haritaların, sheaf yapılarının ve viability modalitesinin seçileceği, ilgili biyolojik sisteme göre dikkatle modellenmelidir.
Çalışma tüm canlı sistemlerin aynı anlamda autopoietic olduğunu söylemez. Aksine, hangi sistemin hangi düzeyde kendini sürdürdüğünü test etmek için bir temsil dili önerir. Bu nedenle organoid, doku, tümör, planarya, protocell veya organizma örnekleri arasında biyolojik farklar korunmalıdır.
Zayıf deney panelleri yanıltıcı olabilir. Bir sistem birkaç belirteçte normale dönmüş görünebilir; fakat daha güçlü perturbasyonlar altında farklı veya başarısız bir organizasyon gösterebilir. Makalenin en pratik uyarılarından biri budur: Sonuç, kullanılan prob ailesi kadar güçlüdür.
Bu içerik tıbbi tavsiye değildir. Organoid, rejenerasyon, tümör, bağışıklık veya gelişim biyolojisiyle ilgili klinik yorumlar uzman değerlendirmesi gerektirir. Burada amaç, çalışmanın matematiksel ve deneysel biyoloji açısından önerdiği kavramsal çerçeveyi açıklamaktır.
Sonuç
Makale, autopoiesis kavramını deneysel biyolojiye daha doğrudan bağlayan özgün bir kuramsal çerçeve sunar. Canlı sistemin kendini sürdürmesi, yalnızca parçaların yenilenmesi veya tek bir değişkenin normale dönmesi değildir. Asıl ölçüt, sistemin yeterince zengin deneysel problar altında tutarlı bir organizasyon profili göstermesidir.
Yoneda leması burada biyolojik bir sezgiyi matematiksel hale getirir: Bir organizasyonu, ona nasıl yaklaşılabildiği ve nasıl test edilebildiği üzerinden tanırız. Sheaf teorisi ise yerel yanıtların bütünsel organizasyona bağlanıp bağlanmadığını açıklamak için kullanılır.
Verianla açısından bu çalışma, modern biyolojide matematiğin yalnızca veri analizi için değil, “canlı organizasyon nedir?” sorusunu yeniden kurmak için de kullanılabileceğini gösteren dikkat çekici bir örnektir. En sade mesaj şudur: Canlılık, tek bir ölçümde değil; üretim, onarım, perturbasyon ve yeniden bütünleşme karşısında korunan tutarlı deneysel profilde görünür.
Kaynak ve Yöntem Notu
Bu yazı, J. J. Segura tarafından hazırlanan “Experimental Probes of Autopoietic Self-Maintenance” başlıklı preprint makale temel alınarak hazırlanmıştır. Çalışma; autopoiesis, Yoneda leması, topos teorisi, sheaf teorisi, deneysel prob profilleri, viability, organoid lümen morfogenezi ve planarya rejenerasyonu kavramlarını bir araya getiren teorik bir biyoloji çerçevesi sunmaktadır.
Bu içerik birebir çeviri değildir; çalışmanın ana fikri Verianla yayın çizgisine uygun biçimde sadeleştirilmiş ve özgün Türkçe editoryal makaleye dönüştürülmüştür.
Metin, hakem değerlendirmesinden geçmemiş bir preprint üzerinden hazırlandığı için kesin bilimsel uzlaşı diliyle değil, kuramsal öneri ve yöntem tartışması diliyle okunmalıdır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir