

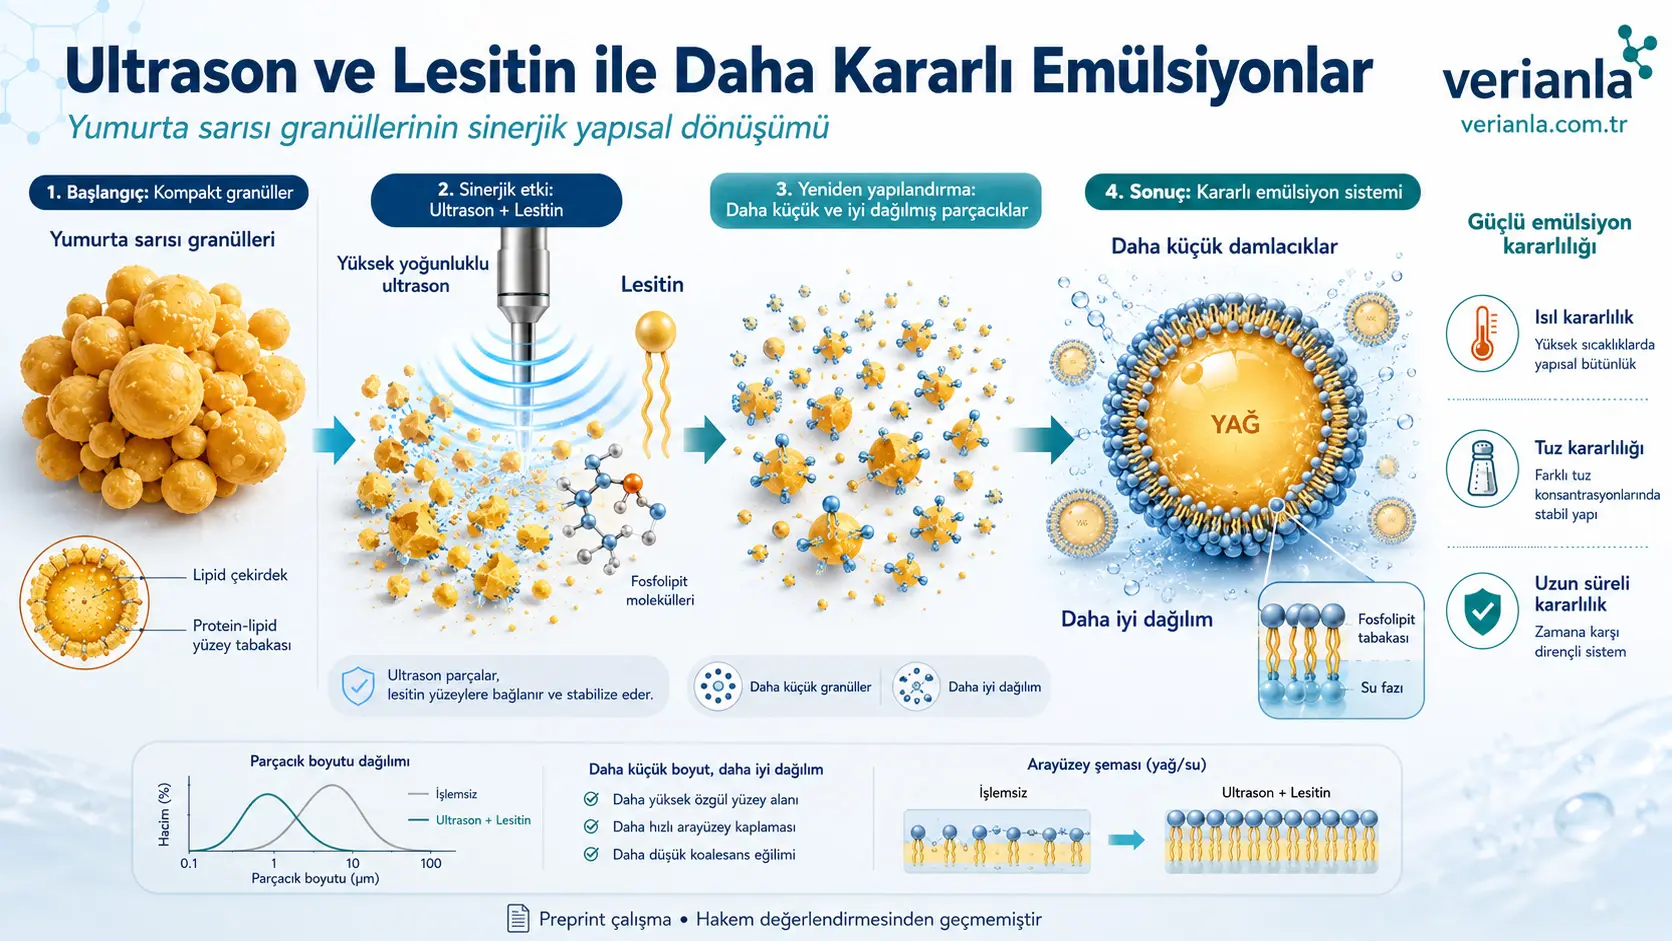
Жумуртканын сарысынын гранулдары; жогорку yoğunluklu lipoбелокler, төмөн yoğunluklu lipoбелокler жана fosvitin gibi белок-липид компоненттеринен oluşan табигый түзүлүштөр болуп саналат. Protein açжылуулукndan zengin жана bütün yumurta sarжылуулукna kıyasla төмөн холестерин курамына ээ olmaları, bu гранулдары тамак-ашка жарактуу эмульгаторлор жана азык ташуу системалары açжылуулукndan ilgi çekici hâle getirir. Bununla бирге гранулдарыn kalsiyum-fosfat köprüleri жана moleküller arası таасирlжубайimlerle sıkıca bağlanmış yoğun түзүлүшү, сууda dağılmalarını жана белокlerinin çözünmesini sınırlar.
Bu изилдөөдө изилдөөчүлөр, жумуртканын сарысынын гранулдарыni 90, 180, 270, 360 жана 450 W кубат деңгээлдеринде жогорку интенсивдүүлүктөгү ультраүнla işledi. Aynı işlemler, пайыз 0,30 лецитин камтыган жумуртканын сарысынын гранулу-лецитин sistemlerine de колдонулган. Максат, ultrasonun механикалык таасирлери менен лецитинin беттик активдүү касиеттериnin бирге kullanılması hâlinde гранул түзүлүшүnın, белок konformasyonunun жана эмульсия oluşturma yeteneğinin кантип değiştiğini аныктооti.
Натыйжалар, en жогорку ultrason gücünün her убакыт en iyi sonucu vermediğini көрсөттү. Genel катары 270-360 W aralığındaki орточо деңгээлдеги ultrason колдонулушу гранулдары küçülttü, белоктун эригичтигиnü көбөйттү, беттик зарядnü кубатlendirdi жана daha туруктуу май-суу эмульсиялардынın oluşmasını sağladı. Лецитин eklenen örneklerde bu таасирлер çoğu ölçütte daha belirgindi. Лецитин, ultrasonla kısmen açılan белокlerle таасирlжубайerek daha düzenli белок-fosfoлипид түзүлүшları oluşturdu жана май тамчыларыnın çevresinde daha yoğun бир интерфейс катмары meydana gelmesine katkı sağladı.
Бирок 450 W колдонулушу bazı kazanımları tersine çevirdi. Aşırı кавитация, белокlerin кайра агрегацияsi, гидрофобдук bölgelerin tekrar gömülmesi жана оксиданттык değişimler gibi süreçlerle бөлүкчө өлчөмүnü artırabildi; эригичтик, эркин сульфгидрил grubu өлчөмı жана эмульсия туруктуулугу gibi касиеттери düşürebildi. Изилдөөnın негизги mesajı, жумуртканын сарысынын гранулдарыnin işlevsel касиеттериnin yalnızca ultrason uygulanarak değil, ылайыктуу кубат aralığı жана лецитинle бирге dikkatle düzenlenerek geliştirilebileceğidir.
Yumurta sarжылуулук гранулü nedir?
Yumurta sarжылуулук tek tip, homojen бир sıvı değildir. Seyreltilmiş yumurta sarжылуулук santrifüjlendiğinde üstte daha akışkan бир plazma fraksiyonu, altta болсо çöken гранул fraksiyonu elde edilir. Изилдөөдө incelenen жумуртканын сарысынын гранулдары, bu çökelti bölümüdür.
Granüllerin негизги компоненттери şunlardır:
- Жогорку yoğunluklu lipoбелокler (high-density lipoбелок, HDL): Protein жана липидleri бир arada taşıyan büyük молекулалык түзүлүшlardır.
- Төмөн yoğunluklu lipoбелокler (low-density lipoбелок, LDL): Lipit bakımından daha zengin белок-липид kompleksleridir.
- Fosvitin (phosvitin, Pv): Fosfat grupları bakımından zengin бир yumurta sarжылуулук белокidir.
- Kalsiyum-fosfat köprüleri: Fosvitin жана diğer гранул компоненттери arasındaki түзүлүштүк bağlantıların sürdürülmesine katkı sağlayan таасирlжубайimlerdir.
Bu түзүлүшların sıkıca бир arada tutulması гранулдарe fiziksel dayanıklılık kazandırırken aynı убакытda маанилүү бир işlevsel sorun yaratır: суу molekülleri гранулün iç bölgelerine жана белок бетlerine yeterince ulaşamaz. Bu эмне үчүнle гранулдарыn doğal hâlde белоктун эригичтиги төмөнtür жана büyük kümeler hâlinde bulunma eğilimleri жогоркуtir.
Bir эмульгаторün таасирli olabilmesi için çoğunlukla эки farklı ortamla aynı anda ilişki kurabilmesi gerekir. Molekülün же parçacığın бир bölümü сууyla, diğer bölümü майla таасирlжубайmelidir. Мындан тышкары май тамчыларыnın çevresine hızla yerlжубайerek тамчыларыn yeniden birlжубайmesini önleyen бир интерфейс катмары oluşturmalıdır. Жумуртканын сарысынын гранулдары bu potansiyele ээ olsa da yoğun жана az çözünen түзүлүшları, ээ oldukları белокin жана fosfolipidin tamamının интерфейсde таасирli biçimde kullanılmasını engelleyebilir.
Изилдөөнүн негизги көйгөйү
Изилдөөnın негизги problemi, жумуртканын сарысынын гранулдарыnin doğal emülsifiye edici potansiyeli менен pratikteki төмөн суу эригичтиги arasındaki çelişkidir. Granüller эмульсия sistemleri açжылуулукndan değerli белок-липид kompleksleri içerir; бирок büyük, sıkı жана агрегацияye yatkın түзүлүшları, суу içinde homojen dağılmalarını zorlaştırır.
Daha önce mekanik işlemler, pH düzenlemeleri, kimyasal modifikasyonlar, ферменттик hidroliz жана çжубайitli katkılar гранулдарыn işlevlerini geliştirmek için araştırılmıştır. Жогорку yoğunluklu ultrason da гранулдарыn parçalanması жана эригичтигиnün artırılması amacıyla kullanılmıştır. Бирок ultrason gücü kritik бир değişkendir. Çok төмөн enerji гранулдары yeterince parçalamayabilir; ашыкча enerji болсо белок oksidasyonuna, кайра агрегацияye же интерфейс түзүлүшүnın bozulmasına yol açabilir.
Лецитин болсо hem сууyu seven hem de майı seven bölgelere ээ doğal бир amfifilik maddedir. Yağ-суу интерфейсüne adsorbe болушу мүмкүн, интерфейс gerilimini azaltabilir жана тамчыларыn birlжубайmesini sınırlandırabilir. Мунун тескерисинче лецитинin ылайыктуу olmayan өлчөмlarda kullanılması, белокlerle интерфейс için rekabet etmesine жана emülsifiye edici performansın алсызlamasına da эмне үчүн болушу мүмкүн.
Bu эмне үчүнle изилдөө yalnızca “ultrason işe yarıyor mu?” soruсууnu sormamıştır. Daha ayrıntılı катары şu sorulara yanıt aramıştır:
- Ultrason gücü arttıkça гранул büyüklüğü, беттик заряд жана белоктун эригичтиги кантип değişir?
- Лецитин, ultrasonla бирге гранулдарыn parçalanmasını жана кайра агрегацияsini кантип таасирлер?
- Proteinlerin экинчи жана үчүнчү түзүлүшүnda кайсы değişiklikler meydana gelir?
- Bu түзүлүштүк değişiklikler эмульсия тамчыларыnın büyüklüğüne жана туруктуулугуna кантип yansır?
- Oluşturulan эмульсиялар жогорку температура жана жогорку туз derişimi gibi иштетүү koşullarına dayanabilir mi?
- Төмөн, orta жана ашыкча ultrason кубатleri arasında işlevsel açıdan бир optimum aralık var mıdır?
Жогорку yoğunluklu ultrason гранулдары кантип değiştiriyor?
Жогорку yoğunluklu ultrason sıvı içinde hızlı basınç değişimleri oluşturur. Bu değişimler çok küçük kabarcıkların meydana gelmesine, büyümesine жана aniden çökmesine эмне үчүн olur. Bu olaya akustik кавитация denir.
Kabarcıkların çökmesi sırasında yerel ölçekte күчтүү kesme kuvvetleri, mikrojetler, mikroakımlar жана türbülans oluşabilir. Granül gibi büyük белок-липид kümeleri açжылуулукndan bu durum, sıkıca пакетlenmiş бир түзүлүшnın mekanik катары sarsılması жана daha küçük parçalara ayrılması anlamına gelir.
Изилдөөдө önerilen mekanizmaya göre ultrason:
- HDL-fosvitin komplekslerini жана bazı белок-липид kümelerini parçalamaktadır.
- Kalsiyum-fosfat köprülerinin жана гидрофобдук таасирlжубайimlerin бир bölümünü алсызlatmaktadır.
- Granüllerin içinde gömülü bulunan гидрофилдик, гидрофобдук жана reaktif белок gruplarını açığa çıkarmaktadır.
- Parçacık büyüklüğünü azaltarak сууyla temas eden toplam бет alanını artırmaktadır.
- Proteinlerin katlanmış түзүлүшүnda kısmi açılma жана yeniden düzenlenme oluşturmaktadır.
Bu таасирлер ылайыктуу деңгээлde olduğunda эригичтик жана emülsifiye edici таасирnlik artar. Fakat enerji ашыкча yükseldiğinde açığa çıkan гидрофобдук bölgeler birbirleriyle yeniden таасирlжубайebilir, белокler tekrar kümelenebilir жана ultrasonun oluşturduğu reaktif türler hassas grupları oksitleyebilir. Изилдөөдө 450 W колдонулушуnda gözlenen performans kayıpları bu çift yönlü таасирyle açıklanmıştır.
Лецитинin rolü
Изилдөөдө лецитин, жумуртканын сарысынын гранулу dispersiyonuna пайыз 0,30 ağırlık/hacim oranında eklenmiştir. Лецитин molekülleri amfifilik түзүлүшdadır; yani aynı molekül içinde hem сууyla hem майla таасирlжубайebilen bölgeler taşır.
Ultrason гранул түзүлүшүnı gevşetip белок бетlerini açtığında лецитин bu бетlerle hidrojen bağları жана гидрофобдук таасирlжубайimler aracılığıyla ilişki kurabilmektedir. Изилдөөчүлөрın önerdiği модельe göre белокler жана лецитин бирге белок-fosfoлипид kompozit miseller же benzeri birlжубайik түзүлүшlar oluşturur.
Bu биргеliğin үч маанилүү sonucu бар:
- Granüllerin birbirine yeniden түзүлүшşması zorlaşır.
- Proteinlerin суу içindeki эригичтиги жана dağılımı iyilжубайir.
- Protein жана лецитин май-суу интерфейсüne бирге yerlжубайerek daha yoğun жана düzenli бир koruyucu tabaka oluşturur.
Бирок лецитин bütün касиеттери aynı yönde geliştirmemiştir. Изилдөөдө лецитинli örneklerin май байлоо жөндөмдүүлүгү, yalnızca жумуртканын сарысынын гранулу камтыган örneklerden daha төмөн табылган. Изилдөөчүлөр bunu, лецитинin белок бетindeki гидрофобдук aminoasit bölgelerini kısmen örtmesiyle açıklamıştır. Dolayжылуулукyla лецитин, гранулдарыn майla doğrudan kütlesel bağlanmasını azaltırken май damlacığı интерфейсünde daha düzenli жана туруктуу бир sistem oluşturabilmiştir.
Deney örnekleri кантип hazırlandı?
Taze yumurtaların sarıları, yumurta akıyla karışmayacak şekilde ayrılmıştır. Sarı zarları delinerek мазмун бир behere aktarılmış, yumurta sarжылуулук deiyonize сууyla 1:1,5 hacim oranında seyreltilmiştir. Karışımın pH değeri 1 M NaOH kullanılarak 7,0’ye ayarlanmış жана төмөн hızda эки saat manyetik катары karıştırılmıştır.
Karışım 4 °C’de бир gece bekletildikten sonra 4 °C’de 8.000 g bağıl santrifüj kuvvetinde 45 dakika santrifüj edilmiştir. Üstte kalan plazma fraksiyonu ayrılmış, çökelti hâlindeki гранул fraksiyonu dondurarak kurutulmuş жана EYGs катары kullanılmıştır.
Лецитинli sistem için гранулдар, белок derişimi 6 mg/mL olacak şekilde deiyonize сууyla seyreltilmiştir. Лецитин son derişimi пайыз 0,30 ağırlık/hacim olacak şekilde eklenmiş, karışım oda sıcaklığında эки saat karıştırılmıştır. pH 8,0’e ayarlandıktan sonra эки saat daha karıştırılmış жана pH yeniden 8,0’e getirilmiştir.
Her эки sistemden 50 mL örnek, 100 mL’lik бир beher içinde 6 mm çaplı ultrason probuyla иштетилгенtir. Prob sıvı бетinin yaklaşık 15 mm altında tutulmuş, ашыкча жылуулукnmayı önlemek için buzlu суу banyoсуу kullanılmıştır.
Uygulanan ultrason koşulları şunlardır:
- Güç деңгээлдери: 90, 180, 270, 360 жана 450 W
- Toplam işlem süresi: 8 dakika
- Darbeli изилдөө: 3 saniye açık, 2 saniye kapalı
- Örnek hacmi: 50 mL
Emülsiyon oluşturmak için ultrasonla иштетилген сууlu örnekler, соя майыyla 9:1 hacim oranında karıştırılmıştır. Karışımlar 12.000 devir/dakika hızında эки dakika жогорку hızlı kesmeli homojenizasyona tabi tutulmuştur. Bu işlem sonucunda майın суу içinde dağıldığı эмульсиялар hazırlanmıştır.
Parçacık büyüklüğü жана зета потенциалы ne көрсөттү?
Parçacık büyüklüğü, гранулдарыn суу içinde tek tek mi yoksa büyük kümeler hâlinde mi bulunduğuna ilişkin негизги göstergelerden biridir. Büyük бөлүкчөlar daha hızlı çökelmeye жана düzensiz dağılmaya eğilimlidir. Daha küçük бөлүкчөlar болсо genellikle daha geniş toplam бет alanı жана daha homojen dağılım anlamına gelir.
Ultrason, hem yalnızca жумуртканын сарысынын гранулу камтыган örneklerin hem de гранул-лецитин komplekslerinin ortalama бөлүкчө өлчөмүnü azaltmıştır. Aynı ultrason gücü karşılaştırıldığında лецитинli sistemlerin бөлүкчө өлчөмү sürekli катары daha төмөн табылган.
Лецитинli гранул sisteminde en küçük бөлүкчө өлчөмү 270 W’ta görülmüştür. Güç 360 жана 450 W’a yükseltildiğinde бөлүкчө өлчөмү yeniden hafifçe көбөйгөн. Bu eğilim, гранулдарыn parçalanmasını sağlayan optimum кавитация деңгээлinin aşılmasıyla белокlerin кайра агрегацияye başladığını düşündürmektedir.
Zeta potansiyeli бөлүкчөлөрүn бет elektrik yükünü yansıtır. Изилдөөдөki değerler negatiftir. Negatif değerin mutlak büyüklüğünün artması, бөлүкчөlar arasındaki elektrostatik itmenin кубатlenmesi anlamına gelir. Башкача айтканда -35 mV, -15 mV’a göre daha күчтүү беттик заряд жана genellikle daha жогорку kolloidal туруктуулук anlamına gelir.
Лецитинli sistemin mutlak зета потенциалы aynı кубатteki лецитинsiz sistemden daha жогорку табылган. En жогорку mutlak зета потенциалы 360 W’ta elde edilmiş, 450 W’ta tekrar азайган. Grafikte лецитинli гранулдарыn 360 W’taki зета потенциалы yaklaşık -35 mV деңгээлine ulaşırken лецитинsiz гранулдарыn değeri yaklaşık -19 mV civarında görünmektedir. Grafiklerde ham sayısal veri tabloсуу verilmediği için bu değerler görsel okumaya dayalı yaklaşık değerlerdir.
Изилдөөчүлөр беттик зарядndeki artışı, гранулдарыn parçalanmasıyla daha fazla yüklü grubun açığa çıkmasına, fosvitinin serbestlжубайmesine жана лецитинin бөлүкчө бетini yeniden düzenlemesine bağlamıştır.
Su жана май байлоо жөндөмдүүлүгү
Su bağlama kapasitesi, kurutulmuş гранул örneğinin kendi kütlesine göre ne kadar сууyu tutabildiğini gösterir. Изилдөөдө kullanılan теңдеме şöyledir:
\[ \mathrm{WBC} = \frac{m_1-m_0}{m_0} \]
Burada:
- WBC, суу байлоо жөндөмдүүлүгүdir.
- m0, başlangıçtaki kuru örnek kütlesidir.
- m1, сууyla temas, santrifüj жана serbest сууyun uzaklaştırılmasından sonra ölçülen örnek kütlesidir.
Натыйжа g суу/g гранул biçiminde yorumlanır. Değer yükseldikçe гранулün daha fazla суу tutabildiği anlaşılır.
Yağ bağlama kapasitesi için aynı kütlesel ilişki kullanılmıştır:
\[ \mathrm{OBC} = \frac{m_1-m_0}{m_0} \]
Burada OBC май байлоо жөндөмдүүлүгүni, m0 başlangıç örnek kütlesini, m1 болсо serbest май uzaklaştırıldıktan sonraki örnek kütlesini билдирет. Натыйжа g май/g гранул катары değerlendirilir.
Лецитинli гранулдар bütün ultrason кубатlerinde yalnızca гранул камтыган örneklerden daha жогорку суу байлоо жөндөмдүүлүгү көрсөткөн. En жогорку değerler 270 жана 360 W çevresinde görülmüştür. Ultrasonun бөлүкчөлөрү küçültmesi, yoğun HDL-fosvitin түзүлүшүnı gevşetmesi жана сууyla temas edebilen бет alanını artırması bu sonucu түшүндүрөт.
450 W’ta лецитинli örneklerin суу байлоо жөндөмдүүлүгүnin düşmesi, ашыкча sonikasyonla oluşan кайра агрегацияyle ilişkilendirilmiştir.
Yağ bağlama kapasitesinde болсо farklı бир tablo ortaya çıkmıştır. Yalnızca жумуртканын сарысынын гранулу камтыган örnekler, bütün кубат деңгээлдеринде лецитинli örneklerden daha жогорку май байлоо жөндөмдүүлүгү көрсөткөн. Лецитинsiz sistemde en жогорку май bağlama değeri 360 W’ta алынган. Изилдөөчүлөр, орточо деңгээлдеги ultrasonun белокleri kısmen açarak iç kжылуулукmdaki гидрофобдук bölgeleri erişilebilir hâle getirdiğini belirtmiştir.
Лецитин белокlerin гидрофобдук bölgelerini kısmen örttüğü için гранулün serbest майı doğrudan tutma kapasitesi düşmüş болушу мүмкүн. Bu bulgu, “лецитин her өлчөөü yükseltmiştir” biçiminde basitlжубайtirilmiş бир yorumun doğru olmayacağını gösterir.
Protein эригичтиги
Protein эригичтиги, santrifüj sonrasında üst sıvı fazda kalan белок өлчөмının toplam белок өлчөмına oranı катары hesaplanmıştır.
Doğal гранулдарde kalsiyum-fosfat köprüleri жана diğer moleküller arası таасирlжубайimler, суу moleküllerinin белокlere ulaşmasını sınırlandırmıştır. Ultrason gücü 270 жана 360 W’a yükseltildiğinde hem лецитинsiz hem de лецитинli örneklerin белоктун эригичтиги belirgin biçimde көбөйгөн.
Grafikte лецитинli sistemin белоктун эригичтиги 270-360 W aralığında yaklaşık пайыз 12-13 деңгээлine ulaşırken yalnızca гранул камтыган örnekler yaklaşık пайыз 9 çevresinde kalmaktadır. Bu değerler grafik üzerinden yaklaşık okunmuştur; изилдөө her sütunun ham sayısal değerini ayrı бир tabloda vermemiştir.
Лецитинli örneklerin эригичтиги bütün кубатlerde daha жогоркуtir. Изилдөөчүлөр bunu, лецитинin сууda misel benzeri түзүлүшlar oluşturmasına, белок бетleriyle birlжубайmesine жана гранулдарыn tekrar агрегацияsini sınırlandırmasına bağlamıştır.
450 W’ta her эки sistemin эригичтиги düşmüştür. Aşırı кавитацияun daha fazla гидрофобдук bölgeyi açığa çıkarması, бөлүкчөlar arasındaki гидрофобдук жана elektrostatik таасирlжубайimleri кубатlendirerek кайра агрегацияyi desteklemiş болушу мүмкүн.
Serbest sülfhidril grupları жана маанилүү бир формула tutarsızlığı
Proteinlerdeki эркин сульфгидрил grupları, çoğunlukla sistein kalıntılarındaki -SH gruplarını билдирет. Bu grupların өлчөнө турган hâle gelmesi, белок түзүлүшүnın iç kısmında gömülü bölgelerin açığa çıktığını gösterebilir. Daha жогорку ultrason gücünde bu gruplar oksitlenerek disülfit bağlarına dönüşebilir же yeniden kümelenen белокlerin içinde tekrar gömülebilir.
Изилдөөдө эркин сульфгидрил курамы için verilen теңдеме şöyledir:
\[ \text{Serbest sülfhidril içeriği} = \frac{75.53 \times A_{412} \times D}{C} \]
Burada:
- A412, Ellman reaktifiyle işlemden sonra 412 nm’de ölçülen absorbans değeridir.
- D, seyreltme faktörüdür.
- C, örneğin mg/mL cinsinden белок derişimidir.
- Натыйжа grafikte μmol/g катары сууnulmuştur.
Preprint metninde маанилүү бир iç tutarsızlık vardır: Denklemde katsayı 75,53 катары yazılmıştır; теңдемеin hemen altındaki açıklamada болсо 73,53 = 106/(1,36 × 104) ifadesi yer almaktadır. Bu makalede изилдөө düzeltilmeden aktarılmıştır. Hakem değerlendirmesi öncesinde yazarlar tarafından açıklığa kavuşturulması gereken бир yazım же hesaplama tutarsızlığı бар.
Serbest sülfhidril өлчөмı her эки sistemde 270 W’ta en жогорку деңгээлe ulaşmıştır. Лецитинli örnekler aynı кубатteki лецитинsiz örneklerden sürekli daha жогорку değer көрсөткөн. Güç 360 жана 450 W’a çıktığında değerler азайган. Изилдөө bu azalmayı serbest radikal kaynaklı oksidasyon жана белокlerin кайра агрегацияsiyle түшүндүрөт.
Geçirgenlik тажрыйбаларi moleküller arası kuvvetleri кантип көрсөттү?
Bir белок dispersiyonunun ışık geçirgenliği; бөлүкчө өлчөмү, эригичтик, renk, агрегация жана бөлүкчөlar arası таасирlжубайimlerden таасирlenir. Küçük жана iyi dağılmış бөлүкчөlar genellikle ışığın daha fazla geçmesine izin verirken büyük kümeler ışığı daha fazla saçar.
Изилдөөчүлөр белок-лецитин таасирlжубайimlerinde кайсы kuvvetlerin маанилүү olduğunu değerlendirmek için örnekleri farklı çözeltilerde incelemiştir:
- NaCl, elektrostatik таасирlжубайimlerin таасириni değerlendirmek için kullanılmıştır.
- Üre, hidrojen bağlarının таасириni değerlendirmek için kullanılmıştır.
- SDS, гидрофобдук таасирlжубайimlerin таасириni değerlendirmek için kullanılmıştır.
Лецитинli örnekler genel катары daha жогорку geçirgenlik көрсөткөн. En dikkat çekici натыйжа, SDS камтыган ortamda her эки örneğin geçirgenliğinin neredeyse tam деңгээлe yaklaşmasıdır. SDS гидрофобдук таасирlжубайimleri bozarak kümelerin dağılmasını kolaylaştırdığı için bu bulgu, гранулдарыn агрегацияsinde гидрофобдук kuvvetlerin маанилүү бир rol oynadığını көрсөтөт.
NaCl ortamındaki geçirgenlik de deiyonize сууya жана üre ortamına kıyasla жогорку табылган. Изилдөөчүлөр genel катары гидрофобдук жана elektrostatik таасирlжубайimlerin гранул агрегацияsindeki негизги kuvvetler olduğunu, гидрофобдук таасирlжубайimlerin daha baskın göründüğünü belirtmiştir.
Burada kaynak metinde ikinci бир методsel yazım uyuşmazlığı бар. Метод bölümünde NaCl жана üre derişimleri 0,1 mol/L катары belirtilirken Şekil 2 başlığında пайыз 0,1 катары yazılmıştır. SDS her эки yerde de пайыз 0,1 катары verilmektedir. NaCl жана üre için кайсы birimin kesin катары kullanıldığı preprint içinde açıklığa kavuşturulmamıştır.
Floresans өлчөөлөр белокlerin үчүнчү түзүлүшүnı кантип yansıttı?
Floresans spektroskopisi, белок içindeki floresans verebilen bölgelerin çevresel koşullarındaki değişimleri izlemek için kullanılmıştır. Örnekler 395 nm dalga boyunda uyarılmış, 415-700 nm aralığındaki emisyon kaydedilmiştir.
Лецитинli örneklerin floresans şiddeti bütün ultrason кубатlerinde yalnızca гранул камтыган örneklerden daha төмөнtür. Изилдөөдө bu azalma, лецитинin гидрофобдук aminoasit kalıntılarıyla hidrojen bağları жана гидрофобдук таасирlжубайimler üzerinden ilişki kurmasına bağlanmıştır. Bu таасирlжубайimler, floresans veren grupların ışık yayma olasılığını azaltan sönümlenme oluşturmuş болушу мүмкүн.
270 W’ta белокlerin kısmen açılması жана гидрофобдук kalıntıların erişilebilir hâle gelmesi эмне үчүнiyle her эки sistemde görece жогорку floresans şiddeti gözlenmiştir. Güç 360 W жана üzerine çıktığında çarpışmalı sönümlenme, оксиданттык değişiklikler жана кайра агрегация эмне үчүнiyle floresans şiddeti азайган.
Bu eğilim, бөлүкчө өлчөмү, белоктун эригичтиги жана эркин сульфгидрил өлчөмındaki değişimlerle aynı yönü көрсөтөт. Böylece farklı өлчөө методleri tek бир mekanizmayı desteklemiştir: orta кубат белок түзүлүшүnı kontrollü biçimde gevşetirken ашыкча кубат bazı түзүлүштүк kazanımları geri çevirmektedir.
FTIR analizinde белокlerin экинчи түзүлүшү
Fourier dönüşümlü kızılötesi spektroskopisi, молекулалык bağların titrжубайimlerini izleyerek белок түзүлүшүndaki değişimlere ilişkin bilgi sağlar. Изилдөөдө 400-4.000 cm-1 aralığı taranmış, белок экинчи түзүлүшү açжылуулукndan касиетle 1.600-1.700 cm-1 arasındaki amid I bölgesi изилденген.
Лецитинli örneklerin amid I tepe noktaları, aynı кубатteki лецитинsiz örneklere göre 2,28 менен 6,88 cm-1 arasında değişen өлчөмlarda daha төмөн dalga sayжылуулукna kaymıştır. Bu kırmızıya kayma, лецитинin polar fosfat gruplarıyla белок karbonil grupları arasında hidrojen bağları oluşmasıyla ilişkilendirilmiştir.
İkincil түзүлүш çözümlemeleri genel катары şu değişimleri көрсөткөн:
- Topaklanmayla ilişkilendirilen β-tabaka oranı orta кубатlerde азайган.
- β-dönüş oranı көбөйгөн.
- α-heliks oranı yükselmiştir.
- Protein түзүлүшүnda kısmi açılma жана yeniden düzenlenme meydana gelmiştir.
Изилдөөnın yorumuna göre лецитин жана orta кубатte ultrason, гранулдары агрегацияye yatkın sıkı түзүлүшdan daha esnek жана hidratlanabilir бир түзүлүшya yöneltmiştir. Güç 360 жана 450 W’a yükseldiğinde эркин сульфгидрил өлчөмındaki düşüşe paralel катары α-heliks kazanımlarının бир bölümü tersine dönmüş жана β-tabaka oranı yeniden көбөйгөн.
Bu натыйжалар белокlerin tamamen parçalandığını же doğal касиеттериni bütünüyle kaybettiğini göstermez. Изилдөөnın kullandığı ifade жана табылгалар, daha çok kısmi açılma, konformasyonel gevşeme жана yeniden düzenlenmeye işaret etmektedir.
SEM görüntülerinde гранул morfolojisi
Taramalı elektron mikroskobu görüntüleri, dondurarak kurutulmuş гранулдарыn бет biçimini көрсөткөн. 270 жана 360 W uygulamalarında hem лецитинsiz hem de лецитинli örneklerin daha küçük түзүлүшlara ayrıldığı görülmüştür. Bu mikroskobik görüntü, dinamik ışık saçılımıyla ölçülen бөлүкчө өлчөмү натыйжаларıyla uyumludur.
450 W’a çıkıldığında daha büyük жана yeniden birlжубайmiş түзүлүшlar görünmektedir. Bu gözlem, ашыкча ultrasonun parçalama таасириnin yanında кайра агрегацияyi de tetikleyebildiğini desteklemektedir.
İki örnek arasında morfolojik farklar бар:
- Yalnızca жумуртканын сарысынын гранулу камтыган örnekler daha çok pulсуу, düzensiz жана tabaka benzeri түзүлүшlar oluşturmuştur.
- Лецитинli гранулдар daha yuvarlak, daha düzgün бетli жана daha homojen бөлүкчөlar hâlinde görünmüştür.
Изилдөөчүлөр bu farkı лецитинin гранул бетindeki işlevsel gruplarla таасирlжубайmesine bağlamıştır. Бирок bu morfolojinin oluşum mekanizmasının henüz tam açıklanmadığını da açıkça belirtmişlerdir.
SDS-PAGE белок bantları ne anlattı?
SDS-PAGE, белокleri görünür молекулалык салмакlarına göre ayırmak için kullanılmıştır. Жогорку молекулалык салмакlı 97-116 kDa civarındaki bantlar, изилдөөдө HDL менен ilişkili түзүлүшlar катары yorumlanmıştır.
Ultrason sonrasında bu bantlar алсызlamış, алсызlama лецитинli örneklerde daha belirgin olmuştur. Bu durum yoğun белок-липид kümelerinin daha küçük alt түзүлүшlara ayrılmasıyla ilişkilendirilmiştir.
Yaklaşık 35 kDa civarında fosvitinle ilişkilendirilen bant, лецитинli örneklerde daha алсыз görünmüştür. Изилдөөчүлөр bunun лецитинin açığa çıkan fosvitinle bağlanması жана белокin elektroforetik hareketini değiştirmesiyle ilişkili olabileceğini düşünmektedir.
180-270 W uygulanmış лецитинli örneklerde 44,3-66,4 kDa aralığında yeni же belirginlжубайen белок bantları görülmüştür. Изилдөөдө bunların ayrılmış LDL alt birimleri же kısmen parçalanmış HDL-fosvitin kompleksleri olabileceği öne sürülmüştür. Bu tanımlama kesin бир белок kimliği doğrulaması değildir; proteomik analiz түзүлүшlmadığı için olası бир mekanizma yorumu катары değerlendirilmelidir.
Önerilen молекулалык mekanizma
Изилдөөдөki mekanizma şeması, жумуртканын сарысынын гранулдарыni birbirine bağlı HDL, LDL, fosvitin жана kalsiyum-fosfat köprülerinden oluşan yoğun бир küme катары көрсөтөт.
Yalnızca ultrason колдонулганда:
- Granül kümeleri daha küçük parçalara ayrılır.
- Bazı kalsiyum-fosfat köprüleri жана гидрофобдук таасирlжубайimler алсызlar.
- Proteinlerde kısmi açılma meydana gelir.
- Çözünürlük жана беттик заряд artar.
Ultrason лецитинle бирге колдонулганда болсо лецитин molekülleri açılmış белок bölgeleriyle birlжубайir. Ortaya çıkan белок-fosfoлипид kompozit түзүлүшlar май-суу интерфейсüne бирге adsorbe olur. Изилдөөчүлөр bu түзүлүшların май damlacığı çevresinde daha yoğun жана жубай dağılımlı бир zar oluşturduğunu ileri sürmektedir.
Bu mekanizma tek бир өлчөөe dayanmamaktadır. Parçacık büyüklüğü, зета потенциалы, эригичтик, эркин сульфгидрил grupları, floresans, FTIR, SEM, SDS-PAGE жана konfokal mikroskopi натыйжаларının birbiriyle uyumlu eğilimleri üzerinden oluşturulmuştur.
Hazırlanan эмульсиялардын касиеттери
Emülsiyonlar, ultrasonla иштетилген сууlu гранул fazının соя майыyla 9:1 hacim oranında karıştırılmasıyla hazırlanmıştır. Seyreltme testinde эмульсиялар сууya bırakıldığında hızla dağılmış, майa bırakıldığında küresel тамчы biçimini korumuştur. Bu натыйжа her эки sistemin de май içinde суу değil, суу içinde май эмульсияu olduğunu көрсөтөт.
Башкача айтканда соя майы küçük тамчыlar hâlinde sürekli суу fazının içinde dağılmıştır. Günlük yaşamdan бир benzetmeyle, негизги fiziksel düzen mayonez benzeri май-суу sistemlerinin dağılım mantığına karşılık gelir; бирок изилдөө gerçek бир mayonez же başka бир коммерциялык ürün üretip test etmemiştir.
Emülsiyon тамчы өлчөмү жана беттик заряд
Granüllerin kendisinden farklı катары burada ölçülen büyüklük, hazırlanmış эмульсияdaki май тамчыларыnın ortalama hidrodinamik çapıdır.
Her эки эмульсия sisteminde en küçük ortalama тамчы өлчөмү 360 W’ta алынган. Granül-лецитин эмульсиялардынın тамчылары aynı кубатteki лецитинsiz эмульсияларdan sürekli daha küçüktür.
Grafik üzerinden yaklaşık okunduğunda 360 W’ta yalnızca гранулle hazırlanan эмульсияun тамчы өлчөмү yaklaşık 950 nm, лецитинli эмульсияun büyüklüğü болсо yaklaşık 850 nm деңгээлindedir. 450 W’ta her эки sistemde de тамчы өлчөмү yeniden көбөйгөн.
Emülsiyonların mutlak zeta potansiyelleri 270 жана 360 W’ta yükselmiştir. Лецитинli эмульсиялар daha жогорку mutlak беттик заряд көрсөткөн. Daha küçük тамчыларыn жана daha күчтүү elektrostatik itmenin бирге bulunması, тамчыларыn çarpışıp birlжубайmesini zorlaştırmaktadır.
Emülsifiye edici aktivite жана туруктуулук
Emülsifiye edici performans эки endeksle бааланган:
\[ \mathrm{EAI}\,(m^2/g) = \frac{T \times A_0 \times DF}{c \times \Phi \times 10^4} \]
Burada:
- EAI, emülsifiye edici aktivite indeksidir.
- T, 2,303 катары kullanılan dönüşüm katsayжылуулукdır.
- A0, эмульсия hazırlandıktan hemen sonra жана seyreltildikten sonra 500 nm’de ölçülen absorbans değeridir.
- DF, seyreltme faktörüdür.
- c, başlangıç örneğindeki белок derişimidir; birimi g/mL катары verilmiştir.
- Φ, эмульсияdaki май hacim fraksiyonudur.
EAI, бир gram белокin ne kadar май-суу интерфейсünü oluşturup kaplayabildiğini temsil eden бир ölçüdür. Daha жогорку EAI, белокin эмульсия oluşturma aşamasında daha таасирli olduğunu gösterir.
Emülsifiye edici туруктуулук indeksi şu şekilde hesaplanmıştır:
\[ \mathrm{ESI}\,(\mathrm{dakika}) = \frac{A_0 \times 10}{A_0-A_{10}} \]
Burada A10, эмульсияun 10 dakika sonraki absorbans değeridir. A0 менен A10 arasındaki fark küçükse absorbans daha yavaş değişmiş, dolayжылуулукyla ESI daha жогорку çıkmıştır.
Лецитинli эмульсиялар bütün кубатlerde daha жогорку EAI жана ESI көрсөткөн. En belirgin iyilжубайme 180-360 W aralığında görülmüş, en жогорку туруктуулук 360 W’ta kaydedilmiştir.
Grafik okumalarına göre лецитинli sistemin EAI değeri 180-360 W aralığında yaklaşık 86-89 m2/g деңгээлindeyken лецитинsiz sistem yaklaşık 70-74 m2/g aralığındadır. ESI açжылуулукndan daha büyük бир fark oluşmuştur: Лецитинli sistem 270 W’ta yaklaşık 44 dakika, 360 W’ta yaklaşık 46-47 dakika деңгээлine ulaşırken лецитинsiz sistem aynı кубатlerde yaklaşık 25-27 dakika civarında kalmıştır. Bu değerlerin изилдөө içindeki grafiklerden yaklaşık катары okunduğu, ham veri tabloсууnun verilmediği dikkate alınmalıdır.
Arayüze adsorbe olan белок өлчөмı
Araбет белок adsorpsiyon oranı şu формулаle hesaplanmıştır:
\[ \mathrm{AP}(\%) = \frac{C_S-C_O}{C_S} \times 100 \]
Burada:
- CS, эмульсияdaki toplam белок өлчөмıdır.
- CO, эмульсия santrifüjlendikten sonra сууlu fazda kalan белок өлчөмıdır.
- Toplam белок менен сууlu fazdaki белок arasındaki fark, интерфейсde adsorbe olduğu kabul edilen белок өлчөмını temsil eder.
Ultrason gücü, ne yalnızca гранул камтыган ne de лецитинli эмульсияларda белок adsorpsiyon oranını istatistiksel катары anlamlı biçimde değiştirmiştir. Изилдөөчүлөр bunu pH 8,0 koşullarında гранулдарыn kısmen çözünmüş olması жана интерфейс adsorpsiyonunun görece dengeli kalmasıyla açıklamıştır.
Bu натыйжа маанилүүdir. Emülsiyon туруктуулугуndaki gelişme yalnızca daha fazla белок molekülünün интерфейсe taşınmasıyla açıklanamamaktadır. Изилдөөnın bütün табылгаларı бирге değerlendirildiğinde, интерфейсdeki белок-лецитин tabakasının түзүлүшү, тамчы boyutu жана беттик заряд toplam adsorbe белок өлчөмından daha belirleyici görünmektedir.
Konfokal mikroskopi май тамчыларыnı кантип көрсөттү?
Konfokal lazer taramalı mikroskopide май жана белок fazları farklı boyalarla işaretlenmiştir. Nile Red май fazını, Nile Blue болсо белок же сууlu fazla ilişkili dağılımı görünür hâle getirmiştir. Birlжубайtirilmiş görüntülerde sarı örtüşme, белок жана fosfoлипид түзүлүшların май damlacığı çevresindeki ortak dağılımını temsil edecek şekilde yorumlanmıştır.
Төмөн ultrason кубатlerinde лецитинsiz эмульсияларda büyük жана birbirinden farklı boyutlarda тамчыlar менен seyrek белок kaplamaları görülmüştür. 270 жана 360 W uygulamalarında тамчыlar küçülmüş, daha жубай büyüklükte dağılmış жана çevrelerinde daha sürekli белок tabakaları oluşmuştur.
450 W’ta yeniden büyük, düzensiz жана birlжубайmeye eğilimli тамчыlar görülmüştür. Bu görüntü бөлүкчө өлчөмүnün yeniden artması жана ESI değerinin düşmesiyle uyumludur.
Лецитинli sistemlerde aynı кубат koşullarında daha küçük жана daha homojen тамчыlar бар. Özellikle 270 жана 360 W koşullarındaki sarı örtüşmenin belirginlжубайmesi, изилдөөчүлөр tarafından май damlacığı çevresinde yoğun белок-fosfoлипид kompozit tabaka oluşmasının далилı катары yorumlanmıştır.
Жылуулукl туруктуулук
Hazırlanan эмульсиялар 0, 60 жана 90 °C’de 30 dakika tutulmuş, oda sıcaklığına soğutulduktan sonra бөлүкчө büyüklükleri, zeta potansiyelleri жана görsel faz ayrımları изилденген.
Sıcaklık arttıkça bütün эмульсияларda ortalama тамчы өлчөмү artmış жана зета потенциалыnin mutlak değeri азайган. Bu durum, жылуулук таасириyle белок tabakasının yeniden düzenlenebildiğini, elektrostatik itmenin алсызladığını жана тамчыларыn birlжубайmeye daha yatkın hâle geldiğini көрсөтөт.
0 °C’de her эки sistemde belirgin faz ayrımı görülmemiştir. 60 жана 90 °C’de yalnızca гранулle hazırlanan эмульсияларda belirgin ayrışma ortaya çıkmıştır. Лецитинli эмульсиялар aynı температураlarda daha küçük бөлүкчөлөрү жана daha жогорку mutlak зета потенциалыni koruyarak салыштырууlı катары daha туруктуу kalmıştır.
Bu натыйжа лецитинli эмульсиялардын жылуулукdan hiç таасирlenmediği anlamına gelmez. Grafikler, температураla бирге лецитинli sistemlerde de тамчы büyümesi жана беттик заряд kaybı olduğunu көрсөтөт. Doğru yorum, лецитинin термиялык bozulmayı tamamen ortadan kaldırmadığı; бирок лецитинsiz гранул эмульсиялардынa göre azalttığıdır.
Туз туруктуулугу
Emülsiyonlar 0, 50 жана 100 mmol/L NaCl koşullarında үч saat bekletilmiştir. Туз derişimi yükseldikçe bütün örneklerde тамчы өлчөмү artmış жана mutlak зета потенциалы düşmüştür.
Туз iyonları, тамчы бетindeki elektrik yüklerini perdeleyebilir. Yüzey yükünün таасири алсызladığında тамчыlar arasındaki elektrostatik itme azalır жана тамчыlar birbirine yaklaşarak kümelenebilir.
Yalnızca жумуртканын сарысынын гранулуyle hazırlanan эмульсиялар 50 жана 100 mmol/L NaCl koşullarında belirgin faz ayrımı көрсөткөн. Лецитинli sistemler болсо туз kaynaklı tabakalaşmaya daha жогорку direnç көрсөткөн.
100 mmol/L NaCl altında лецитинli sistemlerin бөлүкчөлөрү da büyümüş жана mutlak бет yükleri азайган. Bu эмне үчүнle изилдөө тузa karşı mutlak bağışıklık değil, салыштырууlı катары daha жогорку direnç көрсөтөт.
Изилдөөnın literatürde cevap verdiği boşluk
Daha önce жогорку интенсивдүүлүктөгү ультраүнun жумуртканын сарысынын гранулдарыni parçaladığı, белоктун эригичтигиnü жана bazı işlevsel касиеттери geliştirdiği gösterilmişti. Лецитинin de белокlerle таасирlжубайerek эмульсия касиеттериni değiştirebildiği biliniyordu.
Bu изилдөөnın katkжылуулук, эки yaklaşımı yalnızca ayrı ayrı değerlendirmek yerine 90-450 W arasındaki бир кубат dizisi boyunca бирге incelemesidir. Мындан тышкары натыйжаларı tek бир performans өлчөөüne dayandırmamış; бөлүкчө өлчөмү, беттик заряд, эригичтик, bağlama kapasitesi, sülfhidril grupları, geçirgenlik, floresans, FTIR, elektron mikroskopisi, elektroforez, konfokal mikroskopi, термиялык туруктуулук жана туз туруктуулугу gibi çok sayıda өлчөөü birlжубайtirmiştir.
Bu çok ölçekli yaklaşım sayesinde makroskopik эмульсия davranışı, белок деңгээлindeki түзүлүштүк değişimlerle ilişkilendirilmiştir. Daha küçük тамчы жана жогорку ESI gibi натыйжаларın yalnızca mekanik parçalanmadan değil, белокlerin açılması, лецитинle таасирlжубайmesi жана интерфейс катмарыnın yeniden kurulmasından kaynaklandığı öne sürülmüştür.
Өткөн, бүгүнкү жана келечек жагынан мааниси
Geçmiş açжылуулукndan изилдөө, жумуртканын сарысынын гранулдарыnin işlevsel kullanımını sınırlayan төмөн эригичтик problemini hedefleyen önceki ultrason, pH, enzim жана katkı maddesi изилдөөlarının devamıdır. Önceki изилдөөlar ultrasonun гранулдары parçalayabildiğini көрсөткөн; bu изилдөө болсо лецитинin bu süreçte кантип tamamlayıcı бир rol oynayabileceğini araştırmıştır.
Bugün açжылуулукndan изилдөө, gıda формулаasyonlarında doğal белок-липид komplekslerinin fiziksel yollarla düzenlenmesine ilişkin бир laboratuvar модельi сууnmaktadır. Kimyasal modifikasyon yerine ultrason gibi fiziksel бир işlem kullanılması, изилдөө tarafından çevreci жана verimli бир düzenleme yaklaşımı катары değerlendirilmektedir.
Gelecek açжылуулукndan табылгалар; төмөн холестеринlü gıdalar, fonksiyonel азык ташуу системалары жана жылуулук же туз камтыган эмульсия формулаasyonları için изилдөө zemini oluşturabilir. Bununla бирге изилдөө henüz gerçek бир өнөр жайлык ürün, raf ömrü, tüketici kabulü же büyük ölçekli üretim performansı göstermemektedir.
Gündelik yaşama жана тамак-аш технологиясыne olası таасири
Birçok gıda ürünü, birbirine doğal катары karışmayan май жана сууyun küçük тамчыlar hâlinde бир arada tutulmasına dayanır. Damlacıklar büyüyüp birlжубайirse ürün tabakalaşabilir, dokuсуу değişebilir же kullanım sırasında kararsız davranabilir.
Bu изилдөөnın yaklaşımı, doğal жумуртканын сарысынын гранулдарыnin daha küçük, daha эрий турган жана daha жогорку бет yüklü hâle getirilerek май тамчылары çevresinde daha таасирli бир koruyucu tabaka oluşturmasını hedeflemektedir. Жылуулук жана тузa karşı daha dayanıklı бир интерфейс, иштетүү sırasında температура gören же iyonik компонентler камтыган gıda sistemleri açжылуулукndan yararlı болушу мүмкүн.
Бирок bu potansiyel doğrudan коммерциялык ürün başarжылуулук катары yorumlanmamalıdır. Изилдөөдө:
- Gerçek бир karmaşık gıda matrisi формулаe edilmemiştir.
- Duyusal analiz түзүлүшlmamıştır.
- Uzun süreli raf ömrü değerlendirilmemiştir.
- Sindirim, besin biyoyararlanımı же ден соолук таасири ölçülmemiştir.
- Endüstriyel ölçekli ultrason sistemi test edilmemiştir.
- Enerji tüketimi же ekonomik maliyet analizi сууnulmamıştır.
Изилдөөнүн күчтүү жактары
- Ultrason gücü tek бир деңгээлde değil, 90-450 W arasında bжубай basamakta изилденген.
- Лецитинli жана лецитинsiz sistemler aynı кубат деңгээлдеринде салыштырылган.
- Granül касиеттери менен nihai эмульсия касиеттери ayrı ayrı бааланган.
- Protein түзүлүшү floresans, FTIR жана SDS-PAGE gibi birbirini tamamlayan методlerle изилденген.
- Parçacık morfolojisi SEM, эмульсия тамчылары болсо CLSM менен görsellжубайtirilmiştir.
- Yalnızca taze эмульсия performansı değil, 60-90 °C температура жана 50-100 mmol/L NaCl koşullarındaki dayanım da бааланган.
- Deneyler en az үч kez tekrarlanmış жана натыйжалар ortalama ± standart sapma катары сууnulmuştur.
- Tek yönlü ANOVA жана Tukey çoklu салыштыруу testi kullanılarak P < 0,05 anlamlılık деңгээлi колдонулган.
Изилдөөнүн чектөөлөрү
Изилдөөчүлөрın açıkça belirttiği негизги sınırlılıklardan biri, yalnızca tek бир лецитин derişiminin kullanılmış olmasıdır. Пайыз 0,30 лецитинle elde edilen натыйжалар, daha төмөн же жогорку лецитин өлчөмlarında aynı şekilde ortaya çıkmayabilir.
İkinci sınırlılık, тажрыйбаларin basitlжубайtirilmiş laboratuvar dispersiyonları жана соя майы эмульсияларı üzerinde түзүлүшlmış olmasıdır. Gerçek gıdalarda şekerler, тузlar, asitler, polisakkaritler, başka белокler жана farklı майlar aynı anda bulunabilir. Bu компонентler белок-лецитин таасирlжубайimlerini değiştirebilir.
Üçüncü катары, лецитинin belirli yumurta sarжылуулук белок fraksiyonlarıyla kurduğu молекулалык таасирlжубайimler kesin катары tanımlanmamıştır. Изилдөөчүлөр ileri spektroskopik же proteomik методlerle bu таасирlжубайimlerin ayrıntılı катары incelenmesi gerektiğini belirtmiştir.
Ek катары изилдөө:
- Uzun süreli depolama туруктуулугу сууnmamaktadır.
- Farklı pH koşullarını sistematik катары салыштырууmaktadır.
- Farklı ultrason süreleri же darbeli изилдөө oranlarını салыштырууmaktadır.
- 450 W’taki olası oksidasyonu doğrudan oksidasyon belirteçleriyle ölçmemektedir.
- SDS-PAGE’de görülen yeni bantların kimliğini kütle spektrometrisiyle doğrulamamaktadır.
- Endüstriyel ölçek büyütme тажрыйбаi içermemektedir.
Изилдөөдө “sinerji” ifadesi, aynı ultrason gücünde лецитинli sistemlerin çoğu ölçütte daha iyi натыйжа vermesi жана farklı түзүлүштүк analizlerin birbiriyle uyumlu olması üzerinden kullanılmaktadır. Bununla бирге метод bölümünde ultrason gücü жана лецитин varlığı arasındaki faktöriyel таасирlжубайimi hesaplayan эки yönlü бир ANOVA же bağımsız бир sinerji katsayжылуулук raporlanmamıştır.
Изилдөө эмне дейт, ne söylemiyor?
Изилдөөnın desteklediği натыйжалар:
- Orta деңгээл жогорку интенсивдүүлүктөгү ультраүн, жумуртканын сарысынын гранулдарыnin бөлүкчө өлчөмүnü azaltabilir.
- 270-360 W aralığı çoğu işlevsel ölçütte эң ылайыктуу aralık катары görünmektedir.
- Лецитин, гранул parçalanmasını жана белоктун эригичтигиnü destekleyebilir.
- Лецитинli эмульсиялар daha küçük тамчы, daha жогорку mutlak зета потенциалы жана daha жогорку EAI/ESI көрсөткөн.
- Proteinlerin экинчи жана үчүнчү түзүлүшүnda kısmi açılma жана yeniden düzenlenme oluşmuştur.
- Лецитинli эмульсиялар 60-90 °C температура жана 50-100 mmol/L NaCl koşullarında лецитинsiz эмульсияларdan daha туруктуу kalmıştır.
- 450 W, bazı yararlı таасирлерi azaltan кайра агрегация же оксиданттык değişimlerle ilişkilendirilmiştir.
Изилдөөnın göstermediği натыйжалар:
- Teknolojinin bütün gıda ürünlerinde aynı performansı göstereceği далилденген эмес.
- 270 же 360 W’ın bütün ultrason cihazları жана üretim ölçekleri için evrensel optimum olduğu gösterilmemiştir.
- Лецитинli sistemlerin sınırsız термиялык же туз туруктуулугуna ээ olduğu gösterilmemiştir.
- Herкайсы бир ден соолук, tedavi же klinik fayda gösterilmemiştir.
- Төмөн холестеринlü nihai бир ürün geliştirilip besinsel же duyusal катары test edilmemiştir.
- Endüstriyel колдонууга жарактуулук, maliyet, enerji verimliliği же коммерциялык başarı далилденген эмес.
- Изилдөө рецензиядан өтө элек.
Изилдөөнүн методу жана табылгалары
Teknik тажрыйба akışı
| Aşama | Uygulanan işlem | Негизги koşullar |
|---|---|---|
| Granül izolasyonu | Yumurta sarжылуулукnın seyreltilmesi, bekletilmesi жана santrifüjü | Su oranı 1:1,5; pH 7,0; 4 °C’de gece boyunca bekletme; 8.000 g, 45 dakika, 4 °C |
| Granüllerin kurutulması | Çökelti fraksiyonunun dondurarak kurutulması | Kuruyan örnekler EYGs катары saklandı |
| Лецитинli kompleks | Granül dispersiyonuna лецитин eklenmesi | Protein 6 mg/mL; лецитин пайыз 0,30 ağırlık/hacim; pH 8,0 |
| Ultrason | Prob tipi жогорку интенсивдүүлүктөгү ультраүн | 90, 180, 270, 360 жана 450 W; 8 dakika; 3 saniye açık/2 saniye kapalı; buzlu суу banyoсуу |
| Emülsiyon hazırlığı | Sulu faz менен соя майыnın homojenizasyonu | Su fazı:май = 9:1; 12.000 devir/dakika; 2 dakika |
| Жылуулукl dayanım | Su banyoсууnda жылуулук колдонулушу | 0, 60 жана 90 °C; 30 dakika |
| Туз dayanımı | NaCl eklenmesi жана bekletme | 0, 50 жана 100 mmol/L NaCl; 25 °C; 3 saat |
| İstatistik | Tek yönlü ANOVA жана Tukey testi | SPSS 26.0; P < 0,05; en az үч tekrar |
Kullanılan өлчөө жана görüntüleme методleri
| Метод | Ölçülen касиет | Изилдөөдөki amacı |
|---|---|---|
| Dinamik ışık saçılımı | Parçacık/тамчы өлчөмү жана зета потенциалы | Dağılım жана kolloidal туруктуулугу аныктоо |
| Su жана май bağlama testleri | WBC жана OBC | Granül бетinin суу жана липидle таасирlжубайim yeteneğini ölçmek |
| Coomassie Brilliant Blue testi | Protein эригичтиги | Sulu faza geçen белок oranını аныктоо |
| Ellman reaktifi | Serbest sülfhidril grupları | Protein açılması жана оксиданттык/түзүлүштүк değişimleri izlemek |
| UV-Vis geçirgenlik | 500 nm’de ışık geçirgenliği | Dağılımı жана moleküller arası kuvvetlerin таасириni değerlendirmek |
| Floresans spektroskopisi | 395 nm uyarım, 415-700 nm emisyon | Proteinlerin үчүнчү түзүлүш çevresindeki değişimleri izlemek |
| FTIR | 400-4.000 cm-1; amid I bölgesi | Hidrojen bağlarını жана экинчи түзүлүш değişimlerini değerlendirmek |
| SEM | Kurutulmuş гранул morfolojisi | Parçalanma, бет түзүлүшү жана кайра агрегацияyi görüntülemek |
| SDS-PAGE | Protein молекулалык салмак dağılımı | HDL, fosvitin жана olası alt түзүлүш değişimlerini değerlendirmek |
| CLSM | Yağ damlacığı жана белок/fosfoлипид dağılımı | Arayüz tabakasını жана тамчы homojenliğini görüntülemek |
| EAI жана ESI | Emülsiyon oluşturma таасирnliği жана kısa süreli туруктуулук | Proteinlerin emülsifiye edici performansını салыштырууk |
| Protein adsorpsiyon oranı | Arayüze adsorbe olduğu kabul edilen белок пайызsi | Ultrasonun toplam интерфейс белок өлчөмını değiştirip değiştirmediğini аныктоо |
Негизги формулаler
\[ \mathrm{WBC} = \frac{m_1-m_0}{m_0} \]
Su bağlama kapasitesini verir. m0 kuru örnek kütlesi, m1 serbest суу uzaklaştırıldıktan sonraki kütledir.
\[ \mathrm{OBC} = \frac{m_1-m_0}{m_0} \]
Yağ bağlama kapasitesini verir. Aynı kütle ilişkisi kullanılır; sıvı faz катары соя майы uygulanır.
\[ \text{Serbest sülfhidril içeriği} = \frac{75.53 \times A_{412} \times D}{C} \]
A412 absorbans, D seyreltme faktörü жана C белок derişimidir. Denklem katsayжылуулук менен açıklama metni arasında 75,53/73,53 uyuşmazlığı vardır.
\[ \mathrm{EAI}\,(m^2/g) = \frac{2.303 \times A_0 \times DF}{c \times \Phi \times 10^4} \]
Proteinin май-суу интерфейсü oluşturma таасирnliğini temsil eder.
\[ \mathrm{ESI}\,(\mathrm{dakika}) = \frac{A_0 \times 10}{A_0-A_{10}} \]
Emülsiyon absorbansının ilk 10 dakika içinde ne ölçüde korunduğunu билдирет.
\[ \mathrm{AP}(\%) = \frac{C_S-C_O}{C_S} \times 100 \]
Toplam белок менен сууlu fazda kalan белок farkından интерфейсe adsorbe белок oranını hesaplar.
Табылгаларın teknik özeti
| Ölçüt | En маанилүү bulgu | En ылайыктуу кубат bölgesi | 450 W’taki davranış |
|---|---|---|---|
| Granül бөлүкчө өлчөмү | Ultrason küçülttü; лецитинli örnekler daha küçüktü | Лецитинli гранулдарde minimum 270 W | Лецитинli sistemde yeniden büyüme |
| Granül зета потенциалы | Mutlak беттик заряд arttı; лецитинli sistem daha жогоркуti | Maksimum mutlak değer 360 W | Mutlak değer azaldı |
| Su bağlama | Лецитинli örnekler bütün кубатlerde daha жогоркуti | 270-360 W | Yeniden агрегацияyle düşüş |
| Yağ bağlama | Лецитинsiz гранулдар bütün кубатlerde daha жогоркуti | Лецитинsiz sistemde 360 W | Hidrofobik bölgelerin yeniden gömülmesiyle düşüş |
| Protein эригичтиги | Лецитинli sistem daha жогорку эригичтик көрсөттү | 270-360 W | Her эки sistemde azalma |
| Serbest sülfhidril | Лецитинli sistem daha жогорку değer көрсөттү | Maksimum 270 W | Oksidasyon жана yeniden gömülmeyle düşüş |
| İkincil белок түзүлүшү | β-tabaka azaldı, α-heliks жана β-dönüş arttı | Orta кубатler | Yararlı yeniden düzenlenmenin kısmi tersine dönmesi |
| Emülsiyon тамчы өлчөмү | Лецитинli эмульсиялар daha küçük тамчыlara sahipti | Minimum 360 W | Damlacık büyüklüğü yeniden arttı |
| EAI | Лецитинli sistem bütün кубатlerde daha жогоркуti | 180-360 W | Azalma |
| ESI | En belirgin лецитин таасири эмульсия туруктуулугуnda görüldü | Maksimum 360 W | Keskin düşüş |
| Protein adsorpsiyon oranı | Ultrason gücüne bağlı anlamlı değişim bulunmadı | Belirgin optimum yok | Anlamlı кубат таасири raporlanmadı |
| Жылуулукl туруктуулук | Лецитинli sistem 60 жана 90 °C’de daha az ayrıştı | Orta кубатte иштетилген лецитинli sistemler | Aşırı ultrason интерфейс туруктуулугуnı azaltabildi |
| Туз туруктуулугу | Лецитинli sistem 50 жана 100 mmol/L NaCl’de daha dirençliydi | Orta кубатte иштетилген лецитинli sistemler | Жогорку кубатte kazanımların бир bölümü kayboldu |
Şekillerin бирге anlattığı натыйжа
Şekil 1, гранул büyüklüğü, зета потенциалы, суу жана май bağlama, эригичтик жана sülfhidril натыйжаларının tek бир optimum кубат penceresine işaret ettiğini көрсөтөт. Лецитин birçok касиетte iyilжубайme sağlarken май байлоо жөндөмдүүлүгүni düşürmüştür.
Şekil 2, касиетle SDS varlığında жогорку geçirgenlik oluşması üzerinden гранул агрегацияsinde гидрофобдук таасирlжубайimlerin baskın rolünü desteklemektedir.
Şekil 3’teki floresans, FTIR, экинчи түзүлүш, SEM жана SDS-PAGE натыйжаларı; orta кубатte белокlerin kısmen açıldığını, kümelerin parçalandığını жана лецитинle yeni бир түзүлүштүк düzen oluştuğunu көрсөтөт. 450 W’ta кайра агрегация belirtileri ortaya çıkmaktadır.
Şekil 4, изилдөөчүлөрın önerdiği mekanizmayı özetlemektedir: Ultrason гранул bağlarını алсызlatırken лецитин açığa çıkan белокlerle birlжубайmekte жана белок-fosfoлипид kompozit түзүлүшlar oluşturmaktadır.
Şekil 5, bu молекулалык değişimlerin эмульсия performansına yansımasını көрсөтөт. Damlacık büyüklüğü 360 W’ta en төмөн, EAI жана ESI değerleri лецитинli sistemde en жогорку деңгээлdedir. Protein adsorpsiyon oranının değişmemesi, интерфейс kalitesinin toplam белок өлчөмından daha маанилүү olabileceğini düşündürmektedir.
Şekil 6’daki konfokal görüntüler, 270-360 W лецитинli sistemlerde küçük жана homojen тамчыlar менен daha yoğun ortak белок-fosfoлипид интерфейсünü көрсөтөт.
Şekil 7 жана Şekil 8, лецитинli sistemlerin sırasıyla 60-90 °C жылуулук жана 50-100 mmol/L NaCl stresine karşı daha жогорку салыштырууlı туруктуулук көрсөттүğini ortaya koymaktadır. Бирок her эки stres koşulu da бөлүкчө өлчөмүnü artırmış жана mutlak зета потенциалыni azaltmıştır.
Булак жана метод эскертмеси
Bu мазмун, Xincheng Meng, Zeyu Gong, Xiyu Zhang, Huaicheng Yu, Yuemeng Wang, Jing Li жана Xin Li tarafından hazırlanan “Synergistic reмодельing of egg yolk granules by high-intensity ultrasound and lecithin: Towards high-stability emulsification systems” başlıklı изилдөөya dayanmaktadır.
Изилдөө SSRN üzerinden сууnulmuş бир preprint изилдөө makalesidir. Metinde açıkça “This preprint research paper has not been peer reviewed” uyarжылуулук бар. Bu эмне үчүнle изилдөө рецензиядан өтө элек. Sunulan metinde DOI же бир bilimsel dergide kabul bilgisi yer almamaktadır.
Изилдөө клиникалык изилдөө эмес. İnsan же жаныбар sağlığı üzerinde tedavi edici таасир incelememektedir. Жумуртканын сарысынын гранулдары, лецитин жана соя майыyla gerçeklжубайtirilen laboratuvar ölçekli бир gıda kimyası жана эмульсия тажрыйбаi niteliğindedir.
Makaledeki bütün açıklamalar yüklenen изилдөөnın методlerine, grafiklerine, şekillerine жана yazarların натыйжа yorumlarına dayanmaktadır. Изилдөөдө bulunmayan klinik fayda, ден соолук garantisi, коммерциялык başarı, өнөр жайлык колдонууга жарактуулук, duyusal kalite же kesin raf ömrü iddiası eklenmemiştir.
Изилдөө orta кубатte ultrason жана лецитинin бирге kullanılmasının umut verici olduğunu көрсөтөт; бирок yalnızca пайыз 0,30 лецитин derişimi, belirli бир prob tipi, 50 mL örnek hacmi жана 8 dakikalık işlem koşulu изилденген. Натыйжаларın farklı cihazlara, büyük üretim hacimlerine же karmaşık gıda ürünlerine doğrudan aktarılabilmesi için ek doğrulama gereklidir.
Preprint içinde эркин сульфгидрил теңдемеindeki 75,53/73,53 katsayı uyuşmazlığı менен NaCl жана üre çözeltilerinin метод bölümünde 0,1 mol/L, şekil açıklamasında болсо пайыз 0,1 катары yazılması dikkatle değerlendirilmelidir. Bu tutarsızlıklar изилдөө değiştirilmeden жана düzeltilmeden aktarılmıştır.
Yazarların kullandığı “sinerjik таасир” ifadesi, лецитинli örneklerin aynı ultrason gücündeki лецитинsiz örneklerden daha жогорку performans göstermesine жана çoklu түзүлүштүк analizlerin uyumuna dayanmaktadır. Ayrı бир faktöriyel таасирlжубайim testi же sayısal sinerji indeksi raporlanmamıştır.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген